בדיקת FRET ברזולוציית זמן מנטרת את קינטיקת פירוק הסובסטרט של Mpro כדי להעריך אם PROTACs משפיעים על הפעילות האנזימטית, ובכך מאפשרת הפרדה פונקציונלית בין השפעות של פירוק להשפעות של עיכוב.
מאמר שיטה
בדיקת פעילות FRET ברזולוציית זמן להבחנה בין עיכוב אנזימטי לבין פירוק בתיווך PROTAC של Mpro של SARS-CoV-2
במאמר זה
סיכום
תקציר
כימרות המכוונות לפרוטאוליזה (PROTACs) הופכות לאסטרטגיה מבטיחה לפיתוח תרופות אנטי-ויראליות, והן נבדלות מנגנונית ממעכבים קלאסיים של מולקולות קטנות. עיצובים רבים של PROTACs המכוונים לפרוטאזות ויראליות, כגון הפרוטאזה הראשית של SARS-CoV-2 (Mpro), משתמשים ב"ראשי קרב" (warheads) הגזורים ממעכבי אתר פעיל, ובכך משלבים דגרדציה מושרית קרבה עם עיכוב אנזימטי פוטנציאלי. פונקציונליות כפולה זו מקשה על ההבחנה הניסוית בין השפעות המונעות על ידי דגרדציה לבין עיכוב ישיר של הפעילות הקטליטית על השכפול הוויראלי. כדי לטפל בכך, ביססנו בדיקה המבוססת על העברה של אנרגיית תהודה פלואורסצנטית (FRET) לכימות הפעילות הקטליטית של Mpro רקומביננטי בנוכחות מעכבים ודגרדרים. הבדיקה משתמשת בסובסטרט פפטידי פלואורוגני מושתק (MI-2822) המכיל את רצף הפילוח הקנוני של Mpro, המוקף בפלואורופור ובמכבה (quencher). פילוח פרוטאוליטי גורם לעלייה פלואורסצנטית תלוית-זמן, המאפשרת ניטור קינטי רציף של פעילות האנזים. Mpro רקומביננטי המבוטא ב-Escherichia coli מטהר ומודגרא עם סובסטרט ה-FRET תחת תנאי בופר מוגדרים, והפלואורסצנציה נרשמת לאורך זמן כדי להפיק פרופילים של פעילות אנזימטית. הבדיקה נשלטת באמצעות המעכב לאתר הפעיל המאושר קלינית nirmatrelvir, המדכא ביעילות את פילוח הסובסטרט. לעומת זאת, PROTACs המכוונים ל-Mpro מחוץ לסדק הקטליטי אינם מפחיתים באופן משמעותי את העלייה בפלואורסצנציה, מה שמעיד על כך שהם אינם מעכבים באופן מדיד את הפעילות האנזימטית תחת התנאים שנבדקו. פרוטוקול זה מספק גישה חזקה וניתנת לשחזור להבחנה בין עיכוב אנזימטי למנגנונים הקשורים לדגרדציה. הוא ישים באופן רחב לאפיון מנגנוני של PROTACs ומולקולות בי-פונקציונליות אחרות המכוונות לפרוטאזות ויראליות.
מבוא
פירוק חלבונים מכוון (TPD) רותם את מערכת העוביקוויטין-פרוטאוזום (UPS) התאית כדי לסלק באופן סלקטיבי חלבונים רצויים. אסטרטגיה זו מבוססת על מולקולות דו-פונקציונליות (heterobifunctional), המכונות בדרך כלל כימרות המכוונות לפרוטאוליזה (PROTACs), אשר נקשרות בו-זמנית לחלבון מטרה ולליגאז E3 עוביקוויטין2. ליגאזים של E3 עוביקוויטין מייצגים מחלקה גדולה ומגוונת של אנזימים תאיים3 המקטליזים את העוביקוויטינציה של חלבוני מצע, ובכך מסמנים אותם לפירוק פרוטאוזומלי4.
מולקולות PROTAC מורכבות מליגנד לחלבון המטרה ומליגנד לליגאז E3, המחוברים באמצעות מקשר (linker) כימי5. על ידי יצירת קרבה בין חלבון המטרה לליגאז E3, הן מקדמות היווצרות של קומפלקס טרנרי המאפשר העברת יוביקוויטין ופירוק עוקב של חלבון המטרה על ידי הפרוטאוזום6,7. בהשוואה למעכבים קלאסיים של מולקולות קטנות, גישה זו מציעה מספר יתרונות8. מולקולות PROTAC יכולות לפעול באופן קטליטי, דבר המאפשר דלדול יעיל של המטרה בריכוזים נמוכים יותר, והן יכולות לנצל ליגנדים או מעכבים קיימים כיחידות תיווך למטרה5. יתרה מכך, אסטרטגיות מבוססות פירוק עשויות לשמר את יעילותן בנוכחות מוטציות המעניקות עמידות9,10ויכולות להיות ישימות לחלבונים שקשה לעכב באופן ישיר, כגון חלבונים שחסרים כיסי קישור מוגדרים היטב11.
בהקשר של פיתוח תרופות אנטי-ויראליות, PROTACs רבים שדווחו ככאלה המכוונים לחלבונים ויראליים מסתמכים על "ראשים קרביים" (warheads) שנגזרו מעכבים של האתר הפעיל10,12,13,14. כתוצאה מכך, מולקולות אלו משלבות לעיתים קרובות עיכוב אנזימטי עם דלדול של המטרה המונע על ידי דגרדציה, דבר המסבך את הפרשנות המכניסטית של הפעילות האנטי-ויראלית. בעוד שבדיקות אנטי-ויראליות תאיות משלבות את התוצאה המשולבת של תהליכים מרובים, כולל דגרדציה של המטרה ועיכוב של השכפול הויראלי, הן לרוב אינן מאפשרות הבחנה ברורה בין השפעות המונעות על ידי עיכוב לבין השפעות המונעות על ידי דגרדציה. בנוסף, לחלבונים ויראליים רבים חסרים כיסים של קישור או אתרים קטליטיים המוגדרים בבירור, מה שמגביל את נגישותם לאסטרטגיות תכנון נוכחיות של PROTAC.
כדי להתמודד עם אתגר זה, פיתחנו בדיקה המבוססת על העברה של אנרגיית תהודה פלואורסצנטית (FRET) תוך שימוש בסובסטרט פפטידי של SARS-CoV-2 Mpro, המאפשרת ניטור של פעילות אנזימטית ברזולוציית זמן. גישה זו מאפשרת להבחין בין השפעות הקשורות ל-PROTAC לבין עיכוב אנזימטי ישיר. באמצעות בדיקה זו, הערכנו מפרק (degrader) המכוון ל-Mpro, הנקשר מחוץ לסדק הקטליטי ואינו מפריע באופן מדיד לפעילות הפרוטאז בתנאים שנבחנו, תוך שהוא שומר על יכולת הפירוק שלו. במקביל, נעשה שימוש במעכב ה-Mpro המאושר קלינית nirmatrelvir כביקורת, והוא הוביל להפחתה ניכרת בפעילות האנזימטית.
לסיכום, בדיקה זו מספקת שיטה חסונה להבחנה בין עיכוב אנזימטי לבין השפעות הקשורות לפירוק. היא בעלת ערך רב במיוחד לאפיון של מפרקים (degraders) המכוונים לחלבונים פעילים אנזימטית, שבהם הפרדה בין מנגנונים אלו חיונית להבנת פעילותם האנטי-ויראלית (איור 1).
פרוטוקול
1. הכנת החומרים
- הכנת מערכת הביטוי
- השתמש בתאים כימית כשירים (chemically competent) מסוג Escherichia coli BL21 Rosetta2 כמארח הביטוי.
- השתמש בווקטור ביטוי pET28a(+) המקודד ל-SARS-CoV-2 Mpro עם תגי 6× histidine בקצוות ה-N וה-C.
- הכנת מצע הגידול
- הכן 5 L של מצע Luria–Bertani (LB) על ידי המסה של 10 g/L tryptone, 5 g/L yeast extract ו-10 g/L sodium chloride (NaCl) במים מזוקקים. סטריליזציה של המצע תתבצע באוטוקלאב ב-121 °C למשך 20 min.
- הכנת תמיסת המלאי של IPTG
- המס 4.20 g של IPTG ב-45 mL של מים מזוקקים כדי להכין תמיסת מלאי בריכוז 0.4 M. יש לשמור את תמיסת המלאי ב-−20 °C.
- הכנת הבאפרים
- הכן 1 L של באפר ליזיס ל-Mpro (MLB) המכיל 50 mM Tris, 300 mM NaCl, 5% glycerol ו-0.5% Triton X-100 (pH 7.5).
- הכן 4 L של באפר חלבון ל-Mpro (MB) המכיל 20 mM Tris ו-150 mM NaCl (pH 7.5).
- הכן 500 mL של באפר שטיפה (WB) המכיל 20 mM Tris, 150 mM NaCl ו-20 mM imidazole (pH 7.5).
- הכן 100 mL מכל אחד מבאפר אלוציה 1 (100 mM imidazole), באפר אלוציה 2 (250 mM imidazole) ובאפר אלוציה 3 (500 mM imidazole), כאשר כל אחד מהם מכיל 20 mM Tris ו-150 mM NaCl (pH 7.5).
- הכן 1 mL של באפר דגימה 4× המכיל mercaptoethanol, bromophenol blue, glycerol, Tris (pH 6.8), sodium dodecyl sulfate (SDS) ומים מזוקקים.
- הכן 1 L של phosphate-buffered saline (PBS) המכיל KCl, KH₂PO₄, Na₂HPO₄ ו-NaCl במים מזוקקים.
2. Mמקצועי ביטוי ב- Escherichia coli
- טרנספורמציה של פלסמיד הביטוי לתוך E. coli
- הכן תאי E. coli Rosetta2 כשירים כימית באמצעות ערכה מסחרית לטרנספורמציה. חפח 5 mL של מצע super optimal broth (SOB) והדגר את התרבית למשך לילה ב-37 °C עם ניעור.
- העבר את תרבית הלילה לתוך 100 mL של מצע SOB וגדל את התאים עד ל-OD600 של 0.4–0.5. קרר את התרבית על קרח וסבב בצנטריפוגה במהירות של 1,800 × g למשך 5 min.
- שטוף את משקע התאים פעמיים עם באפר שטיפה ותלה אותו מחדש בבאפר כשירות. חלק ל-aliquots של 50 µL של תאים כשירים ואחסן אותם ב-−70 °C.
- טרנספורמציה של פלסמיד הביטוי לתוך חיידקים כשירים כימית
- הפשר aliquot אחד של תאים כשירים על קרח למשך 10 min. הוסף 1 µL של DNA פלסמידי (<50 ng) וערבב בעדינות.
- הדגר את התאים על קרח למשך 30 min. פזר את התאים שעברו טרנספורמציה על מצע LB agar (1.5% agar) המכיל 100 µg/mL kanamycin והדגר את הצלחות למשך לילה (כ-18 h) ב-37 °C.
- הרחבת התרבית החיידקית
- חפח 5 mL של מצע LB המכיל 100 µg/mL kanamycin עם מושבה בודדת. הדגר את התרבית למשך לילה ב-37 °C עם ניעור ב-200 rpm.
- העבר את תרבית הלילה לתוך 100 mL של מצע LB המכיל 100 µg/mL kanamycin. הדגר את התרבית למשך לילה תחת אותם תנאים.
- העבר 35 mL מתרבית הלילה לתוך 1 L של מצע LB המכיל 100 µg/mL kanamycin. הדגר את התרבית ב-37 °C עם ניעור ב-140 rpm עד שה-OD600 מגיע ל-1.0–1.2.
- אינדוקציית ביטוי של Mpro
- קרר את התרבית ל-16 °C. הוסף 1 mL של 0.4 M IPTG (ריכוז סופי של 0.4 mM) כדי להשרות את ביטוי החלבון.
- הדגר את התרבית ב-16 °C עם ניעור ב-140 rpm למשך 72 h.
3. קצירה וטיהור של Mpro
- קציר התאים הבקטריאליים
- בצע סנטריפוגציה לתרבית ב-5,000 × g וב-4 °C למשך שעה אחת. השלף את הנוזל העליון (supernatant) ותלה את המשקע (pellet) ב-35 mL של phosphate-buffered saline (PBS).
הערה: ודא תלה מלא של המשקע כדי למקסם את השחזור של החלבון במהלך שלבי הטיהור הבאים. - העבר את התליה למבחנת סנטריפוגה של 50 mL ובצע סנטריפוגציה ב-6,800 × g וב-4 °C למשך 10 דקות. השלף את הנוזל העליון ואחסן את משקע התאים ב-−20 °C.
- בצע סנטריפוגציה לתרבית ב-5,000 × g וב-4 °C למשך שעה אחת. השלף את הנוזל העליון (supernatant) ותלה את המשקע (pellet) ב-35 mL של phosphate-buffered saline (PBS).
- ליזיס של התאים
- הפשר את משקע התאים על קרח למשך 15–30 דקות. תלה את המשקע ב-80 mL של Mpro lysis buffer (MLB) עד לקבלת תמיסה הומוגנית.
הערה: שמור את הבאפר והדגימה על קרח לאורך שלב זה כדי למזער דגרדציה ואגרגציה של החלבון. - בצע סוניקציה לתליה על קרח למשך 10 דקות, באמצעות פולסים של 30 שניות באמפליטודה של 50–60%, עם מרווחי קירור של 2 דקות בין הפולסים.
- העבר את הליזט למבחנות סנטריפוגה ובצע סנטריפוגציה ב-60,000 × g וב-4 °C למשך שעה אחת. אסוף את הנוזל העליון המזוקק לצורך טיהור באפיניות.
- הפשר את משקע התאים על קרח למשך 15–30 דקות. תלה את המשקע ב-80 mL של Mpro lysis buffer (MLB) עד לקבלת תמיסה הומוגנית.
- טיהור Mpro באמצעות כרומטוגרפיית אפיניות למתכת מקובעת (IMAC)
- השג את שיווי המשקל של עמודת האפיניות באמצעות 10 נפחי עמודה (CV) של מים מזוקקים, ולאחריהם 10 CV של Mpro protein buffer (MB). הכן את באפרי השטיפה והאלוציה לפני טעינת הדגימה.
הערה: הימנע מהחדרת בועות אוויר לעמודה, שכן הן עלולות להפחית את יעילות הקישור. - טען את הליזט המזוקק אל העמודה ששיווי המשקל שלה הושג, בקצב זרימה נמוך. אסוף את השטף (flow-through).
הערה: שמור על קצב זרימה נמוך מספיק כדי למקסם את הקישור של החלבון עם תג His. - שטוף את העמודה עם 50 mL של באפר שטיפה (WB). אסוף את 2 mL האחרונים של פרקציית השטיפה לצורך הערכת איכות במידת הצורך.
- בצע אלוציה של החלבון הקשור באופן רצפי עם 6 mL של Elution Buffer 1 (שלוש פרקציות של 2 mL), 6 mL של Elution Buffer 2 (שלוש פרקציות של 2 mL), ו-8 mL של Elution Buffer 3 (ארבע פרקציות של 2 mL). שמור את כל הפרקציות שנאספו על קרח.
- השג את שיווי המשקל של עמודת האפיניות באמצעות 10 נפחי עמודה (CV) של מים מזוקקים, ולאחריהם 10 CV של Mpro protein buffer (MB). הכן את באפרי השטיפה והאלוציה לפני טעינת הדגימה.
- החדש את עמודת האפיניות
- שטוף את העמודה באופן רצפי עם 10 CV של Elution Buffer 3, 10 CV של Mpro protein buffer, 10 CV של מים מזוקקים, ו-10 CV של 20% ethanol.
- הערכת איכות החלבון
- ערבב 45 µL מכל דגימת חלבון עם 15 µL של 4× sample buffer. חמם את הדגימות ב-100 °C למשך 10 דקות ובצע סנטריפוגציה קצרה.
- הפרד את הדגימות על ג'ל SDS-PAGE בריכוז 10–12% ב-150 V עד שחזית הצבע מגיעה לתחתית הג'ל.
- צבע את הג'ל בצבע Coomassie למשך 15–30 דקות. שטוף את הג'ל במים מזוקקים והערך את טהרת החלבון (משקל מולקולרי צפוי: כ-36 kDa).
4. הכנת חלבון
- החלפת הבאפר וריכוז החלבון
- החלף את באפר החלבון לבאפר חלבון Mpro (MB) באמצעות מסננים צנטריפוגליים (MWCO: 10 kDa). רכז את תמיסת החלבון לנפח סופי של כ-1 mL.
- כימות החלבון
- מדוד את ריכוז החלבון באמצעות ספקטרופוטומטר. בצע אפס (Blank) למכשיר עם MB לפני המדידה.
- חשב את ריכוז החלבון באמצעות מקדם האטילה המתאים (ε = 0.931).
5. אופטימיזציה של תנאי הבדיקה
- הכנת ריאגנטים לבדיקה
- הכן תמיסת מלאי בריכוז 3 µM של Mpro מטוהר ותמיסת מלאי בריכוז 300 µM של סובסטרט פפטידי בבופר חלבון Mpro (MB).
- הכנת דילולות סדרתיות
- הכן שש דילולות סדרתיות של פי 2 של תמיסת המלאי של Mpro ב-MB.
- הכן שלוש דילולות סדרתיות של פי 2 של הסובסטרט הפפטידי ב-MB.
- הגדרת קורא הלוחיות
- חמם מראש את קורא הלוחיות ל-37 °C. הגדר את אורך גל העירור ל-320 nm, את אורך גל הפליטה ל-420 nm (רוחב פס של 20 nm), ואת מרווח הדגימה ל-60 s למשך זמן מדידה כולל של 60 min.
הערה: הכן את כל רכיבי הבדיקה לפני הוספת הסובסטרט, שכן התגובה מתחילה מיד עם הוספת הסובסטרט.
- חמם מראש את קורא הלוחיות ל-37 °C. הגדר את אורך גל העירור ל-320 nm, את אורך גל הפליטה ל-420 nm (רוחב פס של 20 nm), ואת מרווח הדגימה ל-60 s למשך זמן מדידה כולל של 60 min.
- הכנת לוחית הבדיקה
- הוסף 25 µL מכל דילול של Mpro לעמודות 1–6 של לוחית שחורה בעלת 96 בארות. הוסף 25 µL של MB לעמודה 7 כביקורת ללא אנזים.
- הוסף 100 µL של MB לכל בארה.
הערה: השתמש בלוחיות שחורות בעלות 96 בארות כדי למזער פלואורסצנציה של רקע ולבצע אופטימיזציה לאות הפלואורסצנציה.
- התחלת התגובה
- הוסף 25 µL של הסובסטרט הפפטידי לשורות A–C. הוסף 25 µL של MB לשורה D כדי שתשמש כביקורת ללא סובסטרט.
- התחל את רכישת הפלואורסצנציה מיד לאחר הוספת הסובסטרט.
- ניתוח הנתונים
- ייצא את נתוני הפלואורסצנציה ושרטט יחידות פלואורסצנציה יחסיות (RFU) כפונקציה של זמן.
- בחר את ריכוזי ה-Mpro והסובסטרט המספקים יחס אות לרעש גבוה ללא הגעה לרוויית אות מוקדמת (לדוגמה, 500 nM Mpro ו-50 µM סובסטרט).
- קביעת פרמטרים קינטיים (אופציונלי)
- קבע את הפרמטרים הקינטיים של הסובסטרט הפלואורוגני על ידי התאמת מהירויות התגובה הראשוניות למשוואת מיכאלים-מנטן (Michaelis–Menten). המר יחידות פלואורסצנציה לריכוז תוצר באמצעות עקומת כיול שהוכנה עם 2-amino-N-(3-aminopropyl) benzamide. סינתזה מפורטת של הפלואורופור לכיול מופיעה בקובץ משלים 1.
6. ביצוע בדיקת ה-FRET
- הכנת קורא הלוחיות
- חממו מראש את קורא הלוחיות ל-37 °C. הגדירו את אורך גל העירור ל-320 nm, את אורך גל הפליטה ל-420 nm (רוחב פס של 20 nm), ואת מרווח הדגימה ל-60 s לזמן מדידה כולל של 60 min.
- הכנת ריאגנטים לבדיקה
- הכינו תמיסות מלאי של Mpro מנוקה (3 µM), סובסטרט פפטידי (300 µM), ואת התרכובות הנבדקות בבופר חלבון Mpro (MB).
- הכינו דילולים סדרתיים של כל תרכובת נבדקת ב-DMSO תוך שמירה על ריכוז DMSO סופי קבוע בכל הדגימות. כללו בקרות של DMSO בלבד ובופר בלבד.
- הכנת תערובות התגובה
- דללו כל תרכובת נבדקת או בקרת ב-100 µL של MB. הוסיפו 25 µL של Mpro כדי להגיע לריכוז אנזים סופי של 500 nM.
- העבירו מיד את תערובות התגובה לבארות של לוחית 96-בארות שחורה.
- הפעלת התגובה
- הוסיפו 25 µL של סובסטרט פפטידי לכל בארה כדי להגיע לריכוז סובסטרט סופי של 50 µM (נפח תגובה סופי: 150 µL).
- התחילו את רכישת הפלואורסצנציה מיד לאחר הוספת הסובסטרט.
הערה: התחילו את רכישת הנתונים מיד לאחר הוספת הסובסטרט כדי להבטיח מדידה מדויקת של קינטיקת התגובה הראשונית.
- רכישת נתוני הפלואורסצנציה
- הקליטו פלואורסצנציה באופן רציף למשך 60 min באמצעות הגדרות הרכישה שהוגדרו מראש.
תוצאות
יישום מוצלח של בדיקת העברת אנרגיה רזוננטית של פלואורסצנציה בעת רזולוציה של זמן (TR-FRET) דורש אופטימיזציה של היחס בין האנזים לסובסטרט. כפי שמתואר בפרוטוקול, ניתן להשיג זאת על ידי תיחור של שני הרכיבים. במחקר זה, נבדקו ריכוזי אנזים בטווח שבין 15.6 ל-50 nM בשילוב עם ריכוזי סובסטרט בטווח שבין 12.5 ל- 50 µMנכללו תגובות בקרה שבהן היה חסר התסביס או האנזים. בניסוי נפרד, קבוע מיכאלס-מנטן (KM) נקבע כ-29.2 ± 6.1 µM (איור משלים 1).
התוצאות מוכיחות כי ריכוז האנזים קובע בעיקר את קצב הפיכת התסריף (substrate turnover), בעוד שריכוז התסריף משפיע בעיקר על עוצמת אות הפלואורסצנציה. העלאת ריכוזי התסריף הובילה לאותות פלואורסצנציה ראשוניים גבוהים יותר (t = 0). לדוגמה, הפלואורסצנציית הבסיס נעה בין 40 ל-500 RFU בערך ב-איור 2A, בעוד שריכוזי תסריף נמוכים יותר הניבו ערכי פלואורסצנציית בסיס נמוכים יותר (איור 2B,C). בהיעדר תסריף (איור 2D), זוהתה רק פלואורסצנציית רקע, שבדרך כלל הייתה נמוכה מ-20 RFU.
העלאת ריכוזי האנזים הובילה למחזור גבוה יותר של סובסטרט ולשיפור ביחסי אות-רעש (איור 2A). בריכוז האנזים הגבוה ביותר, התגובה התקרבה למישור (plateau) לאחר כ-50 דקות, מה שמעיד על מחזור כמעט מלא של הסובסטרט. המישור הושג מוקדם יותר בריכוזי סובסטרט נמוכים ומאוחר יותר בריכוזי סובסטרט גבוהים. לעומת זאת, ריכוזי אנזים נמוכים יותר לא הגיעו לרוויה במהלך תקופת המדידה של 60 דקות ושמרו עלייה ליניארית בקירוב בעוצמת הפלואורסצנציה.
על בסיס תצפיות אלו, תנאי בדיקה אופטימליים צריכים לעמוד בקריטריונים הבאים: (1) פלורסצנציית רקע מינימלית בביקורת ללא סובסטרט; (2) פלורסצנציית בסיס יציבה ללא תחלופת סובסטרט בביקורת ללא אנזים; (3) יחס אנזים-סובסטרט המספק יחס אות-רעש הולם לניתוח כמותי; ו-(4) אותות פלורסצנציה השואפים לרמה קבועה (plateau) עד סוף תקופת המדידה. על בסיס קריטריונים אלו, נבחרו ריכוז אנזים של 50 nM וריכוז סובסטרט של 50 µM עבור ניסויים המשך.
כדי לאפיין יותר את הסובסטרט הפלואורוגני, נקבעו פרמטרים של קינטיקה אנזימטית תחת תנאי בדיקה סטנדרטיים תוך שימוש בשמונה ריכוזי סובסטרט (0.39–50 µM) וריכוז אנזים קבוע (15.9 nM). מהירויות תגובה ראשוניות שהתקבלו מעקומות התקדמות הפלואורסצנציה הותאמו למשוואת מיכאליס-מנטן (Supplementary Figure 1A,B). הסובסטרט MI-282 הראה KM של 29.2 ± 6.1 µM ו-Vmax של 91.8 ± 14.2 RFU/s (n = 7). באמצעות עקומת כיול שהופקה עם 2-amino-N-(3-aminopropyl) benzamide (Supplementary Figure 1C), חושב ה-kcat כ-0.62 s⁻1, המקביל ליעילות קטליטית (kcat/KM) של 2.12 × 10⁴ s⁻1 M⁻1, גבוהה בערך פי 30 מזו שדווחה עבור סובסטרטים פלואורוגניים מבוססי ACC שתוארו בעבר. נתונים קינטיים אלו מעידים על זיהוי יעיל של הסובסטרט על ידי SARS-CoV-2 Mpro ותומכים בהתאמתו של MI-2822 לבדיקות אנזימטיות רגישות מבוסות פלואורסצנציה.
הבדיקה בוצעה באמצעות 50 nM Mpro ו-50 µM סובסטרט (איור 3 ו-איור 4). Nirmatrelvir שימש כמעכב ייחוס המכוון לאתר הקטליטי ("המעכב"). במקביל, הוערכו PROTAC המכוון ל-Mpro הנקשר מחוץ לחריץ הקטליטי ("ה-PROTAC") וליגנד תואם חסר את היחידה הקושרת לליגאז E3 ("הליגנד"). כל התרכובות נבדקו בשלושה ריכוזים כדי להעריך השפעות תלויות מינון.
כדי לשלוט בהשפעות הממס, כל התגובות הכילו ריכוז קבוע של DMSO (0.1%). בקרות נוספות כללו בקרת בופר בלבד ובקרת ללא אנזים (mock).
המעכב צפוי להפחית את הפיכת התסביס באופן התלוי במינון. בניגוד לכך, ה-PROTAC, הנקשר מחוץ לאתר הקטליטי, אינו צפוי להשפיע באופן משמעותי על הפעילות האנזימטית בתנאים ללא תאים. באופן דומה, בקרת הליגנד צפויה להשפיע באופן מועט או לא להשפיע כלל על פיכת התסביס. בקרת ה-mock אמורה לשמור על רמת פלואורסצנציה בסיסית לאורך כל הניסוי.
בדומה לציפיות, ל-DMSO לא הייתה השפעה מדידה על פעילות האנזים בהשוואה לבקרת התמיכה (איור 3A–C, שחור). באופן דומה, בקרת ה-mock שמרה על אות פלואורסצנציה בסי יציב לאורך כל הניסוי (איור 3A–C, מגנטה).
המעכב הפיק עיכוב תלוי-מינון של פעילות Mpro (איור 3A, אדום). בריכוז של 10 µM, תחלופת התסביס פחתה באופן ניכר, בעוד שריכוזים נמוכים יותר הפיקו עיכוב חלש יותר באופן הדרגתי. לעומת זאת, הן ה-PROTAC (איור 3B, כחול) והן הליגנד (איור 3C, ירוק) גרמו להפחתות מינוריות בלבד בתחלופת התסביס. מכיוון ששני התרכובות חולקות את אותו ה-warhead, התנהגותם הדמימה עקבית עם תכונות הקישור שלהם. באופן משמעותי, אף אחד מהתרכובות לא עיכב באופן משמעותי את הפעילות האנזימטית תחת התנאים שנבדקו.
ממצאים אלו חשובים לצורך פרשנות של פעילות אנטי-ויראלית המבוססת על דגרדציה. מכיוון שה-PROTAC הפגין עיכוב מינימלי של הפעילות האנזימטית של Mpro, בניגוד למעכב האתר הפעיל, כל הפחתה בשכפול הויראלי שנצפתה בבדיקות מבוסות תאים מיוחסת בעיקר לדגרדציה של החלבון ולא לעיכוב אנזימטי ישיר. הבחנה מכניסטית זו חיונית כדי לתקף שהפעילות האנטי-ויראלית מתווכת באמצעות מנגנון הדגרדציה המתוכנן.
קינטיקת התגובה הוערכה עוד יותר על ידי חישוב השטח תחת עקומת הפלואורסצנציה-זמן (AUC; איור 4), המספק מדד כמותי של תחלופה מצטברת של תסריף (ΣRFU). ה-AUC חושב כסכום ערכי ה-RFU לאורך כל נקודות הזמן שנמדדו.
ניתוח זה אישר כי רק ריכוז המעכב הגבוה ביותר הפחית באופן משמעותי את תחלופת התסו (substrate turnover). ה-PROTAC גרם להשפעה מינונית בלבד התלויה במינון, בעוד שלליגנד לא הייתה השפעה מדידה. בקרות ה-DMSO והבופר הניבו תוצאות דומות. בקרת הדמה (mock control) הראתה ירידה קלה בفلורסנציה לאורך זמן, ככל הנראה עקב פוטו-דהיה (photobleaching) של הפלואורופור.
דוגמאות מייצגות של תגובות שנכשלו או היו תת-אופטימליות מוצגות ב-איור 5 כדי להמחיש מגבלות פוטנציאליות של הבדיקה. ביצועים אמינים של הבדיקה תלויים הן בטוהרה והן בשלמות של תכשירי האנזים, אותם יש לאמת לפני פרשנות התוצאות.
איור 5A ממחיש תגובה שנכשלה, שבה טוהר האנזים לא היה מספיק או שריכוז האנזים הפעיל היה נמוך מדי כדי לתמוך בתחלופת המצע (substrate turnover). קו הבסיס של הפלואורסצנציה הראשונית (t = 0) עלה על 1,0 RFU, ייתכן בשל הכנה לא מדויקת של המצע או זיהומים בהכנת האנזים התורמים לפלואורסצנציית רקע. יתרה מכך, לא נצפתה תחלופת מצע תחת אף תנאי ניסיוני, מה שמרמז על מחסור באנזים פעיל או זיהום שהפריע לפעילות האנזימטית.
ניתן לכלול בקרת חסר-מצע כדי לקבוע האם תכשיר האנזים תורם לפלואורסצנציית רקע. באופן אידיאלי, אות זה צריך להישאר מינימלי. במערך הבדיקה המיטבי (איור 5B), פלואורסצנציית הרקע נותרה מתחת ל-20 RFU והייתה עקבית בכל ריכוזי האנזים, מה שמעיד כי תכשיר האנזים תרם במידה זניחה לאות הרקע. אף שלא ניתן לשלול לחלוטין הפרעה לפעילות האנזימטית, ניתן לשלול תרומה משמעותית של תכשיר האנזים לעלייה בפלואורסצנציית הבסיס.
הכנת התססיר (substrate) היא גורם קריטי נוסף המשפיע על ביצועי הבדיקה. במחקר זה, התסיר הפפטיDOI הומס בבופר חלבון כדי לשמור על תנאי בדיקה עקביים. במהלך אופטימיזציה של הבדיקה, נבחנה מסיסות התסיר בשני בופרי חלבון ובמים מזוקקים. המסה של התסיר במים מזוקקים הפחיתה את מסיסותו ועודדה אגרגציה של הפפטידים. כיוון שאגרגטים אלו התמוססו בהדרגה במהלך הבדיקה, הם גרמו לעליות פתאומיות בפלואורסצנציה, מה שהוביל להערכות לא מדויקות של ריכוזי התסיר האפקטיביים (איור 5C, באדום). לפיכך, יש להשתמש בממס השומר על מסיסות מלאה של התססיר תוך שימור פעילות האנזים.
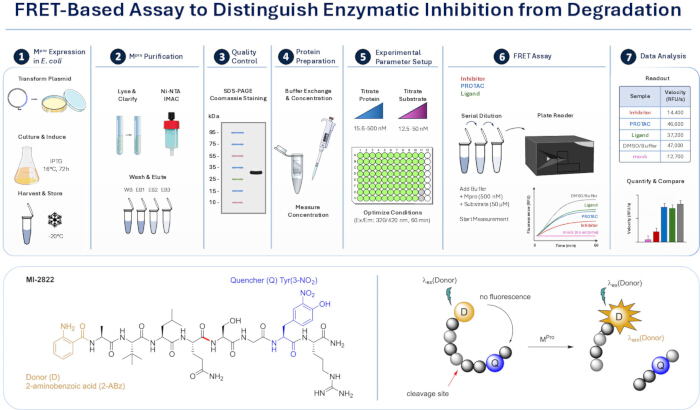
איור 1סקירה כללית של הניסוי המבוס על FRET ועקרון הבדיקה. הפאנל העליון ממחיש את זרימת העבודה הניסויית, כולל M רקומביננטימקצוען ביטוי ב- *E. coli*, טיהור באמצעות כרומטוגרפיית ספיקה של מתכת מקובעת (IMAC), בקרת איכות, הכנת חלבון ואופטימיזציה של תנאי הבדיקה, ולאחריהן בדיקת FRET וניתוח נתונים. הפאנל התחתון מתאר את עקרון הבדיקה: סובסטרט פפטידי פלואורוגני מושתק נחתוך על ידי Mמקצועי, מה שמוביל להפרדה בין הפלואורופור למעכב הפלואורסצנציה (quencher) ולעלייה תואמת באות הפלואורסצנציה. מערך זה מאפשר ניטור קינטי של פעילות אנזימטית והשוואה בין תנאים מטופלים במעכב, ב-PROTAC ובליגנד. קיצורים: Mמקצועי פרוטאזאז ראשי, *E. coli* = Escherichia coli, FRET = העברה אנרגטית של תהודה פלואורסצנטית, PROTAC = כימרה המכוונת לפרוטאוליזה. אנא לחצו כאן כדי להציג גרסה מורחבת של דמות זו.
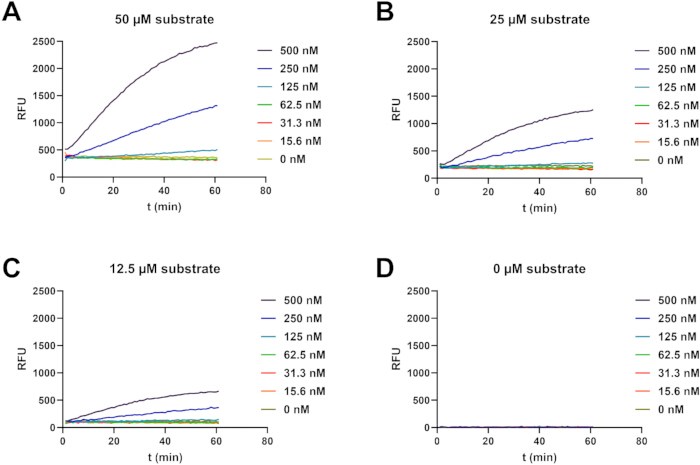
איור 2טיטול חלבון ותסבסב. בנפח תגובה כולל של 150 µL, מהילול סדרתי של M מופלטומקצוען (15.6–50 ננומולר) שולב עם (A) 50 µM, (B) 25 µM, (C) 12.5 µM מצע, או (ד') בופר (ביקורת ללא סובסטרט). התגובות בוצעו בלוחיות 96 בארות בעלות תחתית שטוחה בצבע שחור, והן נוטרו באמצעות קורא מיקרו-לוחיות רב-מצבי (multimode microplate reader). הפלואורסצנציה נמדדה מדי 60 שניות במשך 60 דקות (λדוגמה 320 nm, λem 420 ננומטר). RFU ממופה לאורך זמן. קיצורים: Mמקצוען = פרוטאז מרכזי, λדוגמה = אורך גל עירור, λem = אורך גל פליטה, RFU = יחידות פלואורסצנציה יחסיות. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
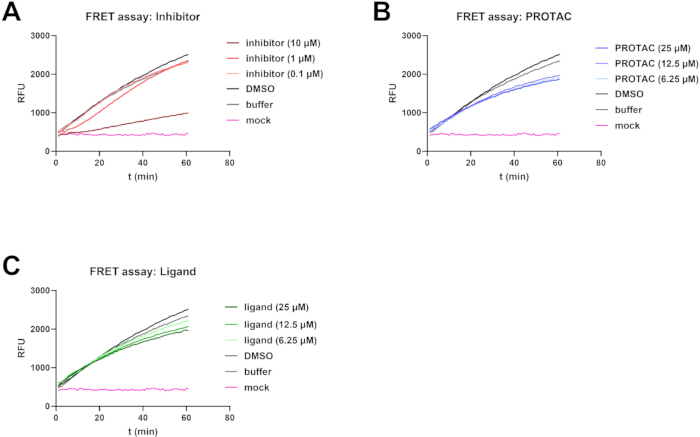
איור 3TR-FRET בנוכחות Mמקצועי מעכב, PROTAC וליגנד. בנפח תגובה כולל של 150 µL, 50 nM M מופקתמקצוען הודגרה עם 50 µM תסביס בנוכחות דילולים סדרתיים של (A) מעכב האתר הפעיל nirmatrelvir, (B) an Mמקצוען-מכוון PROTAC, או (C) הליגנד התואם החסר את רכיב הקישור לליגאז E3. התגובות בוצעו בלוחיות 96 בארות בעלות תחתית שטוחה ושחורה, והניטור בוצע באמצעות קורא מיקרו-לוחיות רב-מצבי (multimode microplate reader). הפלואורסצנציה נמדדה בכל 60 שניות למשך 60 דקות (λדוגמה 320 nm, λem 420 ננומטר). ערכי RFU מופעלים כפונקציה של זמן. קיצורים: Mפרו = פרוטאזה ראשית, PROTAC = כימרה המכוונת לפרוטאוליזה, λדוגמה = אורך גל עירור, λem = אורך גל של פליטה. RFU = יחידות פלואורסצנציה יחסיות. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
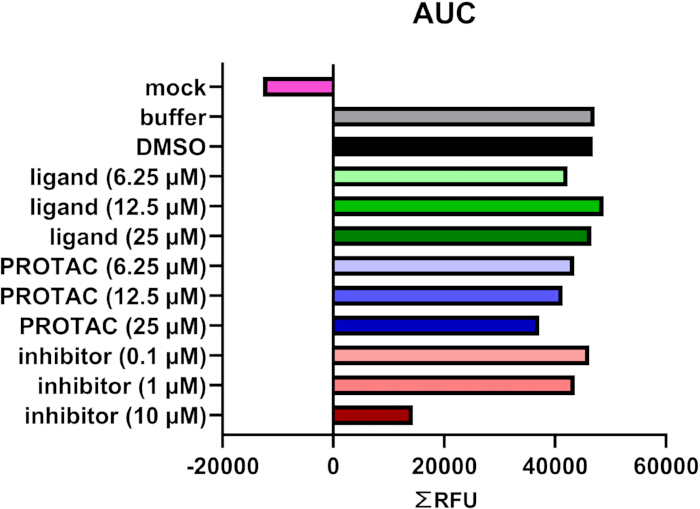
איור 4ניתוח קינטיקה משולב של בדיקת TR-FRET. קינטיקה משולבת שנגזרה מה-AUC (המוצגת ב- איור 3מבוטאים כ-ΣRFU, המשלב את כל ערכי ה-RFU לאורך 60 דקות. ערכי AUC מכמתים את תחלופת התסריף (substrate turnover) ומאפשרים השוואה ישירה בין תנאים שעובדו עם מעכבים, PROTAC וליגנדים. קיצורים: AUC = שטח תחת העקומה, RFU = יחידות פלואורסצנציה יחסיות, PROTAC = כימרה להכוונת פרוטאוליזה. אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
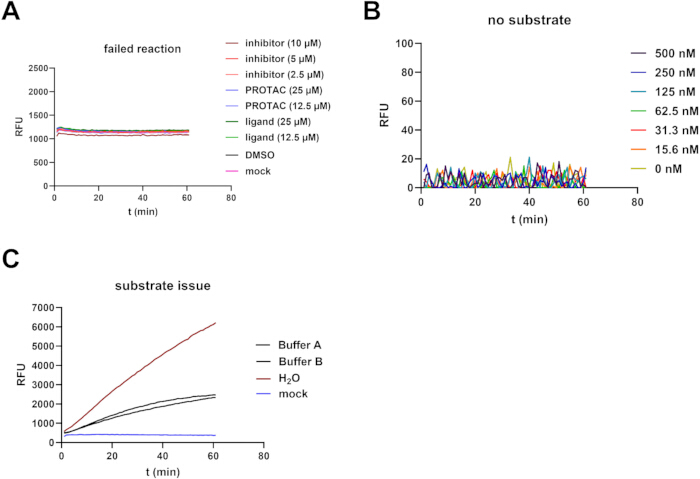
איור 5תוצאות מייצגות של תגובות שנכשלו וניסויי בקרה. (Aבדיקת TR-FRET שבוצעה כמתואר באיור 3, כולל מהלולים של המעכב, ה-PROTAC והליגנד. הנתונים מראים תגובה שנכשלה, המאופיינת ברמת פלואורסצנציה בסיסית גבוהה ובהיעדר תחלוף סובסטרט בכל התנאים.B) בקרת חסר-סובסטרט בוצעה כפי שמתואר ב- איור 2Dהפלואורסצנציית הרקע נותרת נמוכה (<20 RFU) וקבוע לכל ריכוזי האנזים. (Cבדיקת TR-FRET שבוצעה כפי שתיארה ב- איור 3 שימוש בסובסטרט המומס בממסים שונים (בופרים חלבוניים A ו-B או dH₂O). מסיסות נמוכה ב-dH₂O גורמת לאגרגציה של הפפטיד, המובילה לעליות לא סדירות בפלואורסצנציה עקב התמוסות מושהית של הסובסטרט וריכוזים אפקטיביים לא מדויקים. קיצורים: TR-FRET = העברת אנרגיה רזוננסית פלואורסצנטית בשינוי זמן, PROTAC = כימרה המכוונת לפרוטאוליזה. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
איור משלים 1: ניתוח קינטיקה של אנזים עבור הפרוטאזה הראשית של SARS-CoV-2 (ריכוז 15.9 nM בתבחין) באמצעות הסובסטרט MI-282. (A) עקומות התקדמות בריכוזי סובסטרט של 50 µM (שחור), 25 µM (ירוק בהיר), 12.5 µM (כחול), 6.25 µM (ורוד), 3.13 µM (ירוק כהה), 1.56 µM (כחול כה), 0.78 µM (סגול), ו-0.39 µM (ארגמן). (B) התאמת המהירויות למשוואת מיכאליס-מנטן הניבה KM של 29.2 ± 6.1 µM וערך Vmax של 91.8 ± 14.2 RFU/s (n = 7). (C) עקומת כיול עם הפלואורופור 2-amino-N-(3-aminopropyl) benzamide שימשה לחישוב kcat של 0.62 s-1 וערך kcat/KM של 2.12 × 10⁴ s-1 M-1.אנא לחץ כאן להורדת קובץ זה.
קובץ משלים 1: סינתזה של 2-amino-N-(3-aminopropyl) benzamide. פרוצדורה סינתטית מפורטת ואפיון אנליטי של 2-amino-N-(3-aminopropyl) benzamide, נגזרת האמיד ממיס במים של הפלואורופור 2-aminobenzamide (2-Abz) המשמשת לכיול פלואורסצנציה במדידת קינטיקה של אנזימים.אנא לחץ כאן להורדת קובץ זה.
דיון
בעבודה זו, אנו מציגים בדיקה המבוססת על העברת אנרגיה רזוננטית של פלואורסצנציה ברזולוציית זמן (TR-FRET) להערכת הפעילות האנזימטית של SARS-CoV-2 Mpro בנוכחות מעכבים, כימרות המכוונות לפרוטאוליזה (PROTACs), והליגנדים התואמים להם. הבדיקה פותחה כדי להבחין באופן פונקציונלי בין השפעות של PROTAC הנובעות אך ורק מדגרדציה של חלבון לבין השפעות הנובעות מעיכוב ישיר של הפעילות הקטליטית של האנזים המטרה. באמצעות סובסטרט פפטידי פלואורוגני, אנו מדגימים כי PROTAC המכוון ל-Mpro ונקשר מחוץ לסדק הקטליטי בעל השפעה מינורית בלבד על הפעילות האנזימטית, בעוד שמעכב האתר הפעיל nirmatrelvir מדכא באופן ניכר את הפיכת הסובסטרט.
ביצועי בדיקה אמינים תלויים במספר גורמים קריטיים, הכוללים את טהרתו ופעילותו של האנזים הרקומביננטי, מסיסות מלאה והכנה מדויקת של סובסטרט הפפטיד, ואופטימיזציה קפדנית של ריכוזי האנזים והסובסטרט. איכות אנזים תת-אופטימלית או ריכוזי סובסטרט לא מדויקים עלולים להגביר את הפלואורסצנציית הרקע או להפחית את הפיכת הסובסטרט הניתנת לגילוי. יתרה מכך, יש להתחיל במדידות פעילות האנזים מיד לאחר הוספת הסובסטרט, ויש להמתין להגעה לשיווי משקל טמפרטורי של קורא הלוחיות לפני תחילת הבדיקה כדי להבטיח מדידות קינטיות עקביות וניתנות לשחזור.
ניתן להתאים את הבדיקה בקלות לפרוטאזות שונות15,16,17,18,19 או לתצורות ניסיוניות שונות על ידי אופטימיזציה של ריכוזי האנזים והסובסטרט כדי להשיג את הטווח הדינמי הרצוי. בקרות מתאימות, כולל בקרות ללא אנזים, ללא סובסטרט ובקרות ממס, הן חיוניות לזיהוי ארטיפקטים הקשורים לבדיקה. פתרון בעיות (Troubleshooting) צריך להתמקד בהבחנה בין ארטיפקטים טכניים לבין השפעות ממשיות על הפעילות האנזימטית, וזאת על ידי הערכת פלואורסצנציית הרקע, אישור של תקינות ופעילות האנזים, ובמידת הצורך, בדיקת ממסים חלופיים לסובסטרט. בפרט, מסיסות חלקית של הסובסטרט עלולה להוביל לאגרגציה ולעליות לא סדירות בפלואורסצנציה עקב המסה מושהית של הסובסטרט במהלך התגובה.
מכיוון שבדיקה זו מבוצעת במערכת ביוכימית נטולת תאים, היא אינה לוכדת תהליכים התלויים בפירוק, כגון היווצרות קומפלקס טרנרי, אוביקוויטינציה או פירוק פרוטאוזומלי. כתוצאה מכך, היא מודדת באופן ספציפי את התרומה של עיכוב אנזימטי ישיר ללא הערכה של יעילות הפירוק. בנוסף, ארטיפקטים הקשורים לתרכובת, כולל פלואורסצנציה פנימית, כיבוי פלואורסצנציה (quenching) או הפרעה לשברון הסובסטרט, עשויים להשפיע על קריאת הבדיקה. יש להתייחס לגורמים מבלבלים פוטנציאליים אלו על ידי שילוב ניסויי בקרה מתאימים, כולל בקרות של תרכובת בלבד, ללא אנזים, ללא סובסטרט ובקרות ממס. פרשנות מדויקת של התוצאות דורשת גם שמירה על תנאי הבדיקה בטווח הליניארי של קינטיקת האנזים.
בהשוואה לבדיקות פירוק מבוססות תאים, בדיקת ה-TR-FRET המוצגת מספקת מדידה ישירה וכמותית של פעילות אנזימטית תחת תנאים ביוכימיים מוגדרים היטב. בדיקות תאיות המעריכות את הפעילות האנטי-ויראלית של PROTACs משלבות תהליכים ביולוגיים מרובים, כולל פירוק המטרה והשלכות המשך כגון פגיעה בעיבוד הפוליפרוטאין הוויראלי, הפחתה של השכפול הוויראלי ושינוי בביטוי חלבונים ויראליים. למרות שבדיקות אלו מספקות מידע בעל ערך לגבי היעילות האנטי-ויראלית הכוללת, הן בדרך כלל אינן יכולות להבחין אם ההשפעות שנצפו נובעות מעיכוב ישיר של הפעילות האנזימטית או מפירוק של חלבון המטרה10,12,13,14. לעומת זאת, בדיקת ה-TR-FRET מאפשרת ניתוח מכניסטי מדויק ברמה האנזימטית ולכן משמשת כהשלמה חשובה לגישות ביוכימיות ותאיות מבוססות.
בדיקה זו בעלת ערך רב לפיתוח ואופטימיזציה של PROTACs ומולקולות דו-פונקציונליות אחרות המכוונות לחלבונים פעילים אנזימטית. מפרקי וירוסים רבות משלבות "ראשים קרביים" (warheads) שנגזרים מעכבים של האתר הפעיל, ובכך הן משלבות עיכוב אנזימטי ישיר עם פירוק חלבון ממוקד10,12,13,14. עם זאת, לא כל שלדי הליגנדים הם בעלי פעילות עיכוב אינהרנטית, ושינויים מבניים, כגון חיבור מקשר (linker), עשויים לשנות את זיקת הקישור או את אופן הקישור20. לכן, הבדיקה המוצגת מאפשרת הערכה כמותית של תרומתו של העיכוב האנזימטי הישיר לפעילות האנטי-ויראלית הכוללת של PROTAC. מעבר ל-Mpro של SARS-CoV-2, השיטה ישימה באופן רחב גם לפרוטואזות ויראליות ומטרות אנזימטיות אחרות, ועשויה להקל על פיתוח רציונלי של מפרקים בעלי פרופילים מכניסטיים מוגדרים היטב. באופן חשוב, על ידי הדגמה כי ה-PROTAC שנבדק גורם לעיכוב ישיר מינימלי בלבד של פעילות Mpro in vitro, בדיקת TR-FRET זו מספקת תיקוף מכניסטי לכך שההשפעות האנטי-ויראליות שנצפו בבדיקות תאיות עוקבות נובעות בעיקר מפירוק חלבון ולא מעיכוב אנזימטי ישיר.
לסיכום, בדיקת ה-TR-FRET המוצגת מספקת פלטפורמה חסונה, רגישה ורב-גונית להבחנה בין עיכוב אנזימטי ישיר לבין השפעות הקשורות לפירוק. כאשר היא משולבת עם בדיקות תאיות משלימות, היא מאפשרת אפיון מקיף של מנגנוני הפעולה של PROTAC ותומכת בפיתוח רציונלי של דור הבא של מפרקים אנטי-ויראליים.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
אנו מודים ל-Laura Bunt, Justus Happe, Dominique Hagene ו-Lukas Plamper על תמיכתם בסינתזה של התרכובות ששימשו במחקר זה. כמו כן, אנו מודים ל-Konstantin Bloch ול-Miriam Ruth Heindl על הייעוץ במהלך ביסוס הבדיקה זו. בנוסף, אנו מודים לקרן Jürgen Manchot, למרכז LOEWE DRUID ולקרן Uniscientia על המימון.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אקרילאמיד (Rotiphorese® Gel 30) | Carl Roth | 3029.1 | רכיב ל-SDS-PAGE |
| אמוניום פרסולפט (APS) | Biorad | 1610700 | רכיב ל-SDS-PAGE |
| זן חיידקים BL21 Rosetta2 | La Jolla Institute for Immunology, San Diego, USA | N/A | סופק על ידי שותפים |
| קורא רב-מצבי BioTek Synergy H1 Multimode Reader | Agilent Technologies | Synergy H1 | לקריאת TR-FRET |
| פלטות FluoroNunc MaxiSorp שחורות עם 96 בארות | Thermo-Fisher Scientific | 437111 | יש לוודא שימוש בפלטות שחורות |
| ברומפנול כחול (Bromphenol blue) | Sigma-Aldrich | 1.08122 | רכיב לבאפר דגימה |
| צנטריפוגה 5430-R (שולחנית) | Eppendorf | 5430-R | עם פונקציית קירור |
| צנטריפוגה Avanti J-25 | Beckman Coulter | 6594 | צנטריפוגה במהירות גבוהה |
| צנטריפוגה Avanti J-26 XP | Beckman Coulter | JXN-26 | צנטריפוגה במהירות גבוהה |
| דימתיל סולפוקסיד (DMSO) | Carl Roth | A994.1 | ממס |
| דיסודיום הידרוגן פוספט (Na2HPO4) | Carl Roth | X987.2 | רכיב לבאפר |
| אתנול (ROTIPURAN® ≥ 99,8 %, p.a.) | Carl Roth | 9065.1 | עבור IMAC |
| גליצרול | Carl Roth | 6967.1 | עבור מאגרי חיידקים |
| משאבה פריסטלטית Hei-FLOW Core 120 | Heidolph | 523-50010-00 | עבור IMAC |
| Heraeus Multifuge 3S-R | Heraeus | 2395 | ללא פונקציית קירור |
| עמודי HisTrap® FF לניקוי חלבונים עם תג היסטידין גולמי (5 mL) | Cytiva | 17528601 | עבור IMAC |
| אימידזול | Carl Roth | 3899.3 | עבור אלוציה של חלבונים במהלך IMAC |
| מד pH מסוג InoLab pH/ION 7320 BNC | WTW | 1GA330 | עבור טיטרציית pH |
| איזופרופיל-β-D-תיוגלקטופירנוזיד (IPTG) | Carl Roth | CN08.1 | עבור השראת ביטוי |
| קנמיצין סולפט | Sigma-Aldrich | PHR1487 | אנטיביוטיקה |
| מערבל מגנטי (מחומם) | Heidolph | 7402 | להכנת באפרים |
| מרקפטואתנול | Sigma-Aldrich | M6250-10ML | רכיב לבאפר דגימה |
| פלטת MultiScreen® עם 96 בארות | MilliporeSigma | MSSBNFX40 | עבור מיהולים |
| N,N,N',N'-טטרהמתיל אתילנדיאמין (TEMED) | Fisher Scientific | 11424214 | רכיב ל-SDS-PAGE |
| פוטומטר Nanodrop ND1000 | Peqlab | 7533 | קביעת ריכוז חלבון |
| וקטור פלסמיד pET28a(+) | Addgene | 69864-3 | וקטור ביטוי |
| אשלגן כלוריד (KCl) | Carl Roth | 1LCY.1 | רכיב לבאפר |
| אשלגן דיהידרוגן פוספט (KH2PO4) | Carl Roth | 3904.1 | רכיב לבאפר |
| Protein Detective - צביעת חלבון קומסי מהירה במיוחד (1 L) | BIOZOL | BZL-PD1 | עבור צביעת חלבון מהירה ופשוטה |
| רוטורים JA 25.50 ו-JLA 8.1000 | Beckmann Coulter | 363055, 363688 | רוטורים במהירות גבוהה |
| אלקטרודת pH מסוג SenTix® 81 | WTW | 103642 | עבור טיטרציית pH |
| נתרן כלוריד (NaCl) | Carl Roth | 3957.1 | רכיב לבאפר ולמדיה |
| נתרן דודציל סולפט (SDS) | Carl Roth | 0183.1 | רכיב ל-SDS-PAGE ולבאפר דגימה |
| סוניקטור Branson Ultrasonics S-450 | BANDELIN electronic | 10656933 | עבור סוניקציה |
| ראש משאבה בעל ערוץ בודד SP standard (wt 1.6 mm) | Heidolph | 523-43010-00 | עבור IMAC |
| קורא מיקרו-פלטות רב-מצבי Spark Multimode Microplate Reader | Tecan Group | N/A | בדיקת קינטיקה של אנזימים |
| Tris | Carl Roth | 4855.2 | רכיב לבאפר |
| Triton-X100 | Sigma-Aldrich | X100-100ML | רכיב לבאפר |
| טריפטון/פפטון | Carl Roth | 6681.3 | רכיב למדיה |
| תמצית שמרים | Carl Roth | 2363.2 | רכיב למדיה |
| ערכה לבאפרים וטרנספורמציה של E. coli Z-Competent® | Zymo Research | T3001 | עבור טרנספורמציה חיידקית |
מקורות
- Samarasinghe KTG, Crews CM. Targeted protein degradation: A promise for undruggable proteins. Cell Chem Biol. 2021;28(7):934-951.
- Dong G, Ding Y, He S, Sheng C. Molecular glues for targeted protein degradation: From serendipity to rational discovery. J Med Chem. 2021;64(15):10606-10620.
- Buetow L, Huang DT. Structural insights into the catalysis and regulation of E3 ubiquitin ligases. Nat Rev Mol Cell Biol. 2016;17(10):626-642.
- Li W, et al. Genome-wide and functional annotation of human E3 ubiquitin ligases identifies MULAN, a mitochondrial E3 that regulates the organelle's dynamics and signaling. PLoS One. 2008;3(1).
- Békés M, Langley DR, Crews CM. PROTAC targeted protein degraders: The past is prologue. Nat Rev Drug Discov. 2022;21(3):181-200.
- Crowe C, et al. Mechanism of degrader-targeted protein ubiquitinability. Sci Adv. 2024;10(41).
- Fischer ES, et al. Structure of the DDB1-CRBN E3 ubiquitin ligase in complex with thalidomide. Nature. 2014;512(7512):49-53.
- Teng M, Gray NS. The rise of degrader drugs. Cell Chem Biol. 2023;30(8):864-878.
- Burke MR, Smith AR, Zheng G. Overcoming cancer drug resistance utilizing PROTAC technology. Front Cell Dev Biol. 2022;10.
- de Wispelaere M, et al. Small molecule degraders of the hepatitis C virus protease reduce susceptibility to resistance mutations. Nat Commun. 2019;10(1):3468.
- Paiva SL, Crews CM. Targeted protein degradation: Elements of PROTAC design. Curr Opin Chem Biol. 2019;50:111-119.
- Pan B, et al. Targeted protein degraders of SARS-CoV-2 Mpro are more active than enzymatic inhibition alone with activity against nirmatrelvir-resistant virus. Commun Med. 2025;5(1):140.
- Alugubelli YR, et al. Discovery of first-in-class PROTAC degraders of SARS-CoV-2 main protease. J Med Chem. 2024;67(8):6495-6507.
- Xu Z, et al. Discovery of oseltamivir-based novel PROTACs as degraders targeting neuraminidase to combat H1N1 influenza virus. Cell Insight. 2022;1(3):100030.
- Schwerdtner M, et al. Unveiling the role of TMPRSS2 in the proteolytic activation of pandemic and zoonotic influenza viruses and coronaviruses in human airway cells. Viruses. 2024;16(11):1798.
- Steinmetzer T, Hardes K. The antiviral potential of host protease inhibitors. In: Böttcher-Friebertshäuser E, Garten W, Klenk HD, editors. Activation of Viruses by Host Proteases. Springer; 2018. p. 279-325.
- Böttcher-Friebertshäuser E, et al. Cleavage of influenza virus hemagglutinin by airway proteases TMPRSS2 and HAT differs in subcellular localization and susceptibility to protease inhibitors. J Virol. 2010;84(11):5605-5614.
- Lam van TV, Ivanova T, Lindberg I, Böttcher-Friebertshäuser E, et al. Design, synthesis, and characterization of novel fluorogenic substrates of the proprotein convertases furin, PC1/3, PC2, PC5/6, and PC7. Anal Biochem. 2022;655:114836.
- Hardes K, Hammamy MZ, Steinmetzer T. Synthesis and characterization of novel fluorogenic substrates of coagulation factor XIII-A. Anal Biochem. 2013;442(2):223-230.
- Frost A, O'Connor S, Ciulli A. Allosteric PROTACs: Expanding the horizon of targeted protein degradation. J Am Chem Soc. 2026;148(3):2823-2837.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב