פרוטוקול זה משלב חיזוי יעדים של מטבוליטים מיקרוביאליים, טרנסקריפטומיקה של הרירית הרקטלית, אינטראקציה בין חלבונים להעשרה של מסלולים, עגינה מולקולרית (molecular docking), סימולציית דינמיקה מולקולרית והערכת אנרגיה חופשית של קישור באמצעות מכניקה מולקולרית/שטח פנים של פואסון-בולצמן (MM-PBSA), במטרה ליצור רשימה קצרה ומדורגת של גנים של המארח הקשורים למטבוליטים לצורך יצירת היפותזות, וקומפלקסים של חלבון-ליגנד בעדפות מבנית להמשך מעקב ניסיוני.
מאמר שיטה
תהליך עבודה חישובי לתיעדוף גנים של המארח הקשורים למטבוליטים מיקרוביאליים בתסמונת המעי הרגיז עם דומיננטיות של עצירות
במאמר זה
סיכום
תקציר
לא קיים צינור חישובי סטנדרטי לתיעדוף שיטתי של גנים של המארח הקשורים למטבוליטים מיקרוביאליים ושל קומפלקסים של חלבון-ליגנד מתוך מאגרי נתונים כימיים, גנומיים ומבניים הזמינים לציבור. מאמר זה מתאר זרימת עבודה בת שמונה שלבים, המקבלת קבוצה של מטבוליטים המופקים מחיידקי המעי שמוגדרת על ידי המשתמש, ומפיקה רשימה מדורגת ומקוצרת של גנים מועמדים של המארח הקשורים למטבוליטים, מסלולים ביולוגיים מועשרים, וקומפלקסים של חלבון-ליגנד מתועדפים מבנית להמשך מעקב ניסיוני. צינור העבודה משלב (i) פרופיל מטבוליטים כימואינפורמטי; (ii) חיזוי מטרות מועמדות מתוך מספר מאגרי נתונים באמצעות כלי לחיזוי מטרות המבוסס על ליגנדים ואינטראקציה בין חלבון לכימיקלים ותוכנה לעגינה מולקולרית (molecular docking); (iii) ניתוח ביטוי גנים דיפרנציאלי של נתונים טרנסקריפטומיים הזמינים לציבור; (iv) חפיפת מטרות עם גנים בעלי ביטוי דיפרנציאלי; (v) בניית רשת אינטראקציות חלבון-חלבון והעשרת מסלולים; (vi) עגינה מולקולרית באמצעות תוכנה לעגינה מולקולרית; (vii) סימולציית דינמיקה מולקולרית של 200 ns באמצעות מנוע דינמיקה מולקולרית עם שדה כוחות חלבון המשמש לסימולציות דינמיקה מולקולרית; ו-(viii) הערכת אנרגיה חופשית של קישור בשיטת MM-PBSA. כדוגמה מעשית, תשעה מטבוליטים המופקים מחיידקי המעי או שונו על ידיהם, המייצגים חומצות שומן קצרות שרשרת, חומצות מרה, מטבוליטים המופקים מטריפטופן ו-urolithin A, עובדו באמצעות מאגר הנתונים הטרנסקריפטומי הציבורי GSE36701 של רירית רקטום במצבי IBS-C. זרימת העבודה דירגה 17 גנים ייחודיים שנחזו כקשורים למטבוליטים אשר הראו ביטוי דיפרנציאלי במערך נתונים זה. ניתוחי עגינה, סימולציית דינמיקה מולקולרית ו-MM-PBSA תיעדו מבנית חמישה קומפלקסים של מטבוליט-חלבון: lithocholic acid-VDR, lithocholic acid-NR1H4/FXR, ursodeoxycholic acid-NR1H4/FXR, tryptamine-HTR2A (שסומולץ בשכבה כפולה של ליפידים מסוג 1-Palmitoyl-2-oleoyl-sn-glycero-3-phosphocholine (POPC) מפורשת), ו-urolithin A-CASP3. הפרוטוקול תוכנן להיות ניתן להתאמה לקבוצות מטבוליטים אחרות, למאגרי נתונים טרנסקריפטומיים של מחלות ולסוגי מטרות שונים; כל הפלטים הם תחזיות חישוביות המייצרות היפותזה, הדורשות שכפול טרנסקריפטומי עצמאי, תיקוף ברמת החלבון ובדיקות תגובה פונקציונלית לליגנד לפני שניתן להסיק מסקנות סיבתיות או טיפוליות.
מבוא
תסמונת המעי הרגיז עם עצירות (IBS-C) היא הפרעה תפקודית נפוצה של מערכת העיכול, המתאפיינת בכאבים בטניים חוזרים, שינוי בהרגלי היציאות, נפיחות ועצירות, כאשר השכיחות העולמית מוערכת בכ-10–15% מהאוכלוסייה הכללית1,2. טיפולים פרמקולוגיים נוכחיים, הכוללים חומרים מעוררי הפרשה (secretagogues), פרוקינטיקה ותרופות נוגדות עוויתות, עשויים לשפר תסמינים בודדים בחלק מהמטופלים; עם זאת, התגובה לטיפול נשארת הטרוגנית והשגה של רמיסיה בר-קיימא היא נדירה, דבר המשקף את הפתופיזיולוגיה המורכבת והרב-גורמית של המצב1,3,4. לפיכך, נדרשה הבנה מכניסטית מלאה יותר של האופן שבו אותות מיקרוביאליים במעי מועברים ברמת הרירית, כדי להגדיר היפותזות הניתנות לבדיקה עבור יעדים טיפוליים חדשניים.
מיקרוביוטת המעי תורמת להומיאוסטזיס של מערכת העיכול התחתונה באמצעות ייצור וביוטרנספורמציה של מטבוליטים מגוונים מבחינה כימית, כולל חומצות שומן קצרות שרשרת (SCFAs), חומצות מרה משניות, תרכובות נגזרות מטריפטופן ומטבוליטים נגזרים מפוליפנולים כגון אורוליתינים5,6,7,8. מולקולות אלו מתקשרות עם תאי המאכסן דרך רפרטואר רחב שטרם אופיין במלואו של מטרות מולקולריות, אשר חורג הרבה מעבר לקולטני קרום קנוניים להסנס של מטבוליטים וכולל קולטנים גרעיניים, אנזימים ציטוזוליים, חלבונים המשנים היסטונים, מקדימים להורמונים פפטידיים וחלבונים של העברה תוך-תאית9. הרכבי קהילה מיקרוביאלית של המעי ופרופילי מטבוליטים משתנים תועדו בחולים עם תסמונת המעי הרגיז (IBS), מה שמספק רציונל ביולוגי לבדיקה האם גנים של המאכסן הקשורים לתגובה למטבוליטים מיקרוביאליים הם בעלי הפרעה תעתוקית ברירית הרקטום ב-IBS-C10.
פאנל תשעת המטבוליטים הוגדר מראש כדי לספק קבוצה תמציתית, מגוונת כימית וניתנת לפירוש ביולוגי של מולקולות קטנות המופקות על ידי מיקרוביומת המעי או משתנות על ידו. הבחירה התבססה על חמישה קריטריונים: ייצוג של מחלקות מטבוליטים מיקרוביאליות עיקריות המעורבות באותוות בין המארח למיקרוביומה; חשיפה ידועה או סבירה של הרירית במעי הרחוק; זמינות של מזהי PubChem חד-משמעיים ומבנים קנוניים; גודל מולקולרי ויכולת טיפול מבנית לניבוי מטרות מבוסס-ליגנד וסימולציית docking; וסבירות מוקדמת לאותוות הקשורה לתאי אפיתל, למערכת הנוירו-אימונית, לתאים אנטרואנדוקריניים, לקולטנים גרעיניים או לתנועתיות ב-IBS-C. הפאנל שנבחר כלל butyrate ו-propionate כ-SCFAs; chenodeoxycholic acid, lithocholic acid ו-ursodeoxycholic acid כחומצות מרה; tryptamine, indole-3-propionic acid ו-indole-3-lactic acid כמטבוליטים נגזרות טריפטופן; ו-urolithin A כמטבוליט פוליפנולי המופק על ידי מיקרוביומת המעי5,6,7,8,9,10.
מרבית המחקריםBחישוביים והניסויים הקודמים בחנו זוגות בודדים של מטבוליט–רצפטור או מטבוליט–אנזים בבידוד, גישה שאינה לוכדת את הטבע המבוזר והמתכנס של סיגנלינג מטבוליטים מיקרוביאליים על פני מסלולי המארח9,11. שילוב של מספר שלבים אנליטיים מעניק כוח סינון הדדי ומחזק ששום שלב בודד אינו יכול לספק באופן עצמאי. חיזוי חישובי של מטרות מול מאגרי מידע מאושרים מניב קבוצה רחבה של חלבוני מארח מועמדים עבור כל מטבוליט. חיתוך עם נתונים טרנסקריפטומיים רלוונטיים למחלה מסנן באופן משמעותי קבוצה זו, תוך השארת מועמדים שרק התמלילים שלהם השתנו בהקשר של המחלה. ניתוחים של העשרת מסלולים ורשתות אינטראקציה בין חלבונים ממפים לאחר מכן את רשימת המועמדים המצומצמת למודולים ביולוגיים ידועים. עגינה מולקולרית (Molecular docking) מספקת הערכה חישובית ראשונית של השלימתיות של כיס הקשירה עבור כל קומפלקס מועמד, וסימולציית דינמיקה מולקולרית (MD) נוספת של 200 ns עם פירוק אנרגיה חופשית של קשירה בשיטת MM-PBSA מספקת ממד תרמודינמי ותלוי-זמן לתעדוף מבני שאינו זמין מצייוני עגינה בלבד. ביצוע כל שלב באופן עצמאי, ללא שילוב שיטתי וסינון רצופי, יביא לרשימות מועמדים רחבות מדי מכדי שניתן יהיה לבחון אותן ניסויית, ויכשיל את הזיהוי של ארכיטקטורת מסלולים מתכנסת.
במסגרת פרוטוקול זה, במונח "גן הקשור למטבוליט" (MAG), הכוונה היא לגן אנושי, שמוצר החלבון שלו הוגדר כמטרה מולקולרית משוערת של אחד או יותר ממטבוליטים שמקורם במיקרוביוטת המעי על ידי לפחות מאגר נתונים אחד של חיזויי חישוב מאושרים, וששכפול התעתקו (transcript) שלו מבוטא באופן דיפרנציאלי במערך הנתונים הטרנסקריפטומי הרלוונטי למחלה ששימש להדגמת זרימת העבודה. הגדרה אופרטיבית זו כוללת במכוון קולטנים של ממברנה בתוספת קולטנים גרעיניים, אנזימים ציטוזוליים, חלבוני איתות, מקדימי הורמונים פפטידיים וחלבוני תאי-פנים אחרים. הגדרה כ-MAG אינה מהווה ראיה ניסיונית לכך שמטבוליט נקשר, יוצר קומפלקס חלבון-ליגנד, מפעיל קולטן, משנה את שכיחות החלבון או גורם למחלה, אלא היא הגדרה שהופקה בחישוב לצורך יצירת השערות, אשר דורשת תיקוף ניסיוני.
פרוטוקול זה מתאר את זרימת העבודה החישובית המלאה בת שמונת השלבים (איור 1) עם פירוט תפעולי מספיק כדי לאפשר שכפול עצמאי, התאמה לפאנלים אחרים של מטבוליטים או למערכי נתונים של מחלות, והרחבה להקשרים אחרים של אינטראקציות בין מאחס למיקרוביוטה. זרימת העבודה מוגדרת במפורש כמסגרת להצגת היפותזות ותיעדוף מבני, הפועלת אך ורק על משאבי אומניקה ומשאבים מבניים הזמינים לציבור, ואינה מסיקה ריכוזי מטבוליטים משתנים, מצבי הפעלה של רצפטורים, שינויים בביטוי חלבונים, פעילות סיגנלינג במורד הזרם או משמעות קלינית מתוצאות חישוביות בלבד. כאן, אנו מדגימים את הפרוטוקול כדוגמה מעשית באמצעות תשעה מטבוליטים המופקים ממיקרוביוטת המעי או משתנים על ידיה, ומתוך מערך הנתתים הטרנסקריפטומיים הציבוריים GSE36701 של רירית הרקטום ב-IBS-C, במטרה לזהות MAGs ולתעדף קומפלקסים של מטבוליט–חלבון לצורך מעקב ניסויי בהמשך.
פרוטוקול
הניתוח השתמש אך ורק בנתוני טרנסקריפטומיקה מזוהים באופן אנונימי שהיו זמינים לציבור מ-GSE36701, ובמאגרי מידע כימיים, חלבוניים ומבניים שהיו זמינים לציבור. הגישה למאגרי המידע התבצעה בין ינואר למאי 2026. כל תאריך גישה מאוחר יותר תועד ב- טבלת חומרים נפרדת.
1. דרישות תכנון המחקר, חומרה ותוכנה
- הגדירו את זרימת העבודה לפני תחילת הניתוח. השתמשו בשמונה שלבים: בחירת מטבוליטים, חיזוי מטרות, ניתוח ביטוי דיפרנציאלי, חפיפה בין מטרות לגנים בעלי ביטוי דיפרנציאלי (DEG), העשרה של מסלולים/אינטראקציית חלבון-חלבון (PPI), עגינה מולקולרית (molecular docking), סימולציית MD, והערכת MM-PBSA.
- רשמו כי עגינה, MD ו-MM-PBSA הם כלי תיעדוף מבניים בלבד. אין לפרש פלטים אלו כראיה ניסויית לקשירה, להפעלת רצפטור, לשינוי בשפע של חלבון, ליעילות טיפולית או לסיבתיות של מחלה.
- אשרו את חומרת המחשוב לפני הרצת סימולציות MD. השתמשו במערכת הפעלה Linux של 64-ביט, מעבד עם 6 ליבות ומעלה, פלטפורמת האצה באמצעות GPU עם ≥8 GB VRAM, או פלטפורמת האצה מקבילה עם ≥8 GB VRAM, מינימום 32 GB RAM, ולפחות 200 GB שטח אחסון פנוי לכל מערכת MD.
- רשמו את התוכנות המרכזיות: מנוע דינמיקה מולקולרית, תוכנה לעגינה מולקולרית של ליגנדים מטבוליים לחלבוני מטרה, תוכנה להמרת פורמט של קבצים כימיים12, תוכנה ליצירת ליגנדים תלת-ממדיים, תוכנה להכנת ליגנדים, ערכת כלים להכנת קלט לעגינה, תוכנה לעגינה מולקולרית של ליגנדים מטבוליים לחלבוני מטרה, סביבת תכנות כללית, סביבת מחשוב סטטיסטי עם תשתית תוכנה לביואינפורמטיקה, וחבילה לניתוח ביטוי גנים דיפרנציאלי.
- רשמו את כלי הניתוח המבני: כלי מבוסס רשת לבניית מערכות ממבנה, שירות פרמטריזציה של ליגנדים תואם CHARMM, כלי לחישוב אנרגיית קשירה באמצעות מכניקה מולקולרית/ממס Solvent רציף, ספרייה להמרת פרמטרים וטופולוגיה מולקולרית, תוכנה לוויזואליזציה מולקולרית תלת-ממדית, וכלי לוויזואליזציה מולקולרית ולדיאגרמת אינטראקציות דו-ממדית 2021 (ראו טבלת חומרים עבור קישורי הורדה ומידע על גרסאות).
- רשמו בטבלת החומרים/קובץ הסביבה את מזהי הגרסאות המדויקים של שדה הכוח החלבוני שבו נעשה שימוש לסימולציות דינמיקה מולקולרית, CGenFF, CHARMM-GUI, תשתית תוכנת R/ביואינפורמטיקה, וכלי לחישוב אנרגיית קשירה באמצעות מכניקה מולקולרית/ממס Solvent רציף. סמנו מזהים חסרים כ-"not recoverable"; אל תסיקו אותם.
2. בחירת מטבוליטים ואפיון כימואינפורמטי
- הגדירו את פאנל המטבוליטים לפני חיזוי המטרה. כללו butyrate (PubChem CID: 264), propionate (CID: 1032), chenodeoxycholic acid (CID: 10133), lithocholic acid (CID: 9903), ursodeoxycholic acid (CID: 31401), tryptamine (CID: 1150), indole-3-propionic acid (CID: 3744), indole-3-lactic acid (CID: 92904), ו-urolithin A (CID: 5488186).
- שלופו את ה-SMILES (Simplified Molecular Input Line Entry System) הקנוני ואת ה-PubChem CID עבור כל מטבוליט. ודאו שמות נרדפים ומבנים כפולים לפני חיזוי המטרה. שמרו את המזהים הסופיים בגיליון המטבוליטים הראשי.
- הזינו את מחרוזות ה-SMILES הקנוניות לכלי הרשת לחיזוי תכונות פיזיקו-כימיות ו-ADME13 (ראו טבלת חומרים). רשמו את המשקל המולקולרי, שטח הפנים הפולרי הטופולוגי (TPSA), consensus logP, תורמי קשרי מימן, מקבלי קשרי מימן, קשרים סיבוביים, ספיגה גסטרו-אינטסטנלית חזויה, חיזוי P-glycoprotein, והתרעות Lipinski, Veber, Ghose, Egan, Muegge ו-PAINS.
- שמרו מטבוליטים עם זיהוי מבנה מוצלח, משקל מולקולרי ≤500 Da, וללא התרעות PAINS. רשמו כל קריטריון שלא עמד בדרישות ואת ההחלטה לשמר או להסיר את המטבוליט.
- קבעו את מצבי היונון לפני חיזוי המטרה ועגינה (docking). השתמשו בקבוצות קרבוקסילט דה-פרוטוניות עבור butyrate ו-propionate, בצורות חומצה קרבוקסילית ניטרליות עבור חומצות מרה, באמוניום פרוטוני עבור tryptamine, ובצורות ניטרליות עבור שאר המטבוליטים.
3. חיזוי מטרות אנושיות פוטנציאליות
- פתחו כלי לחיזוי מטרות אינטראקציה בין כימיקלים לחלבונים14 (ראו טבלת החומרים). הזינו את שם כל מטבוליט או את ה-PubChem CID שלו, בחרו ב-Homo sapiens (מזהה טקסונומיה: 9606), והגדירו את ציון האינטראקציה המשולב המינימלי ל-≥0.700.
- תעדפו ערוצי ראיות של ניסויים ומסדי נתונים מאושרים (curated) בכלי לחיזוי מטרות אינטראקציה בין כימיקלים לחלבונים. הורידו את טבלת השיוּך המלאה של החלבונים עבור כל מטבוליט.
- פתחו תוכנה לעגינה מולקולרית (molecular docking)15 (ראו טבלת החומרים). הזינו כל מחרוזת SMILES קנונית כאשר נבחר Homo sapiens, ושמרו מטרות עם הסתברות של ≥0.70.
- מזג את התוצאות של כלי חיזוי מטרות האינטראקציה בין כימיקלים לחלבונים ותוכנת העגינה המולקולרית כקבוצת איחוד עבור כל מטבוליט. שמרו כל מטרה שעומדת באחד מספי השבירה של מסדי הנתונים והסירו כניסות כפולות של סמלי גנים זהים.
- סטנדרטו את רשומות החלבונים לסמלי גנים מאושרים על ידי ועדת השמות של הגנים האנושיים (HGNC) באמצעות מיפוי מזהי חלבונים לסמלי גנים סטנדרטיים מאושרים על ידי HGNC או באמצעות מסד הנתונים המשולב למידע על גנים אנושיים (ראו טבלת החומרים). פתרו כינויים (aliases), סמלים מיושנים והערות איזופורמים לסמל גן אחד לכל חלבון.
- סווגו כל מטרה כקולטן ממברנה, קולטן גרעיני, אנזים, חלבון איתות תוך-תאי, הורמון פפטידי, חלבון הקשור להורמונים או חלבון תוך-תאי אחר. רשמו את הסיווג בטבלת המטרות.
4. מערך נתונים טרנסקריפטומי וניתוח ביטוי גנים דיפרנציאלי
- גשו למספר GSE36701 באמצעות הכלי המקוון של NCBI לניתוח ביטוי גנים דיפרנציאלי16,17 (ראה טבלת חומרים). רשום כי מערך הנתונים כולל נתוני ביטוי של ביופסיות של רירית הרקטום מקבוצות של IBS-C, תסמוימת המעי הרגיז עם שלשול (IBS-D), IBS לאחר זיהום ומתנדבים בריאים.18.
- חפשו ב-GEO וב-ArrayExpress קבוצת תיקוף (validation cohort) בלתי תלויה. השתמשו בשילובים של IBS-C, תסמוכת המעי הרגיז עם דומיננטיות של עצירות (constipation-predominant irritable bowel syndrome), רירית הרקטום (rectal mucosa), רירית המעי הגס (colonic mucosa), ביופסיה, טרנסקריפטום, מערך מיקרו (microarray) ו-RNA-seq. רשמו את המאגרים, את מונחי החיפוש, את תאריך החיפוש והאם זוהה מערך נתונים להשוואה לצורך תיקוף.
- הפעל את הכלי המקוון לניתוח ביטוי גנים דיפרנציאלי מרשומת GSE36701 (ראה טבלת חומריםהקצו את 18 דגימות ה-IBS-C לקבוצת ה-IBS-C, הקצו את 40 המתנדבים הבריאים לקבוצת הביקורת, והשאירו את דגימות ה-IBS-D וה-IBS לאחר זיהום ללא הקצאה.
- בצעו ניתוח ביטוי דיפרנציאלי באמצעות מסגרת חבילת הניתוח לביטוי גנים דיפרנציאלי עם תיקון שיעור גילוי שגוי (FDR) לפי שיטת Benjamini-Hochberg19הורד את טבלת התוצאות המלאה הכוללת את מזהה הגשוש (probe ID), סמל הגן (gene symbol), שם הגן (gene title), ערך logFC, ביטוי ממוצע (AveExpr), סטטיסטי t ממותנת (moderated t-statistic), ערך P גולמי וערך P מתוקנן.
- אחד את הגששים (probes) לכניסות ברמת הגן. הסר גששים שחסרים להם סמלי גנים; עבור סמלים כפולים, שמור את הגשש בעל ה-FDR הנמוך ביותר; ובמקרה של תיקו, השתמש בערך ה-logFC המוחלט הגבוה יותר.
5. ניתוח חפיפת מטרה-דרג (target-deg) והערכה סטטיסטית
- בצעו חיתוך (Intersect) בין כל רשימת המטרות החזויות הספציפיות למטבוליט לבין רשימת ה-DEG ברמת הגן ב-FDR < 0.05. רשמו את הגנים החופפים, המטבוליט ממנו מקורם, את ה-logFC, את ה-P-value המתוקנן ואת כיוון הביטוי.
- מזגו את רשימות החפיפה הספציפיות למטבוליטים לרשימת MAG לא-redundant. ספרו את סך המטרות החזויות, את החפיפות הספציפיות למטבוליטים ואת סך ה-MAGs הייחודיים.
- העריכו את העקביות הכיוונית ברמת הגש (probe-level) עבור גנים עם מספר גשים. סמנו כל גן שבו הגשים אינם תואמים בכיוון הביטוי.
- בנו את טבלת הסמיכות לבדיקת Fisher’s exact test באמצעות סך הEntries המאוחדים ברמת הגן, סך ה-DEGs, סך המטרות החזויות הייחודיות ו-MAGs שנצפו. חשבו את ה-P-value החד-צדדי, את יחס הסיכויים (odds ratio) ואת רווח הסמך של 95% באמצעות יישום ה-Fisher’s exact test.
- אם שיעור ה-DEG ברקע עולה על 50%, דווחו על החפיפה כתיאורית ולא כהעשרה (enrichment) המהווה תיקוף עצמאי. התייחסו להורדה אחידה בביטוי (uniform downregulation) כדפוס כיווני תיאורי, אלא אם בוצע מבחן כיווניות נפרד.
6. ניתוח רשת אינטראקציות חלבון-חלבון והעשרה של מסלולים
- העבירו את רשימת ה-MAG הייחודית והמלאה לבניית רשת אינטראקציות בין חלבונים ולהעשרת מסלולים20 (ראו טבלת חומרים). בחרו ב-Homo sapiens והגדירו את ציון האינטראקציה המינימלי ל-0.700.
- ייצאו את הרשת המשולבת של בניית רשת אינטראקציות בין חלבונים והעשרת מסלולים ואת טבלת האינטראקציות המלאה. אם כריית טקסט (text-mining) מייצרת טופולוגיה צפופה באופן מלאכותי, בטלו את הבחירה בטקסט-מיינינג והשאירו את הערוצים הניסויים, ערוצי הביטוי המשותף (co-expression) וערוצי מסדי הנתונים.
- ייצרו תתי-רשתות של מחלקות מטבוליטים עבור MAGs הקשורים ל-SCFA, לחומצות מרה ולטריפטאמין/סרוטונין. השתמשו באותן הגדרות של אורגניזם ורמת ביטחון כפי שהוגדרו בבניית רשת אינטראקציות בין חלבונים והעשרת מסלולים.
- הריצו בנייה של רשת אינטראקציות בין חלבונים והעשרת מסלולים מול Kyoto Encyclopedia of Genes and Genomes (KEGG)21, Reactome22, ו-Gene Ontology (GO) Biological Process23,24. החילו Benjamini–Hochberg BH FDR <0.05 וייצאו את כל טבלאות ההעשרה.
7. עגינה מולקולרית (Molecular docking)
- שלוף מבני רצפטורים שנקבעו ניסיונית ממאגר החלבונים של Research Collaboratory for Structural Bioinformatics RCSB PDB25 (ראה טבלת חומרים). השתמש ב-VDR/1DB1, NR1H4/FXR/3DCT, CASP3/2DKO, ו-HTR2A/6A93 עבור חמשת קומפלקסי החלבון-ליגנד בעדיפות גבוהה.
- הכן כל רצפטור על ידי השארת שרשרת A והסרה של מים, ליגנדים שגובשו יחד, קו-פקטורים, יונים ורשומות HETATM שאינן חלבון. עבור 6A93, הסר את סגמנט היתוך ה-T4 lysozyme לפני הכנת הרצפטור.
- הוסף מימנים פולריים, הקצה מטעני Gasteiger, ושמור כל רצפטור כ-PDBQT באמצעות ערכת כלי המבנה המולקולרי. בחן את מצבי הפרוטונציה של ההיסטידין באתר הקשירה לפני ההמרה ל-PDBQT ותעד את המצבים שנבחרו.
- צור מבנה תלת-ממדי עבור כל ליגנד בערכת כלי המרת קבצי המבנה הכימי. בצע מזעור אנרגיה עם Universal Force Field (UFF) למשך 500 שלבים, הקצה מצב יינון עבור pH 7.4, הקצה מטעני Gasteiger, ושמור כ-PDBQT.
- הגדר תיבת עגינה (docking box) בגודל 25 Å x 25 Å x 25 Å הממורכזת על המרכז (centroid) של הליגנד שגובש יחד. השתמש במרכזים (10, 19, 33) עבור VDR, (137, 31, 78) עבור FXR, (37, 34, 32) עבור CASP3, ו-(12, −1, 61) עבור HTR2A.
- הרץ עגינה מולקולרית של ליגנדים מטבוליים לחלבונים המטרה26,27 עם exhaustiveness = 8, seed = 42, num_modes = 9, ו-energy_range = 3 kcal/mol. רשום את ציון ה-Vina הגבוה ביותר וערכי Root-mean-square deviation (RMSD) עבור כל הפוזות (poses).
- בחר את mode 1 עבור כל קומפלקס בעדיפות גבוהה. צור דיאגרמות דו-ממדיות של ליגנד-שארית באמצעות כלי הדמיה מולקולרית וכלי דיאגרמות אינטראקציה דו-ממדיות, ותצוגות תלת-ממדיות של רצפטור-ליגנד בתוכנה להדמיה מולקולרית תלת-ממדית.
- בצע בקרות של עגינה חוזרת (redocking) עבור VDR/1DB1 ו-FXR/3DCT. קבל את הגדרות העגינה של הרצפטור כאשר RMSD של האטומים הכבדים הוא <2.0 Å ביחס לפוזה הקריסטלוגרפית.
- בצע בקרות עגינה צולבת (cross-docking) על ידי עגינה של Lithocholic acid (LCA) לתוך CASP3 ושל tryptamine לתוך VDR. השווה בין ציונים קוגנאטיים ולא קוגנאטיים ורשום מקרים שבהם הפרש הציונים הוא <1.0 kcal/mol.
8. סימולציית דינמיקה מולקולרית
- הפק פרמטרי ליגנד באמצעות שירות פרמטריזציה של ליגנדים התואם ל-CHARMM28 (ראה טבלת חומרים). בחן את כל ציוני העונש (penalty scores) וסמן כל פרמטר עם עונש >50.
- המיר קבצי זרם (stream files) של הליגנד לקבצי .itp ו- .prm התואמים למנוע הדינמיקה המולקולרית באמצעות סקריפט להמרה של טופולוגיית שדה הכוחות. שלב את קבצי הטופולוגיה של הליגנד והחלבון עבור כל קומפלקס.
- בצע חלוקה מחדש של מסת המימן (hydrogen mass repartitioning) באמצעות ספריית המרה של טופולוגיה מולקולרית ופרמטרים. הפק טופולוגיות מימיות עם שדה הכוחות של החלבון ששימש לסימולציות דינמיקה מולקולרית29 ומודל מים מפורש בעל שלושה אתרים30.
- בצע סולבציה (solvate) לקומפלקסים המימיים בתיבה דודקאהדרלית עם מרווח של לפחות 1.2 nm בין הממס לקצוות. נטרל את המערכות והוסף NaCl עד לריכוז של 0.15 M.
- בנה את מערכת ממברנת ה-tryptamine-HTR2A באמצעות כלי בניית מערכת ממברנה מבוסס רשת31,32,33 (ראה טבלת חומרים). השתמש בקואורדינטות רצפטור המיושרות למסד נתונים של אוריינטציית ממברנה-חלבון34 (ראה טבלת חומרים), שכבת דו-שכבתית של POPC טהור, שכבות מים של 22.5 Å ו-0.15 M NaCl.
- בצע מינימום אנרגיה לכל המערכות בשיטת steepest descent עד ל-50,000 צעדים. אשר התכנסות ב-Fmax <1000 kJmol-1nm-1 לפני שלב השיווי.
- בצע שיווי (equilibration) למערכות המימיות בשלבי אנסמבל של מספר חלקיקים, נפח וטמפרטורה קבועים (NVT) ואנסמבל של מספר חלקיקים, לחץ וטמפרטורה קבועים (NPT). בצע שיווי למערכת הממברנה באמצעות זרימת עבודה מבוססת רשת להכנה ושיווי של מערכות מולקולריות רב-שלבית בת ששב שלבים עם שחרור הדרגתי של אילוצים.
- הרץ סימולציית MD ייצור למשך 200 ns עבור כל חמשת הקומפלקסים. השתמש בצעד זמן (timestep) של 4 fs עם חלוקת מסת מימן (HMR), תרמוסטט V-rescale ב-310 K, ברוסטט Parrinello-Rahman ב-1 bar, אלקטרוסטטיקה של Particle mesh Ewald (PME)35 ואילוצי LINCS36.
- נתח את המסלולים (trajectories) הסופיים באמצעות כלי ניתוח מסלולי דינמיקה מולקולרית. חשב RMSD של השלד (backbone), תנודה ממוצעת ריבועית (RMSF) של Cα, רדיוס גירהציוני, שטח פנים נגיש לממס (SASA) וקשרי מימן בין חלבון לליגנד, כאשר 150 ns האחרונים ישמשו כחלון הניתוח העיקרי.
9. הערכת אנרגיה חופשית של קישור בשיטת MM-PBSA
- חלץ צילומי מסך (snapshots) של המסלול עבור אנליזת MM-PBSA. השתמש ב-2,001 פריימים עבור כל קומפלקס מימי וב-201 פריימים מעובדים עבור תת-המערכת של HTR2A המוטמעת בממברנה.
- הפעל את הכלי לחישוב אנרגיית קישור באמצעות מכניקה מולקולרית/ממס solvent רציף37 עם סולבציה מסוג Poisson-Boltzmann, קבוע דיאלקטרי פנימי = 1, קבוע דיאלקטרי חיצוני = 80, סולבציה לא פולרית מבוססת SASA, וללא תיקון אנטרופיה. דווח על ממוצע האנרגיה החופשית של הקישור ועל סטיית התקן.
- בצע פירוק לפי שארית (per-residue decomposition) עבור כל חמשת הקומפלקסים. דווח על השאריות המייצבות והמערערות בעלות תרומה מוחלטת של ≥0.5 kcalmol−1.
תוצאות
מטרות מועמדות הקשורות למטבוליטים
שבעת המטבוליטים הניבו סטים שונים של מטרות חזויות בתוכנית לחיזוי אינטראקציות כימיות-חלבונים ובתוכנית לעגינה מולקולרית (molecular docking). פרופיוןאט, טריפטאמין, חומצות מרה ואורוליתין A הניבו מספר מטרות בעלות רלוונטיות ידועה לשליחויות במערכת העיכול. נוף המטרות החזויות כלל קולטנים קנוניים בממברנה, קולטנים גרעיניים, אנזימים תוך-תאיים, חלבוני איתות וחלבוני קשירה להורמוני פפטידים. לפיכך, תוצאות השלב הבא מתוארות כגנים הקשורים למטבוליטים (MAGs) ולא כממצאים של קולטנים בלבד (טבלה 1).
השוואה מול אינטראקציות מדווחות בין מטבוליטים לחלבונים
על מנת להשוות את פלט חיזוי המטרות לידע ניסיוני קיים, סווגו קשרי המטבוליטים למטרות החוזים לשלוש רמות של ראיות: (i) אינטראקציות ישירות או קרובות ברמת המחלקה בין מטבוליט לחלבון המגובות ניסיונית, שבהן דווח כי המטבוליט או מטבוליט אנדוגני קרוב לו נקשר, מפעיל, מעכב או מווסת באופן תפקודי את החלבון המקודד; (ii) אינטראקציות המגובות על ידי מסלול או מחלקת מטרה, שבהן המטרה החזויה שייכת למסלול תגובה למטבוליטים או למשפחת רצפטורים מבוססת, אך הראיות הישירות עבור זוג המטבוליט-חלבון הספציפי הן מוגבלות; ו-(iii) קשרים מבוססי חישוב בלבד עבורם לא זוהתה אינטראקציה ניסיונית ישירה בספרות שנסקרה. השוואה זו שימשה כדי לתת הקשר ל-MAGs החזויים, ולא כדי לתקף אותם.
מספר תחזיות שחזרו ממצאים ביולוגיים שדווחו בעבר. האינטראקציה Propionate-FFAR2 נחשבה כנתמכת ניסיונית כיוון ש-FFAR2/GPR43 הוא קולטן קנוני לחומצות שומן קצרות שרשרת. האינטראקציה Butyrate-HDAC3 סווגה כנתמכת ניסיונית או נתמכת-סוגי (class-supported) מכיוון ש-butyrate הוא מעכב מוכר של היסטון דה-אצטילאז, והחפיפה החזויה כללה חבר במשפחת ה-HDAC. תחזיות הקשורות לחומצות מרה הכוללות את NR1H4/FXR ו-VDR נחשבו כנתמכות על ידי הביולוגיה המוכרת של קולטני גרעין לחומצות מרה, במיוחד עבור חומצות מרה הידרופוביות כגון LCA; תחזיות FXR הקשורות ל-Ursodeoxycholic acid (UDCA) פורשו בזהירות כיוון ש-UDCA הוא בדרך כלל ליגנד חלש יותר של FXR או כזה התלוי בהקשר. תחזיות HTR1B, HTR2A, HTR2B ו-HTR6 הקשורות ל-Tryptamine סווגו כנתמכות על ידי מסלול סרוטונירגי ולא כאינטראקציות ישירות מאוששות ספציפיות לקולטן, מכיוון ש-tryptamine הוא מונואמין מיקרוביאל נגזר trypt tryptophan וקולטני סרוטונין הם ווסתים מוכרים של תנועתיות והפרשה במערכת העיכול. האינטראקציה Urolithin A-CASP3 נחשבה כנתמכת על ידי מסלול בשל קשרים שפורסמו בין urolithin A לתגובות אפוप्टוטיות/קשורות לקספאז, אך לא על סמך ראיה ישירה לקשירה של CASP3. התחזיות Indole-3-lactic acid-KYAT1 ו-indole-3-propionic acid-KYAT1 נשמרו כהשערות חישוביות בלבד, מכיוון שהספרות הרחבה תומכת באיתות של המאכסן על ידי נגזרות אינדול מיקרוביאליות, אך לא בקשירה ישירה של KYAT1 על ידי מטבוליטים ספציפיים אלה7,8,38,39,40.
בהתאם לכך, טבלה 1 מבדילה בין הגדרת המטרה החישובית לבין רמת התמיכה הניסויית או התמיכה במסלול קודם. היא מספקת גם, עבור כל מטרה, את מקור החיזוי (חיזוי מטרה של אינטראקציה כימיקלית-חלבון, תוכנת עגינה מולקולרית, או שניהם), את ציון האינטראקציה המשולב עבור חיזוי מטרה של אינטראקציה כימיקלית-חלבון, ואת ההסתברות של תוכנת העגינה המולקולרית כאשר המטרה זוהתה על ידי תוכנת עגינה מולקולרית. מטרות שנחזו ללא ראיות ניסוי ישירות קודמות מתוארות כגנים מועמדים הקשורים למטבוליטים, הדורשים תיקוף עצמאי ברמת החלבון ותגובת הליגנד.
חפיפה בין מטרות חזויות לבין גנים בעלי ביטוי שונה ב-IBS-C
החיתוך בין רשימות המטרות החזויות המשולבות (union-combined) לבין תוצאות הביטוי הדיפרנציאלי ברמת הגן זיהה 17 גנים ייחודיים המקושרים למטבוליטים, שהיו בעלי ביטוי דיפרנציאלי משמעותי בהשוואה בין IBS-C למתנדבים בריאים. כל 17 הגנים היו בעלי ביטוי מופחת (downregulated). הקבוצה כללה קולטנים ממברנתיים וגרעיניים (CASR, FFAR2, GPR68, HTR1B, HTR2A, HTR2B, HTR6, NR1H4, TBXA2R, VDR) וחלבונים שאינם קולטנים (CASP3, GCG, GNAQ, GPHN, HDAC3, KYAT1, MLN) (טבלה 1, איור 2A,B).
כל 17 ה-MAGs עמדו בסף שיעור תגליות שגויות (FDR) נמוך מ-0.05; 16 מתוך 17 עמדו בסף המחמיר יותר של FDR < 0.01, כאשר הגן הנותר (HTR1B) היה מובהק ב-FDR < 0.05. שבעה מתוך 17 המטרות (CASP3, GCG, GNAQ, GPHN, GPR68, HDAC3, TBXA2R) עמדו הן ב-FDR < 0.01 והן בשינוי שכיחות (fold change) מוחלט של log2 העולה על 1.0 (טווח logFC בין −1.34 ל-−1.10), מה שמעיד על ביטוי מופחת (downregulation) חזק ועקבי עבור תת-קבוצה זו. שאר המטרות הראו ביטוי מופחת מתון אך מובהק סטטיסטית (|logFC| בטווח שבין 0.45 ל-0.97). תבנית תיאורית אחידה זו פורשה בזהירות, בהתחשב במאפייני הביטוי רחב-הגנום של מערך הנתונים (ראו הערכה סטטיסטית להלן).
הערכה סטטיסטית של החפיפה עם ה-DEG המיועד
כדי להעריך באופן פורמלי את המובהקות הסטטיסטית של החפיפה בין 17 הגנים, הוחל מבחן מדויק של פישר (Fisher’s exact test) חד-זנבי, כאשר 17 הגנים שהחזויים כמטרות שימשו כקבוצת השאילתה, וכל 18,296 הרשומות הייחודיות של גנים שזוהו ב-GSE36701 שימשו כרקע הגנומי. מתוך רקע זה, 17,296 גנים (94.5%) הבעו ביטוי דיפרנציאלי ב-FDR < 0.05, מה שמעיד על דיכוי שעתוקי כמעט אוניברסלי בהשוואה של רירית הרקטום ב-IBS-C. כל 17 הגנים שהחזויים כמטרות היו בין הגנים בעלי הביטוי הדיפרנציאלי (חפיפה נצפית של 17/17, 10%). בהינתן שיעור ביטוי דיפרנציאלי של 94.5% ברקע, החפיפה הצפויה עבור כל קבוצה אקראית של 17 גנים היא 16.1 גנים. מבחן מדויק של פישר הניב p = 0.384 עם יחס סיכויים מתוקנן לרציפות של 2.03 (רווח סמך של 95% בין 0.12–3.73), תוצאה שלא הייתה מובהקת סטטיסטית ב-α = 0.05 (איור 3A–C).
תוצאה זו מעידה כי החפיפה הנצפית של 17/17 אינה עולה על החפיפה הצפויה במקרה תחת פרופיל הביטוי הגנומי של מערך נתונים זה. בהתאם לכך, ממצאים אלו מפורשים כדפוס כיווני תיאורי, שבו כל 17 המטרות החזויות היו בעלות ביטוי מופחת (downregulated) באופן עקבי ומשמעותי ברקמה של רירית הרקטום ב-IBS-C, ולא כראיה להסחה סטטיסטית (statistical enrichment) או לתיקוף עצמאי על רקע גנומי. בדיקת הסחה פורמלית תדרוש שחזור במערכי נתונים טרנסקריפטומיים בעלי פרופילים סלקטיביים יותר של ביטוי דיפרנציאלי, שבהם הרבה פחות ממחצית מכלל הגנים יגיעו למשמעות סטטיסטית. יש להדגיש כי הירידה האחידה בביטוי של כל 17 הגנים החופפים היא תצפית תיאורית ולא תוצאה סטטיסטית שתוקפה בנפרד, מכיוון שהרקע של הביטוי הדיפרנציאלי במערך נתונים זה הוא בעצמו בעיקר בעל ביטוי מופחת; לכן, כיוון ירידה משותף בין הגנים החופפים הוא צפוי ולא הוכפף לבדיקה פורמלית של כיווניות. כיוון אחיד זה לא צריך לפיכך להיפרש כראיה סטטיסטית עצמאית לוויסות מתואם וספציפי למטבוליטים.
דפוסים ספציפיים למטבוליטים
לפרופיאונט היה מספר הגדול ביותר של גנים חופפים, כולל CASR, FFAR2, GCG, GNAQ, GPHN, GPR68, MLN, ו-TBXA2R, דבר המצביע על מעורבות אפשרית של סיגנלינג המגיב לחומצות שומן קצרות שרשרת וסיגנלינג הקשור ל-Gq. ביוטיראט חפף ל-HDAC3, בקו התואם לביולוגיה של היסטון דה-אצטילאז הקשורה לביוטיראט, אם כי הורדה של ביטוי mRNA לבדה אינה מבססת תגובתיות משתנה לביוטיראט. חפיפות הקשורות לחומצות מרה כללו את הרצפטורים הגרעיניים VDR ו-NR1H4, שניהם אפקטורים מוכרים של סיגנלינג חומצות מרה במעי38,39. טריפטאמין חפף ל-HTR1B, HTR2A, HTR2B, ו-HTR6, המרמז על סיגנלינג סרוטונינרגי כמודול מועמד, מערכת בעלת תפקידים מבוססים בתנועיות והפרשה במערכת העיכול40. חומצה אינדול-3-לקטית וחומצה אינדול-3-פרופיונית חפפו ל-KYAT1, ואורוליתין A חפף ל-CASP3.
העשראת מסלולים
ניתוח העשרה תפקודי של 17 הגנים החופפים זיהה מסלולים הקשורים לאיתות במורד של קולטנים המצומדים לחלבון G (GPCR), איתות Gαq, קישור ליגנד ל-GPCR, סינפסה סרוטונירגית, אינטראקציית ליגנד-קולטן נוירו-אקטיבית, העברת אותות סידן, איתות cAMP והפרשת הורמונים פפטידיים. תוצאות אלו עקביות עם הרכב קבוצת הגנים ותומכות בקוהרנטיות הביולוגית שלה, אך הן משקפות את האנוטציה התפקודית של הגנים שהוגשו ולא מהוות ראיה עצמאית לפעילות ברמת המסלול.
מבנה רשת אינטראקציות חלבון-חלבון
בניית רשת אינטראקציות בין חלבונים ואנליזה של העשרה של מסלולים פוענחו על פני שלוש רשתות משלימות. במטא-רשת המשולבת של 17 גנים (רשת 1), המבנה הבולט ביותר הנתמך על ידי אנוטציה היה רכיב סיגנלינג של GPCR/Gαq המרכז את GNAQ ומקשר אותו לגנים הקשורים לקולטנים, כולל TBXA2R, CASR, HTR2A ו-HTR2B. נשמרה גם קישוריות מוגבלת של קולטני סרוטונין, בולטת בעיקר בין HTR2A ל-HTR2B, בעוד שמספר גנים אחרים נותרו מבודדים או בעלי קישוריות חלשה בסף הביטחון שנבחר. הרשת הספציפית לפרופי TDs (רשת 2) הראתה טופולוגיה מוגבלת יותר, כאשר GNAQ שמר על קישורים הנתמכים באנוטציה ל-CASR ו-TBXA2R, בעוד ש-FFAR2, GPR68, GCG, GPHN ו-MLN היו מבודדים או בעלי קישוריות חלשה. רשת הטריפטאמין/סרוטונין (רשת 3) כללה את HTR1B, HTR2A, HTR2B ו-HTR6; בתוך תת-קבוצה זו, HTR2A ו-HTR2B הראו את החיבור המרכזי הנתמך באנוטציה, בעוד ש-HTR1B ו-HTR6 לא היו מחוברים באופן ישיר בסף שנבחר (איור 4A–C).
עגינה מולקולרית (Molecular docking)
ביצוע עגינה מולקולרית (Molecular docking) בוצע על חמישה קומפלקסים נבחרים של מטבוליט-חלבון. זוגות של חומצות מרה-קולטן גרעיני הראו ציוני Vina נוחים יותר מאשר urolithin A-CASP3 ו-tryptamine-HTR2A. ל-LCA-VDR היה הציון הטוב ביותר, −10.0 kcal/mol, ואחריו LCA-NR1H4/FXR (בסדר של −9.9 kcal/mol) ו-UDCA-NR1H4/FXR (בסדר של −9.4 kcal/mol). ל-urolithin A-CASP3 ו-tryptamine-HTR2A היו ציונים נמוכים יותר, אך עדיין סבירים, של −7.1 kcal/mol (טבלה 2).
עבור קומפלקס ה-LCA-VDR (מספר PDB: 1DB1), התבסס התנוחה החזויה על קשר מימן קונבנציונלי בין חמצן הקרבוקסילאט של ה-LCA ל-Ser278 (4.29 Å), יחד עם מגעים הידרופוביים נרחבים הכוללים את Leu230, Val234, Trp286, Val300, His305, Tyr295, Leu23 ו-His397, ומגעים נוספים מסוג ואן דר ואלס עם Met272, Leu313, Ile271, Ile268, Leu309, Phe42, Val418, Ala231, Ala303, Cys28, Ser275 ו-Phe150. לתנוחה המדורגת במיקום הראשון היה ציון Vina של −10.0 kcal/mol, גודל חל של 205 Å3, ומרכז רשת של (10, 19, 3) (טבלה 3, איור 5A,B).
עבור קומפלקס ה-LCA-NR1H4/FXR (מזהה PDB: 3DCT), ציון העגינה (docking score) של −9.9 kcal/mol לווה בקשרים הידרוגניים חזויים המערבים את His294 ו-Ile35, אינטראקציית π-Sigma עם His294, ומגעים הידרופוביים מסוג Alkyl או π-Alkyl המערבים את Met290, Met328, Ala291, Leu287, Ile352 ו-His47, כאשר מגעים נוספים של van der Waals תמכו בהתאמת השלד הסטרואידי בתוך כיס ה-FXR (טבלה 4, איור 6A,B).
התבניות החזויות של קומפלקס UDCA-NR1H4/FXR (מזהה PDB: 3DCT) הראו קשר מימני קונבנציונלי עם His47 (3.6 Å), קשר מימני נוסף עם Gly32 (3.46 Å), אינטראקציית π-Anion עם Val325 (4.96 Å), וקשר פחמן-מימן עם Trp469 (4.51 Å). מפת האינטראקציות זיהתה גם מגעים לא רצויים מסוג donor-donor עם Arg395 (3.89 Å) ו-Gln396 (3.40 Å), דבר המרמז כי ציון ה-Vina הנמוך יותר של UDCA בהשוואה ל-LCA באותו כיס קולטן עשוי לנבוע מגיאומטריה מקומית או אלקטרוסטטיקה פחות רצויות (טבלה 5, איור 7A,B).
במתחם urolithin A-CASP3 (מזהה PDB: 2DKO), מצב הקישור החזוי התאפיין בקשרי מימן קונבנציונליים עם Gln161 (3.78 ו-4.19 Å), Ser120 (3.95 Å) ו-Arg207 (3.05 ו-3.7 Å), והיה מיוצב dodatקית על ידי אינטראקציות π-Cation עם Arg207, קשר מימן מסוג π-Donor עם Cys163, ומגעים נוספים מסוג π-Alkyl וואן דר ואלס המערבים את Arg64, Ala162, His121, Ser205 ו-Trp206 (טבלה 6, איור 8A,B).
עבור קומפלקס tryptamine-HTR2A (מזהה PDB: 6A93), הפוזה החזויה יוצבה על ידי גשר מלח אלקטרוסטטי בין האמין הפרוטוני של ה-tryptamine לבין Asp15, אספרט השמור בסליל התוך-ממברנלי 3 (D3.32 לפי מספור Ballesteros-Weinstein), המעגן את האמין הפרוטוני של ליגנדים אמינרגים ברחבי קולטני סרוטונין וקולטנים דומים.41,42,43יחד עם קשרי מימן עם Thr160 ו-Ser159, מגעים ארומטיים עם Phe340 ו-Trp36, ואינטראקציות π-Alkyl עם Val156 ו-Ile163. מגעים נוספים של ואן דר ואלס עם Tyr370, Phe39, Ser242, Phe243, Phe32 ו-Leu123 תמכו בתבנית קשירה בכיס אורתוסטרי (טבלה 7, איור 9A,B).
תיקוף פרוטוקול העגנה (Docking)
כדי להעריך את מהימנות פרוטוקול העגינה (docking), בוצעו שני ניסויי בקרה משלימים. עבור בקרות עגינה חוזרת (redocking, בקרות חיוביות), הופקו ליגנדים שעברו גביש משותף (co-crystallized ligands) ממבני ה-X-ray הייחוס שלהם והועגנו מחדש לאתרי הקשירה הטבעיים שלהם. התנוחה (pose) החזויה בעלת הדירוג הגבוה ביותר עבור אנלוג הוויטמין D VDX ב-VDR/1DB1 סטתה ב-0.87 Å מהמיקום הקריסטלוגרפי, והליגנד מהגביש המשותף WAY-362450 ב-FXR/3DCT סטה ב-1.79 Å; שני הערכים היו נמוכים מסף הקבלה המקובל של 2.0 Å, מה שמאשש את התקינות הגאומטרית של פרוטוקול העגינה עבור מערכות רצפטורים אלו (איור 10A,B). עבור בקרות עגינה צולבת (cross-docking, בקרות שליליות), בוצעה עגינה של חומצה ליטוכולית לתוך caspase-3 (2DKO), פרוטאיז סיסטאין שאינו ליגנד ידוע עבורה, מה שהניב ציון חזוי (−8.3 kcal/mol) חלש ב-1.7 kcal/mol מאשר במטרת המקור שלו, VDR (−10.0 kcal/mol), ממצא העולה בקנה אחד עם הסלקטיביות החזויה של אתר הקשירה. עגינה של טריפטאמין לתוך VDR הניבה ציון חזוי של −6.4 kcal/mol בהשוואה ל-−7.1 kcal/mol במטרת המקור שלו, HTR2A, הבדל של 0.7 kcal/mol הנמצא בטווח אי-הוודאות המדווח של ציוני עגינה מולקולרית של ליגנדים מטבוליים לחלבוני מטרה, ולכן מעיד על סלקטיביות חזויה מתונה בלבד עבור ליגנד קטן זה (איור 10C). יחד, בקרות אלו מעידות כי פרוטוקול העגינה משחזר גאומטריות קשירה ידועות ומבחין בין זוגות קשריים לבין זוגות שאינם קשריים תחת התנאים שנבדקו, בעוד שהם נותרים תחזיות חישוביות שאינן מחליפות מדידות זיקה (affinity) ניסיוניות (טבלה 8).
סימולציית דינמיקה מולקולרית
סימולציות דינמיקה מולקולרית בוצעו עבור חמשת הקומפלקסים בעדיפות גבוהה לאורך מסלולי ייצור של 20 ns. ארבעת הקומפלקסים של הרצפטורים המסיסים והגרעיניים סומוללו בממס מימי מפורש, בעוד שהקומפלקס tryptamine-HTR2A סומולל בשכבה דו-שכבית מפורשת של שומני POPC כדי לספק סביבת ממבנה פיזיולוגית מתאימה עבור רצפטור זה, המצומד לחלבון G. הניתוחים בחנו את היציבות הדינמית של תנוחות העגינה (docked poses) תחת תנאים תלויי-זמן ואפשרו השוואה של ההתנהגות המבנית היחסית בין הקומפלקסים (טבלה 9).
פרופיל ה-RMSD של קומפלקס LCA-VDR/1DB1 הראה תקופת שיווי משקל קצרה במהלך 10 ns הראשונים, ולאחריה מישור יציב, עם תנודות בעיקר בטווח של 0.20–0.28 nm (איור 1A). ערכי ה-RMSF היו נמוכים, ותנודות השלד היו < 0.15 nm עבור רוב השאריות (איור 11B). ניתוח קשרי מימן הראה רשת עקבית של 2–5 קשרי מימן, עם עליות מזדמנות ל-7 (איור 1C). רדיוס הגירציה (Rg) נשמר בטווח של 1.25–1.75 nm, ושטח הפנים החשוף לממס (SASA) נשמר סביב 130 nm2 (איור 1D,E).
קומפלקס ה-urolithin A-CASP3/2DKO הפגין פעילות דינמית גבוהה יותר. ה-RMSD עלה בתחילה ולאחר מכן תנוד בטווח של 0.4 עד 0.7 nm, עם אירוע קצר של סטייה גבוהה סביב 165 ns (איור 12A). ניתוח RMSF הראה ניידות גבוהה ברמת השאריות, כאשר התנודות הגדולות ביותר נצפו באזור הלולאה הגמישה סביב שארית 175 (איור 12B). ניתוח קשרי מימן חשף רשת נרחבת ראשונית של כ-2–5 קשרים ב-30–40 ns הראשונים, שלאחריהם נצפו בעיקר 0 עד 2 קשרים לסירוגין (איור 12C). פרופילי רדיוס הגירציה (radius-of-gyration) ו-SASA התואמים מוצגים ב-איור 12D,E.
עבור מערכות חומצות המרה NR1H4/FXR (3DCT), פרופיל ה-RMSD של השלד נשאר בטווח צר יחסית לאורך רוב המסלול (איור 13A), בעוד שפרופיל ה-RMSF הראה ניידות נמוכה יותר באזורי הליבה ותנודות גבוהות יותר באזורים גמישים (איור 13B). קומפלקס ה-LCA-3DCT שמר על כשלושה עד ארבעה קשרי מימן יציבים לאורך המסלול, בעוד שקומפלקס ה-UDCA-3DCT הפגין תנודתיות גבוהה יותר בקשרי המימן וירידה בקשרי המימן לאחר כ-125 ns. פרופילי רדיוס הגירציה (Radius-of-gyration) עבור המערכות הקשורות ל-LCA ו-UDCA מוצגים ב-איור 13C,D, בהתאמה, ופרופילי ה-SASA התואמים מוצגים ב-איור 13E,F.
דינמיקה מולקולרית של קרומי קומפלקס tryptamine-HTR2A
קומפלקס ה-tryptamine-HTR2A/6A93 סומלה למשך 20 ns בתוך שכבה דו-שכבתית מפורשת של שומני POPC המכילה 258 מולקולות ליפידים, מודל מים מפורש בעל שלושה אתרים, ו-0.15 M NaCl, עבור גודל מערכת כולל של כ-10,925 אטומים33,4,45. הרצפטור נשאר מוטמע באופן יציב בשכבה לאורך כל המסלול (איור 14). ה-RMSD של השלד עלה מכ-0.10 nm למישור יציב סביב 0.15–0.20 nm בתוך 10 ns הראשונים ונשאר יציב לאחר מכן, כאשר כל הערכים היו נמוכים מ-0.25 nm, מה שמעיד על כך שהרצפטור שמר על קונפורמציה יציבה בסביבת הממברנה ללא פתיחה גלובלית (איור 15A). ה-RMSF לכל שארית הראה תנודות נמוכות בליבה הסלילית החוצת-ממברנה עם ניידות גבוהה יותר הצפויה באזורי הלולאות והקצוות, בהתאמה לגמישות טיפוסית של GPCR (איור 15B). רדיוס הגירציה היה מוגבל בקפידה בין כ-2.06 ל-2.12 nm, וה-SASA תנוד בתוך טווח צר ללא סחיפה הדרגתית, שניהם מאשרים את השימור של צרור החלבון הדחוס החוצה-ממברנה (איור 15C,D).
קשרי מימן בין החלבון לליגנד נשמרו לאורך כל המסלול (איור 15E), עם תנודות משמעותיות במספר קשרי המימן, שנעו בין 1 ל-3. כדי להעריך באופן ספציפי את התמדת האינטראקציה היונית המרכזית, נוטר מרחק המינימלי בין חנקן האמוניום הפרוטוני של הטרפטאמין לבין אטומי החמצן של הקרבוקסילט של Asp15 (D3.32) לאורך כל המסלול. מרחק זה נשאר מרוכז סביב ממוצע של 0.270 nm (מינימום 0.247 nm, מקסימום 0.424 nm), ומגע גשר המלח (< 0.4 nm) נשמר במשך 99.9% מהסימולציה, עם רק שתי סטיות חולפות קצרות, ללא אירוע דיסוציאציה מתמשך (איור 16). תוצאות אלו מרמזות כי האינטראקציה היונית השמרנית של Asp15 הספיקה כדי לייצב את הטרפטאמין בתוך הכיס האורתוסטרי של HTR2A לאורך סימולציית הממברנה.
אנרגיית קישור חופשית בשיטת MM-PBSA ופירוק לפי שארית
ניתוח MM-PBSA בוצע כדי להוסיף שכבת תיעדוף אנרגטית נוספת לחמשת הקומפלקסים (Table 10). עבור ארבעת הקומפלקסים המימיים, פירוק לפי שארית (per-residue decomposition) זיהה את התורמים האנרגטיים העיקריים עבור כל מצב קישור שנחזה. בקומפלקס LCA-VDR/1DB1, לליגנד ול-Gln317 הייתה תרומה חיובית, בעוד של-Trp286 הייתה תרומה שוללית. בקומפלקס urolithin A-CASP3/2DKO, השאריות Arg64 ו-Arg207 הראו תרומות שליליות חזקות לפי שארית, מה שמעיד על ייצוב פולרי או אלקטרוסטטי משמעותי; עם זאת, המסלול (trajectory) התואם נותר דינמי מאוד, מה שמוכיח שתורמים אנרגטיים חיוביים ברמת השארית לבדם אינם מבטיחים יציבות מתמשכת של הקומפלקס. עבור מערכות 3DCT, הקישור של LCA הונע בעיקר על ידי Arg31, בעוד שהקישור של UDCA כלל רשת אנרגטית מפוזרת יותר הכוללת את Glu326, Asp394, Arg395, Arg41 ו-Asp470. בארבע המערכות המימיות, פירוק ה-MM-PBSA תמך בתיעדוף היחסי של הקומפלקסים מבוססי LCA.
עבור קומפלקס tryptamine-HTR2A/6A93 המשובץ בממברנה, בוצע ניתוח MM-PBSA על תת-מערכת החלבון-ליגנד שהופקה ממסלול השכבה הכפולה46,47. נצפו תרומות חיוביות עבור הליגנד ועבור Asp15 (D3.32), שהיה התורם המייצב הדומיננטי ביותר ברמת השייר, בדומה לאינטראקציית גשר המלח שזוהתה הן בניתוחי ה-docking והן בניתוחי המרחק של המסלול. Trp137 הראה את התרומה השלילית הגדולה ביותר לכל שייר מבין השיירים הסובבים את הכיס האורתוסטרי (Ser86, Phe87, Phe13, Phe140, Phe141, Val156, Ser159, Thr160, Ile163, Val167, Tyr171), אשר יחד מרכיבים את רשת המגעים הארומטית והפולרית המצפה את כיס הקשירה. ערכים אלו מייצגים הערכות חישוביות יחסיות לצורך תיעדוף מבני ואינם מהווים זיקות קשירה ניסיוניות.
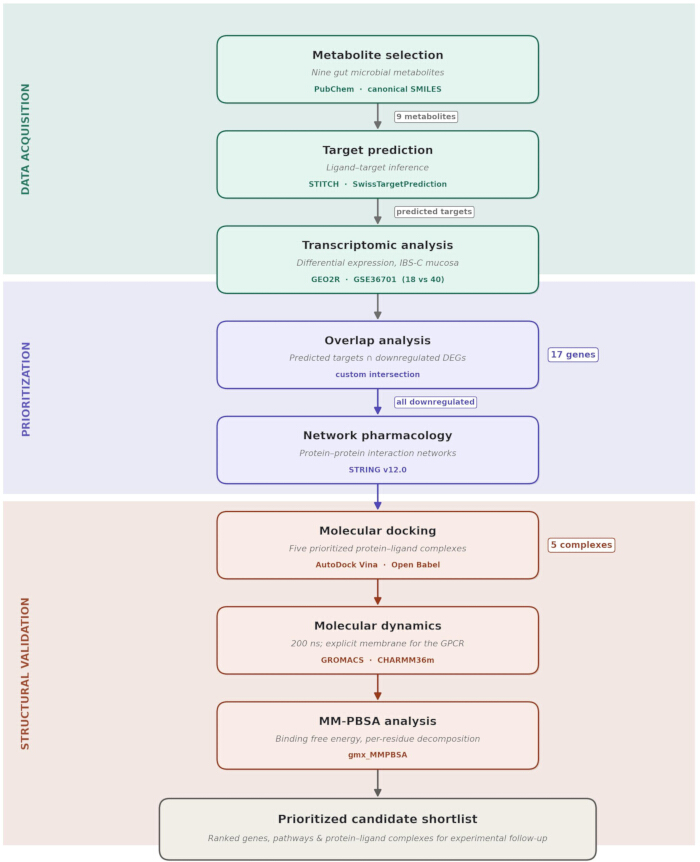
איור 1תהליך עבודה חישובי לתעדוף גנים של מאכס הקשורים למטבוליטים ב-IBS-C. ייצוג סכמטי של זרימת העבודה בת שמונת השלבים, המשלבת בחירת מטבוליטים, חיזוי מטרות, ביטוי שוני תעתוקי (transcriptomic differential expression), ניתוח חפיפה, העשרה של רשתות ומסלולים, עגינה מולקולרית (molecular docking), סימולציית דינמיקה מולקולרית וניתוח אנרגיה חופשית של קישור בשיטת MM-PBSA. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
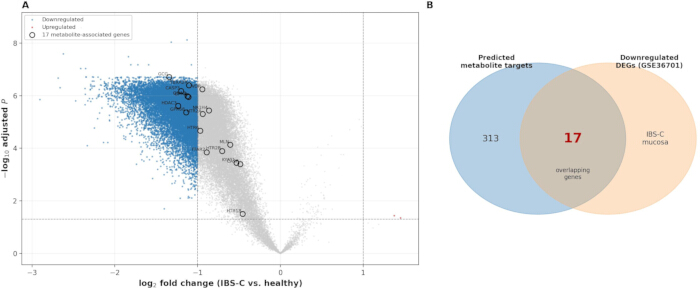
איור 2ניתוח ביטוי דיפרנציאלי וחפיפת מטבוליטים-מטרות ברירית של IBS-C. (A) תרשים הרי געש (Volcano plot) של ביטוי דיפרנציאלי ברמת הגן ב-GSE36701. נקודות כחולות, גנים עם ביטוי מופחת באופן מובהק; נקודות אדומות, גנים עם ביטוי מוגבר באופן מובהק; נקודות אפורות, גנים שאינם מובהקים. גנים נבחרים הקשורים למטבוליטים ובעלי חפיפה מסומנים. (B) תרשים ונ (Venn) המראה את החפיפה בין 30 מטרות מטבוליטים ייחודיות שנחזו לבין גנים עם ביטוי מופחת (downregulated) ב-GSE36701; 17 גנים היו משותפים. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
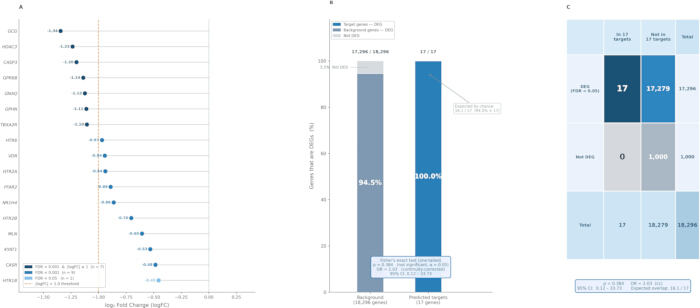
איור 3הערכה סטטיסטית של 17 גני המטהבוליטים המטרה החזויים מול GSE36701. (A) שינוי קיפול (fold change) בערכי log2 עבור כל 17 הגנים, צבוע לפי רמת מובהקות. (B( שיעור ביטוי דיפרנציאלי של גני רקע לעומת מטרות חזויות, באמצעות מבחן מדויק של פישר. (Cטבלת שכיחויות (contingency table) של שתיים על שתיים משמשת עבור מבחן Fisher המדויק. כל 17 המטרות הראו ביטוי נמוך (downregulated) באופן מובהק; החפיפה מפורשת כדפוס כיווני תיאורי ולא כהעשרה סטטיסטית. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
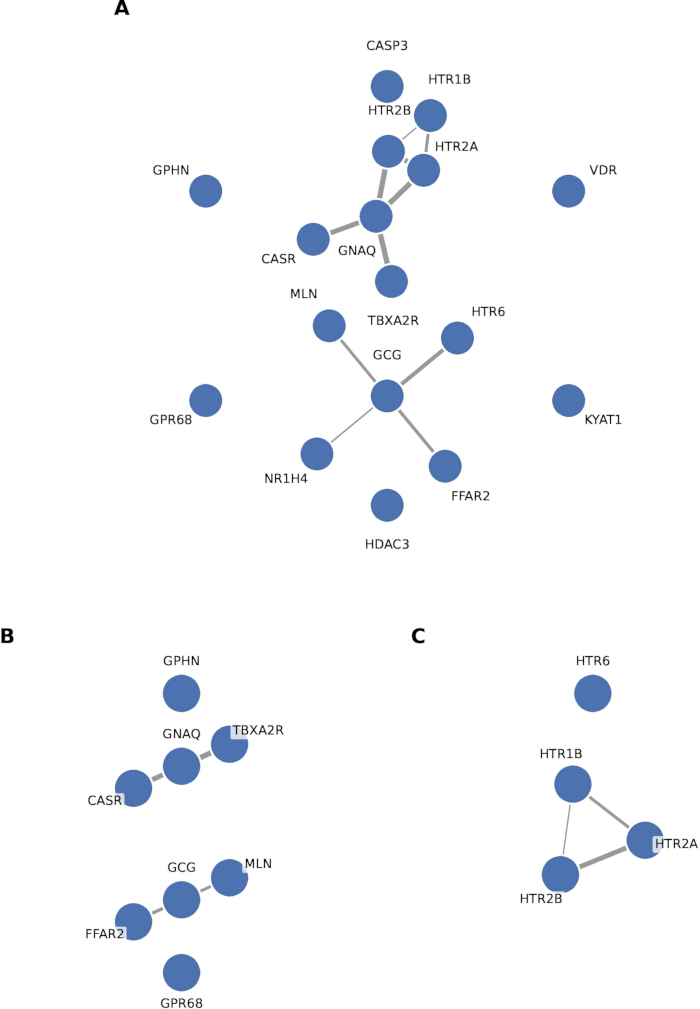
איור 4בניית רשת תגובות מורכבת של אינטראקציות חלבון-חלבון והעשרה של מסלולים ברשתות אינטראקציות חלבון-חלבון של גנים חופפים הקשורים למטבוליטים. (Aרשת 1: מטה-רשת משולבת של כל 17 הגנים.B) רשת 2: רשת ספציפית לפרופיאונט הכוללת שמונה גנים (CASR, FFAR2, GCG, GNAQ, GPHN, GPR68, MLN, TBXA2R). (Cרשת 3: רשת טריפטאמין/סרוטונין של ארבעה גנים (HTR1B, HTR2A, HTR2B, HTR6). הרשתות הופקו עבור Homo sapiens כמינימום, תוך שימוש בבניית רשת אינטראקציית חלבון-חלבון ורמת ביטחון להעשרת מסלולים ≥ 0.70. קצוות (Edges) מייצגים קשר תפקודי נתמך על ידי אנוטציה. אנא לחצו כאן כדי לצפות בגרסה מורחבת של דמות זו.
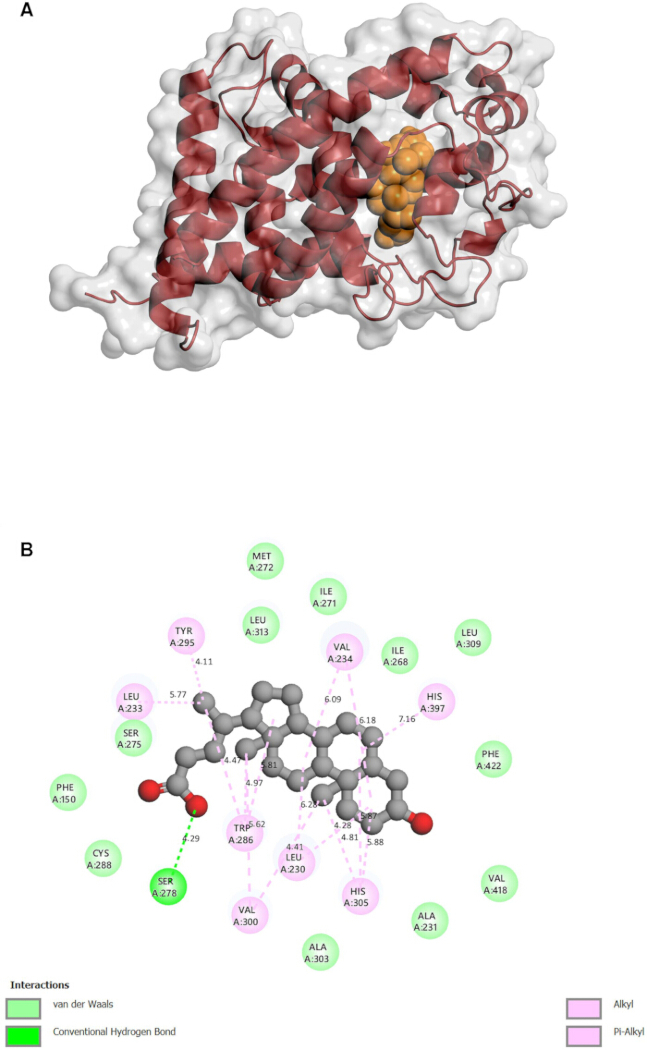
איור 5ייצוג מבני תלת-מדי ודו-ממדי של חומצה ליתוכולית בקומפלקס עם VDR (PDB ID: 1DB1). (Aייצוג תלת-מדי של פני השטח וייצוג סכימטי (cartoon), כאשר חומצה ליתוכולית מוצגת ככדורים.B(מפת אינטראקציה דו-מדית המציגה את קשר המימן של Ser278 ואת מגעי הוואנדר ואלס והמגעים ההידרופוביים שמסביבו. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
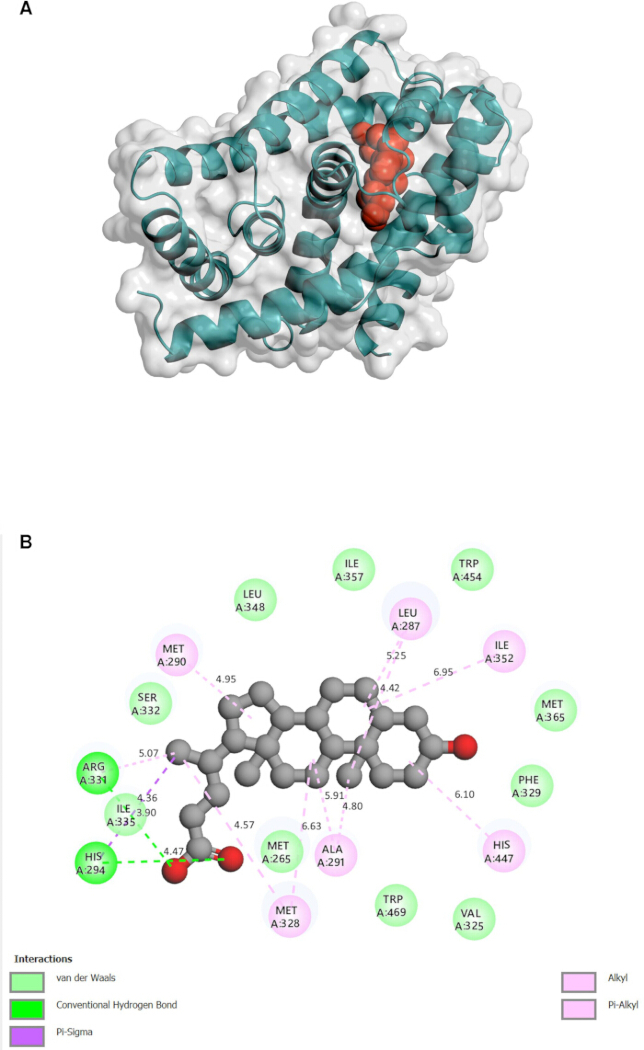
איור 6ייצוג מבני תלת-מדי ודו-מדי של חומצה ליתוכולית בקומפלקס עם NR1H4/FXR (מזהה PDB: 3DCT). (A(ייצוג תלת-מדי של הפני השטח ובמבנה סכימטי (cartoon). (B) מפת אינטראקציה דו-מדית המראה קשרי מימן עם His294 ו-Ile35, אינטראקציית π-Sigma ומגעים סביבתיים. אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
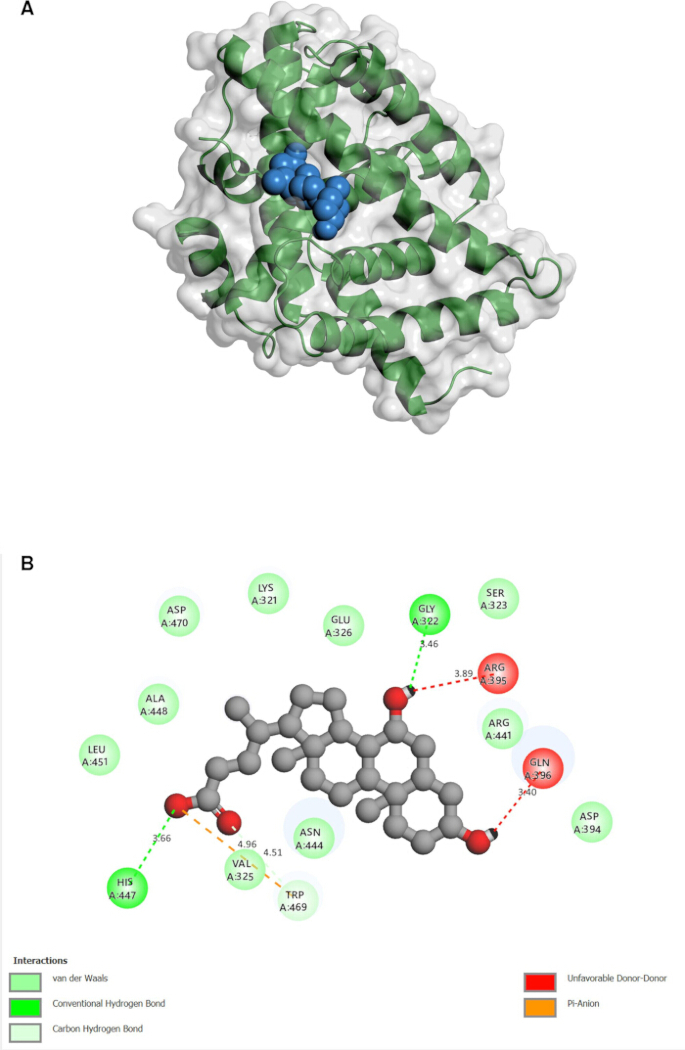
איור 7ייצוג מבני תלת-מדי ודו-מדי של חומצה אורסודאוכולית בקומפלקס עם NR1H4/FXR (מזהה PDB: 3DCT). (A) ייצוג תלת-מדי של הפני השטח ובמבנה סכימטי (cartoon). (Bמפת אינטראקציה דו-מדית המראה קשרי מימן עם His47 ו-Gly32, אינטראקציית $\pi$-Anion עם Val325, קשר פחמן-מימן עם Trp469, ומגעים לא רצויים מסוג תורם-תורם (donor-donor) עם Arg395 ו-Gln396. אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
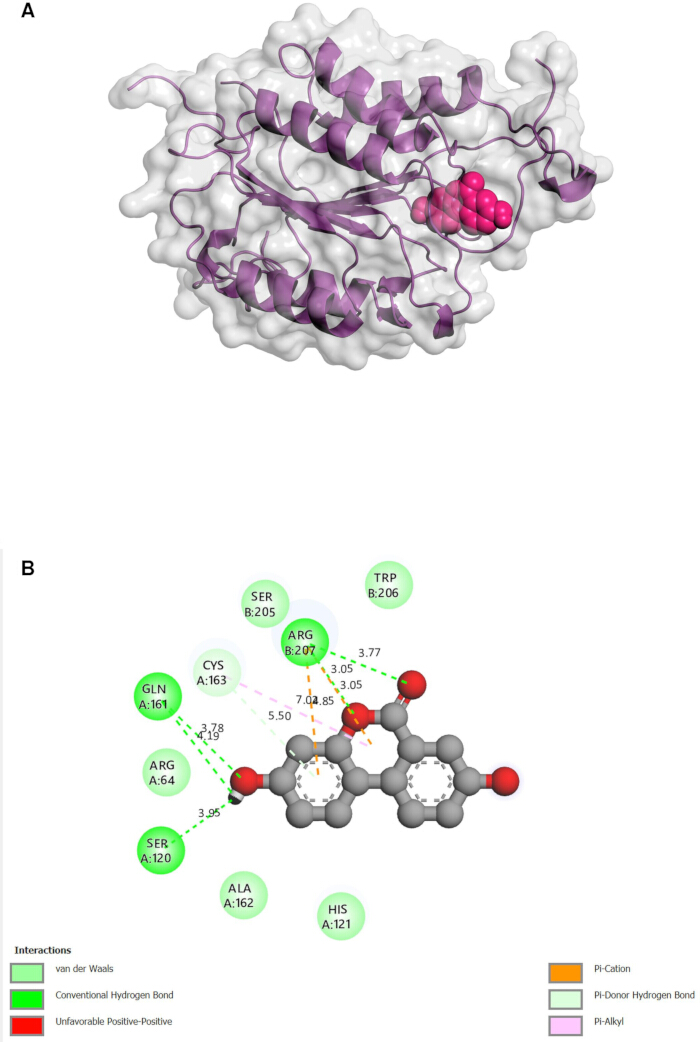
איור 8ייצוג מבני תלת-מדי ודו-מדי של urolithin A בקומפלקס עם CASP3 (מזהה PDB: 2DKO). (A(ייצוג תלת-מדי של פני השטח ובמבנה סכימטי (cartoon). (Bמפת אינטראקציה דו-מדית המראה קשרי מימן עם Gln161, Ser120 ו-Arg207, אינטראקציות π-Cation עם Arg207, קשר מימן מסוג π-Donor עם Cys163 ומגעים היקפיים. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
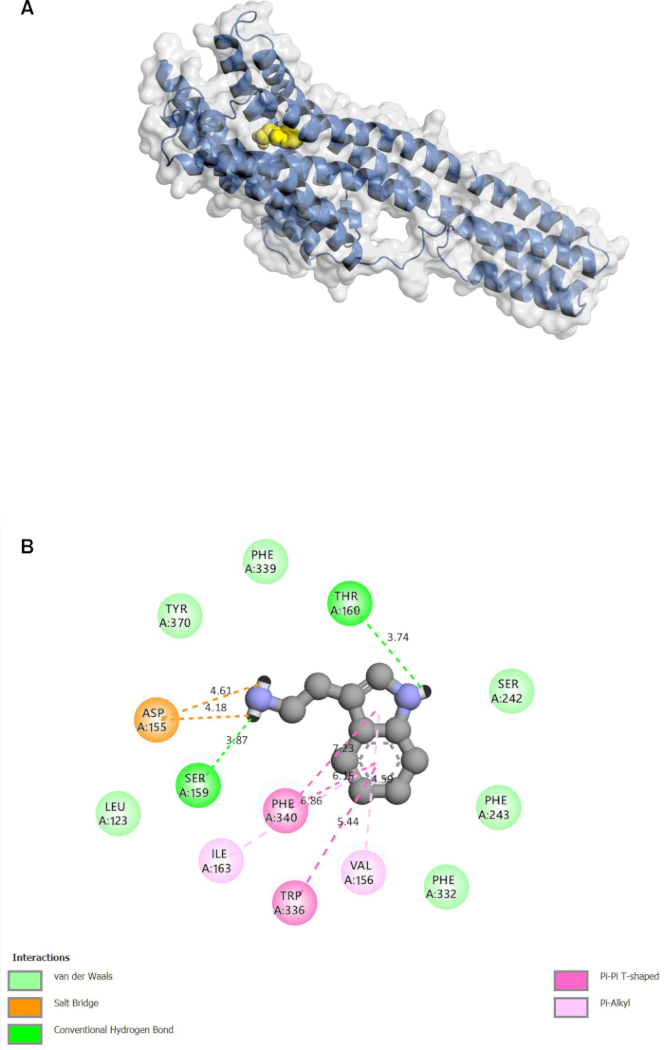
איור 9ייצוג מבני תלת-מדי ודו-מדי של טריפטאמין במתחם עם HTR2A (מזהה PDB: 6A93). (Aייצוג תלת-מדי של פני השטח ובמבנה "סרטון" (cartoon) שהופק בתוכנה להדמיה מולקולרית תלת-ממדית.Bמפת אינטראקציות דו-מדית שנוצרה באמצעות כלי לוויזואליזציה מולקולרית וכלי לדיאגרמות אינטראקציות דו-מדיות, הממחישה את גשר המלח של Asp15 ואינטראקציות נוספות באתר הקשירה. אנא לחצו כאן כדי לצפות בגרסה מורחבת של דמות זו.
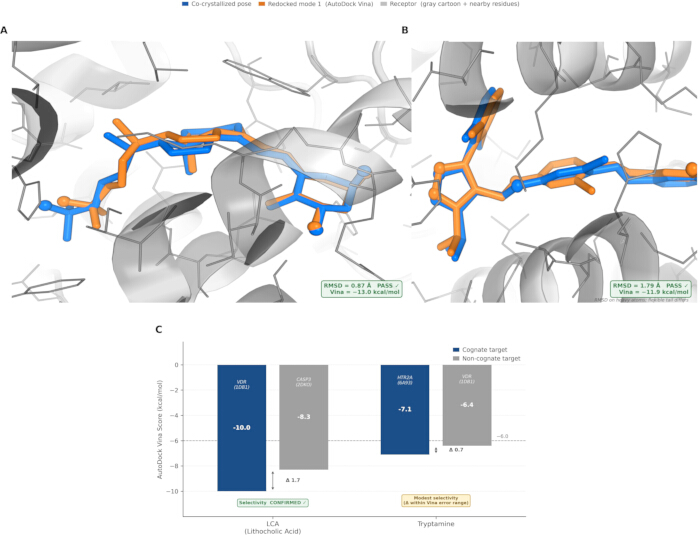
איור 10תיקוף פרוטוקול עגינה (Docking). (א, ב) Redocking של ליגנדים שגובשו במשותף (co-crystallized ligands) לתוך VDR/1DB1 (RMSD 0.87 Å) ו-FXR/3DCT (RMSD 1.79 Å); הפוזות הקריסטלוגרפיות והפוזות מה-redocking מוצגות אחת על גבי השנייה, שתיהן מתחת לסף הקבלה של 2.0 Å. (Cסלקטיביות של מסירה צולבת (Cross-docking): ציוני Vina של קשרים הומולוגיים (cognate) מול קשרים לא-הומולוגיים (non-cognate) עבור חומצה ליתוכולית וטריפטאמין. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
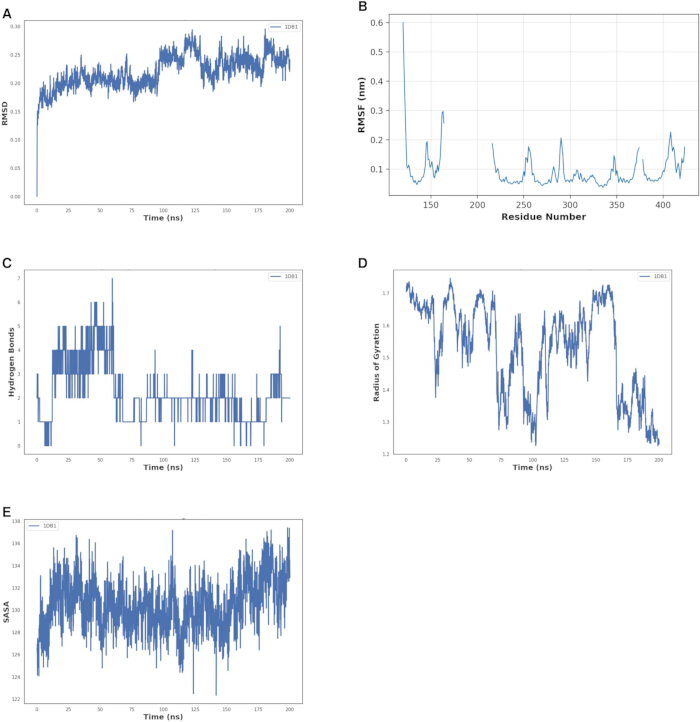
איור 11ניתוח מסלולי דינמיקה מולקולרית של קומפלקס LCA-VDR/1DB1 לאורך 20 ננו-שניות (ns). (A(פרופיל RMSD. (Bפרופיל RMSF.Cמספר קשרי מימן.ד') פרופיל רדיוס גירציה. (הפרופיל SASA. אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
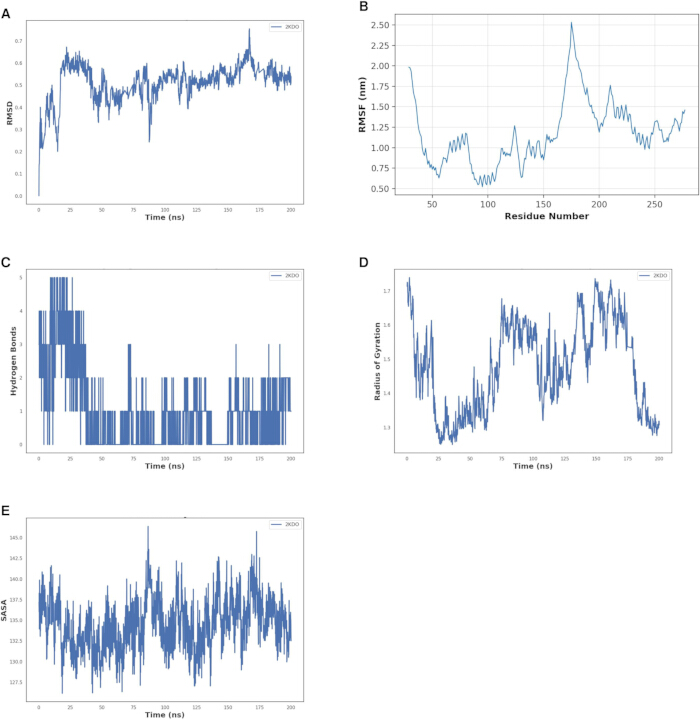
איור 12ניתוח מסלול דינמיקה מולקולרית של קומפלקס urolithin A-CASP3/2DKO לאורך 20 ננו-שנייה (ns). (Aפרופיל RMSD המראה תנודתיות קונפורמציונית רחבה ואירוע חריגה גבוה חולף סביב 165 ננו-שניות (ns).Bפרופיל RMSF המראה גמישות בולטת ברמת השאריות סביב שארית 175.C) מספר קשרי מימן. (ד') פרופיל רדיוס הגירציה. (הפרופיל SASA. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
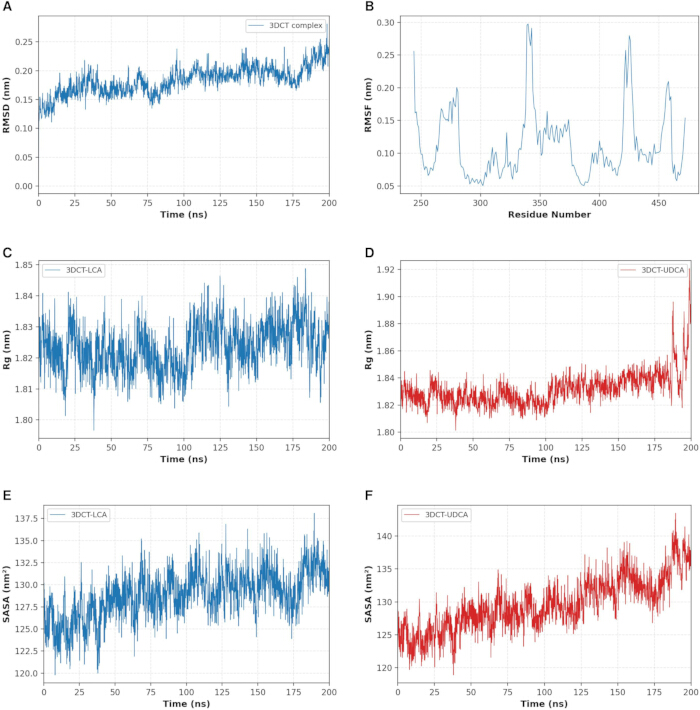
איור 13ניתוח מסלול דינמיקה מולקולרית של מערכות חומצות מרה NR1H4/FXR (3DCT) לאורך 20 ננו-שניות. (A( ) פרופיל RMSD של השלד עבור קומפלקס ה-3DCT. ( )B) פרופיל RMSF של השלד. (C( פרופיל רדיוס גירציה עבור 3DCT-LCA. (ד') פרופיל רדיוס גירציה עבור 3DCT-UDCA. (הפרופיל SASA עבור 3DCT-LCA.Fפרופיל SASA עבור 3DCT-UDCA. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
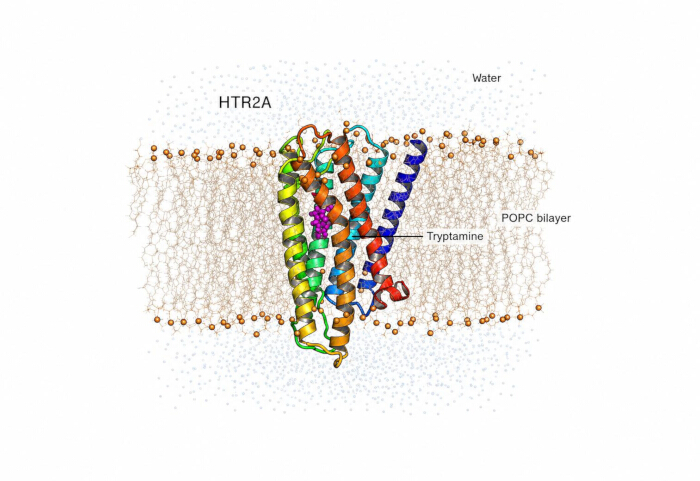
איור 14קומפלקס טריפטאמין-HTR2A המשובץ בשכבה ליפידית מפורשת של POPC. הקולטן מוצג כשרטוט סכמטי (cartoon) החוצה את השכבה הדו-שכבתית, ליפידי POPC מוצגים כקווים כאשר קבוצות הראש הפספטתיות מודגשות, וטריפטאמין נמצא בתוך התוך האורתוסטרי. מים מוצגים מעל ומטה לממברנה. אנא לחצו כאן כדי להציג גרסה מורחבת של דמות זו.
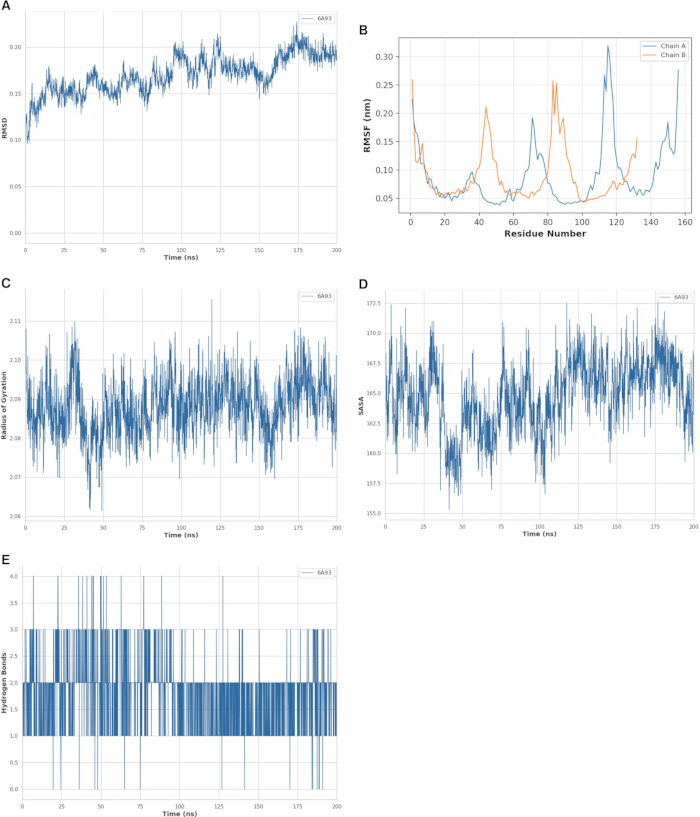
איור 15ניתוח מסלול דינמיקה מולקולרית של קומפלקס tryptamine-HTR2A/6A93 לאורך 20 ננו-שניות בשכבה ליפידית מפורשת של POPC. (A(פרופיל RMSD של השלד. (B(פרופיל RMSF לכל שארית. (C) פרופיל רדיוס גירציה (ד׳) פרופיל SASA. (הּמספר קשרי המימן בין חלבון לליגנד. אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
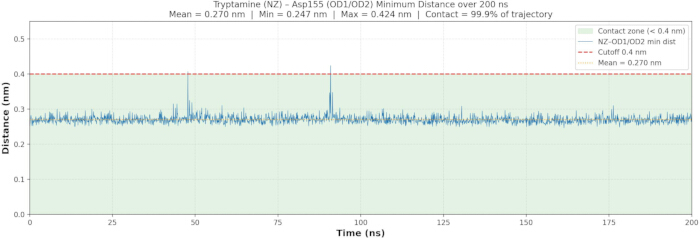
איור 16עמידות האינטראקציה היונית בין הטרפטאמין ל-Asp15 (D3.32) לאורך מסלול התנועה בממברנה של 200 ננו-שניות (ns). המרחק המינימלי בין חנקן האמוניום של הטרפטאמין לבין אטומי החמצן של הקרבוקסילאט ב-Asp15 מוצג כפונקציה של הזמן; הקו המקווקו מסמן את סף המגע של גשר המלח (salt-bridge) ב-0.4 ננומטר. המגע נשמר במשך 99.9% מהסימולציה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| סמל הגן | מטבוליט(ים) מקור | קטגוריה תפקודית | log2FC | FDR (adj. P-value) | רמת מובהקות |
| GCG | Propionate | חלבון הקשור להורמון פפטידי | −1.342 | 1.97e−7 | FDR <0.01 & |logFC > 1 |
| HDAC3 | Butyrate | אנזים | −1.234 | 2.4e−6 | FDR <0.01 & |logFC| > 1 |
| CASP3 | Urolithin A | אנזים | −1.198 | 6.6e−7 | FDR <0.01 & |logFC| > 1 |
| GPR68 | Propionate | קולטן ממбраנה | −1.137 | 4.35e−6 | FDR <0.01 & |logFC| > 1 |
| GNAQ | Propionate | חלבון שסמנל תוך-תאי | −1.12 | 1.05e−6 | FDR <0.01 & |logFC| > 1 |
| GPHN | Propionate | חלבון תוך-תאי אחר | −1.109 | 1.13e−6 | FDR <0.01 & |logFC| > 1 |
| TBXA2R | Propionate | קולטן ממбраנה | −1.104 | 4.04e−7 | FDR <0.01 & |logFC| > 1 |
| HTR6 | Tryptamine | קולטן ממברנה | −0.967 | 2.17e−5 | FDR <0.01 |
| VDR | Lithocholic acid | קולטן גרעיני | −0.942 | 5.73e−7 | FDR <0.01 |
| HTR2A | Tryptamine | קולטן ממברנה | −0.937 | 4.9e−6 | FDR <0.01 |
| FFAR2 | Propionate | קולטן ממברנה | −0.89 | 1.4e−4 | FDR <0.01 |
| NR1H4 | Lithocholic acid / Ursodeoxycholic acid | קולטן גרעיני | −0.861 | 3.68e−6 | FDR <0.01 |
| HTR2B | Tryptamine | קולטן ממברנה | −0.702 | 1.29e−4 | FDR <0.01 |
| MLN | Propionate | חלבון הקשור להורמון פפטידי | −0.605 | 7.39e−5 | FDR <0.01 |
| KYAT1 | Indole-3-lactic acid / Indole-3-propionic acid | אנזים | −0.530 | 3.61e−4 | FDR <0.01 |
| CASR | Propionate | קולטן ממברנה | −0.483 | 4.05e−4 | FDR <0.01 |
| HTR1B | Tryptamine | קולטן ממברנה | −0.45 | 3.18e−2 | FDR <0.05 |
טבלה 1: גנים מטרה חזויים הקשורים למטבוליטים החופפים לגנים בעלי ביטוי שונה במערך הנתונים של רירית הרקטום ב-IBS-C. כל הגנים החופפים המפורטים היו בעלי ביטוי מופחת (downregulated). טבלה 1 מוגשת בנפרד כטבלת גיליון אלקטרוני ומפרטת, עבור כל מטרה, את המטבוליט(ים) ממנו הם נובעים, קטגוריה תפקודית, מקור חיזוי המטרה (חיזוי מטרה של אינטראקציה כימית-חלבון, תוכנית עגינה מולקולרית (molecular docking), או שניהם), ציון אינטראקציה משולב של חיזוי מטרה של אינטראקציה כימית-חלבון, והסתברות תוכנית העגינה המולקולרית, ובמידה וזמינים, את רמת החיזוי (prediction tier), את ה-log2 fold change, ואת ה-FDR עם רמת המובהקות של הביטוי. מקור: ערכי ביטוי הגנים התקבלו מטבלת הביטוי הדיפרנציאלי GSE36701 המכווצת לרמת הגן (הגשוש בעל ה-FDR הנמוך ביותר לכל גן). מקור חיזוי המטרה וערכי הביטחון נאספו מפלט של חיזוי מטרה של אינטראקציה כימית-חלבון ותוכנית עגינה מולקולרית, תוך שימוש בסף של ציון אינטראקציה משולב של חיזוי מטרה של אינטראקציה כימית-חלבון ≥ 0.70 והסתברות תוכנית עגינה מולקולרית ≥ 0.70. ציוני חיזוי מטרה של אינטראקציה כימית-חלבון הם ציונים משולבים בסולם של 0–1; STP מציין הסתברות של תוכנית עגינה מולקולרית. Tier 1 = תמיכה מחמירה של חיזוי מטרה של אינטראקציה כימית-חלבון; Tier 1+ = תמיכה מחמירה של חיזוי מטרה של אינטראקציה כימית-חלבון הנתמכת באופן הצלבי על ידי תוכנית עגינה מולקולרית.
| מורכב | חלבון (מזהה PDB) | ליגנד | מדד וינה (kcal/mol) | גודל חל (A^3) | מרכז הרשת X,Y,Z (A) | תיבת חיפוש (A) |
| LCA-VDR | VDR (1DB1) | חומצה ליתוכולית | −10.0 | 2055 | 10, 19, 33 | 25 x 25 x 25 |
| LCA-NR1H4/FXR | NR1H4/FXR (3DCT) | חומצה ליתוכולית | −9.9 | 3395 | 137, 31, 78 | 25 x 25 x 25 |
| UDCA-NR1H4/FXR | NR1H4/FXR (3DCT) | חומצה אורסודאוקסיכולית | −9.4 | 3395 | 137, 31, 78 | 25 x 25 x 25 |
| Urolithin A-CASP3 | CASP3 (2DKO) | יוrolיתין A | −7.1 | 233 | 37, 34, 32 | 25 x 25 x 25 |
| טריפטאמין-HTR2A | HTR2A (6A93) | טריפטאמין | −7.1 | 3238 | 12, −1, 61 | 25 x 25 x 25 |
טבלה 2: תוצאות עגינה מולקולרית: ציוני העגינה המולקולרית המובילים של ליגנדים מטבוליים לחלבונים מטרה ופרמטרי חלל עבור חמשת קומפלקסי החלבון-ליגנד בעדיפות גבוהה. גודל החל מדווח ב-Å3. מקור: Docking_Validation/Results/Docking_Validation_Results.xlsx, גיליון 'Original_Docking_Scores'. עגינה מולקולרית של ליגנדים מטבוליים לחלבונים מטרה; exhaustiveness = 8, seed = 42 (קבוע), num_modes = 9 לכל הקומפלקסים; התצורה המדורגת בראש הרשימה (mode 1) היא זו שדווחה.
| סוג האינטראקציה | שאריות | מרחק (A) | הערות |
| קשר מימן קונבנציונלי | Ser278 | 4.29 | חמצן הקרבוקסילאט של LCA |
| מגע הידרופובי / Pi-Alkyl | Leu230, Val234, Trp286, Val30, His305, Tyr295, Leu23, His397 | - | |
| מגע ואן-דר-ואלס | Met272, Leu313, Ile271, Ile268, Leu309, Phe42, Val418, Ala231, Ala303, Cys28, Ser275, Phe150 | - |
טבלה 3: מצבי קישור שנוצרו עבור עגינה (docking) של חומצה ליתוכולית עם VDR (PDB ID: 1DB1).מקור: כלי ויזואליזציה מולקולרית וכלי לדיאגרמות אינטראקציה דו-מדיות, דיאגרמות אינטראקציה דו-ממדיות בין ליגנד לשארית, כפי שדווח בתוצאות כתב היד (עגינה מולקולרית). '-' מציין כי ערך המרחק לא דווח באופן פרטני עבור מגע זה.
| סוג אינטראקציה | שאריות | מרחק (A) | הערות |
| קשר מימני | His294 | - | |
| קשר מימני | Ile35 | - | |
| אינטראקציית פאי-סיגמא (Pi-Sigma interaction) | His294 | - | |
| אלקיל / פאי-אלקיל (הידרופובי) | Met290, Met328, Ala291, Leu287, Ile352, His47 | - | |
| מגע ואן דר ואלס | שאריות כיס נוספות (שלא פירטו אותן באופן פרטני במקור) | - | תומך בהתאמת שלד סטרואידי |
טבלה 4: מצבי קישור שנוצרו עבור עגינה (docking) של חומצה ליטוכולית עם NR1H4/FXR (PDB ID: 3DCT).
מקור: כלי להדמיה מולקולרית ולשרטוט תרשימי אינטראקציה דו-מדיים, תרשימי אינטראקציה דו-מדיים בין ליגנד לשארית, כפי שדווח בסעיף התוצאות (סימולציית עגינה מולקולרית - Molecular docking) במאמר. הסימן '-' מעיד כי לא דווח ערך מרחק ספציפי לאותו מגע.
| סוג אינטראקציה | שאריות | מרחק (A) | הערות |
| קשר מימן קונבנציונלי | His47 | 3.66 | |
| קשר מימני | Gly32 | 3.46 | |
| אינטראקציית פאי-אניון (Pi-Anion interaction) | Val325 | 4.96 | |
| קשר פחמן-מימן | Trp469 | 4.51 | |
| מגע לא מועדף בין תורם לתורם | Arg395 | 3.89 | |
| מגע בלתי מועדף בין תורמים | Gln396 | 3.40 |
טבלה 5: מצבי קישור שהופקו עבור עגינה (docking) של חומצה אורסודאוקסיכולית עם NR1H4/FXR (מזהה PDB: 3DCT). מקור: כלי ויזואליזציה מולקולרית וכלי לדיאגרמות אינטראקציה דו-מדיות, דיאגרמות אינטראקציה דו-ממדיות בין ליגנד לשאריות, כפי שדווח בסעיף התוצאות של כתב היד (עגינה מולקולרית). '-' מציין כי ערך מרחק לא דווח באופן 개별 עבור מגע זה.
| סוג האינטראקציה | שאריות (Residues) | מרחק (A) | הערות |
| קשר מימן קונבנציונלי | Gln161 | 3.78 | |
| קשר מימן קונבנציונלי | Gln161 | 4.19 | מגע שני |
| קשר מימן קונבנציונלי | Ser120 | 3.95 | |
| קשר מימן קונבנציונלי | Arg207 | 3.05 | |
| קשר מימן קונבנציונלי | Arg207 | 3.7 | מגע שני |
| אינטראקציית Pi-Cation | Arg207 | - | |
| קשר מימן Pi-Donor | Cys163 | - | |
| מגע Pi-Alkyl / van der Waals | Arg64, Ala162, His121, Ser205, Trp206 | - |
טבלה 6: מצבי קישור שנוצרו עבור עגינה (docking) של urolithin A עם CASP3 (PDB ID: 2DKO).מקור: כלי לוויזואליזציה מולקולרית וכלי לדיאגרמות אינטראקציה דו-מדיות, דיאגרמות אינטראקציה דו-מדיות בין ליגנד לשאריות, כפי שדווח בתוצאות כתב היד (עגינה מולקולרית). '-' מציין כי ערך המרחק לא דווח באופן פרטני עבור מגע זה.
| סוג האינטראקציה | שארית/ים | מרחק (A) | הערות |
| גשר מלח אלקטרוסטטי | Asp15 (D3.32) | - | האמין הפרוטוני של טריפטאמין |
| קשר מימני | Thr160 | - | |
| קשר מימני | Ser159 | - | |
| מגע ארומטי | Phe340, Trp336 | - | |
| אינטראקציית פי-אלקיל (Pi-Alkyl interaction) | Val156, Ile163 | - | |
| מגע ואן דה ቫלס | Tyr370, Phe39, Ser242, Phe243, Phe32, Leu123 | - |
טבלה 7: מצבי קישור שנוצרו עבור עגינה (docking) של טריפטאמין עם HTR2A (PDB ID: 6A93). מקור: כלי ויזואליזציה מולקולרית וכלי לדיאגרמות אינטראקציה דו-מדיות, דיאגרמות אינטראקציה דו-מדיות בין ליגנד לשאריות, כפי שדווח בתוצאות כתב היד (עגינה מולקולרית). '-' מציין שערך המרחק לא דווח באופן פרטני עבור מגע זה.
| (A) תיקוף Redocking (ביקורות חיוביות) | ||||||
| מזהה PDB | חלבון | ליגנד קו-קריסטלי | ציון Vina (kcal/mol) | RMSD (A) | סף (A) | תוצאה |
| 1DB1 | VDR | VDX (אנלוג של ויטמין D) | −13.0 | 0.87 | 2.0 | עבר |
| 3DCT | FXR | WAY-362450 (064) | −1.9 | 1.79 | 2.0 | עבר |
| (B) תיקוף Cross-docking (ביקורות שליליות) | ||||||
| ליגנד | מטרה קוגנאטית (PDB) | ציון קוגנאטי (kcal/mol) | מטרה לא-קוגנאטית (PDB) | ציון לא-קוגנאטי (kcal/mol) | דלתא (kcal/mol) | סלקטיביות |
| חומצה ליתוכולית | VDR (1DB1) | −10.0 | CASP3 (2DKO) | −8.3 | 1.7 | מאושר |
| טריפטאמין | HTR2A (6A93) | −7.1 | VDR (1DB1) | −6.4 | 0.7 | צנועה (במסגרת אי-הוודאות של Vina +/−0.5–1.0) |
טבלה 8: תוצאות תיקוף פרוטוקול העגינה: ערכי RMSD של עיגון חוזר (ביקרות חיוביות) וציוני עיגון צולב (ביקרות שליליות).מקור: Docking_Validation/Results/Docking_Validation_Results.xlsx ו-Docking_Validation/Logs/*.log (עגינה מולקולרית של ליגנדים מטבוליים לחלבונים מטרה, exhaustiveness = 8, seed = 42, תיבה של 25 Å × 25 Å × 25 Å). RMSD חושב באמצעות התאמת שמות אטומים של אטומים כבדים (ללא סופרפוזיציה).
| קומפלקס | RMSD (nm), ממוצע + / –SD (טווח) | Rg (nm), ממוצע + / – SD (טווח) | SASA (nm^2), ממוצע + / – SD (טווח) | קשרי מימן, ממוצע + / –SD (טווח) | RMSF (nm), ממוצע (מקסימום) |
| LCA-VDR/1DB1 | 0.230 + / – 0.025 (0.167–0.296) | 1.89 + / − 0.09 (1.863–1.919) | 130.4 + / − 2.3 (12.3–137.4) | 1.9 + / − 0.9 (0–7) | 0.093 (מקסימום 0.60 בשארית 120) |
| LCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.824 + / − 0.008 (1.804–1.849) | 129.7 + / − 2.3 (121.9–138.1) | 3.8 + / − 0.7 (1–6) | 0.13 (מקסימום 0.298) |
| UDCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.834 + / − 0.013 (1.809–1.921) | 131.0 + / −3.4 (121.6–143.5) | 1.1 + / − 1.1 (0–5) | 0.13 (מקסימום 0.298) |
| Urolithin A-CASP3/2DKO | 0.521 + / – 0.058 (0.24–0.75) | 1.892 + / − 0.024 (1.839–1.984) | 134.9 + / − 3.0 (126.4–146.4) | 0.6 + / − 0.7 (0–3) | 1.172 (מקסימום 2.532 בשארית 175) |
| Tryptamine-HTR2A/6A93 (ממברנה) | 0.17 + / –0.017 (0.131–0.27) | 2.089 + / − 0.07 (2.070–2.116) | 165.1 + / − 2.7 (156.–172.7) | 1.7 + / − 0.7 (0–4) | 0.090 (מקסימום 0.319) |
טבלה 9: סיכום התנהגות סימולציית דינמיקה מולקולרית של 20 ns עבור חמשת קומפלקסי הפרוטאין-ליגנד בעדיפות גבוהה, כולל מערכת tryptamine-HTR2A המוטמעת בממברנה.מקור: קבצי כלי ניתוח מסלול דינמיקה מולקולרית (.xvg) — gmx rms, gmx gyrate, gmx sasa, gmx hbond, gmx rmsf — שחושבו עבור 150 ns הסופיות (50–20 ns) של כל הרצת ייצור של 20 ns, לפי שלב 8.8 בפרוטוקול. RMSD/Rg מותאמים לשלד (backbone-fitted); רדיוס גש SASA הוא 0.14 nm; חיתוך תורם-מקבל של קשרי H-bond הוא 0.35 nm / 30 °. LCA-3DCT ו-UDCA-3DCT חולקים מסלול שלד פרוטאין אחד (RMSD, RMSF) עם Rg/SASA/H-bonds ספציפיים לליגנד.
| Tryptamine-HTR2A/6A93 (ממברנה) — פירוק כמותי לכל שארית | ||
| שארית | תרומה כוללת של ddG (kcal/mol), ממוצע + / − SD | כיוון |
| Asp15 (D3.32) | −89.94 + / − 6.81 | מייצב (דומיננטי) |
| Tryptamine (ליגנד) | −13.01 + / − 6.2 | מייצב |
| Tyr171 | 13.62 + / − 4.54 | מער |
| Val167 | 23.32 + / − 3.96 | מער |
| Val156 | 20.03 + / − 3.81 | מער |
| Thr160 | 4.86 + / − 3.64 | מער |
| Ser159 | 24.16 + / − 3.48 | מער |
| Ser86 | 24.48 + / − 3.65 | מער |
| Phe87 | 35.18 + / − 4.04 | מער |
| Phe13 | 32.80 + / −3.70 | מער |
| Phe140 | 30.63 + / − 3.84 | מערער |
| Phe141 | 35.25 + / − 3.5 | מער |
| Ile163 | 27.64 + / − 3.71 | מער |
| Trp137 | 53.7 + / − 4.32 | מער (הבלתי נוח ביותר) |
| ארבעת הקומפלקסים האחרים — שאריות שזוהו בפירוק לכל שארית (איכותני) | ||
| קומפלקס | שארית | כיוון |
| LCA-VDR/1DB1 | ליגנד (LCA) | נוח |
| LCA-VDR/1DB1 | Gln317 | נוח |
| LCA-VDR/1DB1 | Trp286 | בלתי נוח |
| LCA-NR1H4/FXR/3DCT | Arg31 | נוח (דומיננטי) |
| UDCA-NR1H4/FXR/3DCT | Glu326 | רשת מעורבת/מבוזרת |
| UDCA-NR1H4/FXR/3DCT | Asp394 | רשת מעורבת/מבוזרת |
| UDCA-NR1H4/FXR/3DCT | Arg395 | רשת מעורבת/מבוזרת |
| UDCA-NR1H4/FXR/3DCT | Arg41 | רשת מעורבת/מבוזרת |
| UDCA-NR1H4/FXR/3DCT | Asp470 | רשת מעורבת/מבוזרת |
| Urolithin A-CASP3/2DKO | Arg64 | נוח מאוד (פולרי/אלקטרוסטטי) |
| Urolithin A-CASP3/2DKO | Arg207 | נוח מאוד (פולרי/אלקטרוסטטי) |
טבלה 10: פירוק MM-PBSA לפי שארית. תקציר קצר: שאריות מייצבות ומערערות (תרומה מוחלטת של ≥ 0.5 kcal mol⁻1) עבור כל אחד מחמשת קומפלקסי חלבון-ליגנד שקיבלו עדיפות, כולל מערכת tryptamine-HTR2A המוטמעת בממברנה.מקור: Membrane Simulation/03_MMPBSA/results/FINAL_DECOMP_MMPBSA.dat (כלי לחישוב אנרגיית קשירה של מכניקה מולקולרית/ממס רציף, פירוק Generalized Born (GB) לפי שארית, 'Complex: Total Energy Decomposition'). מספרי השאריות הומרו מהמספור הפנימי של המערכת שנבנתה ב-CHARMM-GUI (היסט של +68) למספור המקורי של 6A93 PDB המשמש במקומות אחרים בכתב יד זה.
מקור: נתוני סימולציית MD קודמים/1DB1,2KD0, LCA & UDCA_3DCT}/mmpbsa_*/Decomposition_NORMAL_GB_Complex_TDC*.svg ותוצאות כתב היד (אנרגיית קישור חופשית בשיטת MM-PBSA ופירוק לפי שאריות). לארבעה קומפלקסים אלה אין פלט מספרי של קבצי .dat/.csv לפי שארית בספריית הפרויקט (רק תרשימי SVG מרונדרים עם טקסט בנתיב וקטורי שאינו ניתן לחילוץ ממוחשב); רק זהות השארית וכיוון מיטב/שאינו מיטב, כפי שצוין בטקסט של כתב היד, מדווחים. תרומות מדויקות ב-kcal/mol עבור ארבעה קומפלקסים אלה אינן זמינות במאגר המקור.
דיון
מחקר חישובי גשש זה מדגים תהליך עבודה (workflow) משולב וניתן לשחזור לתעדוף גנים של המארח הקשורים למטבוליטים מיקרוביאליים ומכלולי חלבון-ליגנד, אשר יושם כאן על מערך נתונים טרנסקריפטומי של רירית הרקטום מחולים עם IBS-C ממאגר נתונים ציבורי. באמצעות תהליך עבודה זה, תת-קבוצה של גנים שנחזו כקשורים למטבוליטים מיקרוביאליים חפפה לגנים שהיו במצב של ביטוי מופחת (downregulated) באופן עקבי במערך הנתונים, והם התקבצו בתוך מסלולים של GPCR, מערכות סרוטונירגית, איתות סידן, ליגנד-רספטור נוירו-אקטיבי ורספטורים גרעיניים, מערכות המעורבות יותר ויותר בתקשורת בין המיקרוביוטה למארח48,49. ממצאים אלה יש לפרש אך ורק כיוצרי היפותזות: הניתוח אינו מודד ריכוזי מטבוליטים מיקרוביאליים, שפע של חלבוני רספטור, קישור ליגנדים, הפעלת רספטורים, איתות במורד המסלול, מוטיליות, הפרשה, תגובות כאב או תוצאים קליניים. המסקנה החזקה והנתמכת ביותר היא שהגנים והמסלולים שזוהו הם מועמדים לאישור ניסויי ולא מנגנוני מחלה מאושרים.
החשיבות הקריטית של פרוטוקול זה, ביחס לעבודות קודמות שבחנו זוגות בודדים של מטבוליט-רצפטור בבידוד, טמונה בשילוב של חיזוי מטרות, טרנסקריפטומיקה ציבורית, ניתוח רשתות, עגינה (docking) עם בקרות תיקוף, דינמיקה מולקולרית ו-MM-PBSA לכדי צינור סדרה (pipeline) אחד לתעדוף. כל שלב מצמצם ומספק הקשר לקבוצת המועמדים שהופקה בשלב הקודם, והסינון הסדרתי הוא זה שהופך את רשימת המועמדים הסופית לניתנת לבדיקה ניסיונית. מודול ה-GPCR הממוקד ב-GNAQ והמודול הקשור לרצפטור הסרוטונין שזוהו כאן הם סבירים מבחינה ביולוגית, בהתחשב בתפקידו של שגשוג Gq בהפעלה של phospholipase C, ייצור של inositol 1,4,5-trisphosphate, גיוס סידן, הפרשה ותפקוד אנטרואנדוקריני, ובשל התפקידים המוכרים של איתות המבוסס על חומצות שומן קצרות שרשרת ועל טריפטופן בהומאוסטזיס של הרקמה הרירית, ושל איתות סרוטונירגי בניידות מערכת העיכול, בהפרשה, ברגישות ויסצרלית ובתקשורת בין המעי למוח10,18,50,51.
מאפיין מתודולוגי מרכזי של מחקר זה הוא הטיפול ברצפטור HTR2A המשובץ בממברנה. מכיוון שסימולציה בשלב מומס אינה יכולה לשחזר את סביבת הליפידים השולטת בהתנהגות הקונפורמציונית של רצפטור המצומד לחלבון G, קומפלקס tryptamine-HTR2A סומולץ בשכבה כפולה מפורשת של POPC. בסביבת ממברנה זו, הרצפטור נשאר יציב מבנית לאורך כל מסלול הסימולציה של 200 ns, וגשר המלח בין קבוצת האמוניום של ה-tryptamine ל-Asp155 (D3.32) נשמר למעשה לאורך כל הסימולציה. העובדה ששלוש הוכחות בלתי תלויות – תנוחת העגינה (docking pose), מרחק המגע העקבי לאורך המסלול, והתרומה הדומיננטית של כל שארית בחישוב MM-PBSA – מתכנסות לאותה אינטראקציה שמורה עם D3.32, מעניקה עקביות פנימית למודל קישור ה-tryptamine שנחזה, המשחזר את גיאומטריית הקישור הקנונית של ליגנדים אמינרגיים ברצפטורים של סרוטונין.
ישנם מספר שיקולים מתודולוגיים שיש להביא בחשבון בעת שחזור תהליך עבודה זה. שגיאות במבנה הקנוני או תרכובות המסומנות כ-Pan-assay interference compounds ((PAINS)) מופצות דרך חיזוי מטרות ועגינה (docking), מה שדורש בחירה מדויקת של מטבוליטים ואוצרות כימואינפורמטית. יש לצמצם סטים של מטרות המונעות על ידי רעש באמצעות החלה עקבית של קריטריוני הביטחון (חיזוי מטרות של אינטראקציית כימיקל-חלבון: ≥0.700; תוכנת עגינה מולקולרית: ≥0.70; בניית רשת אינטראקציית חלבון-חלבון והעשרה של מסלולים: ≥0.700). יש לקבץ את המטרות החזויות לפי קטגוריה תפקודית כדי למנוע אפיון שגוי של כל הגנים הקשורים למטבוליטים כרצפטורים. עיבוד מקדים מדויק של מבני PDB, מינימום אנרגיה של ליגנדים ומיקום רשת (grid) סביב שאריות קשירה ידועות הם היבטים חיוניים של העגינה, ובקרות ה-redocking וה-cross-docking המוצגות כאן מספקות מדד אובייקטיבי לנכונותה של מתודולוגיית העגינה. מעטפת השחזור בדינמיקה מולקולרית מוגדרת על ידי שילוב של פרמטריזציה של שדה כוחות (force-field), סולבציה תקינה או בניית ממברנה, שיווי משקל מדורג ודגימת ייצור נאותה.
התאמות טיפוסיות וצעדי פתרון בעיות כוללים הקלה בספי thresholds אם החיזוי של המטרה אינו מחזיר תוצאות, בדיקת העקביות הכיוונית ברמת הפרובה עבור גנים עם מספר פרובות, ופירוש של קשרי רשת בודדים בבניית רשת אינטראקציית חלבון-חלבון וצמתים של העשרה מסלולית ככאלה התלויים ב-threshold ולא כבלתי רלוונטיים ביולוגית. עבור רצפטורים של ממברנה, יש להשתמש בסימולציית שכבה דו-שומנית (lipid bilayer) מפורשת במקום בסימולציית תמיסות מימיות, כפי שמוסבר כאן בשיטת HTR2A. במקרים שבהם נדרש פירוק אנרגיה לכל שארית (per-residue energy decomposition), יש לבצע את החישוב באמצעות מנוע המסוגל לבצע פירוק, ויש להתאים את מספור השאריות המדווח למספור הרצפטור המקורי כדי למנוע דו-משמעות. אנו מציעים כי תוצאות של העשרה מסלולית יטופלו בצורה הטובה ביותר כהקשר ארגוני עבור רשימת המועמדים, ולא כתיקוף ברמת המסלול. מבחינה מכנית, העשרה של מונחי GPCR, serotonergic או איתות סידן תקרה בכל פעם שרשימת הגנים תכיל מספר גנים של רצפטור סרוטונין, ללא קשר לוויסות משותף (co-regulation) ברמת החלבון. יש לפרש את ערכי RMSD, Rg ו-RMSF עבור מערכת HTR2A המוטמעת בממברנה תוך התחשבויות בשכבה הדו-שומנית: ירידה ב-Rg במסלול (trajectory) המאוחר עשויה לשקף התאמה קונפורמציונית של צרור הטרנס-ממברנלי המונעת על ידי השכבה הדו-שומנית ולא פריסה גלובלית, ויש לפרש קשרי מימן עמידים בין הליגנד לחלבון יחד עם יציבות ה-RMSD הכללית.
המגבלות של מחקר זה הן משמעותיות ומגבילות את הפרשנות. המחקר התבסס על מערך נתונים ציבורי אחד קטן יחסית, וחיפוש במאגרי התמלול הציבוריים המרכזיים (כלי ניתוח ביטוי גנים דיפרנציאלי מבוסס רשת ו-ArrayExpress) לא זיהה מערך נתונים עצמאי של תמלול רירית רקטום של IBS-C בעל עיצוב ופלטפורמה דומים שיכול היה לשמש כקבוצת שכפול במועד הניתוח. היעדר שכפול תמלול עצמאי הוא מגבלה מרכזית, ואין לפרש කිසි מההצהרות בכתב יד זה כתיקוף חיצוני של הממצאים ממערך הנתונים הבודד. מערך הנתונים מראה ביטוי דיפרנציאלי כמעט אוניברסלי (כ-94.5% מהגנים הם מובהקים, כאשר רובם המכריע הם בעלי ביטוי מופחת), תכונה ההופכת סטטיסטיקות העשרה קונבנציונליות לבלתי אינפורמטיביות ומונעת מסקנות לגבי הספציפיות של הפחתת הביטוי של גני מטרה ביחס לרקע הגנומי; לפיכך, החפיפה מדווחת כדפוס כיווני תיאורי ולא כהעשרה סטטיסטית. תמלול רירית מסוג Bulk אינו יכול להבחין בין ויסות גנים ממשי לבין שינויים בהרכב התאים. ביטוי mRNA אינו קובע את שפע החלבון או את התגובה התפקודית. מאגרי נתונים לחיזוי מטרות סובלים מהטיית אנוטציה, ותוצאות של docking, MD ו-MM-PBSA תלויות בבחירת השדה של הכוח (force field), פרמטריזציה של הליגנד, נקודת ההתחלה, זמן הסימולציה ומספיקות הדגימה. מזהי גרסה/בנייה מדויקים עבור חלק מרכיבי שרתי הרשת והחבילות, כולל שירות פרמטריזציה של ליגנדים תואם CHARMM, CHARMM-GUI וסביבת מחשוב סטטיסטי
גרסאות החבילות (package builds) והגרסאות המשניות של כלי חישוב אנרגיית הקשירה בשיטת המכניקה מולקולרית/ממס solvent-continuum לא היו ניתנות לשחזור מלא מרשומות הפרויקט שנשמרו, ויש לדווח עליהן כזמינות בטבלת החומרים הנפרדת. ערכי MM-PBSA הם הערכות יחסיות, אינם כוללים איבר מפורש של אנטרופיה קונפיגורציונית, ואין לפרשם כאפיניות ניסויית. המחקר חסר נתונים מטבוליים ואינו יכול לקבוע האם הזמינות של ליגנדים משתנה ב-IBS-C, או האם השינויים שנצפו בביטוי הם סיבות, תוצאות, תגובות פיצוי או קורלציות חסרות רלוונטיות.
יישומים עתידיים של שיטה זו צריכים לכלול שחזור טרנסקריפטומי עצמאי, תגובת שרשרת פולימראז כמותית (qPCR) ותיקוף ברמת החלבון, מיקום סוגי תאים באמצעות טרנסקריפטומיקה של תא בודד או טרנסקריפטומיקה מרחבית, פרופיל מטבולומי של מחלקות המטבוליטים הרלוונטיות, ובדיקות תגובה פונקציונליות לליגנדים בקולונידים המופקים מחולים, תרביות של רקמת רירית (explants) או מודלים דומים. השוואות עם קבוצות של IBS עם דומיננטיות לשלשול, IBS מעורב, מחלות מעי דלקתיות ועצירות שאינה קשורה ל-IBS1,2 יעזרו בביסוס הספציפיות למחלה. עבור הרכיב המבני, שחזור מסלולי MD, ביצוע אנליזות רגישות עם תנוחות התחלה חלופיות, ותיעוד מלא של הפקדת הטופולוגיה, המסלולים וקבצי הקלט והפלט של MM-PBSA יחזקו עוד יותר את השחזוריות. בדיקות תגובה ניסיוניות לליגנדים נותרות הכרחיות כדי לקבוע האם הקומפלקסים שקיבלו עדיפות הם רלוונטיים מבחינה פונקציונלית; התוצאות הנוכחיות אינן תומכות בטענות קליניות או טיפוליות.
גילויים
המחבר מצהיר כי אין לו ניגודי עניינים.
תודות
לא התקבל מימון חיצוני למחקר זה. אנו מודים על הזמינות הציבורית של מערך הנתונים GSE36701 ושל המשאבים STITCH, SwissTargetPrediction, SwissADME, STRING, RCSB Protein Data Bank, Gene Expression Omnibus, CHARMM-GUI, ו-Orientations of Proteins in Membranes (OPM), כמו גם על התוכנות AutoDock Vina, GROMACS, CHARMM36m, CGenFF, gmx_MMPBSA, Open Babel, PyMOL, ו-Discovery Studio Visualizer.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| AutoDock Vina | Scripps Research / קוד פתוח | v1.2.7; https://vina.scripps.edu/ | עגינה מולקולרית (Molecular docking) של ליגנדים מטבוליים לחלבונים מטרה. |
| CGenFF/ParamChem | SilcsBio / אוניברסיטת מרילנד | v4.6; https://cgenff.com/ | פרמטריזציה של שדה כוחות לליגנדים עבור דינמיקה מולקולרית. |
| CHARMM36m force field | מפתחי CHARMM / קוד פתוח | CHARMM36m; https://www.charmm.org/charmm/resources/charmm-force-fields/ | שדה כוחות לחלבונים המשמש לסימולציות של דינמיקה מולקולרית. |
| CHARMM-GUI Membrane Builder | CHARMM-GUI / אוניברסיטת ליהיי | שרת רשת; גרסה מדויקת אינה ניתנת לשחזור; https://www.charmm-gui.org/?doc=input/membrane | בנייה והגדרת שיווי משקל של מערכת ממברנת POPC מפורשת. |
| Discovery Studio Visualizer | BIOVIA (Dassault Systèmes) | 2021; https://discover.3ds.com/discovery-studio-visualizer-download | ניתוח דו-ממדי של אינטראקציות בין ליגנד לשאריות חלבון. |
| GEO2R | NCBI Gene Expression Omnibus | כלי רשת; נגיש בינואר-מאי 2026; https://www.ncbi.nlm.nih.gov/geo/geo2r/ | ניתוח ביטוי דיפרנציאלי של GSE36701. |
| GeneCards | מכון ויצמן למדע | מאגר נתונים ברשת; נגיש בינואר-מאי 2026; https://www.genecards.org/ | אימות סמלי גנים ומידע על גנים במהלך סטנדרטיזציה של מטרות. |
| gmx_MMPBSA | קוד פתוח (Valdés-Tresanco et al.) | 1.5.x; https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | הערכת אנרגיית קשירה חופשית בשיטת MM-PBSA ופירוק לפי שארית. |
| GROMACS | צוות פיתוח GROMACS / קוד פתוח | 2024.2; https://www.gromacs.org/ | מנוע לסימולציית דינמיקה מולקולרית. |
| GSE36701 transcriptomic dataset | NCBI Gene Expression Omnibus | GSE36701; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE36701 | מאגר נתוני ביטוי ציבורי של רירית רקטום IBS-C. |
| Open Babel | קוד פתוח | 3.2.0; https://openbabel.org/ | המרה של פורמטים של קבצים כימיים, יצירת ליגנדים תלת-ממדיים והכנת ליגנדים. |
| OPM database | אוניברסיטת מישיגן | מאגר נתונים ברשת; נגיש בינואר-מאי 2026; https://opm.phar.umich.edu/ | קואורדינטות של Orientation of Proteins in Membranes המשמשות ליישור של HTR2A. |
| ParmEd | מפתחי ParmEd / קוד פתוח | 4.x; https://parmed.github.io/ParmEd/html/index.html | חלוקה מחדש של מסת מימן ועיבוד טופולוגיה לסימולציה מולקולרית. |
| PyMOL | Schrödinger / קוד פתוח | 2.x; https://www.pymol.org/ | ויזואליזציה מבנית תלת-ממדית ואיורי רספטור-ליגנד. |
| RCSB Protein Data Bank | RCSB PDB | מאגר נתונים ברשת; נגיש בינואר-מאי 2026; https://www.rcsb.org/ | מקור למבני חלבונים ניסיוניים וקואורדינטות PDB. |
| STITCH | קונסורציום STITCH (EMBL) | v5.0; https://stitch.embl.de/ | חיזוי מטרות לאינטראקציות כימי-חלבוניות. |
| STRING | קונסורציום STRING / ELIXIR | v12.0; https://version-12-0.string-db.org/ | בניית רשת אינטראקציות חלבון-חלבון והעשרה של נתיבים. |
| SwissADME | SIB Swiss Institute of Bioinformatics / אוניברסיטת לוזאן | כלי רשת; נגיש בינואר-מאי 2026; https://www.swissadme.ch/ | דסקריפטורים כימואינפורמטיים, תחזיות פרמקוקינטיות והערכת PAINS. |
| SwissTargetPrediction | SIB Swiss Institute of Bioinformatics / אוניברסיטת לוזאן | כלי רשת; נגיש בינואר-מאי 2026; https://www.swisstargetprediction.ch/ | חיזוי מטרות חלבון אנושי המבוסס על ליגנדים. |
| UniProt ID Mapping | קונסורציום UniProt | שירות רשת; נגיש בינואר-מאי 2026; https://www.uniprot.org/id-mapping | מיפוי מזהי חלבונים לסמלי גנים סטנדרטיים מאושרים על ידי HGNC. |
| NVIDIA RTX 3080 | NVIDIA Corporation | RTX 3080; ≥8 GB VRAM; גרסת CUDA/דרייבר לא צוינה במאמר | מעבד גרפי תומך CUDA ששימש לסימולציות של דינמיקה מולקולרית. |
| CUDA-compatible GPU | NVIDIA Corporation | גרסת CUDA toolkit לא צוינה במאמר; ≥8 GB VRAM | GPU תומך CUDA עם ≥8 GB VRAM; תחנת העבודה דרשה גם ≥32 GB RAM ומעבד בעל 6 ליבות. |
| Ubuntu Linux | Canonical Ltd. / קוד פתוח | 22.04 LTS | מערכת הפעלה לינוקס 64 סיביות. |
| Python 3.9 | Python Software Foundation | 3.9 | סביבת תכנות למטרות כלליות ששימשה לכתיבת סקריפטים של זרימת עבודה וניתוח. |
| Gene Expression Omnibus (GEO) | NCBI / הספרייה הלאומית לרפואה של ארה"ב | מאגר רשת ציבורי; גרסת תוכנה לא צוינה במאמר | מאגר נתוני גנומיקה פונקציונלית ציבורי. |
| AutoDockTools/MGLTools | מעבדה לגרפיקה מולקולרית, Scripps Research | 1.5.7 | ערכת כלים להכנת מבנה מולקולרי וקלט לעגינה. |
| GROMACS analysis tools | צוות פיתוח GROMACS / קוד פתוח | 2024.2 | כלי עזר לניתוח מסלולי דינמיקה מולקולרית. |
| CHARMM-GUI six-step protocol | CHARMM-GUI / אוניברסיטת ליהיי | פרוטוקול רשת; גרסה מדויקת אינה ניתנת לשחזור | תהליך עבודה רב-שלבי מבוסס רשת להכנה ושיווי משקל של מערכות מולקולריות. |
| cgenff_charmm2gmx_py3.py | סקריפט המרה בקוד פתוח; המקור לא צוין במאמר | גרסה לא צוינה במאמר | סקריפט להמרת טופולוגיה של שדה כוחות. |
| Python | Python Software Foundation | 3.9 | סביבת תכנות למטרות כלליות. |
| SciPy | קהילת SciPy / קוד פתוח | גרסה לא צוינה במאמר | ספריית מחשוב מדעי. |
| scipy.stats.fisher_exact | קהילת SciPy / קוד פתוח | גרסת SciPy לא צוינה במאמר | מימוש של מבחן פישר המדויק (Fisher’s exact test). |
| R | R Foundation for Statistical Computing | 4.3.x | סביבת מחשוב סטטיסטי. |
| Bioconductor | פרויקט Bioconductor / קוד פתוח | 3.18 | מסגרת תוכנה לביואינפורמטיקה. |
| limma | פרויקט Bioconductor / קוד פתוח | גרסה לא צוינה במאמר | חבילה לניתוח ביטוי גנים דיפרנציאלי. |
| Benjamini–Hochberg procedure | שיטה סטטיסטית | לא רלוונטי (הליך סטטיסטי) | שיטת התאמה של שיעור התגליות השגויות (FDR). |
| NVIDIA RTX 3080 | NVIDIA Corporation | RTX 3080; ≥8 GB VRAM; גרסת CUDA/דרייבר לא צוינה במאמר | מעבד גרפי עם לפחות 8 GB של זיכרון וידאו. |
| CUDA-compatible GPU | NVIDIA Corporation | גרסת CUDA toolkit לא צוינה במאמר; ≥8 GB VRAM | מעבד גרפי התומך בחישוב מקבילי למטרות כלליות. |
| Ubuntu Linux 22.04 LTS | Canonical Ltd. / קוד פתוח | 22.04 LTS | מערכת הפעלה לינוקס 64 סיביות. |
| TIP3P | מפתחי שדה כוחות CHARMM / קוד פתוח | TIP3P; גרסת תוכנה לא רלוונטית | מודל מים מפורש בעל שלושה אתרים. |
| MM/PBSA | מפתחי gmx_MMPBSA / קוד פתוח | gmx_MMPBSA 1.5.x | שיטת אנרגיית קשירה של מכניקה מולקולרית/שטח פני פואסון–בולצמן. |
מקורות
- Ford AC, Lacy BE, Talley NJ. Irritable bowel syndrome. N Engl J Med. 2017;376(26):2566–2578.
- Sperber AD, et al. Worldwide prevalence and burden of functional gastrointestinal disorders: results of the Rome Foundation Global Study. Gastroenterology. 2021;160(1):99–114.e3.
- Chang L, et al. AGA clinical practice guideline on the pharmacological management of irritable bowel syndrome with constipation. Gastroenterology. 2022;163(1):118–136.
- Lacy BE, et al. ACG clinical guideline: management of irritable bowel syndrome. Am J Gastroenterol. 2021;116(1):17–44.
- Lavelle A, Sokol H. Gut microbiota-derived metabolites as key actors in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(4):223–237.
- Morrison DJ, Preston T. Formation of short-chain fatty acids by the gut microbiota and their impact on human metabolism. Gut Microbes. 2016;7(3):189–200.
- Ridlon JM, et al. Consequences of bile salt biotransformations by intestinal bacteria. Gut Microbes. 2016;7(1):22–39.
- Roager HM, Licht TR. Microbial tryptophan catabolites in health and disease. Nat Commun. 2018;9(1):3294. doi:10.1038/s41467-018-05470-4.
- Krautkramer KA, Fan J, Bäckhed F. Gut microbial metabolites as multi-kingdom intermediates. Nat Rev Microbiol. 2021;19(2):77–94.
- Pittayanon R, et al. Gut microbiota in patients with irritable bowel syndrome: a systematic review. Gastroenterology. 2019;157(1):97–108.
- Hopkins AL. Network pharmacology: the next paradigm in drug discovery. Nat Chem Biol. 2008;4(11):682–690.
- O’Boyle NM, et al. Open Babel: an open chemical toolbox. J Cheminform. 2011;3:33. doi:10.1186/1758-2946-3-33.
- Daina A, Michielin O, Zoete V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness, and medicinal chemistry friendliness of small molecules. Sci Rep. 2017;7:42717. doi:10.1038/srep42717.
- Szklarczyk D, et al. STITCH 5: augmenting protein–chemical interaction networks with tissue and affinity data. Nucleic Acids Res. 2016;44(D1):D380–D384.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets—update. Nucleic Acids Res. 2013;41(D1):D991–D995.
- Edgar R, Domrachev M, Lash AE. Gene Expression Omnibus: NCBI gene expression and hybridization array data repository. Nucleic Acids Res. 2002;30(1):207–210.
- Swan C, et al. Identifying and testing candidate genetic polymorphisms in irritable bowel syndrome: association with TNFSF15 and TNFα. Gut. 2013;62(7):985–994.
- Ritchie ME, et al. Limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. doi:10.1093/nar/gkv007.
- Szklarczyk D, et al. The STRING database in 2023: protein–protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638–D646.
- Kanehisa M, Goto S. KEGG: Kyoto Encyclopedia of Genes and Genomes. Nucleic Acids Res. 2000;28(1):27–30.
- Gillespie M, et al. The Reactome pathway knowledgebase 2022. Nucleic Acids Res. 2022;50(D1):D687–D692.
- Ashburner M, et al. Gene Ontology: tool for the unification of biology. Nat Genet. 2000;25(1):25–29.
- Gene Ontology Consortium, et al. The Gene Ontology knowledgebase in 2023. Genetics. 2023;224(1):iyad031. doi:10.1093/genetics/iyad031.
- Berman HM, et al. The Protein Data Bank. Nucleic Acids Res. 2000;28(1):235–242.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891–3898.
- Trott O, Olson AJ. AutoDock Vina: improving the speed and accuracy of docking. J Comput Chem. 2010;31(2):455–461.
- Vanommeslaeghe K, et al. CHARMM general force field: a force field for drug-like molecules compatible with the CHARMM all-atom additive biological force fields. J Comput Chem. 2010;31(4):671–690.
- Huang J, MacKerell AD Jr. CHARMM36 all-atom additive protein force field: validation based on comparison to NMR data. J Comput Chem. 2013;34(25):2135–2145.
- Jorgensen WL, et al. Comparison of simple potential functions for simulating liquid water. J Chem Phys. 1983;79(2):926–935.
- Abraham MJ, et al. GROMACS: high-performance molecular simulations through multi-level parallelism from laptops to supercomputers. SoftwareX. 2015;1–2:19–25.
- Jo S, Kim T, Iyer VG, Im W. CHARMM-GUI: a web-based graphical user interface for CHARMM. J Comput Chem. 2008;29(11):1859–1865.
- Wu EL, et al. CHARMM-GUI Membrane Builder toward realistic biological membrane simulations. J Comput Chem. 2014;35(27):1997–2004.
- Lomize MA, et al. OPM database and PPM web server: resources for positioning proteins in membranes. Nucleic Acids Res. 2012;40(D1):D370–D376.
- Darden T, York D, Pedersen L. Particle mesh Ewald: an N log(N) method for Ewald sums in large systems. J Chem Phys. 1993;98(12):10089–10092.
- Hess B, Bekker H, Berendsen HJC, Fraaije JGEM. LINCS: a linear constraint solver for molecular simulations. J Comput Chem. 1997;18(12):1463–1472.
- Valdés-Tresanco MS, Valdés-Tresanco ME, Valiente PA, Moreno E. gmx_MMPBSA: a new tool to perform end-state free-energy calculations with GROMACS. J Chem Theory Comput. 2021;17(10):6281–6291.
- Fiorucci S, Distrutti E. Bile acid-activated receptors, intestinal microbiota, and the treatment of metabolic disorders. Trends Mol Med. 2015;21(11):702–714.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41–50.
- Gershon MD, Tack J. The serotonin signaling system: from basic understanding to drug development for functional gastrointestinal disorders. Gastroenterology. 2007;132(1):397–414.
- Kim K, et al. Structure of a hallucinogen-activated Gq-coupled 5-HT2A serotonin receptor. Cell. 2020;182(6):1574–1588.e19.
- Ballesteros JA, Weinstein H. Integrated methods for the construction of three-dimensional models and computational probing of structure–function relations in G protein-coupled receptors. In: Sealfon SC, editor. Receptor Molecular Biology. Methods in Neurosciences. Vol. 25. San Diego: Academic Press; 1995. p. 366–428.
- McCorvy JD, Roth BL. Structure and function of serotonin G protein-coupled receptors. Pharmacol Ther. 2015;150:129–142.
- Klauda JB, et al. Update of the CHARMM all-atom additive force field for lipids: validation on six lipid types. J Phys Chem B. 2010;114(23):7830–7843.
- Lee J, et al. CHARMM-GUI input generator for NAMD, GROMACS, AMBER, OpenMM, and CHARMM/OpenMM simulations using the CHARMM36 additive force field. J Chem Theory Comput. 2016;12(1):405–413.
- Genheden S, Ryde U. The MM/PBSA and MM/GBSA methods to estimate ligand-binding affinities. Expert Opin Drug Discov. 2015;10(5):449–461.
- Kollman PA, et al. Calculating structures and free energies of complex molecules: combining molecular mechanics and continuum models. Acc Chem Res. 2000;33(12):889–897.
- Cryan JF, et al. The microbiota–gut–brain axis. Physiol Rev. 2019;99(4):1877–2013.
- Koh A, De Vadder F, Kovatcheva-Datchary P, Bäckhed F. From dietary fiber to host physiology: short-chain fatty acids as key bacterial metabolites. Cell. 2016;165(6):1332–1345.
- Tan J, et al. The role of short-chain fatty acids in health and disease. Adv Immunol. 2014;121:91–119.
- Agus A, Planchais J, Sokol H. Gut microbiota regulation of tryptophan metabolism in health and disease. Cell Host Microbe. 2018;23(6):716–724.