מחקר זה בוחן את הקשר בין לופוס אריתמטוזוס סיסטמי לבין הפסדי הריון חוזרים, ומזהה את IFI27 כביומארקר פוטנציאלי למחקרים עתידיים.
מאמר מחקר
רנדומיזציה מנדלית וביואינפורמטיקה מזהות את IFI27 כביומארקר מועמד להפסד הריון חוזר בלופוס אריתמטוסוסי סיסטמי
* These authors contributed equally
במאמר זה
סיכום
תקציר
לופוס אריתמטוזי סיסטמי (SLE) קשור לתוצאות הריון שליליות, אך הקשר הסיבתי בינו לבין הפסדי הריון חוזרים (RPL) והמאפיינים המולקולריים המשותפים שלהם נותרים לא ברורים. מחקר זה שילב רנדומיזציה מנדלית (MR) דו-כיוונית של שני דגימות עם ניתוחים ביו-אינפורמטיים טרנסקריפטומיים כדי לחקור קשר זה ולזהות סמנים ביולוגיים משותפים פוטנציאליים. FinnGen ו-UK Biobank נבחרו כיוון שהם מספקים סטטיסטיקות סיכום של מחקרי אסוציאציה גנומיים (GWAS) נרחבים, לא חופפים, מאוכלוסיות בעלות מוצא אירופאי. גנים המבטאים ביטוי דיפרנציאלי (DEGs) זוהו מ-GSE61635 (דם; |log₂ fold change| > 1) ומ-GSE165004 (אנדומטריום; |log₂ fold change| > 0.5) באמצעות P מתוקנן < 0.05, ולאחריהם בוצעו העשראה פונקציונלית, ניתוח אינטראקציית חלבון-חלבון (PPI), סינון גני-מפתח (hub-gene), רגרסיית LASSO (least absolute shrinkage and selection operator), תיקוף חיצוני באמצעות GSE50772 ו-GSE198700, ניתוח עקומת ROC (receiver operating characteristic) וניתוח העשראה של קבוצת גנים בדגימה בודדת (ssGSEA). SLE שנחזה גנטית היה קשור לעלייה מובהקת סטטיסטית אך צנומה כמותית בהפלות ספונטניות (odds ratio [OR] בשיטת inverse-variance weighted [IVW] = 1.01, רווח ברטחון [CI] של 95% = 1.00–1.02; P < 0.001). עוצמת הכלי הייתה מספקת, וניתוחי רגישות לא זיהו הטרוגניות מהותית, פלאיוטרופיה כיוונית או וריאנט בודד בעל השפעה משמעותית. חמישה וחמישים ותשעה DEGs משותפים היו מועשירים בתגובות חיסוניות אנטי-ויראליות, היצמדות תאים ותהליכים הקשורים לאפופטוזיס. IFI27 נמצא בביטוי יתר עקבי בדם של חולי SLE אך בביטוי נמוך באנדומטריום ובסיסים קוריאליים של RPL, בעוד ש-CXCL11 לא הראה תיקוף חיצוני עקבי. ניתוחי ROC רטרוספקטיביים הניבו שטחים תחת העקומה (AUCs) של 0.822 עבור SLE ו-0.872 עבור RPL. ציוני ssGSEA שהוסקו חישובית הראו מתאמים בין ביטויו של IFI27 לבין מספר חתימות של תאי חיסון, כולל תאי T helper 2 (Th2). ממצאים אלו מזהים את IFI27 כסמן ביולוגי פוטנציאלי משותף ל-SLE ו-RPL; עם זאת, נדרשים מחקרים קליניים וניסויים פרוספקטיביים כדי לתקף את חשיבותו הביולוגית והקלינית.
מבוא
לופוס אריתמטוזי סיסטמי (SLE) הוא מחלה אוטואימונית מורכבת המאופיינת במעורבות של מערכות רבות בגוף ובדיסרגולציה חיסונית כרונית1. החריגות הפתולוגיות ב-SLE מיוחסות בעיקר לתגובות חיסוניות אדפטיביות לקויות ולהשקעה של קומפלקסים של אנטיגן-נוגדן, המובילים לפגיעה ברקמות ונזק לאיברים המתווכים על ידי תהליך אוטואימוני2,3. השכיחות העולמית של SLE היא כ-5.14 (1.4–15.13) מקרים ל-100,000 שנות-אדם, עם שכיחות מוערכת של 8.82 (2.4–25.99) מקרים ל-100,000 שנות-אדם בקרב נשים4. SLE פוגע באנשים בכל הגילאים, אך הוא מופיע בעיקר בנשים בגיל הפוריות5,6. נשים בהריון הסובלות מ-SLE נמצאות בסיכון מוגבר לתוצאות הריון שליליות, כולל הפגות חוזרות, לידה של עובר מת, לידה מוקדמת ועיכוב בצמיחה תוך-רחמית7,8. הפגות חוזרות (RPL) מוגדרות כשתי הפגות או יותר לפני השבוע ה-20–24 להריון9. השכיחות המדווחת שלהן היא כ-2.6%10, מה שהופך אותן לסיבוך רבייתי משמעותי מבחינה קלינית. כ-20% מהנשים בהריון עם SLE חוות הפגה11, ו-SLE מוכר כגורם סיכון חשוב ל-RPL12. המנגנונים המוצעים כוללים שינויים הורמונליים ודיסרגולציה חיסונית. סמנים ביולוגיים כגון נוגדנים אנטי-קרדיוליפין ונוגדן לופוס אנטי-קוואגולנט נחקרו כחזויים פוטנציאליים לתוצאות הריון שליליות בחולות SLE11. נוגדנים עצמיים אלו עשויים להיקשר לתאי טרופובלסט של השליה, לשנות את האותות, השגשוג והפלישה של הטרופובלסט, לווסת את הפרשת הורמונים וציטוקינים, ולהגביר אפופטוזיס, ובכך לתרום לתוצאות הריון לקויות13. בנוסף, beta-2 glycoprotein I (β2-GPI), אנטיגן מרכזי בתסמונת האנטי-פוספוליפיד, מבוטא ברקמת השליה. קישור של נוגדני anti-β2-GPI ל-β2-GPI מעכב את צמיחת הטרופובלסט ואת בידויו, מה שמוביל לפגמים בשליה. אינטראקציה זו מקדמת גם סביבה פרו-דלקתית המאופיינת בייצור ציטוקינים הרסניים ובהפעלת מערכת המשלים, מה שתורם לתרומבוזי של השליה ולהפגות חוזרות14,15. עם זאת, במחקרים קודמים חסרו לעיתים קרובות ניתוחים מקיפים של רקמות רבייתיות מקומיות, כגון הדסידואה, מה שהגביל את היכולת לקשר בין סמנים ביולוגיים סיסטמיים לבין שינויים פתולוגיים מקומיים. יתרה מכך, הניהול של הריון המסובך ב-SLE ומניעת תוצאות הריון שליליות נותרים מאתגרים. רגישות גנטית תורמת להתפתחות של SLE, ווריאציה גנטית נקשרה גם לפתוגנזה של RPL16,17. למרות זאת, השאלה האם קיים קשר סיבתי בין SLE ל-RPL, כמו גם המנגנונים המולקולריים והגנים המשותפים העומדים בבסיס קיומם המשותף, נותרים לא ברורים.
רנדומיזציה מנדלית (Mendelian randomization - MR) היא גישה מבוססת להסקה סיבתית המשתמשת בווריאנטים גנטיים כמשתנים מכשירים (instrumental variables) כדי להעריך את ההשפעות הסיבתיות של חשיפות על תוצאות מחלה18. על ידי ניצול הקשר בין הגנוטיפ לפנוטיפ, MR מפחיתה הטיות הנובעות מגורמים מתערבים ומסיבתיות הפוכה בהשוואה למחקרים תצפיתיים קונבנציונליים. במקביל, התקדמות בפלטפורמות של מערכי מיקרו-גנומי וריצוף בספיקת גבוה אפשרה ניתוחים ביואינפורמטיים לזיהוי ביומרקרים דיאגנוסטיים מועמדים ומטרות טיפוליות באמצעות פרופיל תעתוק (transcriptomic profiling). שילוב של גישות משלימות אלו עשוי לספק הבנה מקיפה יותר של הקשר בין SLE ל-RPL על ידי שילוב של ראיות גנטיות סיבתיות עם דפוסי ביטוי גנים הקשורים למחלה. לפיכך, מחקר זה נועד לבחון את הקשר הסיבתי הפוטנציאלי בין SLE ל-RPL, לזהות ביומרקרים מועמדים ונתיבים ביולוגיים משותפים, ולתעדף מטרות לאישור עתידי. כדי להשיג יעדים אלה, זרימת העבודה האנליטית הוגדרה מראש באופן הבא: MR דו-כיווני להערכת כיוון הסיבתיות; ניתוחי ביטוי גנים דיפרנציאליים עצמאיים ולאחריהם אינטגרציה תעתוקית; ניתוח רשת אינטראקציות חלבון-חלבון (PPI) ורגרסיית LASSO (least absolute shrinkage and selection operator) לתיעדוף ביומרקרים; אישור ביטוי חיצוני וניתוח עקומת ROC (receiver operating characteristic); וניתוח העשרה של קבוצות גנים במדגם בודד (ssGSEA) להערכת קשרים עם חתימות של תאי חיסון. זרימת עבודה מדורגת זו מסוכמת ב-איור 1.
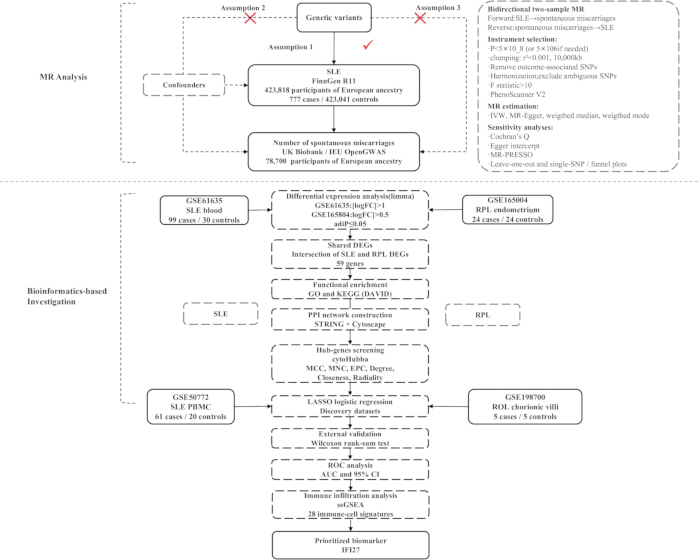
איור 1מערך המחקר וזרימת העבודה האנליטית.
הפאנל העליון ממחיש את ניתוח הרנדומיזציה המנדלית (MR) הדו-כיוונית של שני דגמי מדגם, המעריכה את הקשר בין לופוס אריתמטוזי סיסטמי (SLE) לבין מספר ההפלות הספונטניות, תוך שימוש בסטטיסטיקות סיכום של מחקר אסוציאציה גנומית רחבה (GWAS). מוצג סיכום של בחירת כלי מדידה (Instrument selection), קיבץ לפי חוסר שיווי משקל של קישור (linkage disequilibrium clumping), ניתוחי רנדומיזציה מנדלית (MR) וניתוחי רגישות. הפאנל התחתון מפרט את זרימת העבודה הביואינפורמטית, הכוללת ניתוח ביטוי דיפרנציאלי, זיהוי גנים בעלי ביטוי דיפרנציאלי (DEGs) משותפים, ניתוח העשרה תפקודית, בניית רשת אינטראקציית חלבון-חלבון (PPI), סינון גנים מרכזיים (hub-genes), רגרסיית LASSO (least absolute shrinkage and selection operator), תיקוף חיצוני, ניתוח עקומת ROC (receiver operating characteristic), ניתוח העשרת סט גנים של מדגם יחיד (ssGSEA) ותיעוד עדיפות לסמן הביולוגי המועמד IFI27.
IVW, משקולת של שVariance הפוך; KEGG, אנציקלופדיית הגנים והגנומים של קיוטו; GO, אונטולוגיה של גנים. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
פרוטוקול
אישור אתי לא היה נדרש למחקר הנוכחי מכיוון שהוא כלל ניתוחים משניים בלבד של סטטיסטיקות סיכום של מחקרי קישור גנומי רחב (GWAS) ומסדי נתונים טרנסקריפטומיים זמינים לציבור ואנונימיים. לא גויסו משתתפים חדשים, לא נאספו דגימות ביולוגיות, ולא נעשה שימוש במידע מזהה ברמת הפרט. במחקרי FinnGen, UK Biobank ו-Gene Expression Omnibus המקוריים דווח כי התקבלו אישורים אתיים והסכמה מדעת בהתאם לדרישות המוסדיות, הלאומיות והדרישות הספציפיות למסדי הנתונים הרלוונטיים. לכל מסדי הנתונים ששימשו במחקר הנוכחי ניגשו וניתחו אותם בהתאם למדיניות השימוש במסדי הנתונים, לתנאי הגישה לנתונים ולהנחיות האתיות החלות. המחברים לא ניסו לזהות מחדש אף משתתף. לפיכך, לא נדרשה הסכמה מדעת בכתב נוספת לצורך ניתוח משני זה. תוכן מחקר זה כולל שני חלקים: ניתוח MR וניתוח ביואינפורמטיקה (איור 1). מחקר זה היה חישובי לחלוטין והשתמש במסדי נתונים טרנסקריפטומיים ובסטטיסטיקות סיכום של GWAS הזמינים לציבור. לא נעשה שימוש בריאגנטים או בחומרים מתכלים של מעבדה רטובה.
ניתוח MR
מקורות נתונים, רכישה ועיבוד מקדימ של סטטיסטיקות סיכום של GWAS:
סטטיסטיקות הסיכום של GWAS עבור lupus erythematosus התקבלו מ-FinnGen Release 11 (finngen_R11_L12_LUPUS; RRID:SCR_022254), קוהורט פיני based-population. הפנוטיפ הוגדר באמצעות קוד ICD-10 L93 וכלל 423,818 משתתפים, הכוללים 777 מקרי מחלה ו-423,041 ביקורות. קובץ סטטיסטיקות הסיכום של FinnGen הורד מפורטל הנתונים הציבורי של FinnGen בפורמט דחוס מופרד בטאבים ויובא ל-R באמצעות הפונקציה ()read_exposure_data או ()read_outcome_data ב-TwoSampleMR, בהתאם לשאלה אם מערך הנתונים שימש כחשיפה (exposure) או כתוצאה (outcome). ה-rsID, הכרומוזום, המיקום הגנומי, האלל המשפיע (effect allele), האלל השני, תדירות האלל המשפיע, מקדם beta, השגיאה הסטנדרטית וערך ה-P של ההקשר נשמרו.
נתוני סטטיסטיקה מסכמת עבור מספר ההפלות הספונטניות התקבלו מה-UK Biobank באמצעות משאב IEU OpenGWAS (ukb-b-419; RRID:SCR_012815), הכולל 78,700 משתתפים. בניתוח קדימה, קשרי הגומלין של הפולימורפיזמים של נוקליאוטיד בודד (SNPs) שנבחרו מ-FinnGen עם התוצאה נשלפו באמצעות extract_outcome_data(outcomes = "ukb-b-419", proxies = FALSE). בניתוח הפוך, SNPs הקשורים ללופוס אריתמטוזוס נשלפו באמצעות extract_instruments(outcomes = "finngen_R11_L12_LUPUS", clump = FALSE), ולאחר מכן נשלפו קשרי הגומלין התואמים של ה-SNP מקובץ הסטטיסטיקה המסכמת של UK Biobank. מאפייני מערכי הנתונים של GWAS ששימשו בניתוחי MR הדו-כיווניים מסוכמים בטבלה 1.
| תכונה | גודל מדגם | מוצא | קונסורציום | שנה | מזהה מערך נתוני GWAS |
| Lupus erythematosus | 4,23,818 | אירופאי | FinnGen (RRID: SCR_022254) | 2024 | finngen_R11_L12_LUPUS |
| מספר הפסקות היריון ספונטניות | 78,700 | אירופאי | UK Biobank (RRID: SCR_012815) | 2018 | ukb-b-419 |
טבלה 1: סטטיסטיקות סיכום של מחקר אסוציאציה גנומית רחבה (GWAS) ששימשו לניתוח רנדומיזציה מנדלית דו-כיוונית.
הטבלה מסכמת את מאגרי הנתונים הזמינים לציבור ממחקרי אסוציאציה גנומית רחבה ששימשו כמקורות לחשיפה ולתוצאה עבור ניתוחי רנדומיזציה מנדלית קדימה ואחורה, כולל גודל מדגם, מוצא, מקור הנתונים, שנת פרסום הנתונים ומזהה מאגר הנתונים.
FinnGen ו-UK Biobank נבחרו מכיוון שהם מספקים מאגרי נתונים גדולים, נגישים לציבור ובעיקר ממקור אירופאי, הנגזרים מאוכלוסיות מקור שאינן חופפות, ומכילים כיסוי וריאנטים מספיק עבור MR של שני דגמים. לא דווח על חפיפה בין דגמי החשיפה לתוצאה. כיוון שנעשה שימוש בנתונים ברמת סיכום בלבד, לא ניגשו לנתוני גנוטיפ ברמת הפרט, לא בוצעה נורמליזציה נוספת ברמת המשתתפים, ולא הוחרגו משתתפים על ידי החוקרים הנוכחיים. הסתמכנו על נהלי בקרת האיכות ברמת הדגם וברמת הווריאנט שיושמו על ידי קונסורציומי ה-GWAS המקוריים. במהלך הניתוח הנוכחי, בוצעה בקרת איכות נוספת ברמת הווריאנט באמצעות סינון מובהקות, קיבוץ שיווי חוסר קישור (linkage disequilibrium clumping), הרמוניזציה של אללים, הערכת עוצמת המכשיר וסריקת פליאוטרופיה, כפי שמתואר להלן.
ב-FinnGen Release 11 מדווחים על מיקומים גנומיים בהתאם ל-GRCh38/hg38, בעוד שמאגרי הנתונים ההרמוניים של IEU OpenGWAS ומשאב הייחוס של חוסר שיווי משקל קישור (linkage disequilibrium) משתמשים באנוטציות של וריאנטים התואמות ל-GRCh37. לפיכך, וריאנטים של חשיפה ותוצאה הותאמו בעיקר באמצעות rsIDs יציבים ולא באמצעות קואורדינטות של כרומוזום-מיקום. לא בוצע התאמה מיקומית ישירה בין גרסאות הבנייה (cross-build). וריאנטים ללא rsID חד-משמעי או עם מידע לא עקבי על אללים בין מאגרי הנתונים הוצאו מהניתוח לפני ביצוע ניתוח MR. סטטיסטיקות סיכום של FinnGen Release 11 משתמשות ב-GRCh38, בעוד שנתוני OpenGWAS הרמוניים למוסכמות רצף הייחוס המשמשות את Build 37. לכן, התאמה באמצעות rsID היא חשובה כאשר משלבים את שני המשאבים.
מערך המחקר של MR:
פעלנו בהתאם להנחיות STROBE-MR (קובץ משלים 1)19. נעשה שימוש במערך MR דו-כיווני של שני מדגמים כדי להעריך את הקשר בין lupus erythematosus שנחזה גנטית לבין מספר ההפלות הספונטניות. בניתוח קדימה, lupus erythematosus הוגדר כחשיפה ומספר ההפלות הספונטניות כתוצאה. בניתוח הפוך, החשיפה והתוצאה הוחלפו, וחזרו על כל תהליך בחירת הכלים, ה-linkage disequilibrium clumping, הרמוניזציית הנתונים, הערכת הסיבתיות וניתוחי הרגישות. פולימורפיזם של נוקליאוטיד בודד (SNPs) שימש כמשתנים מכשירים (IVs). כל תהליך העבודה בוצע בסדר הבא: השגה ועיצוב של סטטיסטיקות סיכום של GWAS; בחירה של SNPs הקשורים לחשיפה; הסרה של וריאנטים כפולים או כאלה שסומנו באופן חלקי; linkage disequilibrium clumping; חילוץ של הקשרים התואמים לתוצאה; החרגת SNPs הקשורים ישירות לתוצאה; הרמוניזציה של אללים של החשיפה והתוצאה; חישוב עוצמת המכשיר; סריקה של פנוטיפים עם פוטנציאל לבלבול; הערכה של השפעות סיבתיות; הערכת הטרוגניות ופלייוטרופיה אופקית; זיהוי חריגים באמצעות Mendelian Randomization Pleiotropy RESidual Sum and Outlier (MR-PRESSO); וניתוחי רגישות מסוג leave-one-out ו-single-SNP. כל ניתוחי ה-MR בוצעו באמצעות R גרסה 4.4.2 (RRID:SCR_001905), TwoSampleMR גרסה 0.6.6 (RRID:SCR_019010), MRPRESSO גרסה 1.0 (RRID:SCR_023697), ו-forestploter גרסה 1.1.2. ניתוח ה-MR התבסס על שלוש הנחות ליבה. ראשית, על פי הנחת הרלוונטיות, ה-SNPs הנבחרים חייבים להיות קשורים חזק לחשיפה. שנית, על פי הנחת העצמאות, ה-SNPs הנבחרים חייבים להיות עצמאיים מגורמים המבלבלים את הקשר בין החשיפה לתוצאה. שלישית, על פי הנחת הגבלת ההחרגה, ה-SNPs הנבחרים חייבים להשפיע על התוצאה רק דרך החשיפה20 (איור 1).
שיטות לבחירת SNP:
בחירת המשתנים האינסטרומנטליים בוצעה לפי הסדר הבא: (1) בחירת SNPs הקשורים לחשיפה בערך P < 5 × 10⁻⁸; כאשר מספר המשתנים לא היה מספיק, נעשה שימוש ב-< P < 5 × 10⁻⁶; (2) שימוש בפונקציה ()clump_data לביצוע קיבץ (clumping) של שיווי משקל קישור (linkage disequilibrium) בערך R2 < 0.001 ומרחק גנטי של 10,000 kb, תוך הרפיית הקריטריונים ל-< R2 < 0.01 בטווח של 5,000 kb רק כאשר היה זה נחוץ כדי לשמור על סט משתנים ניתן לניתוח; (3) סינון SNPs בעלי קשר מובהק לתוצאה באמצעות סף של P = 5 × 10⁻⁵; (4) שימוש בפונקציה ()harmonise_data להרמוניזציה של אללים של החשיפה והתוצאה והסרת וריאנטים פלינדרומיים או מעומעמים אחרים; (5) חישוב עוצמת המשתנה כ-< F = β2/SE2, והסרת SNPs עם F < 10; ו-(6) סריקת ה-SNPs שנשמרו ב-PhenoScanner V2 לאיתור פנוטיפים שעלולים להוות גורם מבלבל (confounder) לקשר שבין SLE לאובדן היריון21. נוגדנים אנטי-פוספוליפידים (aPL) עשויים להיות גורם סיכון משותף ל-SLE ולמספר ההפלות הספונטניות. חיפוש SNPs בודדים בוצע ב-PhenoScanner V2. כל ה-SNPs המועמדים נסרקו ב-PhenoScanner V2 באמצעות קטלוג GWAS ברירת המחדל כדי לשלוף את כל הקשרים המדווחים ממחקרי אסוציאציה גנומיים (GWAS). סף המובהקות נקבע ל-< P < 1 × 10⁻5, ובשימוש בגרסת הגנום הייחוס כברירת מחדל (GRCh37). מכיוון שאוכלוסיית המחקר הייתה ממוצא אירופאי, חיפוש וריאנטים פרוקסי (proxy variant searching) הופעל באמצעות פאנל הייחוס האירופאי (proxies = "EUR"), עם סף LD של R2 > 0.8 בתוך חלון של 1,000-kb. כל שאר פרמטרי החיפוש נשמרו בהגדרות ברירת המחדל שלהם. SNPs שהראו קשרים מובהקים עם הגורם המבלבל שנקבע מראש, נוגדנים אנטי-פוספוליפידים (aPL), נחשבו כבעלי פוטנציאל לפליאוטרופיות והוצאו מסט המשתנים האינסטרומנטליים הסופי כדי למזער הפרה של הנחת הגבלת ההדרה (exclusion restriction assumption) של הרנדומיזציה המנדלית. ה-SNPs האינסטרומנטליים שנשמרו עבור ניתוחי MR קדמיים והפוכים מפורטים ב-טבלאות משלימות 1 ו-2, בהתאמה.
ניתוח סטטיסטי:
לאחר בחירת המכשירים והרמוניזציה של האללים, חושבו הערכות סיבתיות באמצעות הפונקציה ()mr ב-TwoSampleMR. זרימת העבודה האנליטית בוצעה בסדר הבא. ראשית, ההשפעה הסיבתית הכוללת נאמדה באמצעות ארבע שיטות MR: שקלול שונות הפוכה (IVW), רגרסיית MR-Egger, החציון המשוקלל והשכיח המשוקלל. הערכות ההשפעה עבור מספר ההפלות הספונטניות ו-SLE דווחו כיחסי סיכויים (odds ratios) עם רווחי סמך של 95% תואמים ו- P ערכים. שיטת IVW נקבעה כאנליזה העיקרית, מכיוון שהיא מספקת עוצמה סטטיסטית גבוהה כאשר כל ה-SNPs הכלולים הם משתנים מכשירים (instrumental variables) תקפים וכאשר אין פליאוטרופיה אופקית. עם זאת, אומדן ה-IVW עלול להיות מוטה כאשר קיימת פליאוטרופיה אופקית.22נעשה שימוש בעיקר ברגרסיית MR-Egger כדי להעריך הסקות סיבתיות בנוכחות פליוטרופיה אופקית פוטנציאלית.23גישת החציונה המשוקללת מחייבת שלפחות 50% מהמשקל האנליטי יגיע ממשתנים אינסטרומנטליים (IVs) תקפים. שיטה זו היא האופטימלית כאשר קיימת הטרוגניות אך אין פלייוטרופיה אופקית.24השכיחות המשוקללת מזהה מקבצים של משתנים אינסטרומנטליים בעלי השפעות סיבתיות דומות ומעריכה את ההשפעה מהמקבץ הגדול ביותר.25הערכות האפקט שהתקבלו באמצעות ארבע שיטות ה-MR מוצגות ב- איור 2שנית, נבדלה ההטרוגניות בין האומדנים הסיבתיים הספציפיים ל-SNP באמצעות מבחן Q של Cochran, שיושם באמצעות הפונקציה mr_heterogeneity(). סטטיסטיקת Q מייצגת את הסכום המשוקלל של ריבועי הסטיות של אומדני ה-SNP הבודדים מהאומדן הסיבבי הכללי. מבחן Q P ערך < ערך של 0.05 נחשב כעדות להומוגניות, ובמקרה זה יושם מודל IVW בעל השפעות אקראיות (random-effects). בהיעדר הומוגניות מובהקת, נעשה שימוש במודל IVW בעל השפעות קבועות (fixed-effects).26שלישית, פליאוטרופיה אופקית כיוונית נבחנה באמצעות מבחן החסיכה של MR-Egger, אשר הוטמע באמצעות הפונקציה ()mr_pleiotropy_test. חסיכה השונה באופן מובהק מאפס ב- P < 0.05 נחשב כראיה לפלייוטרופיה אופקית כיוונית. רביעי, הליך MR-PRESSO בוצע באמצעות הפונקציה ()mr_presso בחבילת MRPRESSO (RRID:SCR_023697) כדי לזהות SNPs בעלי השפעות פלייוטרופיות חריגות27כאשר זוהו ערכים חריגים, הם הוסרו והניתוח הסיבתי חזר על עצמו באמצעות המכשירים הנותרים. מבחן ה-MR-PRESSO global שימש להערכת פלייוטרופיה אופקית כללית, ומבחן העיוות (distortion test) נלקח בחשבון בעת הערכת השאלה האם הסרת הערכים החריגים שינתה באופן מהותי את האומדן הסיבתי. ששיבית, בוצע ניתוח רגישות מסוג leave-one-out באמצעות הפונקציה ()mr_leaveoneout. בניתוח זה, כל SNP הוצא מהמדגם באופן רצית, והאומדן הסיבתי המאוחד חושב מחדש באמצעות ה-SNPs הנותרים. התוצאות הוצגו באופן ויזואלי באמצעות ()mr_leaveoneout_plot כדי לקבוע האם הקשר הכולל הונע באופן לא פרופורציונלי על ידי מכשיר בודד. שישית, הופקו אומדנים ספציפיים לכל SNP בודד באמצעות הפונקציה ()mr_singlesnp. אומדנים אלה שימשו לבניית תרשימי משפך (funnel plots) באמצעות ()mr_funnel_plot כדי להעריך ויזואלית אסימטריה שייתכן שהיא מיוחסת לפלייוטרופיה אופקית כיוונית. תרשימי יער (forest plots) מסכמים הופקו באמצעות forestploter (גרסה 1.1.2) כדי להציג את אומדני ההשפעה ומרווחי הסמך שהתקבלו מהשיטות השונות של MR. תרשים הפיזור של forward MR, תרשים היער הספציפי ל-SNP, ניתוח ה-leave-one-out ותרשים המשפך מוצגים ב- איורי השלמה 1–4בהתאמה.
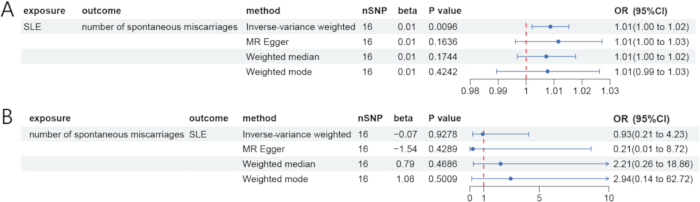
איור 2תוצאות ניתוח הרנדומיזציה המנדלית הדו-כיוונית.
(A) תרשים יער (Forest plot) של ניתוח רנדומיזציה מנדלית (MR) קדימה, כאשר לופוס אריתמטוזי סיסטמי (SLE) הוא החשיפה ומספר ההפלות הספונטניות הוא התוצאה. (B) תרשים יער של ניתוח MR הפוך, כאשר מספר ההפלות הספונטניות הוא החשיפה ו-SLE הוא התוצאה. הערכות האפקט מוצגות כיחסי סיכויים (ORs) עם רווחי סמך (CIs) של 95% עבור שיטות השקלול של השונות ההפוכה (inverse-variance weighted), MR-Egger, החציון המשוקלל והשכיח המשוקלל. SNP, פולימורפיזם של נוקלאוטיד בודד. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
קשר סיבתי נחשב נתמך כאשר אומדן ה-IVW היה מובהק סטטיסטית ב-P < 0.05, אומדני ה-MR-Egger, החציון המשוקלל והשכיח המשוקלל הראו כיוונים העקביים עם אומדן ה-IVW, והממצאים לא השתנו באופן מהותי כתוצאה מהטרוגניות, פליאוטרופיה, MR-PRESSO או ניתוחי רגישות מסוג leave-one-out. כל המבחנים הסטטיסטיים היו דו-זנביים.
ניתוח ביו-אינפורמטיקה
נתוני מערך זעיר (Microarray):
מאגרי הנתונים הטרנסקריפטומיים התקבלו ממאגר הנתונים Gene Expression Omnibus (GEO; RRID:SCR_005012)28קבצי ה-Series Matrix המעובדים, המטא-נתונים של הדגימות וקבצי האנוטציה של הפלטפורמה הורדו עבור GSE61635, GSE165004, GSE50772 ו-GSE198700. הפלטפורמה, מקור הרקמה, גודל המדגם וקטגוריית הניתוח של כל סט נתונים מסוכמים ב- טבלה 2מכיוון שמאגרי הנתונים הופקו מרקמות שונות ומפלטפורמות מיקרו-מערכים (microarray) שונות, כל מאגר נתונים עבר עיבוד מקדמי וניתוח באופן עצמאי. מטריצות ביטוי ממאגרי נתונים שונים לא מוזגו באופן ישיר, ולא הוחל תיקון אצוות (batch correction) בין-פלטפורמי. אינטגרציה בין-מאגרית בוצעה ברמת סמל הגן רק לאחר שהניתוח של הביטוי הדיפרנציאלי הושלם באופן עצמאי בתוך כל מאגר נתונים למשלוח (discovery dataset).
| סט נתוני GEO | מחלה | פלטפורמה | רקמה (Homo sapiens) | מקרים | ביקורות | סוג הניסוי | תורם | קטגוריית סט הנתונים |
| GSE61635 | Systemic lupus erythematosus (SLE) | GPL570 | דם מלא | 99 | 30 | Expression microarray | Greidinger EL | סט נתוני גילוי |
| GSE165004 | Recurrent pregnancy loss (RPL) | GPL16699 | אנדומטריום | 24 | 24 | Expression microarray | Keleş ID29 | סט נתוני גילוי |
| GSE50772 | Systemic lupus erythematosus (SLE) | GPL570 | תאי דם לבנים חד-גרעיניים פריפריים (PBMCs) | 61 | 20 | Expression microarray | Kennedy WP30 | סט נתוני תיקוף |
| GSE198700 | Recurrent pregnancy loss (RPL) | GPL13534 | סיליות של השליה | 5 | 5 | Expression microarray | Li Y31 | סט נתוני תיקוף |
טבלה 2: מאגרי נתוני טרנסקריפטומיקה ששימשו לניתוחים הביואינפורמטיים.
הטבלה מרכזת את מאגרי הנתונים הטרנסקריפטומיים מ-Gene Expression Omnibus (GEO) שנכללו בניתוחי הגילוי והתיקוף, כולל המחלה, פלטפורמת המיקרו-מערך (microarray), מקור הרקמה, גודל המדגם, סוג הניסוי, תורם המחקר המקורי וקטגוריית מאגר הנתונים.
הנתונים GSE61635 הופקו באמצעות פלטפורמת המערך Affymetrix Human Genome U133 Plus 2.0 Array (GPL570) וכללו 99 מערכי דם מלא ממטופלים עם SLE, כולל ביקורים חוזרים של חלק מהמטופלים, ו-30 מערכים מביקורות בריאות בלתי תלויות. מטריצת הביטוי שהופקדה עברה תיקון רקע ממוצע חסון למספר מערכים (robust multiarray average background correction), נורמליזציית קוונטילים (quantile normalization), סיכום של קבוצות גששים (probe-set summarization) והסבה ל-log2 על ידי החוקרים המקוריים. לפיכך, לא בוצע תיקון רקע שני או נורמליזציית קוונטילים נוספת. מזהי המטופלים הופקו מהמטא-נתונים של GEO ונשמרו לצורך מידול של מדידות חוזרות.
GSE165004 הופק באמצעות פלטפורמת ה-Microarray מסוג Agilent SurePrint G3 Human Gene Expression v2 8×60K (GPL16699). מערך הנתונים המלא כלל 24 ביקורות פוריות, 24 מטופלות עם RPL ו-24 מטופלות עם אי-פוריות לא מוסברת. רק 24 דגימות ה-RPL ו-24 דגימות הביקורת הפוריות שנאספו בימים 19–21 של המחזור החודשי נכללו; 24 דגימות האי-פוריות הבלתי מוסברת הוצאו מהמחקר מכיוון שהיו מחוץ להשוואה שהוגדרה מראש29. נעשה שימוש במטריצת הביטוי שנורמלה על ידי המפקיד, ולא הוחלה נורמליזציה נוספת בין המערכים לאחר אישור התפלגויות דגימה דומות באמצעות תרשימי קופסה (box plots) ותרשימי צפיפות (density plots).
GSE50772 שימש כסט נתונים עצמאי לאישור SLE וכלל דגימות של תאים חד גרעיים מדם פריפריאלי מ-61 חולים עם SLE ו-20 ביקורות בריאות, שהופקו באמצעות GPL57030. GSE198700 הופק באמצעות GPL13534 ומכיל דגימות של שליה (chorionic villus) מחמישה חולים עם RPL וחמש ביקורות של הפלות רצוניות31. מטריצת הביטוי שהופקדה יובאה במלואה ועברה טרנספורמציה אחת באמצעות log2(x + 1), מכיוון שערכי הביטוי שהופקדו סופקו בסולם לא-לוגריתמי. טרנספורמציה זו הוחלה על מטריצת הביטוי המלאה לפני בקרת איכות ברמת הדגימה, אנוטציה של פרובים, סיכום ברמת הגן, אישור גנים מועמדים, ניתוח ביטוי דיפרנציאלי, בדיקת השוואה בין קבוצות וניתוח ROC. גנים מועמדים לא עברו טרנספורמציה בנפרד, ולא בוצעה טרנספורמציה לוגריתמית נוספת במהלך ניתוחי האישור העוקבים. עבור כל סטי הנתונים, זהות הדגימות, מצב המחלה, מקור הרקמה ותוויות הקבוצות נבדקו מול המטא-דאטה המתאים ב-GEO לפני הניתוח. בקרת האיכות כללה הערכה של גדלי ספריות או התפלגויות ביטוי, תרשימי קופסה (boxplots) לכל דגימה, ניתוח רכיבים ראשיים (PCA), צבירה היררכית ומפות חום של מרחקי דגימה. לא הוצאו דגימות נוספות לאחר הערכת בקרת האיכות.
ניתוח ביטוי דיפרנציאלי:
ניתוחי ביטוי דיפרנציאלי בוצעו באופן עצמאי עבור GSE61635 ו-GSE165004 באמצעות limma גרסה 3.60.6 (RRID:SCR_010943). כל מטריצות הביטוי אורגנו כך שהגנים מופיעים בשורות והמדגמים בעמודות. סף הביטוי הדיפרנציאלי נקבע כ- |log₂ fold change| > 1 עבור GSE61635 ו- |log₂ fold change| > 0.5 עבור GSE165004, עם ערך P < 0.05 המתוקנן לפי Benjamini–Hochberg (BH). תרשימי געש (Volcano plots) נוצרו באמצעות ggplot2 גרסה 3.5.1 (RRID:SCR_014601). מפות חום של 50 הגנים בעלי הביטוי הדיפרנציאלי המשמעותי ביותר (DEGs), המדורגים לפי ערך P מתוקנן, נוצרו באמצעות pheatmap גרסה 1.0.12 (RRID:SCR_016418). גנים בעלי ביטוי דיפרנציאלי משותפים זוהו על ידי חיתוך של סמלי הגנים הרשמיים מרשימות ה-DEG המשמעותיות של SLE ו-RPL באמצעות פונקציית ()intersect של שפת R הבסיסית, והוצגו ויזואלית באמצעות ggvenn גרסה 0.1.16 (RRID:SCR_025300). מפות החום של הביטוי הדיפרנציאלי, תרשימי הגעש והחיתוך של רשימות ה-DEG עבור SLE ו-RPL מוצגים ב-איור 3.
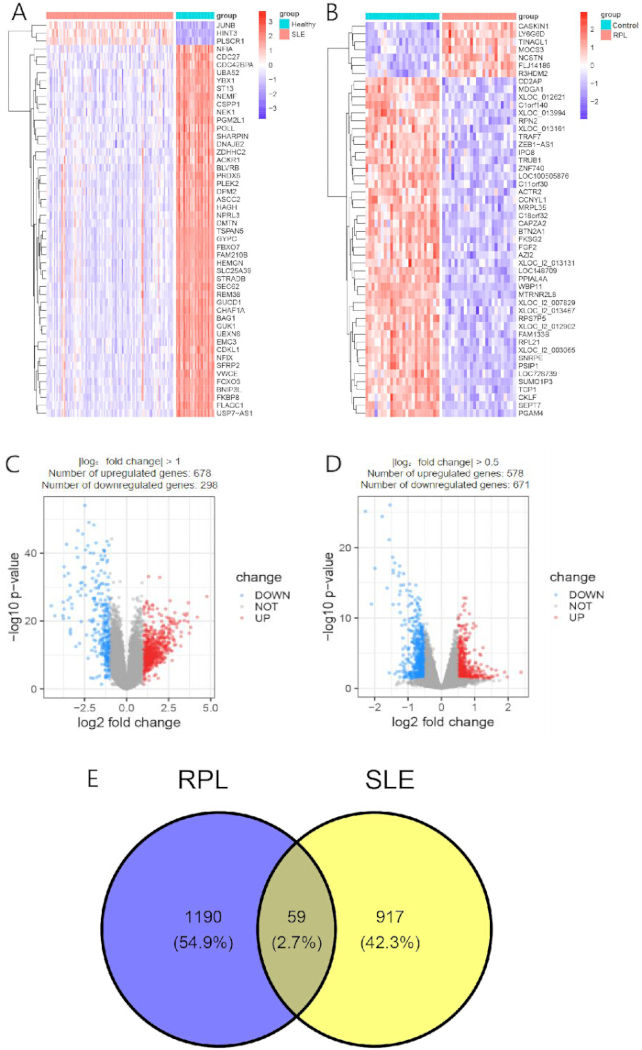
איור 3גנים המבטאים ביטוי Differentially expressed בלוCוס אריתמטוסה סיסטמית ובאובדן הריון חוזר.
(A) מפת חום של 50 הגנים בעלי הביטוי השונה (DEGs) המשמעותיים ביותר בין חולים עם לופוס אריתמטוזי סיסטמי (SLE) למבקרים בריאים ב-GSE61635. (B) מפת חום של 50 ה-DEGs המשמעותיים ביותר בין חולות עם הפסדי היריון חוזרים (RPL) למבקרים פוריות ב-GSE165004. (C) תרשים געש (Volcano plot) של ביטוי גנים Differentially Expressed ב-GSE61635. (D) תרשים געש של ביטוי גנים Differentially Expressed ב-GSE165004. (E) תרשים ון המראה את החפיפה בין רשימות ה-DEG המשמעותיות מתוך מערכי הנתונים של SLE ו-RPL. DEGs, גנים בעלי ביטוי שונה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
ניתוח העשרה פונקציונלי של DEGs בחפיפה:
לביצוע ניתוח של תפקודי ה-DEG ברמה המולקולרית, נעשה שימוש בכלי המקוון DAVID (גרסה 2021; RRID:SCR_001881)32 לביצוע ניתוחי העשרה פונקציונליים של Gene Ontology (GO) ונתיבי Kyoto Encyclopedia of Genes and Genomes (KEGG). סמלי גנים רשמיים של בני אדם הועלו כסוג המזהה, ו-Homo sapiens נבחר כמין. אוכלוסיית הרקע המותאמת אישית הורכבה מחפיפה של כל הגנים שעברו את שלבי ביאור הגשושים (probe annotation) ובקרת האיכות, ואשר היו מדידים הן ב-GSE61635 והן ב-GSE165004. סף מספר הגנים המינימלי נקבע ל-2, וציון ה-EASE המקסימלי, המייצג את ערך ה-P המותאם של מבחן Fisher החד-צדדי ב-DAVID, נקבע ל-0.05. השוואות מרובות נבקר באמצעות הליך Benjamini–Hochberg כפי שדווח בעמודת ה-"Benjamini" של DAVID. מונחים פונקציונליים נחשבו למשמעותיים סטטיסטית כאשר ציון ה-EASE היה < 0.05 וערך ה-P המתוקנן לפי Benjamini היה < 0.05. פלט ה-DAVID המלא, הכולל שמות מונחים, ספירת גנים, ציוני EASE, ערכי P מתוקננים לפי Benjamini, מיפוי גני קלט ומיפוי גני רקע, יוצא כקובץ עם מפרידי טאבים. אתר CNSknowall שימש להצגה ויזואלית של תוצאות DAVID המסוננות. תוצאות ההעשרה של GO ו-KEGG מוצגות ב-איור 4A.
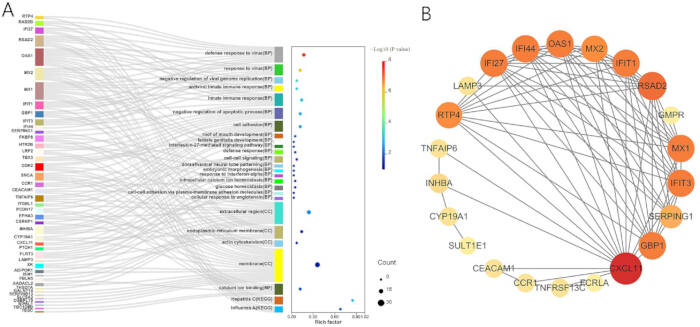
איור 4ניתוח העשרה פונקציונלית ורשת אינטראקציות בין חלבונים של הגנים המשותפים בעלי ביטוי דיפרנציאלי.
(A) ניתוחי העשרה של Gene Ontology (GO) ו-Kyoto Encyclopedia of Genes and Genomes (KEGG) עבור 59 הגנים בעלי הביטוי השונה (DEGs) המשותפים. דיאגרמת סנקי (Sankey) ממחישה את הקשרים בין גנים למונחי GO מועשרים, והתרשים הבועות המלווה מסכם מונחי GO ו-KEGG מועשרים לפי rich factor, מספר גנים ומובהקות סטטיסטית. (B) רשת אינטראקציית חלבון-חלבון (PPI) שנבנתה מ-59 ה-DEGs המשותפים באמצעות STRING והוצגה ב-Cytoscape. גודל הצמתים וצבעם משקפים את הקישוריות ברשת, והקצוות מצביעים על קשרי חלבון-חלבון חזויים. BP, תהליך ביולוגי; CC, רכיב תאי; MF, תפקוד מולקולרי. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
רשת PPI וזיהוי גנים מרכזיים:
ה-DEGs המשותפים הועלו ל-STRING גרסה 11.0 (RRID:SCR_005223)33 כאשר Homo sapiens נבחר כאורגניזם (מזהה טקסונומי: 9606). נעשה שימוש ברשת STRING המלאה, המאפשרת קשרים חלבוניים הן פונקציונליים והן פיזיקליים. כל ערוצי הראיות הזמינים הופעלו, כולל ראיות ניסיוניות, מאגרי מידע מאושרים, ביטוי משותף (co-expression), כרייה של טקסטים (text mining), סביבת גנים, היתוך גנים והתרחשות משותפת של גנים.
ציון האינטראקציה המינימלי הנדרש נקבע על 0.400, המקביל לרמת ביטחון בינונית. לא נוספו אינטראקטורים נוספים של מעטפת ראשונה או שנייה; לפיכך, הרשת הכילה רק חלבונים המקודדים על ידי ה-DEGs המשותפים שהוגשו. קצוות הרשת הוצגו באמצעות מצב ביטחון (confidence mode) ויובאו כקובץ ערכים מופרדים בטאבים (TSV) המכיל את החלבונים המקיימים אינטראקציה ואת ציוני ה-STRING המשולבים. ציוני הביטחון של STRING מייצגים את רמת הביטחון בקיומה של אסוציאציה, ולא את העוצמה או חוזק הקישור של האינטראקציה.
קובץ רשת ה-STRING יוון לתוך Cytoscape גרסה 3.10.0 (RRID:SCR_003032)34. צמתים ללא כל אינטראקציה עם חלבון מוגש אחר הוסרו לפני ניתוח הטופולוגיה של הרשת35. הרשת שנותרה טופלה כרשת לא מכוונת. ציוני השילוב של STRING נשמרו כמאפייני קשת לצורך ויזואליזציה, בעוד שדירוגי cytoHubba הופקו באמצעות הגדרות טופולוגיות לא שקולות כברירת מחדל. רשת ה-PPI שהתקבלה מוצגת ב-איור 4B.
גנים מרכזיים (Hub genes) דורגו באמצעות cytoHubba גרסה 0.1 (RRID:SCR_017677) באמצעות שישה אלגוריתמים: Maximal Clique Centrality (MCC), Maximum Neighborhood Component (MNC), Edge Percolated Component (EPC), Degree, Closeness, ו-Radiality36. עבור כל אלגוריתם, הגנים דורגו בסדר יורד, ועשרת הגנים המובילים נשמרו. מועמדים לגנים מרכזיים ברשת הוגדרו באמצעות חיתוך קפדני של שש רשימות העשירייה הראשונה. לפיכך, גן נשמר כגנ מרכזי ברשת רק כאשר הוא הופיע בין עשרת הגנים המובילים שהופקו על ידי כל ששת האלגוריתמים. הדירוגים והליך החיתוך יוצאו ואורכבו. עשרת הגנים המובילים שזוהו על ידי כל אלגוריתם של cytoHubba מוצגים ב-טבלה 3.
| דירוג | מרכזיות קליקה מקסימלית (MCC) | מרכיב שכנות מקסימלי (MNC) | מרכיב חלחול קצוות (EPC) | דרגה | קרבה | רדיאליות |
| 1 | RSAD2 | RSAD2 | RSAD2 | RSAD2 | RSAD2 | RSAD2 |
| 2 | RTP4 | RTP4 | RTP4 | RTP4 | RTP4 | RTP4 |
| 3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 |
| 4 | IFI27 | IFI27 | IFI27 | IFI27 | IFI27 | IFI27 |
| 5 | IFI44 | IFI44 | IFI44 | IFI44 | IFI44 | IFI44 |
| 6 | GBP1 | GBP1 | GBP1 | GBP1 | GBP1 | GBP1 |
| 7 | MX1 | MX1 | MX1 | MX1 | MX1 | MX1 |
| 8 | OAS1 | OAS1 | OAS1 | OAS1 | OAS1 | OAS1 |
| 9 | IFIT1 | IFIT1 | IFIT1 | IFIT1 | IFIT1 | IFIT1 |
| 10 | CXCL11 | CXCL11 | CXCL11 | CXCL11 | CXCL11 | CXCL11 |
טבלה 3: 10 גני ה-hub המובילים שזוהו על ידי שישה אלגוריתמי דירוג של cytoHubba.
הגנים בעלי הביטוי השונה המשותפים דורגו באמצעות שישה אלגוריתמים של טופולוגיית רשת המיושמים בתוסף cytoHubba של Cytoscape. 10 הגנים בעלי הדירוג הגבוה ביותר שהופקו על ידי כל אלגוריתם מוצגים להשוואה בין Maximal Clique Centrality (MCC), Maximum Neighborhood Component (MNC), Edge Percolated Component (EPC), Degree, Closeness ו-Radiality.
רגרסיית LASSO לזיהוי גנים מרכזיים:
רגרסיה לוגיסטית מסוג LASSO בוצעה באופן עצמאי במאגרי הנתונים למשלוח (discovery) של SLE ו-RPL באמצעות glmnet גרסה 4.1-8 (RRID:SCR_015505). מטריצת המנבאים כללה את ערכי הביטוי הנורמליים של המועמדים למרכזי הרשת (hub candidates), כאשר הדגימות בשורות והגנים בעמודות. מצב מחלה קודד כ-1 ומצב ביקורת כ-0. מודל ליניארי כללי בינומי עם עונש LASSO טהור הותאם באמצעות family = "binomial" ו-alpha = 1. משתני המנבאים עברו סטנדרטיזציה פנימית באמצעות standardize = TRUE, ונכלל אינטרספט (intercept). הקצאות של 10-fold מרובדות לפי מחלקה הופקו בנפרד עבור מאגרי הנתונים של SLE ו-RPL באמצעות קוד R בסיסי מותאם אישית. בתוך כל רבד של מצב מחלה, אינדקסי הדגימות הוחלפו באופן אקראי והופצו באופן שווה ככל האפשר בין 10 הקיפולים באמצעות sample(rep(seq_len(10), length.out = n)). גרעין אקראי (random seed) של 123 נקבע לפני יצירת הקצאות הקיפולים עבור כל מאגר נתונים כדי להבטיח שחזוריות. מכיוון שכל קבוצת מצב מחלה הכילה יותר מ-10 דגימות, כל קיפול של תיקוף צולב (cross-validation) כלל הן מקרים והן ביקורות. וקטורי המספרים השלמים שהתקבלו (foldid_sle ו-foldid_rpl) סופקו לארגומנט foldid של cv.glmnet(), ואותן הקצאות קיפולים שימשו עבור כל ערכי ה-λ שנבחנו בתוך מאגר הנתונים המתאים.
המודלים הותאמו באמצעות family = "binomial", alpha = 1, nfolds = 10, type.measure = "deviance", standardize = TRUE, intercept = TRUE, nlambda = 100, thresh = 1 × 10⁻7, ו-maxit = 100000. פרמטר הענישה נבחר באמצעות lambda.min, שהוגדר כערך ה-lambda המניב את הממוצע המינימלי של ה-binomial deviance בבדיקה צולבת. הערך השמרני יותר lambda.1se, שהוגדר כערך ה-lambda הגבוה ביותר בטווח של טעות תקנית אחת מהשגיאה המינימלית של הבדיקה הצולבת, תועד כתוצאת רגישות. הליך ה-LASSO הוחל בנפרד על GSE61635 ועל GSE165004. גנים עם מקדמים שאינם אפס בשני המודלים הספציפיים למחלה הוגדרו כגנים מועמדים משותפים שנבחרו ב-LASSO. על ידי הכנסת מונח רגולריזציית L1, השיטה מקטינה ביעילות את המקדמים של גנים בעלי מידע מועט לאפס, ובכך מבצעת בחירת תכונות37. פרופילי המקדמים ועקומות הבדיקה הצולבת של 10-fold עבור מערכי הנתונים למשלוח של SLE ו-RPL מוצגים ב-איור 5.
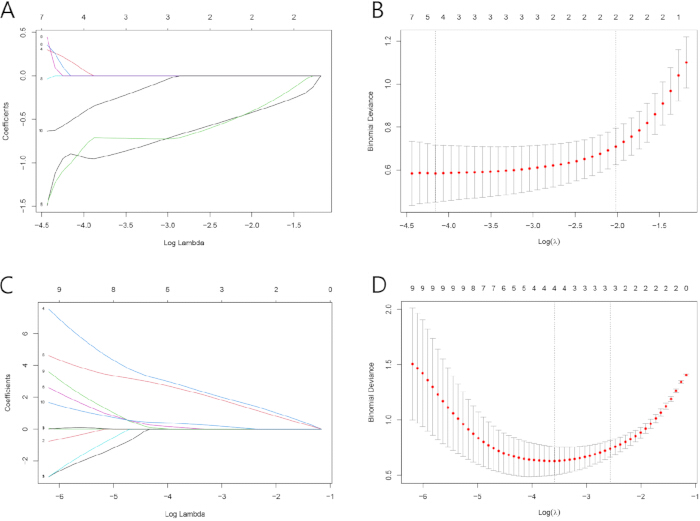
איור 5ניתוח רגרסיה באמצעות LASSO (Least Absolute Shrinkage and Selection Operator) של הגנים המהווים צמתי רשת (hub genes).
(A) פרופילי מקדמים שהופקו באמצעות רגרסיה לוגיסטית מסוג LASSO (least absolute shrinkage and selection operator) עבור מערך נתוני הגילוי של לופוס אריתמטוזי סיסטמי (SLE) (GSE61635). (B) עקומת אימות צולב בעשרת מקפלים (Ten-fold cross-validation) ששימשה לקביעת פרמטר הענישה האופטימלי (λ) עבור מודל ה-SLE. (C) פרופילי מקדמים שהופקו באמצעות רגרסיה לוגיסטית של LASSO עבור מערך הנתונים לגילוי של הפלות חוזרות (RPL) (GSE165004). (D) עקומת תיקוף צולב בעשרה קיפולים ששימשה לקביעת פרמטר הענישה האופטימלי (λ) עבור מודל ה-RPL. המספרים לאורך ציר ה-x העליון מציינים את מספר מקדמי הרגרסיה שאינם אפס בכל ערך של λהקווים המקווקוים האנכיים מציינים λ_דקות ו- λ_1שנייה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
תיקוף הערך האבחנתי של הגנים המרכזיים:
דפוסי הביטוי של הגנים המועמדים שנבחרו באמצעות LASSO הוערכו במאגר הנתונים העצמאי של SLE (מספר GSE50772) ובמאגר הנתונים העצמאי של RPL (מספר GSE198700). מאגרי נתונים חיצוניים שימשו רק לאחר שהושלם תהליך בחירת הגנים המועמדים ב-GSE61635 וב-GSE165004. לא בוצעו בחירות תכונות נוספות או התאמות מודל במאגרי נתוני התיקוף. ביטוי הגנים המועמדים הושווה בין החולים לבקרה באמצעות מבחן Wilcoxon rank-sum דו-זנבי. כאשר נבדקו יותר מגנים מועמדים אחד בתוך מאגר נתונים, ערכי ה-P שהתקבלו תוקנו באמצעות הליך Benjamini–Hochberg. גן מועמד נחשב ככזה ששוחזר חיצונית כאשר ביטויו היה שונה באופן מובהק בין החולים לבקרה לאחר תיקון לבדיקות מרובות, וכיוון הביטוי שלו היה עקבי עם מאגר נתוני הגילוי המתאים. דפוסי הביטוי של הגנים המועמדים במאגרי נתוני הגילוי והתיקוף מוצגים ב-איור 6.
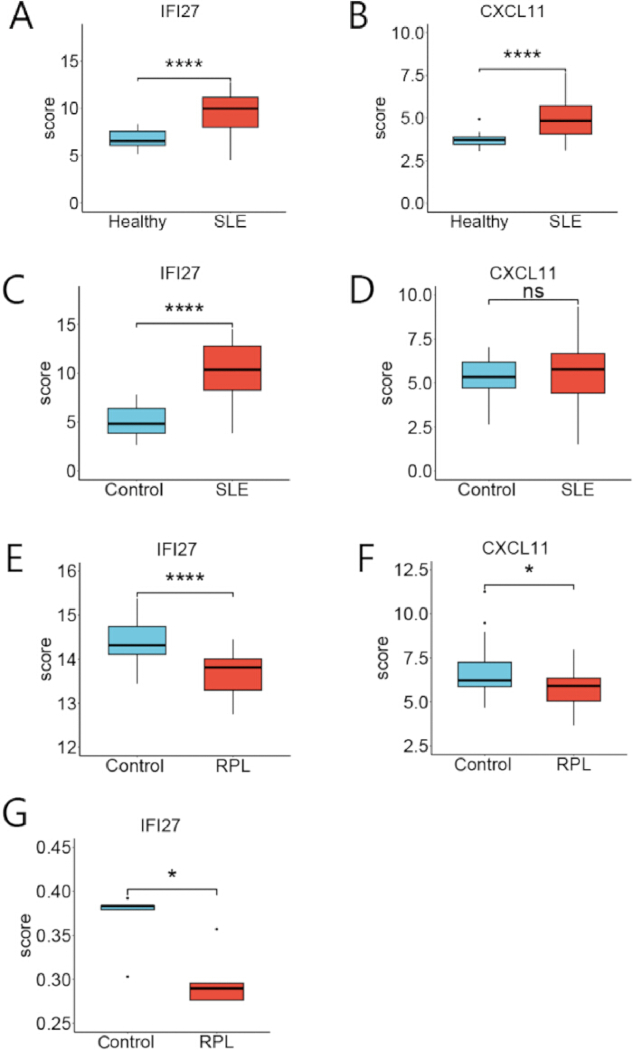
איור 6ביטוי של IFI27 ו-CXCL11 במאגרי הנתונים של הגילוי והתיקוף.
(A,B) ביטוי של IFI27 ו-CXCL11, בהתאמה, במערך נתוני הגילוי של לופוס סיסטמי (SLE) (GSE61635). (C,D) ביטוי של IFI27 ו-CXCL11, בהתאמה, במערך נתוני האימות העצמאי של SLE (GSE50772). (E,F) ביטוי של IFI27 ו-CXCL11, בהתאמה, במערך נתוני הגילוי של הפסד הריון חוזר (RPL) (GSE165004). (G) ביטוי של IFI27 במערך נתוני האימות העצמאי של RPL (GSE198700). ביטוי הגנים הושווה בין הקבוצות באמצעות מבחן Wilcoxon rank-sum דו-זנבי. P הערכים הותאמו באמצעות שיטת Benjamini–Hochberg כאשר נבדקו מספר גנים מועמדים בתוך אותו סט נתונים. P < 0.05; **** P < 0.0001; ns, לא מובהק. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
ניתוחי מאפייני תפעול של מקלט (ROC) בוצעו באמצעות pROC גרסה 1.18.5 (RRID:SCR_024286)38. עקומות ROC נפרדות הופקו עבור כל גן מועמד בכל מערך נתונים של גילוי. השטח תחת עקומת ה-ROC (AUC) ומרווח הסמך הדו-צדדי של 95% שלו חושבו באמצעות שיטת DeLong. נקודת החיתוך האבחנתית המחקרית נקבעה באמצעות מדד Youden המקסימלי. מרווחי סמך עבור נקודת החיתוך, הרגישות והסגוליות חושבו באמצעות 2,000 חזרות bootstrap מרובד כאשר ה-random seed נקבע ל-123. ה-AUC שימש כמדד להבחנה שאינו תלוי בסף39. מכיוון שמערכי הנתונים היו רטרוספקטיביים והופקו באמצעות רקמות, פלטפורמות ונהלי נורמליזציה שונים, נקודות החיתוך שנגזרו ממדד Youden חושבו בנפרד בתוך כל מערך נתונים ונתפסו כספים מחקריים ספציפיים למערך הנתונים. הן לא נחשבו כנקודות חיתוך קליניות סטנדרטיות ולא הועברו ישירות בין פלטפורמות. תוצאות ה-ROC החיצוניות מייצגות תיקוף טרנסקריפטומי ולא תיקוף קליני פרוספקטיבי. pROC תומך במרווחי סמך של DeLong עבור AUCs ובאופטימיזציה של מדד Youden באמצעות ()coords, בעוד שמרווחי סמך עבור קואורדינטות ROC יכולים להיות מוערכים באמצעות דגימה מחדש של bootstrap מרובד. עקומות ה-ROC וסיכומי ההבחנה של הגנים המועמדים במערכי נתוני הגילוי של SLE ו-RPL מוצגים ב-איור 7.
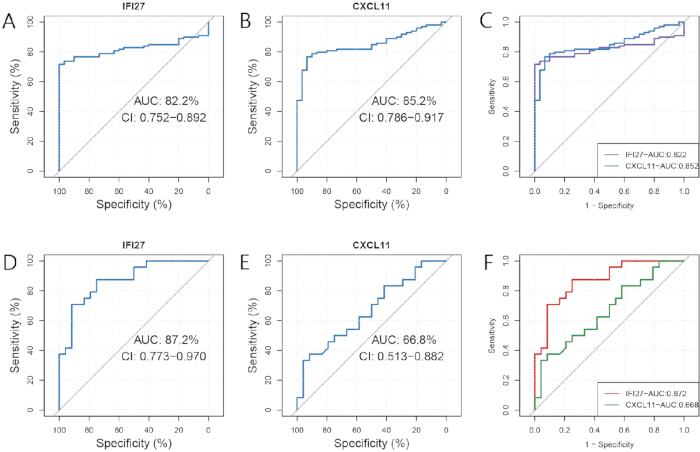
איור 7ניתוח עקומת מאפייני תפקודי מקלט (ROC) של הגנים המועמדים.
(A) עקומת מאפייני מקלט (ROC) עבור IFI27 במערך הנתונים של הגילוי עבור לופוס אריתמטוזי סיסטמי (SLE). (B) עקומת ROC עבור CXCL11 במערך הנתונים של הגילוי עבור SLE. (C) סיכום של הביצועים האבחנתיים של IFI27 ו-CXCL11 במערך הנתונים של הגילוי עבור SLE. (D) עקומת ROC עבור IFI27 במערך הנתונים של הגילוי עבור הפסדי הריון חוזרים (RPL). (E) עקומת ROC עבור CXCL11 במערך הנתונים של הגילוי עבור RPL. (F) סיכום של הביצועים האבחנתיים של IFI27 ו-CXCL11 במערך הנתונים של הגילוי עבור RPL. ערכי השטח תחת העקומה (AUC) מוצגים עם רווחי סמך (CIs) של 95%. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
חדירה חיסונית באמצעות ssGSEA:
בהתחשב בתפקידם של הפרעות בוויסות תאי מערכת החיסון בתהליכי הפתוגנזה של SLE ו-RPL40,41, בוצע עישור חישובי של תאי מערכת החיסון במערכי הנתונים של הגילוי GSE61635 ו-GSE165004. הניתוח בוצע בנפרד עבור כל מערך נתונים, ומערכי הנתונים לא מוזגו. אוסף חתימות הגנים של תאי מערכת החיסון כלל את מערכי הגנים המסמנים עבור 28 אוכלוסיות של תאי מערכת החיסון שתוארו על ידי Charoentong et al.42. טבלת חתימות הגנים המקורית מהנספחים הומרה לרשימה של מערכי גנים בעלי שם באמצעות סמלי גנים רשמיים של בני אדם. סמלים כפולים בתוך כל מערך גנים הוסרו. גנים שהיו חסרים במטריצת הביטוי התואמת נפסלו, ומערכי גנים שהכילו פחות מחמישה גנים תואמים לאחר מיפוי המזהים הוצאו ממערך הנתונים ההוא. ניתוח עישור מערך גנים לדגימה בודדת (ssGSEA) בוצע באמצעות GSVA גרסה 1.52.3 (RRID:SCR_021058) ו-GSEABase גרסה 1.66.0. בגרסה 1.52.3 של GSVA נדרש אובייקט פרמטרים ספציפי לשיטה. נעשה שימוש בפרמטרים הבאים: minSize = 5, maxSize = 500, alpha = 0.25, normalize = TRUE, ו-checkNA = "yes.”
פרמטר ה-alpha נקבע ל-0.25, ונבחרה אפשרות לנורמליזציה סופית של ציון ה-ssGSEA. קבוצות גנים הוגבלו ל-5–500 גנים לאחר התאמה למטריצת הביטוי. נעשה שימוש בביצוע בשרשור בודד (Single-threaded execution) כדי להבטיח חישוב עקבי בין מערכות שונות. פרמטר ה-kcdf לא היה בשימוש מכיוון שאינו פרמטר של פרוצדורת ssgseaParam() בגרסה 1.52.3 של GSVA. שיטת ssGSEA מפיקה ציוני העשרה של קבוצות גנים ברמת דגימה יחסית, ולא ספירות של תאי חיסון שנמדדו ניסיונית או שברים מוחלטים של תאים43. זרימת העבודה של GSVA 1.52.3 דורשת אובייקט פרמטרים ספציפי למתודה, ופרמטרי ה-ssGSEA כוללים את alpha, נורמליזציה של הציון ומגבלות גודל עבור קבוצת הגנים.
עבור כל חתימה של תאי מערכת החיסון, השווים ציוני ssGSEA בין קבוצת המחלה לקבוצת הביקורת באמצעות מבחן Wilcoxon rank-sum דו-זנבי. P הערכים עבור 28 ההשוואות בין סוגי התאים הותאמו בנפרד בתוך כל מערך נתונים באמצעות שיטת Benjamini–Hochberg. חתימות של תאי מערכת החיסון עם ערך מותאם P ערך < 0.05 נחשבו כבעלי העשרה דיפרנציאלית.
חישובי מתאמי דרג של Spearman בוצעו בין ביטוי של גנים מועמדים לבין ציון ה-ssGSEA של כל חתימת תאי חיסון בתוך כל מערך נתונים. ערכי P של המתאמים הותאמו באמצעות שיטת Benjamini–Hochberg עבור כל השילובים של גנים מועמדים ותאי חיסון בתוך אותו מערך נתונים. מתאמים נחשבו למשמעותיים סטטיסטית כאשר ערך P מותאם היה < 0.05. מטריצות מתאם הוצגו ויזואלית באמצעות ggcorrplot גרסה 0.1.4.1, וגרפי השוואות בין קבוצות הופקו באמצעות ggplot2 גרסה 3.5.1.
מדדי ssGSEA נורמליים גולמיים שימשו לכל הבדיקות הסטטיסטיות. מפות חום וויזואליזציות מצטברות שימשו להצגה תיאורית בלבד. המדדים לא תוארו כפרופורציות ישירות של תאי חיסון, והקשרים שנצפו פורשו כמתאמים חישוביים ולא כאינטראקציות תא-גן שהוכחו ניסיונית. פרופילי העשירה של חתימת תאי החיסון, השוואות בין קבוצות ומתאמים עם ביטוי של גנים מועמדים מוצגים ב-איור 8.
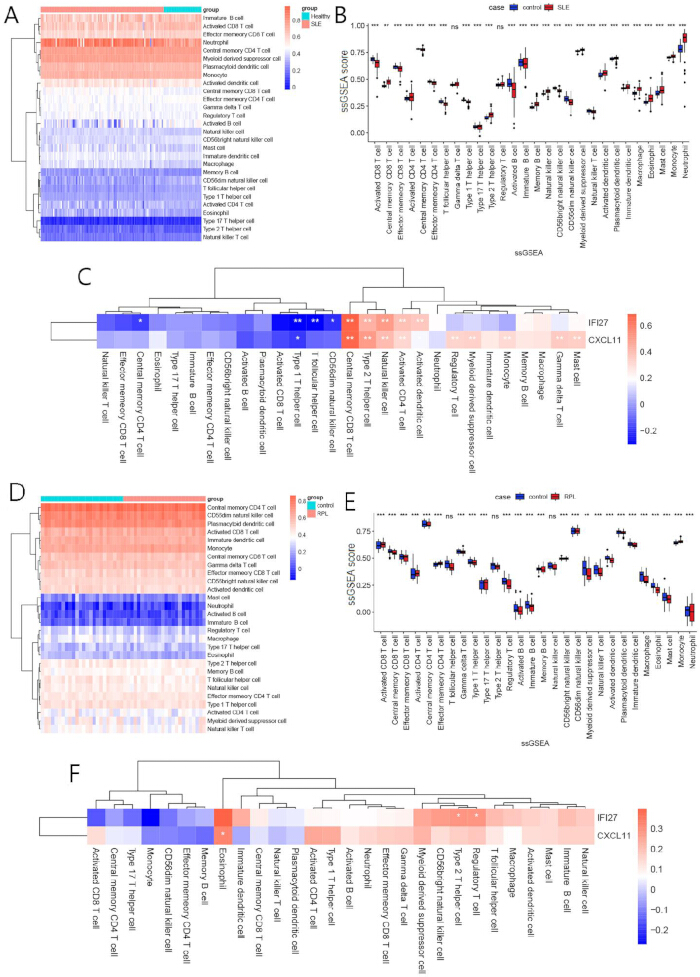
איור 8. העשרה של חתימות תאי חיסון ומתאמים עם הגנים המועמדים המשותפים בלופוס אריתמטוזי סיסטמי (SLE) והפגות חוזרות (RPL).
(A) מפת חום של קיבץ היררכי של ציוני ניתוח העשרת קבוצת גנים לדגימה בודדת (ssGSEA) עבור 28 חתימות של תאי חיסון במערך הגילוי של לופוס אריתמטוזי סיסטמי (SLE). (B) השוואה בין ציוני ssGSEA של חתימות תאי חיסון בין חולים עם SLE למבקרים בריאים. (C) מפת חום של מתאם Spearman המראה את הקשרים בין ביטוי של IFI27 ו-CXCL11 לבין 28 ציוני ssGSEA של חתימות תאי חיסון במערך הגילוי של SLE. (D) מפת חום של קיבץ היררכי של ציוני ssGSEA עבור 28 חתימות של תאי חיסון במערך הגילוי של הפגות חוזרות (RPL). (E) השוואה בין ציוני ssGSEA של חתימות תאי חיסון בין חולים עם RPL למבקרים פוריים. (F) מפת חום של מתאם Spearman המראה את הקשרים בין ביטוי של IFI27 ו-CXCL11 לבין 28 ציוני ssGSEA של חתימות תאי חיסון במערך הגילוי של RPL. מתאמים חושבו באמצעות מתאם הדרג של Spearman, וערכי P הותאמו באמצעות שיטת Benjamini–Hochberg. P < 0.05; ** P < 0.01; *** P < 0.001; ns, לא מובהק. נא ללחוץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
תוצאות
ניתוח MR
לאחר בחירת המכשירים והרמוניזציה של הנתונים, 16 SNPs נשמרו עבור ניתוח ה-MR קדימה, שבו SLE הוגדר כחשיפה ומספר ההשמדות הספונטניות הוגדר כתוצאה. מידע מפורט על המשתנים האינסטרומנטליים מופיע ב-Supplementary Table 1. לכל ה-SNPs שנשמרו היה סטטיסטיקת F הגבוהה מ-10, מה שמעיד כי הסיכוי להטיה עקב מכשיר חלש הוא נמוך. כל SNP שנשמר נסרק גם באמצעות PhenoScanner V2, ולא זוהה SNP הקשור ל-aPL. ניתוח MR-PRESSO לא זיהה חריגים. מבחן Cochran’s Q לא הראה הטרוגניות משמעותית בין ההערכות הספציפיות ל-SNP (Q = 16.12, P = 0.31); לפיכך, הוחל מודל IVW בעל אפקטים קבועים. מבחן ה-intercept של MR-Egger לא הצביע על פלייוטרופיה אופקית כיוונית (P = 0.69). ניתוח ה-IVW הראה קשר חיובי מובהק סטטיסטית אך צנוי כמותית בין SLE שנחזה גנטית לבין מספר ההשמדות הספונטניות (odds ratio [OR] = 1.01, 95% confidence interval [CI] = 1.00–1.02, P < 0.01; Figure 2A). הערכות האפקט שהתקבלו באמצעות רגרסיית MR-Egger (OR = 1.01, 95% CI = 1.00–1.03, P = 0.16), שיטת החציוני המשוקלל (OR = 1.01, 95% CI = 1.00–1.02, P = 0.17) ושיטת השומה המשוקללת (OR = 1.01, 95% CI = 0.99–1.03, P = 0.42) היו עקביות כיוונית עם הערכת ה-IVW, אף שלא הגיעו באופן פרטני למובהקות סטטיסטית. ניתוח leave-one-out הראה כי השמעה של SNP בודד כלשהו לא שינתה באופן מהותי את ההערכה המאוחדת, וגרף המשפך הסימטרי בקירוב לא סיפק ראיה ויזואלית לכך שהתוצאה נבעה מפלייוטרופיה כיוונית בולטת. תרשים הפיזור התואם, תרשים היער (forest plot) הספציפי ל-SNP, ניתוח ה-leave-one-out וגרף המשפך מוצגים ב-Supplementary Figures 1–4.
בניתוח MR ההפוך, 16 SNPs נשמרו לאחר בחירת המכשירים, ולכולם היה סטטיסטי F הגבוה מ-10 (Supplementary Table 2). ניתוח MR-PRESSO לא זיהה ערכים חריגים. מבחן Cochran’s Q לא הראה הטרוגניות מובהקת (Q = 13.41, P = 0.50), ומבחן ה-intercept של MR-Egger לא סיפק ראיות לפלייוטרופיה אופקית כיוונית (P = 0.41). הערכת ה-IVW לא תמכה בקשר בין מספר ההפלות הספונטניות שנחזה גנטית לבין הסיכון ל-SLE (OR = 0.93, 95% CI = 0.21–4.23, P = 0.93; Figure 2B). יחד, תוצאות ה-MR תומכות בקשר מתון בכיוון הישיר, מ-SLE שנחזה גנטית למספר ההפלות הספונטניות, בעוד שהניתוח ההפוך לא תמך בקשר בין מספר ההפלות הספונטניות שנחזה גנטית לבין הסיכון ל-SLE.
ניתוח ביואינפורמטיקה
ניתוח ביטוי דיפרנציאלי:
ניתוח ביטוי דיפרנציאלי של GSE61635 זיהה 976 DEGs בין קבוצת ה-SLE לקבוצת הביקורת הבריאה, כולל 678 גנים עם ביטוי מוגבר (upregulated) ו-298 גנים עם ביטוי מופחת (downregulated) (איור 3C). ניתוח של GSE165004 זיהה 1,249 DEGs בין קבוצת ה-RPL לקבוצת הביקורת, כולל 578 גנים עם ביטוי מוגבר ו-671 גנים עם ביטוי מופחת (איור 3D). במפות חום (Heatmaps) המוצגות ב-איור 3A וב-איור 3B מוצגים 50 ה-DEGs המשמעותיים ביותר בשני מאגרי הנתונים של שלב הגילוי. בנוסף, זוהו 59 DEGs משותפים בשני מאגרי הנתונים (איור 3E). DEGs משותפים אלו סיפקו את קבוצת הגנים ששימשה לניתוחי העשרה פונקציונלית וניתוחי רשת בהמשך.
ניתוח העשרה תפקודי של DEGs בחיתוך:
59 ה-DEGs המשותפים הוכפפו לניתוחי העשרה של מסלולי GO ו-KEGG באמצעות DAVID. בתוך קטגוריית התהליך הביולוגי, ה-DEGs המשותפים היו מועשרים בתגובת הגנה נגד וירוס, תגובה לווירוס, בקרה שלילית של רפליקציית הגנום הוויראלי, תגובה חיסונית מולדת אנטי-ויראלית, בקרה שלילית של תהליך האפופטוזיס ואדהזיה של תאים. מונחי הרכיב התאי המועשרים כללו אזור חוץ-תאי, ממברנת הרשת האנדופלזמית, שלד התא מאקטין וממברנה. קשירת יוני סידן זוהתה בין מונחי התפקוד המולקולרי המועשרים. ניתוח KEGG הראה העשרה במסלולים הקשורים להפטיטיס C ושפעת A (איור 4A). ממצאים אלו מצביעים על כך שה-DEGs המשותפים היו קשורים בעיקר לתהליכים ביולוגיים אנטי-ויראליים וקשורי חיסון, ובכך סיפקו הקשר תפקודי לגנים המשותפים למערכי הנתונים של SLE ו-RPL.
רשת PPI וזיהוי גנים מרכזיים (hub genes)
59 הגנים עם הביטוי הדיפרנציאלי (DEGs) המשותפים הועלו ל-STRING כדי להקים רשת של אינטראקציות בין חלבונים (PPI) תוך שימוש בציון אמון מינימלי לאינטראקציה של 0.400. הרשת שהתקבלה הכילה 59 צמתים ו-80 קשתות. הרשת יובאה ל-Cytoscape גרסה 3.10.0 לצורך ויזואליזציה, וצמתים מבודדים הוסרו לפני ביצוע הניתוח הטופולוגי (איור 4Bדירוג גנים מרכזיים (Hub-genes) בוצע באמצעות תוסף cytoHubba. יושמו שישה אלגוריתמים: Maximal Clique Centrality (MCC), Maximum Neighborhood Component (MNC), Edge Percolated Component (EPC), Degree, Closeness, ו-Radiality. אותם 10 גנים זוהו בקרב הגנים בעלי הדירוג הגבוה ביותר שהופקו על ידי כל ששת האלגוריתמים: RSAD2, RTP4, IFIT3, IFI27, IFI44, GBP1, MX1, OAS1, IFIT1, ו-CXCL11 (טבלה 3גנים אלה נשמרו, על כן, כמועמדים למרכזי רשת (hubs) עבור רגרסיית LASSO בהמשך.
רגרסיית LASSO זיהתה את IFI27 ו-CXCL11 כגנים מועמדים משותפים
עשרת הגנים המועמדים לתפקיד גני-צומת (hub genes) הוכפחו לניתוח רגרסיית LASSO במאגרי הנתונים של קבוצות הגילוי של SLE ו-RPL. במאגר הנתונים של SLE, ארבעה גנים שמרו על מקדמים שאינם אפס בערך למדא הנבחר: IFIT3, IFI27, IFI44 ו-CXCL11, עם מקדמים של 2.575, 0.057, 2.359 ו-0.307, בהתאמה (איור 5A,ב׳). במערך הנתונים של ה-RPL, ארבעה גנים שימרו מקדמים שאינם אפס: IFI27, GBP1, OAS1 ו-CXCL11, עם מקדמים של 0.897-, 0.167, 1.007- ו-0.519- בהתאמה (איור 5C,D). השוואה בין הגנים שנבחרו על ידי שני המודלים הספציפיים למחלה זיהתה את IFI27 ו-CXCL11 כגנים המועמדים המשותפים שנבחרו בשיטת LASSO. שני גנים אלו הוערכו לאחר מכן במאגרי הנתונים של שלב הגילוי (discovery) והתיקוף החיצוני (external validation).
תיקוף חיצוני של ביטוי IFI27 ו-CXCL11
דפוסי הביטוי של שני הגנים המועמדים הוערכו באמצעות מערכי נתונים עצמאיים לתיקוף, GSE50772 ו-GSE198700, שהושגו ממאגר ה-GEO. ב-GSE61635, הן IFI27 והן CXCL11 הראו עלייה משמעותית בביטוי (upregulation) בקבוצת ה-SLE בהשוואה לבקרות בריאות (איור 6A,B). במערך נתוני התיקוף העצמאי ל-SLE (GSE50772), IFI27 נותר עם עלייה משמעותית בביטוי (איור 6C), בעוד ש-CXCL11 לא הפגין הבדל משמעותי בין הקבוצות (איור 6D). במערך נתוני הגילוי ל-RPL (GSE165004), הן IFI27 והן CXCL11 הראו ירידה משמעותית בביטוי (downregulation) בקבוצת ה-RPL בהשוואה לבקרות (איור 6E,F). במערך נתוני התיקוף העצמאי ל-RPL (GSE198700), IFI27 נותר עם ירידה משמעותית בביטוי בקבוצת ה-RPL (איור 6G), בעוד ש-CXCL11 לא זוהה. באופן כללי, IFI27 הראה ביטוי דיפרנציאלי עקבי הן במערכי נתוני הגילוי והן במערכי התיקוף של SLE ו-RPL. לעומת זאת, CXCL11 לא שוחזר באופן עקבי במערכי התיקוף החיצוניים. בהתאם לכך, IFI27 תועדף כסמן ביולוגי מועמד משותף לניתוחים הבאים.
הערכה גישושית של הבחנה אבחנתית
ניתוח עקומת מאפייני תפעול המקלט (ROC) בוצע כדי להעריך את היכולת של ביטוי IFI27 ו-CXCL11 להבחין בין דגימות מחלה לבקרות במאגרי הנתונים הטרנסקריפטומיים רטרוספקטיביים שנותחו. עבור SLE, ביטוי IFI27 הניב שטח תחת עקומת ה-ROC (AUC) של 0.822 (95% CI = 0.752–0.892; איור 7A), בעוד ש-CXCL11 הניב AUC של 0.852 (95% CI = 0.786–0.917; איור 7B). השוואה בין עקומות ה-ROC לשני הגנים המועמדים במאגר הנתונים של SLE מוצגת ב-איור 7C. עבור RPL, ביטוי IFI27 הניב AUC של 0.872 (95% CI = 0.773–0.970; איור 7D), בעוד ש-CXCL11 הניב AUC של 0.668 (95% CI = 0.513–0.882; איור 7E). השוואה בין עקומות ה-ROC לשני הגנים המועמדים במאגר הנתונים של RPL מוצגת ב-איור 7F. IFI27 הדגים ערכי AUC הגבוהים מ-0.80 בשני מאגרי נתוני המחלה והראה תיקוף חיצוני עקבי יותר מאשר CXCL11 על פני מאגרי נתוני הביטוי. ממצאים אלו תומכים ב-IFI27 כסמן ביולוגי מועמד להערכה נוספת. עם זאת, מכיוון שניתוחי ה-ROC בוצעו באמצעות מאגרי נתונים טרנסקריפטומיים ציבוריים רטרוספקטיביים, יש לפרש את התוצאות כראיות גישושית להבחנה טרנסקריפטומית ולא כתיקוף אבחנתי קליני פרוספקטיבי.
הערכה חישובית של חדירה חיסונית
בוצע ssGSEA כדי להעריך את העשירה של 28 חתימות תאי חיסון במאגרי הגילוי GSE61635 ו-GSE165004. מפות חום של עשירה של תאי חיסון עבור מאגרי ה-SLE וה-RPL מוצגות ב-איור 8A,D, בהתאמה, בעוד שהשוואות הקבוצות התואמות של ציוני ssGSEA מוצגות ב-איור 8B,E. במאגר ה-SLE, מספר חתימות של תאי חיסון נבדלו באופן מובהק בין חולים ב-SLE לבין ביקורות בריאות, כולל אלו המייצגות תאי CD8+ T, תאי CD4+ T, תאי B, תאים דנדריטיים, תאי T מסייעים מסוג 1 (Th1), תאי T מסייעים מסוג 2 (Th2), תאי T מסייעים מסוג 17 (Th17), תאי natural killer, מקרופאגים, אאוזינופילים, תאי מאסט, מונוציטים ונויטרופילים (איור 8B). במאגר ה-RPL, ציוני ה-ssGSEA עבור תאי CD8+ T מופעלים, תאי CD4+ T מופעלים, תאי CD4+ T זיכרון אפקטורים, תאי Th17 ומונוציטים היו גבוהים יותר בקבוצת ה-RPL מאשר בקבוצת הביקורת. לעומת זאת, ציוני ה-ssGSEA עבור תאי T רגולטוריים (Treg) ומקרופאגים היו נמוכים יותר בקבוצת ה-RPL מאשר בקבוצת הביקורת (איור 8E). ניתוח קורלציה הראה כי במאגר ה-SLE, ביטוי של IFI27 ו-CXCL11 היה במתאם חיובי עם ציוני ה-ssGSEA של תאי CD4+ T מופעלים, תאי natural killer, תאי Th2 ותאי CD8+ T זיכרון מרכזי, ובמתאם שלילי עם ציון ה-ssGSEA של תאי Th1 (איור 8C). במאגר ה-RPL, ביטוי של IFI27 היה במתאם חיובי עם ציוני ה-ssGSEA של תאי Treg ותאי Th2, בעוד שביטוי של CXCL11 היה במתאם חיובי עם ציון ה-ssGSEA של אאוזינופילים (איור 8F).
זמינות נתונים:
במחקר זה לא הופקו נתונים ראשוניים חדשים ממשתתפים אנושיים. כל הניתוחים התבססו אך ורק על סטטיסטיקות סיכום של מחקרי אסוציאציה גנומיים (GWAS) ומערכי נתונים טרנסקריפטומיים הזמינים לציבור. סטטיסטיקות הסיכום של GWAS עבור SLE הושגו מ-FinnGen Release 11 (מספר גישה: finngen_R11_L12_LUPUS). סטטיסטיקות סיכום למספר ההפלות הספונטניות הושגו ממשאב IEU OpenGWAS (מספר גישה: ukb-b-419), המבוסס על נתוני UK Biobank. מערכי הנתונים הטרנסקריפטומיים הושגו מ-Gene Expression Omnibus (GEO) של המרכז הלאומי למידע ביולוגי (NCBI) תחת מספרי גישה GSE61635, GSE165004, GSE50772, ו-GSE198700. ניתן לגשת למערכי הנתונים הזמינים לציבור במאגרי המידע הבאים:
-- FinnGen Release 11: https://r11.finngen.fi/
-- IEU OpenGWAS: https://gwas.mrcieu.ac.uk/
-- Gene Expression Omnibus (GEO): https://www.ncbi.nlm.nih.gov/geo/
הנתונים המעובדים התומכים בממצאי מחקר זה כלולים במאמר ובחומרים המשלימים שלו. לא נעשה שימוש בנתונים ברמת הפרט או בנתונים המאפשרים זיהוי אישי של המשתתפים, ולא נשמרו נתונים כאלו. תהליך הניתוח בוצע באמצעות תוכנות וחבילות זמינות לציבור כפי שמתואר בפרוטוקול.
קובץ משלים 1. רשימת תיוק (checklist) מלאה לדיווח לפי STROBE-MR.
רשימת תיוק מלאה של Strengthening the Reporting of Observational Studies in Epidemiology Using Mendelian Randomization (STROBE-MR) המציינת היכן כל פריט דיווח מומלץ מופיע בכתב היד. אנא לחצו כאן להורדת קובץ זה.
איור משלים 1. תרשים פיזור של ניתוח רנדומיזציה מנדלית קדימה.
תרשים פיזור המראה את הקשרים בין ההשפעות הגנטיות של פולימורפיזמי נוקלאוטיד יחיד (SNPs) ככלים למדידה על לופוס אריתמטוזי סיסטמי (SLE) ובין מספר ההפלות הספונטניות. כל נקודה מייצגת SNP אחד, כאשר פסי השגיאה האופקיים והאנכיים מצביעים על השגיאות הסטנדרטיות של הערכות השפעת ה-SNP. קווי הרגרסיה תואמים לשיטות הרנדומיזציה המנדלית של משקל שווריאנס הפוך, MR-Egger, חציונ משוקלל ושכיח משוקלל. אנא לחץ כאן להורדת הקובץ.
איור משלים 2. הערכות סיבתיות ספציפיות לפולימורפיזם של נוקלאיד בודד מניתוח רנדומיזציה מנדלית קדימה.
תרשים יער (Forest plot) המציג את הערכת ההשפעה הסיבתית עבור כל פולימורפיזם של נוקלאיד בודד (SNP) אינסטרומנטלי על הקשר בין לופוס אריתמטוסה סיסטמית (SLE) לבין מספר ההפלות הספונטניות. נקודות שחורות מייצגות את הערכות ההשפעה הספציפיות ל-SNP עם רווחי סמך של 95%. נקודות אדומות מייצגות את הערכות ההשפעה הסיבתית הכוללות שהתקבלו באמצעות שיטות השקלול של שונות הפוכה ו-MR-Egger. הקו המקווקו האנכי מציין אפקט אפס. אנא לחצו כאן להורדת קובץ זה.
איור משלים 3. ניתוח רגישות של השמיט אחד במיקור (Leave-one-out) עבור ניתוח הרנדומיזציה המנדלית קדימה.
תרשים יער (Forest plot) המציג את תוצאות ניתוח הרגישות של השמיט אחד במיקור, המעריך את הקשר בין לופוס אריתמטוזי סיסטמי (SLE) למספר ההפלות הספונטניות. כל נקודה שחורה מייצגת את אומדן ההשפעה הסיבתית הכולל בשיטת שקלול השונות ההפוכה לאחר החרגה רצופית של פולימורפיזם של נוקליאוטיד בודד (SNP) אינסטרומנטלי אחד, כאשר הקווים האופקיים מציינים את רווחי הסמך של 95% המתאימים. הנקודה האדומה מייצגת את אומדן שקלול השונות ההפוכה הכולל שהתקבל באמצעות כל ה-SNPs האינסטרומנטליים. הקו המקוקו האנכי מציין את אפס ההשפעה. אנא לחץ כאן להורדת קובץ זה.
איור משלים 4. תרשים משפך (Funnel plot) של ניתוח הרנדומיזציה המנדלית קדימה.
תרשים משפך (Funnel plot) המציג את התפלגות הערכות האפקט הסיבתי הספציפי ל-SNP עבור הקשר בין לופוס אריתמטוזי סיסטמי (SLE) לבין מספר ההפלות הספונטניות. כל נקודה מייצגת פולימורפיזם של נוקלאוטיד בודד (SNP) ככלי מדידה (instrumental SNP). הקווים האנכיים מצביעים על הערכות האפקט הסיבתי הכללי שהתקבלו באמצעות שיטות המשקל המשוקלל של השונות ההפוכה (inverse-variance weighted) ו-MR-Egger. ציר ה-y מייצג את ההופכי של השגיאה הסטנדרטית (1/SE). אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה 1. פולימורפיזמים של נוקלאוטיד בודד המשמשים כמשתנים אינסטרומנטליים שנבחרו עבור ניתוח הרנדומיזציה המנדלית קדימה.
הטבלה מפרטת את פולימורפיזמי הנוקליאוטיד הבודד (SNPs) המשמשים ככלי מדידה (instrumental SNPs) בניתוח רנדומיזציה מנדלית קדימה של לופוס מערכתי (systemic lupus erythematosus) ומספר ההפלות הספונטניות, כולל הגן המאושר הקרוב ביותר, כרומוזום, מיקום גנומי, אלל ההשפעה, תדירות אלל ההשפעה, גודל ההשפעה (Beta), וסטיית תקנית (SE), P ערך, וסטטיסטיקת F. מיקומי הכרומוזומים מבוססים על הרכבת הגנום המקורית ששימשה במחקר האיגוד הגנומי (genome-wide association study). סטטיסטיקת F חושבה כ-Beta2/SE2. אנא לחצו כאן כדי להוריד קובץ זה.
טבלה משלימה 2. פולימורפיזם של נוקלאוטיד בודד (SNP) ככלי למחקר בניתוח רנדומיזציה מנדלית הפוכה.
הטבלה מפרטת את פולימורפיזמי הנוקלאוטיד הבודד (SNPs) ששימשו ככלים לניתוח רנדומיזציה מנדלית הפוכה, כאשר מספר ההפלות הספונטניות הוא החשיפה ולופוס אריתמטוס סיסטמי הוא התוצאה; הפרטים כוללים את הגן המאותת הקרוב ביותר, כרומוזום, מיקום גנומי, אלל האפקט, תדירות אלל האפקט, גודל האפקט (Beta), טעות סטנדרטית (SE), ערך P וסטטיסטיקת F. מיקומים כרומוזומליים מבוססים על הרכבת הגנום של המקור ששימשה במחקר אסוציאציה גנומי רחב (GWAS). סטטיסטיקת F חושבה כ-Beta2/SE2. אנא לחצו כאן להורדת הקובץ.
דיון
באמצעות ניתוח MR דו-כיווני בשילוב עם ניתוחים ביו-אינפורמטיים רב-ממדיים, מחקר זה זיהה קשר סיבתי חיובי בין SLE לבין RPL, תוך סריקה שיטתית של ביומרקרים טרנסקריפטומיים משותפים. למיטב ידיעתנו, זהו המחקר הראשון המשלב MR דו-כיווני, ניתוחים טרנסקריפטומיים וניתוחי חדירה חיסונית (immune-infiltration) כדי לבחון קשר זה. למרות שגודל האפקט שנצפה ב-MR היה צנוע (IVW OR = 1.01), הקשר נתמך בעקביות על ידי מספר שיטות MR משלימות וניתוחי רגישות, ללא עדויות להטרוגניות משמעותית, פליוטרופיה אופקית או ערכי קיצון משפיעים, מה שמעיד על כך שהקשר שנצפה הוא חסון מבחינה סטטיסטית אך קטן מבחינה כמותית. לפיכך, יש לפרש את הממצאים הנוכחיים כראיה התומכת בתרומה גנטית צנועה של SLE לרגישות ל-RPL, ולא כאפקט קליני רחב. על ידי שילוב של הסקה סיבתית עם תיקוף טרנסקריפטומי וניתוחי חדירה חיסונית, מחקר זה מספק מסגרת הניתנת לשחזור לתיעדוף ביומרקרים מועמדים עבור הפרעות רבייתיות מורכבות המתווכות על ידי מערכת החיסון. מחקר שנערך במצרים בין השנים 2007 ל-2021, שכלל 123 נשים עם SLE וסך של 201 הריונות, דיווח כי 20.4% מההריונות בנשים עם SLE הסתיימו באובדן עוברי44. מחקרים קודמים הצביעו באופן דומה על כך ש-SLE הוא גורם סיכון חשוב ל-RPL, מכיוון שדיסרגולציה חיסונית עשויה להגביר את הסבירות להפסדת היריון12.
ניתוחים בביואינפורמטיקה גילו כי 59 הגנים בעלי הביטוי השונה (DEGs) המשותפים היו מועשרים בעיקר במסלולים הקשורים לתגובות חיסוניות אנטי-ויראליות, היצמדות תאים ובקרה של אפופטוזיס. זיהום ויראלי עשוי לתרום לפתוגנזה של SLE. חולים עם SLE מראים לעיתים קרובות תפקוד לקוי הן בתגובות החיסון המולדות והן בתגובות החיסון הנרכשות45,46, מה שהופך אותם לרגישים יותר לזיהומים ויראליים. רגישות מוגברת זו עשויה לתרום לאובדן היריון באמצעות מנגנונים כגון דלקת של השילייה ופגיעה בתאי השילייה47. כמרכיב חיוני של השילייה, שינויים באוטופגיה ובהתנהגות הביולוגית של תאי טרופובלסט נקשרו גם הם להתרחשות של RPL48,49. יחד, תצפיות אלו מצביעות על כך ששיבוש חיסוני הקשור ל-SLE עשוי להשפיע על תוצאות ההיריון על ידי השפעה על תפקוד תאי הטרופובלסט. ניתוחים נוספים זיהו את IFI27 ו-CXCL11 כגנים מרכזיים (hub genes) מועמדים המשותפים ל-SLE ול-RPL. עם זאת, IFI27 תועדף לניתוחים הבאים מכיוון שהפגין עקביות ביולוגית רבה יותר במאגרי נתונים בלתי תלויים. למרות ששני הגנים נבחרו על ידי מודל LASSO, רק IFI27 הראה ביטוי שונה עקבי הן במאגרי נתוני הגילוי והן במאגרי נתוני האימות החיצוניים, בעוד ש-CXCL11 לא שוחזר באופן עקבי במאגרי נתוני האימות. יתרה מכך, IFI27 הראה הבחנה אבחנתית חזקה יותר עבור RPL ונותר עם שיבוש ביטוי משמעותי במאגרי נתונים של דם ושל רקמות רבייה. יחד, ממצאים אלו תומכים ב-IFI27 כסמן ביולוגי מועמד חסון יותר מ-CXCL11, אם כי נדרש אימות ניסיוני נוסף. אימות באמצעות מאגר נתוני ה-SLE GSE50772 ומאגר נתוני ה-RPL GSE198700 הדגים כי ביטוי IFI27 נותר עם שיבוש עקבי במאגרי נתוני האימות. בולט כי IFI27 היה בעל ביטוי יתר בדגימות דם של חולים עם SLE, בדומה למחקרים קודמים50, אך היה בעל ביטוי נמוך (downregulated) בדגימות של רירית הרחם ושל סימני השילייה בחולים עם RPL. דפוס מנוגד זה עשוי לשקף הבדלים בין שיבוש חיסוני מערכתי לבין הסביבה החיסונית המקומית בממשק העובר-אם ב-SLE המסובך על ידי RPL.
IFI27 הוא גן המופעל על ידי אינטרפרון המעורב בחסינות אנטי-ויראלית, באיתות אינטרפרון ובתגובות חיסוניות של המאכסן בעקבות זיהום נגיפי51,52. בהריון תקין, ביטוי IFI27 מוגבר באופן ניכר בתאי טרופובלסט53, מה שמרמז על תפקיד פיזיולוגי חשוב בשמירה על תפקוד הטרופובלסט. לעומת זאת, ניתוחינו הראו ביטוי מופחת של IFI27 באנדומטריום ובסימני השילייה (chorionic villi) של מטופלות עם RPL. למרות שממצא זה שונה מ 일부 דוחות קודמים54, יש לפרשו בזהירות מאחר שהמחקר הנוכחי שילב מערכי נתונים טרנסקריפטומיים שהופקו מרקמות שונות ולא מדגימות אםיות של אם-עובר. הסבר אפשרי אחד הוא שהפעלה מערכתית כרונית של אינטרפרון מסוג I ב-SLE גורמת לאיתות אינטרפרון מתמשך בתאי חיסון במחזור הדם, ובו-בזמן מקדמת דסנסיטיזציה של רצפטורים, תשישות חיסונית או מנגנוני משוב שלילי פיצויים בממשק אם-עובר. לחלופין, ויסות אפיגנטי ספציפי לרקמה או הבדלים בהרכב התאי בין דם פריפרי ומארקמות רבייתי עשויים לדכא ביטוי מקומי של IFI27 למרות הפעלה מערכתית של אינטרפרון. השערות אלו נותרות ספקולטיביות ודורשות תיקוף מכניסטי באמצעות דגימות תואמות של דם אם, רקמת אנדומטריום ודגימות טרופובלסט, באופן אידיאלי ברמת התא הבודד, כדי להבחין בין מנגנוני ויסות ספציפיים לרקמה ומנגנונים ספציפיים לסוג התא55.
ניתוח חדירת תאי מערכת החיסון (Immune-infiltration analysis) הצביע על הבדלים משמעותיים בחתימות של תאי חיסון הן ב-SLE והן ב-RPL, אשר אפויינו בעיקר בשינויים באוכלוסיות הקשורות לתאי T מסוג CD4+. ביטוי של IFI27 נמצא במתאם חיובי עם העשרה של תאי Th2 בשתי המחלות; עם זאת, ממצאים אלו מייצגים מתאמים חישוביים שהופקו באמצעות ssGSEA ולא אינטראקציות ביולוגיות שאומתו ניסויית. מחקרים קודמים הראו כי דם פריפרי כך אצל חולים עם SLE מכיל פרופורציות מופחתות של תאי Th1 ותאי Treg אך פרופורציות מוגברות של תאי Th256,57, ממצא העולה בקנה אחד עם תוצאותינו. במהלך היריון תקין, מאזן החיסון Th1/Th2 בממשק העוברי-אימהי נוטה למצב דומיננטי של Th258. לפיכך, ביטוי מופחת של IFI27 ברקמות רבייתיות עשוי לשקף שינויים בהומאוסטזיס החיסוני המקומי הקשורים לפגיעה בסבילות העוברית-אימהית, אם כי השאלה האם IFI27 מווסת תהליך זה באופן ישיר טרם נקבעה בניסויים.
יש להכיר במספר מגבלות. ראשית, אף על פי שניתוחי ה-MR תמכו בקשר סיבתי, ההשפעה הגנטית המוערכת הייתה קטנה יחסית, מה שמעיד על כך ש-SLE מהווה רק מרכיב אחד בפתוגנזה המולטיפקטוריאלית של RPL. שנית, האינטגרציה הטרנסקריפטומית כללה מערכי נתונים שהופקו מרקמות שונות (דם פריפרי, אנדומטריום וששלית), פלטפורמות מיקרו-מערכים (microarray) וקוהורטות עצמאיות, מה שעשוי להכניס הטרוגניות ביולוגית וטכנית למרות התיקוף העקבי של IFI27. שלישית, קוהורטת התיקוף החיצונית לשלית כללה מספר מוגבל של דגימות, מה שעשוי היה להפחית את העוצמה הסטטיסטית ואת היכולת להכליל את הממצאים. רביעית, מכיוון שמערכי הנתונים הזמינים לציבור הכילו מידע קליני מוגבל, לא ניתן היה להעריך באופן מלא גורמים חשובים, כולל פעילות המחלה, מצב נוגדנים אנטי-פוספוליפידים, חשיפה לתרופות, שלב ההריון ומשתנים קליניים אחרים. לבסוף, למרות שסריקת PhenoScanner צמצמה את התסבוך הפלאיוטרופי הפוטנציאלי בניתוחי ה-MR, לא ניתן לשלול לחלוטין תסבוך שיורי.
מנקודת מבט תרגומית, יש להחשיב את IFI27 כעת כסמן ביולוגי מועמד ולא כסמן אבחנתי המהווה תיקוף קליני. לפני יישום קליני, נדרשים מחקרים פרוספקטיביים רב-מרכזיים כדי לתקף את ביצועי האבחון שלו באוכלוסיות מגוונות, לבסס פלטפורמות בדיקה וספי סף אבחנתיים סטנדרטיים, ולקבוע כיצד שלב ההיריון, פעילות המחלה וטיפול אימונוסופרסיבי משפיעים על ביטוי IFI27. ניסויים פונקציונליים, יחד עם טרנסקריפטומיקה מרחבית ואנליזות טרנסקריפטומיות של תא בודד, יהיו חיוניים גם הם כדי להבהיר האם IFI27 תורם באופן פעיל לוויסות החיסוני בין האם לעובר או שמא הוא פשוט משקף הפעלה חיסונית המונעת על ידי אינטרפרון.
גילויים
ניגוד עניינים:
המחברים מצהירים כי אין להם אינטרסים פיננסיים או לא-פיננסיים מתחרים.
תודות
עבודה זו נתמכה על ידי הפרויקט המרכזי לשילוב של רפואה סינית ומערבית למחלות קשות על ידי מנהלת הרפואה הסינית המסורתית של בייג'ינג (2023BJSZDYNJBXTGG-003), קרן המחקר המדעי לרווחה ציבורית ברמה הלאומית לעסקי מחקר בסיסי של מכונים (ZZ16-XRZ-038), והפרויקט לקידום בתי חולים רפואיים סיניים ברמה גבוהה (HLCMHPP2023087). למקורות המימון לא היה תפקיד בתכנון המחקר, באיסוף הנתונים, בניתוח הנתונים, בפירוש הנתונים, בהכנת כתב היד או בהחלטה להגיש את כתב היד לפרסום. המחברים מודים לחוקרים ולמשתתפים במחקר FinnGen, ל-UK Biobank, ול-Gene Expression Omnibus (GEO) של המרכז הלאומי למידע ביוטכנולוגי (NCBI) על הפיכת מערכי הנתונים שלהם לזמינים לציבור. המחברים מודים גם לקונסורציום FinnGen, המשלב דגימות מבנקי ביולוגיים פיניים עם נתוני רישום בריאות ארציים באמצעות שיתופי פעולה בין ארגוני מחקר פיניים, בנקים ביולוגיים ושותפים בינלאומיים.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אוסף של 28 חתימות גנים של תאי מערכת החיסון | משאב חתימת-גנים משלימי שפורסם | רשימת גנים של סממנים לתאי מערכת החיסון המופיעה כתוספת, כפי שתוארה על ידי Charoentong et al. (מקור 42) | לא רלוונטי מזהה משאב מחקרי (RRID): לא זמין מטרה / הערות: חתימות של תאי מערכת החיסון המשמשות ל-ssGSEA. |
| CNSknowall | פלטפורמת האינטרנט CNSknowall | קבצי פלט של DAVID | לא רלוונטי RRID: לא זמין מטרה / הערות: ויזואליזציה של תוצאות העשרה פונקציונלית מסוננות. |
| תחנת עבודה ממוחשבת | סביבת מחשוב מוסדית | לא רלוונטי | לא רלוונטי RRID: לא רלוונטי מטרה / הערות: ניתוחים חישוביים. |
| חומרים מתכלים | לא רלוונטי | לא רלוונטי | לא רלוונטי RRID: לא רלוונטי מטרה / הערות: לא נעשה שימוש במواد מתכלות של מעבדה רטובה. |
| Cytoscape | קונסורציום Cytoscape | לא רלוונטי | 3.10.0 RRID: SCR_003032 מטרה / הערות: חלבון–ויזואליזציה של רשת אינטראקציות חלבונים וניתוח טופולוגי. |
| cytoHubba | חנות האפליקציות של Cytoscape | לא רלוונטי | 0.1 RRID: SCR_017677 מטרה / הערות: דירוג גנים-מרכז (Hub-genes) באמצעות MCC, MNC, EPC, דרגה (Degree), קרבה (Closeness) ורדיאליות (Radiality). |
| כלי האנוטציה הפונקציונלית DAVID | המכונים הלאומיים לבריאות / המכון הלאומי לסרטן | רשימות גנים של DEG (ביטוי דיפרנציאלי) ומסכי רקע משותפות שהועלו | 2021 RRID: SCR_001881 מטרה / הערות: ניתוח העשרה של אונטולוגיית גנים (Gene Ontology) ונתיבי KEGG. |
| פאנל ייחוס LD אירופאי | פרויקט 1000 הגנומים / IEU OpenGWAS | פאנל אירופאי של שלב 3 (וריאנטים תואמי GRCh37) | שלב 3 RRID: לא דווח מטרה / הערות: קיבוץ של חוסר שיווי משקל קישורי (Linkage disequilibrium clumping) באמצעות זרימת העבודה של OpenGWAS/TwoSampleMR. |
| FinnGen | קונסורציום FinnGen | finngen_R11_L12_LUPUS | גרסה 11 RRID: SCR_022254 מטרה / הערות: סטטיסטיקות סיכום של GWAS עבור לופוס אריתמטוז (lupus erythematosus). |
| forestploter | CRAN | לא רלוונטי | 1.1.2 RRID: לא זמין מטרה / הערות: ויזואליזציה של תרשים יער (Forest plot) עבור אומדני רנדומיזציה מנדלית. |
| Gene Expression Omnibus (GEO) | המרכז הלאומי למידע בביוטכנולוגיה | GSE61635; GSE165004; GSE50772; GSE198700 | לא רלוונטי RRID: SCR_005012 מטרה / הערות: מקור של מערכי נתונים טרנסקריפטומיים לגילוי ואישוש. |
| אונטולוגיה של גנים (Gene Ontology) | קונסורציום האונטולוגיה של הגנים (Gene Ontology Consortium) | מונחי GO שniacשו באמצעות DAVID | הערות DAVID 2021 RRID: SCR_002811 מטרה / הערות: אנוטציה של תהליכים ביולוגיים, רכיבים תאיים ותפקודי מולקולריים. |
| ggcorrplot | CRAN | לא רלוונטי | 0.1.4.1 RRID: לא זמין מטרה / הערות: ויזואליזציה של גן מועמד–מטריצות קורלציה של תאי מערכת החיסון. |
| ggplot2 | CRAN | לא רלוונטי | 3.5.1 RRID: SCR_014601 מטרה / הערות: תרשימי הרקיע (Volcano plots), תרשימי קופסה (box plots) וגרפים סטטיסטיים אחרים. |
| ggvenn | CRAN | לא רלוונטי | 0.1.16 RRID: SCR_025300 מטרה / הערות: ויזואליזציה של גנים בעלי ביטוי דיפרנציאלי משותפים. |
| glmnet | CRAN | לא רלוונטי | 4.1-8 RRID: SCR_015505 מטרה / הערות: רגרסיה לוגיסטית מסוג LASSO ותיקוף צולב. |
| GSE165004 | NCBI GEO | GSE165004 / GPL16699 | מטריצת סדרות מעובדת RRID: SCR_005012 מטרה / הערות: מערך נתונים למחקר ראשוני של רירית הרחם במקרי RPL. |
| GSE198700 | NCBI GEO | GSE198700 / GPL13534 | מטריצת סדרות מעובדת RRID: SCR_005012 מטרה / הערות: סט נתונים עצמאי לתיקוף של שליות (chorionic villus) במקרי RPL. |
| GSE50772 | NCBI GEO | GSE50772 / GPL570 | מטריצת סדרות מעובדת RRID: SCR_005012 מטרה / הערות: ערכה נתוני תיקוף עצמאית של תאים חד-גרעיים מדם היקפי (PBMC) של חולי SLE. |
| GSE61635 | NCBI GEO | GSE61635 / GPL570 | מטריצת סדרים מעובדת RRID: SCR_005012 מטרה / הערות: מאגר נתוני גילוי של דם מלא מחולי SLE. |
| GSEABase | Bioconductor | לא רלוונטי | 1.66.0 RRID: לא זמין מטרה / הערות: ניהול מערכי גנים של תאי מערכת החיסון עבור ssGSEA. |
| ניתוח העשרת גנים (GSVA) | Bioconductor | לא רלוונטי | 1.52.3 RRID: SCR_021058 מטרה / הערות: ניתוח העשרה של קבוצות גנים עבור דגימה בודדת (ssGSEA). |
| IEU OpenGWAS | היחידה לאפידמיולוגיה אינטגרטיבית של ה-MRC | ukb-b-419; finngen_R11_L12_LUPUS | לא רלוונטי RRID: לא דווח מטרה / הערות: שליפת סטטיסטיקות סיכום של GWAS ונתוני אסוציאציה גנטית הרמוניים. |
| אנציקלופדיית הגנים והגנומים של קיוטו (KEGG) | Kanehisa Laboratories | נתיבי KEGG הנגישים באמצעות DAVID | הערות DAVID 2021 RRID: SCR_012773 מטרה / הערות: הערת העשרה של מסלולים. |
| limma | Bioconductor | לא רלוונטי | 3.60.6 RRID: SCR_010943 מטרה / הערות: ניתוח ביטוי דיפרנציאלי. |
| MRPRESSO | ורבנק ואח'. | לא רלוונטי | 1 RRID: SCR_023697 מטרה / הערות: זיהוי פליאוטרופיה אופקית ומשתנים אינסטרומנטליים חריגים. |
| pheatmap | CRAN | לא רלוונטי | 1.0.12 RRID: SCR_016418 מטרה / הערות: מפות חום של ביטוי. |
| PhenoScanner V2 | קונסורציום PhenoScanner | שאילתות פנוטיפ ברמת SNP | גרסה 2 RRID: לא זמין מטרה / הערות: סריקת SNP-ים שנשמרו לאיתור קשרים פנוטיפיים שעלולים להוות גורמים מבלבלים. |
| pROC | CRAN | לא רלוונטי | 1.18.5 RRID: SCR_024286 מטרה / הערות: עקומות ROC, ערכי AUC, רווחי סמך של DeLong, נקודות חיתוך לפי מדד Youden, ורווחי סמך בשיטת bootstrap. |
| R | R Foundation for Statistical Computing | לא רלוונטי | 4.4.2 RRID: SCR_001905 מטרה / הערות: סביבת מחשוב סטטיסטית. |
| ריאגנטים | לא רלוונטי | לא רלוונטי | לא רלוונטי RRID: לא רלוונטי מטרה / הערות: לא נעשה שימוש בריאגנטים של מעבדה רטובה. |
| אנא ספק את הטקסט באנגלית שברצונך לתרגם. | קונסורציום STRING | Homo sapiens (taxon 9606); ציון אינטראקציה מינימלי 0.400 | 11 RRID: SCR_005223 מטרה / הערות: חלבון–בניית רשת אינטראקציות חלבונים. |
| TwoSampleMR | היחידה לאפידמיולוגיה אינטגרטיבית של ה-MRC | לא רלוונטי | 0.6.6 RRID: SCR_019010 מטרה / הערות: רנדומיזציה מנדלית דו-כיוונית של שני מדגמים, הפקת נתונים, הרמוניזציה, הערכה סיבבית ואנליזות רגישות. |
| UK Biobank | UK Biobank | ukb-b-419 | סט נתוני סיכום 2018 RRID: SCR_012815 מטרה / הערות: סטטיסטיקות סיכום של GWAS למספר ההפלות הספונטניות. |
מקורות
- Petri M. Pregnancy and systemic lupus erythematosus. Best Pract Res Clin Obstet Gynaecol. 2020;64:24-30.
- Zhao X, et al. Advances in drug therapy for systemic lupus erythematosus. Curr Med Chem. 2021;28(7):1251-1268.
- Stanescu II, et al. Salivary biomarkers of inflammation in systemic lupus erythematosus. Ann Anat. 2018;219:89-93.
- Tian J, Zhang D, Yao X, Huang Y, Lu Q. Global epidemiology of systemic lupus erythematosus: A comprehensive systematic analysis and modelling study. Ann Rheum Dis. 2023;82(3):351-356.
- Palma Dos Reis CR, et al. Prediction of adverse pregnancy outcomes in women with systemic lupus erythematosus. Clin Rev Allergy Immunol. 2020;59(2):287-294.
- Venne K, Scott S, Bernatsky S, Vinet E. Induced abortions in women with systemic lupus erythematosus. Lupus. 2021;30(4):484-488.
- Kim JW, et al. Lupus low disease activity state achievement is important for reducing adverse outcomes in pregnant patients with systemic lupus erythematosus. J Rheumatol. 2021;48(5):707-716.
- Braga A, et al. Systemic lupus erythematosus and pregnancy: A Portuguese case-control study. Clin Rev Allergy Immunol. 2022;62(2):324-332.
- Dimitriadis E, Menkhorst E, Saito S, Kutteh WH, Brosens JJ. Recurrent pregnancy loss. Nat Rev Dis Primers. 2020;6(1):98.
- Quenby S, et al. Miscarriage matters: The epidemiological, physical, psychological, and economic costs of early pregnancy loss. Lancet. 2021;397(10285):1658-1667.
- Valeff NJ, Ventimiglia MS, Diao L, Jensen F. Lupus and recurrent pregnancy loss: The role of female sex hormones and B cells. Front Endocrinol (Lausanne). 2023;14:1233883.
- Gao R, Zeng X, Qin L. Systemic autoimmune diseases and recurrent pregnancy loss: Research progress in diagnosis and treatment. Chin Med J (Engl). 2021;134(17):2140-2142.
- Pantham P, Abrahams VM, Chamley LW. The role of anti-phospholipid antibodies in autoimmune reproductive failure. Reproduction. 2016;151(5):R79-R90.
- Meroni PL, et al. Updating on the pathogenic mechanisms of antiphospholipid antibody-associated pregnancy loss. Clin Rev Allergy Immunol. 2008;34(3):332-337.
- Blank M, Shoenfeld Y. Antiphospholipid antibody-mediated reproductive failure in antiphospholipid syndrome. Clin Rev Allergy Immunol. 2010;38(2–3):141-147.
- Babker A, et al. Frequency of ACE I/D and PAI-1 4G/5G polymorphisms in women with recurrent pregnancy loss in Sudan. Biomed Pharmacol J. 2025;18(3):1953-1961.
- Babker AM, et al. Detection of human platelet antigen polymorphisms (HPA-1 and HPA-3) and factor XIII mutation in Sudanese women with recurrent pregnancy loss. BMC Res Notes. 2024;17(1):66.
- Grover S, Del Greco MF, Stein CM, Ziegler A. Mendelian randomization. Methods Mol Biol. 2017;1666:581-628.
- Skrivankova VM, et al. Strengthening the reporting of observational studies in epidemiology using Mendelian randomization: The STROBE-MR statement. JAMA. 2021;326(16):1614-1621.
- Emdin CA, Khera AV, Kathiresan S. Mendelian randomization. JAMA. 2017;318(19):1925-1926.
- Burgess S, Thompson SG, CRP CHD Genetics Collaboration. Avoiding bias from weak instruments in Mendelian randomization studies. Int J Epidemiol. 2011;40(3):755-764.
- Hemani G, et al. The MR-Base platform supports systematic causal inference across the human phenome. eLife. 2018;7:e34408.
- Bowden J, Davey Smith G, Burgess S. Mendelian randomization with invalid instruments: Effect estimation and bias detection through Egger regression. Int J Epidemiol. 2015;44(2):512-525.
- Bowden J, Davey Smith G, Haycock PC, Burgess S. Consistent estimation in Mendelian randomization with some invalid instruments using a weighted median estimator. Genet Epidemiol. 2016;40(4):304-314.
- Hartwig FP, Davey Smith G, Bowden J. Robust inference in summary data Mendelian randomization via the zero modal pleiotropy assumption. Int J Epidemiol. 2017;46(6):1985-1998.
- Burgess S, Butterworth A, Thompson SG. Mendelian randomization analysis with multiple genetic variants using summarized data. Genet Epidemiol. 2013;37(7):658-665.
- Verbanck M, Chen CY, Neale B, Do R. Detection of widespread horizontal pleiotropy in causal relationships inferred from Mendelian randomization between complex traits and diseases. Nat Genet. 2018;50(5):693-698.
- Barrett T, et al. NCBI GEO: Archive for functional genomics data sets—update. Nucleic Acids Res. 2013;41(Database issue):D991-D995.
- Keleş İD, et al. Gene pathway analysis of the endometrium at the start of the window of implantation in women with unexplained infertility and unexplained recurrent pregnancy loss: Is unexplained recurrent pregnancy loss a subset of unexplained infertility? Hum Fertil (Camb). 2023;26(5):1129-1141.
- Kennedy WP, et al. Association of the interferon signature metric with serological disease manifestations but not global activity scores in multiple cohorts of patients with SLE. Lupus Sci Med. 2015;2(1):e000080.
- Matsumoto Y, et al. Characteristic DNA methylation profiles of chorionic villi in recurrent miscarriage. Sci Rep. 2022;12(1):11673.
- Sherman BT, Lempicki RA. Systematic and integrative analysis of large gene lists using DAVID bioinformatics resources. Nat Protoc. 2009;4(1):44-57.
- Szklarczyk D, et al. STRING v11: Protein–protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 2019;47(D1):D607-D613.
- Shannon P, et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-2504.
- Jia P, Zheng S, Long J, Zheng W, Zhao Z. dmGWAS: Dense module searching for genome-wide association studies in protein–protein interaction networks. Bioinformatics. 2011;27(1):95-102.
- Chin CH, et al. cytoHubba: Identifying hub objects and subnetworks from complex interactome. BMC Syst Biol. 2014;8(Suppl 4):S11.
- Mohammadi M. A projection neural network for the generalized Lasso. IEEE Trans Neural Netw Learn Syst. 2020;31(6):2217-2221.
- Kumar R, Indrayan A. Receiver operating characteristic (ROC) curve for medical researchers. Indian Pediatr. 2011;48(4):277-287.
- de Hond AAH, Steyerberg EW, van Calster B. Interpreting area under the receiver operating characteristic curve. Lancet Digit Health. 2022;4(12):e853-e855.
- Xu H, et al. Single-cell transcriptomics reveals CCL3+ classical monocyte subset linked to autoimmune pathogenesis. J Inflamm Res. 2025;18:16273-16291.
- Zych M, et al. Surface immune checkpoints as potential biomarkers in physiological pregnancy and recurrent pregnancy loss. Int J Mol Sci. 2024;25(17):9378.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-262.
- Liu J, Lu J, Wang G, Gu L, Li W. Prognostic characteristics of a six-gene signature based on ssGSEA in sarcoma. Aging (Albany NY). 2024;16(2):1536-1554.
- Mokbel A, et al. Pregnancy outcomes among Egyptian women with systemic lupus erythematosus: A prospective cohort study. Lupus. 2023;32(4):521-530.
- Illescas-Montes R, Corona-Castro CC, Melguizo-Rodríguez L, Ruiz C, Costela-Ruiz VJ. Infectious processes and systemic lupus erythematosus. Immunology. 2019;158(3):153-160.
- Banko A, et al. Epstein-Barr virus infection as a potential indicator of the occurrence and clinical presentation of systemic lupus erythematosus. Front Immunol. 2023;14:1307589.
- Nigro G, et al. Role of infections in recurrent spontaneous abortion. J Matern Fetal Neonatal Med. 2011;24(8):983-989.
- Yang D, et al. YY1-PVT1 affects trophoblast invasion and adhesion by regulating mTOR pathway-mediated autophagy. J Cell Physiol. 2020;235(10):6637-6646.
- Guan D, et al. Immunologic insights in recurrent spontaneous abortion: Molecular mechanisms and therapeutic interventions. Biomed Pharmacother. 2024;177:117082.
- Zhao X, et al. Identification of key biomarkers and immune infiltration in systemic lupus erythematosus by integrated bioinformatics analysis. J Transl Med. 2021;19(1):35.
- Villamayor L, et al. The IFN-stimulated gene IFI27 counteracts innate immune responses after viral infections by interfering with RIG-I signaling. Front Microbiol. 2023;14:1176177.
- Lim FY, et al. High-frequency home self-collection of capillary blood correlates IFI27 expression kinetics with SARS-CoV-2 viral clearance. J Clin Invest. 2023;133(23):e173715.
- Apps R, et al. Genome-wide expression profile of first-trimester villous and extravillous human trophoblast cells. Placenta. 2011;32(1):33-43.
- Li Y, et al. RNA sequencing of decidua reveals differentially expressed genes in recurrent pregnancy loss. Reprod Sci. 2021;28(8):2261-2269.
- Dankers W, et al. Failing maternal-fetal tolerance in SLE (FaMaLE): A prospective cohort study for finding the molecular mechanisms behind pregnancy complications. Lupus Sci Med. 2025;12(1):e001668.
- Xiang S, et al. Imbalance of helper T cell type 1, helper T cell type 2, and associated cytokines in patients with systemic lupus erythematosus: A meta-analysis. Front Pharmacol. 2022;13:988512.
- Tu J, et al. UC-BSC exosomes regulate Th17/Treg balance in patients with systemic lupus erythematosus via miR-19b/KLF13. Cells. 2022;11(24):4123.
- Wang W, et al. T helper (Th) cell profiles in pregnancy and recurrent pregnancy loss: Th1/Th2/Th9/Th17/Th22/Tfh cells. Front Immunol. 2020;11:2025.