גנים הקשורים ל-N6-מתילאדנוזין (m6A) אינם מווסתים בסרטן השד, עם קורלציה מוגבלת למתילציה או לשינויים במספר העותקים. שישה גנים, כולל YTHDF3, היו פרוגנוסטיים. YTHDF3 הוא גורם פרוגנוסטי עצמאי, המעורב במטבוליזם של ה-RNA, תיקון DNA, יציבות טלומרים וחדירת מערכת חיסונית. העלאת הרגולציה שלה אושרה קלינית, מה שדרש חקירה נוספת.
מאמר מחקר
ניתוח מקיף של רגולטורים של m6A מזהה את YTHDF3 כסמן ביוגנוסטי מבטיח לסרטן השד
* These authors contributed equally
במאמר זה
סיכום
תקציר
נוף הביטוי והערך הפרוגנוסטי של גנים הקשורים ל-N6-מתילאדנוזין (m6A) נותרו ברובם לא מאופיינים בסרטן השד. כאן ביצענו ניתוח אינטגרטיבי של פרופילי הביטוי שלהם והרלוונטיות הקלינית שלהם. באמצעות מאגרי נתונים מולטי-אומיים ואימות ניסיוני, ערכנו חקירה שיטתית של גנים הקשורים ל-m6A בסרטן השד. גנים אלו הראו ביטוי שונה בולט בסרטן השד, אך הקשר שלהם עם תכונות מולקולריות כמו מתילציה בפרומטר ושינויים במספר העותקים היה מוגבל. ניתוח הישרדות חד-משתני הראה כי ביטוי חריג של RBM15B, METTL16, HNRNPC, YTHDF1, YTHDF3 ו-IGF2BP1 היה קשור באופן מובהק לתחזית המטופל. רגרסיה רב-משתנית של Cox זיהתה עוד ביטוי מוגבר של YTHDF3 כגורם פרוגנוסטי עצמאי. ניתוח רשת פונקציונלית הראה ש-YTHDF3 מעורב פוטנציאלית לא רק בעיבוד RNA ובמטבוליזם אלא גם בתיקון DNA, עיבוד פרי-מירנ"א, יציבות טלומרים וחדירת מערכת חיסונית. יתרה מזאת, אושרה עלייה ב-mRNA של YTHDF3 בדגימות קליניות של סרטן השד. ביחד, גנים הקשורים ל-m6A אינם מוסדרים בסרטן השד ומתאימים לתוצאות המטופלות, מה שמדגיש את פוטנציאל הסמן הביולוגי שלהם, כאשר YTHDF3 דורש חקירה מעמיקה.
מבוא
סרטן השד הוא ממאירות הטרוגנית מאוד והפך לסרטן המאובחן ביותר בעולם, ומהווה סיבה מובילה לתמותה הקשורה לסרטן בקרב נשים, עם הערכות של 2.3 מיליון מקרים חדשים ויותר מ-680,000 מקרי מוות בשנת 2020. למרות ההתקדמות הטיפולית, ריפוי סופי לכל המטופלים עדיין לא מוצג, מה שמדגיש את הצורך לזהות סמנים ביולוגיים מולקולריים לאבחון מוקדם ולפרוגנוזה.
שינויים אפיגנטיים חריגים הם סימן ההיכר של סרטן3. מבין שינויים שונים ב-RNA, N6-מתילאדנוזין (m6A) הוא סימן אפיטרנסקריפטומי שמוכר יותר ויותר בשל תפקידו בסרטן השד4. m6A הוא שינוי הפיך שמופקד בעיקר ב-3'-UTRs של mRNA יונקים, והוא מתואם על ידי "כותבים" (מתילטרנספראזות), "מחקים" (דמתילאזות) ו"קוראים" (חלבוני קישור)5. ראיות מתפתחות מצביעות על כך שגנים הקשורים ל-m6A בהתפתחות ובהתקדמות הגידול6. עם זאת, הנוף של גורמי הרגולציה של m6A בסרטן השד נותר לא מוגדר היטב, וחסרים ניתוחים גנטיים ואפיגנטיים מקיפים שקיימים.
במחקר זה, זיהינו גנים הקשורים ל-m6A בסרטן השד המובע באופן שונה באמצעות מאגרי אומיקס ציבוריים ואימות ניסיוני. הערכנו עוד את ערכם הפרוגנוסטי הקליני וחקרנו את המנגנונים המולקולריים הבסיסיים באמצעות ניתוח הישרדות וחיזוי רשתות רגולטוריות.
פרוטוקול
ביטוי גנים ונתוני הישרדות
נתוני קבוצת Cancer Genome Atlas (TCGA) שכללו 1,034 דגימות גידול סרטן השד ו-104 רקמות סמוכות (NATs) התקבלו מ-The Human Protein Atlas, יחד עם מידע קליני עבור 947מטופלות. נתונים אלו שימשו לניתוח פרופילי ביטוי mRNA של גנים הקשורים ל-m6A והקשר שלהם לפוגנוזה. בנוסף, השתמשנו בכלי המקוון Kaplan-Meier Plotter (KMplotter), שמאגד מספר מאגרי נתונים של סרטן השד, כדי לאמת את הקשר בין ביטוי YTHDF3 לבין הישרדות8. כדי לאמת עוד דפוסי ביטוי, כללנו גם נתונים מ-92 רקמות שד בריאות מפרויקט ביטוי גנוטיפ-רקמה (GTEx) באמצעות Breast Cancer Gene-Expression Miner v4.7 9,10. רמות החלבון וה-mRNA של YTHDF3 בתת-סוגים שונים של סרטן השד ורקמות תקינות נותחו על ידי UALCAN, בהתבסס על Clinical Proteomic Tumor Analysis Consortium (CPTAC) ו-TCGA11.
הערכה גנטית ואפיגנטית
שינויים גנטיים נבדקו באמצעות cBioPortal, תוך התמקדות במאגר הנתונים של סרטן השד הפולשני (TCGA, Provisional, 1,108 מקרים)12. נתוני מתילציה של פרומוטר נאספו מ-MethHC, שכללו 839 דגימות סרטן שד וקבוצת ביקורת סמוכה וחלקית בזוגות תקיניםסמוכים 13.
רשת ויסות גנים וניתוח חדירה חיסונית
האינטראקציות בין חלבון לחלבון נבדקו באמצעות STRING (ציון האמון מוגדר ל-0.4)14. העשרת גנים והעשרת מסלולים בוצעו באמצעות Metascape (p < 0.01, ספירה מינימלית של 3, גורם העשרה > 1.5)15. הקשר בין ביטוי YTHDF3 בסרטן השד לחדירה חיסונית, כולל תאי B, תאי T CD8+ , תאי T מסוג CD4+ , מקרופאגים, נויטרופילים ותאי דנדריט (DCs), נותח באמצעות משאב הערכת חיסון גידולי (TIMER). רמת ביטוי הגנים שנורמל עם טוהר הגידול הוצגה בפאנלהשמאלי ביותר 16.
תגובת שרשרת פולימראז עם שעתוק הפוך כמותי (qRT-PCR)
כל המשתתפים סיפקו הסכמה מדעת בכתב, והמחקר אושר על ידי ועדת האתיקה של בית החולים המסונף של אוניברסיטת סאות'ווסט לרפואה (אישור מס' KY2022124) ונוהל בהתאם לעקרונות הצהרת הלסינקי. דגימות גידול שד קפוא ודגימות סמוכות שאינן גידוליות שימשו להפקת RNA מלאה. הריכוז והטוהר של ה-RNA שהופק הוערכו באמצעות ספקטרופוטומטר, ונכללו רק דגימות עם יחס A260/A 280 של 1.8–2.0. שלמות ה-RNA אושרה על ידי אלקטרופורזה של ג'ל אגרוז של 1.5%. cDNA של גדיל ראשון נוצר לאחר מכן מ-1 מיקרוגרם RNA כולל בתגובה של 20 מיקרוליטר בהתאם להוראות היצרן. בוצע PCR כמותי בזמן אמת, כאשר כל תגובה של 20 מיקרוליטר כללה 10 מיקרוליטר של 2× SYBR גרין מאסטר, 0.4 מיקרוליטר פריימרים קדמיים ואחוריים (כל אחד 10 מיקרומון), 2 מיקרוליטר cDNA מדולל (1:10), ו-7.2 מיקרוליטר מים ללא נוקלאז. qRT-PCR בוצע כפי שתוארקודם 17. מקדמים היו: β-actin-F, GAAGATCAAGATCATTGCTCTCTCT; β-actin-R, TACTCCTGCTTGCTGATCCA; YTHDF3-F, AAAAGACGGGCCTCTTCCTCTCTCTCTCTCTC; YTHDF3-R, TTGGCCGAGTGTGTTTCCA. תנאי התרמוסייקל היו 95 מעלות צלזיוס למשך 3 דקות, ואחריהם 40 מחזורים של 95 מעלות צלזיוס ל-10 שניות, 55 מעלות ל-20 שניות, ו-72 מעלות צלזיוס ל-20 שניות (רכישת פלואורסצנציה ב-72 מעלות צלזיוס). בוצע ניתוח עקומת התכה (95°C עד 60°C, תוספת של 0.5°C/s) לאישור ספציפיות הפריימר. הביטוי היחסי חושב באמצעות שיטת 2−ΔΔCt .
שיטה סטטיסטית
מבחני t לא זוגיים שימשו להשוואות בין שתי קבוצות. ניתוח הישרדות קפלן-מאייר עם מבחן לוג-ראנק ורגרסיה מרובת משתנים של קוקס שימש להערכת גורמי פרוגנוסטיקה. לצורך אימות qRT-PCR, דגימות זוגיות הושוו באמצעות מבחן t-סטודנט זוגי דו-זנבי על ערכי ΔCt. באיור 1, בוצעו השוואות זוגיות באמצעות מבחן Dunnett-Tukey-Kramer. P < 0.05 נחשב מובהק סטטיסטית.
תוצאות
ביטוי mRNA שונה של גנים הקשורים ל-m6A בסרטן השד
ניתוח נתוני TCGA ו-GTEx (1,034 גידולים, 104 NAT, 92 רקמות בריאות) חשף שרוב הגנים הקשורים ל-m6A מבוטאים באופן שונה (איור 1). ביחס לרקמות שד בריאות, 10 גנים הועברו לוויסות משמעותי: KIAA1429, RBM15, RBM15B, HNRNPC, YTHDF1, YTHDF2, YTHDF3, IGF2BP1, IGF2BP3, ו-ALKBH5 (כולם P < 0.0001, למעט RBM15 P < 0.001). שמונה גנים הוסטלו בוויסות: WTAP, METTL3, METTL14, HNRNPA2B1, YTHDC1, YTHDC2, IGF2BP2 ו-FTO (P < 0.05 עד P < 0.0001). METTL16 ו-eIF3A לא הראו הבדל משמעותי. בהשוואה בין גידולים ל-NATs, HNRNPA2B1 היה מווסת, בעוד ש-YTHDF3, eIF3A ו-ALKBH5 היו מופחתת; RBM15, RBM15B ו-YTHDF2 לא הראו הבדל (איור 1). השימוש ב-NATs כביקורת הועלה בספק, מה שעשוי להסביר את הפערים עם השוואות רקמות בריאות18,19. מעניין לציין כי נצפה מגמה של שפע חלבוני YTHDF3 גבוה יותר בכל תת-סוגי סרטן השד במאגר הנתונים של CPTAC בהשוואה לרקמות תקינות (P < 0.0001). בנוסף, ביטוי mRNA גבוה משמעותית של YTHDF3 נצפה רק בתתי-סוגים לומינליים של סרטן השד בהשוואה לרקמות תקינות (P = 0.004, < 0.01) (איור משלים S1). בסך הכל, דיסרגולציה משמעותית של גנים הקשורים ל-m6A ניכרת בסרטן השד.
מתילציה של פרומוטר והגברת גנים הקשורים ל-m6A בסרטן השד
מתילציה של DNA ממלאת תפקיד חשוב בוויסות אפיגנטי של שעתוק גנים, וההיפרמתילציה של הפרומוטר מעכבת ביטוי mRNA20. ניתוח MethHC הראה הבדלים משמעותיים במתילציה של פרומטרים רק עבור IGF2BP1, IGF2BP2 ו-IGF2BP3 בגידולים לעומת בקבוצת הביקורת (P < 0.005). הירידה ברגולציה של IGF2BP2 mRNA עשויה להיות חלקית להיפרמתילציה שלו. ניתוח cBioPortal הראה כי WTAP ו-ALKBH5 הראו ירידה ב-mRNA, בעוד ש-KIAA1429 (VIRMA), YTHDF1, YTHDF3 ו-IGF2BP1 הראו הגברה גנטית הקשורה להגברת הגנים (איור משלים S2, איור משלים S3, ואיור משלים S4). ממצאים אלו מצביעים על כך שרמות ה-mRNA של גנים הקשורים ל-m6A אינן מונעות בעיקר על ידי מתילציה של פרומטר או הגברת גנים.
ניתוח הישרדות של גנים הקשורים ל-m6A בסרטן השד
ניתוח הישרדות של 947 מטופלים חשף כי ביטוי נמוך של RBM15B וביטוי גבוה של METTL16, HNRNPC, YTHDF1, YTHDF3 ו-IGF2BP1 היו קשורים באופן מובהק לירידה בהישרדות הכוללת (איור 2 ואיור 3). רגרסיה רב-משתנית של Cox, שהתאימה לגיל, שלב וגזע, אישרה כי העלאת הרגולציה של YTHDF3 הייתה מנבא עצמאי להישרדות כללית נמוכה (HR: 1.024, רווח בר-סמך 95%: 1.003–1.046, P = 0.024) (טבלה 1). לצורך אימות חיצוני, ניתוח באמצעות כלי KMplotter המקוון הראה כי ביטוי גבוה של YTHDF3 מנבא פרוגנוזה לקויה של מחלה (איור משלים S5). גנים אחרים לא היו מובהקים באופן עצמאי (טבלה משלימה S1).
רשת מולקולרית פוטנציאלית וחדירה חיסונית לגן הקשור ל-m6A YTHDF3
ניתוח מחרוזות של YTHDF3 (עם אינטראקטורים מוגבלים ל-50) זיהה רשת עם 224 קשתות והעשרה משמעותית (P < 1e-16). YTHDF3 קשור קשר הדוק ל-METTL3, ALKBH5, WTAP, METTL14 ואחרים (איור 4A). ניתוח העשרת מטאסקייפ זיהה 13 אשכולות פונקציונליים משמעותיים (P < 0.01, מספר מינימלי של 3, גורם העשרה > 1.5; איור 4B). האשכול המדורג ראשון היה ויסות מטבולי של mRNA (GO1903311, 22 גנים). אשכולות נוספים הרלוונטיים לסרטן כללו תיקון DNA dealkylation (GO0006307), עיבוד pri-miRNA (GO0031053), וייצוב טלומראז (GO1904356), בין היתר. הרשימה המלאה של שמות אשכולות, גנים קשורים וסטטיסטיקות העשרה מסופקת בטבלה משלימה S2. יתרה מזאת, התוצאות חשפו מתאמים חיוביים משמעותיים בין ביטוי YTHDF3 לתאי החיסון (כל P < 0.01) (איור משלים S6). לכן, עלייה ב-YTHDF3 עשויה להיות קשורה למטבוליזם של mRNA, תיקון DNA, תחזוקת טלומרים וחדירת מערכת חיסונית.
הגברת ביטוי mRNA של YTHDF3 בסרטן השד
רקמות סרטן השד ורקמות שד תקינות סמוכות נאספו מ-20 מטופלות שעברו ניתוח במחלקה לכירורגיית השד, בית החולים המסונף של אוניברסיטת סאות'ווסט לרפואה, בין יולי 2023 לאוקטובר 2023. ניתוח qRT-PCR של דגימות משולבות אלו הראה ביטוי mRNA YTHDF3 גבוה משמעותית ברקמות הגידול מאשר ברקמות תקינות סמוכות (P = 0.001) (איור משלים S7 וטבלה משלימה S3).
זמינות נתונים
כל מערכי הנתונים שנותחו במחקר זה זמינים לציבור במאגרי גישה פתוחה הבאים. ביטוי גנים ונתונים קליניים: נתוני ביטוי RNA-seq של סרטן השד והמידע הקליני המתאים התקבלו מאטלס הגנום של הסרטן (TCGA-BRCA) באמצעות אטלס החלבון האנושי (https://www.proteinatlas.org/). נתוני ביטוי רקמת שד תקינים נוספים נאספו מפרויקט Genotype-Tissue Expression (GTEx) (dbGaP accession phs000424.v8.p2) דרך Breast Cancer Gene-Expression Miner v4.7 (http://bcgenex.ico.unicancer.fr/). אימות הישרדות בוצע באמצעות מתקן קפלן-מאייר (https://kmplot.com). נתוני ביטוי חלבון ו-mRNA התקבלו באמצעות UALCAN (http://ualcan.path.uab.edu/). שינויים גנטיים: נתוני מוטציה סומטית ושינוי מספר עותקים עבור מאגר הנתונים הפולשני של סרטן השד (TCGA, זמנית, 1108 דגימות) נאספו דרך cBioPortal (https://www.cbioportal.org/). מתילציה של פרומפטור DNA: נתוני מתילציה התקבלו מ-MethHC (http://methhc.mbc.nctu.edu.tw/), המכילה 839 דגימות סרטן שד וחלקית זוגות בקרה תקינים סמוכים. אינטראקציה בין חלבון לחלבון והעשרת מסלול: ניתוח רשת פונקציונלית בוצע באמצעות STRING v12.0 (https://string-db.org/, ציון ביטחון 0.4) ו-Metascape (http://metascape.org/). ניתוח חדירה חיסונית בוצע באמצעות TIMER (https://cistrome.shinyapps.io/timer/). כל מידע נוסף שמאחורי הנתונים זמינים מהמחבר המתאים לפי בקשה סבירה.
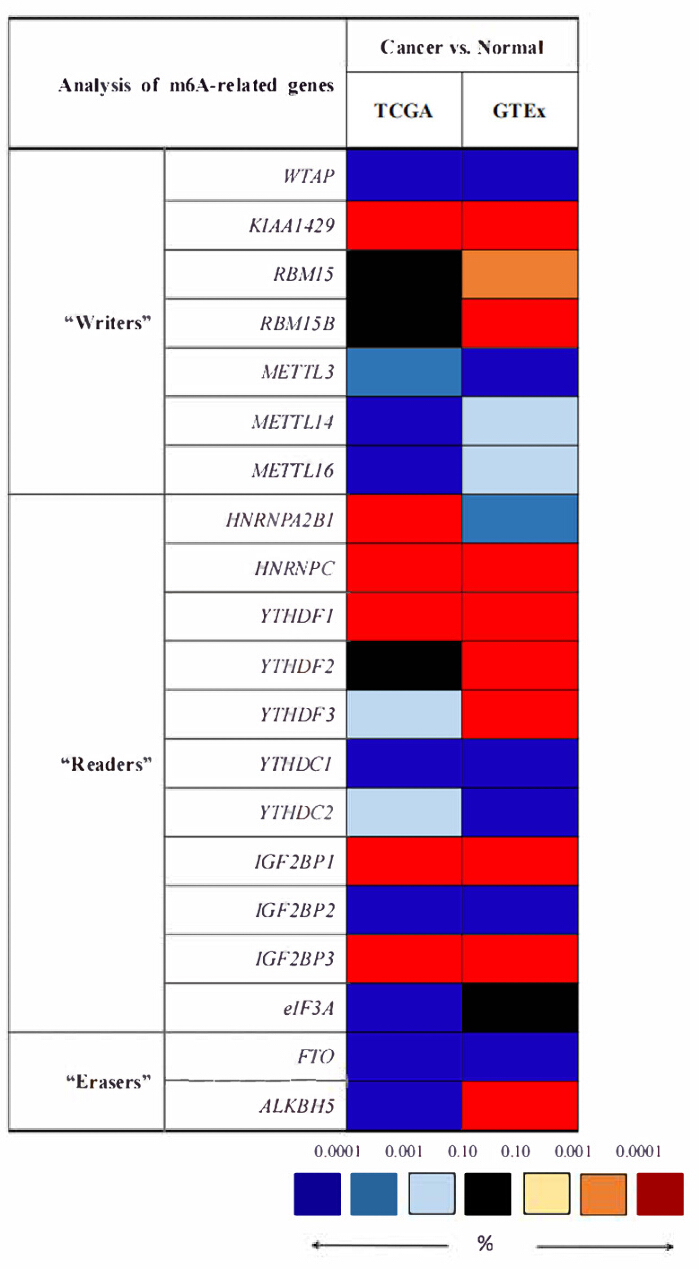
איור 1. ביטוי mRNA שונה של גנים הקשורים ל-N6-מתילאדנוזין (m6A) בסרטן השד. אדום מסמל עליית רגולציה; כחול מציין ירידה ברגולציה, שחור מציין שאין הבדל בביטוי, ולבן מציין שאין נתוני ביטוי גנים. קידוד צבעים משקף מובהקות סטטיסטית. מבחן Dunnett-Tukey-Kramer שימש להשוואות זוגיות. הערה: "תקין" כולל את ההשוואה בין גידולים ל-NATs ב-TCGA, וכן את ההשוואה בין גידולים לרקמות בריאות ב-GTEx. קיצורים: NATs = רקמות סמוכות תקינות; TCGA = אטלס הגנום של הסרטן; GTEx = ביטוי גנוטיפ-רקמה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
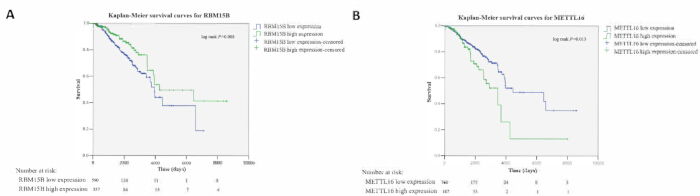
איור 2. קשר בין ביטוי mRNA חריג של ה"כותבים" של m6A RBM15B ו-METTL16 לבין הישרדות כוללת בקרב חולות סרטן השד. (א) ביטוי נמוך של RBM15B היה קשור להישרדות כוללת קצרה יותר (מבחן דירוג לוגריתם, P = 0.008, <0.01); (B) ביטוי גבוה של METTL16 היה קשור לתחזית לקויה (מבחן דירוג-לוגרימית, P = 0.013, <0.05). המטופלים חולקו לקבוצות בעלות ביטוי גבוה ונמוך באמצעות ערך החיתוך האופטימלי. n = 947 (קבוצת TCGA-BRCA). העקומות הכחולות והירוקות מייצגות את קבוצות הביטוי הנמוך והגבוה, בהתאמה. יחידת הביטוי של mRNA הייתה Fragments Per Kilobase של תמלול למיליון קריאות ממופות. קיצור: TCGA-BRCA = אטלס הגנום של סרטן קרצינומה פולשנית לשד; m6A = N6-מתילאדנוזין. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
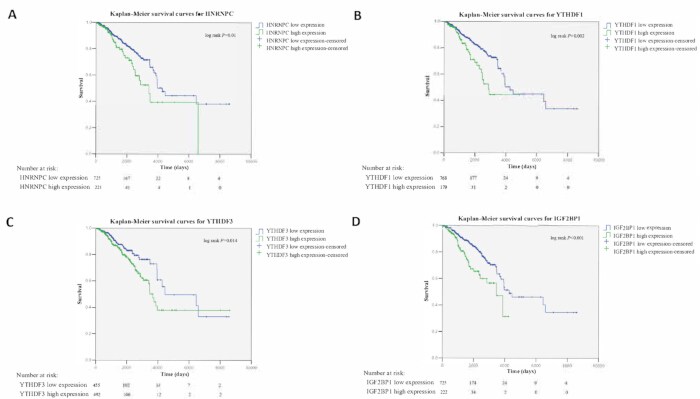
איור 3. קורלציה בין ביטוי mRNA חריג של "קוראי m6A" HNRNPC, YTHDF1, YTHDF3 ו-IGF2BP1 לבין ההישרדות הכוללת בקרב חולות סרטן השד. (א) ביטוי גבוה של mRNA ב-HNRNPC היה קשור לירידה בהישרדות הכוללת (מבחן דירוג לוגריתם, P = 0.01, <0.05). (B-D) ביטוי גבוה של YTHDF1, YTHDF3 ו-IGF2BP1 היה קשור באופן מובהק לתחזית גרועה יותר (מבחן דירוג לוגריתם, P = 0.002, P = 0.014, ו-P < 0.001, בהתאמה). המטופלים חולקו לקבוצות בעלות ביטוי גבוה ונמוך באמצעות ערך החיתוך האופטימלי. n = 947 (קבוצת TCGA-BRCA). העקומות הכחולות והירוקות מייצגות את קבוצות הביטוי הנמוך והגבוה, בהתאמה. יחידת ביטוי ה-mRNA של הגנים הייתה Fragments Per Kilobase של תמלול למיליון קריאות ממופות. קיצורים: TCGA-BRCA = אטלס הגנום הסרטני קרצינומה פולשנית לשד; m6A = N6-מתילאדנוזין. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
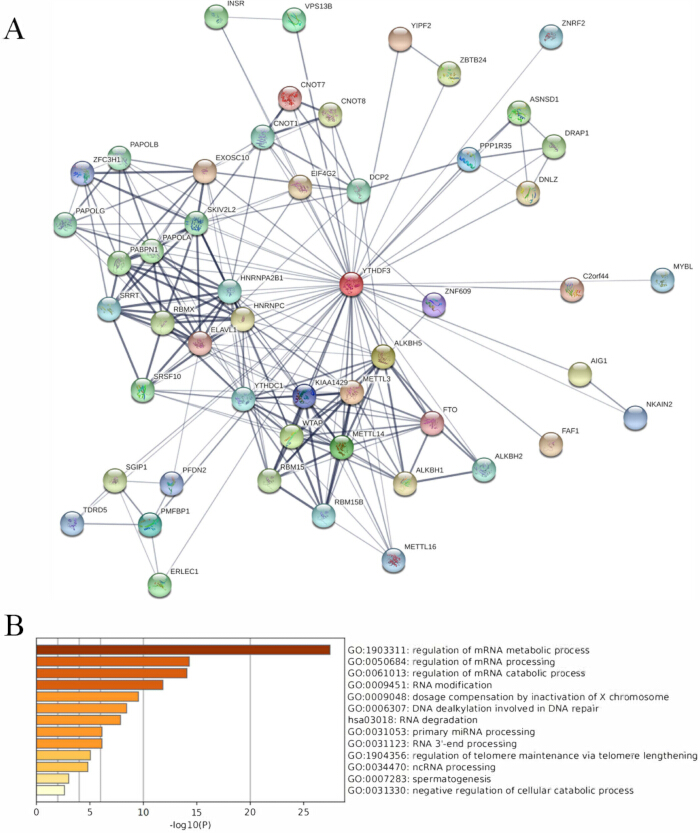
איור 4. רשת הרגולציה המולקולרית הפוטנציאלית של YTHDF3. (A) רשת אינטראקציה של חלבונים שנבנתה על ידי שאילתה במסד הנתונים STRING עם YTHDF3 כפיתיון (ציון ביטחון ≥ 0.4, אינטראקטורים מקסימליים = 50). רוחבי הקצוות מסמנים את חוזק הראיות התומכות. (ב) ניתוח מטאסקייפ זיהה 13 אשכולות פונקציונליים משמעותיים (P < 0.01, מספר מינימלי = 3, מקדם העשרה > 1.5). מקורות אונטולוגיה כללו את אנציקלופדיית קיוטו למסלולי גנים וגנומים ואת תהליכי האונטולוגיה הביולוגיים של הגנים. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
| פרמטרים | משאבי אנוש | 95% CI | ערך p |
| YTHDF3 | 1.024 | 1.003-1.046 | 0.024 |
| גיל | 1.036 | 1.023-1.050 | <0.001 |
| המרוץ | 1.275 | 0.892-1.821 | 0.182 |
| במה | 2.263 | 1.796-2.851 | <0.001 |
טבלה 1: תוצאות ניתוח רגרסיית הישרדות רב-משתנית של גן YTHDF3 הקשור ל-m6A. קיצורים: HR = יחס סיכון; 95% CI = רווח ביטחון.
איור משלים S1. רמות החלבון וה-mRNA של YTHDF3 בתתי-סוגים שונים של סרטן השד ורקמות תקינות מתוך מאגרי הנתונים CPTAC ו-TCGA. ביטוי החלבון של YTHDF3 ב-(א) גידולים ראשוניים ורקמות תקינות ו-(ב) תת-סוגים של קרצינומה פולשנית בשד. ערכי Z מציינים את מספר סטיות התקן מהערך החציוני בין דגימות עבור סוג הסרטן המתאים. ערכי יחס הספירה הספקטרלי של CPTAC log2 ננורמו תחילה בתוך כל פרופיל דגימה ולאחר מכן בין הדגימות. (ג) ביטוי ה-mRNA (RNA-seq, קטעים לכל קילובסיס של תמלול למיליון קריאות ממופות) של YTHDF3 בתת-סוגים שונים של קרצינומה פולשנית לשד. קיצורים: CPTAC = הקונסורציום לניתוח גידולים פרוטאומיים קליניים; TCGA = אטלס הגנום של הסרטן. אנא לחצו כאן להורדת הקובץ הזה.
איור משלים S2. מצב המתילציה של הפרומוטרים של גנים הקשורים ל-m6A שנשלף ממאגר MethHC. (א) מתילציה מעודדת של "כותבים" מסוג m6A בסרטן השד ובביקורת תקינה. (ב) מתילציה מעודדת של "מחקי m6A" בסרטן השד ובביקורת תקינה. (C) מתילציה מעודדת של "קוראים" m6A בסרטן השד ובביקורת תקינה. אדום, סרטן השד; ירוק, בקרות רגילות. *P < 0.05, **P < 0.005. קיצור: m6A = N6-מתילאדנוזין. אנא לחצו כאן להורדת הקובץ הזה.
איור משלים S3. שינויים במוטציות גנטיות ומספר עותקים נותחו על ידי cBioPortal עבור "כותבים" ו"מחקים" של m6A (TCGA, Provisional, n = 1,108). (א) שינויים ב"כותבים" של m6A. (B) שינויים ב"מחקי m6A". גרפים של בר מציינים את תדירות כל סוג שינוי: מוטציות של missense, הגברות, מחיקות עמוקות ושינויים מרובים. רק גנים עם תדירות שינוי ≥ 1% מוצגים. תדירות השינוי הכוללת לכל גן מוצגת מימין. קיצורים: TCGA = אטלס הגנום של הסרטן; m6A = N6-מתילאדנוזין. אנא לחצו כאן להורדת הקובץ הזה.
איור משלים S4. שינויים במוטציה גנטית ומספר עותקים נותחו על ידי cBioPortal עבור "קוראים" m6A (TCGA, Provisional, n = 1,108). גרפים של בר מציינים את תדירות כל סוג שינוי: מוטציות של missense, הגברות, מחיקות עמוקות ושינויים מרובים. רק גנים עם תדירות שינוי ≥ 1% מוצגים. תדירות השינוי הכוללת לכל גן מוצגת מימין. קיצורים: TCGA = אטלס הגנום של הסרטן; m6A = N6-מתילאדנוזין. אנא לחצו כאן להורדת הקובץ הזה.
איור משלים S5. קורלציה של YTHDF3 עם הישרדות חולות סרטן השד ב-KMplotter. (א) ביטוי גבוה של mRNA ב-YTHDF3 היה קשור לירידה בהישרדות הכוללת (P = 0.011, <0.05). (B-D) הביטוי הגבוה של YTHDF3 היה קשור באופן משמעותי להישרדות נמוכה יותר ללא חזרה, הישרדות מרחוק ללא גרורות, והישרדות לאחר התקדמות (P = 1.9e-09, P = 0.06, ו-P = 0.029, בהתאמה). כל ערכי ה-P חושבו על ידי מבחן ה-log-rank. מספר המטופלים בסיכון מוצג מתחת לכל גרף. החיתוך האופטימלי נקבע על ידי תכונת החיתוך הטובה ביותר של הכלי לבחירה אוטומטית. קיצור: KMplotter = מתכנן קפלן-מאייר. אנא לחצו כאן להורדת הקובץ הזה.
איור משלים S6. קורלציה בין ביטוי YTHDF3 לחדירה חיסונית בסרטן השד. ביטוי YTHDF3 היה בקורלציה חיובית לרמות החדירה של תאי B, תאי T של CD4+ , תאי T של CD8+ , מקרופאגים, נויטרופילים ו-DCs במאגר הנתונים של TIMER. טוהר הגידול שימש כקוואריאט בניתוח הקורלציה החלקית של ספירמן. קיצורים: DCs = תאים דנדריטיים; TIMER = משאב הערכת מערכת החיסון של הגידול. אנא לחצו כאן להורדת הקובץ הזה.
איור משלים S7. אימות תגובת שרשרת פולימראז עם שעתוק הפוך כמותי של ביטוי mRNA YTHDF3 ב-20 רקמות סרטן שד זוגיות ורקמות תקינות סמוכות. רמות ה-mRNA ב-YTHDF3 נורמל ל-β-אקטין. הנתונים מוצגים כערכי 2⁻ΔΔCt. ההשוואה הסטטיסטית בוצעה באמצעות מבחן t זוגי של סטודנט על ערכי ΔCt (P = 0.001). קיצורים: NC = רקמות שד תקינות סמוכות; BrCa = רקמות סרטן השד. אנא לחצו כאן להורדת הקובץ הזה.
טבלה משלימה S1. תוצאות מסוכמות של ניתוח הישרדות רב-משתני בגנים הקשורים ל-m6A. קיצורים : HR = יחס סיכון; 95% CI = רווח ביטחון. אנא לחצו כאן להורדת הקובץ הזה.
טבלה משלימה S2. תוצאות האנוטציה וההעשרה של 13 גנים הקשורים ל-YTHDF3 בהתבסס על Metascape.אנא לחצו כאן להורדת הקובץ הזה.
טבלה משלימה S3. מידע קליני מ-20 דגימות סרטן שד זוגיות.אנא לחצו כאן להורדת הקובץ הזה.
דיון
למרות השיפורים הטיפוליים, אבחון מוקדם וטיפול מותאם אישית לסרטן השד ממשיכים להיות אתגר, המחייבים גילוי מטרות מולקולריות חדשות21. מחקר זה שילב נתוני מולטי-אומיקס לאפיון גנים הקשורים ל-m6A בסרטן השד. התוצאות שלנו מראות חוסר ויסות נרחב של גנים אלו, ברובו בלתי תלוי במתילציה של פרומטר או הגברת גנים, ומקשרים ביטוי חריג של מספר גנים, במיוחד YTHDF3, לתחזית ירודה. אישרנו בנוסף את העלאת ויסות YTHDF3 בדגימות קליניות וחיזינו את מעורבותה במסלולים הקשורים לסרטן.
מתילציה של m6A מותקנת על ידי קומפלקס "כותב" הכולל WTAP, KIAA1429, RBM15, METTL3 ו-METTL1422. למרות ש-WTAP הוא אונקוגני במאירויות מגוונות 23,24,25, הירידה בוויסות שלה בסרטן השד מרמזת על תפקודים תלויים בהקשר. העלאת KIAA1429 תואמת את תפקידה המדווח בוויסות CDK1 בסרטןהשד 25. RBM15, הידוע כמשפיע על המטופואזיס וסרקומות26,27, עבר ויסות מוגבר, בעוד שהגברת ויסות RBM15B הייתה קשורה להישרדות טובה יותר, בהתאם לקורלציה החיובית שלו עםBAP1 28. ירידה ברגולציה של METTL3, למרות דיווחים על עיכוב let-7g, נצפתה עלידי אחרים 29,30. הירידה METTL14 תואמת את תפקידה כמדכא גידולים באמצעות שינוי m6A31. הביטוי METTL16 נותר שנוי במחלוקת ודורש מחקר נוסף29,32.
לגבי "מחקים", FTO היה מופחת בקבוצה שלנו, בדומה למחקרים מבוססי TCGA29, אם כי דיווחים מנוגדים מצביעים על כך שהוא מקדם התקדמות דרך BNIP333. ALKBH5 הראה ביטוי משתנה בהתאם לקבוצת הביקורת, והוא מעורב בשמירה על גזע סרטן השד תחת היפוקסיה34,35.
ה"קוראים" המכילים את הדומיין של YTH מזהים את m6A, יחד עם HNRNPC ו-HNRNPA2B136. HNRNPA2B1 עברה רגולציה גבוהה יותר, בהתאם לתפקידה ב-STAT3/ERK1/2 שסימן 37.38. הגברת HNRNPC תואמת את תפקידה בוויסות תגובות אינטרפרון מונעות על ידי dsRNA39.
YTHDF1 ו-YTHDF2 מפגינים תפקידים כפולים בסוגי סרטן שונים40,41. ראיות מצטברות מצביעות על כך ש-YTHDF3 מעורבת בתהליכים אונקוגניים: היא מקדמת קרצינומה הפטותאלית באמצעות EGFR/STAT342, גליובלסטומה דרך EGFR/ATK/ERK/p21 43, וגרורות סרטן צוואר הרחם באמצעות תכנות מחדש מטבולי44. המחקר שלנו חשף הגברת ויסות של YTHDF1, YTHDF2 ו-YTHDF3 בסרטן השד לעומת רקמות בריאות, כאשר העלאת ויסות YTHDF3 אושרה נוספת בניסויי. דבר זה תומך במחקר נוסף של YTHDF3 בסרטן השד. YTHDC1 ו-YTHDC2 עברו ירידה בוויסות, אם כי מחקרים אחרים מדווחים על תפקידם הפרומטסטטי בסרטן רירית הרחם והמעי הגס45,46.
חלבוני IGF2BP משמשים גם כקוראי m6A47. IGF2BP1 העלאת רגולציה מתיישבת עם תפקידה הידוע בתמיכה בצמיחה קלוגנית48. IGF2BP2 הופחתה בוויסות, ככל הנראה בשל מתילציה של פרומוטר, בניגוד לדיווחים על תפקידה ההתפשטותי49. העלאת IGF2BP3 תואמת את קידום ההתרבות באמצעות TRIM2550 וגרורות שיתופיות עם IGF2BP2 בסרטן השד השלילי51. eIF3A, אף על פי שהופחת כאן, הוצע כיעד טיפולי52,53. דווח כי עלייה במספר העותקים קשורה ל-YTHDF1 ולביטוי IGF2BP1 בסרטן אחר54. ממצאים אלו מחזקים כי חוסר ויסות של m6A נפוץ בסרטן השד.
באופן קריטי, זיהינו את YTHDF3 כגורם פרוגנוסטי עצמאי, המאשר מחקרים עדכניים 55,56,57,58,59. גנים אחרים ל-m6A כמו FTO ו-IGF2BP3 נקשרו גם הם לתחזית לקויה ולהתנגדות כימונית-כימותית בסרטן השד 33,60,61.
העשרת המסלולים שלנו הדגישה את התפקידים הצפויים של YTHDF3 במטבוליזם RNA62. חשוב יותר, הוא הציע מעורבות בתיקון דילקילציית DNA באמצעות בני משפחת ALKBH63,64. יתרה מזאת, קישורים לעיבוד pri-miRNA דרך HNRNPA2B1, SRRT ו-METTL3 65,66,67,68, וכן לייצוב טלומראז דרך EXOSC10 ו-DCP269, מצביעים על מנגנונים רב-ממדיים אפשריים. מעניין לציין כי ביטוי יתר של YTHDF3 נקשר לגרורות מוח בסרטן השד על ידי שיפור התרגום של ST6GALNAC5 ו-GJA170. מחקרים עדכניים הרחיבו עוד יותר את המגוון האונקוגני שלו: הוכח כי YTHDF3 משפר את הגליקוליזיס וההתרבות דרך ציר mTOR-HIF1α-LDHA71; לקדם גרורות עצם אוסטאוליטיות באמצעות תרגום תלוי m6A של ZEB1 ו-SMAD572; בסרטן שד משולש-שלילי, YTHDF3 מייצב את ה-mRNA של CENPI כדי להניע את יצירת הגידולים73; והוא מקל על מעבר אפיתלי-מזנכימלי וגרורות על ידי גיוס eIF4B לגירוי תרגום Notch274. באופן עקבי, מחקרים עדכניים מדגישים עוד יותר את רשת הרגולציה הרחבה יותר של m6A בסרטן השד, כולל תכנות מחדש מתילציה בתיווך piR-1170/WTAP בגרורות מוח75 והתדרדרות התלויה ב-POP1, המוכרת על ידי YTHDF2, של mRNA CDKN1A ב-TNBC76. מחקרים אלו מצביעים על כך ש-YTHDF3 עשוי להיות מעורב בתהליכים ממאירים מגוונים. לכן, YTHDF3 עשוי לייצג סמן ביוגנוסטי מבטיח, אם כי מחקרים מכניים נוספים על תפקידו בצמיחת סרטן השד, אפופטוזיס וגרורות הם חיוניים.
מעניין לציין כי ניתוח TIMER הראה מתאם חיובי כללי בין ביטוי YTHDF3 לבין רמות החדירה של מספר תת-קבוצות תאי חיסון בסרטן השד. הבסיס הביולוגי לתצפית זו אינו ידוע כיום ועשוי לשקף שינוי כללי במיקרו-סביבת הגידול בגידולים בעלי YTHDF3 גבוה. נדרשים מחקרים ייעודיים באימונוגנומיים ותפקודיים כדי לנתח את התפקיד הספציפי של YTHDF3 בעיצוב מערכת החיסון של סרטן השד.
למחקר זה יש מספר מגבלות. ראשית, הניתוחים מתבססים בעיקר על מאגרי נתונים ציבוריים; שילוב נתוני TCGA ו-GTEx עשוי להכניס אפקטים אצווה בשל הבדלים בעיבוד דגימה, פלטפורמות ריצוף וצינורות נרמול, והאופי הרטרוספקטיבי של מסדי נתונים אלו נושא הטיות מובנות בבחירת ואניווט. שנית, קבוצת האימות הקליני הייתה קטנה עם מעקב מוגבל, וגנים הקשורים ל-m6A שהתגלו לאחרונה לא נכללו. שלישית, אימות קוהורט עצמאי לערך הפרוגנוסטי של YTHDF3 חסר, והאי-עקביות בין mRNA לביטוי חלבונים נותרו בלתי פתורים. יתרה מזאת, עדויות ישירות ב-vivo ובחוץ-גופית לתפקוד הביולוגי של YTHDF3 בסרטן השד אינן קיימות, לא בוצעו ניתוחים לרגישות תרופתית או תגובה לטיפול, והמנגנונים הספציפיים שבאמצעותם YTHDF3 מתווך שינוי m6A ביעדיו במורד הזרם לא נחקרו. הסתייגויות אלו מחייבות פרשנות זהירה של ממצאינו בזהירות. מחקרים עתידיים פרוספקטיביים עם פרוטוקולים סטנדרטיים, גודל מדגמים גדולים יותר וניסויים פונקציונליים נחוצים כדי לאמת את YTHDF3 כסמן ביולוגי ולהבהיר את תפקידו המכניסטי בסרטן השד.
לסיכום, ניתוח אינטגרטיבי זה העריך באופן מקיף גנים הקשורים ל-m6A בסרטן השד. בעוד ששינויים גנטיים ואפיגנטיים השפיעו באופן מוגבל על ביטוי הגנים, הגנים היו באופן כללי לא מוסדר והיו קשורים לתחזית. הממצאים שלנו מצביעים על כך ש-YTHDF3 עשוי לשמש כסמן ביולוגי עצמאי, המחייב חקירה ביולוגית נוספת של סרטן השד.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
עבודה זו מומנה על ידי קרן המדע הטבעי של מחוז סצ'ואן (מספר מענק: 2022NSFSC1425), פרויקט מחקר גידולים מיוחד של איגוד הרפואה של סצ'ואן (מספר מענק: 2024HR20), פרויקט המחקר של אוניברסיטת הרפואה הדרום-מערבית של לוז'ואו (מספר מענק: 2024LZXNYDJ051), קרן מחקר האונקולוגיה הקלינית של בייג'ינג שיסיקה (מספר מענק: Y-SS2025MS-0009), וקרן פיתוח רפואי של בייג'ינג קצ'ואנג (מספר מענק: KC2023-JX-0288-BM74).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| Breast Cancer Gene-Expression Miner v4.7 | Omics Data Science Unit of Integrated Center for Oncology | http://bcgenex.ico.unicancer.fr/ | משמש להשגת נתוני ביטוי של רקמת שד תקינה מ-GTEx; רשום ב שיטות/זמינות נתונים |
| cBioPortal | לא חל | https://www.cbioportal.org/ | ניתוח שינויים גנטיים ושכפול מספרי עותקים; רשום בשיטות/ זמינות נתונים |
| Clinical Proteomic Tumor Analysis Consortium (CPTAC) | Clinical Proteomic Tumor Analysis Consortium | לא חל | מקור קובץ נתונים פרוטאומי דרך UALCAN; רשום בשיטות/זמינות נתונים |
| Genotype-Tissue Expression (GTEx) project | GTEx Consortium | dbGaP accession phs000424.v8.p2 | מקור נתוני ביטוי של רקמת שד תקינה; רשום בשיטות/זמינות נתונים |
| Hieff qPCR SYBR Green Master Mix (No Rox) | YEASEN | תערובת אב מיקס ל-qPCR; רשום בתיקון הכותב | |
| Hifair III 1st Strand cDNA Synthesis SuperMix for qPCR | YEASEN | סינתזה של גדיל ראשון של cDNA; רשום בתיקון הכותב | |
| Kaplan-Meier Plotter (KMplotter) | לא חל | https://kmplot.com | כלי אימות הישרדות מקוון; רשום בשיטות/זמינות נתונים |
| Metascape | נתמך על ידי מענקי NIH U19 AI106754 U19 AI135972 R01 DA03373 | http://metascape.org/ | ניתוח העשרה של אנוטציה לגנים ומסלולי גנים; רשום ב שיטות/זמינות נתונים |
| MethHC | לא חל | http://methhc.mbc.nctu.edu.tw/ | נתוני מתילציה של פרומוטור DNA/ מקור; רשום בשיטות/זמינות נתונים |
| NanoDrop 2000 spectrophotometer | Thermo Fisher Scientific | מדידת ריכוז וטוהר RNA; רשום בתיקון הכותב | |
| QuantStudio 7 Flex Real-Time PCR System | Applied Biosystems | PCR קוונטיטטיבי בזמן אמת; רשום בתיקון הכותב | |
| SPSS 13.0 | לא סופק במאמר | Version 13.0 | ניתוחים סטטיסטיים; רשום בתיקון הכותב |
| STRING v12.0 | STRING Consortium | https://string-db.org/ | ניתוח רשת אינטראקציות חלבון- חלבון; ציון אמון 0.4; רשום ב איור 4/זמינות נתונים |
| The Cancer Genome Atlas (TCGA-BRCA) | The Cancer Genome Atlas | TCGA-BRCA | מקור ביטוי גנים, נתונים קליניים, שינויים גנטיים/מספרי עותקים ברשומה; רשום בשיטות/ זמינות נתונים |
| The Human Protein Atlas | The Human Protein Atlas | https://www.proteinatlas.org/ | מקור להשגת נתוני RNA-seq של ביטוי סרטן השד TCGA ו נתונים קליניים; רשום בשיטות/ זמינות נתונים |
| TIMER | X Shirley Liu Lab | https://cistrome.shinyapps.io/timer/ | ניתוח חדירת חיסון; רשום ב שיטות/זמינות נתונים |
| TRIzol reagent | Invitrogen | מיצוי RNA; רשום בתיקון הכותב | |
| UALCAN | The University of Alabama at Birmingham | http://ualcan.path.uab.edu/ | ניתוח ביטוי חלבון ו-mRNA על סמך נתוני CPTAC ו TCGA; רשום בשיטות/זמינות נתונים |
מקורות
- Yeo SK, Guan JL. Breast cancer: multiple subtypes within a tumor? Trends Cancer. 2017;3(11):753-60.
- Sung H et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-49.
- Bennett RL, Licht JD. Targeting epigenetics in cancer. Annu Rev Pharmacol Toxicol. 2018;58:187-207.
- Wu L et al. Changes of N6-methyladenosine modulators promote breast cancer progression. BMC Cancer. 2019;19(1):326.
- Roignant JY, Soller M. m6A in mRNA: an ancient mechanism for fine-tuning gene expression. Trends Genet. 2017;33(6):380-90.
- Pan Y et al. Multiple functions of m6A RNA methylation in cancer. J Hematol Oncol. 2018;11(1):48.
- Uhlen M et al. Towards a knowledge-based Human Protein Atlas. Nat Biotechnol. 2010;28(12):1248-50.
- Győrffy B. Survival analysis across the entire transcriptome identifies biomarkers with the highest prognostic power in breast cancer. Comput Struct Biotechnol J. 2021;19:4101-9.
- Jézéquel P et al. bc-GenExMiner 4.5: new mining module computes breast cancer differential gene expression analyses. Database (Oxford). 2021;2021:baab007.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369(6509):1318-30.
- Chandrashekar DS et al. UALCAN: an update to the integrated cancer data analysis platform. Neoplasia. 2022;25:18-27.
- Cerami E et al. The cBio cancer genomics portal: an open platform for exploring multidimensional cancer genomics data. Cancer Discov. 2012;2(5):401-4.
- Huang WY et al. MethHC: a database of DNA methylation and gene expression in human cancer. Nucleic Acids Res. 2015;43(Database issue):D856-61.
- Szklarczyk D et al. STRING v10: protein-protein interaction networks, integrated over the tree of life. Nucleic Acids Res. 2015;43(Database issue):D447-52.
- Zhou Y et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 2019;10(1):1523.
- Li T et al. TIMER: a web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 2017;77(21):e108-10.
- Wang Y et al. Zinc finger and SCAN domain-containing 18 suppresses the proliferation, self-renewal, and drug resistance of glioblastoma cells. Heliyon. 2023;9(6):e17000.
- Cancer Genome Atlas Research Network. The Cancer Genome Atlas Pan-Cancer analysis project. Nat Genet. 2013;45(10):1113-20.
- Aran D et al. Comprehensive analysis of normal adjacent to tumor transcriptomes. Nat Commun. 2017;8(1):1077.
- Xiang TX et al. Aberrant promoter CpG methylation and its translational applications in breast cancer. Chin J Cancer. 2013;32(1):12-20.
- Pasculli B, Barbano R, Parrella P. Epigenetics of breast cancer: biology and clinical implication in the era of precision medicine. Semin Cancer Biol. 2018;51:22-35.
- Meyer KD, Jaffrey SR. Rethinking m6A readers, writers, and erasers. Annu Rev Cell Dev Biol. 2017;33:319-42.
- Jo HJ et al. WTAP regulates migration and invasion of cholangiocarcinoma cells. J Gastroenterol. 2013;48(11):1271-82.
- Chen Y et al. WTAP facilitates progression of hepatocellular carcinoma via m6A-HuR-dependent epigenetic silencing of ETS1. Mol Cancer. 2019;18(1):127.
- Qian JY et al. KIAA1429 acts as an oncogenic factor in breast cancer by regulating CDK1 in an N6-methyladenosine-independent manner. Oncogene. 2019;38(33):6123-41.
- Garcia-Dios DA et al. MED12, TERT promoter and RBM15 mutations in primary and recurrent phyllodes tumours. Br J Cancer. 2018;118(2):277-84.
- Hu M, Yang Y, Ji Z, Luo J. RBM15 functions in blood diseases. Curr Cancer Drug Targets. 2016;16(7):579-85.
- Shahriyari L, Abdel-Rahman M, Cebulla C. BAP1 expression is prognostic in breast and uveal melanoma but not colon cancer and is highly positively correlated with RBM15B and USP19. PLoS One. 2019;14(2):e0211507.
- Zhang B et al. Expression and prognostic characteristics of m6A RNA methylation regulators in breast cancer. Front Genet. 2020;11:604597.
- Cai X et al. HBXIP-elevated methyltransferase METTL3 promotes the progression of breast cancer via inhibiting tumor suppressor let-7g. Cancer Lett. 2018;415:11-9.
- Gu C et al. Mettl14 inhibits bladder TIC self-renewal and bladder tumorigenesis through N6-methyladenosine of Notch1. Mol Cancer. 2019;18(1):168.
- Yeon SY et al. Frameshift mutations in repeat sequences of ANK3, HACD4, TCP10L, TP53BP1, MFN1, LCMT2, RNMT, TRMT6, METTL8 and METTL16 genes in colon cancers. Pathol Oncol Res. 2018;24(3):617-22.
- Niu Y et al. RNA N6-methyladenosine demethylase FTO promotes breast tumor progression through inhibiting BNIP3. Mol Cancer. 2019;18(1):46.
- Zhang C et al. Hypoxia-inducible factors regulate pluripotency factor expression by ZNF217- and ALKBH5-mediated modulation of RNA methylation in breast cancer cells. Oncotarget. 2016;7(40):64527-42.
- Zhang C et al. Hypoxia induces the breast cancer stem cell phenotype by HIF-dependent and ALKBH5-mediated m6A-demethylation of NANOG mRNA. Proc Natl Acad Sci U S A. 2016;113(14):E2047-56.
- Liao S, Sun H, Xu C. YTH domain: a family of N6-methyladenosine (m6A) readers. Genomics Proteomics Bioinformatics. 2018;16(2):99-107.
- Alarcón CR et al. HNRNPA2B1 is a mediator of m6A-dependent nuclear RNA processing events. Cell. 2015;162(6):1299-308.
- Hu Y et al. Splicing factor hnRNPA2B1 contributes to tumorigenic potential of breast cancer cells through STAT3 and ERK1/2 signaling pathway. Tumour Biol. 2017;39(3):1010428317694318.
- Wu Y et al. Function of HNRNPC in breast cancer cells by controlling the dsRNA-induced interferon response. EMBO J. 2018;37(23):e99017.
- Nishizawa Y et al. Oncogene c-Myc promotes epitranscriptome m6A reader YTHDF1 expression in colorectal cancer. Oncotarget. 2018;9(7):7476-86.
- Zhong L et al. YTHDF2 suppresses cell proliferation and growth via destabilizing the EGFR mRNA in hepatocellular carcinoma. Cancer Lett. 2019;442:252-61.
- Hu B et al. m6A reader YTHDF3 triggers the progression of hepatocellular carcinoma through the YTHDF3/m6A-EGFR/STAT3 axis and EMT. Mol Carcinog. 2023;62(10):1599-614.
- Lee HH et al. YTHDF3 modulates EGFR/AKT/ERK/p21 signaling axis to promote cancer progression and osimertinib resistance of glioblastoma cells. Anticancer Res. 2023;43(12):5485-98.
- Zhong S et al. The inhibition of YTHDF3/m6A/LRP6 reprograms fatty acid metabolism and suppresses lymph node metastasis in cervical cancer. Int J Biol Sci. 2024;20(3):916-36.
- Zhang B et al. YT521 promotes metastases of endometrial cancer by differential splicing of vascular endothelial growth factor A. Tumour Biol. 2016;37(12):15543-9.
- Tanabe A et al. RNA helicase YTHDC2 promotes cancer metastasis via the enhancement of the efficiency by which HIF-1α mRNA is translated. Cancer Lett. 2016;376(1):34-42.
- Huang H et al. Recognition of RNA N6-methyladenosine by IGF2BP proteins enhances mRNA stability and translation. Nat Cell Biol. 2018;20(3):285-95.
- Fakhraldeen SA et al. Two isoforms of the RNA binding protein, coding region determinant-binding protein (CRD-BP/IGF2BP1), are expressed in breast epithelium and support clonogenic growth of breast tumor cells. J Biol Chem. 2015;290(21):13386-400.
- Li Y, Francia G, Zhang JY. p62/IMP2 stimulates cell migration and reduces cell adhesion in breast cancer. Oncotarget. 2015;6(32):32656-68.
- Wang Z et al. Blockade of miR-3614 maturation by IGF2BP3 increases TRIM25 expression and promotes breast cancer cell proliferation. EBioMedicine. 2019;41:357-69.
- Kim HY, Ha Thi HT, Hong S. IMP2 and IMP3 cooperate to promote the metastasis of triple-negative breast cancer through destabilization of progesterone receptor. Cancer Lett. 2018;415:30-9.
- Meyer KD et al. 5′ UTR m6A promotes cap-independent translation. Cell. 2015;163(4):999-1010.
- Yin JY et al. eIF3a: a new anticancer drug target in the eIF family. Cancer Lett. 2018;412:81-7.
- Bell JL et al. IGF2BP1 harbors prognostic significance by gene gain and diverse expression in neuroblastoma. J Clin Oncol. 2015;33(11):1285-93.
- Liu L et al. N6-methyladenosine-related genomic targets are altered in breast cancer tissue and associated with poor survival. J Cancer. 2019;10(22):5447-59.
- Anita R, Paramasivam A, Priyadharsini JV, Chitra S. The m6A readers YTHDF1 and YTHDF3 aberrations associated with metastasis and predict poor prognosis in breast cancer patients. Am J Cancer Res. 2020;10(8):2546-54.
- Zhao G et al. Gene signatures and cancer-immune phenotypes based on m6A regulators in breast cancer. Front Oncol. 2021;11:756412.
- Demircan T, Yavuz M, Akgul S. m6A pathway regulators are frequently mutated in breast invasive carcinoma and may play an important role in disease pathogenesis. OMICS. 2021;25(10):660-78.
- Lv W et al. Analysis and validation of m6A regulatory network: a novel circBACH2/hsa-miR-944/HNRNPC axis in breast cancer progression. J Transl Med. 2021;19(1):527.
- Ohashi R et al. IMP3 contributes to poor prognosis of patients with metaplastic breast carcinoma: a clinicopathological study. Ann Diagn Pathol. 2017;31:30-5.
- Ohashi R et al. Prognostic value of IMP3 expression as a determinant of chemosensitivity in triple-negative breast cancer. Pathol Res Pract. 2017;213(9):1160-5.
- Chen XY, Zhang J, Zhu JS. The role of m6A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Drabløs F et al. Alkylation damage in DNA and RNA: repair mechanisms and medical significance. DNA Repair (Amst). 2004;3(11):1389-407.
- Fedeles BI et al. The AlkB family of Fe(II)/α-ketoglutarate-dependent dioxygenases: repairing nucleic acid alkylation damage and beyond. J Biol Chem. 2015;290(34):20734-42.
- Villarroya-Beltri C et al. Sumoylated hnRNPA2B1 controls the sorting of miRNAs into exosomes through binding to specific motifs. Nat Commun. 2013;4:2980.
- Hu X et al. Depletion of Ars2 inhibits cell proliferation and leukemogenesis in acute myeloid leukemia by modulating the miR-6734-3p/p27 axis. Leukemia. 2019;33(5):1090-101.
- Chen Y et al. Ars2 promotes cell proliferation and tumorigenicity in glioblastoma through regulating miR-6798-3p. Sci Rep. 2018;8(1):15602.
- Alarcón CR et al. N6-methyladenosine marks primary microRNAs for processing. Nature. 2015;519(7544):482-5.
- Shukla S et al. Inhibition of telomerase RNA decay rescues telomerase deficiency caused by dyskerin or PARN defects. Nat Struct Mol Biol. 2016;23(4):286-92.
- Chang G et al. YTHDF3 induces the translation of m6A-enriched gene transcripts to promote breast cancer brain metastasis. Cancer Cell. 2020;38(6):857-71.e7.
- Liu Z et al. YTHDF3 mediates the occurrence and development of breast cancer by regulating glycolysis through the mTOR-HIF1α-LDHA axis. J Cell Mol Med. 2026;30(9):e71105.
- Xu L et al. YTHDF3 promotes breast cancer osteolytic bone metastasis by enhancing the translation of ZEB1 and SMAD5. Oncogenesis. 2025;14(1):41.
- Zhang Y, Chen S, Wu Q. The m6A reader YTHDF3 promotes TNBC progression by regulating CENPI stabilization. Front Oncol. 2025;15:1546723.
- Chen H et al. YTHDF3 drives tumor growth and metastasis by recruiting eIF4B to promote Notch2 translation in breast cancer. Cancer Lett. 2025;614:217534.
- Luo Y et al. piR-1170 drives brain metastasis and immune evasion via WTAP-mediated m6A methylation reprogramming in triple-negative breast cancer. Mol Cancer. 2026;25(1):52.
- Zhang C et al. POP1 facilitates proliferation in triple-negative breast cancer via m6A-dependent degradation of CDKN1A mRNA. Research (Wash D C). 2024;7:0472.