פרוטוקול זה מתאר גישות in vivo ו-in vitro לבדיקת השפעת N-lactoyl-phenylalanine על קרדיומיופתיה סוכרתית, מטבוליזם של ליפידים בלב וסינתזה של כולסטרול, תוך התמקדות במסלול adenosine monophosphate-activated protein kinase alpha 1/3-hydroxy-3-methylglutaryl-coenzyme A reductase.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר מחקר
N-Lactoyl-phenylalanine משפר את תפקודי הלב במודל עכברים של קרדיומיופתיה סוכרת על ידי ויסות מטבוליזם של ליפידים
במאמר זה
סיכום
תקציר
קרדיומיופתיה סוכרתית (DCM) היא אחת הסיבוכים החמורים ביותר של סוכרת. N-lactoyl-phenylalanine (Lac-Phe), מטבוליט אנדוגני, עשוי לקדם ירידה במשקל ולשפר את הומיאוסטזיס הגלוקוז. מחקר זה ביקש לבחון את ההשפעה הטיפולית של Lac-Phe על DCM ולחקור לעומק את המנגנון העומד בבסיסה. עכברים עם סוכרת מסוג 2 ו-DCM טופלו ב-Lac-Phe. Lac-Phe שיפר את תפקוד התכווצות הלב, הפחית רמודלינג פתולוגי והפחית הצטברות שומנים בלב. In vitro, נבחנו השפעותיו של Lac-Phe בתאי H9c2 שעברו גרייה באמצעות גלוקוז בריכוז גבוה וחומצה פלמיטית. Lac-Phe הפחית את הצטברות השומנים על ידי הפחתת סינתזת כולסטרול בתאי H9c2. מבחינה מנגנונית, Lac-Phe קידם את הפוספורילציה וההפעלה של adenosine monophosphate-activated protein kinase alpha 1 (AMPKα1). לאחר מכן, AMPKα1 פעיל ביצע פוספורילציה ועיכב את מטרה המורד שלו, 3-hydroxy-3-methylglutaryl-coenzyme A reductase (HMGCR), מה שהוביל להפחתה בסינתזת כולסטרול ובסופו של דבר לשיפור של חוסר האיזון במטבוליזם של שומנים בתאי H9c2. ממצאים אלו מעידים כי Lac-Phe משפר את מטבוליזם השומנים בתאי H9c2 ב-DCM באמצעות נתיב ה-AMPKα1/HMGCR, ובכך משפר את תפקוד התכווצות הלב ומפחית רמודלינג פתולוגי. Lac-Phe עשוי להוות גישה טיפולית פוטנציאלית לקרדיומיופתיה סוכרתית.
מבוא
סוכרת היא מחלה מטבולית המאופיינת בהיפרגליקמיה מתמשכת1. במהלך שני העשורים האחרונים, הסוכרת הפכה לאחת מעשר סיבות המוות המובילות ברחבי העולם, כאשר יותר משישה מיליון אנשים מתים מדי שנה מסוכרת ומסיבוכיה2. קרדיומיופתיה סוכרתית (DCM), מצב פתולוגי של הלב הנובע מסוכרת, מהווה את אחד הסיבוכים החמורים ביותר הקשורים לסוכרת3,4. היא משמשת כגורם סיכון עצמאי לאי-ספיקת לב ומאופיינת בשינויים מבניים ותפקודיים בשריר הלב5,6, כולל פיברוזיס של הלב והיפרטרופיה של קרדיומיוציטים, אשר מובילים בסופו של דבר הן לתפקוד דיאסטולי לקוי והן לתפקוד סיסטולי לקוי. למרות שמספר טיפולים קרדיווסקולריים קונבנציונליים, כגון חוסמי β, מעכבי אנזימים ממירים angetnotin (ACE inhibitors) וחוסמי קולטנים מסוג 1 של אנגיוטנסין II, נמצאים כיום בשימוש לניהול DCM7,8, יעילותם נותרת תת-אופטימלית במסגרות קליניות. מכיוון שהמנגנונים העומדים בבסיס ה-DCM לא נחקרו ביסודיות9, אין כיום אסטרטגיית טיפול ברורה המכוונת למחלה זו10,11. הביטויים הקליניים של DCM מתקדמים מתפקוד דיאסטולי לקוי ללא תסמינים בשלב מוקדם, לתפקוד סיסטולי לקוי ואי-ספיקת לב קלינית בשלב מאוחר, ואף למוות12,13. לכן, קיים צורך דחוף לחקור ולפתח אפשרויות טיפול יעילות למצב זה.
מטבוליזם ליפידי לא מאוזן הוא מאפיין מרכזי של DCM14. ב-DCM, רמות מוגברות של חומצות שומן חופשיות (FFAs) בדם עלולות להוביל לספיגה מופרזת של חומצות שומן על ידי קרדיומיוציטים15,16. מטבוליזם של חומצות שומן בקרדיומיוציטים תלוי בעיקר בחמצון חומצות שומן. עם הזמן, חמצון חומצות השומן בקרדיומיוציטים אינו מספיק כדי להמיר באופן מלא את כל חומצות השומן הנספגות, וחומצות שומן עודפות ומטבוליטים ביניים שלהן מצטברים בקרדיומיוציטים17. עומס ליפידי מופרז זה גורם לרעילות שומנים (lipotoxicity), משבש את אספקת האנרגיה של השריר הלבבי, ומעודד סטרס חמצוני תגובות דלקתיות בלב, מה שגורם בסופו של דבר לנזק חמור לקרדיומיוציטים18,19. לכן, ויסות פעיל של מטבוליזם ליפידי בלב עשוי להוות יעד טיפולי פוטנציאלי עבור DCM20.
N-lactoyl-phenylalanine (Lac-Phe) הוא מטבוליט אנדוגני שריכוזו עולה במהירות לאחר פעילות גופנית21. מבחינה מכניסטית, Lac-Phe מסונתז על ידי האנזים הציטוזולי carnosine dipeptidase 2 (CNDP2) באמצעות קונדנסציה של לקטט ופנילאלנין. מסלול ביוסינתטי זה נפוץ בסוגי תאים מגוונים, כולל מקרופאגים, תאי אפיתל ותאי גזע מזנכימליים, המפרישים Lac-Phe למחזור הדם בעקבות פעילות גופנית22. הוכח כי מתן כרוני של Lac-Phe מפחית ביעילות את צריכת המזון, מוריד השמנה ומשקל גוף, ומשפר את הומיאוסטזיס הגלוקוז21. מחקר שנערך לאחרונה הראה כי Lac-Phe יכול לשפר את קיבולת מטבוליזם הליפידים של מיקרוגליה/מקרופאגים בעקבות פגיעה בחוט השדרה23. באופן מעניין, מחקרים מצביעים על כך שמתן אקוטי וכרוני של metformin, תרופה מהקו הראשון לסוכרת מסוג 2, יכול להעלות את רמות ה-Lac-Phe, וכי Lac-Phe מתווך את ההשפעות האנטי-השמנה של metformin22. יתרה מכך, Sha ואח' הדגימו לאחרונה כי Lac-Phe מפחית מוות של תאי שריר הלב על ידי הקלה על תפקוד מיטוכונדריאלי לקוי, ובכך משפר אי-ספיקת לב שנוצרה כתוצאה מהיצרות אורטלית רוחבית (TAC)24. היפרגליקמיה ממושכת והשמנה הם גורמים חשובים התורמים לשיבוש במטבוליזם של ליפידים ב-DCM25. יחד, ראיות אלו מרמזות כי ל-Lac-Phe עשיר להיות אפקט טיפולי פוטנציאלי ב-DCM. עם זאת, עד כה לא נחקר תפקידו של Lac-Phe ספציפית ב-DCM.
במחקר זה, מצאנו כי מתן חיצוני של Lac-Phe לעכברים עם קרדיומיופתיה סוכרתית שיפר ביעילות את תפקוד התכווצות הלב והפחית את הרימודול הפתולוגי של הלב. מצאנו כי Lac-Phe שיפר את תפקוד הלב בעכברים עם DCM באמצעות ויסות של חוסר איזון במטבוליזם של ליפידים. Lac-Phe הפחית את הצטברות טיפות ליפידים (LD) בתאי שריר הלב (cardiomyocytes) של עכברים עם DCM והפחית את תכולת הכולסטרול בלב. מבחינה מכניסטית, Lac-Phe קידם את הפספורילציה וההפעלה של adenosine monophosphate-activated protein kinase alpha 1 (AMPKα1), ובכך קידם את הפספורילציה של 3-hydroxy-3-methylglutaryl-coenzyme A reductase (HMGCR). פספורילציה של HMGCR מפחיתה את פעילותו, מה שמוביל לירידה בייצור הכולסטרול ובכך משפר את חוסר האיזון במטבוליזם של ליפידים בתאי שריר הלב. תוצאות אלו מספקות בסיס תיאורטי לטיפול פוטנציאלי ב-DCM באמצעות Lac-Phe.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
פרוטוקול המחקר בבעלי חיים אושר על ידי ועדת האתיקה המוסדית של בית החולים Nanjing Drum Tower (מספר אישור: 2025AE1065, 26 בספטמבר 2025) ובוצע בהתאם להנחיות המפורטות ב-Guidelines for the Care and Use of Laboratory Animals (מהדורה שמינית), שפורסמו על ידי המכונים הלאומיים לבריאות של ארצות הברית.
בעלי חיים
במחקר זה נעשה שימוש ב-30 עכברים זכרים בני 5 שבועות מגזע C57BL/6J. לאחר שבוע אחד של האכלה להסתגלות, כל העכברים שהו עם גישה למזון ומים תחת מחזור יום-לילה של 12 שעות לסירוגין, בטמפרטורה של 22°C ± 2°C ובלחות של 40%–60%. כדי לבסס את מודל העכברים ל-DCM, נעשה שימוש ב-HFD בשילוב עם מינון נמוך של STZ (איור 1A). ארבעה שבועות לאחר תחילת ההאכלה בתזונה עתירת שומן (HFD; 60% שומן, 20% חלבון ו-20% פחמימות), העכברים הושמתו מצום במהלך הלילה ולאחר מכן קיבלו streptozotocin (STZ; 8 mg/mL מומס בבופר ציטראט, pH 4.5) באמצעות הזרקה תוך-פריטוניאלית במינון של 35 mg/kg/day למשך שלושה ימים רצופים. עכברי קבוצת הביקורת נאכלו בתזונה רגילה (10% שומן, 20% חלבון ו-70% פחמימות) וקיבלו נפחים שוויים של בופר ציטראט. לאחר 15 שבועות נוספים של תחזוקה על תזונה עתירת שומן, עכברים שעמדו בשני הקריטריונים, רמת גלוקוז אקראית בדם של ≥13.3 mmol/L ושבר פליטה של החדר השמאלי (LVEF) של <55%, הוגדרו כמודלים של DCM שהבססו בהצלחה. עכברי DCM מאומתים אלו מספרו והוקצו באופן אקראי לקבוצות ה-DCM וה-DCM + Lac-Phe באמצעות טבלת מספרים אקראיים. כחצי מהעכברים לא פיתחו את המודל; בעלי חיים אלו הומתו בהומניוטיות בהתאם לדרישות האתיקה לבעלי חיים. בקצרה, העכברים חולקו לשלוש קבוצות: ביקורת (Control), DCM, ו-DCM + Lac-Phe (n = 10 לכל קבוצה). כל 10 העכברים בכל קבוצה עברו אקו-קרדיוגרפיה, מדידת משקל גוף ו-OGTT. לאחר תקופת טיפול של 28 ימים, נאספו הלבבות לניתוחים המשכיים. היו 10 עכברים בכל קבוצה. מתוכם, שלושה עכברים לכל קבוצה שימשו לריצוף טרנסקריפטום, שלושה שימשו למיקרוסקופיית אלקטרונים חודרת (TEM) וצביעה היסטולוגית, ושלושה שימשו לניתוח ביטוי חלבונים. העכבר הנותר בכל קבוצה נשמר כגיבוי. לאחר ביסוס מוצלח של מודל ה-DCM, Lac-Phe הומס בתמיסת סליין נורמלית לריכוז סופי של 10 mg/mL. עכברים בקבוצת ה-DCM + Lac-Phe קיבלו Lac-Phe בהזרקה תוך-פריטוניאלית במינון של 50 mg/kg/day בנפח הזרקה של 5 mL/kg, פעם ביום למשך 28 ימים רצופים. עכברים בקבוצות הביקורת וה-DCM קיבלו נפח שווה של סליין נורמלית כביקורת נשא (vehicle control).
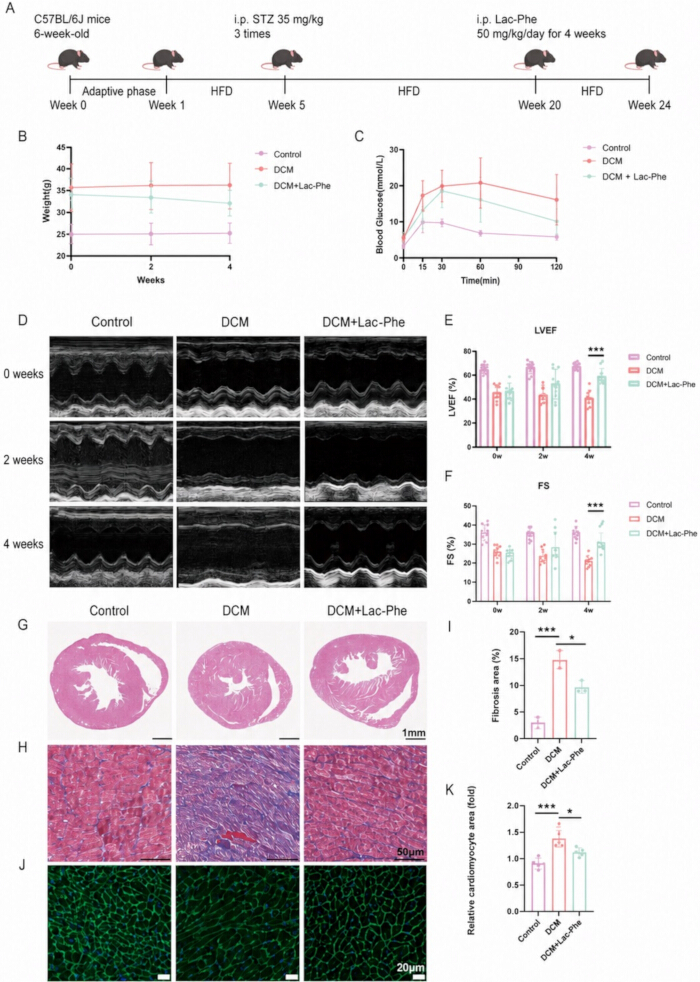
איור 1Lac-Phe משפר את התפקוד הלבבי ואת השחזור הפתולוגי בעכברים עם קרדיומיופתיה סוכרתית. (A) תרשים של מודל עכברים ל-DCM המושרה על ידי HFD/STZ ופרוטוקול הטיפול ב-Lac-Phe. (B) משקלי גוף של עכברים בקבוצות הביקורת (Control), ה-DCM וה-DCM + Lac-Phe במהלך תקופת הטיפול שנערכה במשך 4 שבועות; n = 10 לכל קבוצה. (C) בדיקת סבילות גלוקוז תוך-השקעה (OGTT) בקבוצות המצוינות; n = 10 לכל קבוצה. (D) תמונות אקו-קרדיוגרפיות מייצגות בשבועות 0, 2 ו-4 לטיפול. (E,F) כימות של מקדם הפליטה של החדר השמאלי (LVEF) (E) וקיצור פראקציונלי (FS) (F); n = 10 לכל קבוצה. (G) צביעת המטוקסילין ואאוזין (H&E) מייצגת&חתכי לב שצבעו ב-E. סרגל קנה מידה = 1 מ"מ. (H,I) צביעה מייצגת של חתכי לב בשיטת Masson’s trichrome (H) וכימות של השטח הפיברוטי (I); n = 3 לכל קבוצה. סרגל קנה מידה = 50 μm(J,K) צביעה נציגה של לב באמצעות לקטין גלוטנין מדגנים (WGA) בחתכי לב (J) וכימות של שטח יחסי של קרדיומיוציטים (K); n = 3 לקבוצה. סרגל קנה מידה = 20 μmהנתונים מוצגים כממוצע ± סטיית תקן P < 0.05, **P < 0.001. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
תפקוד לבבי
לאחר הרדמה באמצעות שאיפת isoflurane, נקבעו העכברים במצב שכיבה על גבם על פלטפורמה בעלת בקרת טמפרטורה (37°C). מימדי החדר השמאלי ומהירות זרימת הדם במסתם המיטרלי במהלך הדיאסטולה והסיסטולה נמדדו באמצעות מכשיר אקו-לב מצויד במתמר 40 MHz, שעל סמך נתוניו חושבו LVEF ושיעור הקיצור (FS). עבור כל עכבר נאספו שלושה מחזורי לב רצופים.
טיפול בתאים
תאי H9c2 תורגלו במצע Dulbecco’s modified Eagle’s המועשר ב-10% fetal bovine serum ו-1% penicillin–streptomycin בטמפרטורה של 37°C באטמוספירה לחה המכילה 5% CO₂. התאים הועברו למצע חדש (passaged) כל 2–3 ימים עם הגעה ל-70%–80% confluence. לצורך הניסויים, התאים נזרעו בצלחות של 10 cm ולאחר מכן חולקו לשלוש קבוצות: ביקורת (Control), גלוקוז גבוה/חומצה פלמיטית (HG/PA), ו-HG/PA + Lac-Phe. תאים בקבוצות HG/PA ו-HG/PA + Lac-Phe נחשפו תחילה ל-0.25 mM חומצה פלמיטית ו-50 mM גלוקוז למשך 24 h. לאחר מכן, תאים בקבוצת HG/PA + Lac-Phe טופלו ב-10 μg/mL Lac-Phe למשך 24 h נוספות תוך שמירה על החשיפה ל-HG/PA; תאים בקבוצת HG/PA קיבלו נפח שווה של PBS תחת אותם תנאי HG/PA. בניסויי עיכוב p-AMPK, הוספו 10 μM AMPK-IN-3 (המומס ב-DMSO) בו-זמנית עם Lac-Phe למשך 24 h, וקבוצות הביקורת התואמות קיבלו נפח שווה של DMSO. בניסויי atorvastatin, תאי H9c2 תחת תנאי HG/PA טופלו ב-10 μM atorvastatin למשך 24 h, לבדו או בשילוב עם 10 μg/mL Lac-Phe.
צביעה היסטולוגית
לאחר 28 ימים של מתן Lac-Phe, הוצאו לבבות העכברים וקובאו בשיטת טבילה ב-4% paraformaldehyde (pH 7.4) למשך 24 h. רקמות לב קבועות נטמנו בפרפין ונחתכו לפרוסות בעובי 6-μm. נחתכי הרקמה נצבעו ב-hematoxylin and eosin, wheat germ agglutinin ו-Masson’s trichrome. כל תהליכי הצביעה בוצעו בהתאם להנחיות היצרן. דימות של השקף כולו (Whole-slide imaging) בוצע בהגדלה של 20× באמצעות מיקרוסקופ שדה בהיר (brightfield) ברזולוציה גבוהה המצויד במערכת מצלמה דיגיטלית.
ניתוח Western blot
ריכוז החלבון נקבע באמצעות בדיקת Bradford. ליזאטים של רקמות הופרדו ב-SDS-PAGE על ג'לים של 10% (w/v) acrylamide והועברו אלקטרופורטית לממברנות polyvinylidene difluoride. אתרי קישור לא ספציפיים נחסמו באמצעות 5% bovine serum albumin למשך 2 h בטמפרטורת החדר. לאחר מכן, הממברנות הובאו לאינקובציה למשך לילה ב-4°C עם נוגדנים ראשוניים (בדילול של 1:1,000), ולאחריהם ששה שטיפות עם TBST (5 min כל אחת) על שייקר. לאחר מכן, הממברנות הובאו לאינקובציה עם נוגדנים משניים המצומדים ל-horseradish peroxidase (בדילול של 1:5,000) למשך 2 h בטמפרטורת החדר, ואחריהם שש שטיפות נוספות עם TBST (5 min כל אחת). פסי החלבון הודגמו באמצעות ערכה של רכיב chemiluminescence משופר. כימות תוצאות ה-western blot בוצע באמצעות ניתוח דנסיתומטרי בתוכנת ImageJ. כל הנוגדנים ששימשו במחקר זה מופיעים ב-טבלת החומרים.
טרנסקריפטומיקה
RNA כולל בודד מרקמות לב של עכברי C57BL/6J באמצעות TRIzol Reagent וערכות RNeasy mini. איכות ה-RNA הוערכה באמצעות 2100 bioanalyzer, אשר הדגימה רמת טוהר ושלמות גבוהה של ה-RNA. ספריות RNA-seq הוכנו בהתאם לערכה VAHTS Universal V10 RNA-seq Library Prep Kit ורצף באמצעות מערכת Illumina NovaSeq 6000 (קריאה בודדת, 150 bp). גנים המבטאים ביטוי Differentially expressed זוהו באמצעות DESeq2, עם ערך מותאם P ערך < 0.05 ולוגריתם מוחלט₂ שינוי שכיפות (fold change) > 1 נחשב למשמעותי מבחינה סטטיסטית. ניתוח העשרה של אונטולוגיית גנים (GO) בוצע עבור גנים בעלי ביטוי דיפרנציאלי, והמשמעות של העשרת גנים בעלי ביטוי דיפרנציאלי במונחי GO חושבה באמצעות אלגוריתם ההתפלגות ההיפרגאומטרית.
צביעת Oil Red O וצביעת שומנים ב-LD540
רקמת לב הוטמעה בתרכובת OCT ולאחר מכן נחתכה לחתיכות בעובי 10-μm. החתיכות הקפואות הגיעו לשיווי משקל בטמפרטורת החדר למשך 30 דקות וקובעו עם 4% פאראפורמאלדהיד למשך 10 דקות. לאחר שטיפה ב-PBS, הונחו החתיכות באיזופרופנול 60% למשך 15 שניות וכוסו בתמיסת עבודה של Oil Red O למשך 30 דקות. לאחר מכן טיפלו בחתיכות באיזופרופנול 60% למשך 15 שניות ושטפו אותן שלוש פעמים ב-PBS. לצורך צביעת ליפידים ב-LD540, תאי H9c2 נשטפו ב-PBS וקובעו עם 4% פאראפורמאלדהיד למשך 10 דקות בטמפרטורת החדר. לאחר מכן הדגירו את התאים עם 10 μM LD540 למשך 30 דקות בטמפרטורת החדר.
מיקרוסקופיית אלקטרונים בשידור (TEM)
רקמות לב טריות של עכבר נחתכו לחתיכות של 1–2 mm3, קובעו במקבע למיקרוסקופ אלקטרונים ב-4°C למשך 4 שעות, לאחר מכן נשטפו במים מזוקקים פעמיים הושקעו בתמיסות אתנול בריכוזים עולים. הדגימות נטמנו, נחתכו לסינתיות ולאחר מכן נבחנו תחת מיקרוסקופ אלקטרונים חודר (TEM).
תכולת כולסט角色ול כולל (TC)
רמות כולסטרול כולל (TC) בדגימות סרום ובתאי H9c2 נמדדו באמצעות ערכת Amplex Red Cholesterol and Cholesteryl Ester Assay Kit בהתאם להוראות היצרן.
מבחן עמידות לסוכר (OGTT)
העכברים הורגזו למשך 14 h (משעה 19:00 עד 9:00) וקיבלו גלוקוז בבליעה (תמיסת אם של 20%, במינון של 2 g/kg). רמות הגלוקוז בדם נקבעו באמצעות דם שנאסף מווריד הזנב בנקודות הזמן 0, 15, 30, 60 ו-120 min לאחר מתן הגלוקוז.
מדידה באמצעות ערכה לספירת תאים-8 (CCK-8)
נעשה שימוש ב-CCK-8 למדידת חיות התאים. תאי H9c2 נזרעו לפלטות של 96 בארות בצפיפות ראשונית של 3 × 10⁴ תאים/באר. לאחר טיפול בריכוזים שונים של Lac-Phe תחת תנאי HG/PA למשך 24 h, הוספו 10 μL מרכיב הערכה ל-100 μL של מצע גידול בכל באר, ולאחר מכן בוצעה אינקובציה ב-37°C למשך 4 h. הבליעה נמדדה ב-450 nm באמצעות קורא מיקרופלט רב-מצבים (multimode microplate reader) כדי לקבל את ערך הצפיפות האופטית (OD).
סימולציית עגינה מולקולרית (Molecular docking)
מבני הגביש של Lac-Phe ו-AMPKα1 הורדו מ-PubChem26. תהליך העגינה המולקולרית (molecular docking) בוצע באמצעות CB-DOCK227.
ניתוח סטטיסטי
כל המדידות האקו-קרדיוגרפיות, הצביעות ההיסטולוגיות והכימותים של התמונות בוצעו על ידי חוקרים שלא היו מודעים להקצאה לקבוצות. כל ניתוחי הנתונים בוצעו באמצעות Prism ו-SPSS 20.0. כל ניסוי חזר לפחות שלוש פעמים, והנתונים מוצגים כממוצע ± סטיית תקנית. הומוגניות השונות נבדקה באמצעות מבחן Levene. נורמליות אוששה על ידי בדיקה גרפית של השאריות. השוואות בין קבוצות מרובות בוצעו באמצעות ניתוח שונות חד-כיווני (one-way analysis of variance), ולאחריו מבחן post hoc של Tukey להשוואות זוגיות. עבור נתוני OGTT, נעשה שימוש ב-ANOVA דו-כיווני למדידות חוזרות (two-way repeated-measures ANOVA), כאשר הקבוצה שימשה כגורם בין-נבדקים והזמן כגורם תוך-נבדקים, ולאחריו מבחן post hoc של Bonferroni. P < 0.05 נחשב למשמעותי סטטיסטית.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
Lac-Phe משפר את התפקוד הלבבי בעכברים עם קרדיומיופתיה סוכרת
השרינו DCM בעכברי C57BL/6J באמצעות תזונה עשירה בשומן (HFD) בשילוב עם הזרקות STZ (איור 1A) והקצו באופן אקראי את עכברי ה-DCM שהוקמו בהצלחה לקבוצה לא מטופלת (קבוצת DCM) ולקבוצת טיפול ב-Lac-Phe, כאשר עכברי C57BL/6J שימשו כביקורת שלילית. על פי המחקר של Li et al.21בחרנו במינון טיפולי של 50 מ"ג/ק"ג של Lac-Phe. לאחר הקמה מוצלחת של המודל, קבוצת הטיפול ב-Lac-Phe קיבלה הזרקות ...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
במחקר זה, אנו מספקים ראיות התומכות בהשפעה טיפולית של Lac-Phe על DCM. Lac-Phe שיפר את השחזור הלבבי ואת התפקוד הלבבי הלקוי ב-DCM, תוך הפחתת ייצור הכולסטרול בתאי שריר הלב (cardiomyocytes) ושיפור של חוסר האיזון במטבוליזם של ליפידים. מבחינה מכניסטית, Lac-Phe הגביר את הפספורילציה של AMPKα1. לאחר מכן, העלייה בפספורילציה של AMPKα1 הייתה קשורה להגברת הפספורילציה ועיכוב של מטרה במורד המסלול, HMGCR, מה שהוביל להפחתה בסינתזת הכולסטרול ובסופו של דבר לשיפור בחוסר האיזון במטבוליזם של ליפידים בתאי שריר הלב. לסיכום, מחקר זה מדגים כי Lac-...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
ניגוד עניינים:
למחברים אין דבר להצהיר עליו.
תודות
ברצוננו להביע את תודתנו הכנה לחוקרים ולצוות ב-Nanjing Drum Tower Hospital Clinical College וב-Affiliated Hospital of Medical School, Nanjing University, על התמיכה הטכנית שלהם. מחקר זה מומן על ידי מענקים מה-National Natural Science Foundation of China (מספרי מענק 81870291 ו-82300384), ה-China Postdoctoral Science Foundation (מספר מענק 2023M731625), וה-Natural Science Foundation of Jiangsu Province (מספר מענק BK20220175). אנו מודים גם על המשאבים והתמיכה השיתופית שסופקו על ידי ה-Institute of Advanced Synthesis ב-Nanjing Tech University.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| AMPK-IN-3 (מעכב p-AMPK) | MedChemExpress (MCE) | HY-132921 | נעשה בו שימוש בריכוז של 10 μM במהלך ניסויי עיכוב AMPK כדי לעכב את סיגנל ה-AMPK בתאים שטופלו ב-Lac-Phe. |
| ערכה למדידת כולסטרול ואסטרי כולסטרול Amplex Red | Beyotime | S0211S | שימשה לקביעת רמות כולסטרול כולל בדגימות סרום ובתאי H9c2. |
| נוגדן Anti-AMPKα1 | Cell Signaling Technology | 2532; RRID: AB_330331 | נוגדן ראשוני ששימש לניתוח western blot של AMPKα1. |
| נוגדן Anti-GAPDH | Cell Signaling Technology | 5174; RRID: AB_10622025 | נוגדן ראשוני ששימש לניתוח western blot של GAPDH. |
| נוגדן Anti-HMGCR | Abcam | ab174830; RRID: AB_2749818 | נוגדן ראשוני ששימש לניתוח western blot של HMGCR. |
| נוגדן Anti-p-AMPKα1 (Thr172) | Cell Signaling Technology | 2535; RRID: AB_331250 | נוגדן ראשוני ששימש לניתוח western blot של AMPKα1 מזופספרל. |
| נוגדן Anti-p-HMGCR (Ser872) | Abcam | ab124350 | נוגדן ראשוני ששימש לניתוח western blot של HMGCR מזופספרל. |
| נוגדן Anti-rabbit IgG, מקושר ל-HRP | Cell Signaling Technology | 7074; RRID: AB_2099233 | שימש בדילול של 1:5,000 לזיהוי ב-western blot. |
| נוגדן Anti-β-tubulin | Cell Signaling Technology | 2128; RRID: AB_823664 | נוגדן ראשוני ששימש לניתוח western blot של β-tubulin. |
| Atorvastatin | MedChemExpress (MCE) | HY-17379 | שימשה לבדה או בשילוב עם Lac-Phe להערכת השפעות על הצטברות ליפידים, רמות כולסטרול כולל ופוספורילציה של HMGCR בתאי H9c2 שטופלו ב-HG/PA. |
| אלבמין משרת בקר (Bovine serum albumin) | Sigma-Aldrich | A7906 | שימש בריכוז של 5% לחסימת קישור לא ספציפי במהלך ניתוח western blot. |
| ערכה/ריאגנט לבדיקת בראדפורד (Bradford) | Thermo Fisher Scientific | 23200 | שימשה לקביעת ריכוז החלבון לפני ניתוח western blot. |
| עכברים C57BL/6J (זכרים, בני 5 שבועות) | Model Animal Research Center of Nanjing University | N/A | שימשו להקמת מודל עכברים לקריומיופתיה סוכרתית המושרה על ידי HFD/STZ. |
| ערכה לספירת תאים-8 (CCK-8) | Sharebio | SB-CCK8S | שימשה למדידת חיוניות תאי H9c2 לאחר טיפול. |
| בופר ציטראט | הוכן במעבדה | N/A | הוכן ב-pH 4.5 ושימש להמסת STZ וכביקורת נשאי (vehicle control) תואמת. |
| תזונת ביקורת (10% שומן, 20% חלבון, 70% פחמימות) | Research Diets, Inc. | D12450J | שימשה כתזונה עבור עכברי קבוצת הביקורת. |
| D-(+)-Glucose | Sigma-Aldrich | N/A | שימש לטיפול בתאי HG/PA ולבדיקת סבילות לגלוקוז דרך הפה. |
| דימטיל סולפוקסיד (DMSO) | Sigma-Aldrich | D2650 | שימש כממס עבור AMPK-IN-3 וכביקורת נשאי (vehicle control) תואמת. |
| תווך Dulbecco’s modified Eagle’s | Gibco, Thermo Fisher Scientific | 11965092 | שימש כתווך גידול בסיסי לתאי H9c2. |
| מכשיר אקו-קרדיוגרפיה עם מתמר 40 MHz | FUJIFILM VisualSonics | Vevo 3100 LT; 40 MHz transducer | שימש למדידת ממדי החדר השמאלי ומהירות זרימת הדם במסתם המיטרלי, ולהסקת LVEF ו-FS. |
| מקבע למיקרוסקופ אלקטרונים | ServiceBio | G1102 | שימש לקיבוע רקמת לב טרייה של עכברים עבור מיקרוסקופיה אלקטרונית חודרת (TEM). |
| אתנול | Sigma-Aldrich | E7023 | שימש בריכוזים עולים בהדרגה לצורך דהידרציה במהלך הכנת דגימות למיקרוסקופיה אלקטרונית חודרת. |
| סרום עגל עוברי (Fetal bovine serum) | Gibco, Thermo Fisher Scientific | 10099141 | שימש בריכוז של 10% להעשרת תווך גידול תאי H9c2. |
| קו תאים H9c2 | Sunncell | RRID: CVCL_0286 | שימש כמודל תאי לב in vitro לניסויי טיפול ב-HG/PA וב-Lac-Phe. |
| צביעת המטוקסילין ואוזין | ServiceBio | G1005-1/2 | שימשה להערכה היסטולוגית של רקמת לב. |
| תזונה עשירה בשומן (60 kcal% שומן) | Research Diets, Inc. | D12492 | שימשה עם מינון נמוך של STZ להקמת מודל עכברים לקריומיופתיה סוכרתית. |
| מיקרוסקופ שדה בהיר ברזולוציה גבוהה | Leica | DM2500 | שימש לדמיון של כל השקופית עבור רקמת לב צבועה בהגדלה של 20×. |
| ImageJ | National Institutes of Health | N/A | שימשה לכימות דנסיטומטרי של תוצאות western blot. |
| איזופלוראן (Isoflurane) | Sigma-Aldrich | 792632 | שימש להרדמה במהלך אקו-קרדיוגרפיה לעכברים. |
| איזופרופיל אלכוהול | Sigma-Aldrich | I9516 | שימש בריכוז של 60% במהלך צביעת Oil Red O של חתכי לב קפואים. |
| צביעת ליפידים LD540 | Beyotime | C2050S-1 | שימשה בריכוז של 10 μM לצביעת ליפידים תוך-תאיים. |
| צביעת Trichrome של Masson’s | ServiceBio | G1006 | שימשה לצביעה היסטולוגית של רקמת לב. |
| N-lactoyl-phenylalanine (Lac-Phe) | MedChemExpress (MCE) | HY-146098 | ניתן לעכברי DCM ושימש לטיפול בתאי H9c2 שנחשפו ל-HG/PA. |
| תמיסת עבודה של Oil Red O | ServiceBio | G1015-100ML | שימשה לצביעת ליפידים בחתכי רקמת לב קפואים. |
| ערכת כימילומינצנציה Omni-ECL Efficient Light | EpiZyme | SQ203L | שימשה לוויזואליזציה כימילומינצנטית של פסי חלבון לאחר western blotting. |
| חומצה פלמיטית (Palmitic acid) | Sigma-Aldrich | P0500 | שימשה בריכוז של 0.25 mM עם גלוקוז גבוה להקמת מודל תאי H9c2 מטופלי HG/PA. |
| פראפורמאלדהיד | Sigma-Aldrich | P6148 | הוכנה כתמיסה של 4% ושימשה לקיבוע רקמת לב ותאים לפני צביעה היסטולוגית או צביעת ליפידים. |
| פניצילין-סטרפטומייצין | Gibco, Thermo Fisher Scientific | 15140122 | שימש בריכוז של 1% בתווך גידול תאי H9c2. |
| סליין בופר פוספט (PBS) | Gibco, Thermo Fisher Scientific | 10010023 | שימש לשטיפה במהלך הליכי צביעה וכנשאי (vehicle) תואם בניסויי טיפול בתאים. |
| Prism | GraphPad Software | Version 8.0 | שימשה לניתוח סטטיסטי של נתוני ניסוי. |
| ממברנת העברה PVDF, 0.45 μm | Thermo Fisher Scientific | 88518 | שימשה להעברה אלקטרופורטית של חלבונים במהלך ניתוח western blot. |
| ערכת RNeasy Mini | QIAGEN | 74104 | שימשה לבידוד/טיהור של RNA כולל מרקמת לב של עכבר. |
| תמיסת נתרן כלוריד, 0.9% (סליין נורמלי) | Sigma-Aldrich | S8776 | שימשה להמסת Lac-Phe וכביקורת נשאי עבור עכברי ביקורת ועכברי DCM. |
| SPSS | IBM | Version 20.0 | שימשה לניתוח סטטיסטי של נתוני ניסוי. |
| סטרפטוזוטוצין (STZ) | Sigma-Aldrich | S0130 | ניתן יחד עם תזונת HFD להקמת מודל עכברים לקריומיופתיה סוכרתית. |
| בופר TBS Tween-20 (20×) | Thermo Fisher Scientific | 28360 | שימש לשטיפת ממברנות לאחר אינקובציה עם נוגדן ראשוני ונוגדן שני במהלך ניתוח western blot. |
| תרכובת Tissue-Tek O.C.T. | Sakura Finetek | 4583 | שימשה להטמעה של רקמת לב לפני הכנת חתכים קפואים לצביעת Oil Red O. |
| מיקרוסקופ אלקטרונים חודר | HITACHI | HT7800 | שימש לבחינת שינויים אולטרה-מבניים ברקמת לב של עכברים. |
| ריאגנט TRIzol | Invitrogen | 15596026 | שימש לבידוד RNA כולל מרקמת לב של עכברים. |
| ערכת VAHTS Universal V10 להכנת ספריות RNA-seq | Vazyme | NR616-01 | שימשה להכנת ספריות RNA-seq לניתוח טרנסקריפטומי. |
| לקטין Wheat germ agglutinin (WGA) | ServiceBio | W7024 | שימש להערכה היסטולוגית של רקמת לב. |
מקורות
- Pan KL, Hsu YC, Chang ST, Chung CM, Lin CL. The role of cardiac fibrosis in diabetic cardiomyopathy: from pathophysiology to clinical diagnostic tools. Int J Mol Sci. 2023;24(10):8604.
- Saeedi P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Zou R, et al. PGAM5-mediated PHB2 dephosphorylation contributes to diabetic cardiomyopathy by disrupting mitochondrial quality surveillance. Research. 2022;2022:0001.
- Jia G, DeMarco VG, Sowers JR. Insulin resistance and hyperinsulinaemia in diabetic cardiomyopathy. Nat Rev Endocrinol. 2016;12(3):144–53.
- Low Wang CC, Hess CN, Hiatt WR, Goldfine AB. Clinical update: cardiovascular disease in diabetes mellitus: atherosclerotic cardiovascular disease and heart failure in type 2 diabetes mellitus—mechanisms, management, and clinical considerations. Circulation. 2016;133(24):2459–502.
- Liu P, Zhang Z, Chen H, Chen Q. Pyroptosis: mechanisms and links with diabetic cardiomyopathy. Ageing Res Rev. 2024;94:102182.
- Park JJ. Epidemiology, pathophysiology, diagnosis and treatment of heart failure in diabetes. Diabetes Metab J. 2021;45(2):146–57.
- Gilca GE, et al. Diabetic cardiomyopathy: current approach and potential diagnostic and therapeutic targets. J Diabetes Res. 2017;2017:1310265.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. Int J Mol Sci. 2022;23(7):3587.
- Han X, et al. Cardiomyocyte OTUD1 drives diabetic cardiomyopathy via directly deubiquitinating AMPKα2 and inducing mitochondrial dysfunction. Nat Commun. 2025;16(1):666.
- Jia G, Hill MA, Sowers JR. Diabetic cardiomyopathy: an update of mechanisms contributing to this clinical entity. Circ Res. 2018;122(4):624–38.
- Yao Y, Yang B, Shi J. TiO(x)(OH)(4-2x) nanosheets with catalytic antioxidative activity alleviate oxidative injury in diabetic cardiomyopathy. J Am Chem Soc. 2025;147(4):3885–95.
- Seferovic PM, et al. Diabetic myocardial disorder: a clinical consensus statement of the Heart Failure Association of the ESC and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2024;26(9):1893–903.
- Wang H, et al. Inhibition of fatty acid uptake by TGR5 prevents diabetic cardiomyopathy. Nat Metab. 2024;6(6):1161–77.
- Zhao Y, et al. Ferroptosis: roles and molecular mechanisms in diabetic cardiomyopathy. Front Endocrinol. 2023;14:1140644.
- Nakamura M. Lipotoxicity as a therapeutic target in obesity and diabetic cardiomyopathy. J Pharm Pharm Sci. 2024;27:12568.
- Nakamura M, et al. Glycogen synthase kinase-3α promotes fatty acid uptake and lipotoxic cardiomyopathy. Cell Metab. 2019;29(5):1119–34.e12.
- Ritchie RH, Abel ED. Basic mechanisms of diabetic heart disease. Circ Res. 2020;126(11):1501–25.
- Thakur M, Tupe RS. Lipoxin and glycation in SREBP signaling: insight into diabetic cardiomyopathy and associated lipotoxicity. Prostaglandins Other Lipid Mediat. 2023;164:106698.
- Dhar A, et al. A comprehensive review of the novel therapeutic targets for the treatment of diabetic cardiomyopathy. Ther Adv Cardiovasc Dis. 2023;17:17539447231210170.
- Li VL, et al. An exercise-inducible metabolite that suppresses feeding and obesity. Nature. 2022;606(7915):785–90.
- Xiao S, et al. Lac-Phe mediates the effects of metformin on food intake and body weight. Nat Metab. 2024;6(4):659–69.
- Ying W, et al. N-lactoyl-phenylalanine modulates lipid metabolism in microglia/macrophage via the AMPK-PGC1α-PPARγ pathway to promote recovery in mice with spinal cord injury. J Neuroinflammation. 2025;22(1):167.
- Sha L, et al. N-Lac-Phe ameliorates myocardial cell death by improving mitochondrial dysfunction, ultimately improving TAC-induced heart failure. Cardiovasc Drugs Ther. 2026;40:1391–401.
- Ke J, Pan J, Lin H, Gu J. Diabetic cardiomyopathy: a brief summary on lipid toxicity. ESC Heart Fail. 2023;10(2):776–90.
- PubChem. PubChem. Available from: https://pubchem.ncbi.nlm.nih.gov/. Accessed August 15, 2026.
- Liu Y, Yang X, Gan J, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164.
- GeneCards. GeneCards: the Human Gene Database. Version 6.1, June 17, 2026.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Jo Y, DeBose-Boyd RA. Post-translational regulation of HMG CoA reductase. Cold Spring Harb Perspect Biol. 2022;14(12):a041253.
- Steinberg GR, Hardie DG. New insights into activation and function of the AMPK. Nat Rev Mol Cell Biol. 2023;24(4):255–72.
- Istvan ES, Deisenhofer J. Structural mechanism for statin inhibition of HMG-CoA reductase. Science. 2001;292(5519):1160–4.
- Beaudry D, et al. Statin therapy in cardiovascular diseases other than atherosclerosis. Curr Atheroscler Rep. 2007;9(1):25–32.
- Koch CG. Statin therapy. Curr Pharm Des. 2012;18(38):6284–90.
- Dewanjee S, et al. Autophagy in the diabetic heart: a potential pharmacotherapeutic target in diabetic cardiomyopathy. Ageing Res Rev. 2021;68:101338.
- Madonna R, et al. Empagliflozin inhibits excessive autophagy through the AMPK/GSK3β signalling pathway in diabetic cardiomyopathy. Cardiovasc Res. 2023;119(5):1175–89.
- Madhavi YV, et al. Targeting AMPK in diabetes and diabetic complications: energy homeostasis, autophagy and mitochondrial health. Curr Med Chem. 2019;26(27):5207–29.
- Fang C, et al. The AMPK pathway in fatty liver disease. Front Physiol. 2022;13:970292.
- Liu S, et al. AICAR-induced activation of AMPK inhibits TSH/SREBP-2/HMGCR pathway in liver. PLoS One. 2015;10(5):e0124951.
- Zhou H, et al. Empagliflozin rescues diabetic myocardial microvascular injury via AMPK-mediated inhibition of mitochondrial fission. Redox Biol. 2018;15:335–46.
- Lu QB, et al. METRNL ameliorates diabetic cardiomyopathy via inactivation of cGAS/STING signaling dependent on LKB1/AMPK/ULK1-mediated autophagy. J Adv Res. 2023;51:161–79.
- Wang D, et al. FGF1(ΔHBS) prevents diabetic cardiomyopathy by maintaining mitochondrial homeostasis and reducing oxidative stress via AMPK/Nur77 suppression. Signal Transduct Target Ther. 2021;6(1):133.
- He L. Metformin and systemic metabolism. Trends Pharmacol Sci. 2020;41(11):868–81.
- Yang F, et al. Metformin inhibits the NLRP3 inflammasome via AMPK/mTOR-dependent effects in diabetic cardiomyopathy. Int J Biol Sci. 2019;15(5):1010–9.
- Regitz-Zagrosek V, Gebhard C. Gender medicine: effects of sex and gender on cardiovascular disease manifestation and outcomes. Nat Rev Cardiol. 2023;20(4):236–47.
- Evrony GD, Hinch AG, Luo C. Applications of single-cell DNA sequencing. Annu Rev Genomics Hum Genet. 2021;22:171–97.
- Verboom K, et al. Smarter single cell total RNA sequencing. Nucleic Acids Res. 2019;47(16):e93.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב