פרוטוקול זה מתאר שיטות להערכת ההשפעות של paeoniflorin על תפקוד לקוי של מקרופאגים RAW264.7 המושרה על ידי ליפופרוטאינים בעלי צפיפות נמוכה מחומצנים, וזאת באמצעות הערכת מטבוליזם של ליפידים, תגובות דלקתיות, עקה חמצונית, אפופטוזיס ואיתות הקשור ל-AMP-activated protein kinase, במטרה לתמוך במחקרים מכניסטיים של תפקוד לקוי במקרופאגים.
מאמר מחקר
Paeoniflorin מפחית תפקוד לקוי בתאי RAW264.7 המושרה על ידי ליפופרוטאינים עם צפיפות נמוכה מחומצנים, במעורבות של AMP-Activated Protein Kinase
* These authors contributed equally
במאמר זה
סיכום
תקציר
מחקר זה מתאר פרוטוקול המשלב פרמקולוגיית רשת וניסויים in vitro להערכת ההשפעות המגנות של Huangqin Tang (HQT) ואחד ממרכיביו הביואקטיביים, paeoniflorin (PF), מפני תפקוד לקוי של מקרופאגים המושרה על ידי ליפופרוטאין עם צפיפות נמוכה מחומצן (ox-LDL), ולבחינת סיגנלינג הקשור ל-AMP-activated protein kinase (AMPK). פרמקולוגיית רשת זיהתה מטרות של HQT ומסלולים הקשורים לטרש artery (AS). נעשה שימוש במודל של מקרופאגי RAW264.7 המושרה על ידי ox-LDL כדי להעריך הצטברות ליפידים, הפרשת כולסטרול, רמות adenosine triphosphate (ATP), תגובות דלקתיות, תפקוד מיטוכונדריאלי, סטרס חמצוני, אפופטוזיס וסמנים פנוטיפיים של מקרופאגים. HQT ו-PF הושוו בריכוזים שאינם ציטוטוקסיים. מעורבותו של AMPK הוערכה באמצעות cell thermal shift assay (CETSA), עיכוב פרמקולוגי והשתקה באמצעות small interfering RNA (siRNA). ביטוי של ATP-binding cassette transporter A1 (ABCA1), liver X receptor alpha (LXRα), חלבונים הקשורים ל-nuclear factor kappa B (NF-κB) וחלבונים הקשורים לאפופטוזיס נבחנו באמצעות western blotting. פרמקולוגיית רשת זיהתה 12 מטרות חופפות, כולל TNF, PPARG ו-NOS3, שהיו מועשרות במסלולים הקשורים למטבוליזם של ליפידים, דלקת, AS וסיגנלינג של AMPK. הן PF והן HQT הגבירו את הפספורילציה של AMPK, הפחיתו את הצטברות הליפידים והפרשת ציטוקינים דלקתיים המושרים על ידי ox-LDL, ושיפרו את הפרשת הכולסטרול. PF שיחזר את רמות ה-ATP ואת פוטנציאל ממברנת המיטוכונדריה, הפחית את ייצור רדיקלי החמצן (ROS) ואת האפופטוזיס, והגביר את ביטוי ABCA1. בדיקת CETSA הדגימה יציבות תרמית מוגברת של AMPK בעקבות טיפול ב-PF. עיכוב פרמקולוגי או השתקת AMPK באמצעות siRNA החלישו את השינויים הקשורים ל-PF בביטוי ABCA1, בהפרשת כולסטרול, בהצטברות ליפידים, בהפעלת LXRα ובעיכוב NF-κB. PF הפחית את מספר המקרופאגים מסוג CD86⁺ והגביר את מספר המקרופאגים מסוג CD206⁺, בעוד שהשתקת AMPK הפכה חלקית שינויים אלו. עיכוב NF-κB הניב השפעות דומות על הומיאוסטזיס של כולסטרול ועל סממנים פנוטיפיים של מקרופאגים. פרוטוקול זה מאפשר הערכה של השפעות המתווכות על ידי PF ו-HQT על תפקוד לקוי של מקרופאגים המושרה על ידי ox-LDL ועל סיגנלינג הקשור ל-AMPK. בתנאים שנבדקו, PF הגן על תאי RAW264.7 מפני תפקוד מטבולי לקוי של ליפידים, דלקת, סטרס חמצוני, תפקוד מיטוכונדריאלי לקוי ואפופטוזיס המושרים על ידי ox-LDL, ו-PF ו-HQT הניבו שינויים דומים בכיוונם במדדי קצה הקשורים למקרופאגים.
מבוא
מחלות קרדיווסקולריות הן סיבה מובילה לתחלואה ותמותה ברחבי העולם, ואתררסקולרוזיס (AS) מהווה בסיס פתולוגי מרכזי להפרעות קרדיווסקולריות רבות1,2,3,4. AS מאופיין בהצטברות ליפידים5, דלקת כרונית6, והיווצרות הדרגתית של פלאקים בתוך דופן העורק7. תחילתו והתקדמותו כוללות דיספונקציה אנדותליילית, סטרס חמצוני, חילוף חומרים ליפידי לא מאוזן ואקטיבציה חיסונית מתמשכת. ליפופרוטאין בצפיפות נמוכה מחומצן (ox-LDL) מקדם אקטיבציה של האנדותל וביטוי של מולקולות היצמדות וכימוקינים, כגון monocyte chemoattractant protein-1 (MCP-1), ובכך מסייע לגיוס מונוציטים אל האינטימה העורקית8. לאחר התמיינות למקרופאגים, תאים אלו קולטים ox-LDL באמצעות קולטני scavenger ומתפתחים בהדרגה לתאי קצף עמוסי ליפידים9. תהליך זה מלווה בייצור מוגבר של רדיקלים חופשיים של חמצן (ROS) וציטוקינים פרו-דלקתיים10, אשר מחמירים עוד יותר את הדלקת הווסקולרית ואת הפגיעה החמצונית. בין המתווכים הדלקתיים הללו, tumor necrosis factor-alpha (TNF-α) תורם להיווצרות תאי קצף ולאיתות דלקתי11, בין היתר באמצעות הפעלת מסלול nuclear factor kappa B (NF-κB). בתנאי מנוחה, NF-κB נשמר בציטופלזמה באמצעות אינטראקציה עם inhibitor of NF-κB alpha (IκB-α)12. בעקבות גירוי, IκB kinase (IKK) מופעל, מה שמוביל לפירוק של IκB-α ולמעבר עוקב של NF-κB אל הגרעין13, שם הוא מקדם את השעתוק של גנים דלקתיים, כולל TNF-α, interleukin-1 beta (IL-1β), ו-interleukin-6 (IL-6)14. למרות התקדמות בטיפולים להורדת רמות ליפידים ובטיפולים אנטי-דלקתיים, נותר סיכון קרדיווסקולרי שיורי משמעותי, מה שמדגיש את הצורך בפיתוח אסטרטגיות טיפוליות נוספות שיכוונו בו-זמנית למספר תהליכים פתולוגיים המעורבים ב-AS.
מרשמי רפואה סינית מסורתית (TCM) מכילים מספר רכיבים ביו-אקטיביים שעשויים להפעיל השפעות טיפוליות באמצעות אינטראקציות עם מטרות מולקולריות ומסלולי איתות מגוונים15,16. מצב פעולה רב-רכיבי ורב-מטרתי זה עשוי להציע יתרונות פוטנציאליים לניהול מחלות מורכבות כגון AS. Huangqin Tang (HQT) הוא מרשם TCM קלאסי המורכב מארבעה צמחי מרפא: Scutellaria baicalensis (Huangqin), Paeonia lactiflora (Baishao), Glycyrrhiza uralensis (Gancao), ו-Ziziphus jujuba (Dazao)17,18. דווח כי רכיבים ביו-אקטיביים המופקים מצמחים אלו מווסתים את חילוף החומרים של ליפידים, מקלים על תגובות דלקתיות ומפחיתים עקה חמצונית19. עם זאת, המטרות המולקולריות ומסלולי האיתות העומדים בבסיס ההשפעות האנטי-אתרוסקלרוטיות הפוטנציאליות של HQT עדיין אינם מובנים במלואם.
במחקר הנוכחי, שולבה פרמקולוגיה של רשת עם ניסויים in vitro כדי לבסס שיטה לחקירת המכניזמים הפוטנציאליים העומדים בבסיס ההשפעות המגנות של HQT ואחד מרכיביו הביו-אקטיביים, paeoniflorin (PF), מפני תפקוד לקוי של מקרופאגים המושרה על ידי ox-LDL. ראשית בוצע ניתוח פרמקולוגיה של רשת כדי לזהות תרכובות מועמדות, מטרות טיפוליות ומסלולי איתות הקשורים ל-HQT ול-AS. בהתבסס על המעורבות החזויה של איתות AMPK-activated protein kinase (AMPK) ועל ראיות שפורסמו בעבר, נבחר PF לצורך תיקוף ניסיוני. השפעותיו על הצטברות ליפידים, הפרשת כולסטרול, תגובות דלקתיות, מטבוליזם של אנרגיה, תפקוד מיטוכונדריאלי, סטרס חמצוני, אפו פטוזיס וסממנים פנוטיפיים של מקרופאגים הוערכו בתאי RAW264.7. כמו כן, HQT ו-PF הושוו תחת תנאים שאינם ציטוטוקסיים. יתרה מכך, נעשה שימוש בעיכוב פרמקולוגי ובשתיקה (knockdown) של AMPK באמצעות RNA מפריע קטן (siRNA), כדי לבחון האם ויסות תלוי-AMPK של ATP-binding cassette transporter A1 (ABCA1) ואיתות LXRα/NF-κB (liver X receptor alpha) תרם להשפעות המגנות של PF. גישה משולבת זו מספקת מסגרת להערכת ההשפעות המתווכות על ידי HQT ו-PF על תפקוד לקוי של מקרופאגים המושרה על ידי ox-LDL, ולקביעה האם שיטה זו מתאימה לחקירת מכניזמים הקשורים ל-AMPK במודלים דומים in vitro.
פרוטוקול
הנתונים מ-GSE100927 נותחו כסט נתונים משני, נגיש לציבור ובלתי מזהה. לא גויסו משתתפים, לא נאספו דגימות אנושיות חדשות, ולא נעשה שימוש במזהים אישיים ישירים; לפיכך, לא נדרשו אישור נוסף מוועדה לאתיקה מוסדית (IRB) או הסכמה מדעת. ניסויי התאים השתמשו אך ורק בקו תאי מקפגים של מקרופאגים מבוסס, ולא כללו בעלי חיים חיים, רקמות ראשוניות מבעלי חיים, משתתפים אנושיים או חומרים אנושיים ראשוניים; לפיכך, אישור אתי מוסדי לבני אדם או לבעלי חיים לא היה רלוונטי.
זיהוי תרכובים ביו-אקטיביים ומטרות של HQT
הגישה למסד הנתונים ולפלטפורמת הניתוח של Pharmacological Systems of Traditional Chinese Medicine (TCMSP), PubMed, China National Knowledge Infrastructure (CNKI) ומסדי הנתונים של UniProt בוצעה באמצעות הגרסאות שהיו זמינות ב-16 ביולי, 2026. חיפוש אחר Scutellaria baicalensis Georgi, Paeonia lactiflora Pall., Glycyrrhiza uralensis Fisch. ו-Ziziphus jujuba Mill. בוצע בנפרד במסד הנתונים TCMSP באמצעות שמם הלטיני, האנגלי והשם הרפואי הסיני שלהם. תרכובות עם זמינות ביולוגית経 orally (OB) של ≥30% וערך דמיות-תרופה (DL) של ≥0.18 נשמרו. תרכובות כפולות שזוהו ביותר מחומר בוטני אחד מוזגו באמצעות שם התרכובת ומזהה ה-TCMSP המתאים.
חיפוש ב-PubMed בוצע באמצעות המונחים (“Huangqin Tang” OR “Huang-Qin-Tang” OR “Huang Qin Tang”) AND (constituent OR compound OR ingredient OR phytochemical OR target), וחיפוש ב-CNKI בוצע באמצעות “Huangqin Tang” AND (“chemical constituents” OR “active ingredients” OR “pharmacological targets”). נסקרו מאמרים שפורסמו עד ל-16 בדצמבר 2025. תרכובות או מטרות נכללו רק כאשר הקשר שלהן ל-HQT או לאחד מארבעת רכיבי הצמחים שלו דווח באופן מפורש. סקירות שחסרה בהן ראיה ראשונית ניתנת למעקב, תרכובות לא מזוהות ומטרות שנחזו ללא תמיכה ניסויית או תמיכה ממאגרי נתונים הוצאו מהסקירה.
מיפוי מטרות החלבון בוצע באמצעות כלי מיפוי המזהים (identifier-mapping tool) במאגר הנתונים UniProt, כאשר האורגניזם הוגבל ל-Homo sapiens (מזהה taxon 9606). סמלי גנים אנושיים מאושרים נשמרו, בעוד שערכים שלא מופו או ערכים כפולים הוסרו. רשימת הקשרים הייחודית (deduplicated) בין התרכובות למטרות יובאה לתוכנת הוויזואליזציה של רשתות Cytoscape (גרסה 3.7.2), שם נבנתה רשת הקשרים בין תרכובות ה-HQT למטרותיהן.
זיהוי וניתוח ביואינפורמטי של מטרות הקשורות ל-AS
הגישה למסדי הנתונים GeneCards, Online Mendelian Inheritance in Man (OMIM), Comparative Toxicogenomics Database (CTD) ו-Gene Expression Omnibus (GEO) בוצעה באמצעות הגרסאות שהיו זמינות ב-16 ביולי 2026. המונח “atherosclerosis” שימש לחיפוש ב-GeneCards, OMIM ו-CTD. גנים שנשלפו מ-GeneCards עם Relevance Score של ≥1.163, המקביל לציון החציוני של כל הרשומות שנשלפו, נשמרו. רק גנים עם קשר תיעודי ישיר ל-AS מ-OMIM ומ-CTD נכללו.
מטריצת הסדרות GSE100927, קובץ הערות הדגימות וקובץ הערות הפלטפורמה GPL17077 הורדו מ-GEO. כל 104 דגימות העורקים ההיקפיים האנושיים סווגו כ-AS או כביקורת (Control) בהתאם למטא-נתוני הפנוטיפ של המאגר, ולא הוצאו דגימות על בסיס מיקום העורק.
ניתוחי ביואינפורמטיקה בוצעו באמצעות תוכנת הסטטיסטיקה R (גרסה 4.3.2) עם חבילת limma (גרסה 3.58.1), חבילת ggplot2 (גרסה 3.4.4), חבילת ComplexHeatmap (גרסה 2.18.0), חבילת clusterProfiler (גרסה 4.10.1), וחבילת org.Hs.eg.db (גרסה 3.18.0). פרובים אנוטרו באמצעות קובץ האנוטציה של פלטפורמת GPL17077, ופרובים ללא סמלי גנים מאושרים הוסרו. עבור מספר פרובים הממופים לאותו גן, חושב ממוצע באמצעות פונקציית avereps. טרנספורמציית log2(x + 1) הוחלה רק כאשר האחוזון ה-99 עלה על 100; אחרת, הערכים הלוגריתמיים שסופקו נשמרו. המערכים נורמלו בשיטת quantile.
הדגימות קודדו כ-“Control” ו-“AS”, ומטריצת עיצוב ללא נקודת חיתוך (no-intercept design matrix) נוצרה באמצעות model.matrix(~0 + group). מודלים לינאריים הותאמו באמצעות הפונקציות lmFit, makeContrasts, contrasts.fit, ו-eBayes. כל הגנים חולצו באמצעות topTable(number = Inf, adjust.method = “BH”). גנים בעלי ביטוי דיפרנציאלי הוגדרו כאלו עם ערך מוחלט של log2 fold change הגבוה מ-1 וערך p נומינלי של <0.05, בעוד שערכי p מתוקננים לפי שיטת Benjamini–Hochberg נשמרו בפלט המלא.
תרשימי געש (Volcano plots) הופקו באמצעות ערכי log2 fold-change וערכי −log₁₀ של p nominal. מפות חום (Heatmaps) נבנו לאחר סטנדרטיזציית z-score לפי שורות של הגנים שנבחרו. הגדרות עיבוד מקדמיים והדמיה זהות הוחלו על כל הדגימות.
גנים שהתקבלו מ-GeneCards, OMIM, CTD ו-GEO עברו סטנדרטיזציה באמצעות מאגר הנתונים UniProt. מזהי הגנים הומרו לסמלי גנים מאושרים באותיות רישיות, ורשומות ריקות, לא ממופות וכפולות הוסרו מכל מקור נתונים. מטרות הקונצנזוס הקשורות ל-AS הוגדרו כגנים שזוהו לפחות בשניים מארבעת מקורות הנתונים. פונקציית ה-intersect() ב-R שימשה לזיהוי גנים משותפים עם קבוצת מטרות ה-HQT הסטנדרטית.
מטרות ה-HQT-AS החופפות הוגשו למסד הנתונים STRING (גרסה 12.0), בגישה מה-16 בדצמבר 2025. הניתוח הוגבל ל-Homo sapiens, ציון האינטראקציה המינימלי נקבע ל-0.700, כל ערוצי הראיות נשמרו, ולא נוספו אינטראקטורים של מעטפת ראשונה או שנייה. טבלת האינטראקציות יוצאה ויובאה ל-Cytoscape כרשת לא מכוונת. לולאות עצמיות וקשתות כפולות הוסרו, וערכי מרכזיות של דרגה (degree), בינאיות (betweenness) וקירבה (closeness) חושבו באמצעות התוסף CentiScaPe (גרסה 2.2). גנים מרכזיים (Hub genes) הוגדרו כאלה שכל שלושת מדדי המרכזיות שלהם עלו מהממוצעים המתאימים של הרשת.
סמלי גנים מאושרים הומרו למזהי Entrez באמצעות הפונקציה bitr. מזהים שלא מופו ומזהים כפולים הוסרו, וכל הגנים שמופו בהצלחה במערך הנתונים המבואר שימשו כרקע. ניתוח העשרה של Gene Ontology עבור כל האונטולוגיות בוצע באמצעות enrichGO (ont = “ALL”), וניתוח העשרה של מסלולים מתוך ה-Kyoto Encyclopedia of Genes and Genomes בוצע באמצעות enrichKEGG (organism = “hsa”). הוחל תיקון Benjamini–Hochberg, ומונחים מועשרים עם ערך p מתוקנן של <0.05 נשמרו.
הסקריפטים המלאים לעיבוד מקדים, ביטוי דיפרנציאלי, ויזואליזציה והעשרה סופקו כ-TCMSP analysis.R ו-Transcriptome analysis.R. בהתבסס על תוצאות ניתוח הרשת ועל ראיות שפורסמו, paeoniflorin (PF), liquiritin, baicalin, wogonoside ו-glycyrrhizic acid זוהו כמרכיבים העיקריים של HQT20. PF נבחר כתרכובת מייצגת בשל תפקידיו המדווחים בבקרת מטבוליזם של ליפידים ואיתות של AMP-activated protein kinase.
הכנת תמצית ה-HQT
שילוב של S. baicalensis Georgi, P. lactiflora Pall., G. uralensis Fisch., ו- Z. jujuba Mill. מאומתים בוצע ביחס משקל יבש של 3:2:2:3. הוסף מים דה-יוניים ביחס של 1:10 (משקל/נפח), והתערובת חוממה תחת רפלקס למשך 1 h. התמצית סוננה בעודה חמה, והמשקע חולץ פעם שנייה עם מים דה-יוניים ביחס של 1:8 (משקל/נפח) למשך 1 h, כפי שתואר בעבר19. התסננים אוחדו, רוכזו תחת לחץ מופחת בטמפרטורה של 60°C, ויובשו בוואקום עד למשקל קבוע; ניצול החילוץ היה 36.34% . התמצית המיובשת הומסה במים סטריליים בריכוז של 1 g/mL, סוננה דרך ממבנה של 0.22 µm, חולקה לאליקוואוטים ונשמרה ב-−20°C עד לשימוש. ריכוזים ניסיוניים בוטאו כמיקרוגרמים של תמצית מיובשת למיליליטר של מצע גידול.
תרבית תאים, טרנספקציה וטיפול
מקרופאגים עכבריים מסוג RAW264.7 תורגדו במצע Dulbecco's modified Eagle עם ריכוז גלוקוז גבוה, בתוספת 10% fetal bovine serum, 100 U/mL penicillin ו-100 µg/mL streptomycin, בטמפרטורה של 37°C באינקובטור לח עם 5% CO2. התאים הועברו לתרביות חדשות (subcultured) כאשר הגיעו לכ-80% התמסרות (confluence), ונעשה שימוש אך ורק בתאים שבין מעברים (passages) 5 ל-20 לאחר ההפשרה. זהות שורת התאים אומתה מול תעודת המאגר, ומאפייני המורפולוגיה, ההיצמדות והצמיחה של התאים נוטרו באופן שגרתי. נעשה שימוש אך ורק בתרביות שהיו שליליות למיקופלסמה. תרביות שהראו זיהום, צמיחה חריגה, ואקולציה משמעותית, ששריים נרחבים, התנתקות בולטת או התפלגות תאים לא אחידה הושלו.
לצורך השתקה של AMPKα1, תאים נזרעו בריכוז של 2 × 10⁵ תאים לבאר ב-2 mL של מצע גידול בלוחות של 6 בארות, ועברו טרנספקציה כאשר הגיעו למסף של 50%–60% confluence. סך של 100 pmol של si-AMPKα1 או siRNA שאינו מכוון למטרה (non-targeting) דולל ב-125 µL של מצע עם סרום מופחת, בעוד ש-5 µL של ריאגנט טרנספקציה מבוסס ליפידים דוללו בנפרד ב-125 µL של מצע עם סרום מופחת. לאחר דגירה של 15 min בטמפרטורת החדר, שני התמיסות אוחדו והוספו בטיפות לתאים כדי להגיע לריכוז סופי של siRNA של 50 nM. רצפי ה-si-AMPKα1 היו כדלקמן: sense, 5′-CCCATCTTATAGTTCAACCAT-3′, ו-antisense, 5′-ATGGTTGAACTATAAGATGGG-3′. מצע הגידול הוחלף לאחר 6 h, והדגירה נמשכה למשך 48 h בסך הכל לפני הטיפול ב-ox-LDL וב-PF. השתקת (knockdown) ה-AMPKα1 אומתה באמצעות qRT-PCR ו-western blotting, ורק ניסויים שהראו הפחתה משמעותית ביחס לקבוצת ה-siRNA ששימשה כביקורת שלילית נכללו בניתוחים הבאים.
PF, dorsomorphin ו-BAY 11-7082 הוכנו ב-dimethyl sulfoxide (DMSO), בעוד ש-HQT הוכן במים סטריליים. ריכוז ה-DMSO הסופי נשמר ברמה של ≤0.1% בכל קבוצות הטיפול, והנושאי (vehicle) המתאים הוסף לקבוצות הביקורת.
לצורך סריקת ריכוזים, התאים טופלו במשך 24 h ב-PF בריכוזים של 0, 1, 5, 10, 20 או 40 µM, או ב-HQT בריכוזים של 0, 12.5, 25, 50, 100 או 200 µg/mL. לאחר מכן נבחנו חיוניות התאים והפספורילציה של AMPK. על בסיס תוצאות אלו, נבחרו 20 µM PF ו-100 µg/mL HQT עבור כל הניסויים הבאים.
להשוואה בין PF ל-HQT, קבוצות הטיפול כללו קבוצת ביקורת, קבוצת 50 µg/mL ox-LDL, קבוצת ox-LDL בתוספת 20 µM PF, וקבוצת ox-LDL בתוספת 100 µg/mL HQT. כל הקבוצות דוגרו למשך 24 h. לצורך עיכוב פרמקולוגי של AMPK, קבוצת ה-ox-LDL פלוס PF קיבלה טיפול מקדים של 10 µM dorsomorphin למשך 1 h לפני הטיפול המשולב למשך 24 h21,22.
עבור עיכוב גנטי של AMPK, תאים הועברו טרנספקציה עם si-NC או si-AMPKα1 למשך 48 h ולאחר מכן שויכו לקבוצות הבקרה (Control), ox-LDL, PF, או si-AMPK בתוספת PF. קבוצות ה-PF וה-si-AMPK בתוספת PF קיבלו 50 µg/mL ox-LDL יחד עם 20 µM PF למשך 24 h. קבוצת ה-ox-LDL קיבלה ox-LDL בלבד, בעוד שקבוצת הבקרה קיבלה את הנושא (vehicle) המתאים.
כדי להעריך את המעורבות של שפילול NF-κB, קבוצת טיפול נוספת קיבלה טיפול מקדים ב-10 µM BAY 11-7082 למשך 1 h לפני חשיפה ל-50 µg/mL ox-LDL למשך 24 h23,24,25. לאחר מכן נקבעו ביטוי ABCA1, הפרת כולסטרול, הצטברות ליפידים והפרופורציות של מקרופאגים CD86⁺ ו-CD206⁺.
אלא אם צוין אחרת, התאים נזרעו 12–16 שעות לפני הטיפול, ושלוש בארות חזרות שימשו לכל קבוצת טיפול. כל בדיקה בוצעה באמצעות שלוש הכנות של תאים שגודלו באופן עצמאי בימים שונים (n = 3), למעט סריקת חיוניות התאים, שהורכבה מחמישה ניסויים עצמאיים עם חמש בארות חזרות טכניות לכל ריכוז. חזרות טכניות, מדידות כפולות ושדות מיקרוסקופיים מרובים חושבו כממוצע באופן היררכי כדי להשיג ערך יחיד עבור כל ניסוי עצמאי.
רק תרביות שהיו קשורות באופן אחיד והגיעו למעמדות של כ-60%–80%, או 50%–60% עבור ניסויי טרנספקציה, שימשו לטיפול. חומרים, תוכנות וציוד חיוניים מפורטים בנספח ה- טבלת חומרים.
בדיקת חיות תאים ו-PCR כמותי בזמן אמת
תאי RAW264.7 נזרעו בריכוז של 5 × 10³ תאים לבאר בלוחיות 96-בארים והושארו להיצמד למשך לילה. התאים טופלו במשך 24 h בריכוזי PF ו-HQT המתוארים בסעיף 4. חיוניות התאים נקבעה על ידי החלפת מצע התרבית ב-100 µL של תמיסת עבודה לבדיקת חיוניות תאים, ולאחר מכן אינקובציה למשך 2 h ב-37°C בחשיכה. הבליעה נמדדה ב-450 nm.
נכללו בארות ריקות עם ריאגנטים בלבד, וערכי הבליעה שלהן הופחרו מכל המדידות. חושב ממוצע של ערכי הבליעה מחמש בארות שחזרו טכנית עבור כל ריכוז. חיות התאים חושבה כ-(בליעה של קבוצת הטיפול/בליעה של קבוצת הביקורת) × 100, כאשר ביקורת ללא טיפול הוגדרה כ-100%. בוצעו חמישה ניסויים עצמאיים.
RNA כולל הופק באמצעות ריאגנט להפקת RNA על בסיס פנול–גואנידיניום, ורק דגימות עם ערכי A260/A280 שבין 1.8 ל-2.0 שימשו למחקר. מיקרוגרם אחד של RNA כולל עבר תעתוק הפוך, וכל תגובת qPCR (quantitative PCR) בנפח של 20 µL הכילה 10 µL של 2× SYBR Green master mix, 0.4 µL של פריימרים קדמיים ואחוריים בריכוז 10 µM כל אחד, 2 µL של cDNA ו-7.2 µL של מים נקיים מנוקליאזות.
ביצוע PCR כמותי בוצע ב-95°C למשך 30 s, ולאחריו 40 מחזורים של 95°C למשך 10 s ו-60°C למשך 30 s. לאחר מכן בוצע ניתוח עקומת התכה מ-65°C עד 95°C. רצפי הפריימרים היו כדלקמן: Prkaa1 forward, 5′-ACCAGAAGCGGTGCCGGAAAGCTGG-3′; Prkaa1 reverse, 5′-TGTAGTCGGTTTATGCAGCAACGAG-3′; Gapdh forward, 5′-CGACTTCAACAGCAACTCCCACTCTTCC-3′; ו-Gapdh reverse, 5′-TGGGTGGTCCAGGGTTTCTTACTCCTT-3′.
כל דגימה נותחה בשלוש חזרות טכניות, ונכללו בקרות ללא תבנית (no-template controls). זוגות פריימרים התקבלו רק כאשר נצפה שיא התכה בודד ולא זוהה הגברה בבקרות ללא התבנית. ביטוי יחסי של Prkaa1 חושב באמצעות שיטת 2−ΔΔCt כאשר Gapdh שימש כגן הייחוס, והביטוי בקבוצת ה-si-NC נורמל ל-1.
מדידה של הצטברות ליפידים, רמות ATP והפרשת כולסטרול
לצביעה ב-Oil Red O, זרעו תאי RAW264.7 בריכוז של 5 × 10⁴ תאים לבאר ב-500 µL של מצע גידול בלוחות של 24 בארות. לאחר הטיפול, שטפו את התאים פעמיים עם 500 µL של phosphate-buffered saline (PBS), קיבעו אותם עם 500 µL של פורמלין 10% בניטרול בופר למשך 20 min, שטפו שנית פעמיים עם PBS, שטפו פעם אחת עם 500 µL של isopropanol 60%, וצבעו עם 500 µL של תמיסת עבודה של Oil Red O שהוכנה טרי למשך 15 min בטמפרטורת החדר. שטפו את התאים הצבועים במים מזוקקים עד שהרקע היה נקי. נדגמו חמישה שדות מיקרוסקופיים מכל באר כפי שמתואר בסעיף 8, והשטח החיובי ל-Oil Red O חושב כשטח החיובי חלקי שטח השדה הכולל × 100 באמצעות סף צבע קבוע. תוצאות הצביעה התקבלו רק כאשר התאי הבקרה הראו צביעה מינימלית, התאים שטופלו ב-ox-LDL הראו טיפות ליפידים תו-תאיות נפרדות, והרקע החוץ-תאי נשאר נקי. דגימות שהראו משקעים מפוזרים, צביעה לא אחידה או התנתקות נרחבת של תאים נפסלו ותהליך הצביעה חזר על עצמו.
למדידת ATP, תאים נזרעו בריכוז של 5 × 10⁵ תאים לבאר ב-2 mL של מצע גידול בפלטות 6 בארות. לאחר הטיפול, התאים נשטפו פעמיים ב-1 mL של PBS קר (בטמפרטורת קרח), לובו באמצעות 200 µL של ATP assay lysis buffer, וסובבו בצנטריפוגה במהירות של 12,000 × g למשך 5 min ב-4°C. מנת עבודה של 10 µL מהעליון (supernatant) ערבבה עם 100 µL של ATP detection reagent, ונמדדה כימילומינצנציה. ריכוזי ה-ATP חושבו על סמך עקומת סטנדרט. כל ליזט נמדד בשכפול (duplicate), ושלוש בארות חזרות נותחו בכל אחד משלושה ניסויים עצמאיים.
לניתוח פליטת כולסטרול (cholesterol efflux), תאים נזרעו בריכוז של 5 × 10⁴ מספר תאים לבאר ב- 500 µL של תוצר תרבית בלוחיות 24 בארות. לאחר הטיפול, התאים נטענו ב- 1 µg/mL NBD-cholesterol למשך 24 שעות, נשטפו שלוש פעמים עם 500 µL של PBS, והודגרו למשך 4 שעות ב- 500 µL של מצע ללא סרום המכיל או 10 µg/mL אפוליפרוטאין A-I או 50 µg/mL ליפופרוטאין בעל דחיסות גבוהה. ת上עלונות תרבית נאספו ועברו צנטריפוגציה במהירות של 1,000 × ג במשך 5 דקות. התאים נשטפו פעמיים עם PBS ולוחו אותם באמצעות 200 µL של באפר ליזיס (lysis buffer). פלואורסצנציה בתלייה ובליזאטים נמדדה בשכפולים באורכי גל של עירור ופליטה של 485 ו-535 ננומטר, בהתאמה. ערכי פלואורסצנציה שהתקבלו מבארים ללא NBD-cholesterol הופחתו, ואפליקס (efflux) של כולסטרול חושב כפלוורסצנציה של התלייה חלקי סכום הפלואורסצנציה של התלייה והליזאט. × 100 עבור כל מקבל כולסטרול.
מדידה של ציטוקינים דלקתיים, פוטנציאל ממברנת המיטוכונדריה, מיני חמצן רהאקטיביים ואפופטוזיס
עבור בדיקת ELISA (enzyme-linked immunosorbent assay), תאי RAW264.7 נזרעו בריכוז של 5 × 10⁵ תאים לבאר ב-2 mL של מצע גידול בלוחות של 6 בארות. לאחר 24 שעות של טיפול, נאספו העלונות של התרבית, סובבו בצנטריפוגה ב-1,000 × g למשך 10 דקות ב-4°C, ונותחו באופן מיידי או חולקו לאליקוטס ואוחסנו ב-−80°C עד לניתוח. הושמטו מחזורי הקפאה והפשרה חוזרים. ריכוזי TNF-α, IL-6 ו-IL-1β של עכבר נמדדו באמצעות ערכות sandwich ELISA. כל الريאגנטים הובאו לטמפרטורת החדר לפני השימוש. תמיסות סטנדרט, בלאנקים ודגימות הועמסו בשכפולים בנפח של 100 µL לבאר. הבארות נשטפו חמש פעמים עם 300 µL של בופר שטיפה לאחר כל דגירה של נוגדנים. פיתוח הצבע הושג באמצעות סובסטרט tetramethylbenzidine, התגובה הופסקה בהתאם להוראות היצרן, והבליעה נמדדה ב-450 nm. ריכוזי הציטוקינים חושבו מעקומות סטנדרט לוגיסטיות בעלות ארבעה פרמטרים והובעו כ-pg/mL. מדידות עם מקדמי וריאציה בשכפולים הגבוהים מ-15% בוצעו שוב, ודגימות שחרגו מטווח הבדיקה דוללו לפני ניתוח חוזר.
לצורך ניתוח הפוטנציאל של הממברנה המיטוכונדריאלית, זרעו תאים בריכוז של 5 × 10⁴ תאים לבאר ב-500 µL של מצע גידול בלוחות 24 באריים. לאחר הטיפול, נשטפו התאים פעמיים והודגרו עם 500 µL של תמיסת עבודה JC-1 למשך 20 דקות ב-37°C בחושך. לאחר מכן נשטפו התאים פעמיים עם בופר צביעה, ונרכשו נתוני פלואורסצנציה של אגרגטים אדומים ומונומרים ירוקים משדות מיקרוסקופיים זהים באורכי גל של עירור/פליטה של 525/590 nm ו-490/530 nm, בהתאמה. לאחר מכן חושב היחס בין הפלואורסצנציה הירוקה לאדומה בניכוי הרקע.
לניתוח מיני חמצן רבטיביים (ROS) תוך-תאיים, תאים נזרעו בריכוז של 5 × 10⁴ תאים לבאר בלוחות 24-בארים. לאחר הטיפול, התאים נשטפו פעמיים במצע ללא סרום ודגרו עם 10 µL של 2′,7′-dichlorodihydrofluorescein diacetate המדולל ב-200 µL של מצע תרבית למשך 2 h בטמפרטורה של 37°C בחשיכה. הלוחות נועדו בעדינות כל 5 min במהלך הדגירה. לאחר מכן, התאים נשטפו שלוש פעמים, והפלואורסצנציה נמדדה באורכי גל של עירור ופליטה של 488 ו-525 nm, בהתאמה.
לניתוח אפופטוזיס, תאים נזרעו בריכוז של 5 × 10⁴ תאים לבאר בלוחיות 24 בארות. לאחר הטיפול, התאים נשטפו פעמיים, קובעו עם 4% paraformaldehyde למשך 20 min, נשטפו שלוש פעמים, ועברו פרמיביליזציה עם 0.1% Triton X-100 ב-PBS למשך 10 min. הוספנו סך הכל 250 µL מתערובת תגובה של terminal deoxynucleotidyl transferase dUTP nick-end labeling (TUNEL), והתאים דגרו למשך 60 min ב-37°C בתא חשוך ולח. לאחר שלושה שטיפות, הגרעינים נצבעו בצביעה נגדית ב-4′,6-diamidino-2-phenylindole (DAPI) למשך 5 min. בכל ניסוי נכללה ביקורת שלילית ללא terminal deoxynucleotidyl transferase.
פוטנציאל ממברנה מיטוכונדריאלי שנשמר התבטא בעיקר בפלורסצנציה אדומה נקודתית של JC-1, בעוד שדפולריזציה של הממברנה התבטאה בעלייה בפלורסצנציה ירוקה דיפוזית. תמונות של ROS התקבלו רק כאשר הפלורסצנציה הירוקה הייתה תאית (intracellular) וללא משקעים או רוויית אות. צביעת אפופטוזיס התקבלה רק כאשר הפלורסצנציה האדומה הייתה בעיקרה גרעינית, ובקרת השמטת האנזים הראתה אות רקע מינימלי.
רכישת תמונה ואנליזה כמותית
תמונות בשדה בהיר ובפלואורסצנציה נרכשו באמצעות מיקרוסקופ פלואורסצנציה הפוך המצויד במצלמה דיגיטלית ובעדשה אובייקטיבית 20×. חמישה שדות שאינם חופפים נאספו מכל באר, כולל שדה מרכזי אחד וארבעה שדות פריפריים. אזורים הכילים שריטות, קצוות של בארות, שכבות תאים שהסתלקו או פסולת גדולה הוצאו מהניתוח לפני חשיפת זהות הטיפולים. הגדרות חשיפה והגבר (gain) אוטומטיות בוטלו. עוצמת התאורה, זמן החשיפה, ההגבר, העדשה האובייקטיבית וממדי התמונה נקבעו באמצעות בארות ביקורת (Control) ובארות ox-LDL מייצגות, כדי להבטיח שסיגנל הפלואורסצנציה החזק ביותר יישאר ללא רוויה. הגדרות רכישת תמונה זהות נשמרו עבור כל קבוצות הטיפול בתוך כל ניסוי עצמאי. ערוצי פלואורסצנציה אדום וירוק מזווגים נרכשו ללא מיקום מחדש של בסיס המיקרוסקופ. תמונות שלא עברו התאמה נותחו באמצעות תוכנת ניתוח התמונות ImageJ, כאשר החוקר נשאר מסווג (blinded) להקצאת הטיפולים. סיגנל רקע מאזור ללא תאים הופחת, וספי תמונה נקבעו באמצעות תמונות ביקורת (Control) ו-ox-LDL מייצגות. אותם ספים הוחלו לאורך כל ניסוי. רק התאמות אחידות לכל התמונה הוחלו לצורך הצגת הדמויות. תוצאות JC-1 הובעו כיחס פלואורסצנציה של ירוק לאדום. סיגנלים של מיני חמצן רבתיים (Reactive oxygen species) ואפופטוזיס הובעו כממוצע פלואורסצנציה בניכוי רקע, מנורמל לשטח המנותח, כאשר ערך הממוצע של קבוצת הביקורת (Control) נורמל ל-1 לצורך ניתוחים יחסיים. חמישה שדות מיקרוסקופיים שוררו כדי לקבל ערך אחד לכל באר, והערכים משלוש בארות שוררו כדי להפיק ערך אחד לכל ניסוי עצמאי.
ניתוח Western Blot
תאי RAW264.7 נזרעו בריכוז של 5 × 10⁵ תאים לבאר ב-2 mL של מצע גידול בלוחות 6-בארים, ומכל באר הוכנה דגימה אחת של ליזט חלבון. לצורך מיצוי חלבון מהתא השלם, התאים נשטפו פעמיים ב-PBS קר, עברו ליזה במשך 30 דקות על קרח באמצעות בופר radioimmunoprecipitation assay (RIPA) המועשר במעכבי פרוטאז ופוספטאז, וסובבו בצנטריפוגה במהירות של 12,000 × g למשך 15 דקות ב-4°C. לצורך מיצוי חלבון גרעיני, התאים הושעו בבופר המכיל 10 mM HEPES, 10 mM KCl, 1.5 mM MgCl2, 0.5 mM dithiothreitol ומעכבי פרוטאז/פוספטאז, והודגרו על קרח למשך 15 דקות. דטרגנט לא-יוני נוסף עד לריכוז סופי של 0.5%, ולאחר מכן בוצע ערבוב קצר ב-vortex וצנטריפוגה במהירות של 700 × g למשך 5 דקות ב-4°C. המשקע הגרעיני מופק במשך 30 דקות על קרח עם ערבוב לסירוגין בבופר המכיל 20 mM HEPES, 420 mM NaCl, 1.5 mM MgCl2, 0.2 mM EDTA, 25% glycerol, 0.5 mM dithiothreitol ומעכבי פרוטאז/פוספטאז. התמצית עברה לאחר מכן צנטריפוגה במהירות של 14,000 × g למשך 15 דקות ב-4°C.
ריכוזי החלבון נקבעו באמצעות בדיקת חומצה ביצינכונינית (bicinchoninic acid assay). כמויות שוות של חלבון (25–30 µg) הועמסו לכל נתיב, חוממו ב-95°C למשך 5 min, הופרדו על ג'לי sodium dodecyl sulfate–polyacrylamide בריכוז של 8%–12%, והועברו לממברנות polyvinylidene fluoride של 0.45 µm במתח של 100 V למשך 90 min בתנאי קירור. ממברנות המכילות חלבונים כוללים נחסמו עם 5% חלב דל שומן, בעוד שממברנות המכילות חלבונים זפוספורפוסף נחסמו עם 5% bovine serum albumin שהוכן ב-Tris-buffered saline המכיל polysorbate 20 למשך 1 h. הממברנות דגרו למשך הלילה ב-4°C עם נוגדנים ראשוניים נגד AMPK, phosphorylated AMPK, BAX, BCL-2, caspase-3, ABCA1, p65, phosphorylated p65, LXRα, IκB-α, phosphorylated IκB-α, ו-histone H3 בדילול של 1:1,000, למעט histone H3, ששימש בדילול של 1:2,000. נוגדנים ל-GAPDH ו-β-actin שימשו בדילול של 1:5,000. לאחר דגירת הנוגדנים הראשוניים, הממברנות נשטפו שלוש פעמים למשך 10 min כל פעם ודגרו למשך 1 h עם נוגדנים משניים מסוג goat anti-rabbit או goat anti-mouse המצומדים ל-horseradish peroxidase בדילול של 1:5,000. לאחר שטיפה נוספת, פסי החלבון זוהו באמצעות ריאגנט לגילוי chemiluminescence מוגבר. נבחר זמן החשיפה הקצר ביותר המניב פסים שאינם רוויים עבור כל חלבוני המטרה, והגדרות חשיפה ורכישת תמונה זהות נשמרו עבור כל הקבוצות על אותה ממברנה.
נפחי פסי החלבון נמדדו באמצעות תוכנת ניתוח התמונות ImageJ לאחר חיסור רקע מקומי. רמות ה-Total AMPK, ABCA1, BAX, BCL-2, caspase-3, IκB-α, ו-phosphorylated IκB-α נורמלו ל-GAPDH או β-actin. חושבו היחסים בין phosphorylated AMPK ל-total AMPK ובין phosphorylated p65 ל-total p65. רמות ה-Nuclear LXRα, p65, ו-phosphorylated p65 נורמלו ל-histone H3, והערך הממוצע של קבוצת ה-Control או ה-si-NC בכל ניסוי עצמאי נורמל ל-1. בניתוח נכללו רק בלוטים שהראו פסים מובחנים במשקלים המולקולריים הצפויים, רקע נמוך, אותות שאינם רוויים ובקרות טעינה דומות. ממברנות שהראו נתיבים מעוותים, מעבר חלבון לא שלם, רקע מוגבר או רוויית אות עובדו מחדש או הוצאו מהניתוח. שלושה ניסויים עצמאיים בוצעו באמצעות ליזטים של חלבונים שהוכנו בנפרד.
בדיקת הסטה תרמית של חלבונים בתא (Cell Thermal Shift Assay)
תאי RAW264.7 נזרעו בריכוז של 3 × 10⁶ תאים ב-10 mL של מצע גידול בצלחות תרבית של 100 mm ודגרו למשך לילה. התאים נאספו, נשטפו פעמיים ב-PBS קר מאוד, עברו ליזיס במשך 30 min על קרח ב-PBS המכיל 0.4% NP-40 ומעכבי פרוטאז/פוספטאז, וסובבו בצנטריפוגה ב-20,000 × g למשך 20 min ב-4°C. ריכוז החלבון בליזאטים המזוקקים הותאם ל-2 mg/mL. נפחים שווים של ליזאט מזוקק דגרו עם 20 µM PF או עם 0.1% DMSO למשך 1 h בטמפרטורת החדר. כל דגימה חולקה לאליקוויטות של 50 µL וחוממה למשך 3 min ב-37°C, 41°C, 45°C, 49°C, 53°C, 57°C, 61°C, 65°C, 69°C, או 73°C. הדגימות קוררו מיד ב-4°C למשך 3 min וסובבו בצנטריפוגה ב-20,000 × g למשך 20 min ב-4°C. נפחים שווים של העלונות המסיסות נותחו באמצעות western blotting לזיהוי AMPK ו-AMPK זירחון. האות שהתקבל בכל טמפרטורה נורמל לאות המקביל ב-37°C, שהוגדר כ-100%. שפע החלבון המסיס שורטט כפונקציה של הטמפרטורה, והבדיקה המלאה חזרה שלוש פעמים תוך שימוש בתאים שגודלו באופן עצמאי. בניתוח נכללו רק ניסויים שהראו פס ייחוס ניתן לזיהוי ב-37°C, אובדן הדרגתי של AMPK מסיס עם עליית הטמפרטורה, והיעדר עיוות משמעותי של הנתיבים או עליות חריגות בחלבון המסיס בטמפרטורות הגבוהות ביותר.
ניתוח באמצעות ציטומטריית זרימה
תאי RAW264.7 נזרעו בריכוז של 5 × 10⁵ תאים לבאר ב-2 mL של מצע גידול בלוחות 6-בארים. לאחר הטיפול, התאים נשטפו פעמיים ב-PBS קר (בטמפרטורת קרח) והופרדו בעדינות באמצעות גרד תאים (cell scraper) ב-PBS המכיל 2% fetal bovine serum ו-2 mM EDTA. תגלי התאים סובבו בצנטריפוגה במהירות של 400 × g למשך 5 min ב-4°C, נשטפו פעמיים ב-PBS, וריכוזם הותאם לכ-1 × 10⁶ תאים לדגימה. התאים נצבעו בצבע חיוניות (viability dye) בעל תגובתיות לאמינים הניתן לקיבוע למשך 20 min בטמפרטורת החדר בחשיכה. לאחר השטיפה, קולטני Fc נחסמו באמצעות נוגדן anti-mouse CD16/32 למשך 15 min ב-4°C. נוגדנים מצומדים לפלואורוכרומים נגד CD45, CD11b, F4/80, CD86 ו-CD206 הוספו בכמות של 5 µL לכל נוגדן עבור כל 1 × 10⁶ תאים, והתאים דגרו למשך 30 min ב-4°C בחשיכה.
בעקבות צביעה בנוגדנים, התאים נשטפו פעמיים, הושעו מחדש ב-300 µL של חוצץ צביעה, ונבדקו באמצעות ציטומטריה של זרימה. עבור כל דגימה נרכשו לפחות 50,000 אירועים סה"כ, ובכל מקום שניתן, לפחות 20,000 אירועים חיוניים של CD45⁺CD11b⁺F4/80⁺. נכללו בבדיקה בקרות ללא צביעה, בקרות פיצוי לצביעה בודדת, ובקרות fluorescence-minus-one עבור CD86 ו-CD206. אותה מטריצת פיצוי הוחלה על כל קבוצות הטיפול בתוך כל ניסוי. פסולת (debris) הוצאה על בסיס מאפייני פיזור קדמי (forward-scatter) ופיזור צדי (side-scatter), וצמדי תאים (doublets) הוצאו באמצעות השוואה בין שטח הפיזור הקדמי לגובה הפיזור הקדמי. תאים שליליים לצבע חיוניות זוהו, תאי CD45⁺ סומנו ב-gate, ומקרופאגים הוגדרו כתאים מסוג CD11b⁺F4/80⁺. תאים מסוג CD86⁺ ו-CD206⁺ נספרו בתוך ה-gate של המקרופאגים באמצעות ספי שנקבעו על פי בקרות ה-fluorescence-minus-one המתאימות. אותה היררכיית gating הוחלה על כל הדגימות. תרחיף תאים צבוע אחד הוכן מכל אחת משלוש בארות חוזרות, והאחוזים שהתקבלו משלוש הבארות חושבו כממוצע כדי להפיק ערך אחד עבור כל ניסוי עצמאי. הניסוי חזר על עצמו שלוש פעמים תוך שימוש בתאים שגודלו באופן עצמאי.
בטיחות וסילוק פסולת
כל הלימודי תרביות תאים, הטיפול ב-ox-LDL ועיבוד של חומרים ממקור תאי בוצעו במCaba בטיחות ביולוגית Class II בהתאם לנהלי בטיחות ביולוגית ברמה 2 (BSL-2). במהלך כל הפעולות נעשה שימוש בחלוקי מעבדה, כפפות והגנה על העיניים. משטחי העבודה והציוד חוטרו לאחר השימוש. בפורמלהיד ופראפורמלהיד נעשה טיפול בזהירות הראויה בשל רעילותם ופוטנציאל מסרטן. מקבעים, תמיסות Oil Red O, תמיסות המכילות DMSO ותמיסות צביעה פלורסצנטיות טופלו תוך שימוש בציוד הגנה אישי מתאים ואוורור נאות. מקבעים, תמיסות צביעה, תמיסות המכילות DMSO ומצעי תרבית המכילים ox-LDL נאספו בנפרד והושלכו כפסולת כימית מסוכנת בהתאם לנהלי המוסד. מצעי תרבית המכילים תאים, חומרים מתכלים מזוהמים ודגימות לציטומטריה של זרימה טופלו כפסולת ביולוגית. פסולת ביולוגית נוזלית חוטרה באמצעות 10% sodium hypochlorite שהוכנה טרי למשך 30 min לפחות, ופסולת ביולוגית מוצקה עברה עיקור באוטוקלאב לפני השלכתה, בהתאם לנהלי הבטיחות הביולוגית של המוסד.
ניתוח סטטיסטי
כל הניתוחים הסטטיסטיים בוצעו באמצעות תוכנת הסטטיסטיקה GraphPad Prism (גרסה 10.1.2). הנתונים מוצגים כממוצע ± סטיית תקן. הערך n מייצג את מספר הניסויים העצמאיים ולא את מספר בארות החזרות הטכניות, מדידות המכשיר או שדות מיקרוסקופיות. עבור כל הניתוחים הסטטיסטיים נעשה שימוש בערכים ממוצעים היררכיים שהתקבלו מכל ניסוי עצמאי, כפי שתואר בסעיפים הקודמים. השוואות בין שתי קבוצות בוצעו באמצעות מבחן t של Student דו-זנבי למדגמים בלתי תלויים. השוואות בין שלוש קבוצות או יותר בוצעו באמצעות ניתוח שונות חד-כיווני (one-way ANOVA), ולאחריו מבחן השוואות מרובות של Tukey. כל המבחנים הסטטיסטיים היו דו-צדדיים, וערך p <0.05 נחשב למשמעותי מבחינה סטטיסטית.
תוצאות
תרכובים פעילים של HQT ומטרותיהם
בסך הכל זוהו 137 תרכובות ביו-אקטיביות מועמדות מתוך HQT, באמצעות סינון ואינטגרציה של נתונים שהתקבלו ממסד הנתונים TCM Systems Pharmacology. לאחר הסרת כניסות כפולות, נותרו 391 מטרות משוערות ייחודיות הקשורות לתרכובות אלו. לאחר מכן, נבנתה רשת אינטראקציה של HQT–תרכובת–מטרה באמצעות Cytoscape גרסה 3.7.2, כפי שמוצג ב-איור 1.
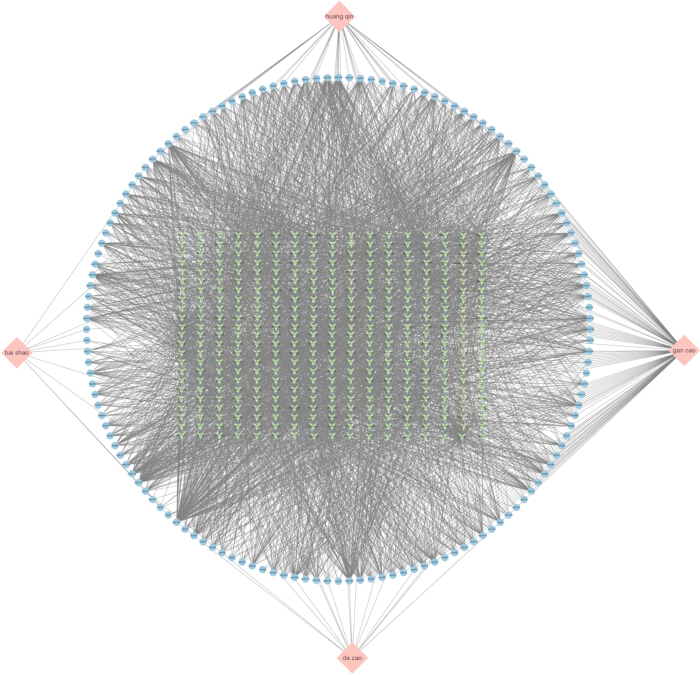
איור 1. רשת אינטראקציות חזויה של מרכיבי Huangqin Tang ומטרות משוערות.רשת המראה אינטראקציות חזויות בין ארבעת המרכיבים הצמחיים של Huangqin Tang (HQT), מרכיבים ביו-אקטיביים מועמדים ומטרות מולקולריות משוערות. צמתים בצורת מעוין ורוד מייצגים את ארבעת המרכיבים הצמחיים, צמתים מעגליים כחולים מייצגים תרכובות מועמדות, וצמתים ירוקים מייצגים מטרות חזויות. קשתות מצביעות על קשרי צמח-תרכובת או תרכובת-מטרה חזויים. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
זיהוי מטרות הקשורות להתערבות HQT ב-AS
נתוני ביטוי גנים ממאגר הנתונים GSE100927 התקבלו ממאגר הנתונים Gene Expression Omnibus. ניתוח ביטוי דיפרנציאלי זיהה 1,513 גנים עם ביטוי מוגבר (upregulated) באופן מובהק ו-922 גנים עם ביטוי מופחת (downregulated) באופן מובהק בדגימות עורקים עם טרש Arteries לעומת דגימות עורקים של ביקורת. תרשים ההר געש (volcano plot) ומפת החום (heatmap) התואמים מוצגים ב-איור 2A וב-איור 2B, בהתאמה. מטרות הקשורות ל-AS נשלפו לאחר מכן ממאגרי הנתונים GeneCards, Online Mendelian Inheritance in Man ו-Comparative Toxicogenomics. באמצעות סף ציון רלוונטיות של ≥1.163, התקבלו 600 מטרות פוטנציאליות מ-GeneCards, בעוד ש-188 ו-64 מטרות נשלפו ממאגרי הנתונים Online Mendelian Inheritance in Man ו-Comparative Toxicogenomics, בהתאמה, כפי שמסוכם ב-איור 2C. אינטגרציה של המטרות שהופקו מהמאגרים עם הגנים בעלי הביטוי הדיפרנציאלי זיהתה 29 מטרות הקשורות ל-AS הנתמכות על ידי שני מקורות נתונים לפחות. מטרות אלו הושוו לאחר מכן למטרות החזויות של HQT, מה שהניב 12 מטרות חופפות שנחשבו כמטרות מועמדות שדרכן HQT עשוי להפעיל את השפעותיו על AS (איור 2D).
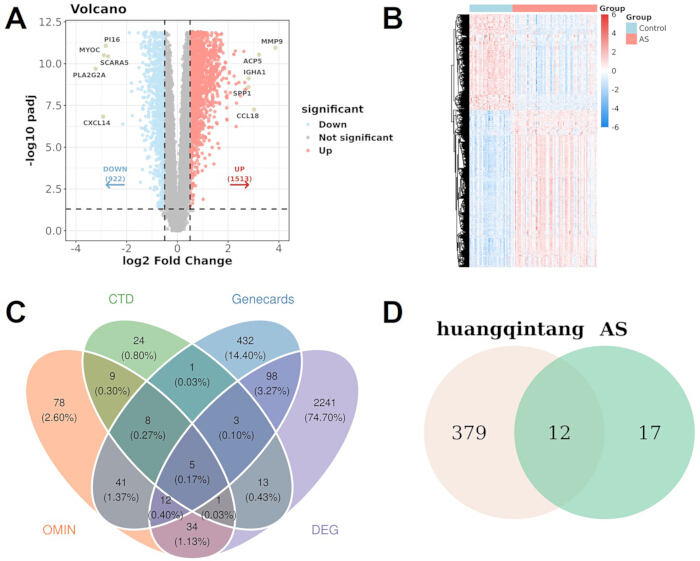
איור 2זיהוי גנים הקשורים לאתרוסקלרוזיס וחפיפתם עם מטרות חזויות של Huangqin Tang. (Aתרשים געש (Volcano plot) המציג גנים עם ביטוי דיפרנציאלי (DEGs) בין דגימות עורקים עם טרשת עורקים (AS) לבין דגימות ביקורת במאגר הנתונים GSE100927. נקודות אדומות וכחולות מייצגות גנים עם ביטוי מוגבר (upregulated) וביטוי מופחת (downregulated), בהתאמה, ונקודות אפורות מייצגות גנים שלא הראו ביטוי דיפרנציאלי מובהק.B) מפת חום (Heatmap) המראה את דפוסי הביטוי של גנים בעלי ביטוי דיפרנציאלי (DEGs) בדגימות ביקורת ובדגימות AS. (C(תרשים ונ showing את החפיפה בין גנים הקשורים ל-AS שהתקבלו מ-Comparative Toxicogenomics Database, GeneCards, Online Mendelian Inheritance in Man ומניתוח ה-DEG של GSE100927. (ד') תרשים ונ (Venn diagram) המציג את החפיפה בין מטרות HQTחזויות לבין מטרות הקשורות ל-AS שנשמרו לפחות משני מקורות בפאנל C. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
רשת אינטראקציות חלבון-חלבון ואנליזות העשרה תפקודית של יעדי המועמדות
כדי לאפיין את האינטראקציות והרלוונטיות הביולוגית של 12 המטרות החופפות, נבנתה רשת של אינטראקציות חלבון–חלבון (PPI) באמצעות מאגר הנתונים STRING, ולאחר מכן הוצגה ונותחה ב-Cytoscape. הרשת הכילה מספר מטרות הקשורות קשר הדוק למטבוליזם של ליפידים, דלקת כלי דם ו-AS, ביניהן NOS3, OLR1, ALOX5, SPP1, ESR1, IL10, TNF ו-VCAM1 (איור 3A). צמתים גדולים וכהים יותר ייצגו מטרות בעלות חשיבות טופולוגית רבה יותר בתוך הרשת, מה שמרמז כי חלבונים אלו עשויים לתפוס עמדות מרכזיות יחסית ברשת המטרות הפוטנציאלית של HQT נגד AS. כדי לאפיין יותר את התפקודיים הביולוגיים ומסלולי השליחויות הקשורים למטרות אלו, בוצעו ניתוחי העשרה של Gene Ontology (GO) ו-Kyoto Encyclopedia of Genes and Genomes (KEGG). ניתוח תהליכים ביולוגיים (BP) ב-GO הראה כי המטרות היו קשורות בעיקר לתהליכי מטבוליזם של סטרואידים, תגובות להורמוני סטרואידים ולרמות תזונה, ולויסות של הומאוסטזיס ליפידי (איור 3B). ניתוח רכיבים תאיים (CC) ב-GO הצביע על העשרה דומיננטית ברפטים של ממברנה (membrane rafts) ובמיקרו-דומיינים של ממברנה קשורים (איור 3C), בעוד שניתוח תפקוד מולקולרי (MF) ב-GO חשף העשרה בפעילות רספטורים של חלקיקי ליפופרוטאין בעלי צפיפות נמוכה, פעילות רספטורים של חלקיקי ליפופרוטאין, קשירת פרוטאז, פעילות ציטוקינים, פעילות רספטורים גרעיניים, פעילות גורמי שעתוק המודולים על ידי ליגנדים, פעילות רספטורי מטען, קשירת קו-רגולטורים של שעתוק, קשירת רספטורים גרעיניים וקשירת אינטגרינים (איור 3D). ניתוח מסלולי KEGG הדגים עוד העשרה משמעותית במסלולים הקשורים למטבוליזם של ליפידים, AS וויסות מטבולי, כולל מסלול הליפידים והטרשכסת (Lipid and Atherosclerosis), מסלול השליחויות של תוצרי גליקציה מתקדמים–רספטור לתוצרי גליקציה מתקדמים (AGE–RAGE) בסיבוכים של סוכרת, ומסלול השליחויות של AMPK (איור 3E). יחד, רשת ה-PPI וניתוחי ההעשרה הצביעו על כך שהמטרות המועמדות עשויות להשתתף בוויסות הומאוסטזיס ליפידי, שליחויות דלקתיות ומטבוליזם של אנרגיה. בפרט, העשרה של מסלול השליחויות של AMPK סיפקה רציונל לבדיקה עוקבת של השפעות הקשורות ל-AMPK של PF in vitro.
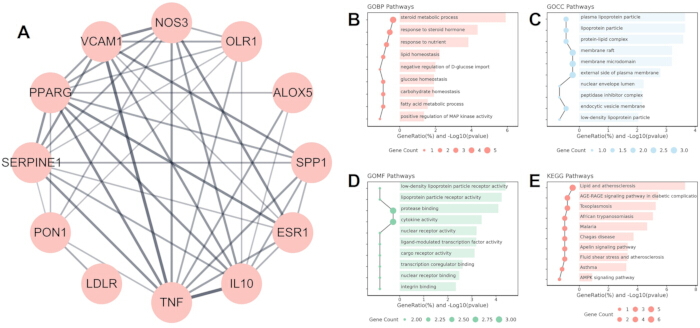
איור 3. רשת אינטראקציות חלבון-חלבון וניתוח העשרה פונקציונלית של מטרות חופפות של Huangqin Tang ואתרוסקלרוזיס. (A) רשת אינטראקציות חלבון-חלבון של המטרות החופפות בין HQT ל-AS. הצמתים מייצגים חלבונים, והקווים מייצגים קשרי חלבון-חלבון חזויים או מתועדים. (B) ניתוח העשרה של תהליכים ביולוגיים לפי Gene Ontology. (C) ניתוח העשרה של רכיבים תאיים לפי Gene Ontology. (D) ניתוח העשרה של תפקודים מולקולריים לפי Gene Ontology. (E) ניתוח העשרה של מסלולים לפי Kyoto Encyclopedia of Genes and Genomes. גודל הנקודה מייצג את מספר הגנים שהועשרו, והפסים האופקיים מייצגים את מובהקות ההעשרה ויחס הגנים המתאימים, כפי שמופיע בצירים. נא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
PF ו-HQT מפעילים את AMPK ומפעילים השפעות מגנות מפני תפקוד לקוי של מקפגים המושרה על ידי ox-LDL
כדי לקבוע ריכוזים מתאימים לניסויים הבאים, הוערכו תחילה ההשפעות של PF ו-HQT על חיות תאי RAW264.7. טיפול ב-PF בריכוזים שבין 1 ל-40 µM לא השפיע באופן ניכר על חיות התאים בהשוואה לקבוצת הביקורת שלא טופלה (איור 4A). באופן דומה, HQT בריכוזים שבין 12.5 ל-200 µg/mL לא גרם להפחתה ניכרת בחיות התאים (איור 4B). תוצאות אלו הצביעו על כך שהריכוזים שנבדקו של PF ו-HQT היו בדרך כלל נסבלים על ידי מקרופאגים מסוג RAW264.7. לאחר מכן בוצע אנליזה של Western blot כדי להעריך את ההשפעות של PF ו-HQT על הפעלת AMPK. ביטוי ה-AMPK הכולל נשאר יציב יחסית בין קבוצות הטיפול השונות, בעוד ש-PF העלה את יחס p-AMPK/AMPK באופן התלוי בריכוז. טיפול ב-HQT הגביר גם הוא את הפספורילציה של AMPK בריכוזים שנבדקו (איור 4C). בהתבסס על שימור חיות התאים וההפעלה שנצפתה של AMPK, נבחרו 20 µM PF ו-100 µg/mL HQT לניסויים השוואתיים המשך. צביעת Oil Red O הראתה כי חשיפה ל-ox-LDL הגבירה באופן ניכר את הצטברות השומנים התוך-תאית בתאי RAW264.7. טיפול ב-PF או ב-HQT הפחית באופן משמעותי את השטח החיובי לצביעת Oil Red O בהשוואה לקבוצת ה-ox-LDL (איור 4D). במקביל, חשיפה ל-ox-LDL פגעה הן בייצוא כולסטרול המתוּוך על ידי ApoA-I והן בייצוא כולסטרול המתוּוך על ידי HDL. טיפול ב-PF שיקם באופן משמעותי את שתי הצורות של ייצוא כולסטרול, ו-HQT הביא לשיפור דומה בייצוא הכולסטרול התאי (איור 4E,F). חשיפה ל-ox-LDL הגבירה גם היא באופן ניכר את הפרשת הציטוקינים הפרו-דלקתיים TNF-α, IL-6 ו-IL-1β. טיפול ב-PF הפחית באופן משמעותי את הריכוזים של כל שלושת הציטוקינים במצע התרבית. טיפול ב-HQT עיכב באופן דומה את הפרשת הציטוקינים המושרה על ידי ox-LDL (איור 4G). יחד, תוצאות אלו מעידות כי PF משחזר מספר השפעות מגנות שנצפו עם תכשיר HQT המלא, כולל הפעלת AMPK, הפחתת הצטברות שומנים, הגברת ייצוא כולסטרול ודיכוי תגובות דלקתיות. ממצאים אלו תומכים בבחירה של PF כמרכיב ביו-אקטיבי של HQT לחקר מכניסטי המשכי.
בנוסף, בוצע מבחן השגה תרמית תאית (CETSA) כדי להעריך האם PF השפיע על היציבות התרמית של AMPK. עם עליית טמפרטורת האינקובציה, הרמות הגילויות של AMPK ושל AMPK מפוספור גרדו בהדרגה הן בדגימות הביקורת (vehicle) והן בדגימות שטופלו ב-PF. עם זאת, טיפול ב-PF הגביר את שימור ה-AMPK וה-p-AMPK במספר טמפרטורות בהשוואה לדגימות הביקורת המתאימות (איור 4H,I). ממצאים אלו מרמזים כי PF מגביר את היציבות התרמית של AMPK ועקביים עם קישור פוטנציאלי למטרה (target engagement) בין PF ל-AMPK. על בסיס תוצאות אלו, ניסויים עוקבים בחנו האם עיכוב פרמקולוגי או גנטי של AMPK החליש את ההשפעות המגנות של PF במקרופאגים שטופלו ב-ox-LDL.
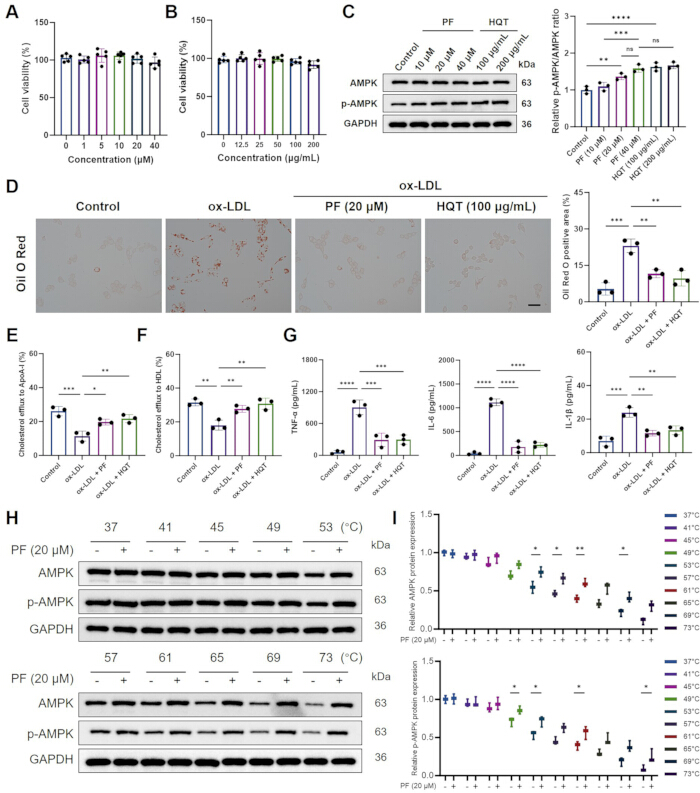
איור 4. Paeoniflorin ו-Huangqin Tang מפעילים את AMPK ומקלים על תפקוד לקוי של מקרופאגים המושרה על ידי ליפופרוטאינים בעלי צפיפות נמוכה מחומצנים. (A) חיות תאי RAW264.7 לאחר טיפול בריכוזים המצוינים של paeoniflorin (PF; n = 5). (B) חיות תאים לאחר טיפול בריכוזים המצוינים של תמצית HQT (n = 5). (C) תמונות מייצגות של western blots עבור AMPK ו-AMPK זירחון, וכימות של יחס p-AMPK/AMPK לאחר טיפול ב-PF או HQT (n = 3). GAPDH שימש כביקורת טעינה (loading control). (D) תמונות מייצגות של צביעת Oil Red O וכימות של הצטברות ליפידים תוך-תאית (n = 3). סרגל קנה מידה = 100 µm. (E) הפרשת כולסטרול המתווכת על ידי Apolipoprotein A-I (n = 3). (F) הפרשת כולסטרול המתווכת על ידי ליפופרוטאינים בעלי צפיפות גבוהה (n = 3). (G) ריכוזי TNF-α, IL-6 ו-IL-1β בעל-התרחית של התרבית שנמדדו ב-ELISA (n = 3). (H) תמונות מייצגות של cellular thermal shift assay עבור AMPK ו-p-AMPK לאחר אינקובציה בטמפרטורות המצוינות בהיעדר או בנוכחות של PF. GAPDH שימש כביקורת טעינה. (I) כימות של היציבות התרמית של AMPK ו-p-AMPK (n = 3). הנתונים מוצגים כממוצע ± SD. מובהקות סטטיסטית מסומנת כ- *P < 0.05, **P < 0.01, ***P < 0.001, ו- ****P < 0.0001. קווים אופקיים מציינים את ההשוואות הזוגיות שנבדקו. בפאנל C, ההשוואות המצוינות היו ביקורת לעומת PF (20 µM), PF (10 µM) לעומת PF (40 µM), PF (20 µM) לעומת PF (40 µM), ביקורת לעומת HQT (100 µg/mL), ו-PF (40 µM) לעומת HQT (200 µg/mL). בפאנלים D–G, ההשוואות המצוינות היו ביקורת לעומת ox-LDL, ox-LDL לעומת ox-LDL + PF, ו-ox-LDL לעומת ox-LDL + HQT. בפאנל I, דגימות שטופלו ב-vehicle וב-PF הושוו בכל טמפרטורה המצוינת על ידי קו אופקי. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
PF מפחית הצטברות ליפידים ושחרור ציטוקינים דלקתיים, ומשחזר את רמת ה-ATP התוך-תאית בתאי RAW264.7 שטופלו ב-ox-LDL
צביעה ב-Oil Red O הראתה כי טיפול ב-ox-LDL הוביל להצטברות תוך-תאית בולטת של ליפידים ולהיווצרות תאי קצף בתאי RAW264.7, כפי שניתן לראות במספר רב של טיפות ליפידים שנצבעו בעוצמה בהשוואה לקבוצת הביקורת (Figure 5A,B). טיפול ב-PF הפחית באופן משמעותי הן את מספרן והן את השטח הצבוע של טיפות הליפידים ביחס לקבוצת ה-ox-LDL. בהתאם לשיפור זה בהצטברות הליפידים, PF עוכב גם את התגובה הדלקתית המושרה על ידי ox-LDL. רמות ה-TNF-α, IL-6 ו-IL-1β בתמיסות העל של התרבית עלו באופן משמעותי בעקבות חשיפה ל-ox-LDL, אך הופחתו באופן ניכר על ידי טיפול ב-PF (Figure 5C–E). בנוסף, ox-LDL הפחית באופן משמעותי את רמות ה-ATP התוך-תאיות, בעוד ש-PF השחזר חלקית את תכולת ה-ATP, מה שמעיד על שיפור במצב האנרגיה התאי (Figure 5F). ox-LDL פגע גם בייצוא כולסטרול המתווך על ידי ApoA-I ו-HDL, בעוד ש-PF הגביר באופן משמעותי את שתי צורות ייצוא הכולסטרול ביחס לקבוצת ה-ox-LDL (Figure 5G,H). טיפול משולב עם מעכב AMPK שנקרא dorsomorphin עוכב חלקית כל אחת מהשפעות ה-PF הללו, מה שהוביל להגברת הצטברות הליפידים ולעלייה ברמות הציטוקינים הפרו-דלקתיים, יחד עם הפחתה בתכולת ה-ATP ובייצוא הכולסטרול, בהשוואה לטיפול ב-PF לבדו (Figure 5B–H). יחד, ממצאים אלו מצביעים על כך ש-PF מקל על שיבושים בטיפול בליפידים, בתגובות דלקתיות ובהומאוסטזיס של אנרגיה תאית המושרים על ידי ox-LDL בתאי RAW264.7, כאשר שבילי האיתות של AMPK עשויים לתרום להשפעות הגנה מתואמות אלו.
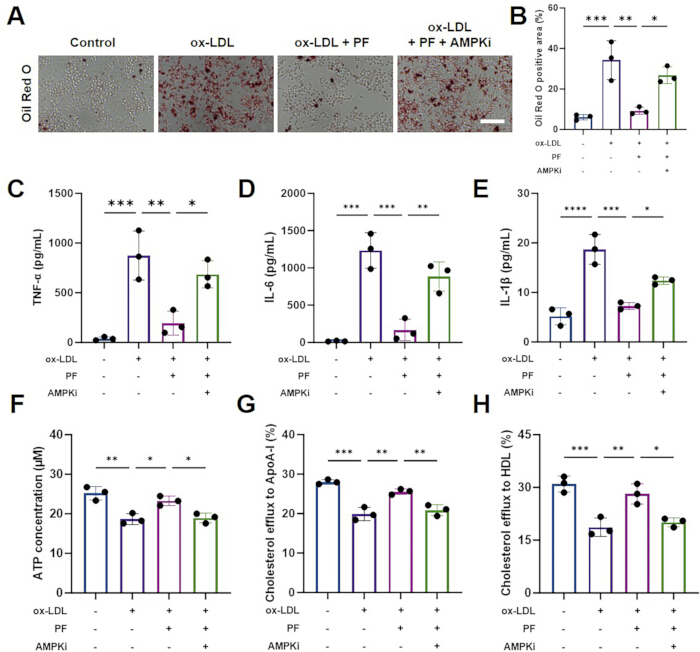
איור 5. עיכוב של AMPK מחליש את ההפחתות בדלקת ובהצטברות ליפידים ואת השיפורים בתכני ATP ובשפיעת כולסטרול המתווכים על ידי paeoniflorin. (A) תמונות מייצגות של צביעת Oil Red O בתאי RAW264.7. סרגל קנה מידה = 100 µm. (B) כימות של השטח החיובי לצביעת Oil Red O (n = 3). (C–E) ריכוזי TNF-α, IL-6 ו-IL-1β, בהתאמה, במעלי תרביות שנמדדו באמצעות ELISA (n = 3). (F) ריכוז ATP תוך-תאי (n = 3). (G) שפיעת כולסטרול המתווכת על ידי Apolipoprotein A-I (n = 3). (H) שפיעת כולסטרול המתווכת על ידי ליפופרוטאינים בצפיפות גבוהה (n = 3). AMPKi מציין את מעכב ה-AMPK dorsomorphin. הנתונים מוצגים כממוצע ± SD של שלושה ניסויים בלתי תלויים. מובהקות סטטיסטית מסומנת כ-*P < 0.05, **P < 0.01, ***P < 0.001, ו-****P < 0.0001. קווים אופקיים מסמנים את ההשוואות הזוגיות שנבדקו. בלוחות B–H, ההשוואות המצוינות היו Control לעומת ox-LDL, ox-LDL לעומת ox-LDL + PF, ו-ox-LDL + PF לעומת ox-LDL + PF + AMPKi. אנא לחצו כאן כדי להציג גרסה מורחבת של איור זה.
PF מפחית תפקוד לקוי של מיטוכונדריה, עקה חמצונית ואפופטוזיס המושרים על ידי ox-LDL
צביעת TUNEL הראתה כי ox-LDL הגביר באופן ניכר את פלואורסצנציית ה-TUNEL בתאי RAW264.7, מה שמעיד על הגברת האפופטוזיס, בעוד שטיפול ב-PF הפחית באופן משמעותי את פלואורסצנציית ה-TUNEL המושרה על ידי ox-LDL. טיפול משולב עם מעכב AMPK, dorsomorphin, הפך חלקית את ההשפעה האנטי-אפופטוטית של PF (איור 6A,B). בעקביות, ox-LDL הגביר באופן ניכר את רמות ה-ROS התוך-תאיות, כפי שהתבטא בעלייה בפלואורסצנציית DCFH-DA, בעוד ש-PF הפחית באופן משמעותי את הצטברות ה-ROS; השפעה אנטי-חמצונית זו הופכה חלקית על ידי dorsomorphin (איור 6C,D). צביעת JC-1 הראתה עוד כי טיפול ב-ox-LDL הפחית את פלואורסצנציית האגרגטים האדומה של JC-1 והגביר את פלואורסצנציית המונומר הירוקה של JC-1, מה שהוביל לעלייה משמעותית ביחס הפלואורסצנציה ירוק-לאדום, המעיד על דפולריזציה של ממברנת המיטוכונדריה. טיפול ב-PF הפחית באופן ניכר את יחס הפלואורסצנציה ירוק-לאדום, בעוד שטיפול משולב עם dorsomorphin הפך חלקית השפעה זו (איור 6E,F). יחד, ממצאים אלו מעידים כי PF מקל על דפולריזציית ממברנת המיטוכונדריה, ייצור מוגבר של ROS ואפופטוזיס בתאי RAW264.7 המושרים על ידי ox-LDL, כאשר סיגנל AMPK עשוי לתרום להשפעות הגנה אלו.
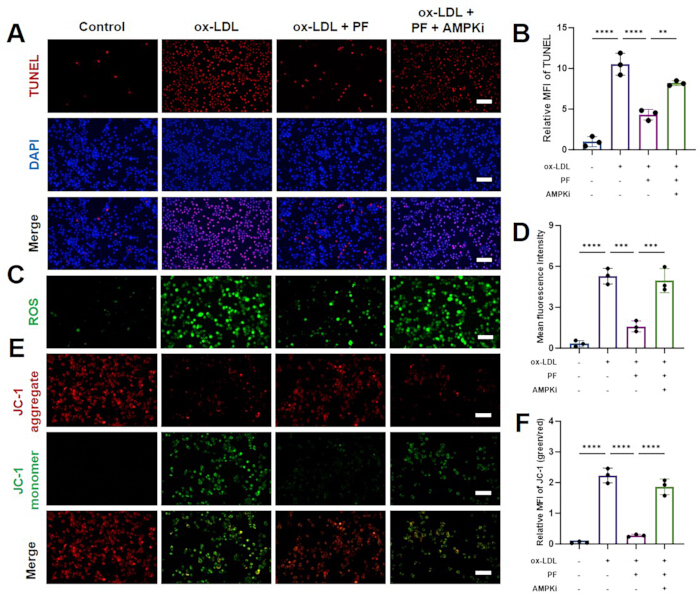
איור 6. עיכוב של AMPK מפחית את ההשפעות של paeoniflorin על אפופטוזיס, עקה חמצונית ואובדן פוטנציאל ממברנה מיטוכונדריאלית המושרים על ידי ליפופרוטאין בצפיפות נמוכה מחומצן. (A) בדיקת TUNEL לאפופטוזיס בתאי RAW264.7 (סרגל קנה מידה = 100 µm) ו (B) ניתוח כמותי תואם (n = 3). (C) צביעת ROS של תאי RAW264.7 (סרגל קנה מידה = 100 μm) ו (D) תוצאות כמותיות (n = 3). (E) צביעת JC-1 של תאי RAW264.7 (סרגל קנה מידה = 100 μm) ו-(F) ניתוח כמותי תואם (n = 3). הנתונים מוצגים כממוצע ± SD של שלושה ניסויים בלתי תלויים. מובהקות סטטיסטית מסומנת כ- *P < 0.05, **P < 0.01, ***P < 0.001, ו- ****P < 0.0001. פסים אופקיים מסמנים את ההשוואות הזוגיות שנבדקו. בלוחות B, D ו-F, ההשוואות שסומנו היו Control לעומת ox-LDL, ox-LDL לעומת ox-LDL + PF, ו-ox-LDL + PF לעומת ox-LDL + PF + AMPKi. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
עיכוב של AMPK מפחית שינויים הקשורים ל-PF ב-ABCA1 ובחלבונים הקשורים לאפופטוזיס
ניתוח Western blot הראה כי שפע חלבון AMPK הכולל נשאר יציב יחסית בין קבוצות הטיפול, בעוד ש-ox-LDL הגביר משמעותית את יחס p-AMPK/AMPK והפחית את ביטוי ABCA1 בהשוואה לקבוצת הביקורת. טיפול ב-PF הגביר עוד יותר את יחס p-AMPK/AMPK והחזיר את ביטוי ABCA1 ביחס לקבוצת ה-ox-LDL. טיפול משולב עם מעכב AMPK, dorsomorphin, החליש משמעותית שינויים אלו הקשורים ל-PF, מה שהוביל ליחס p-AMPK/AMPK נמוך יותר ולביטוי ABCA1 מופחת מאלו שנצפו בקבוצת ה-ox-LDL + PF (איור 7A,B). ניתוח של חלבונים הקשורים לאפופטוזיס הראה כי ox-LDL הגביר משמעותית את ביטוי caspase-3 הכולל והפחית את יחס BCL-2/BAX בהשוואה לקבוצת הביקורת. טיפול ב-PF הפחית משמעותית את ביטוי caspase-3 הכולל והגביר את יחס BCL-2/BAX ביחס לקבוצת ה-ox-LDL. טיפול משולב ב-Dorsomorphin הפך את השינויים הללו הקשורים ל-PF, מה שהוביל להגברה בביטוי caspase-3 הכולל וליחס BCL-2/BAX מופחת בהשוואה לקבוצת ה-ox-LDL + PF (איור 7C,D). ממצאים אלו מעידים כי עיכוב של AMPK מחליש את השפעות ה-PF על ביטוי ABCA1 ועל פרופילי חלבונים הקשורים לאפופטוזיס בתאי RAW264.7 שטופלו ב-ox-LDL.
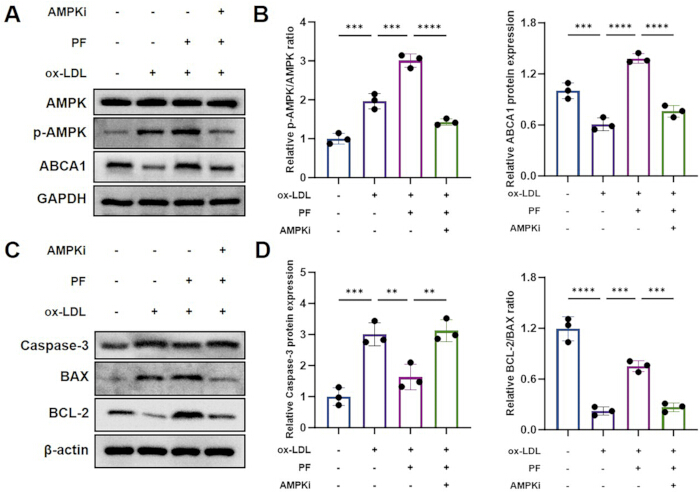
איור 7. עיכוב AMPK מחליש שינויים הקשורים ל-paeoniflorin בזרחון של AMPK, בביטוי ABCA1 ובחלבונים הקשורים לאפופטוזיס. (A) תמויות מייצגות של western blots עבור AMPK, p-AMPK, ו-ATP-binding cassette transporter A1 (ABCA1). GAPDH שימש כביקורת טעינה. (B) כימות של יחס ה-p-AMPK/AMPK ושל ביטוי חלבון ABCA1 יחסי (n = 3). (C) תמויות מייצגות של western blots עבור caspase-3 כולל, BAX, ו-BCL-2. β-Actin שימש כביקורת טעינה. (D) כימות של ביטוי caspase-3 כולל יחסי ושל יחס BCL-2/BAX (n = 3). AMPKi מציין את מעכב ה-AMPK שנקרא dorsomorphin. הנתונים מוצגים כממוצע ± SD של שלושה ניסויים עצמאיים. מובהקות סטטיסטית מסומנת כ-*P < 0.05, **P < 0.01, ***P < 0.001, ו-****P < 0.0001. קווים אופקיים מציינים את ההשוואות הזוגיות שנבדקו. עבור שתי התוצאות הכמותיות בפנלים B ו-D, ההשוואות המצוינות היו Control מול ox-LDL, ox-LDL מול ox-LDL + PF, ו-ox-LDL + PF מול ox-LDL + PF + AMPKi. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
השתקה של AMPK מחלישה את העליות בבעוד LXRα גרעיני הקשורות ל-PF ואת עיכוב אותות NF-κB בתאי RAW264.7 שעובדו עם ox-LDL
כדי לקבוע באופן מעמיק יותר את מעורבותו של AMPK בהשפעות של PF, ביצעו השתקה של ביטוי AMPK באמצעות siRNA. רמות ה-mRNA והחלבון של AMPK הופחתו באופן משמעותי בתאים שעברו טרנספקציה של si-AMPK בהשוואה לקבוצת ה-si-NC, דבר המאשר השתקה יעילה (איור 8A,B). PF הגביר את ביטוי LXRα גרעיני והפחית את יחס ה-p-p65/p65 הגרעיני בתאים שעובדו עם ox-LDL, בעוד שהשתקת AMPK החלישה באופן משמעותי השפעות אלו (איור 8C,D). באופן עקבי, ox-LDL הגביר באופן ניכר את יחס ה-p-p65/p65 של התא כולו, אשר דוכא על ידי PF אך הוחזר חלקית בעקבות השתקת AMPK (איור 8E). PF גם הפך את הירידה בביטוי IκB-α ואת העלייה בביטוי p-IκB-α שנגרמו על ידי ox-LDL, בעוד שהשפעות אלו הוחלשו על ידי si-AMPK (איור 8F). יחד, תוצאות אלו מרמזות כי AMPK תורם לעלייה במישור הגרעיני של LXRα ולעיכוב השליחה של NF-κB המתווכים על ידי PF.
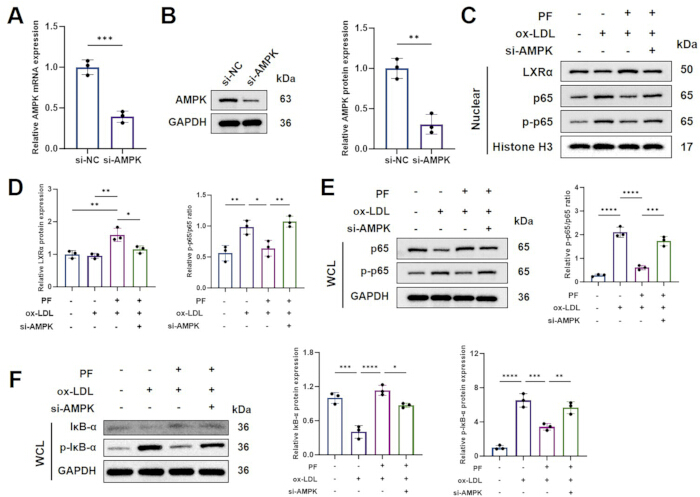
איור 8השתקת AMPK מפחיתה את העלייה ב-LXR גרעיני המתווכת על ידי paeoniflorinα שפע ועקיבה של NF-κסיגנלינג B. (Aביטוי יחסי של mRNA של AMPK לאחר טרנספקציה עם siRNA של ביקורת שלילית או siRNA המכוון ל-AMPK (נּ = 3). (B) תמונת Western blot מייצגת וכימות של ביטוי חלבון AMPK לאחר טרנספקציית siRNA (נּ = 3). GAPDH שימש כביקרת טעינה. (פחמן) תמונות מייצגות של Western blot עבור LXR גרעיניα, p65, ו-p-p65. היסטון H3 שימש כביקורת טעינה גרעינית. (ד'כימות של LXR גרעיני יחסיα ביטוי ויחס ה-p-p65/p65 הגרעיני (נ" = 3). (ה_) תמונות מייצגות של western blots של p65 ו-p-p65 מתאי שלמים, וכימות של יחס ה-p-p65/p65 (נא ספק את הטקסט באנגלית שברצונך לתרגם. = 3). GAPDH שימש כביקרת טעינה (loading control). (F) תמונות מייצגות של western blots של ליזיס תאים שלמים IκB-α ו-p-IκB-α וניתוחים כמותיים תואמים (נ" = 3). GAPDH שימש כבקרת טעינה (loading control). הנתונים מוצגים כממוצע ± סטיית תקן של שלושה ניסויים בלתי תלויים. מובהקות סטטיסטית מסומנת ב-*P < 0.05, **P < 0.01, *** P < 0.001, ו-**** P < 0.0001. פסים אופקיים מציינים את ההשוואות הזוגיות שנבדקו. בלוחות A ו-B, si-NC הושווה ל-si-AMPK. עבור LXR גרעיניα בביטוי בלוח D, ההשוואות המצוינות היו ביקורת לעומת ox-LDL + PF, ox-LDL לעומת ox-LDL + PF, ו-ox-LDL + PF לעומת ox-LDL + PF + si-AMPK. עבור יחס ה-p-p65/p65 הגרעיני בלוח D והניתוחים הכמותיים בלוחות E ו-F, ההשוואות המצוינות היו ביקורת לעומת ox-LDL, ox-LDL לעומת ox-LDL + PF, ו-ox-LDL + PF לעומת ox-LDL + PF + si-AMPK. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
השתקה של AMPK מחלישה את הפרשת הכולסטרול המתווכת על ידי PF ואת ויסות הפנוטיפ של המקרופאגים
כדי לקבוע האם עיכוב פרמקולוגי של NF-κB גרם לשינויים תפקודיים דומים לאלו הקשורים ל-PF, נבחנו ביטוי ABCA1, הפרשת כולסטרול (cholesterol efflux), הצטברות ליפידים וסממנים פנוטיפיים של מקרופאגים. PF שיחזר את ביטוי ABCA1 והגביר את הפרשת כולסטרול המתווכת על ידי ApoA-I ו-HDL בתאים שטופלו ב-ox-LDL, בעוד שהשתקת AMPK החלישה משמעותית השפעות אלו (Figure 9A–C). באופן עקבי, PF הפחית את הצטברות הליפידים התוך-תאית, בעוד ש-si-AMPK הפך חלקית אפקט זה (Figure 9D,E). טיפול ב-BAY 11-7082 גרם לשינויים דומים לאלו שגרם PF, כולל הגברת ביטוי ABCA1 והפרשת כולסטרול, והפחתה של הצטברות ליפידים תוך-תאית (Figure 9A–E). ניתוח בציטומטריה זרימה בוצע באמצעות אסטרטגיית הסינון (gating strategy) המוצגת ב-Figure 9F. ox-LDL הגביר באופן ניכר את שיעור המקרופאגים החיוביים ל-CD86, בעוד ש-PF הפחית אוכלוסייה זו; השפעה זו הוחלשה על ידי השתקת AMPK (Figure 9G,H). לעומת זאת, PF הגביר את שיעור המקרופאגים החיוביים ל-CD206, דבר שהופך חלקית על ידי si-AMPK (Figure 9I,J). BAY 11-7082 הפחית באופן דומה את שיעור המקרופאגים החיוביים ל-CD86 והגביר את שיעור המקרופאגים החיוביים ל-CD206 (Figure 9G–J). ממצאים אלו מעידים על כך ש-AMPK תורם להשפעות של PF על הומיאוסטזיס של כולסטרול ועל מודולציה פנוטיפית של מקרופאגים, פוטנציאלית באמצעות ויסות של סיגנל NF-κB.
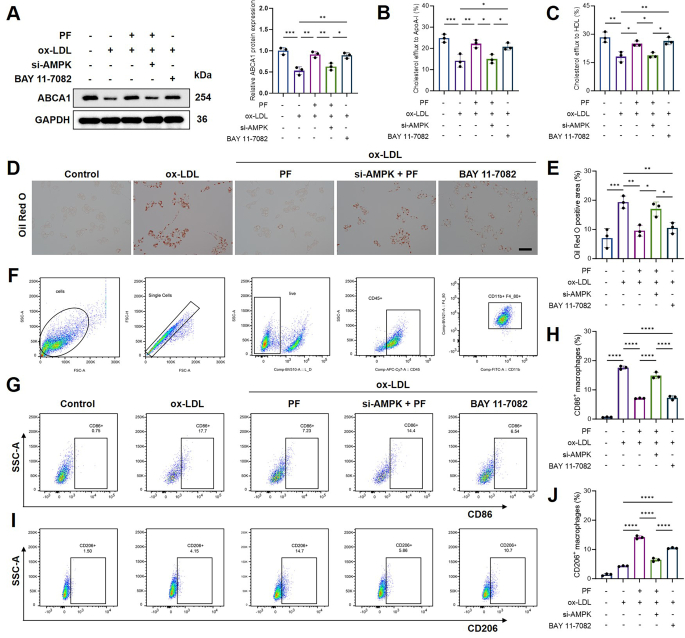
איור 9. השתקת AMPK ועכבה של NF-κB מווסתות את הפרשת הכולסטרול, הצטברות הליפידים ופנוטיפ המקרופאג הקשורה ל-paeoniflorin. (A) Western blot מייצג וכמותיות של ביטוי ABCA1 (n = 3). GAPDH שימש כביקרת העמסה (loading control). (B) הפרשת כולסטרול המתווכת על ידי Apolipoprotein A-I (n = 3). (C) הפרשת כולסטרול המתווכת על ידי ליפופרוטאינים בצפיפות גבוהה (HDL) (n = 3). (D) תמונות מייצגות של צביעת Oil Red O. סרגל קנה מידה = 100 µm. (E) כימות של השטח החיובי ל-Oil Red O (n = 3). (F) אסטרטגיית gating רצופית של flow-cytometry ששימשה לזיהוי תאים, singlets, תאים חיוביים ל-CD45 בני שם, ומקרופאגים חיוביים ל-CD11b/F4/80. (G) גרפים מייצגים של flow-cytometry של מקרופאגים חיוביים ל-CD86. (H) כימות של מקרופאגים חיוביים ל-CD86 (n = 3). (I) גרפים מייצגים של flow-cytometry של מקרופאגים חיוביים ל-CD206. (J) כימות של מקרופאגים חיוביים ל-CD206 (n = 3). BAY 11-7082 שימש כמעכב NF-κB. הנתונים מוצגים כממוצע ± SD של שלושה ניסויים בלתי תלויים. מובהקות סטטיסטית מסומנת כ-*P < 0.05, **P < 0.01, ***P < 0.001, ו-****P < 0.0001. קווים אופקיים מזהים את ההשוואות הזוגיות שנבדקו. בפנלים A–C, E ו-H, ההשוואות המצוינות היו Control לעומת ox-LDL, ox-LDL לעומת ox-LDL + PF, ox-LDL + PF לעומת ox-LDL + PF + si-AMPK, ox-LDL + PF + si-AMPK לעומת ox-LDL + BAY 11-7082, ו-ox-LDL לעומת ox-LDL + BAY 11-7082. בפנל J, ההשוואות המצוינות היו ox-LDL לעומת ox-LDL + PF, ox-LDL + PF לעומת ox-LDL + PF + si-AMPK, ox-LDL + PF + si-AMPK לעומת ox-LDL + BAY 11-7082, ו-ox-LDL לעומת ox-LDL + BAY 11-7082. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
זמינות נתונים:
מאגר הנתונים של המערך המיקרוסקופי (microarray) הזמין לציבור שנותח במחקר זה, זמין דרך מאגר ה-Gene Expression Omnibus (GEO) של המרכז הלאומי למידע בביוטכנולוגיה (NCBI) תחת מספר גישה GSE100927כל הנתונים הגולמיים והמעובדים שהופקו במחקר זה סופקו עם מאמר זה כקבצים משלימים, ויהיו זמינים לציבור ללא הגבלה עם הפרסום. נתונים משלימים 1 מכיל את הנתונים המספריים המקוריים העומדים בבסיס איורים 4–9 והניתוחים הסטטיסטיים המתאימים. נתוני השלמה 2 מכיל את תמונות ה-western blot וה-CETSA המקוריות ללא חיתוך. נתונים משלימים 3 מכיל את תמונות המיקרוסקופיה המקוריות ברזולוציה מלאה ששימשו לניתוח כמותי. נתונים משלימים 4 מכיל את קובצי ה-FCS הגולמיים של ציטומטריית זרימה, קובצי בקרה, מידע על פיצוי (compensation), רשומות סינון (gating) ומרחב העבודה של FlowJo. נתונים משלימים 5 מכיל את סקריפטי ה-R המלאים ששימשו עבור ניתוחי הפארמקולוגיה של הרשת והטרנסקריפטומיקה, כולל עיבוד מקדמי של נתונים, ניתוח ביטוי דיפרנציאלי, ויזואליזציה, אינטגרציה של מטרות וניתוח העשרה.
נתונים משלימים 1. נתוני מקור מספריים וניתוחים סטטיסטיים. חוברת עבודה ב-Excel המכילה את הנתונים המספריים המקוריים ואת הניתוחים הסטטיסטיים התואמים העומדים בבסיס איורים 4–9, מאורגנים לפי איור בגיליונות נפרדים. חוברת העבודה כוללת את הנתונים הכמותיים המשמשים ליצירת גרפים ולהשוואות סטטיסטיות.אנא לחצו כאן להורדת הקובץ.
נתונים משלימים 2. תמונות מקוריות ולא חתוכות של western blot ו-CETSA. קובץ PDF המכיל את התמונות המקוריות והלא חתוכות עבור כל ניסויי ה-western blot וה-CETSA המוצגים במאמר, מאורגנות לפי איור ופאנל כדי לתעד את נתוני המקור ששימשו להכנת התמונות ולכימותן.אנא לחצו כאן כדי להוריד קובץ זה.
נתונים משלימים 3. תמונות מיקרוסקופיה מקוריות ברזולוציה מלאה. קובץ PDF המכיל את תמונות המיקרוסקופיה המקוריות ברזולוציה מלאה ששימשו להצגה איכותנית ולניתוחים כמותיים, כולל תמונות מייצגות התואמות לאיורים המוצגים במאמר.אנא לחצו כאן כדי להוריד קובץ זה.
נתוני השלמה 4. נתוני ציטומטריה זרימה גולמיים. קובצי FCS גולמיים, קובצי בקרה, מידע על פיצוי (compensation), רשומות הגדרה של שערים (gating) וסביבת העבודה של FlowJo ששימשה לניתוחי הציטומטריה זרימה. מערך הנתונים המלא זמין באמצעות Microsoft OneDrive: https://1drv.ms/f/c/8d1d81159583ae0f/IgA367Hi90R5CfjDR5uwoGARiUYsefUFv0_OKSUWT5jGY?e=caEpxo. סיכום בפורמט PDF של ניתוחי הציטומטריה זרימה מסופק גם הוא כגיבוי.אנא לחצו כאן כדי להוריד קובץ זה.
נתונים משלימים 5. סקריפטי R לניתוחי פרמקולוגיה רשתית וטרנסקריפטומיקה. שני קבצי סקריפט ב-R המכילים את תהליך העבודה החישובי המלא ששימש לניתוחים של פרמקולוגיה רשתית וטרנסקריפטומיקה. הסקריפטים כוללים טעינה והתקנה של חבילות, עיבוד מקדים של נתונים, ניתוח ביטוי דיפרנציאלי, אינטגרציה של מטרות, ניתוחי העשרה פונקציונלית, ויזואליזציה של נתונים ויצירת התוצאות האנליטיות המדווחות.נא ללחוץ כאן להורדת הקובץ.
דיון
היווצרות תאי קצף של מקרופגים מונעת לא רק על ידי ספיקה מופרזת של ליפופרוטאינים שעברו שינוי, אלא גם על ידי פגיעה בייצוא כולסטרול והפעלה דלקתית מתמשכת. המחקר הנוכחי מקשר בין תהליכים אלו באמצעות זיהוי שיוטופי של אותות הקשורים ל-AMPK כמנגנון פוטנציאלי שדרכו PF נקשרה לשינויים מקבילים בטיפול בליפידים, בתגובות דלקתית ובסטרס תאי, שחלקם הופחתו על ידי עיכוב או השתקה של AMPK. ההשפעות העקביות באופן רחב של PF ושל HQT מעידות עוד על כך ש-PF הוא מרכיב רלוונטי ביולוגית של הפורמולה. עם זאת, מכיוון ש-HQT מכילה מספר תרכובות פעילות שעשויות לפעול באופן אדיטיבי או סינרגי, ממצאים אלה תומכים ב-PF כמרכיב מייצג ולא מבססים אותו כחומר הפעיל העיקרי של HQT.
AMPK פועל כנקודת בקרה מטבולית שיכולה לרסן את ההפעלה הדלקתית של מקרופאגים. מחקרים קודמים הראו כי הפעלת AMPK מגבילה את דה-גרדציה של IκB, מפחיתה את ייצור המתווכים הדלקתיים, ומעודדת פנוטיפ של מקרופאגים פחות דלקתי. כמו כן, דווח כי הפעלת AMPK מדכאת את ספיגת ox-LDL באמצעות ויסות של נתיב ה-PP2A/NF-κB/LOX-126,27. הממצאים הפארמקולוגיים והגנטיים הנוכחיים מרחיבים תצפיות אלו בכך שהם מראים כי AMPK היה נחוץ למספר השפעות של PF על ייצוא כולסטרול ואיתות דלקתי. לפיכך, ייתכן ש-AMPK אינו מתווך פשוט תגובה מבודדת ל-PF, אלא עשוי לשלב את פעולותיו המטבוליות והאימונו-מודולטוריות במקרופאגים. הקשר בין AMPK, LXRα ו-ABCA1 מספק הסבר סביר לשיפור שנצפה בייצוא הכולסטרול. LXRα הוא ווסת ששעתוק מרכזי של ABCA1, והפעלת נתיב ה-LXRα–ABCA1 מקדמת את הסרת כולסטרול עודף ממקרופאגים28. מחקרים במקרופאגים אנושיים הראו עוד כי AMPK יכול לווסת את LXRα ואת נשאי הכולסטרול במורד הנתיב, בעוד שייצוא כולסטרול המעורר על ידי LXR תלוי באופן חזק ב-ABCA129,30. במחקר הנוכחי, השתקC של AMPK החליש את השפעות ה-PF על שפע ה-LXRα הגרעיני, ביטוי ABCA1, וייצוא כולסטרול המתווך על ידי ApoA-I ו-HDL. תצפיות אלו עקביות עם מודל שבו ויסות הקשור ל-LXRα/ABCA1 מתרחש במורד ה-AMPK. עם זאת, מכיוון ש-ABCA1 לא הושתק באופן ישיר, הנתונים תומכים ב-רצף סיבתי של AMPK–LXRα–ABCA1, אך אינם מבססים אותו באופן מלא.
הממצאים מרמזים גם על בקרה הדדית בין הומיאוסטזיס של כולסטרול לבין סיגנלינג דלקתי. דלקת יכולה לדכא את הביטוי של ABCA1 ואת הפרשת הכולסטרול, ובכך להקל על שימור ליפידים במקרופאגים. לעומת זאת, הוכח כי עיכוב של NF-κB מחזיר את הביטוי של ABCA1 ואת ייצוא הכולסטרול במקרופאגים דלקתיים31. ההשפעות הדומות שגרמו PF ו-BAY 11-7082 במחקר הנוכחי תומכות בשילוב פעולות זה: דיכוי של סיגנלינג NF-κB לווה בעלייה בביטוי ABCA1, הגברה של הפרשת כולסטרול והפחתה של הצטברות ליפידים. השתקק של AMPK החליש הן את ההשפעות המטבוליות והן את ההשפעות הדלקתיות של PF, מה שמצביע על כך ש-AMPK עשוי לתאם את שני התהליכים השזורים הללו במקום לווסת אותם באופן עצמאי. עבודות קודמות הוכיחו כי PF יכול לדכא הפעלה פרו-דלקתית של מקרופאגים על ידי עיכוב סיגנלינג של NF-κB. דווח גם כי טיפולים המכילים PF מגבירים ייצוא כולסטרול הקשור ל-ABCA1/ABCG1 ומפחיתים את היווצרות תאי הקצף32,33. המחקר הנוכחי מספק הקשר מכניסטי נוסף על ידי קישור תכונות אלו של ויסות ליפידים ואנטי-דלקתיות, שתוארו בעבר, ל-AMPK. יתרה מכך, השוואה לתכשיר HQT המלא מבדילה את העבודה הנוכחית ממחקרים שבחנו את PF באופן מבודד, ומצביעה על כך ש-PF ו-HQT הפיקו השפעות חופפות חלקית במבחני המקרופאגים הנבחרים.
מנגנונים הקשורים ל-AMPK עשויים לתרום להשפעות של PF על עקה חמצונית ועל שלמות המיטוכונדריה. טעינת ליפידים המושרית על ידי Ox-LDL מפעילה עקה אנרגטית וחמצונית משמעותית על מקרופאגים, דבר שעלול לעודד דפולריזציה מיטוכונדריאלית ואפופטוזיס. שחזור סימולטני של רמות ATP, פוטנציאל ממברנת המיטוכונדריה ויכולת נוגדת חמצון שנצפתה לאחר טיפול ב-PF עולה, לפיכך, עם הגנה מטבולית מתואמת ולא עם מספר השפעות שאינן קשורות זו לזו. מחקר קודם על מקרופאגים מצא באופן דומה כי PF הפחית הצטברות של ROS, שימר את פוטנציאל ממברנת המיטוכונדריה ושינה את הפנוטיפ הדלקתי באמצעות ויסות של בקרת איכות מיטוכונדריאלית34. ממצאים אלו מרמזים כי שימור התפקוד המיטוכונדריאלי עשוי לתרום לפעולות האנטי-דלקתיות והאנטי-אפופטוטיות של PF, אם כי האפקטורים הספציפיים במורד הזרם של AMPK טרם זוהו. ממצאי ה-CETSA מספקים קו ראיות נוסף הקושר בין PF ל-AMPK. שיטת CETSA פותחה להערכת מעורבות תרופה-מטרה תוך-תאית על ידי זיהוי שינויים ביציבות התרמית של חלבונים הקשורים לליגנד35. תוצאות ה-CETSA המבוססות על ליזאט תואמות לייצוב של AMPK או של קומפלקס חלבונים המכיל AMPK בליזאטים של תאים בעקבות PF. עם זאת, ייצוב תרמי לבדו אינו יכול להבחין בין קישור ישיר של ליגנד לבין ייצוב עקיף הנובע משינוי בפוספורילציה, אינטראקציות בין חלבונים או מההקשר התאי. קישור ישיר בין PF ל-AMPK יחייב אישור באמצעות חלבון מנוקה או גישות ביופיזיות אחרות.
PF הפחית גם את שיעור התאים החיוביים ל-CD86 והגדיל את שיעור התאים החיוביים ל-CD206, ושינויים אלו נחלשו על ידי השתקת AMPK. ממצאים אלו עולים בקנה אחד עם ראיות קודמות לכך ש-PF יכול לשנות את הפנוטיפ הדלקתי של מקרופאגים32,34. עם זאת, אקטיבציה של מקרופאגים קיימת לאורך ספקטרום רב-ממדי ולא כשני מצבי M1 ו-M2 קבועים36. לכן, יש לפרש את CD86 ו-CD206 כסמנים פנוטיפיים הקשורים לתוכניות דלקתיות ושיקומיות, בהתאמה, ולא כראיה חלוטה להמרה מלאה מ-M1 ל-M2. סמנים תעתוקיים, הפרשתיים ותפקודיים נוספים יהיו נחוצים כדי לאפיין את פנוטיפ המקרופאג באופן מקיף יותר. יש להכיר במספר מגבלות. ראשית, הניסויים הוגבלו לתאי RAW264.7, והממצאים דורשים תיקוף במקרופאגים ראשוניים או אנושיים ובמודלים של AS in vivo. שנית, למרות שריכוז ה-PF שנבחר לא היה ציטוטוקסי והגביר את הפוספורילציה של AMPK, לא נקבע קשר מלא של תגובה לריכוז עבור התוצאות התפקודיות העיקריות. שלישית, לא בוצעו ניסויי loss-of-function והצלה (rescue) ספציפיים ל-ABCA1, ולכן יש לראות במסלול AMPK–LXRα–ABCA1 המוצע מודל מכניסטי נתמך ולא רצף ליניארי מבוסס לחלוטין. רביעית, PF ו-HQT הושוו באמצעות יחידות ריכוז שונות, ותוכן ה-PF והעקביות הפיטוכימית של תכשיר ה-HQT לא הוערכו כמותית. לבסוף, תוצאות ה-CETSA מצביעות על מעורבות פוטנציאלית של מטרה תוך-תאית אך אינן מדגימות באופן עצמאי קישור מולקולרי ישיר.
לסיכום, הממצאים הנוכחיים מצביעים על כך ש-PF מקל על תפקוד לקוי של מקרופאגים המושרה על ידי ox-LDL באמצעות תיאום של ייצוא כולסטרול, איתות דלקתי, מטבוליזם אנרגטי והומאוסטזיס מיטוכונדריאלי. עיכוב פרמקולוגי והשתקת AMPK באמצעות siRNA החלישו מספר אפקטים מגינים המתווכים על ידי PF, ולוו בשינויים בשפע של LXRα גרעיני, בביטוי של ABCA1, בהזרמת כולסטרול ובאיתות של NF-κB. PF הפגין אפקטים מגינים על מקרופאגים שחפפו למספר מהאפקטים שנצפו לאחר טיפול ב-HQT תחת התנאים שנבדקו. תרומתו של PF לפעילות הכוללת של HQT נותרה לא פתורה.
גילויים
ניגוד עניינים:
המחברים מצהירים כי אין להם ניגודי אינטרסים.
תודות
אין תוכן לתרגום.
תרומות המחבר:
יונג'י זנג: תכנון, מתודולוגיה, חקר, ניתוח פורמלי, ארגון נתונים, תצוגה ויזואלית וכתיבה – טיוטה מקורית.
הואיינג וואנג: מתודולוגיה, חקירה, ניתוח פורמלי, אימות, ארגון נתונים, תיאור גרפי, וכתיבה – טיוטה מקורית.
דונג ליו: מתודולוגיה, חקירה ואימות.
יונלו ג'יאנג: חקירה, ארגון נתונים, וניתוח רשמי.
פנגצ'נג רן: חקירה, ניתוח פורמלי, ויזואליזציה.
וֶנְשִׂין סוֹנְג: משאבים, אימות וכתיבה – סקירה & עריכה.
גואופנג הואנג: תכנון, מתודולוגיה, ערכת שיקוף, ניהול פרויקט, קיבוץ מימון וכתיבה – סקירה & עריכה.
שיאוג'יאו האה: קביעת מושגים, משאבים, עיקוב, ניהול פרויקט, קיבולת מימון וכתיבה – סקירה & עריכה.
יונג'יה זנג והואהינג וואנג תרמו תרומה שווה למחקר זה ומשתתפות בתואר הראשון במחברות. גוופנג האואנג וסיאואוג'יאו הא הן מחברות תואמות לתקשרות. כל המחברות סקרו ואישרו את הטיוטה הסופית של המאמר.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מערכת דימות כימילומניסנציה | Thermo Fisher Scientific | מערכת הדמיה iBright | |
| ציטומטר זרימה | BD Biosciences | FACSCanto II | |
| מיקרוסקופ פלואורסצנציה הפוך | Olympus | IX73 | |
| קורא מיקרופלטה | PerkinElmer | VICTOR X3 | |
| מערכת PCR בזמן אמת | Bio-Rad | CFX Opus 96 | |
| ספקטרופוטומטר | Thermo Fisher Scientific | NanoDrop 8000 |
מקורות
- Zysman M et al. Risk of cardiovascular events according to the severity of an exacerbation of chronic obstructive pulmonary disease. Eur J Prev Cardiol. 2025;32(15):1436-1444. doi:10.1093/eurjpc/zwaf086.
- Zvintzou E et al. Context-dependent effects of apolipoprotein A2 on lipid metabolism and atherogenesis. FASEB J. 2026;40(12):e72032. doi:10.1096/fj.202600765R.
- Zuriaga MA et al. Colchicine prevents accelerated atherosclerosis in TET2-mutant clonal haematopoiesis. Eur Heart J. 2024;45(43):4601-4615. doi:10.1093/eurheartj/ehae546.
- Zhang Y et al. Effects and mechanisms of Zhizi Chuanxiong herb pair against atherosclerosis: an integration of network pharmacology, molecular docking, and experimental validation. Chin Med. 2024;19(1):8. doi:10.1186/s13020-023-00874-x.
- Zysset D et al. TREM-1 links dyslipidemia to inflammation and lipid deposition in atherosclerosis. Nat Commun. 2016;7:13151. doi:10.1038/ncomms13151.
- Zou Z et al. Recent advances in nanozymes for the treatment of atherosclerosis. Int J Nanomedicine. 2025;20:9447-9472. doi:10.2147/IJN.S540010.
- Zoubdane N et al. High tyrosol and hydroxytyrosol intake reduces arterial inflammation and atherosclerotic lesion microcalcification in healthy older populations. Antioxidants (Basel). 2024;13(1):130. doi:10.3390/antiox13010130.
- Zhong T et al. Adaptation of endothelial cells to shear stress under atheroprone conditions by modulating internalization of vascular endothelial cadherin and vinculin. Ann Transl Med. 2020;8(21):1423. doi:10.21037/atm-20-3426.
- Zhuo S et al. Inflammatory corpuscle AIM2 facilitates macrophage foam cell formation by inhibiting cholesterol efflux protein ABCA1. Sci Rep. 2024;14(1):10782. doi:10.1038/s41598-024-61495-4.
- Zheng H et al. Lp-PLA2 silencing protects against ox-LDL-induced oxidative stress and cell apoptosis via Akt/mTOR signaling pathway in human THP-1 macrophages. Biochem Biophys Res Commun. 2016;477(4):1017-1023. doi:10.1016/j.bbrc.2016.07.022.
- Zhou Y et al. Asperlin inhibits LPS-evoked foam cell formation and prevents atherosclerosis in ApoE(-/-) mice. Mar Drugs. 2017;15(11):358. doi:10.3390/md15110358.
- Zhong Y, Liu C, Feng J, Li JF, Fan ZC. Curcumin affects ox-LDL-induced IL-6, TNF-α, MCP-1 secretion and cholesterol efflux in THP-1 cells by suppressing the TLR4/NF-κB/miR33a signaling pathway. Exp Ther Med. 2020;20(3):1856-1870. doi:10.3892/etm.2020.8915.
- Zhu C et al. TRIM64 promotes ox-LDL-induced foam cell formation, pyroptosis, and inflammation in THP-1-derived macrophages by activating a feedback loop with NF-κB via IκBα ubiquitination. Cell Biol Toxicol. 2023;39(3):607-620. doi:10.1007/s10565-022-09768-4.
- Zhang G et al. OxLDL/β2GPI/anti-β2GPI Ab complex induces inflammatory activation via the TLR4/NF-κB pathway in HUVECs. Mol Med Rep. 2021;23(2):148. doi:10.3892/mmr.2020.11787.
- Zu YX et al. Jiang Gui Fang activated interscapular brown adipose tissue and induced epididymal white adipose tissue browning through the PPARγ/SIRT1-PGC1α pathway. J Ethnopharmacol. 2020;248:112271. doi:10.1016/j.jep.2019.112271.
- Zu X et al. Antidepressant-like effect of Bacopaside I in mice exposed to chronic unpredictable mild stress by modulating the hypothalamic-pituitary-adrenal axis function and activating BDNF signaling pathway. Neurochem Res. 2017;42(11):3233-3244. doi:10.1007/s11064-017-2360-3.
- Zong K et al. Explorating the mechanism of Huangqin Tang against skin lipid accumulation through network pharmacology and experimental validation. J Ethnopharmacol. 2023;313:116581. doi:10.1016/j.jep.2023.116581.
- Zou Y et al. Huangqin Tang ameliorates dextran sodium sulphate-induced colitis by regulating intestinal epithelial cell homeostasis, inflammation and immune response. Sci Rep. 2016;6:39299. doi:10.1038/srep39299.
- Zou Y et al. Huangqin Tang ameliorates TNBS-induced colitis by regulating effector and regulatory CD4(+) T cells. Biomed Res Int. 2015;2015:102021. doi:10.1155/2015/102021.
- Wang D et al. Huangqin tang alleviates colitis-associated colorectal cancer via amino acid homeostasis and PI3K/AKT/mTOR pathway modulation. J Ethnopharmacol. 2024;334:118597. doi:10.1016/j.jep.2024.118597.
- Zhu X, Zhou Y, Cai W, Sun H, Qiu L. Salusin-β mediates high glucose-induced endothelial injury via disruption of AMPK signaling pathway. Biochem Biophys Res Commun. 2017;491(2):515-521. doi:10.1016/j.bbrc.2017.06.126.
- Zhu J, Chen H, Guo J, Zha C, Lu D. Sodium tanshinone IIA sulfonate inhibits vascular endothelial cell pyroptosis via the AMPK signaling pathway in atherosclerosis. J Inflamm Res. 2022;15:6293-6306. doi:10.2147/JIR.S386470.
- Kim J et al. Inhibition of Toll-like receptors alters macrophage cholesterol efflux and foam cell formation. Int J Mol Sci. 2024;25(12):6808. doi:10.3390/ijms25126808.
- Zuo J, Guo S, Qin X. Bisdemethoxycurcumin suppresses the progression of atherosclerosis and VSMC-derived foam cell formation by promoting lipophagy. Naunyn Schmiedebergs Arch Pharmacol. 2023;396(12):3659-3670. doi:10.1007/s00210-023-02558-7.
- Zong P et al. TRPM2 deficiency in mice protects against atherosclerosis by inhibiting TRPM2-CD36 inflammatory axis in macrophages. Nat Cardiovasc Res. 2022;1(4):344-360. doi:10.1038/s44161-022-00027-7.
- Sag D, Carling D, Stout RD, Suttles J. Adenosine 5'-monophosphate-activated protein kinase promotes macrophage polarization to an anti-inflammatory functional phenotype. J Immunol. 2008;181(12):8633-8641. doi:10.4049/jimmunol.181.12.8633.
- Chen B, Li J, Zhu H. AMP-activated protein kinase attenuates oxLDL uptake in macrophages through PP2A/NF-κB/LOX-1 pathway. Vascul Pharmacol. 2016;85:1-10. doi:10.1016/j.vph.2015.08.012.
- Chawla A et al. A PPARγ-LXR-ABCA1 pathway in macrophages is involved in cholesterol efflux and atherogenesis. Mol Cell. 2001;7(1):161-171. doi:10.1016/S1097-2765(01)00164-2.
- Saenz J et al. Grapefruit flavonoid naringenin regulates the expression of LXRα in THP-1 macrophages by modulating AMP-activated protein kinase. Mol Pharm. 2018;15(5):1735-1745. doi:10.1021/acs.molpharmaceut.7b00797.
- Larrede S et al. Stimulation of cholesterol efflux by LXR agonists in cholesterol-loaded human macrophages is ABCA1-dependent but ABCG1-independent. Arterioscler Thromb Vasc Biol. 2009;29(11):1930-1936. doi:10.1161/ATVBAHA.109.194548.
- Zhao GJ et al. Antagonism of betulinic acid on LPS-mediated inhibition of ABCA1 and cholesterol efflux through inhibiting nuclear factor-kappaB signaling pathway and miR-33 expression. PLoS One. 2013;8(9):e74782. doi:10.1371/journal.pone.0074782.
- Zhai T et al. Unique immunomodulatory effect of paeoniflorin on type I and II macrophages activities. J Pharmacol Sci. 2016;130(3):143-150. doi:10.1016/j.jphs.2015.12.007.
- Mei J et al. Tetramethylpyrazine and Paeoniflorin Synergistically Attenuate Cholesterol Efflux in Macrophage Cells via Enhancing ABCA1 and ABCG1 Expression. Evid Based Complement Alternat Med. 2022;2022:4304790. doi:10.1155/2022/4304790.
- Cao Y et al. Paeoniflorin suppresses kidney inflammation by regulating macrophage polarization via KLF4-mediated mitophagy. Phytomedicine. 2023;116:154901. doi:10.1016/j.phymed.2023.154901.
- Martinez Molina D et al. Monitoring drug target engagement in cells and tissues using the cellular thermal shift assay. Science. 2013;341(6141):84-87. doi:10.1126/science.1233606.
- Xue J et al. Transcriptome-based network analysis reveals a spectrum model of human macrophage activation. Immunity. 2014;40(2):274-288. doi:10.1016/j.immuni.2014.01.006.