זיהום בנמטודות בצורת כליה (Reniform nematode) מפחית משמעותית את יבול הכותנה ואת איכות הסיבים. ליגנין מחזק את דפנות התאים של הצמח ותורם להגנות מבניות מפני מזיקים, אך תפקידו בעמידות של כותנה לנמטודות בצורת כליה לא נבחן עד כה. מחקר זה מתאר תהליך עבודה היסטוכימי להדמיית שקיעת ליגנין בשורשים של גנוטיפים של כותנה (*Gossypium arboreum*) העמידים והרגישים לנמטודות בצורת כליה, תוך שימוש בצביעת פלורוגלוצינול.
מאמר מחקר
ניתוח היסטוכימי להבדלי ליגנין בין גנוטיפים של כותנה העמידים והרגישים לנמטודה בצורת כליה (Reniform Nematode)
במאמר זה
סיכום
תקציר
נמטודות בצורת כליה (Rotylenchulus reniformis) מהוות מגבלה עיקרית על ייצור הכותנה, במיוחד בדרום ארצות הברית. נמטודת הכליה היא המזיק השני בחשיבותו מבין יותר מ-400 מיני נמטודות. נמטודות אלו מהוות איום על ביטחון המזון העולמי. החששות הגוברים בנושאי בריאות הסביבה והאדם ועלות הנמטיצידים הגבירו את העניין בחומר גנטי של כותנה העמיד למזיקים. דופן התא של הצמח, ובמיוחד הליגנין, היא ביו-פולימר קריטי המעורב בהתנגדות לעקה ביוטית. מכיוון שנמטודות מדביקות רקמות שורש, רכיבי דופן התא כגון ליגנין עשויים לתרום להגנה; עם זאת, מחסומים המתווכים על ידי ליגנין בשורשי כותנה אינם מאופיינים היטב. מחקר זה השתמש בפרוטוקול צביעה היסטוכימי סטנדרטי של phloroglucinol-HCl כדי להדמיאן הבדלים בהשקעת ליגנין בגינוטיפי כותנה (Gossypium arboreum) עמידים (A2-514, A2-995) ורגישים לנמטודת הכליה בשלב העלה האמיתי בתנאים שאינם נגועים. צבע זה נקשר באופן ספציפי להידרוקסי צינמיל-אלדהיד כגון קוניפריל-אלדהיד וסינאפיל-אלדהיד של ליגנין בנוכחות חומצה, ומייצר גוון סגול-ורוד להדמיית הליגנין. תבניות צביעה מובחנות של ליגנין נצפו בין הגינוטיפים העמידים לרגישים, מה שתומך בתפקיד פוטנציאלי של הגנות מבניות הקשורות לליגנין.
מבוא
כותנה מגודלת ברחבי העולם עבור הסיבים שלה והיא פגיעה מאוד למזיקים המועברים בקרקע, במיוחד לנמטודות, שעלולות לגרום להפסדי יבול משמעותיים. מבין אלו, הנמטודה הרניפורמית (Rotylenchulus reniformis) היא פתוגן מרכזי המשפיע על כותנה וגידולים אחרים ברחבי העולם, עם השפעות בולטות בדרום ארצות הברית, שם נגיעות עלולות להפחית את היבולים ביותר מ-50%1. אורגניזם מיקרוסקופי זה, השוכן בקרקע, טפיל שורשי של הכותנה2, הפוגע בחיוניות הצמח, בביומסה ובתנובת הסיבים באמצעות שיבוש ספיגת מים וחומרי הזנה והקמת אתרי הזנה (איור 1). זיהום בנמטודות רניפורמיות משנה את צמיחת צמח הכותנה על ידי עיכוב מועד הפריחה, הפחתת גודל ומספר הפריים (bolls) ופגיעה באיכות הסיב3. הפסדים חמורים דווחו במיסיסיפי, אלבמה ולואיזיאנה4. נמטיצידים משמשים בדרך כלל לניהול נגיעות בנמטודות, אך עלותם הגבוהה והשפעתם השלילית על הסביבה ובריאות האדם יצרו צורך בחלופות5,6. פיתוח של גרמפלזם עמיד מהווה גישה מבטיחה לצמצום הנזק מהנמטודה הרניפורמית4. מכיוון שנמטודות ניזונות בתוך רקמות השורש, הגנה מבוססת דופן תא, ובמיוחד ליגניפיקציה, משמשת כהיפותזה להגבלה של הפלישה, עיכוב אנזימים מפירוק דפנות תא המופקים מהפתוגן, והגבלה של הקמה והתרחבות של אתרי הזנה של הנמטודות7,8,9. ליגניפיקציה מוגברת נמצאה במתאם עם רגישות מופחתת לפתוגנים במיני צמחים שונים10,11,12,13,14. מחקרים קודמים בכותנה קישרו בין ביטוי גני ליגנין ולאקאז לבין עמידות נגד Verticillium dahliae15, ומחקרים בזני כותנה עמידים ורגישים ל-Fusarium חשפו רמות ליגנין גבוהות יותר בזנים העמידים16. תצפיות דומות ב- Arabidopsis ובאורז, שבהן דיכוי של גנים ביוסינתטיים של ליגנין הגביר את הרגישות, מדגישות את חשיבות הליגניפיקציה בהגנת הצמח.
ליגנין הוא ביופולימר פנולי מורכב הנמצא בדפנות התא המשניות של צמחים כליים, שם הוא מעניק קשיחות מבנית, חוזק מכני והידרופוביות17. ליגנין, המסונתז דרך מסלולי השקימט והפנילפרופנואיד, הוא הביופולימר היבשתי השכיח השני אחרי תאית, והוא מהווה כ-30% מהפחמן האורגני בכדור הארץ18,19. על ידי חיזוק רשת התאית-המיצלולוז, הליגנין מחזק רקמות נושאות עומס ותומך בהתפתחות הכללית של הצמח. ליגנין בולט במיוחד ברקמות מיוחדות מאוד כגון xylem, sclerenchyma, סיבי הפלואם ופרידרם, ובכך הוא יוצר מחסום דוחה מים החיוני להובלה יעילה של מים ומינרלים. בנוסף לתפקודיו המבניים, הליגנין משמש כמחסום הגנה ביוכימי ופיזי, המגביל את חדירת פתוגנים וממזער נזקים מלחצים ביוטיים ואביוטיים20,21,22. ליגניפיקציה היא תהליך דינמי המרכזי בעמידות מפני קשת רחבה של פתוגנים, כולל נקרוטרופים, ביוטרופים והמיביוטרופים. הביוסינתזה שלו מהמונוליגנולים הראשוניים sinapyl, coniferyl ו-p-coumaryl alcohol משתנה בין מינים, סוגי רקמות ושלבי התפתחות, ובכך משפיעה על דרגת העמידות. פלישת פתוגנים או עקה אביוטית מפעילים לעיתים קרובות שקיעת ליגנין מקומית, המחזקת עוד יותר את הגנות הצמח23,24.
הבנת תפקידו של הליגנין בעמידות לנמטודות בצורת כליה (reniform nematode) חיונית לקידום אסטרטגיות לניהול כותנה. אפיון ויזואלי וביוכימי של התפלגות הליגנין מספק תובנות לגבי הדינמיקה המרחבית והזמנית של שינויים בדופן התא, העומדים בבסיס תגובות הגנה מוקדמות. מחקר זה עושה שימוש בצביעת phloroglucinol היסטוכימית כדי לנתח תבניות של השקעת ליגנין הקיימות באופן טבעי בגנוטיפים של כותנה העמידים והרגישים לנמטודות בצורת כליה, ובכך מספק מסגרת ראשונית מעשית להערכת תכונות עמידות הקשורות לדופן התא ולהנחיית תוכניות רבייה שמטרתן לשפר את חוסנו של הגידול.
פרוטוקול
הניסויים נערכו בחממה תוך שימוש בחומרי הצמח המתוארים להלן. כל הכימיקלים, הציוד והריאגנטים ששימשו במחקר זה מפורטים ב- טבלת חומרים.
חומר צמחי
זרעים נרכשו עבור גרמפלזם רגיש (A2‑20, PI 129742; A2‑40, PI 183202) ועמיד (A2‑514, PI 616008; A2‑995, PI 629323). בנוסף, במחקר זה נכלל Deltapine 16, זן רגיש. הזרעים הונחו במים סטריליים והושרו למשך 24 h בטמפרטורת החדר. לאחר ההשריה, הזרעים נשטפו ביסודיות במים סטריליים טריים כדי להסיר מזהמים שנותרו. לאחר מכן, הזרעים השטופים הועברו לצלחות פטרי סטריליות המרופדות במגבות נייר שעברו עיקור והרטבה מוקדמת, והודגרו למשך 2 ימים בטמפרטורת החדר כדי לעודד נבטה (איור 2).
שתילה בחממה
עציצים מפלסטיק מולאו בתערובת שתילה לבקרת לחות שהורטבה מראש. הקרקע הורטבה מראש למשך יומיים לפני ההשתלה. לאחר מכן, נבטים שנבטחו הותשילו בזהירות לתוך הקרקע ההרטבה ושומרו בתנאי חממה מבוקרים במחזורי יום/לילה של 28 °C/25 °C עד לשלב העלים האמיתיים (איור 2). עבור כל גנוטיפ נשתלו שלושה חזרות ביולוגיות.
איסוף דגימות
צמחים בשלב העלים האמיתיים הוצאו בעדינות מהקרקע על ידי ריפוף המצע הסביב כדי למזער את הנזק לשורשים. השורשים נשטפו 2–3 פעמים במים להסרת חלקיקי קרקע דבקים. רקמות שורש ונבט מכל גנוטיפ נאספו לצורך חיתוך (איור 3).
הכנת תמיסת צביעה של פלורוגלוצינול
תמיסת פלורוגלוצינול 3% הוכנה על ידי המסה של 0.45 g של פלורוגלוצינול בתערובת של שני חלקים אתנול 100% (10 mL) וחלק אחד של HCl מרוכז (5 mL) בתוך מzeigen עשן. תמיסת הצביעה הוכנה לפי שיטה שתוארה בעבר16.
הכנת חיתוך ופרוטוקול צביעה לניתוח היסטוכימי של ליגנין
רקמות שורש ונבט נחתכו באמצעות להב תער סטרילי כדי לקבל חתכים רוחביים דקים (איור 3). חתכים טריים הועברו לזכוכיות מיקרוסקופ וכוסו ב-20 µL של תמיסת צביעה של 3% phloroglucinol למשך 1 min. לאחר מכן, החתכים נשטפו במים סטריליים, קובעו תחת מכסי זכוכית וצולמו (איור 4, איור 5, איור 6). אותו הליך בוצע עבור רקמות גבעול (איור משלים 1).
דימוי במיקרוסקופיה
הדמיה בוצעה באמצעות מיקרוסקופ דיגיטלי. למסלול ההדמיה הונחו על פלטפורמת המיקרוסקופ למסלולות זכוכית שהוכנו עם דגימות רקמה צבועות. לאחר אתחול תוכנת ההדמיה של המיקרוסקופ, נבחרו הגדלות של 100x, 200x ו-300x במצב שדה בהיר (bright-field). בוצעו כיוונוי פוקוס גס ועדין כדי להדגים בבירור את דפוסי צביעת הליגנין בתוך חיתוכי הרקמה. התמונות הוקלטו ונשמרו עם מספרי הזיהוי המתאימים של הדגימות. לאחר מכן בוצע ניתוח השוואתי על ידי בחינת תמונות של גנוטיפים עמידים ורגישים כדי להעריך הבדלים בצביעת הליגנין. תמונות של גנוטיפים עמידים ורגישים הושוו באמצעות ImageJ כדי לקבוע הבדלים באחוז השטח הצבוע תוך שימוש בספי thresholds אחידים. התוצאות יוצאו כקבצי CSV לאחר עיבוד כל שלושת החזרות. לאחר מכן הוכנו גרפים להשוואה בין הגנוטיפים העמידים לרגישים.
תוצאות
ניתוח היסטוכימי של גנוטיפים של כותנה עמידים ורגישים
בדיקה היסטוכימית של חתכים רוחביים של שורשים וגבעולים בשלב העלה האמיתי חשפה הבדלים ויזואליים בין גנוטיפים עמידים לרגישים, כפי שמוצג ב-איור 4, איור 5, ו-איור משלים 1 (חתכים רוחביים של הגבעול). הגדלות גבוהות יותר (100x–300x) סיפקו מבטים מפורטים של הבדלים אלה (איור 4A–C ו-איור 5A–C עבור גנוטיפים עמידים, ו-איור 4D–F ו-איור 5D–F עבור גנוטיפים רגישים). דפוסי צביעת הליגנין היו שונים לפי סוגי הרקמות: גנוטיפים עמידים הראו דפוסי צביעת ליגנין נמוכים יותר או דומים בגבעולים, בעוד שגנוטיפים רגישים הראו ליגניפיקציה גבוהה יותר יחסית של הגבעול באופן ויזואלי (איור משלים 1A–D).
ניתוח תמונה כמותי של צביעת ליגנין
Deltapine 16, זן רגיש שנכלל במחקר זה, הראה צביעת ליגנין נמוכה יותר (Figure 6A–C) עם ערכי אחוז שטח צבוע של 12, 17.8 ו-16.3 (Figure 6D). הגנוטיפ הרגיש A2-40 הראה ערכי אחוז שטח צבוע של 25.2, 19.9 ו-28.75, בעוד שהגנוטיפ העמיד, A2-995, הראה ערכי אחוז שטח צבוע של 54.95, 58.71 ו-69.85 (Figure 7). עם זאת, ל-A2-20 היו ערכי אחוז שטח צבוע של 16.6, 21.3 ו-20.4, בעוד ש-A2-514 הראה ערכי אחוז שטח צבוע של 49.8, 34.1 ו-43.38 (Figure 8). ההשוואה הניבה ערך p של 0.06. מכיוון שערכים אלו הופקו באמצעות ספי השונות, בוצע ניתוח ImageJ עם סף אחיד תוך שימוש בספי גוון (hue), רוויה (saturation) ובהירות (brightness) זהים כדי להבטיח הדירות בין החזרות. הגנוטיפ העמיד (A2-514) הראה צביעה רבה יותר יחסית מאשר הגנוטיפ הרגיש (A2-20). אחוז השטח הצבוע חושב כיחס בין פיקסלים חיוביים לליגנין לבין סך כל פיקסלי הרקמה בתוך החתך. ההשוואה הכמותית עם סף אחיד בין הגנוטיפ הרגיש A2-20 לגנוטיפ העמיד A2-514 מוצגת ב-Figure 9. באופן כללי, ניתוח עם סף אחיד מדגים כי קיימים הבדלי ליגניפיקציה ספציפיים לגנוטיפ בין גנוטיפים אלו.
זמינות נתונים:
נתונים גולמיים מתווספים כקובץ משלים.
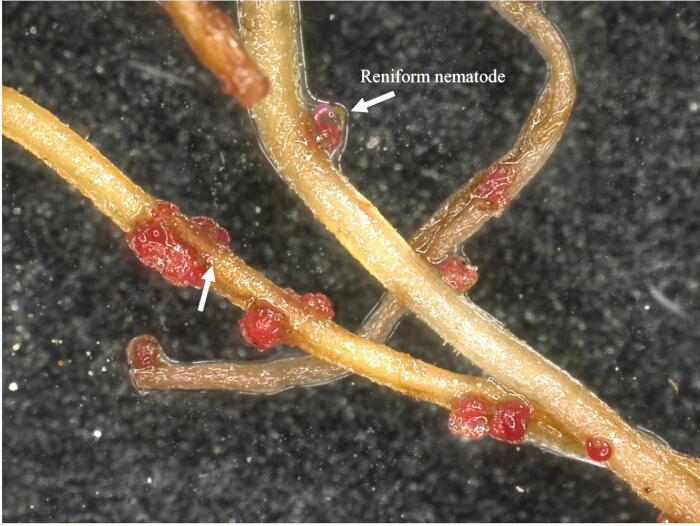
איור 1: מבט מיקרוסקופי של נמטודות רניפורמיות הניזונות משורשי כותנה. נמטודות רניפורמיות הניזונות משורשי כותנה מוצגות בהגדלה של 50x לאחר צביעה בצבע מאכל אדום. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
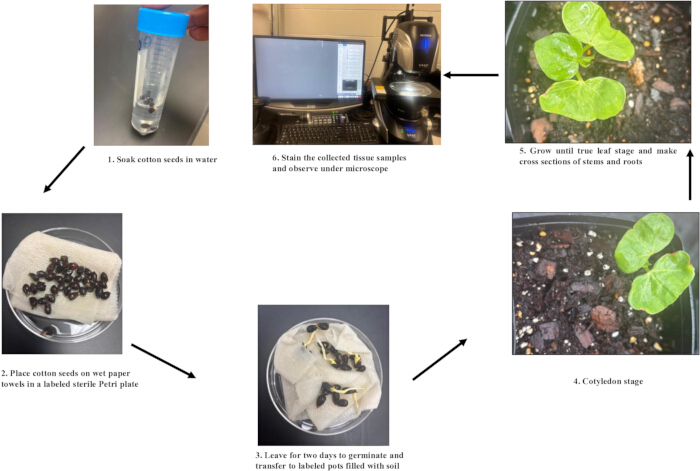
איור 2: הכנת חומר צמחי לניתוח היסטוכימי של ליגנין. זרימת העבודה מורכבת מהשלבים הבאים: (1) השריה של זרעי כותנה במים; (2) הנחת הזרעים על מגבונים נייר רטובים בתוך צלחת פטרי סטרילית ומסומנת; (3) מתן אפשרות לזרעים להנביט במשך 2 ימים והעברת השתילים לעציצים מסומנים המכילים קרקע; (4) גידול השתילים עד לשלב הקוטילדונים; (5) המשך גידול הצמחים עד לשלב העלים האמיתיים והכנת חתכים רוחביים של הגבעולים והשורשים; ו-(6) צביעת חתכי הרקמה שנאספו ותצפית עליהם תחת מיקרוסקופ. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
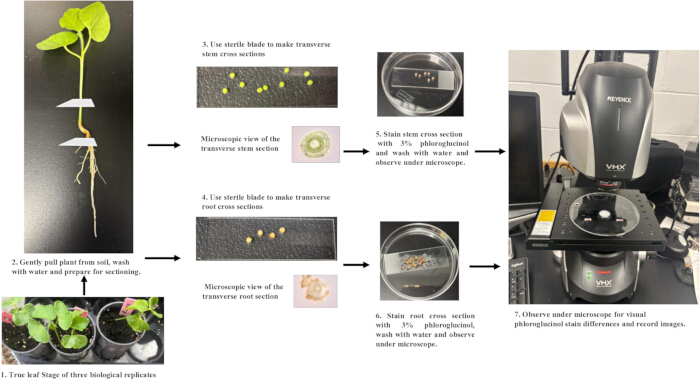
איור 3: איסוף וצביעה של חתכי שורש וגבעול של כותנה באמצעות phloroglucinol-HCl. זרימת העבודה כוללת את השלבים הבאים: (1) גידול של שלושה רפליקטים ביולוגיים עד לשלב העלה האמיתי; (2) הוצאה עדינה של הצמחים מהקרקע, שטיפה במים והכנה לחיתוך; (3) שימוש בלהב סטרילי להכנת חתכים רוחביים של הגבעול; (4) שימוש בלהב סטרילי להכנת חתכים רוחביים של השורש; (5) צביעת חתכי הגבעול ב-3% phloroglucinol-HCl, שטיפה במים ובחינה תחת מיקרוסקופ; (6) צביעת חתכי השורש ב-3% phloroglucinol-HCl, שטיפה במים ובחינה תחת מיקרוסקופ; ו-(7) בחינת החתכים הצבועים תחת מיקרוסקופ כדי להדמיאן את ההבדלים בצביעת phloroglucinol ותיעוד תמונות. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
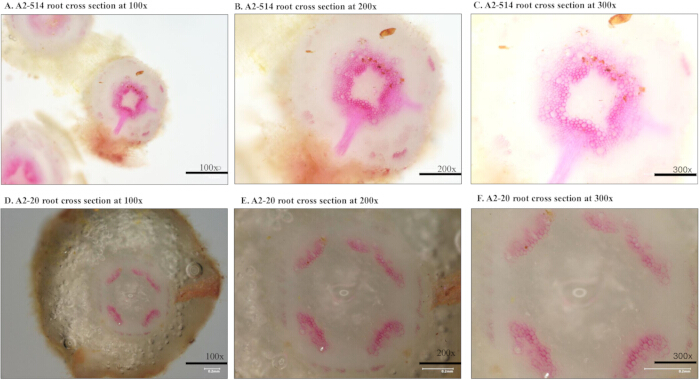
איור 4: צביעת ליגנין בחתכים רוחביים של שורשי גנוטיפי כותנה A2-514 ו-A2-20. חתכים רוחביים של שורשים צבועים בליגנין של הגנוטיפ העמיד A2-514 בהגדלות של (A) 100x, (B) 200x, ו-(C) 300x. חתכים רוחביים של שורשים צבועים בליגנין של הגנוטיפ הרגיש A2–20 בהגדלות של (D) 100x, (E) 200x, ו-(F) 300x. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
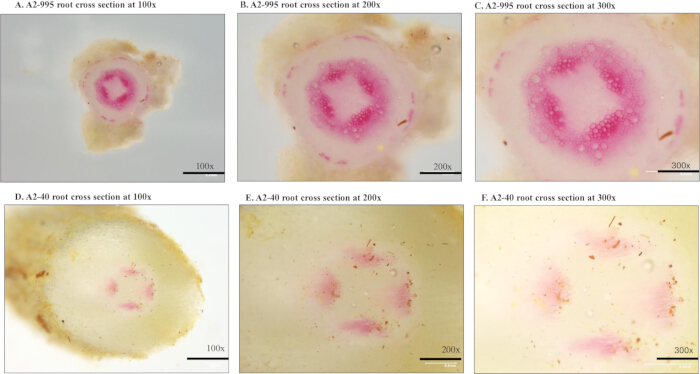
איור 5: צביעת ליגנין בחתכים רוחביים של שורשי גנוטיפי כותנה A2-995 ו-A2-40. חתכים רוחביים של שורשים הצבועים בליגנין מהגנוטיפ העמיד A2-995 בהגדלה של (A) 100x, (B) 200x, ו-(C) 300x. חתכים רוחביים של שורשים הצבועים בליגנין מהגנוטיפ הרגיש A2-40 בהגדלה של (D) 100x, (E) 200x, ו-(F) 300x. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
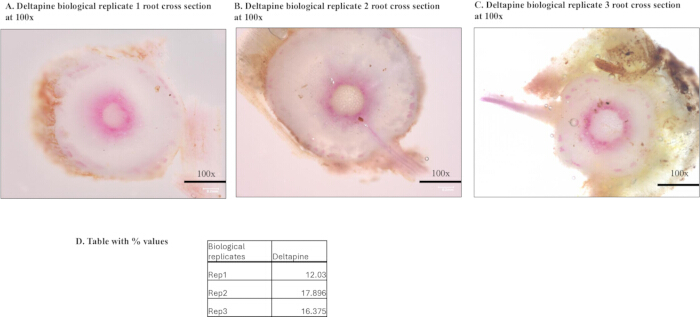
איור 6: צביעת ליגנין ואנליזה כמותית של חתכים רוחביים של שורשי Deltapine 16. חתכים רוחביים של שורשים הצבועיים בליגנין משלוש חזרות ביולוגיות של הזן הרגיש Deltapine 16 בהגדלה של 100x: (A) חזרה ביולוגית 1, (B) חזרה ביולוגית 2, ו-(C) חזרה ביולוגית 3. (D) אחוז השטח הצבוע עבור שלוש החזרות הביולוגיות כפי שנקבע על ידי אנליזה כמותית ב-ImageJ. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
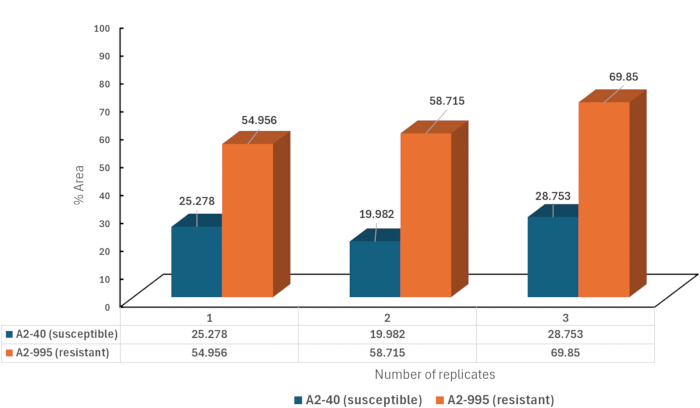
איור 7: ניתוח כמותי של צביעת ליגנין בגנוטיפים של כותנה A2-40 ו-A2-995. אחוז השטח הצבוע שנקבע באמצעות ניתוח ImageJ עבור שלושה חזרות ביולוגיות של הגנוטיפ הרגיש A2-40 והגנוטיפ העמיד A2-995. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
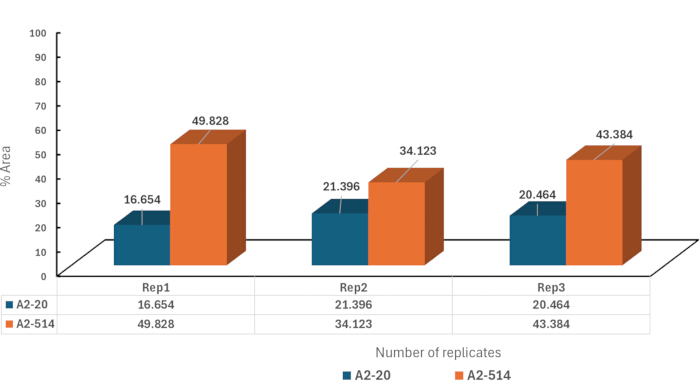
איור 8: ניתוח כמותי של צביעת ליגנין בגנוטיפי כותנה A2-20 ו-A2-514. אחוז השטח הצבוע שנקבע באמצעות ניתוח ב-ImageJ עבור שלושה חזרות ביולוגיות של הגנוטיפ הרגיש A2-20 והגנוטיפ העמיד A2-514. נא ללחוץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
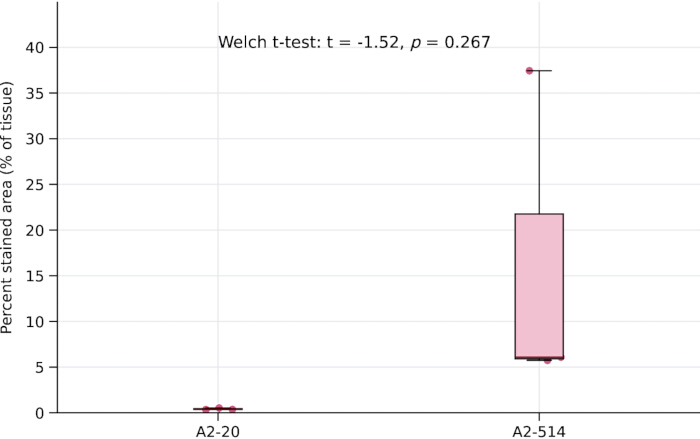
איור 9: כימות של צביעת ליגנין בגינוטיפי כותנה A2-20 ו-A2-514 באמצעות סף אחיד. אחוז השטח הצבוע בגינוטיפ הרגיש A2-20 ובגינוטיפ העמיד A2-514 לאחר ניתוח תמונות עם סף אחיד. השוואה סטטיסטית בוצעה באמצעות מבחן t של Welch (t = −1.52, p = 0.267). אנא לחץ כאן כדי לצפות בגרסה מורחבת של איור זה.
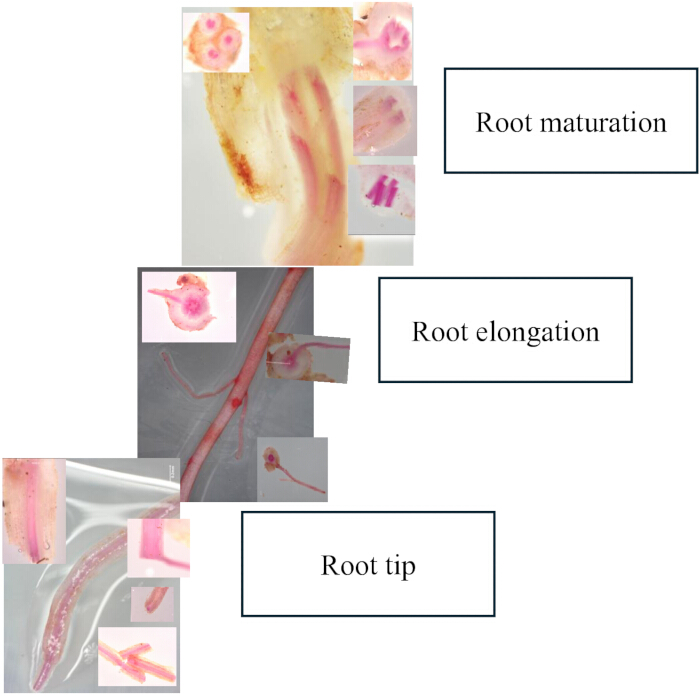
איור 10: ויזואליזציה של צביעת ליגנין באזורי שורש שונים. תמונות מייצגות המראות צביעת ליגנין באזורי הבשלת השורש, התארכות השורש וקצה השורש. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
איור משלים 1: צביעת ליגנין בחתכים רוחביים של גבעול של גנוטיפי כותנה עמידים ורגישים. חתכים רוחביים של גבעול שנצבעו בליגנין בהגדלה של 100x של (A) A2-20 רגיש, (B) A2-514 עמיד, (C) A2-40 רגיש, ו-(D) A2-995 עמיד. אנא לחץ כאן כדי להוריד קובץ זה.
דיון
ליגנין הקשור לדפנות התאיים של הצמח משמש כמחסום פיזי חשוב נגד מזיקים, כולל נמטודות. במחקר הנוכחי, גנוטיפים של כותנה עמידים ורגישים הראו הבדלים חזותיים מובחנים בצביעת ליגנין, בדפוס דומה לזה שדווח בעבר בזנים עמידים ורגישים ל-Fusarium. הצביעה אפשרה ויזואליזציה ברורה של התפלגות הליגנין באזורי השורש — הבשלה, התארכות וקצה השורש — כאשר עוצמת הליגנין עלתה בהדרגה מהחלק העליון של השורש לכיוון הקצה (איור 10). בעוד שדפוסים אלו מספקים תובנה אנטומית מועילה, הדינמיקה של הליגנין בתגובה לזיהום נמטודות לא הוערכה במחקר הנוכחי ודורשת אישוש במחקרים עתידיים. מחקרים קודמים מרמזים כי נוכחות של פתוגנים יכולה להשרות ביוסינתזה של ליגנין, מה שמדגיש את הצורך לבחון שינויים בליגנין תחת לחץ של נמטודות. שילוב של ניתוחים ביוכימיים של כמות הליגנין והרכבו יחזק עוד יותר את הפרשנות של דפוסי הצביעה שנצפו בגנוטיפים אלו. באופן כללי, ממצאים אלו מדגישים את תפקידם של הגנות מבניות המתווכות על ידי ליגנין בעמידות של כותנה לנמטודות רניפורמיות (reniform nematodes), ומדגימים את התועלת של צביעת פלורוגלוצינול לאפיון תכונות אלו. המשך שילוב של גישות אנטומיות, ביוכימיות ומולקולריות יעמיק את ההבנה של ביוסינתזת הליגנין ותרומתה לפיתוח עמידות בת-קיימא לנמטודות רניפורמיות.
גילויים
למחברים אין ניגודים להצהיר עליהם.
הס頂רות
ה-USDA הוא ספק, מעסיק ומלווה המעניק הזדמנויות שוות. אזכור של שמות מסחריים או מוצרים מסחריים בפרסום זה נועד אך ורק למטרת מתן מידע ספציפי ואינו מהווה המלצה או תמיכה מצד משרד החקלאות של ארצות הברית. הממצאים והמסקנות במאמר זה הם של המחבר(ים) ואין לפרשם כביטוי להחלטה או למדיניות רשמית של ה-USDA או של ממשלת ארצות הברית.
תודות
המחברים מודים לד"ר Katherine Parys על מתן הגישה למעבדות המיקרוסקופיה ששימשו במחקר זה. המחברים מודים גם לד"ר Junping Chen ולד"ר Abdulraheem על הצעותיהם וסיועם בשיפור כתב היד. מחקר זה נתמך על ידי פרויקט USDA-ARS מספר 6066-21000-053-00D.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| תערובת שתילה לבקרת לחות | Miracle-Gro | 073561005197 032247557832 | אתר Amazon |
| מיקרוסקופ | Keyence VHX | VHX3000 | ניתן להשתמש בכל מיקרוסקופ שדה בהיר (bright field) מקביל |
| להבי תער סטריליים | Workpro | W018057 | אתר Amazon |
| קרש חיתוך | Freshware | 15.75"L x 9.8"W x 0.3"Th | אתר Amazon |
| זכוכיות עצם וכיסויי זכוכית | Amscope | BS-50P-100S-22X4 | ניתן להשתמש בכל מותג. מוצר זה זמין ב-amazon. |
| מים סטריליים/ מים מזוקקים/ מים שעברו אוטוקלאב | Gibco | 15230147 | ניתן להשתמש בכל מותג/ מים סטריליים שעברו אוטוקלאב |
| צבע פלורוגלוצינול | Fischer Scientific | AC241761000 | זמין ב-Fischer Scientific |
| HCl מרוכז | Fischer Scientific | CAS: 7647-01-0 | זמין ב-Fischer Scientific |
| אתנול מוחלט | Fischer Scientific | 64-17-5 | זמין ב-Fischer Scientific |
| עציצים | BTPLASTIK | B0DSBQMXHN | ניתן להשתמש בכל עציצי פלסטיק, זמין ב-amazon |
| צלחות פטרי | Kingdder | B0BS95MCGS | זמין ב-amazon וניתן להשתמש בכל מותג אחר |
| נייר סופג | Tork | MB540A | זמין ב-amazon וניתן להשתמש בכל מותג אחר |
| Image J | תוכנה | זמין באינטרנט | תוכנה חינמית הזמינה לשימוש |
מקורות
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.