מחקר זה מדגים כי Qiming Granule (QMG) משפר רטינופתיה סוכרתית (DR) על ידי ויסות של ציר המעי-רשתית. QMG עיצב מחדש את מיקרוביוטת המעי, דיכא דלקת מערכתית ושחזר את רשת הבקרה הממוקדת ב-CMKLR1, ובכך הפך את הנזק ההיסטופתולוגי לרשתית. ממצאים אלו מציבים את QMG כאסטרטגיה טיפולית מבטיחה דרך ציר המעי-רשתית עבור DR.
מאמר מחקר
ניתוח מתאמי של גרנולות Qiming עם הרשת הממוקדת ב-CMKLR1 ועם דלקת סיסטמית באמצעות ציר המעי–רשתית ברטינופתיה סוכרתית
במאמר זה
סיכום
תקציר
רטינופתיה סוכרתית (DR) היא סיבוך נוירו-וסקולרי המונח על ידי היפרגליקמיה כרונית ודלקת סיסטמית, כאשר ראיות חדשות מדגישות את ציר המעי-רשתית כיעד טיפולי קריטי אך לא מנוצל דיו. מחקר זה בוחן האם Qiming Granule (QMG) מפעיל את יעילותו המגנה מפני DR על ידי ויסות ציר המעי-רשתית. עכברי C57BL/6 חולקו אקראית לקבוצות ניסוי והוכפחקו להתערבויות שונות. שינויים היסטופתולוגיים ברשתית הוערכו באמצעות צביעת Hematoxylin-Eosin (HE). רמות של ציטוקינים דלקתיים בסרום (IL-1β, IL-6, TNF-α) נמדדו באמצעות ספיחה חיסונית קשורה לאנזים (ELISA). ביטוי של חלבונים רגולטוריים מרכזיים (CMKLR1, Wnt5a, PPAR-γ, AP-1, TP53) הן ברקמת הרשתית והן ברקמת המעי הגס גלה באמצעות Western blot (WB). הרכבם ומגוונותם של מיקרוביוטת המעי אופיינו באמצעות רצף 16S rDNA מלא. ניתוחי מתאם בוצעו כדי להעריך קשרים בין מיקרוביוטת המעי לבין גורמים דלקתיים או חלבונים מרכזיים. טיפול ב-QMG שיפר חריגות היסטופתולוגיות ברשתית, כפי שהוכח על ידי שיקום המבנה הלמינרי של הרשתית, התאוששות חלקית של מספר תאי הגנגליון ברשתית (P < 0.001), והפיכה של דלילת הרשתית (P < 0.01). כמו כן, הטיפול הפחית באופן משמעותי את רמות IL-1β, IL-6 ו-TNF-α בסרום (P < 0.0001). לאורך ציר המעי-רשתית, QMG הפך את הביטוי הבלתי תקין של חלבונים רגולטוריים מרכזיים, ובמיוחד את הרשת הממוקדת ב-CMKLR1 (Wnt5a, PPAR-γ, AP-1, TP53). יתרה מכך, QMG שיקם את הרכבה, מגוונותה ותפקודה של מיקרוביוטת המעי, וניתוחי מתאם גילו כי QMG מקשר בין דלקת סיסטמית לבין חלבונים רגולטוריים אלו כדי לווסת את ציר המעי-רשתית. מחקר זה מספק ראיות פרמקולוגיות ראשוניות לכך ש-QMG משפר DR על ידי קישור הרשת הרגולטורית הממוקדת ב-CMKLR1 (הכוללת את Wnt5a, PPAR-γ, AP-1 ו-TP53) ודלקת סיסטמית באמצעות ציר המעי-רשתית, ובכך מציב את QMG כאסטרטגיה טיפולית מבטיחה לציר המעי-רשתית עבור DR.
מבוא
רטינופתיה סוכרתית (DR), אחת הסיבוכים המיקרו-וסקולריים השכיחים ביותר של סוכרת (DM), היא סיבה מובילה לעיוורון בקרב מבוגרים בגיל העבודה ברחבי העולם1. ברמה הגלובלית, DR משפיעה על כ-20–30% מהאוכלוסייה הסובלת מ-DM2. היפרגליקמיה כרונית מניעה את הפתוגנזה של DR על ידי הפעלת רצף של אירועים פתולוגיים, הכוללים פגיעה בצימוד הנוירו-וסקולרי, תגובות דלקתיות מוגברות ועקה חמצונית3. לאחרונה, נצפו שינויים בגיוון ובהרכב מיקרוביוטת המעי אצל חולי סוכרת עם רטינופתיה בהשוואה לאלו ללא מחלה זו4,5. כתוצאה מכך, ציר המעי-רשתית — רשת תקשורת דו-כיוונית הקושרת בין הומאוסטזיס של המעי לבריאות הרשתית — עלה כגורם תורם חדש להתקדמות DR. עם זאת, המתווכים המולקולריים הספציפיים המתרגמים אותות מהמעי לרשתית לכדי פתולוגיה רשתית נותרו במידה רבה ללא אפיון, דבר המגביל את הזיהוי של סמנים ביולוגיים אמינים ומטרות טיפוליות.
ציר המעי-רשתית מגדיר רשת תקשורת דו-כיוונית מורכבת בין המיקרוביוטה של המעי והמטבוליטים שלה לבין רקמות הרשתית, באמצעות מסלולים אימונולוגיים, מטבוליים, נוירואנדוקריניים וכלי דם, ובכך מווסת את שיווי המשקל ההומיאוסטטי שלהם6. מבחינה מולקולרית, ציר המעי-רשתית מאופיין בהפרעה בוויסות של חלבונים מרכזיים המגיבים למתח וקובעים את גורל התא, ובסגוליות AP-1 ו-TP537,8,9. בנוסף, CMKLR1, קולטן כימוקין מרכזי, מופיע כמתווך מפתח של תפקוד לקוי של האנדותל והפרעה מטבולית, ובכך מהווה קישור קריטי בין שינויים במיקרוביוטה של המעי לבין הפתוגנזה של רטינופתיה סוכרתית10. באופן חשוב, שבילי האיתות של Wnt ממלאים תפקידים רגולטוריים כפולים בשמירה על הומיאוסטזיס של כלי הדם ברשתית ועל תפקוד מחסום האפיתל במעי11, בעוד ששבילי האיתות של PPAR משמשים כרגולטור ראשי של תגובות דלקתיות ותהליכים מטבוליים הן ברקמות העין והן ברקמות המעי12,13. רכיבים מולקולריים אלו מהווים יחד רשת איתות מקושרת בתוך ציר המעי-רשתית, ומספקים תובנות מכניסטיות חדשות והזדמנויות טיפוליות לסיבוכים הקשורים לסוכרת. לכן, התמקדות בשינויים מבניים ותפקודיים לאורך ציר זה מהווה אסטרטגיה מבטיחה לניהול של DR.
הרפואה הסינית המסורתית (TCM) מילאה היסטורית תפקיד משמעותי בטיפול בסוכרת ובריטינופתיה נלווית, כאשר החלטות טיפוליות התבססו על בידול תסמונתי14. גרנול Qiming (QMG), המורכב מ-Astragalus membranaceus, Pueraria lobata, Rehmannia glutinosa, Lycium barbarum, Senna obtusifolia, Leonurus japonicus, Typha angustifolia, ו- Whitmania pigra, מיושם באופן נרחב בטיפול ב-DR. QMG, שאושר על ידי המינהל הלאומי למוצרי רפואה של סין (מספר אישור Z20090036), השלים בהצלחה ניסויים קליניים וקיבל אישור שיווק. QMG מציג השפעות מגנות על ידי מניעת העביית קרומי הבסיס בנימי הרשתית, הפחתת הנזק לפריציטים ולמיקרו-וסקולטורה של הרשתית, ושמירה על המורפולוגיה הפתולוגית המקומית של העין15, מה שהופך אותו לטיפול מבטיח למענה על DR. על ידי התמקדות בחלבונים מרכזיים ובגורמים דלקתיים, הרכיבים הפעילים של QMG מפעילים השפעות אנטי-דלקתיות, נוגדות חמצון ואנטי-אפופטוטיות, ובכך מספקים בסיס מנגנוני לוויסות של ציר המעי-רשתית (gut–retina axis)16. תכונות אלו מספקות בסיס מנגנוני לוויסות הפוטנציאלי של ציר המעי-רשתית על ידי QMG, אך מחקרים מעטים בחנו קשר זה. לפיכך, מחקר זה נועד לתקף את היעילות של QMG בוויסות ציר המעי-רשתית, ולספק ראיות ניסיוניות לפוטנציאל הטיפולי שלו ב-DR.
מחקר זה מקשר בין תחזיות תיאורטיות לנתונים ניסויים in vivo כדי לתקף את היעילות של QMG בוויסות ציר המעי-רשתית. ממצאים אלו מדגימים כי QMG משפר DR על ידי קישור רשת הבקרה הממוקדת ב-CMKLR1 (הכוללת את Wnt5a, PPAR-γ, AP-1 ו-TP53) לדלקת מערכתית דרך ציר המעי-רשתית, ובכך ממצב את QMG כאסטרטגיה טיפולית מבטיחה המכוונת לציר המעי-רשתית עבור DR. התקציר הגרפי מוצג ב-איור 1.
פרוטוקול
כל ניסויי החיות בוצעו בהתאם להנחיות ARRIVE. המחקר אושר על ידי ועדת ביקורת האתיקה של Sichuan Scientist Biotechnology Co., Ltd. (IACUC ISSUE SYST-2024-011). לוח זמנים ניסיוני מפורט המסכם את עיצוב המחקר מוצג ב- איור משלים 1.
הכנה וטיפול בבעלי חיים
עכברים הרדימו באופן עמוק באמצעות שאיפת 2% isoflurane. תחת הרדמה עמוקה, נדגם דם באמצעות עקירה רטרו-אורביטלית (retro-orbital enucleation). מיד לאחר איסוף הדם, נשלפו גלגולי העיניים כדי לקצור רקמות רשתית. לאחר מכן, בוצעה פריקה של חוליות הצוואר תחת הרדמה עמוקה כדי להבטיח המתה הומנית. רקמות המעי הגס הופרדו מיד לאחר מכן. בעלי חיים שהפגינו תופעות לוואי הוסרו באופן מיידי מהמחקר וקיבלו טיפול וטרינרי מתאים.
הקצאה אקראית וסמיות
עכברי C57BL/6 זכרים, בני 5 שבועות ושוקלים בין 20 ל-30 גרם, שוכנו בתנאים מבוקרים בקפדנות, כולל טמפרטורה ולחות. לאחר שבוע של התאמה, הוקצו עכברי C57BL/6 באופן אקראי לשלוש קבוצות (קבוצת ביקורת, קבוצת מודל וקבוצת התערבות) באמצעות רצף מספרים אקראי שהופק במחשב. רצף ההקצאה האקראית הופק על ידי חוקר שלא היה מעורב בטיפול בבעלי החיים או בהערכת התוצאים.
כדי להבטיח סמיות, כל הטיפול בבעלי החיים, מתן התרופות ואיסוף הנתונים בוצעו על ידי חוקרים שלא היו מודעים להקצאה לקבוצות. חשיפת הקודים של השיוך לקבוצות נעשתה רק לאחר השלמת כל הניסויים והניתוחים הסטטיסטיים. הסמיות חלה על: הטכנאי שביצע את הגavage הפהי; הפתולוג שהעריך את ההיסטולוגיה של הרשתית; והאנליסט שכימת את פסי ה-Western blot (WB).
חישוב גודל מדגם
גודל המדגם נקבע על בסיס ניסוי מקדמי שהעריך את מספר תאי הגנגליון ברשתית (RGC) תחת אותם תנאים ניסויים. בהנחה של רמת מובהקות דו-צדדית (α) של 0.05 ועוצמה סטטיסטית (1-β) של 0.80, נדרשו לפחות 5 עכברים לכל קבוצה כדי לזהות הבדל רלוונטי קלינית במספר ה-RGC בין קבוצת המודל לקבוצות ההתערבות. בהתחשב בשיעור נשירה פוטנציאלי של כ-20%, נקבע כי כל קבוצה תכלול 6 עכברים.
הקמת מודלים של בעלי חיים סוכרתיים
קבוצת הביקורת קיבלה תזונה סטנדרטית, בעוד שקבוצות ההתערבות והמודל קיבלו תזונה עשירה בשומן ובסוכר (HFHSD) למשך ארבעה שבועות. לאחר תקופה תזונתית זו, קבוצות ההתערבות והמודל עברו הזרקה תוך-בטנית של תמיסת Streptozotocin (STZ) בריכוז 1% במינון של 35 mg/kg17,18,19,20. שבעים ושתיים שעות לאחר ההזרקה, עכברים שהפגינו רמות גלוקוז בדם במצב ללא צום העולות על 16.7 mmol/L נחשבו ככאלה שבהן הושרה בהצלחה מודל DM ונבחרו להמשך הניסוי. בעלי החיים עם DM המשיכו בתזונה העשירה בשומן ובסוכר למשך ארבעה חודשים נוספים, בעוד שקבוצת הביקורת המשיכה בתזונה הסטנדרטית שלה.
תיקוף טקסונומי והערכת איכות
שמונת הרכיבים ב-QMG תוקפו טקסונומית באמצעות Modernized Plant Names Search (MPNS, http://mpns.kew.org/mpns-portal/). איכות הדיווח על ההרכב של ה-QMG הוערכה באמצעות הכלי ConPhYMP.
שיטות ה अध्याय
בקבוצת ההתערבות, בעלי החיים קיבלו QMG במתן דרך הפה. ה-QMG נרכש מחברת Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. (מספר אישור תרופות לאומי סיני Z20090036). תרחיף ה-QMG הוכן על ידי ערבוב אחיד של QMG עם מים מזוקקים. עכברים בקבוצת ההתערבות קיבלו את התרחיף באמצעות זריקה דרך הפה (oral gavage) בנפח שווה לזה של קבוצת המודל והקבוצה השלילית (blank group). המינון חושב על בסיס מינון טיפולי בודד קליני של 4.5 g ל-60 kg של מבוגר (מינון יחידה סטנדרטי של התכשיר המשווק) תוך שימוש בשיטת נורמליזציה של שטח פני הגוף (BSA) המומלצת על ידי ה-FDA ו-Reagan-Shaw21. מקדם ההמרה בין בני אדם מבוגרים (Km = 37) לעכברים (Km = 3) היה 12.33, מה שהביא למינון של 0.9 g/kg משקל גוף עבור עכבר. קבוצת המודל והקבוצה השלילית קיבלו נפח שווה של תמיסת סליין באמצעות זריקה דרך הפה. המתן בוצע מדי יום בין השעות 9:00 ל-11:00 בבוקר למשך תקופה רצופה של 3 חודשים.
תצפית ובדיקת מדדים
ניטור כללי של מדדי חיוניות
הסימנים החיוניים הכלליים והמדדים הפיזיולוגיים, כולל משקל גוף, רמות גלוקוז בדם, צריכת מים ומזון, תפוקת שתן, רמות פעילות והתנהגות, טמפרטורת הגוף, כמו כן מצב הפרווה והעור, נצפו ותועדו באופן שיטתי כדי להעריך באופן מקיף את ההתערבויות הטיפוליות ולזהות סיבוכים פוטנציאליים.
תצפית על שינויים מורפולוגיים ברשתית באמצעות ניתוח צביעת HE
כל הדגימות עובדו באמצעות מכשיר התייבשות אוטומטי תוך שימוש בסדרה של תמיסות אתנול וקסילן לאחר הקיבוע, ולאחריהן טמיעה בפרפין. לאחר מכן, נחתכו חתכים של 4 µm בפרפין אשר נצבעו ב-HE ואז הורכבו עם דבק ניטרלי. תמונות רשתית נסרקו באמצעות סורק 3DHISTECH Pannoramic SCAN. ניתוח התמונות ומדידת הנתונים בוצעו באמצעות Image-Pro Plus.
זיהוי של IL-6, TNF-α ו-IL-1β בסרום באמצעות אנליזת ELISA
מדגמי דם נאספו באמצעות דגירה רטרו-אורביטלית (retro‑orbital enucleation). סרום הופרד על ידי צנטריפוגה במהירות של 1,000 × g במשך 15 min בטמפרטורה של 4 °C ונשמר בטמפרטורה של -80 °C עד לניתוח. רמות סרום של IL‑1β, IL‑6 ו-TNF‑α נמדדו בהתאם לפרוטוקולים סטנדרטיים, הכוללים השוואת טמפרטורה של הרכיבים, הוספת דגימות, אינקובציה, שטיפה, הוספת קונזוגט ותסס (substrate), סיום התגובה, מדידת צפיפות אופטית וחישוב הריכוז על בסיס עקומה סטנדרטית. הצפיפות האופטית נקראה באורך גל של 450 nm באמצעות קורא מיקרופלייטים, וריכוזיB הציטוקינים חושבו אל מול עקומות סטנדרטיות.
זיהוי של חלבוני בקרה מרכזיים ברשתית ובמעי הגס באמצעות אנליזת WB
שלוש חזרות ביולוגיות בלתי תלויות בוצעו על ממבנה (membrane) יחיד ונסרקו באופן סדרתי עבור חלבוני המטרה. כל החזרות נגזרו מקבוצה אחת של בעלי חיים שהוקרבו בו-זמנית. כאשר המשקל המולקולרי של חלבון מטרה היה קרוב מדי לזה של GAPDH (הפרש של <5 kDa), הם נותחו על ממבנים נפרדים כדי למנוע חפיפה של האות. כל ממבנה נסרק באופן בלעדי עבור חלבון המטרה או עבור GAPDH כדי להבטיח כימות מדויק. נעשה שימוש בנוגדנים ראשוניים הבאים: נוגדן פוליקלונלי ל-GAPDH polyclonal (1:5000), נוגדן פוליקלונלי ל-CMKLR1 (1:1000), נוגדן פוליקלונלי ל-Wnt5a (1:1000), נוגדן פוליקלונלי ל-TP53 (1:1000), נוגדן מונוקלונלי ל-AP-1 (1:5000), ונוגדן פוליקלונלי ל-PPAR gamma (PPAR-γ) (1:1000). חלבונים כלליים הופקו באמצעות ליזיס של תאים ולאחריו צנטריפוגציה. ריכוזי החלבון נקבעו באמצעות בדיקת BCA. החלבונים שחולצו הופרדו ב-SDS-PAGE באמצעות ג'ל הפרדה של 12% והועברו לאחר מכן לממבנים. הממבנים נחסמו ב-TBST המכיל 5% חלב דל שומן ודגרו עם הנוגדנים הראשוניים המתאימים למשך לילה ב-4 °C. לאחר שטיפה, הממבנים דגרו עם נוגדנים שניים אנטי-ארנב או אנטי-עכבר המשורשריים ל-HRP בדילול של 1:10,000. לבסוף, פסי החלבון הודגמו ונותחו באמצעות הדמיית כימילומינסנס. במהלך ההדמיה ועיבוד הנתונים, הבלוטים נגזרו אופקית כדי להסיר אזורי משקל מולקולרי לא רלוונטיים, וכל נתיבי הדגימה נשמרו ללא הסרת האזורים שבין הנתיבים. עיוות קל של הקצוות עשוי להתרחש במהלך הגזירה כדי להסיר אזורי ג'ל לא רלוונטיים.
זיהוי של מיקרוביוטת המעי באמצעות ניתוח רצף 16S rDNA
דגימות צואה טריות נאספו מכל עכבר לפני הפרוצדורות הסופיות. העכברים הוכנסו בנפרד לכלובים סטריליים למשך 10–15 דקות כדי לאפשר השתמה ספונטנית. גלולות צואה נאספו באופן מיידי באמצעות פינצטה סטרילית, הועברו לצינורות סטריליים של 1.5 mL, הוקפאו בהקפאה מהירה (snap-frozen) בחנקן נוזלי, ואוחסנו בטמפרטורה של -80 °C עד להפקת ה-DNA. כל הפרוצדורות בוצעו בתנאים סטריליים כדי למזער זיהום צולב. הרווח בין ההשתמה להקפאה נשמר בטווח של 10 דקות כדי להבטיח את השלמות המיקרוביאלית. דגימות ה-DNA הגנומי (gDNA) מהצואה טוהרו באמצעות ערכה להפקת Fecal gDNA, ולאחריהן בוצעה הגברה של הגן 16S rDNA באורכו המלא באמצעות תגובת שרשרת פולימראז (PCR) עם הפריימרים האוניברסליים 8F (5’-AGAGTTTGATCATGGCTCAG-3’) ו-1492R (5’-CGGTTACCTTGTTACGACTT-3’). תוצרי ה-PCR נותחו לאחר מכן באמצעות אלקטרופורזה של ג'ל אגרוזה, טוהרו וכומתו עבור יישומים המשכיים. ריצוף בעומס גבוה (High-throughput sequencing) בוצע במסננת Nanopore GridION. תהליך ניתוח הנתונים כלל basecalling, בקרת איכות של הנתונים, אנוטציה של מינים, בניית עץ פילוגנטי, ניתוח קהילה, ניתוח גיוון Alpha ו-Beta, ניתוח מינים בעלי שכיחות דיפרנציאלית וחיזוי תפקודי הקהילה. במהלך הניתוח נעשה שימוש בכלים ובמאגרי נתונים שונים, כגון NanoFilt, Usearch, שפת התכנות R, Python ומסד הנתונים SILVA.
ניתוח מתאם של ציר המעי–רשתית עם דלקת מערכתית ומיקרוביוטת מעי רב-שכבתית
כדי לבחון את הקשרים הפוטנציאליים בין מיקרוביוטת המעי ברמות שונות לבין ציטוקינים דלקתיים בסרום וחלבונים רגולטוריים מרכזיים, בוצע ניתוח קורלציה באמצעות פלטפורמת Luoning Bio-Cloud. בתחילה, נתוני שפע המינים ברמות הממלכה (Kingdom), המערכה (Phylum), המחלקה (Class), הסדרה (Order), המשפחה (Family), הסוג (Genus) והמין (Species) הופקו מתוצאות הריצוף. גורמים פיזיקו-כימיים, כולל ציטוקינים דלקתיים בסרום ורמות ביטוי של חלבונים, נאספו לקובץ גורמים סביבתיים. כדי להבטיח את מהימנותן וה可וויזואליזציה של הקורלציות, הנתונים עברו נורמליזציה כדי לבטל את הבדלי הקנה מידה בין השפע המיקרוביאלי ליחידות המדידה הקליניות. מקדמי המתאם (ערכי R) ורמות המובהקות המתאימות (ערכי P) חושבו. התוצאות הוצגו באמצעות מפת חום של קורלציות (correlation heatmap), שבה גרדיאנטי צבע מצביעים על עוצמת וכיוון המתאם (אדום מייצג קורלציה חיובית, כחול מייצג קורלציה שלילית), וכוכביות (**) מציינות מובהקות סטטיסטית (P < 0.01).
שיטות סטטיסטיות
כל הניתוחים הסטטיסטיים וההדמיות בוצעו באמצעות GraphPad Prism. לצורך השוואת ממוצעים עבור נתונים בעלי התפלגות נורמלית, נעשה שימוש במבחן t. במקרים שבהם הנתונים סטו מהתפלגות נורמלית, נעשה שימוש במבחן Kruskal-Wallis. לבחינת קשרים בין משתנים בוצעו מבחני מתאם של Spearman או Pearson. כל המבחנים הסטטיסטיים בוצעו כדו-זנביים, כאשר רמת המובהקות הסטטיסטית נקבעה ל-0.05.
תוצאות
מצב כללי של בעלי החיים בניסוי
רמות הגלוקוז בדם היו גבוהות באופן מובהק בקבוצת המודל (27.21 ± 6.03 mmol/L) בהשוואה לקבוצת הביקורת (P < 0.001), מה שמעיד על השראה מוצלחת של מודל ה-DM. במהלך תקופת המחקר, בעלי החיים הניסיוניים הראו משקל גוף יציב, צריכה רציפה של מים ומזון, תפוקת שתן נורמלית, טמפרטורת גוף תקינה, מצב פרווה ועור בריא, והתנהגות נורמלית במהלך הניסוי.
הרכב ותיקוף של QMG
QMG, a proprietary Chinese medicine that passed Phase III clinical trials, encompasses Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix], Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix], Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix], Lycium barbarum L. [Solanaceae; Lycii fructus], Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen], Leonurus japonicus Houtt. [Lamiaceae, Leonuri herba], Typha angustifolia L. [Typhaceae; Typhae pollen], Whitmania pigra Whitman [Hirudinidae; Hirudo]15. The detailed information, including the Chinese name, scientific name by MPNS validation, species, family, part used, representative bioactive compounds, was summarized in Table 1, which defined the QMG and provided a transparent, scientifically grounded basis for the formulas under investigation.
| No. | Chinese name | Scientific name by MPNS validation | Species | Family | Part Used | Representative bioactive compounds | |||||||
| 1 | HuangQi | Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix] | Astragalus mongholicus (Fisch.) Bunge | Fabaceae | Radix | Astragaloside IV, Calycosin | |||||||
| 2 | GeGen | Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix] | Pueraria lobata (Willd.) | Fabaceae | Radix | Puerarin, Daidzin | |||||||
| 3 | DiHuang | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix] | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. | Orobanchaceae | Radix | Catalpol, Rehmannioside D | |||||||
| 4 | GouQiZi | Lycium barbarum L. [Solanaceae; Lycii fructus] | Lycium barbarum L. | Solanaceae | Fructus | Lycium barbarum polysaccharides, Betaine | |||||||
| 5 | JueMingZi | Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen] | Senna obtusifolia (L.) H.S. Irwin & Barneby | Fabaceae | Semen | Aurantio-obtusin, Emodin | |||||||
| 6 | Chong WeiZi | Leonurus japonicus Houtt. [Lamiaceae, Leonuri fructus] | Leonurus japonicus Houtt. | Lamiaceae | Fructus | Stachydrine, Leonurine | |||||||
| 7 | PuHuang | Typha angustifolia L. [Typhaceae; Typhae pollen] | Typha angustifolia L. | Typhaceae | Pollen | Isorhamnetin, Kaempferol | |||||||
| 8 | ShuiZhi | Whitmania pigra Whitman [Hirudinidae; Hirudo] | Whitmania pigra Whitman | Hirudinidae | Body | Hirudin, Calin | |||||||
טבלה 1: מידע על ההרכב והאיכות של רכיבי QMG. מידע מפורט על ההרכב ומידע על האיכות של רכיבי QMG, כולל השם הסיני, השם המדעי לפי אישור MPNS, המין, המשפחה, החלק שנעשה בו שימוש ותרכובים ביו-אקטיביים מייצגים.
QMG משפר את המורפולוגיה הרשתית
כפי שמתואר ב- איור 2Aברשתית של קבוצת הביקורת נצפה מבנה מאורגן היטב. הסידור התאי היה צפוף ומסודר בכל השכבות, ללא עדות לשיבוש מבני, להחלשה (exudation) או לחדירה דלקתית. בהשוואה לקבוצת הביקורת, חתכי רשתית מקבוצת המודל (איור 2Bהפגינו חוסר ארגון מבני ניכר, שאפיין סידור תאי לא מסודר והפחתה משמעותית במספר תאי ה-RGC (P < 0.0001, טבלה 2, איור 3A), ודילול בולט של עובי הרשתית הכולל (P < 0.0001, איור 3B). באופן בולט, נצפו תסביבי ניאובסולריזציה (neovascular tufts) החודרים דרך הקרומי הגבולי הפנימי (inner limiting membrane) (מסומנים בחץ אדום), מה שמאשר את ההקמה המוצלחת של מודל רשתית סוכרתית (DR). לעומת זאת, בקבוצת ההתערבות (איור 2Cהפגינו הפחתה משמעותית של הפרעות היסטופתולוגיות ביחס לקבוצת המודל, כפי שבא לידי ביטוי בשיקום המבנה השכבתי של הרשתית ובהתאוששות חלקית של מספר ה-RGC (P < 0.001, טבלה 2, איור 3A), והפיכה של הידקקות הרשתית (P < 0.01, טבלה 2, איור 3B). נתונים אלו מספקים ראיות חזקות לכך ש-QMG מהווה התערבות יעילה עבור DR.
QMG ממתן את התגובה הדלקתית הסיסטמית ב-DR
בהשוואה לקבוצת הביקורת (blank group), רמות הביטוי של IL-1β, IL-6 ו-TNF-α עלו באופן משמעותי בקבוצת המודל (P < 0.0001), מה שמאשר כי הליך יצירת המודל השגיע השראה של תגובה דלקתית ניכרת. לעומת זאת, בהשוואה לקבוצת המודל, רמות הביטוי של IL-1β, IL-6 ו-TNF-α ירדו באופן משמעותי בקבוצת ההתערבות (p < 0.0001), מה שמעיד על השפעה מעכבת עוצמתית של QMG על דלקת מערכתית. ריכוזי ה-IL-1β, IL-6 ו-TNF-α בסרום בשלוש הקבוצות מסוכמים ב-טבלה 3 ומוצגים ב-איור 4A–C.
QMG מווסת את הרשת הרגולטורית הממוקדת ב-CMKLR1 לאורך ציר המעי-רשתית
כפי שמוצג ב- איור 5, איור 6, איור 7ו- איור משלים 2, תוצאות מחקר זה הראו כי בעכברי מודל של רטינופתיה סוכרתית (DR), רמות הביטוי של חמישה חלבוני בקרה מרכזיים — AP-1, Wnt5a, CMKLR1, TP53 ו-PPAR-γ—הפגינה מגמה יורדת עקבית הן ברקמות המעי הגס והן ברקמות הרשתית. בעקבות התערבות ב-QMG, ביטוי החלבונים הללו הראה דרגות משתנות של התאוששות, כאשר חלק מהחלבונים הגיעו למשמעות סטטיסטית. באופן ספציפי, לאחר התערבות ב-QMG, ביטוי של AP-1, Wnt5a ו-CMKLR1 ברקמת המעי הגס היה גבוה באופן משמעותי מזה של קבוצת המודל (P < 0.05), בעוד שברקמת רשתית, הביטוי של CMKLR1 ו-TP53 היה גבוה באופן משמעותי מזה של קבוצת המודל (P < (0.01). ממצאים אלה עשויים להצביע על כך ש-AP-1 ו-Wnt5a הם מגיבים רגישים יותר במעי הגס, בעוד ש-TP53, כווסת אפופטוזה, ממלא תפקיד קריטי יותר בהגנה נוירונית על הרשתית. ראוי לציין כי CMKLR1 היה החלבון היחיד שהשיג התאוששות משמעותית בשני הרקמות, מה שמעיד על כך ש-QMG עשוי לסייע בתקשורת דו-כיוונית לאורך ציר המעי–רשתית באמצעות ויסות סיסטמי של ביטוי CMKLR1.
לכיווניות העקבית של שינויי הביטוי עבור חמישה חלבונים אלו, הן ברקמות המעי הגס והן ברקמות הרשתית, יש חשיבות ביולוגית רבה. כסביב המחיה העיקרי של מיקרוביוטת המעי, שינויים בביטוי חלבונים במעי הגס משקפים את מצבו של המיקרו-סביבה המעית, בעוד שהרשתית היא איבר המטרה של DR. העקביות בדפוסי הביטוי בין שתי רקמות אלו תומכת נחרצות בציר המעי–רשתית כגורם משמעותי בתהליכים הפתופיזיולוגיים של DR.
QMG משחזר ומשפר את ההרכב, הגוון והתפקוד של מיקרוביוטת המעי
תוצאות הרכב הקהילה
ניתוח אשכולות היררכי חשף שינויים מובחנים בהרכב המיקרוביום במעי ובאשכולות במספר רמות טקסונומיות בעקבות התערבות QMG. ברמת המחלקה (איור 8A), קבוצת המודל הראתה הפחתה ניכרת ב- Firmicutes שפע והעשרה משמעותית של Bacteroidetes בהשוואה לקבוצת הביקורת, מה שמעיד על שינוי המונח על ידי סוכרת ב- Firmicutes/Bacteroidetes יחס; באופן notable, ההתערבות שיקמה את הפרופורציות של שניהם Firmicutes ו- Bacteroidetes לרמות הקרובות לאלו של קבוצת הביקורת (blank), בליווי שפע יחסי מוגבר של פרוטאו-בקטריה (Proteobacteria)ברמת המחלקה (איור 8B), קבוצת המודל הראתה עלייה ב- בקטרואידיה (Bacteroidia) ו- קלוסטרידיה (Clostridia) ובירידה ב- בצילוס (Bacilli) ו Erysipelotrichia בהשוואה לקבוצת הביקורת; לעומת זאת, בקבוצת ההתערבות נצפתה התאוששות ב- בקטרואידיה (Bacteroidia) ו- Erysipelotrichia לרמות המתקרבות לאלו של קבוצת הביקורת (blank group), בליווי שכיחות יחסית מוגברת של קלוסטרידיה (Clostridia) ו- אלפא-פרוטאוביקטריה (Alphaproteobacteria)ברמת הסדרה (איור 8C), קבוצת המודל הפגינה שיעור מוגבר של Bacteroidales, ושיעור מופחת של Erysipelotrichales ו-Lactobacillales בהשוואה לקבוצת הביקורת; לעומת זאת, קבוצת ההתערבות שיקמה את השיעורים של Bacteroidales ו- Erysipelotrichales לרמות המגממות לרמות של קבוצת הביקורת, בליווי שפע יחסי מוגבר של Clostridialesברמת המשפחה (איור 8D), קבוצת המודל הראתה גידול ב- Odoribacteraceae, Peptostreptococcaceae, Rikenellaceae, ו- Tannerellaceae, וירידה ב- Erysipelotrichaceae, Lactobacillaceae, Muribaculaceaeו- Ruminococcaceae בהשוואה לקבוצת הביקורת; לעומת זאת, בקבוצת ההתערבות חלה דה-רגולציה (downregulation) של הפרופורציות של Odoribacteraceae ו- Peptostreptococcaceae בהשוואה לקבוצת המודל; שיקם את הפרופורציות של Erysipelotrichaceae ו- Ruminococcaceae לרמות המתקרבות לאלו של קבוצת הביקורת (blank), בליווי שפע יחסי מוגבר של Lachnospiraceaeברמת הסוג (איור 8E), קבוצת המודל הראתה מגמה עולה ב- Odoribacter, Paeniclostridium, Alistipes, Parabacteroidesו-, ו- Clostridioides, ומגמת ירידה ב- Lactobacillus, Faecalibaculum, Ruminococcus, Bacteroidesו- Muribaculum בהשוואה לקבוצת הביקורת; במידה ניכרת, קבוצת ההתערבות הפחיתה את השיעורים של Odoribacter, Clostridioidesו- Paeniclostridium בהשוואה לקבוצת המודל; השחזר את הפרופורציות של Faecalibaculum ו-Ruminococcus לרמות הקרובות לאלו של קבוצת הביקורת; והגביר את השפע היחסי של Lachnoclostridium, Sphingomonas, Flavonifractorו- Blautiaברמת המין (איור 8F), קבוצת המודל הראתה עלייה ב- Odoribacter splanchnicus, Clostridioides difficile, ו- *Paeniclostridium sordellii*, וירידה ב- .Faecalibaculum rodentium, Bacteroides salanitronis, Muribaculum intestinale בהשוואה לקבוצת הביקורת; לעומת זאת, קבוצת ההתערבות הפחיתה את הפרופורציה של Odoribacter splanchnicus ו- Clostridioides difficile בהשוואה לקבוצת המודל; השיב את הפרופורציות של Faecalibaculum rodentium, ו- Muribaculum intestinale, בליווי שכיחות יחסית מוגברת של Lachnoclostridium phocaeenseו- Flavonifractor plautiiבסך הכל, ממצאים אלו מצביעים על כך ש-QMG שיקם את הרכב המיקרוביום של המעי ברמות טקסונומיות מרובות, ובכך העתיק את מבנה הקהילה לעבר מצב הומאוסטטי.
תוצאות מדדי גיוון אלפא (Alpha diversity) וגיוון בטא (Beta diversity)
כפי שעולה מתוצאות גוון האלפא (איור 9A), קבוצת ההתערבות הראתה את המדדים הגבוהים ביותר של Chao1, PD, Simpson ו-Shannon, בעוד שקבוצת המודל הראתה את המדדים הנמוכים ביותר, וקבוצת הביקורת הראתה רמות ביניים. ממצאים אלה מדגישים את ההשפעה השלילית של DR על גוון מיקרוביוטת המעי ומראים כי התערבות QMG משחבת ומגבירה ביעילות את העשירות והשוויוניות המיקרוביאלית בעכברי DR.
כפי שמעידות התוצאות המייצגות של מדד בטא-גיוון (איור 9B,C), תרשימי ניתוח רכיבים ראשיים (PCoA) חשפו הפרדה מובהקת של הקהילות המיקרוביאליות בין שלוש הקבוצות, ממצא שנתמך סטטיסטית באמצעות ניתוח שונות רב-משתני פרמוטציוני (PERMANOVA). באופן ספציפי, הניתוח המבוסס על מדד Bray-Curtis הצביע על שונות מבנית מובהקת (PERMANOVA: R2 = 0.67, P < 0.001), המצביעה על כך שמודל ה-DR וההתערבות ב-QMG היוו חלק משמעותי מהשונות בהרכב הקהילה המיקרוביאלית. בדומה לכך, הניתוח המבוסס על מרחק Weighted UniFrac, השקלל קשרי פילוגניה בין הטקסונים, אישש פעם נוספת את השינוי המובהק בקהילה (PERMANOVA: R2 = 0.58, P < 0.01).
כפי שמוצג בתוצאות של Beta diversity (איור 9D), תרשים הסדר (ordination plot) של סקלה רב-ממדית לא מטרית (NMDS) הדגים קיבוב מרחבי ברור של הדגימות בהתאם לקבוצות הרלוונטיות, עם ערך stress של 0.04. היות שערך stress נמוך מ-0.05 נחשב בדרך כלל כייצוג מצוין של מבנה הקהילה במרחב בעל ממדיות מופחתת, תוצאות אלו מצביעות יחד על כך שההתערבות של QMG שינתה באופן משמעותי את ההרכב הגלובלי של מיקרוביוטת המעי.
תוצאות ניתוח השפע הדיפרנציאלי
על פי ניתוח גודל האפקט של אנליזה מבדילה ליניארית (LEfSe) (איור 9E), התוצאות הראו כי Clostridia, Clostridiales, Lachnospiraceae, ו-Lachnoclostridium היו מועשרים באופן בולט בקבוצת ההתערבות, בעוד ש- Odoribacteraceae, Odoribacter, Peptostreptococcaceae, ו- Paeniclostridium היו מועשרים באופן בולט בקבוצת המודל. לפיכך, מיקרוביוטת המעי לעיל עשויה להיות המיקרוביוטה הדיפרנציאלית העיקרית האחראית להבדלים הבין-קבוצתיים בין קבוצת המודל לקבוצת ההתערבות.
תוצאות חיזוי תפקוד הקהילה
הפרופילים התפקודיים החזויים ברמה 2 וברמה 3 הראו דפוסי צבירה מובחנים בין שלוש הקבוצות (איור 9F,G). באופן ספציפי, בהשוואה לקבוצת הביקורת (blank), קבוצת המודל הראתה סטייה משמעותית בשכיחות היחסית של מסלולים מטבוליים. ראוי לציין כי הפרעה תפקודית זו בקבוצת המודל הוקלה במידה רבה בקבוצת ההתערבות. ההרכב התפקודי של קבוצת ההתערבות הראה הסטה ניכרת חזרה לעבר הפרופיל שנצפה בקבוצת הביקורת, מה שמעיד על כך שהתערבות ה-QMG ויסתה ביעילות את המבנה התפקודי של מיקרוביוטת המעי. תוצאות אלו מרמזות כי ההתערבות לא רק עיצבה מחדש את ההרכב הטקסונומי ואת המבנה של מיקרוביוטת המעי, אלא גם שיקמה את קיבולת המטבוליזם התפקודי שלה לעבר מצב הומאוסטטי.
QMG מושף את ציר המעי-רשתית על ידי קישור בין דלקת מערכתית לבין חלבונים רגולטוריים מרכזיים
קשרים ברמות גלובליות
ברמת הממלכה (איור 10A–C), QMG שיפר את הרשת הממוקדת ב-CMKLR1 בעיקר על ידי ויסות של Bacteria לאורך ציר המעי-רטינה. באופן ספציפי, Bacteria נמצאו במתאם חיובי עם PPAR-γ ברטינה בקבוצת הביקורת (P < 0.01), אך קשר זה לא נצפה בקבוצת המודל. בעקבות התערבות QMG, שכיחות החיידקים נמצאה במתאם חיובי עם CMKLR1 ו-Wnt5a ברטינה, אך במתאם שלילי עם TP53 ו-PPAR-γ במעי הגס (P < 0.01).
ברמת המערכה (איור 10D–F), QMG שיפר את הרשת הממוקדת ב-CMKLR1 בעיקר על ידי ויסות של Candidatus ו-Bacteroidetes לאורך ציר המעי-רשתית. באופן ספציפי, המתאם החיובי בין Candidatus לבין CMKLR1 במעי הגס שנצפה בקבוצת הביקורת אבד לאחר השראה של DR, אך הוחזר על ידי התערבות QMG, דבר שנלווה למתאם שלילי עם serum IL-1β ו-TNF-α, בעוד שקיים מתאם חיובי עם PPAR-γ, AP-1, TP53 ברשתית, AP-1 במעי הגס, ו-IL-6 בסרום (P < 0.01). Proteobacteria בקבוצת המודל הראו מתאם שלילי עם CMKLR1 במעי הגס (P < 0.01), מגמה שנמשכה גם לאחר התערבות QMG. במקביל, Firmicutes הראו מתאם חיובי עם CMKLR1 ברשתית בקבוצת המודל, בעוד ש-Bacteroidetes ו-Tenericutes הראו מתאם שלילי עם CMKLR1 ברשתית (P < 0.01). לאחר התערבות QMG, Bacteroidetes עברו למתאמים חיוביים עם PPAR-γ, AP-1, TP53 ברשתית ועם CMKLR1 במעי הגס (P < 0.01). בנוסף, Actinobacteria הראו מתאם חיובי עם CMKLR1 ו-Wnt5a ברשתית (P < 0.01).
ברמת הכיתה (איור 10G–I), QMG שיפר את הרשת הממוקדת ב-CMKLR1 בעיקר באמצעות ויסות של ציטופאגיה ו- בקטרואידיה (Bacteroidia) לאורך ציר המעי-רשתית. באופן ספציפי, ציטופגיה ו- קיטינופגיה היה במתאם שלילי עם CMKLR1 רטינלי בקבוצת הביקורת (P < (0.01). בקבוצת המודל, ציטופגיה, בקטרואידיה (Bacteroidia)ו- מוליקוטיס (Mollicutes) מתואם באופן שלילי עם CMKLR1 ברשתית, בעוד ש-CMKLR1 במעי הגס תואם באופן חיובי עם Flavobacteriia ו- אפסילונ-פרוטאו-בקטריה (Epsilonproteobacteria), אך באופן שלילי עם Tissierellia, אלפפרוטאו-בקטריות (Alphaproteobacteria), קלסטרידיה, ו- בצילוסים (P < 0.01). בעקבות התערבות QMG, בקטרואידיה (Bacteroidia) ו- ציטופגיה במתאם חיובי עם CMKLR1 קולוני, PPAR- רטינליγ, AP-1, TP53, AP-1 מעי גס ו-IL-6 בנסיוב, בעוד ש- מוליקוטס (Mollicutes), Deltaproteobacteria, אלפא-פרוטאו-בקטריה (Alphaproteobacteria)ו- גמא-פרוטאו-בקטריה (Gammaproteobacteria) הראו דפוס הפוך (P < 0.01). יתרה מכך, חלאמידיה (Chlamydiia), אקטינובקטריה (Actinobacteria), Tissierellia, בצילוס, ו- Negativicute בעל מתאם שלילי עם CMKLR1 ו-Wnt5a ברשתית, בעוד ש- Coriobacteriia הפגינו מתאם הפוך (P < 0.01).
ברמת הסדרה (איור 10J–L), QMG שיפר את הרשת הממוקדת ב-CMKLR1 בעיקר על ידי ויסות של Bacteroidales, Bacillales, ו-Clostridiales לאורך ציר המעי-רשתית. באופן ספציפי, Cytophagales ו-Chitinophagales הראו מתאם שלילי עם CMKLR1 ברשתית, בעוד ש-Marinilabiliales הראו מתאם חיובי עם CMKLR1 במעי הגס בקבוצת הביקורת (P < 0.01). בקבוצת המודל, Mycoplasmatales, Cytophagales, Bacteroidales, ו-Marinilabiliales הראו מתאם שלילי עם CMKLR1 ברשתית, בעוד ש-CMKLR1 במעי הגס הראה מתאם חיובי עם Flavobacteriales ו-Campylobacterales, אך מתאם שלילי עם Tissierellales, Bacillales, Sphingomonadales, Clostridiales, ו-Lactobacillales (P < 0.01). בעקבות התערבות QMG, Bacteroidales ו-Clostridiales הראו מתאם חיובי עם CMKLR1 במעי הגס, AP-1, PPAR-γ ברשתית, AP-1, TP53, ו-IL-6 בנסיוב, בעוד ש-Desulfovibrionales, Rhizobiales, Sphingomonadales, ו-Enterobacterales הראו דפוס הפוך (P < 0.01). יתרה מכך, Eggerthellales ו-Coriobacteriales הראו מתאם חיובי עם CMKLR1 ו-Wnt5a ברשתית, אך מתאם שלילי עם TP53 ו-PPAR-γ במעי הגס, בעוד ש-Chlamydiales, Thermoanaerobacterales, Corynebacteriales, Tissierellales, ו-Bacillales הראו מתאם הפוך (P < 0.01).
קשרים ברמות דקות
ברמת המשפחה (איור 11A–C), QMG שיפרה בעיקר את הרשת הממוקדת ב-CMKLR1 על ידי ויסות Lachnospiraceae, Bacteroidaceaeו- Lactobacillaceae לאורך ציר המעי-רשתית. באופן ספציפי, Ruminococcaceae בעל מתאם שלילי עם CMKLR1 ברשתית, בעוד ש- Lachnospiraceae בעל מתאם חיובי עם CMKLR1 ברשתית בקבוצת הביקורת (P < 0.01). בקבוצת המודל, Peptostreptococcaceae במתאם חיובי עם CMKLR1 רטינלי, בעוד ש- Tannerellaceae, Bacteroidaceae, Odoribacteraceaeו- Lachnospiraceae הראו דפוס הפוך (P < 0.01). במקביל, CMKLR1 במעי הגס נמצא במתאם חיובי עם Marinilabiliaceae, Rikenellaceae, ו- Flavobacteriaceae, אך באופן שלילי עם Lachnospiraceae ו- Lactobacillaceae (P < 0.01). בעקבות התערבות QMG, Enterobacteriaceae, Sphingomonadaceaeו- Oscillospiraceae מתואם באופן שלילי עם CMKLR1, AP-1 ו-IL-6 בנסיק, וכן עם PPAR- ברשתיתγ, AP-1, ו-TP53, בעוד שהם נמצאים במתאם חיובי עם IL-1 בסרוםβ ו-TNF-αבעוד ש- Peptococcaceae, Bacteroidaceae, Muribaculaceaeו- Rikenellaceae הראו דפוס הפוך (P < 0.01). יתרה מכך, Veillonellaceae, Peptostreptococcaceae, Lactobacillaceaeו- Ruminococcaceae מתואם באופן שלילי עם CMKLR1 ו-Wnt5a ברשתית, אך באופן חיובי עם TP53 ו-PPAR- במעי הגסγבעוד ש- Eggerthellaceae, Lachnospiraceae, ו- Hungateiclostridiaceae הפגינו מתאם הפוך (P < 0.01).
ברמת הסוג (איור 11D–F), QMG שיפר את הרשת הממוקדת ב-CMKLR1 בעיקר על ידי ויסות של Lachnoclostridium, Clostridioides, ו-Bacteroides לאורך ציר המעי-רשתית. באופן ספציפי, Ruminococcus נמצא במתאם שלילי עם CMKLR1 ברשתית, בעוד ש-Lachnoclostridium הראה דפוס הפוך בקבוצת הביקורת (P < 0.01). בקבוצת המודל, Lactobacillus ו-Sphingomonas היו במתאם שלילי עם CMKLR1 במעי הגס, בעוד ש-Alistipes ו-Croceibacter היו במתאם חיובי עם CMKLR1 במעי הגס (P < 0.01). במקביל, CMKLR1 ברשתית נמצא במתאם חיובי עם Paeniclostridium ו-Clostridioides, אך במתאם שלילי עם Mucinivorans, Intestinimonas, Flavonifractor, Parabacteroides, Bacteroides, Odoribacter, ו-Lachnoclostridium (P < 0.01). בעקבות התערבות QMG, Sphingomonas ו-Oscillibacter נמצאו במתאם שלילי עם CMKLR1, AP-1, ו-IL-6 בסרום במעי הגס, וכן עם PPAR-γ, AP-1, ו-TP53 ברשתית, בעוד שהם נמצאו במתאם חיובי עם IL-1β ו-TNF-α בסרום, ואילו Bacteroides, Muribaculum, ו-Alistipes הראו דפוס הפוך (P < 0.01). יתרה מכך, Dialister, Flavonifractor, Clostridioides, Ruminococcus, ו-Paeniclostridium היו במתאם שלילי עם CMKLR1 ו-Wnt5a ברשתית, אך במתאם חיובי עם TP53 ו-PPAR-γ במעי הגס, בעוד ש-Pseudoclostridium, Lachnoclostridium, ו-Blautia הראו מתאם הפוך (P < 0.01).
ברמת המין (איור 11G–I), QMG שיפר את הרשת הממוקדת ב-CMKLR1 בעיקר על ידי ויסות של Clostridioides difficile, Alistipes shahii, ו-Paeniclostridium sordellii לאורך ציר המעי-רשתית. באופן ספציפי, Ruminococcus bicirculans ו- endosymbiont 'TC1' of Trimyema compressum הראו מתאם שלילי עם CMKLR1 ברשתית, בעוד ש-Lactobacillus fermentum ו-Lactobacillus helveticus הראו דפוס הפוך בקבוצת הביקורת (P < 0.01). בקבוצת המודל, Croceibacter atlanticus, Alkalitalea saponilacus, Alistipes finegoldii, ו-Alistipes shahii הראו מתאם חיובי עם CMKLR1 במעי הגס, בעוד ש-Sphingomonas panacis, Paeniclostridium sordellii, Clostridioides difficile, ו-Lactobacillus murinus הראו מתאם חיובי עם CMKLR1 ברשתית, אך Odoribacter splanchnicus, Mucinivorans hirudinis, Lachnoclostridium phocaense, Flavonifractor plautii, ו-Intestinimonas butyriciproducens הראו דפוס הפוך (P < 0.01). בעקבות התערבות QMG, Alistipes shahii ו-Muribaculum intestinale הראו מתאם חיובי עם CMKLR1, AP-1, ו-IL-6 בסרום במעי הגס, וכן עם PPAR-γ, AP-1, ו-TP53 ברשתית, בעוד שהם הראו מתאם שלילי עם IL-1β ו-TNF-α בסרום, ואילו Sphingomonas panacis, Oscillibacter sp. PEA192, ו-Oscillibacter valericigenes הראו דפוס הפוך (P < 0.01). יתר על כן, Pseudoclostridium thermosuccinogenes, Lachnoclostridium phocaense, Bacteroides salanitronis, ו-Blautia sp. N6H1-15 הראו מתאם חיובי עם CMKLR1 ו-Wnt5a ברשתית, אך מתאם שלילי עם TP53 ו-PPAR-γ במעי הגס, בעוד ש-Paeniclostridium sordellii, Flavonifractor plautii, endosymbiont 'TC1' of Trimyema compressum, Clostridioides difficile, ו-Dialister pneumosintes הראו מתאם הפוך (P < 0.01). תוצאות המתאם המפורטות ברמות ממלכה, מבנה, מחלקה, סדרה, משפחה, סוג ומין מוצגות ב-קובץ משלים 1.
זמינות נתונים:
מסדי הנתונים של רצף 16S rDNA שהופקו ונותחו במהלך המחקר הנוכחי זמינים במאגר Sequence Read Archive (SRA) של המרכז הלאומי למידע בביו-טכנולוגיה (NCBI) תחת מספר הגישה של BioProject: PRJNA1281561. כל שאר הנתונים שהופקו או נותחו במהלך מחקר זה כלולים במאמר זה.
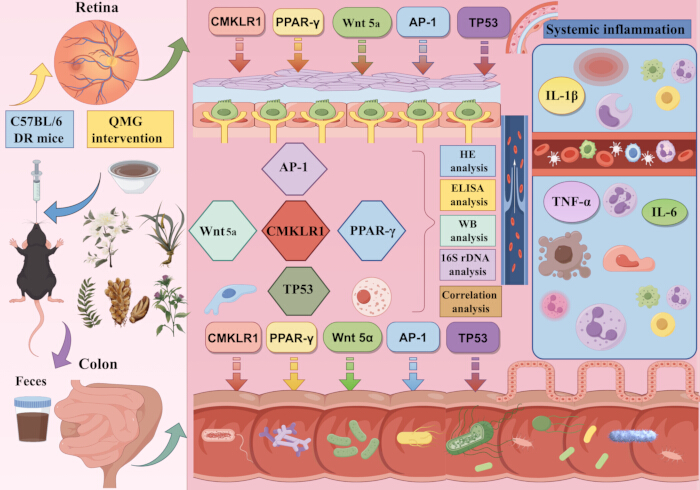
איור 1: תקציר גרפי. התקציר הגרפי מציג את התהליך של מחקר זה. נא ללחוץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
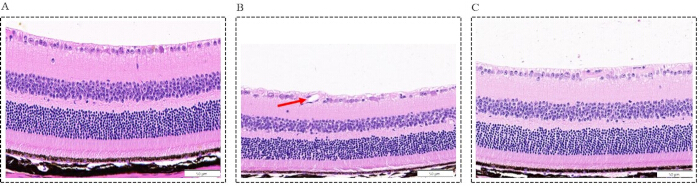
איור 2: שינויים מורפולוגיים ברשתית בשלוש הקבוצות (סרגל קנה מידה = 50 µm, הגדלה: ×400). (A) קבוצת ביקורת (Blank): מיקרוגרפיות מייצגות של חתכי רשתית צבועים בהמטוקסילין-אאוזין (HE), המראות ארכיטקטורה של רשתית שלמה ומאורגנת היטב עם שכבות תאיות מסודרות; (B) קבוצת המודל: מיקרוגרפיות מייצגות של חתכי רשתית צבועים ב-HE, המראות חוסר ארגון מבני ניכר, המאופיין בסידור תאי לא סדיר, הפחתה משמעותית במספר תאי הגנגליון של הרשתית (RGC) (P < 0.0001), דילול בולט של עובי הרשתית (P < 0.0001), ואשכולות ניאובסקולריים החודרים דרך ממברנה המגבילה הפנימית (מסומן בחץ אדום); (C) קבוצת ההתערבות: מיקרוגרפיות מייצגות של חתכי רשתית צבועים ב-HE, המראות הפחתה משמעותית של פתולוגיות היסטופתולוגיות ביחס לקבוצת המודל, כפי שמעידים השחזור של ארכיטקטורת השכבות ברשתית, התאוששות חלקית של מספר ה-RGC (P < 0.001), והתאוששות מהדילול של הרשתית (P < 0.01). אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
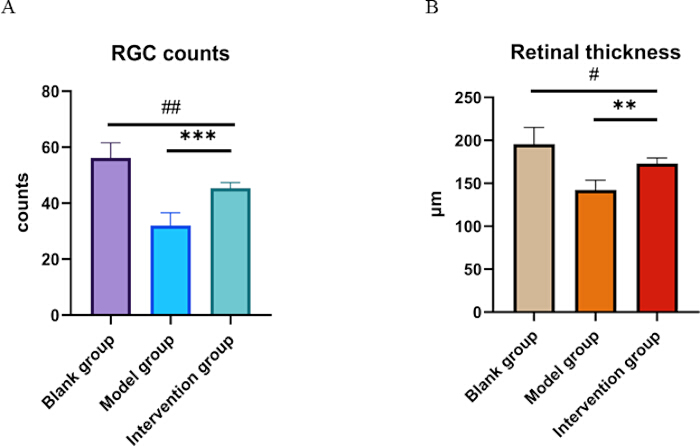
איור 3: כימות היסטולוגי של מספר תאי RGC ועובי הרשתית. (A) כימות של מספר תאי RGC בשכבת תאי הגנגליון. (B) מדידה של עובי הרשתית הכולל (µm). הנתונים מוצגים כממוצע ± SD (n = 6 לכל קבוצה). בהשוואה לקבוצת הביקורת (blank): #P <0.05, ##P <0.01; בהשוואה לקבוצת המודל: **P <0.01, ***P <0.001. אנא לחץ כאן כדי להציג גרסה מוגדלת של איור זה.
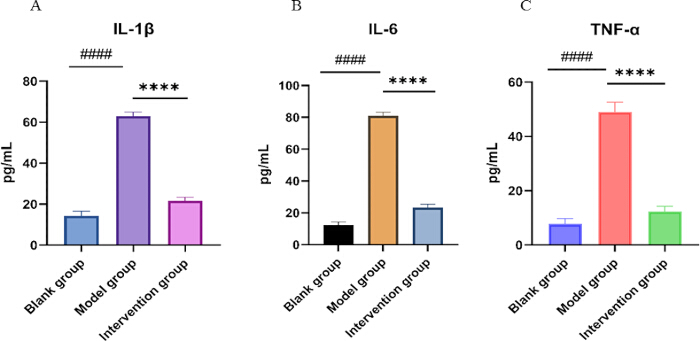
איור 4: ריכוזי ציטוקינים דלקתיים בנסיוב בשלוש הקבוצות. תרשימי עמודות המציגים כימות מבוסס ELISA של רמות serum IL‑1β (A), IL‑6 (B), ו-TNF‑α (C) בקבוצת ביקורת הריק, קבוצת המודל וקבוצות ההתערבות. הנתונים מוצגים כממוצע ± SD (n = 6 לכל קבוצה). בהשוואה לקבוצת הריק: ####P < 0.0001; בהשוואה לקבוצת המודל: ****P < 0.0001. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
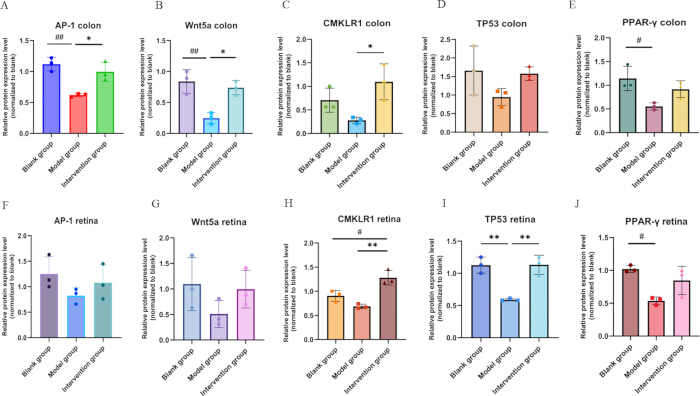
איור 5: תרשים עמודות של רמות הביטוי של חלבוני בקרה מרכזיים ברשתית ובמעי הגס. (A) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של AP-1 במעי הגס (n = 3); (B) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של Wnt5a במעי הגס (n = 3); (C) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של CMKLR1 במעי הגס (n = 3); (D) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של TP53 במעי הגס (n = 3); (E) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של PPAR-γ במעי הגס (n = 3); (F) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של AP-1 ברשתית (n = 3); (G) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של Wnt5a ברשתית (n = 3); (H) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של CMKLR1 ברשתית (n = 3); (I) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של TP53 ברשתית (n = 3); (J) רמת ביטוי חלבון יחסית (נורמלה למשבצת ריקה) של PPAR-γ ברשתית (n = 3). בהשוואה לקבוצת הביקורת (blank): #P < 0.05, ##P < 0.01; בהשוואה לקבוצת המודל: *P < 0.05, **P < 0.01. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
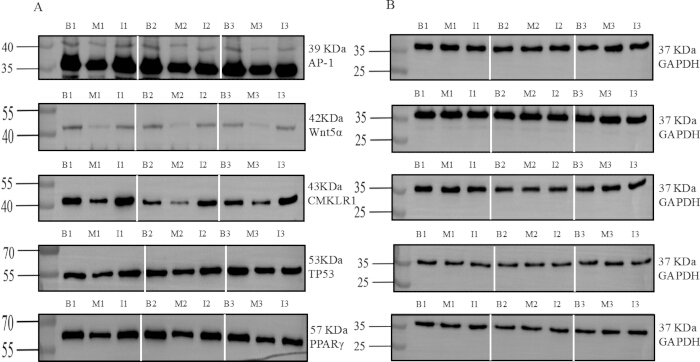
איור 6: תמונות מייצגות של blot בגווני אפור ב-WB עבור חלבונים רגולטוריים מרכזיים במעי הגס. (Aביטוי חלבוני מטרה: AP-1, Wnt5a, CMKLR1, TP53 ו-PPAR-γ; (B) בקרת טעינה: GAPDH. קווים לבנים אנכיים מפרידים בין סטים של חזרות (Rep1, Rep2, Rep3); סממני משקל מולקולרי (kDa) מצוינים בצד שמאל, ושמות החלבונים עם ה-kDa התואמים להם מופיעים בצד ימין. הנתיבים מסומנים כך: B1 (קבוצת ביקורת 1), M1 (קבוצת מודל 1), I1 (קבוצת התערבות 1); B2 (קבוצת ביקורת 2), M2 (קבוצת מודל 2), I2 (קבוצת התערבות 2); B3 (קבוצת ביקורת 3), M3 (קבוצת מודל 3), I3 (קבוצת התערבות 3). תמונות Western blot (WB) מלאות, ללא חיתוך, עם סממני משקל מולקולרי גלויים, סופקו כ- איור משלים 2. אנא לחץ כאן כדי לצפות בגרסה מורחבת של איור זה.
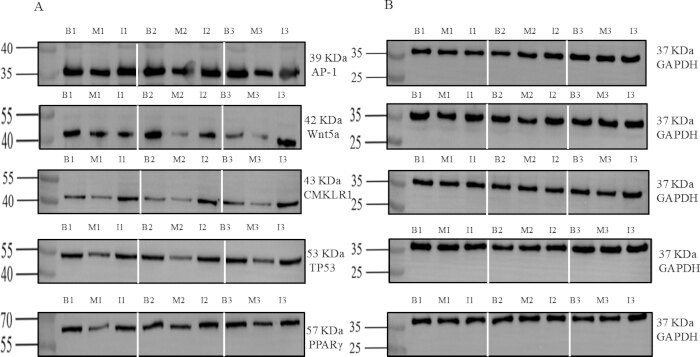
איור 7: תמונות גווני אפור מייצגות של WB עבור חלבוני בקרה מרכזיים ברשתית. (A>) ביטוי חלבוני מטרה: AP-1, Wnt5a, CMKLR1, TP53, ו-PPAR-γ; (B>) בקרת טעינה: GAPDH. קווים לבנים אנכיים מפרידים בין סדרות חזרות (Rep1, Rep2, Rep3); סממני משקל מולקולרי (kDa) מופיעים בצד שמאל, ושמות החלבונים עם ה-kDa המתאים להם מופיעים בצד ימין. הנמסים מסומנים כ: B1 (קבוצת ביקורת 1), M1 (קבוצת מודל 1), I1 (קבוצת התערבות 1); B2 (קבוצת ביקורת 2), M2 (קבוצת מודל 2), I2 (קבוצת התערבות 2); B3 (קבוצת ביקורת 3), M3 (קבוצת מודל 3), I3 (קבוצת התערבות 3). תמונות WB מלאות ללא חיתוך עם סממני משקל מולקולרי גלויים סופקו כ-איור משלים 2. לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
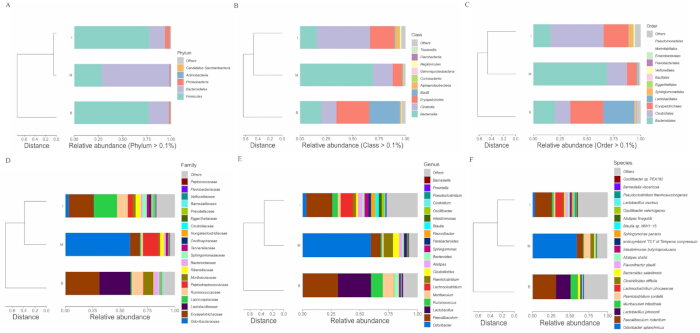
איור 8: אשכולה (Clustering) היררכית של הרכב מיקרוביוטת המעי ברמות שונות. דנדרוגרמה של אשכולה היררכית המבוססת על חוסר דמיון בראי-קרטיס (Bray-Curtis dissimilarity) בין ביקורת הריק (B), קבוצת המודל (M) וקבוצת ההתערבות (I). אורך הענף מייצג את מידת השונות המבנית. תרשים עמודות מוערמות המתאר את השפעיות היחסיות של מעמדות (phyla) דומיננטיים בשלוש הקבוצות. מעמדות שנמצאו מתחת לסף aggregated כ-"אחרים". (A) גרנולת Qiming (QMG) מאזנת מחדש את הרכב מיקרוביוטת המעי ברמת המעמד; (B) QMG מאזנת מחדש את הרכב מיקרוביוטת המעי ברמת המחלקה; (C) QMG מאזנת מחדש את הרכב מיקרוביוטת המעי ברמת הסדרה; (D) QMG מאזנת מחדש את הרכב מיקרוביוטת המעי ברמת המשפחה; (E) QMG מאזנת מחדש את הרכב מיקרוביוטת המעי ברמת הסוג; (F) QMG מאזנת מחדש את הרכב מיקרוביוטת המעי ברמת המין. קיצורים: B, קבוצת ריק; M, קבוצת מודל; I, קבוצת התערבות. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
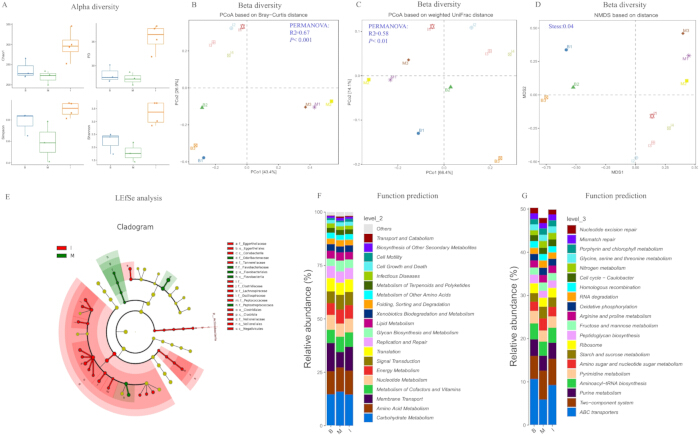
איור 9: ניתוח של גיוון מיקרוביוטת המעי, שפע דיפרנציאלי ומסלולים תפקודיים חזויים. (Aניתוח גיוון אלפא (Alpha diversity), שנערך באמצעות מדדי Chao1, PD, Simpson ו-Shannon, העלה כי בקבוצת ההתערבות נצפתה תagamanות מיקרוביאלית גבוהה יותר מאשר בקבוצת המודל, דבר המעיד על כך שטיפול ב-QMG משחזר ביעילות את העושר ואת השוויון של המיקרוביום במעי.Bניתוח בטא-גיוון (Beta diversity) שנערך באמצעות ניתוח רכיבים ראשיים (PCoA) המבוסס על מרחק Bray-Curtis חשף הבדלים מובהקים בין הקבוצות (PERMANOVA: R2=0.67, P < 0.001), מה שמעיד כי מודל ה-DR וההתערבות ב-QMG הסבירו חלק משמעותי מהשונות בהרכב הקהילה המיקרוביאלית. (Cניתוח בטא-גיוון (Beta diversity) שנערך באמצעות ניתוח רכיבים ראשיים של תיאום (PCoA) בהסתמך על מרחק שבר ייחודי משוקלל (weighted UniFrac), אישש עוד יותר את השינוי המשמעותי בקהילה (PERMANOVA: R2= 0.58, P < 0.01). (ד'ניתוח של בטא-מגוון (Beta diversity), שנערך באמצעות סידור של סקאלינג רב-ממדי לא-מטרי (NMDS), הראה ערך סטרס (stress value) של 0.04, מה שמעיד על כך שההתערבות ב-QMG שינתה באופן משמעותי את ההרכב הגלובלי של מיקרוביוטת המעי.הקלדוגרמה של ניתוח שכיחות דיפרנציאלית, שהוערכה באמצעות גודל אפקט של ניתוח מבחן מבחין ליניארי (LEfSe), חשפה את המיקרוביוטה הדיפרנציאלית העיקרית בין קבוצת המודל לקבוצת ההתערבות. חיזוי פונקציונלי של מיקרוביוטת המעי ברמת KEGG 2 (F) ו-KEGG Level 3 (Gהציעו כי ההתערבות לא רק עיצבה מחדש את ההרכב והמבנה הטקסונומי של מיקרוביוטת המעי, אלא גם שיקמה את קיבולת המטבוליזם הפונקציונלית שלה לכיוון מצב הומאוסטטי. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
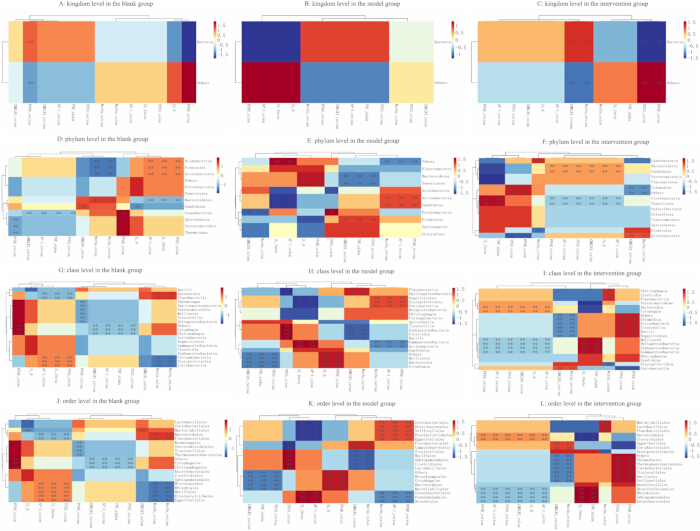
איור 10: קשר גלובלי של מיקרוביוטת המעי עם גורמים דלקתיים ורגולטוריים. (A) קשר של מיקרוביוטת המעי ברמת הממלכה (kingdom) בקבוצת הביקורת; (B) קשר של מיקרוביוטת המעי ברמת הממלכה בקבוצת המודל; (C) קשר של מיקרוביוטת המעי ברמת הממלכה בקבוצת ההתערבות; (D) קשר של מיקרוביוטת המעי ברמת המערכה (phylum) בקבוצת הביקורת; (E) קשר של מיקרוביוטת המעי ברמת המערכה בקבוצת המודל; (F) קשר של מיקרוביוטת המעי ברמת המערכה בקבוצת ההתערבות; (G) קשר של מיקרוביוטת המעי ברמת המחלקה (class) בקבוצת הביקורת; (H) קשר של מיקרוביוטת המעי ברמת המחלקה בקבוצת המודל; (I) קשר של מיקרוביוטת המעי ברמת המחלקה בקבוצת ההתערבות; (J) קשר של מיקרוביוטת המעי ברמת הסדרה (order) בקבוצת הביקורת; (K) קשר של מיקרוביוטת המעי ברמת הסדרה בקבוצת המודל; (L) קשר של מיקרוביוטת המעי ברמת הסדרה בקבוצת ההתערבות. אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
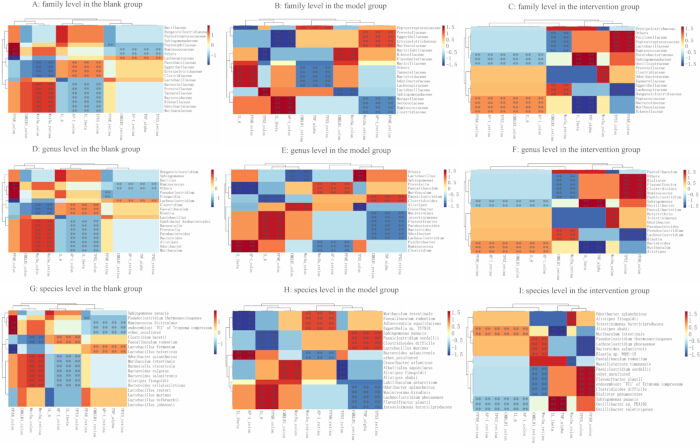
איור 11: קשר הדוק בין מיקרוביוטת המעי לבין גורמים דלקתיים ורגולטוריים. (A) התאגדות של מיקרוביוטת המעי ברמת המשפחה בקבוצת הביקורת; (B) התאגדות של מיקרוביוטת המעי ברמת המשפחה בקבוצת המודל. (C) קשרי מיקרוביוטת המעי ברמת המשפחה בקבוצת ההתערבות; (ד) קשרי גומלין של מיקרוביוטת המעי ברמת הסוג בקבוצת הביקורת; (ה) אסוציאציה של מיקרוביוטת המעי ברמת הסוג בקבוצת המודל; (ז') התאגמות של מיקרוביוטת המעי ברמת הסוג בקבוצת ההתערבות; (G) אסוציאציה של מיקרוביוטת המעי ברמת המין בקבוצת הביקורת; (ה) קשר של מיקרוביוטת המעי ברמת המין בקבוצת המודל; (I) התאגדות מיקרוביוטת המעי ברמת המין בקבוצת ההתערבות. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
| קבוצות (נ" = 6) | ספירת תאי רשתית גנגליוניים (RGCs) | עובי הרשתית |
| קבוצת ביקורת ריקה | 56.17 ± 5.382 | 195.50 ± 19.54 μm |
| קבוצת מודל | 32.00 ± 4.561#### | 142.30 ± 11.34 μm#### |
| קבוצת ההתערבות | 45.33 ± 2.066 ##*** | 173.00 ± 6.575 μm#** |
| p | <0.0001 | <0.0001 |
טבלה 2: ניתוח כמותי של ספירת תאי RGC ועובי הרשתית בשלוש קבוצות הניסוי. הנתונים מוצגים כממוצע ± SD (n = 6 לכל קבוצה). בהשוואה לקבוצת הביקורת (blank): #P <0.05, ##P <0.01, ####P <0.0001; בהשוואה לקבוצת המודל: **P <0.01, ***P <0.001.
| קבוצות (נ = 6) | IL-1β | IL-6 | TNF-α |
| קבוצת ביקורת ריקה | 14.31 ± 2.28 | 12.48 ± 1.774 | 7.728 ± 2.048 |
| קבוצת מודל | 62.88 ± 2.01#### | 80.95 ± 2.247#### | 49.00 ± 3.647#### |
| קבוצת ההתערבות | 21.7 ± 1.654**** | 23.27 ± 2.074**** | 12.35 ± 1.891**** |
| P | <0.0001 | <0.0001 | <0.0001 |
טבלה 3: רמות ביטוי בסרום של IL-1β, IL-6 ו-TNF-α בשלוש קבוצות הניסוי. הנתונים מוצגים כממוצע ± SD (n = 6 לכל קבוצה). ריכוזי הסייטוקינים נקבעו באמצעות בדיקת ספיחה חיסונית תלוית אנזים (ELISA) ומדווחים ב-pg/mL. בהשוואה לקבוצת הביקורת (blank): ####P < 0.0001; בהשוואה לקבוצת המודל: ****P < 0.0001.
איור משלים 1: תכנון ניסיוני ולוח זמני של המחקר. סכימה סכמטית של התכנון הניסיוני.אנא לחצו כאן להורדת הקובץ.
איור משלים 2: תמונות WB מקוריות, באורכן המלא וללא חיתוך, המתאימות לאיור 6 ו-איור 7. תמונות גולמיות ללא שינויים הכוללות את כל סמני המשקל המולקולרי בבלאוטים (blots) של המעי הגס והרטנה עבור AP-1, Wnt5a, TP53, CMKLR1, PPAR-γ ובקרת הטענה GAPDH. סמני המשקל המולקולרי (kDa) מצוינים. הנתיבים מסומנים כך: B1 (קבוצת ביקורת 1), M1 (קבוצת מודל 1), I1 (קבוצת התערבות 1); B2 (קבוצת ביקורת 2), M2 (קבוצת מודל 2), I2 (קבוצת התערבות 2); B3 (קבוצת ביקורת 3), M3 (קבוצת מודל 3), I3 (קבוצת התערבות 3). הבלאוטים המקוריים לא עברו התאמות של ניגודיות גבוהה.אנא לחצו כאן להורדת קובץ זה.
קובץ משלים 1: ניתוחי מתאם מפורטים של מיקרוביוטת המעי עם גורמים דלקתיים וויסותיים.אנא לחץ כאן להורדת קובץ זה.
דיון
רטינופתיה סוכרת (DR) היא סיבוך נוירו-וסקולרי מורכב המונע על ידי היפרגליקמיה כרונית, דלקת ובאלנס מטבולי משובש22. האקדמיה האמריקאית an Ophthalmology מסווגת את ה-DR לרטינופתיה סוכרת לא-פרוליפרטיבית ורטינופתיה סוכרת פרוליפרטיבית, המאופיינת בהופעת נאו-וסקולריזציה23. לאור המגבלות של האסטרטגיות הטיפוליות הנוכחיות, חקירת מנגנונים חדשים הפכה לכיוון מבטיח לטיפול ב-DR. בפרט, פריצות דרך אחרונות זיהו את ציר המעי-רשתית כנקודת יעד טיפולית קריטית, אך לא מנוצלת מספיק, עבור DR. ציר המעי-רשתית, שהוצג ותואר לראשונה על ידי Sheldon Rowan בשנת 20176, זכה לפופולריות בהבנת התהליכים הפתופיזיולוגיים של מחלות עיניים. עם זאת, המנגנונים המולקולריים הספציפיים העומדים בבסיס תפקידו של ציר המעי-רשתית בפתוגנזה ובהתקדמות ה-DR נותרו לא ברורים, דבר המעכב את הפיתוח והיישום הקליני של אסטרטגיות טיפוליות המכוונות לציר זה.
במחקר זה, הערכנו באופן שיטתי את היעילות ואת המנגנונים שבבסיס הפעולה של QMG כנגד DR. ממצאים אלה מספקים ראיות ראשוניות לכך ש-QMG מקל על נזק היסטופתולוגי רשתי, מדכא דלקת מערכתית, משחזר את ההומאוסטזיס של מיקרוביוטת המעי, ומבצע מודיולציה דו-כיוונית של חלבונים רגולטוריים מרכזיים (רשת הרגולציה הממוקדת ב-CMKLR1) הן במעי הגס והן ברשתית, ובכך מבסס את QMG כמודולטור פוטנציאלי של ציר המעי-רשתית. דלקת מערכתית כרונית בדרגה נמוכה היא סימן היכר של DM ומניע מרכזי לנזק מיקרו-וסקולרי רשתי ולהתקדמות של DR24. תוצאות ה-ELISA הדגימו כי רמות סרום של IL-1β, IL-6 ו-TNF-α היו גבוהות באופן משמעותי בעכברי מודל DR (P < 0.0001), מה שמאשר את קיומה של תגובה דלקתית מערכתית חזקה במצב של DR. שחרור בלתי נשלט של ציטוקינים אלו עלול לשבש את מחסום הדם-רשתית, לעודד אפו פטוזיס של RGC ולהניע נאו-וסקולריזציה פתולוגית. בעקבות התערבות ב-QMG, רמות ציטוקינים אלו ירדו באופן משמעותי (P < 0.0001), בעוד שהשלמות המבנית של הרשתית שוחזרה, הישרדות RGC עלתה ועובי הרשתית נשמר. תוצאות אלו מעידות כי ההשפעות המגנות על הרשתית של QMG קשורות קשר הדוק לפעילותו האנטי-דלקתית המערכתית העוצמתית. באופן בולט, השפעה אנטי-דלקתית מערכתית זו אינה מתרחשת באופן מבודד, אלא היא מצומדת למודיולציה של מיקרוביוטת המעי המתווכת על ידי QMG ולשיקום של חלבונים רגולטוריים מרכזיים במעי הגס, מה שמרמז כי QMG עשוי להפעיל את השפעותיו הטיפוליות דרך ציר של "מעי-דלקת מערכתית-רשתית".
כדי להבהיר יותר את המנגנון המולקולרי שבאמצעותו QMG מפעיל את השפעותיו נגד DR לאורך ציר המעי-רשתית, נבדק ביטוי החלבון של הרשת הרגולטורית הממוקדת ב-CMKLR1 (הכוללת את CMKLR1, Wnt5a, TP53, AP-1 ו-PPAR-γ) הן ברקמות המעי הגס והן ברקמות הרשתית. התוצאות הראו כי לאחר השראת מודל DR, כל חמשת החלבונים הראו מגמה יורדת עקבית הן במעי הגס והן ברשתית, מה שמרמז כי תקשורת האותות בין המעי לרשתית עשויה להיות חסומה באופן מערכתי בתנאי DR. בעקבות התערבות עם QMG, ביטוי CMKLR1 היה מוגבר משמעותית הן במעי הגס והן ברשתית (P < 0.05 ו-P < 0.01), מה שמעיד על כך ש-QMG עשוי לשקם את התקשורת הדו-כיוונית לאורך ציר המעי-רשתית באמצעות הפעלה מערכתית של CMKLR1. בנוסף, QMG שיקם באופן משמעותי את הביטוי של AP-1 ו-Wnt5a במעי הגס, וכן את ביטוי TP53 ברשתית, מה שמרמז כי חלבונים שונים עשויים למלא תפקידים פונקציונליים ספציפיים לרקמה לאורך הציר: AP-1 ו-Wnt5a הם מגיבים רגישים יותר ל-QMG במעי הגס, בעוד ש-TP53, כווסת אפוֹפְּּטוֹזָה, ממלא תפקיד קריטי יותר בנוירו-הגנה של הרשתית. ניתוח מתאם נוסף גילה כי ביטוי של AP-1, CMKLR1, PPAR-γ ו-Wnt5a במעי הגס נמצא במתאם שלילי משמעותי עם רמות ציטוקינים דלקתיים מערכתיים (IL-1β, IL-6, TNF-α) (P < 0.05 עד P < 0.001), בעוד שלא נצפה מתאם ישיר בין ציטוקינים בנסיב לבין ביטוי חלבונים ברשתית. חוסר התאמה זה נושא השלכות מנגנוניות חשובות: QMG עשוי לפעול בעיקר על מיקרו-הסביבה של המעי על ידי שיקום הביטוי של חלבונים רגולטוריים מרכזיים במעי הגס, ובכך לדכא דלקת מערכתית; לעומת זאת, התאוששות חלבונים ברשתית עשויה להיות מושגת דרך נתיבים עקיפים, כגון מעבר של מטבוליטים המופקים ממיקרוביוטת המעי למחזור הדם, אשר לאחר מכן מווסתים מרחוק קשקשי אותות ברשתית, ולא בתיווך ישיר של גורמים דלקתיים מערכתיים. ממצא זה תומך במודל ויסות של "מעי-דלקת מערכתית-רשתית" ומספק ראיה מנגנונית מרכזית להשפעה הטיפולית של QMG על DR דרך ציר המעי-רשתית. מבין המטרות שנבדקו, CMKLR1 הראה שינויים משמעותיים הן ברקמות הרשתית והן ברקמות המעי הגס, והבזיק כסמן ביולוגי ראשוני פוטנציאלי המקשר בין ציר המעי-רשתית. CMKLR1 היה מעורב במטבוליזם של גליקוליפידים, בחומרת DR ובויסות מיקרוביוטת המעי במחקרים קודמים25,26,27,28,29,30, מה שמרמז כי ביטויו הדיפרנציאלי לאורך ציר המעי-רשתית עשוי לשקף את מעורבותו בתהליכים פתולוגיים מרובים. ממצאים אלה מציבים את CMKLR1 כמועמד מבטיח לסמן ביולוגי לאבחון DR ולהתערבות טיפולית, מה שמצדיק תיקוף מנגנוני נוסף.
בעוד ש-CMKLR1 מתפקד כצומת מרכזי בציר המעי–רשתית, ההשפעה הטיפולית של QMG מושגת באמצעות רשת רגולטורית רב-ממדית שבה Wnt5a, TP53, AP-1 ו-PPAR-γ מספקים תמיכה סינרגית חיונית. סיגנל Wnt הוא קריטי להומאוסטזיס של אפיתל המעי ולבריאות המעי הגס, כולל תפקידיו בשמירה על שלמות האפיתל, במודולציה של דלקת ובהגנה על הרירית המתווכת על ידי המיקרוביוטה31,32,33,34. PPAR-γ מווסת תגובות דלקתיות ונמצא כי הוא מעכב פגוציטים המופעלים על ידי ליפידים ב-DR ומקדם את הישרדות הפוטורצפטורים באמצעות מודולציה של מיקרוגליה35,36,37. AP-1 משמש כגורם שעתוק שדרכו מטבוליטים של מיקרוביום המעי, כגון deoxycholic acid, משפיעים על הומאוסטזיס דלקתי וחיסוני38,39,40,41. TP53 מעורב באוטופגיה, אפופטוזיס ובפגיעה נוירונלית רשתית בתנאי היפרגליקמיה42,43,44,45. יחד, צמתי סיגנל אלו יוצרים רשת מקושרת הקושרת בין דינמיקת מיקרוביום המעי לבין פתולוגיה רשתית, מה שהניע אותנו לבחון האם QMG מווסת רשת זו לאורך ציר המעי–רשתית.
מנגנון מרכזי שבאמצעותו מוסדרת דלקת מערכתית מקורו במערכת האקולוגית של המעי. ניתוח רצף 16S rDNA חשף דיסביוזיס מבני המונע על ידי סוכרת בקבוצת המודל, אשר התאפיין בחוסר איזון משמעותי ביחס בין Firmicutes/Bacteroidetes, העשרה של טקסונים פתוגניים פוטנציאליים (למשל, Odoribacter ו-Clostridioides), ודלדול של טקסונים מועילים (למשל, Lactobacillus ו-Faecalibaculum). באופן מרשים, טיפול ב-QMG פעל כחומר משחזר של המיקרוביוטה כדי להפוך שינויים פתולוגיים אלו על ידי: (i) שחזור ההומאוסטזיס המיקרוביאלי: נרמול הפרופורציות של משפחות וסוגים מרכזיים (Faecalibaculum, Ruminococcus, Erysipelotrichaceae) לכיוון קו הבסיס של קבוצת הביקורת; (ii) מודולציה ממוקדת של פתוביונטים: הפחתת הצמיחה המוגברת של Odoribacter splanchnicus ו-Clostridioides difficile הקשורה לסוכרת; (iii) קידום הרכבת קהילה מועילה: השראה של התרבות טקסונים אנטי-דלקתיים או כאלה המייצרים מטבוליטים, כגון Lachnoclostridium, Blautia, ו-Flavonifractor plautii. יתרה מכך, ניתוחי גיוון וניתוח מתאם ספירמן ברמות מרובות הצביעו על כך שהתערבות QMG מאזנת ביעילות את ההרכב הרב-שכבתי הליבתי באופן המעדיף אינטראקציות מגנות בין המאכסן למיקרובים לאורך ציר המעי-רשתית. תוצאה זו לא רק מאשרת את ההשפעה הרגולטורית של QMG על מיקרוביוטת המעי, אלא חושפת גם אסטרטגיה טיפולית פוטנציאלית שבה QMG מתאם את עיצוב המיקרוביוטה מחדש עם הפעילות של חלבוני בקרה מרכזיים (למשל, IL-6, TP53) כדי לדכא במשותף דלקת מערכתית ובכך להקל על רטינופתיה סוכרתית.
מחקרים אחרונים יש הוכח כי הרפואה הסינית המסורתית (TCM) מפעילה רגולציה רב-מטרתית על ציר המיקרוביוטה-מטבוליזם-מערכת החיסון, דבר המבדיל אותה מחומרים פרמצבטיים בעלי מטרה אחת.46ראיות מצטברות הוכיחו את הפוטנציאל הטיפולי של QMG ברטינופתיה סוכרתית (DR) ובמצבים עיניים קשורים. ניסוי מבוקר אקראי רב-מרכזי הראה כי QMG הפחית באופן משמעותי את זמן זרימת הדם העורקי-ורידי ברשתית אצל חולים עם DR, דבר המצביע על שיפור בזרימת הדם לרשתית ובהיפוקסיה.47מטא-אנליזות אישרו עוד כי שילוב של QMG עם טיפול קונבנציונלי שיפר באופן משמעותי את העובי המרכזי של המקולה, את חדות הראייה ואת שיעור היעילות הכללי בבצקת מקולרית סוכרתית.48, וכן זמן פירוק ממושך יותר של שכבת הדמעות והגברת הפרשת הדמעות במטופלים עם מחלת עין יבשה49במטופלים עם פגיעה עצבית הקשורה לרטינופתיה סוכרתית שאינה proliferative (NPDR), QMG הדגים אי-נחירות (non-inferiority) לעומת calcium dobesilate בשימור עובי שכבת סיבי העצב ברשתית ואזור חסר כלי דם פובאלי (foveal avascular zone).50מחקרים מכניסטיים גילו כי QMG מגן מפני נזק לרשתית באמצעות מספר מסלולים, כולל עיכוב של פירופטוזיס (pyroptosis) בתאי מילר (Müller cells) ודלקת חיסונית באמצעות מסלול P2X7R/NLRP3.51, הפעלה של מסלול האיתות PI3K/Akt להפחתת אפופטוזיס, ו modulates של חלבוני צומת הדוקה (tight junction proteins) לשמירה על שלמות מחסום הדם-רשתית52ניתוחי פרמקולוגיה רשתית זיהו מספר תרכובים ביו-אקטיביים ב-QMG הפועלים באופן סינרגי על מטרות הקשורות ל-DR.16ומחקרים קליניים לא דיווחו על תופעות לוואי חמורות, מה שמעיד על פרופיל בטיחות חיובי50היעילות הטיפולית של QMG מיוחסת לפעולות הסינרגיסטיות של מרכיביה הפעילים, הכוללים quercetin, kaempferol, isorhamnetin, formononetin ו- β‑סיטוסטרול, אשר יחד מפעילים השפעות אנטי-דלקתיות, נוגדות חמצון ואנטי-אפופטוטיות על ידי targeting של IL-6 ו-TNF-α, TP53, ו-AP-153,54,55,56,57,58,59המחקר הנוכחי מרחיב ידע זה בכך שהוא מדגים כי ההשפעות המגנות של QMG מתווכות גם באמצעות ויסות של ציר המעי-רשתית, ובמיוחד על ידי השבת ההומיאוסטזיס של מיקרוביוטת המעי וויסות הרשת המולקולרית הממוקדת ב-CMKLR1 כדי לדכא דלקת סיסטמית ולהקל על הנזק לרשתית.
יש לציין מספר מגבלות במחקר זה, המצדיקות חקירה נוספת במחקרים עתידיים. ראשית, הקשר הסיבתי בין שינויים במיקרוביוטה של המעי לבין שיפורים תפקודיים ברשתית דורש תיקוף נוסף. למרות שנצפו מתאמים חזקים בין עיצוב מחדש של המיקרוביוטה המושרה על ידי QMG לבין פנוטיפים מגני רשתית, ניסויים להסקה סיבתית ישירה, כגון השתלת מיקרוביוטה צואתית, מודלים של בעלי חיים נקיים ממיקרוביום (germ-free) או דילול מיקרוביוטה המושרה על ידי אנטיביוטיקה, יהיו בעלי ערך לאישור קשר זה במחקרים עתידיים. שנית, נעשה שימוש בריצוף 16S rDNA לאפיון ההרכב המיקרוביאלי, המספק רזולוציה טקסונומית נאותה ברמת הסוג ומעלה, אך בעל יכולת מוגבלת לספק מידע פונקציונלי ברמת הזן או פוטנציאל מטבולי מדויק. ריצוף מטאגנומי או אנליזות מטבולומיות יבוצעו במחקרים הבאים כדי לזהות את המסלולים הפונקציונליים המיקרוביאליים המרכזיים המווסתים על ידי QMG. שלישית, שינויים מיקרוביאליים הוערכו רק בנקודת הסיום של הניסוי, מה שמנע מעקב דינמי אחר האבולוציה הזמנית של בניית המיקרוביוטה מחדש במהלך ההתערבות ב-QMG. דגימה אורךית במחקרים עתידיים תסייע לאפיין את הקינטיקה של עיצוב המיקרוביוטה המונחה על ידי QMG ואת הקשר הזמני שלה להגנה על הרשתית. רביעית, למרות שהאנליזה ההיסטופתולוגית זיהתה הידקקות של הרשתית, אובדן של RGC וצמיחת תפנות ניאובסקולריות (neovascular tufts), מחקרים עתידיים צריכים לבחון פרוטוקולים של הזרקת STZ במינונים מרובים ומודלים של סוכרת גנטית, וכן לספק אפיון מקיף יותר של הפנוטיפ של DR.
לסיכום, מחקר זה מדגים כי QMG משפר רטינופתיה סוכרתית (DR) על ידי קישור הרשת המולקולרית הממוקדת ב-CMKLR1 לדלקת מערכתית דרך ציר המעי-רשתית. מנגנון הפעולה של QMG בא לידי ביטוי בשלוש רמות: ברמת המיקרוביום, QMG הופך את הדיסביוזה במעי המושרה על ידי סוכרת (למשל, שחזור היחס בין Firmicutes ל-Bacteroidetes, דיכוי של Odoribacter ו-Clostridioides, וקידום חיידקים מועילים כגון Faecalibaculum); ברמה המולקולרית, QMG מווסת את נתיב ה-CMKLR1/Wnt5a/PPAR-γ/AP-1/TP53 ומקל על דלקת מערכתית; ברמת הרקמה, QMG מגן על המורפולוגיה של הרשתית. ממצאים אלו תומכים ב-QMG כאסטרטגיה טיפולית מבטיחה של ציר המעי-רשתית עבור DR, ומספקים בסיס מכניסטי ליישום של רפואה סינית מסורתית (TCM) בטיפול בסיבוכים של סוכרת.
גילויים
המחברים מצהירים כי אין להם ניגודי אינטרסים כספיים ידועים או מערכות יחסים אישיות שעלולות היו להיראות כמשפיעות על העבודה המדווחת במאמר זה.
תודות
המחבר מעוניין להודות לכל חברי הצוות שסיפקו תמיכה וסיוע רבים להשלמת מחקר זה.
מחקר זה נתמך על ידי הקרן הלאומית למדעים טבעיים של סין (מספר מענק: 82474580), ופרויקט חקר חופשי של קרן בית החולים בבית החולים של אוניברסיטת צ'נגדו לרפואה סינית מסורתית (מספר 23ZYTS1601).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| נוגדן מונוקלונאלי ל-AP-1 | Proteintech | 66313-1-IG | 1:5000 |
| נוגדן פוליקלונלי ל-CMKLR1 | זיקה | AF5291 | 1:1000 |
| נוגדן פוליקלונלי ל-GAPDH | זיקה | AF7021 | 1:5000 |
| GoatAnti-Mouse IgG(H+L) HRP | מדעי רב-תחומיים | GAM0072 | 1:10000 |
| GoatAnti-Rabbit IgG(H+L) HRP | מדעי רב-תחומיים | GAR0072 | 1:10000 |
| GraphPad Prism | / | גרסה 9.5 | |
| Image-Pro Plus | Media Cybernetics, Inc., רוקוויל, מרילנד, ארה"ב | גרסה 6.0 | |
| פלטפורמת Luoning Bio-Cloud | http://www.biomediv.cn/login.html | ||
| IL-1 של עכברβערכה לבדיקת ELISA (אינטרלוקין 1 בטא) | Elabscience | E-EL-M0037 | זיהוי ציטוקינים בסרום |
| ערכה לבדיקת ELISA של IL-6 (אינטרלוקין-6) בעכברים | Elabscience | E-EL-M0044 | זיהוי ציטוקינים בסרום |
| TNF של עכבר-αערכה ל-ELISA עבור (Tumor Necrosis Factor Alpha) | Elabscience | E-EL-M3063 | זיהוי ציטוקינים בסרום |
| NanoFilt | / | גרסה 2.7.1 | |
| רצף Nanopore GridION | Oxford Nanopore Technologies | https://store.nanoporetech.com/gridion.html | |
| Pannoramic SCAN II | סורק 3DHISTECH Pannoramic SCAN | סורק דיגיטלי Pannoramic Scan II | |
| PPAR גמא (PPAR-γנוגדן פוליקלונלי | ImmunoWay | bs-0530R | 1:1000 |
| פייתון | / | גרסה 3.7.4 | |
| גרנולות קימינג (Qiming Granule) | Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. | מספר אישור תרופות לאומי סיני Z20090036 | 0.9 גרם/ק"ג, הזנה פומית (oral gavage) |
| שפת התכנות R | / | גרסה 4.0.3 | |
| מאגר הנתונים SILVA | / | גרסה 138 | |
| סטרפטוזוטוצין (STZ) | Sigma-Aldrich | S0130 | 35 מ"ג/ק"ג, i.p. |
| נוגדן פוליקלונלי ל-TP53 | Abcam | ab131442 | 1:1000 |
| Usearch | / | גרסה 10.0.240 | |
| נוגדן פוליקלונלי ל-Wnt5a | Proteintech | 55184-1-AP | 1:1000 |
| ערכה לבידוד DNA מכמות קטנה (Microprep) מסדרת BIOMICS של Zymo Research | Zymo Research | D4301 | מיצוי gDNA מצואה |
מקורות
- Lei C, et al. Homocysteine and diabetic retinopathy. Exp Eye Res. 2026;262:110729.
- Owens DR, et al. IDF diabetes Atlas: A worldwide review of studies utilizing retinal photography to screen for diabetic retinopathy from 2017 to 2024 inclusive. Diabetes Res Clin Pract. 2025;226:112346.
- Zhu J, Huang J, Sun Y, Xu W, Qian H. Emerging role of extracellular vesicles in diabetic retinopathy. Theranostics. 2024;14(4):1631–1646.
- Xie L, Lin W. The role of gut microbiota dysbiosis in the inflammatory pathogenesis of diabetic retinopathy. Front Immunol. 2025;16:1604315.
- Niu J, Liu Y, Peng H, Chen J, Chen L. Early-stage diabetic retinopathy: gut-metabolic triggers, immune-neurodegeneration, and interventions. Graefes Arch Clin Exp Ophthalmol. 2025;263(10):2723–2736.
- Rowan S, et al. Involvement of a gut-retina axis in protection against dietary glycemia-induced age-related macular degeneration. Proc Natl Acad Sci U S A. 2017;114(22):E4472–E4481.
- Rzeczycki P, Pęciak O, Plust M, Droździk M. Gut Microbiota in the Regulation of Intestinal Drug Transporters: Molecular Mechanisms and Pharmacokinetic Implications. Int J Mol Sci. 2025;26(24):11897.
- Yang H, et al. Mediating role of aging and obesity in the relationship between dietary index for gut microbiota and metabolic syndrome and its potential regulatory mechanisms. Eur J Med Res. 2025;31(1):137.
- Zahavi EE, et al. Repeat-element RNAs integrate a neuronal growth circuit. Cell. 2025;188(16):4350–4365.e22.
- Dander E, et al. The chemerin/CMKLR1 axis regulates intestinal graft-versus-host disease. JCI Insight. 2023;8(5):e154440.
- Zhang J, et al. Therapeutic targets in the Wnt signaling pathway: Treating cancer with specificity. Biochem Pharmacol. 2025;236:116848.
- Liu M, Lim ST, Song W, Coffman TM, Wang X. Beyond lipids: fenofibrate in diabetic retinopathy and nephropathy. Trends Pharmacol Sci. 2026;47(3):325–341.
- Wu Y, et al. The active ingredient β-sitosterol in the anti-inflammatory agents alleviates perianal inflammation in rats by inhibiting the expression of Srebf2, activating the PPAR signaling pathway, and altering the composition of gut microbiota. Int Immunopharmacol. 2025;152:114470.
- Lin T, Chen C, Zhao LC, Zhu HY, Li W. The beneficial effects of Traditional Chinese Medicine on diabetic retinopathy: mechanisms, therapeutics, and prospects. Acupunct Herb Med 2026;6(2):188–204.
- Huo J, et al. Evaluation of individualized treatment of nonproliferative diabetic retinopathy: a multicenter, randomized, parallel-controlled study. J Tradit Chin Med. 2022;42(1):90–95.
- Huang Y, et al. Pharmacological mechanism and clinical study of Qiming granules in treating diabetic retinopathy based on network pharmacology and literature review. J Ethnopharmacol. 2023;302(Pt A):115861.
- Salma B, et al. Ameliorative Efficacy of the Cassia auriculata Root Against High-Fat-Diet + STZ-Induced Type-2 Diabetes in C57BL/6 Mice. ACS Omega. 2020;6(1):492–504.
- Srinivasan K, Viswanad B, Asrat L, Kaul CL, Ramarao P. Combination of high-fat diet-fed and low-dose streptozotocin-treated rat: a model for type 2 diabetes and pharmacological screening. Pharmacol Res. 2005;52(4):313–320.
- Liu Y, Deng J, Fan D. Ginsenoside Rk3 ameliorates high-fat-diet/streptozocin-induced type 2 diabetes mellitus in mice via the AMPK/Akt signaling pathway. Food Funct. 2019;10(5):2538–2551.
- Hu RY, et al. AFG Ameliorates Diabetic Retinopathy through AMPK-Dependent Autolysosomal Pathway: From Network Pharmacology to In Vivo and In Vitro Validation. J Agric Food Chem. 2026;74(2):2124–2139.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659–661.
- Zou Q, et al. Oxidative stress in diabetic retinopathy. Clin Chim Acta. 2026;584:120871.
- Clements JN, Mesawich J, Twisdale C. Current and Emerging Pharmacologic Therapies for Diabetic Retinopathy. Pharmacotherapy. 2026;46(3):e70119.
- Rezvani Z, Khani F, Afarid M, Asadian F, Takhshid MA. Clinical values of systemic inflammatory indices in diabetic retinopathy. Clin Exp Optom. 2026;109(3):371–385.
- Zhu Z, et al. Targeting the CMKLR1-Mediated Signaling Rebalances Immunometabolism State in Middle-Age Testicular Macrophages. Adv Sci (Weinh). 2026;13(14):e15166.
- Lin Y, et al. Epithelial chemerin-CMKLR1 signaling restricts microbiota-driven colonic neutrophilia and tumorigenesis by up-regulating lactoperoxidase. Proc Natl Acad Sci U S A. 2022;119(29):e2205574119.
- Puthanmadhom Narayanan S, et al. Epigenetic Alterations Are Associated With Gastric Emptying Disturbances in Diabetes Mellitus. Clin Transl Gastroenterol. 2020;11(3):e00136.
- Wang L, et al. Chemerin/CMKLR1 Axis Promotes the Progression of Proliferative Diabetic Retinopathy. Int J Endocrinol. 2021;2021:4468625.
- Zheng C, et al. α-NETA down-regulates CMKLR1 mRNA expression in ileum and prevents body weight gains collaborating with ERK inhibitor PD98059 in turn to alleviate hepatic steatosis in HFD-induced obese mice but no impact on ileal mucosal integrity and steatohepatitis progression. BMC Endocr Disord. 2023;23(1):9.
- Dranse HJ, et al. The impact of chemerin or chemokine-like receptor 1 loss on the mouse gut microbiome. PeerJ. 2018;6:e5494.
- Flores-Hernández E, et al. Canonical and non-canonical Wnt signaling are simultaneously activated by Wnts in colon cancer cells. Cell Signal. 2020;72:109636.
- Qi Y, et al. Heat-inactivated Bifidobacterium adolescentis ameliorates colon senescence through Paneth-like-cell-mediated stem cell activation. Nat Commun. 2023;14(1):6121.
- Ou W, et al. Cooperation of Wnt/β-catenin and Dll1-mediated Notch pathway in Lgr5-positive intestinal stem cells regulates the mucosal injury and repair in DSS-induced colitis mice model. Gastroenterol Rep (Oxf). 2024;12:goae090.
- Dong Y, et al. Berberine ameliorates DSS-induced intestinal mucosal barrier dysfunction through microbiota-dependence and Wnt/β-catenin pathway. Int J Biol Sci. 2022;18(4):1381–1397.
- Escandon P, et al. The role of peroxisome proliferator-activated receptors in healthy and diseased eyes. Exp Eye Res. 2021;208:108617.
- Blot G, et al. Perilipin 2-positive mononuclear phagocytes accumulate in the diabetic retina and promote PPARγ-dependent vasodegeneration. J Clin Invest. 2023;133(19):e161348.
- Zhou W, et al. TREM2-dependent activation of microglial cell protects photoreceptor cell during retinal degeneration via PPARγ and CD36. Cell Death Dis. 2024;15(8):623.
- Bala Kumar S, et al. Gut microbial metabolites targeting JUN in renal cell carcinoma via IL-17 signaling pathway: network pharmacology approach. Mol Divers. 2026;30(1):613–632.
- Wang L, et al. Gut microbial bile acid metabolite skews macrophage polarization and contributes to high-fat diet-induced colonic inflammation. Gut Microbes. 2020;12(1):1–20.
- Hagan T, et al. Antibiotics-Driven Gut Microbiome Perturbation Alters Immunity to Vaccines in Humans. Cell. 2019;178(6):1313–1328.e13.
- Meng Y, et al. Jinlida ameliorates diabetic kidney disease via gut microbiota-dependent production of pyridoxamine targeting renal AGEs/RAGE and TGF-β pathways. Phytomedicine. 2026;150:157744.
- Zhou H, Zhang L, Ding C, Zhou Y, Li Y. Upregulation of HMOX1 associated with M2 macrophage infiltration and ferroptosis in proliferative diabetic retinopathy. Int Immunopharmacol. 2024;134:112231.
- Mohammad HMF, et al. Neuroprotective effect of levetiracetam in mouse diabetic retinopathy: Effect on glucose transporter-1 and GAP43 expression. Life Sci. 2019;232:116588.
- Peng H, et al. Autophagy and senescence of rat retinal precursor cells under high glucose. Front Endocrinol (Lausanne). 2023;13:1047642.
- Ding Y, Chen L, Xu J, Feng Y, Liu Q. APAF1 Silencing Ameliorates Diabetic Retinopathy by Suppressing Inflammation, Oxidative Stress, and Caspase-3/GSDME-Dependent Pyroptosis. Diabetes Metab Syndr Obes. 2024;17:1635–1649.
- Yang T, et al. Clinical study on the modulating effects of Jiaotaiwan on the modulating effects of microbiota–SCFAs–neurotransmitter/immune axis in patients with depression. Acupunct Herb Med 2025;5(4):456–468.
- Luo XX, et al. Effect of qiming granule on retinal blood circulation of diabetic retinopathy: a multicenter clinical trial. Chin J Integr Med. 2009;15(5):384–388.
- Hu Z, et al. Add-on effect of Qiming granule, a Chinese patent medicine, in treating diabetic macular edema: A systematic review and meta-analysis. Phytother Res. 2021;35(2):587–602.
- Yang M, et al. The Efficacy and Safety of Qiming Granule for Dry Eye Disease: A Systematic Review and Meta-Analysis. Front Pharmacol. 2020;11:580.
- Ma XF, et al. Efficacy and Safety of Qiming Granule for Nerve Injury Associated with Non-proliferative Diabetic Retinopathy: A Multicenter, Randomized, Non-inferiority, Active-Controlled Clinical Trial. Chin J Integr Med. 2026;32(3):195–203.
- Zhou Q, et al. Qiming granules regulate Müller cell pyroptosis and the P2X7R/NLRP3 immune inflammatory pathway in diabetic retinopathy. Chin Med. 2026;21(1):89.
- Zhou L, Qin T, Lv Y, Wu Z. Qiming Granules Ameliorate Diabetic Retinopathy by Regulating the PI3K/Akt Signaling Pathway. J Ocul Pharmacol Ther. 2026;42(3):202–212.
- Li HD, Li MX, Zhang WH, Zhang SW, Gong YB. Effectiveness and safety of traditional Chinese medicine for diabetic retinopathy: A systematic review and network meta-analysis of randomized clinical trials. World J Diabetes. 2023;14(9):1422–1449.
- Chen F, et al. Isorhamnetin promotes functional recovery in rats with spinal cord injury by abating oxidative stress and modulating M2 macrophages/microglia polarization. Eur J Pharmacol. 2021;895:173878.
- Naudhani M, Thakur K, Ni ZJ, Zhang JG, Wei ZJ. Formononetin reshapes the gut microbiota, prevents progression of obesity and improves host metabolism. Food Funct. 2021;12(24):12303–12324.
- Qu Y, et al. Kaempferol Alleviates Murine Experimental Colitis by Restoring Gut Microbiota and Inhibiting the LPS-TLR4-NF-κB Axis. Front Immunol. 2021;12:679897.
- Saikia L, et al. Therapeutic Potential of Quercetin in Diabetic Neuropathy and Retinopathy: Exploring Molecular Mechanisms. Curr Top Med Chem. 2024;24(27):2351–2361.
- Yao H, et al. Kaempferol Protects Blood Vessels From Damage Induced by Oxidative Stress and Inflammation in Association With the Nrf2/HO-1 Signaling Pathway. Front Pharmacol. 2020;11:1118.
- Zhang HX, Li YY, Liu ZJ, Wang JF. Quercetin effectively improves LPS-induced intestinal inflammation, pyroptosis, and disruption of the barrier function through the TLR4/NF-κB/NLRP3 signaling pathway in vivo and in vitro. Food Nutr Res. 2022;66:10.