פרוטוקול זה מבסס שיטה ניתנת לשחזור להפקת תרחיפי תאים בודדים בעלי חיוניות גבוהה מרקמות של בלוטת החלב ומגידולים בשדיים של עכברים, השומרת על אפיטופים על פני השטח של התא לצורך ניתוחים עוקבים, כולל ציטומטריה זרימה וריצוף RNA של תאים בודדים.
מאמר שיטה
דיסוציאציה של רקמות בלוטת חלב וגידולים מעכברי כדי ליצירת תרחיפי תאים בודדים בעלי חיוניות גבוהה
במאמר זה
סיכום
תקציר
פירוק רקמה לתליות של תאים בודדים לצורך ניתוח מסייע בהבנת התהליכים המתרחשים ברמה התאית במיקרו-סביבה של הגידול. אתגר ארוך שנים ב השגת וניצול של תאים ראשוניים הוא הפקת תליות תאים באיכות גבוהה המשמרות את מאפייני התאים לצורך עיבודים המשכיים, כולל ריצוף RNA של תא בודד (scRNA-Seq) או אימונופנוטיפיקציה באמצעות ציטומטריית זרימה. בדרך כלל, רקמות מפורקות באמצעות שילוב של פירוק מכני, עיכול אנזימטי וסינון, ומספר גורמים בכל שלב מכניסים שונות למוצר המתקבל. לכן, יש לבצע שלבי אופטימיזציה כדי לזהות את השיטה הפועלת בצורה הטובה ביותר עבור כל סוג רקמה ספציפי. לדוגמה, רקמת כרית שומן של בלוטת החלב עשירה באדיפוציטים, מה שמקשה יותר על השגת תליית תאים נקייה ועל שימור מוצלח של תאים חיוניים. כתוצאה מכך, יצירת תליות תאים להשוואה מרקמת כרית שומן של בלוטת החלב ומגידולים אפיתליואידיים היא מאתגרת. פרוטוקול זה מבסס שיטה הניתנת לשחזור וחסכונית להפקת תליות תאים בודדים עם חיוניות גבוהה מרקמות בלוטת חלב ורקמות גידול של עכברים, המשמרת אפיתופים על פני השטח של התא לצורך ניתוחים נוספים. הליך זה שימש להפקת ספריות scRNA-Seq באיכות גבוהה ולביצוע אימונופנוטיפיקציה באמצעות ציטומטריית זרימה רב-פרמטרית.
מבוא
דיסוציאציה של רקמות מאפשרת השגת תרחיפי תאים בודדים ואפיון של סוגי תאים בתוך רקמות. דבר זה חשוב במיוחד בעת ניתוח תגובה לאימונותרפיה, שכן תאי חיסון חודרים יכולים לסייע בהבהרת המנגנון העומד בבסיס תגובות אימונולוגיות ספציפיות לרקמה. חיסון באמצעות חומצת דאוקסיריבונוקלאית (DNA) המקודדת את האונקוגן HER2/neu מוביל להגנה מוגברת מפני גידולי שד ספונטניים המונעים על ידי HER2/neu במודלים של עכברים1. בנוסף, הוכח כי חיסון DNA מעורר תגובה סיסטמית המאופיינת בייצור נוגדנים ובתאי T המפרישים interferon-γ (IFN-γ)1,2,3. מסיבה זו, התמקדנו בפיתוח פרוטוקול לדיסוציאציה של גידולי שד ושל רקמות בלוטת השד העשירות בשומן כדי לאפשר ספירה של החסינות המקומית. דיסוציאציה של רקמה לתאים בודדים דורשת שיטות אנזימטיות, מכניות, או שילוב של שיטות אנזימטיות ומכניות. אתגר אחד הקשור לדיסוציאציה אנזימטית הוא ששיטות אלה דורשות חשיפה לאנזימים למשך תקופה ממושכת, לעיתים קרובות לאורך הלילה4. חשיפת יתר גורמת לפירוק של תאים בודדים ושל סממנים על פני השטח, כאשר ההשפעות המזיקות ביותר הן על תאי חיסון5,6. עיכול מכני יכול להיות אפשרות טובה לשחרור תאי חיסון כגון לימפוציטים ומקרופאגים, אם כי הוא אינו מפרק ביעילות את הסטרומה כדי להשיג מדגם מייצג של תאים אפיתליאליים וסטרומליים. לאחרונה נבחנו שיטות של מיקרופלואידיקה לדיסוציאציה של רקמות, והן הופעלו לראשונה כדי לפרק אגרגטים תאיים בתמיסה7. קבוצה אחת יישמה גישה מיקרופלואידית כדי לפרק עוד יותר רקמה קצוצה באמצעות כוחות גזירה בתוך מכשיר8. לאחר 60 min של דיסוציאציה מותאמת, שיטה זו הניבה עלייה של פי 2 בתאים אפיתליאליים ועלייה של פי 4 בתאים אנדותליאליים בהשוואה לפרוטוקול עיכול אנזימטי מסורתי ברקמת שד. עם זאת, עלו קשיים בעת מדידת תבואת הפטוציטים במדגם כבד, כאשר התבואה פחתה עם הזמן, ככל הנראה בשל גודלם ושבריותם של הפטוציטים. לכן, מציאת פשרה המאפשרת השגת מדגם נקי ומייצג של סוגי תאים מרובים תוך שמירה על שלמות התאים ועל האפיטופים על פני השטח היא בעלת חשיבות עליונה.
אנזימים המשמשים בתערובות עיכול כוללים בדרך כלל שילוב כלשהו של קולגנזות כלליות9,10, טריפסין (מדריך לפירוק רקמות מוצקות)4,10,11, היאלורונידאז9,10,11, או דיספאז4,9,10ודורשים פרקי זמן משתנים לעיכול יעיל. הפרוטוקול המתואר כאן משתמש בשני סוגים ספציפיים של קולגנזות, collagenase type II ו-collagenase D, כאנזימים העיקריים לעיכול, כאשר ethylenediaminetetraacetic acid (EDTA) משמש בתפקיד משני להחלשת קשרי תא-תא באמצעות קילציה. Collagenase type II הוא אנזים דיסוציאציה עיקרי המופק על ידי Clostridium histolyticum ומסייע בעיכול מקטעי קולגן קטנים במטריקס extracellulaר. Collagenase D מופק גם הוא על ידי C. histolyticum ונעשה בו שימוש נרחב לפירוק מגוון רקמות, כגון רקמות ריאה, לב, שריר, עצם, רקמות עצביות ואנדותליאליות. קולגנזה זו מסייעת בשימור התפקוד והשלמות של חלבוני פני השטח של התא, גורם חשוב לאימונופנוטיפיקה המשכית באמצעות ציטומטריה זרימה. בנוסף לקולגנזה, הרקמות מעוכלות בנוכחות deoxyribonuclease I (DNase I), המפרק DNA חופשי ובכך מסיר אותו מת сусפנזיית התאים המתקבלת.
אתגר נוסף הייחודי לדיסוציאציה של בלוטות החלב הוא נוכחותם של אדיפוציטים בתוך הדגימה. ככל שעכבר מזדקן, פד השומן של בלוטת החלב צובר מספר משמעותי של אדיפוציטים. תאים אלו שבירים יותר ופגיעים לקרע במהלך עיבודים המשכיים, מה שעלול לשחרר RNA ושיירי תוכן תוך-תאי לתוך תגליל התאים, להגדיל את כמות ה-RNA הסביבתי, לשבש את הכנת הספריה של scRNA-Seq ולהפחית את איכות הדגימה. DNA חוץ-תאי עלול להוביל ליצירת אגרגטים של תאים; לכן, יש להסיר כל אדיפוציט שנותר לאחר הדיסוציאציה האנזימטית הראשונית כדי לשמור על שלמות הדגימה. למרבה המזל, ניתן לנצל את תכונת הציפה של האדיפוציטים כדי לסייע בהפרדתם מהתאים הנותרים במהלך סנטריפוגציה. בשימוש בפרוטוקול סנטריפוגציה, האדיפוציטים נותרים על פני השטח של הנוזל העליון (supernatant). דבר זה מאפשר להסיר את התאים יחד עם הנוזל העליון, ובכך למנוע את שילובם במשקע התאים הראשוני. אף שאינו חובה, שילוב של האטה הדרגתית מפחית את כוחות קוריוליס בתוך המבחנה, ומסייע בשמירת האדיפוציטים בשכבה נפרדת בחלק העליון, במיוחד כאשר עובדים עם רקמת חלב העשירה במיוחד באדיפוציטים או כאשר הסרת האדיפוציטים היא מוקד המחקר12,13.
עם שיקולים אלו הנוגעים לסוג הרקמה בחשבון, ביקשנו לבסס פרוטוקול שהוא יעיל מבחינה כלכלית, אינו דורש ציוד מיוחד, ומניב דגימת תאים מייצגת מהרקמה המקורית באיכות גבוהה ועקבית ובשחזוריות גבוהה.
פרוטוקול
כל ההליכים בפרוטוקול זה בוצעו בהתאם למדיניות שירות בריאות הציבור של ארה"ב לגבי שימוש בבעלי חיים במעבדה ובאישור הוועדה המוסדית לטיפול ושימוש בבעלי חיים (IACUC) של אוניברסיטת מישיגן סטייט.
1. הפקת תרחיף של תאים בודדים מרקמת גידול של עכבר ומרקמת בלוטת חלב:
עיכול רקמה
- השלך את כל רקמות העכבר העודפות או שאינן בשימוש לפסולת ביולוגית. הנח פלסטיקה המזוהמת ברקמות או תאי עכבר לפסולת ביולוגית לצורך פינוי. אסוף תמיסות המכילות תאים למכל פסולת ביולוגית נוזלית וטפל בהן ב-10% bleach לפני הפינוי.
- ודא שתמיסת העיכול לרקמה טרייה מוכנה מיד לפני עיכול הרקמה. כל דגימה דורשת 10 mL של תמיסת עיכול (10 mL Roswell Park Memorial Institute (RPMI), 60 U DNase I, 25 mg Collagenase D, 50 mg Collagenase type II). אחסן בטמפרטורת החדר (RT) עד לשימוש.
- בצע הפתה לעכברים באמצעות פריקה צווארית (cervical dislocation), כאשר פנומתורקס דו-צדדי משמש כשיטה משנית להפתוה, עם או בלי דימום מסיבי (exsanguination).
- הנח את העכבר בתנוחה גבנית (supine), כאשר הרגליים פרושות החוצה ומקובעות בסיכות.
- רסס את העכבר באופן מלא ב-70% ethanol כדי למנוע זיהום של הדגימה מפרווה משתחררת.
- בצע חתך יחיד לאורך קו האמצע של העכבר מהכרית השומנית המפשעת ועד לצוואר, תוך זהירות לא לנקב את הפריטונאום, ולאחר מכן בצע חתך במורד כל רגל ליצירת צורת חתך של "Y" הפוך.
- מתח את העור, תוך שימוש בטכניקות דיסקציה קהה להפרדת העור מהפריטונאום שמתחתיו, וקבע את העור בצורה שטוחה על לוח הנתיחה.
- הסר גידולים בגודל בינוני או בלוטות חלב/כריות שומן והנח אותם באבוב קוני של 50 mL עם 5 mL מדיום שטיפת תאים R10 (R10 הוא RPMI) עם 10% fetal bovine serum (FBS).
- הימנע במידת האפשר משימוש בגידולים נמקרוטיים או מלאים בדם (שמראה שלהם כהה מאוד והם רכים).
- בתוך קבמינה ביולוגית (biological safety cabinet), העבר רק כריות שומן מהחלב וגידולים לצלחת פטרי נקייה. קצץ את הרקמה דק באמצעות שני להבי סכין כירורגית עד לקבלת מרקם דמוי משחה, ואז העבר אותה לאבוב נקי של 50 mL. בצע שלב זה ב-RT.
- הוסף 10 mL תמיסת עיכול לדגימה.
- דגור באינקובטור עם ניעור ב-37 °C ב-250 סיבובים לדקה (rpm) למשך 30 דקות.
- הוסף 0.5 M EDTA לריכוז סופי של 10 mM (200 µL EDTA ל-10 mL תמיסות עיכול).
- החזר לאינקובטור עם ניעור ב-37 °C ו-250 rpm למשך 5 דקות נוספות.
- הוסף 40 mL של מדיום שטיפת תאים R10 כדי לעצור את התגובה.
- סנן תאים מעוכלים דרך מסנן 70 µm לתוך אבוב נקי של 50 mL כדי להסיר גושים.
- בצע צנטריפוגה ב-500 x g תוך שימוש בהגדרת האצה 9 והגדרתבלימה 6, ב-4 °C למשך 10 דקות (אם העניין הוא רק בתאים לימפוציטיים, ניתן להפחית את כוח הצנטריפוגה ל-300 x g למשך 5 דקות)14 כדי להשקיע את התאים. מכיוון ששלב זה כולל פירוק של רקמת בלוטת חלב, העשירה באדיפוציטים, פרוטוקול בלימה מופחת מסייע בשמירה על הגרדיאנט שנוצר עקב טבעם הצף של האדיפוציטים במהלך הצנטריפוגה13.
- השלך את עליון הנוזל (supernatant) לפסולת ביולוגית, פצח את המשקע והוסף 40 mL של מדיום שטיפת תאים, ולאחר מכן בצע צנטריפוגה כפי שמתואר לעיל (שלב 1.15). בשלבים הבאים ניתן להחזיר את הבלימה להאטה מלאה. אי ביצוע פעולה זו לא ישפיע לרעה על הדגימה.
- שטוף עם 40 mL של מדיום שטיפת תאים R10 ובצע צנטריפוגה כבשלב 1.15, עבור סה"כ 3 שטיפות.
- פצח את המשקע והשהה מחדש את התאים ב-2 mL של 1 × PBS קר.
- הוסף שני נפחים של 1× RBC lysis buffer. דלל תרכיז lysis buffer של 10 × ל-1 × באמצעות מים (כלומר, 2 x = 2 mL 1 × PBS + 4 mL lysis buffer). בצע שלב זה ב-RT.
- דגור בטמפרטורת החדר למשך 5 דקות תוך ערבוב עדין מדי פעם על ידי היפוך האבוב.
- נטרל את ה-RBC lysis buffer על ידי הוספת נפח שווה של מדיום שטיפת תאים R10.
- סנן את תמיסת התאים דרך מסנן 30 µm לתוך אבוב של 15 mL כדי להסיר פסולת תאית.
- השלם את הנפח ל-15 mL באמצעות מדיום שטיפת תאים R10.
- בצע צנטריפוגה ב-500 x g למשך 10 דקות ב-4 °C.
- הסר את עליון הנוזל לחלוטין והשהה מחדש במדיום שטיפת תאים לנפח סופי של עד 5 mL לצורך ספירה והערכת חיוניות. השהה מחדש לדילול הרצוי. המשך לצביעה עבור ציטומטריה זרימה (flow cytometry) או להכנה עבור scRNA-seq.
- שמור את התאים על קרח בין השלבים, אלא אם צוין אחרת.
2. צביעת תרחיף תאים בודדים עבור ציטומטריה זרימה
- העבירו את התאים הרצויים למבחנה עגולה מ-polypropylene בנפח 5 mL ושמרו על קרח.
- הכינו תמיסת צביעה לתאים באמצעות הנוגדנים המונוקלונליים (mAb) הרצויים המשורשרים לתגים פלואורסצנטיים, בנפח כולל של (n + 1) × 100 µL תוך שימוש ב-flow PBS (490 mL 1x PBS, 10 mL FBS, 0.5g Sodium azide). הכינו (n+1) × 100 µL של תמיסת צביעה, כאשר n = מספר הדגימות (לדוגמה, 6 × 100 µL = 600 µL עבור 5 דגימות).
הערה: Sodium Azide הוא חומר מסרטן בצורת אבקה. יש להשתמש בציוד מגן אישי מתאים ולשטוף את כל הציוד כדי להבטיח שה-azide נמצא בתמיסה לפני השליכה למכל פסולת כימית. - צנטריפוגו כל דגימה המיועדת לצביעה למשך 5 min ב-4 °C במהירות של 500 x g. סספנדו מחדש ב-100 µL תמיסת צביעה. סספנדו מחדש בקרות לא צבועות ב-1000 µL flow PBS.
- כסו את המבחנות להגנה מאור והדגרירו ב-4 °C למשך 15 min.
הערה: נוגדנים עם תגים פלואורסצנטיים עלולים להתפרק בחשיפה ממושכת לאור ויש להשאירם מכוסים במהלך ההדגירה ובמהלך אחסון הדגימות לאחר מכן. - הוסיפו 1 mL של flow PBS לכל מבחנה צבועה וצנטריפוגו ב-500 x g, 4 °C, למשך 5 min לשטיפה.
- שפכו את העלייה (supernatant), פצלו את המשקע (pellet) וסספנדו את התאים מחדש ב-1 mL flow PBS. צנטריפוגו כפי שנעשה קודם (שלב 2.5).
- חזרו על שלב 2.6 עבור סך של שלושה שטיפות. שפכו את העלייה ופצלו את המשקעים.
- סספנדו את התאים מחדש בתמיסת קיבוע (fixation solution) או ב-flow PBS, בהתאם לצביעות העוקבות הנדרשות.
- השתמשו בשלב זה אם אתם מקבעים את התאים או מבצעים צביעה תוך-תאית (intracellular stain). אחרת, המשיכו לשלב 2.10:
- הוסיפו 200 µL של תמיסת חדירות/קיבוע (permeabilization/fixation solution) לכל דגימה כדי לאפשר צביעה תוך-גרעינית.
- כסו את התאים בנייר אלומיניום והדגרירו אותם למשך 20 min לפחות ב-4 °C. אם אתם מתכננים להריץ את הדגימות ביום אחר, ניתן לשמור את הדגימות מכוסות ב-4 °C למשך הלילה בשלב זה.
- לאחר הקיבוע, צנטריפוגו את הדגימות ב-500 x g למשך 5 min וסספנדו מחדש ב-1 × permeabilization buffer (מדולל במים).
- אם אתם מכינים צביעה משנית או תוך-תאית, צבעו את הדגימות בדילול הרצוי ב-1x Permeabilization buffer. הניחו את המבחנות המכוסות באינקובטור ב-4 °C למשך 15–20 min.
- הוסיפו 1 mL 1x permeabilization buffer לכל מבחנה צבועה וצנטריפוגו ב-500 x g למשך 5 min לשטיפה.
- שפכו את העלייה, פצלו את המשקע וסספנדו את התאים מחדש ב-1 mL 1x Permeabilization buffer. צנטריפוגו כפי שנעשה קודם (שלב 9.5).
- חזרו על שלב 2.9.6 עבור סך של שלוש שטיפות. שפכו את העלייה ופצלו את המשקעים.
- סספנדו את התאים מחדש ב-200 µL 1x Permeabilization buffer ושמרו על קרח עד למועד ההרצה בציטומטר זרימה (flow cytometer).
- אם אינכם מקבעים את התאים, סספנדו אותם מחדש ב-200 µL של flow PBS ושמרו על קרח עד למועד ההרצה בציטומטר זרימה.
- עבור ניתוח scRNA-Seq, פעלו לפי הפרוטוקולים להסרת פסולת ותאים מתים, הערכת איכות ה-RNA ויצירת ספריות.
3. הערכת איכות ספריית scRNA-Seq
- חפשו אחוז גבוה של קריאות שמופו בביטחון לתאים. באופן אידיאלי, מספר זה יהיה גבוה מ-90%.
- השוו את ספירות המזהים המולקולריים הייחודיים (UMI) עם הברקודים. דגימה באיכות גבוהה תראה ירידה חדה בספירות ה-UMI בערך ב-10,000 ברקודים ('knee bend' בגרף הדירוג של הברקודים).
- בחנו את ה-UMAPs (Uniform Manifold Approximation and Projection). דגימה באיכות גבוהה מרקמות מורכבות, כגון בלוטות חלב או גידולי שד ספונטניים, תציג מקבצי תאים נפרדים ובולטים.
- זהו את מספר הגנים המיטוכונדריאליים (mt-) המובעים; מקבצים עם מספר גבוה של גנים מיטוכונדריאליים מעידים על כך שהתאים מתים או גוססים.
תוצאות
HER2 הוא אונקוגן גידולי המניע גידולים שד אגרסיביים בנשים, ועד 70% מהנשים המטופלות בטיפולים מונוקלונליים המכוונים ל-HER2 לא יגיבו לטיפול או יפתחו עמידות לטיפול המכוון ל-HER2.15,16,17,18המטרה הסופית היא להפעיל תגובה חיסונית נגד HER2/neu כדי לשפר את החסינות ל-HER2 ולהגביר את סיכויי ההישרדות. כדי לחקור את החסינות ל-HER2/neu, נעשה שימוש במודלים עכבריים בעלי מערכת חיסון תקינה, המפתחים גידולי שד ספונטניים המונעים על ידי HER2/neu.2,19HER2 מקודד על ידי אדם Erbb2 ו-neu מחולול על ידי חולדה Erbb2עכברי BALB NeuT נושאים גן חולדה טרנספורמטיבי נוירולוגי/נוירוני טרנסגן (NeuT), המונע על ידי מקדם MMTV19Neu באה לידי ביטוי בבלוטות החלב של עכברים נקבות בגיל ההתבגרות מרקע BALB, מה שמוביל להתפתחות של קרצינומה של הנימים (איור 1A, תמונה מוגדלת) בכל הנקבות הטרנסגניות, באחת או בכל בלוטות החלב. ביטוי רציף של נוירו (Neu) מוביל להיווצרות גידולים מורגשים בין השבועות 14 ל-19 לגיל, אשר גדלים באופן הדרגתי1חיסון עכברים טרנסגניים באמצעות DNA פלסמי המקודד הן ל-neu אוטולוגי והן ל-HER2 הטרולוגי (המכונה pNeuE2TM) יכול לשבור את הסבילות החיסונית ל-neu, מה שמוביל לעלייה בנוגדנים פוליקלונליים המכוונים ל-neu במערכת וב-T cells ספלניים המפרישים IFN-γ.1תגובה חיסונית זו הובילה לדחייה של תאי גידול TUBO המבטאים neu. בעוד שתגובה סיסטמית היא אינפורמטיבית, היא אינה מאפשרת לנו להבין את מנגנון הפעולה באתר הגידול. לפיכך, ביקשנו לפתח פרוטוקול דיסוציאציה לרקמות של בלוטת החלב ושל גידולי שד, אשר יניב תאים בודדים עם חיוניות גבוהה תוך שימור סממני שטח התא. איור 1 מספק סקירה כללית של זרימת העבודה. בקצרה, לאחר האיסוף, הרקמה נקצצת דק באמצעות סכיני ניתוח (איור 1B) והועברו לתמיסת עיכול רקמות מבוססת RPMI המכילה שילוב של 2 חלקים של collagenase type II לכל חלק אחד של collagenase D ו-DNase I למשך 30 דקות באינקובטור עם ניעור (איור 1C–D), ולאחר מכן 5 דקות נוספות עם EDTA בריכוז 0.5 M (איור 1E). את העיכול עוצרים על ידי הוספת בופר שטיפה המכיל FBS, ומסננים את התערובת כדי להסיר שיירי רקמה (איור 1F). לאחר שלבי שטיפה וליזיס של תאי דם אדומים (איור 1G–H), התאים מסננים דרך מסננת של 30 מיקרון ונספרים (איור 1I–K ו- איור 2בנקודה זו, ניתן להקצות תאים לתהליכי עבודה המשכיים כגון ציטומטריה זרימתית או ריצוף RNA של תא בודד (scRNA-Seq).
לצורך השוואה ישירה, בוצע פירוק במקביל באמצעות ערכה מסחרית. הפרוטוקול המפורסם יושם עבור גידולים מסוג 'Tough', ולאחר נטרול האנזימים, הדגימות טופלו באופן זהה (כלומר, ליזיס של RBC וכו'). בשימוש בערכה המסחרית, השתקמו 1.3 × 10⁶ cells/mL עם חיוניות של 76%, בעוד שבפרוטוקול המוצג כאן, השתקמו 4.5 × 10⁶ cells/mL עם חיוניות של 89% (Figure 2A,B). כמות השאריות (debris) בין שני הפרוטוקולים הייתה דומה לאחר ליזיס של RBC. כדי להסיר תאים מתים, 1 × 10⁷ cells מכל פרוטוקול עובדו דרך קו התהליך להסרת תאים מתים. הערכה המסחרית השכיבה 1.3 × 10⁶ cells/mL בחיוניות של 96%, בהשוואה ל-1.94 × 10⁶ cells/mL וחיוניות של 98% עבור הפרוטוקול המדווח כאן (Figure 2C,D). לפיכך, הפרוטוקול המדווח כאן הניב תפוקה גבוהה יותר של תאים חיוניים לצורך אנליזות המשך ללא צורך בציוד ייעודי.
כדי להעריך באופן ספציפי את האיכות והשחזוריות של תרחיפי התאים שהושגו באמצעות הפרוטוקול המדווח כאן, נאספו דגימות של בלוטות חלב מעכירות נקבות נאיביות של עכברי BALB ו-BALB NeuT בגיל 16–18 שבועות. רקמת BALB NeuT הכילה הן רקמת בלוטה חלב והן רקמות גידול. נלקחה רקמה מרפידי השומן של בלוטות החלב המפשעיות (בלוטות חלב 4 ו-9), כולל רקמת גידול מ-BALB NeuT, והיא עברה דיסוציאציה לתמיסה הומוגנית לצורך אנליזות המשך. שימו לב כי קשרי לימפה סנטינליים הוסרו לפני איסוף בלוטות החלב.
לאחר העיבוד, הדגימות הוערכו באמצעות ציטומטריה של זרימה כדי לאשש את השמירה על סמני פני השטח של התאים ואת חיוניות התאים (איור 3), ובניתוח באמצעות scRNA-Seq (איור 4) כדי לוודא את איכות הכנת התאים ליצירת ספרייה. חיוניותם של תאים בודדים מבלוטת החלב או מהגידול הייתה בממוצע ≥85% לפני הסרת תאים מתים. כדי להפיק הכנת תאים התחלתית בעלת חיוניות גבוהה עבור scRNA-Seq, ניתן להשתמש בערכות מסחריות להסרת תאים מתים ופסולת. בעקבות פרוטוקולים אלו, חיוניותן של הכנות התאים הבודדים נעה בין 94% ל-98% (איור 2C,F). תאים מפרוטוקול זה קובעו והושוו לשיטת הקיבוע המומלצת עבור scRNA-Seq, המכונה פרוטוקול מסחרי של קיבוע-לפני-פירוק (fixation-first dissociation), המשתמש ב-thermolysin מסחרי (איור 2E,F). פרוטוקול הקיבוע-לפני-פירוק המסחרי הניב 1.5 × 10⁷ cells/mL, וחיוניות לא נמדדה מכיוון שהוא מקבע את הרקמה לפני הפירוק, בעוד שפרוטוקול זה הניב 8.6 × 10⁶ cells/mL מחיוניות התחלתית של 94%. לפיכך, שיטת פרוטוקול הקיבוע-לפני-פירוק המסחרית הניבה מספר תאים דומה או גבוה מעט מהפרוטוקול המדווח כאן.
תאים נצבעו ונבדקו לסממני פני שטח באמצעות ציטומטריית זרימה. תאי אפיתל (איור 3A) ופיברובלסטים (איור 3B) זוהו על ידי צביעה עם mAb של EpCAM ו-Pdgfrb/CD140a, בהתאמה. מכיוון שחיסון של עכברי BALB NeuT עם DNA של HER2/neu שלוש פעמים הוביל לעיכוב משמעותי בהופעת הגידול ובחסינות מערכתית, היה עניין מיוחד להעריך תאי חיסון בבלוטות החלב ובגידולים. תאים מסוג CD45+ מהשושלת החיסונית היוו כ-50% מתליה התאים (איור 3C). נוכחותם של תאי B ותאי T נבדקה באמצעות B220/CD45R ו-CD3 (איור 3D), ותאי T מסוג CD3+ חולקו באופן נוסף ל-CD4 ו-CD8 (איור 3E). כדי להעריך את היכולת לשמר אוכלוסיות תאים נדירות, דגימות נצבעו עבור תאי T רגולטוריים. לשם כך, דגימת התאים קובעה ונצבעה עבור גורם השעתוק הספציפי ל-Treg, Foxp3. תאי T רגולטוריים מהווים בדרך כלל חלק קטן מסך אוכלוסיית החיסון בגוף, אם כי תפקידם בוויסות מערכת החיסון הוא בעל עניין רב בתחומי מחקר הסרטן ומחלות אוטואימוניות. לכן, לכידה אמינה של אוכלוסיות תאי חיסון קטנות אך חסונות, כגון תאי T רגולטוריים, היא קריטית כאשר בוחנים פרוטוקול לפירוק רקמה. תאי T רגולטוריים מסוג Foxp3+ זוהו תחילה על ידי תת-סינון (sub-gating) של תאי CD3+CD4+ עבור ביטוי של CD25 (קולטן IL-2 בעל זיקה גבוהה) ו-Foxp3. באמצעות אסטרטגיית סינון זו, כ-5% מתאי ה-CD4+ היו חיוביים לשני הסממנים, בעוד שכ-25% היו חיוביים ל-Foxp3 אך נמוכים או שליליים ל-CD25 (איור 3F). CD64 נבדק בדגימת גידול נפרדת כדי להבטיח שניתן לבודד בהצלחה מקרופגים מסוג CD64+ באמצעות טכניקת פירוק זו (איור 3G). לזיהוי קבוצות מיאלואידיות רחבות יותר, זוהו מקרופגים F4/80+ ותאים מסוג F4/80- CD11c+, שזוהו כתאי דנדריטיים (איור 3H). תאים דנדריטיים היוו בערך 3% מכלל התאים, בעוד שנויטרופילים מסוג CD11b+Ly6G+ היוו כ-5% (איור 3H,I). לפיכך, הושגה התאוששות אמינה ושימור של Epitopes פני שטח בתאי CD45+ לאחר פירוק של רקמת בלוטת חלב ורקמת גידול באמצעות הפרוטוקול לעיל.
לפני ההגשה ליצירת ספריית scRNA-Seq, ניתן להעריך את שלמות ה-RNA של הדגימות. דגימות טריות שהוכנו באמצעות הפרוטוקול המסחרי או הפרוטוקול המדווח כאן הניבו יחסי A260/230 של 1.9 ו-2.2, בהתאמה. דגימות מקובעות מוערכות על ידי קביעת אחוז הקריאות הגדולות מ-200 נוקלאוטידים (nt). הפרוטוקול המדווח כאן, שאחריו בוצע קיבוע מיידי ואחסון ב-–80 °C, הניב 83% של הדגימה המכילה קריאות > 200 nt.
איכות הדגימות
בעקבות הכנת הספרייה וריצוף ה-scRNA-Seq, נערכה הערכת איכות של הדגימה (איור 4). ספריות דגימות של scRNA-Seq מוערכות תחילה באמצעות מדדים לזיהוי תאים (cell calling) ואיכות מיפוי, גרף דירוג ברקודים (barcode rank plot), רוויית ריצוף והשלכות UMAP. דיסוציאציה של רקמת שד מ-BALB באמצעות פרוטוקול הדיסוציאציה המתואר כאן הניבה 16,182 תאים, כאשר 97% מהקריאות (reads) שויכו לתאים, מה שמעיד על דגימה בריאה, שכן קריאות מעטות שויכו ל-RNA חוץ-תאי. אחוז משמעותי של קריאות שנרשמו מחוץ לתא מעיד על רמות מוגברות של זיהום mRNA סביבתי מתאים מתים או גוססים. איכות המיפוי היא אחוז הגששים (probes) שמופו למערך הגששים; נתון זה עמד על 99.1%. רוויית הריצוף הגיעה למישור (plateau), מה שמעיד על שכפול של גנים שכבר זוהו ולא על גנים ייחודיים. גרף דירוג הברקודים מציג ספירות UMI לעומת ברקודים, ודגימה באיכות גבוהה מראה ירידה חדה, או "כיפוף ברך" (knee bend), ב-~10K UMIs (איור 4A). לבסוף, השלכת ה-UMAP מראה מספר מקבצים (clusters) נפרדים (איור 4A). כל המדדים הללו מעידים על ספריית scRNA-Seq באיכות גבוהה.
כדי להשוות את האיכות של פרוטוקול זה אל מול פרוטוקול הדיסוציאציה המומלץ המסחרי המבוסס על קיבוע ראשוני עבור כימיית Flex, בוצע פרוטוקול דיסוציאציה מסחרי עם קיבוע ראשוני במקביל לפרוטוקול המדווח כאן, ואיכות הספריה שהתקבלה נבדקה. פרוטוקול הדיסוציאציה המסחרי עם קיבוע ראשוני עבור דגימות של בלוטת חלב מ-BALB השחזיר 720 תאים, עם 68% קריאות בתאים ואיכות מיפוי של 89.3%. באופן דומה, הרוויה החלה להגיע למישור (plateau), אך ספירות הגנים לתא היו נמוכות באופן מובהק מאשר בדיסוציאציה של תאים חיים (4,500 גנים/תא לתאים חיים לעומת 1,000 גנים/תא עבור פרוטוקול דיסוציאציה מסחרי עם קיבוע ראשוני). תרשים דירוג הברקודים אינו מראה קימור חד (איור 4B), ואף על פי שישנם צבירים מובחנים, מספרם קטן יותר (איור 4B).
ספריות של רקמת שד המכילה גידולים מ-BALB NeuT נבחנו גם הן לבדיקת איכות (איור 4C,D). באמצעות הדיסוציאציה החיה המתוארת כאן, רצפו 18,077 תאים, כאשר 97% מהקריאות היו בתאים ו-99.1% מופו למערך הפרובים. קימור ברור (knee bend) היה ניכר (איור 4C), כמו גם הפרדה ברורה בין אשכולות (איור 4C). פרוטוקול הדיסוציאציה המסחרי המבוסס על קיבוע ראשוני הניב תוצאות טובות יותר בנוכחות גידול, כאשר רצפו 7,119 תאים, 91% מהקריאות היו בתאים, ו-98.6% מהקריאות מופו למערך הפרובים. נצפה קימור טוב יותר בגרף הדירוג של הברקודים (איור 4D), אך למרות רכיב רוויית הרצף, היטלי ה-UMAP הכילו מעט אשכולות מובחנים (איור 4D).
מדדי איכות נוספים כוללים קביעה של מספר הגנים המיטוכונדריאליים המובעים על ידי צבירי תאים. הפרדה תאית טובה מעידה על איכות הדגימה, כאשר אחוז גבוה של 'reads in cell' מעיד על בריאות הדגימה. ניתן לזהות ולהסיר תאים עם מספר גבוה של גנים מיטוכונדריאליים (המסומנים כ-'mt-') באמצעות כלי מקבץ (clustering tools) של ספקים או כלים בקוד פתוח. ניתן לבצע השוואה ישירה של דגימות על ידי אגרגציה של דגימות באמצעות יישום ה-Cell Ranger, המאפשר השוואה ביו-אינפורמטית ישירה, או על ידי שימוש בסקריפט 'integration' בכלי מקבץ של ספקים או כלים בקוד פתוח. צבירי תאים מזוהים על ידי שאילתה של סממני שושלת תאים ידועים (למשל, CD45/Ptprc לתאי מערכת החיסון, EpCAM לתאי אפיתל, Fap או Pdgfra לפיברובלסטים). אם לא ניתן להגדיר צביר תאים באמצעות סממני שושלת ידועים, ניתן לנתח את 10–15 הגנים בעלי הביטוי הגבוה ביותר באמצעות כלי העשרה של קבוצות גנים (gene-set enrichment tools) כדי להפיק תובנות לגבי סוג התא האפשרי. לחלופין, ניתן לבצע שאילתה לגבי הגנים בעלי הביטוי הגבוה ביותר באמצעות כלי אטלס-תאים לייחוס הביטוי בסוגי תאים ידועים.
תאים עם מספר גבוה של גנים מיטוכונדריאליים הוסרו מכל דגימה, מהותיר 16,114 תאים (0.5% מהתאים שהכילו מספר גבוה של גנים מיטוכונדריאליים) בבלוטת החלב של BALB ו-18,024 תאים (0.3%) ב-BALB NeuT. בתוך הדגימות שעברו פרוטוקול דיסוציאציה מסחרי של קיבוע-ראשון, בלוטת החלב של BALB שימרה 627 תאים (13% מהתאים שהכילו מספר גבוה של גנים מיטוכונדריאליים), ו-BALB NeuT שימר 6,181 תאים (14%).
ביצוע אינטגרציה בין בלוטות החלב של BALB ו-BALB NeuT בוצע עבור פרוטוקול הדיסוציאציה של תאים חיים המתואר כאן, והוא מוצג ב-איור 4E,F. השוואה בין הדגימות הראתה אוכלוסיות תאים דומות בין הספריות (איור 4E, F, ו-טבלה 1). אשכולות תאים סומנו באמצעות סממני שושלת תאים ידועים, ובוצעו השוואות בין הדגימות. אוכלוסיות תאי מערכת החיסון כללו תאי T, תאי B ואשכולות של מקרופאגים, בעוד שאוכלוסיות תאים שאינם תאי חיסון כללו תאים אפיתליאליים, פיברובלסטים ותאים אנדותליאליים. כצפוי, בדגימת BALB NeuT נמצאה אוכלוסייה נוספת של תאי גידול (איור 4F). בבחינה של אוכלוסיות תאים ספציפיות, נמצאו יותר מקרופאגים בדגימת BALB NeuT הנושאת גידול, אך פחות תאי T ותאים אפיתליאליים שאינם תאי גידול. ניתוח scRNA-Seq הראה אוכלוסייה דומה של תאים אפיתליאליים המופקים מבלוטת החלב של BALB ואוכלוסייה משמעותית של תאים אפיתליאליים/תאי גידול במקבילה של NeuT. תרשים הפחתת הממדים מראה הבחנה ברורה בין אוכלוסיית התאים האפיתליאליים התקינים השוכנים בבלוטת החלב לבין תאי הגידול האפיתליאליים הספציפיים לדגימת BALB NeuT (איור 4E,F).
לאחר ביסוס אוכלוסיות התאים האפיתליאליים, נערכה הערכה של תאי הסໂຕמה בין דגימות ה-BALB לבין דגימות ה-BALB NeuT. ניתוח של הגן Pdgfrα (קולטן אלפא לגורם גדילה נגזר טסיות), המבוטא בפיברובלסטים, זיהה אוכלוסייה נפרדת של פיברובלסטים הן בדגימות ה-BALB והן בדגימות ה-BALB NeuT. בדגימת ה-scRNA-Seq של ה-BALB, פיברובלסטים המבטאים Pdgfrα היוו 15% מהתאים, נתון שנמוך במעט מהניתוח בציטומטריה זרימתית שבו פיברובלסטים היוו 29% מהתאים (איור 3B). לאחר ביצוע gating לבדיקת חיות ומצב של תא בודד, זוהו פיברובלסטים בציטומטריה זרימתית באמצעות הסמן PDGFRα (CD140a). התוצאות שנצפו לאורך הדגימות, ללא קשר לשיטות הניתוח המשלימות, תומכות בעקביות של פרוטוקול הדיסוציאציה לאורך זמן ובמספר ניסויים.
חלבון ה-CD45 מקודד על ידי הגן Ptprc, וריצוף RNA של תאים המבטאים Ptprc חשף מקבצים לימפוציטיים בעלי יכולת זיהוי גבוהה בתוך הדגימה (איור 4E). כדי להעריך באופן מעמיק יותר את אוכלוסיות הלימפוציטים, נבחנו התאים לאוכלוסיות של תאי B ותאי T באמצעות Cd3e+ או Cd79a+ (איור 4E,F). אוכלוסיות אלו היו מובחנות עם הערכת נתוני הריצוף של תא בודד, אם כי scRNA-Seq זיהה בנוסף מספר תת-מקבצים של תאי T המבטאים Cd3. ספירות נוספות של תאי מערכת החיסון מניתוח הריצוף הראו עלייה במקרופגים בדגימת BALB NeuT, כפי שמעיד הביטוי של Itgam and Adgre1 (F4/80) (איור 4F). כדי להעריך את זיהוין של אוכלוסיות תאים נדירות ב-scRNA-Seq, זוהו תאי T רגולטוריים על ידי ביטוי Foxp3 (איור 4F). תאי T רגולטוריים נוכחים בספריות ה-scRNA-Seq אך לא היו בשפע מספיק כדי להיות מזוהים כמקבץ נפרד. במקום זאת, הם התקבצו עם תאי T ותאי נטורלי קילר (NK).
לבסוף, היכולת לזהות נויטרופילים (PMNs) בתוך ספריות scRNA-Seq הייתה מקור לתסכול ולא הושגה באמצעות פרוטוקולים מסחריים אחרים לדיסוציאציה של רקמת שד20. באמצעות ציטומטריה של זרימה, כ-5% מהתאי החסוניים זוהו כנויטרופילים המבטאים Ly6G ו-CD11b (איור 3H). כדי לזהות נויטרופילים בתוך ספריות scRNA-Seq, ההמלצה היא לבצע מקבץ (recluster) מחדש באמצעות צינורות העיבוד של הספק כדי לזהות תאים שנמצאים מתחת לנקודת ה-"knee bend" הסטנדרטית. נהוג היה לבצע זאת עבור ספריות בלוטת השד של BALB ושל BALB NeuT. בוצעו השוואות בין Dotplots של גנים הקשורים בדרך כלל למקרופאגים (Ptprc, Adgre1, Mrc1) לבין אלו המבטאים על ידי נויטרופילים (S100a8, Trem1, Clec4). לא בספריות BALB ולא בספריות BALB NeuT נמצאו מספרים משמעותיים של נויטרופילים (איור 5A,B). עם זאת, נראה כי הדבר תלוי ברקע של המודל, שכן עכברי F1 NeuT על רקע של BALB x PWK נשאו מקבץ תאים המבטא סממני נויטרופילים (איור 5C).
כך, פרוטוקול הדיסוציאציה זה אפשר את זיהוי סוגי התאים בתוך בלוטות החלב של עכברי BALB ועכברי BALB NeuT המפתחים גידולי שד ספונטניים. מכיוון שתאים אלו הם בעלי חיוניות גבוהה, ניתן להשתמש בטכניקה זו כדי להעריך את החסינות נגד גידולים ואת התפקוד נגד HER2/neu של אוכלוסיות תאי חיסון מבודדים.
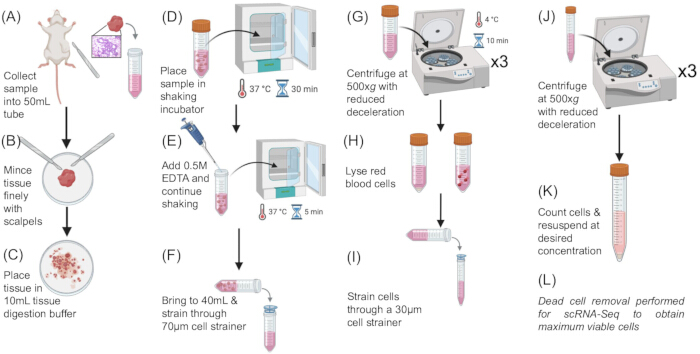
איור 1: תהליך העבודה עבור פרוטוקול דיסוציאציה של רקמה. (A) בלוטות חלב או גידולים הוסרו (B,C), קוצצו דק (D), ועברו עיכול ב-37 °C, תחת ניעור, בתערובת של collagenase type II, collagenase D ו-DNase I (E). EDTA הוסף, והעיכול נמשך 5 min נוספים. (F) העיכול הופסק על ידי השלמה לנפח של 40 mL באמצעות RPMI המכיל 10% FBS (תוספת שטיפה R10), ולאחר מכן התסמין סונן דרך מסננים של 70 µm. (G) תסמיני התאים סובבו ב-4 °C וב-500 × g למשך 10 min, ולאחר מכן נשטפו 3 פעמים עם תמיסת שטיפה RPMI. (H) כדוריות דם אדומות (RBC) עברו ליזיס באמצעות תמיסת 10 × RBC Lysis מבוססת ammonium chloride. (I) באפר שטיפה R10 שימש להפסקת הליזיס, ותסמיני התאים סוננו דרך מסננים של 30 µm. (J,K) לאחר ליזיס של כדוריות הדם האדומות, התאים נשטפים שלוש פעמים נוספות לפני הערכת הריכוז והחיוניות. (L) אם התאים משמשים ליצירת ספריית scRNA-Seq, תאים מתים ופסולת מוסרים באמצעות ערכות זמינות מסחרית, בהתאם לפרוטוקול(ים) שלהן. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
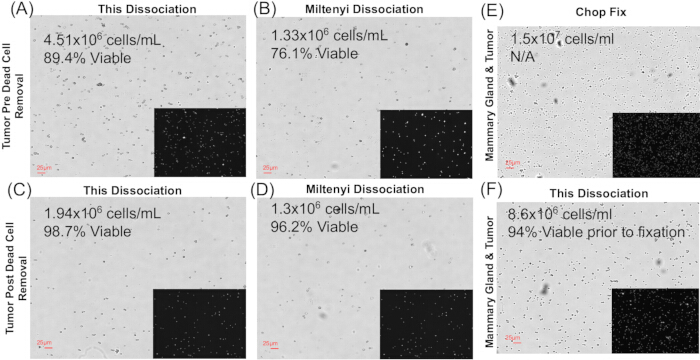
איור 2: השוואת דיסוציאציה. נתוני ספירת תאים וחיוניות להשוואה בין פרוטוקול הדיסוציאציה המדווח כאן לבין פרוטוקול Miltenyi הזמין מסחרית ופרוטוקול דיסוציאציה מסחרי של קיבוע-ראשון (fixation-first) המומלץ עבור scRNA-Seq. ספירות תאים לאחר הדיסוציאציה התקבלו באמצעות סופר תאים אוטומטי עם צביעת תאים מתים ב-acridine orange/propidium iodide (AO/PI). התאים נספרו והחיוניות נרשמה לאחר הסרת התאים המתים. (A–B) ספירות תאים וחיוניות מיד לפני הסרת התאים המתים. (C–D) ספירות תאים וחיוניות לאחר הסרת התאים המתים, המהוות ייצוג לדגימה הנכנסת למסלול ה-scRNA-Seq. (E–F) ספירות תאים וחיוניות בהשוואה בין הפרוטוקול המדווח כאן לבין פרוטוקול דיסוציאציה מסחרי של קיבוע-ראשון. לא ניתן היה להעריך את החיוניות לאחר דיסוציאציה באמצעות הפרוטוקול המכיל Liberase כיוון שדגימת הרקמה קובעה לפני הדיסוציאציה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
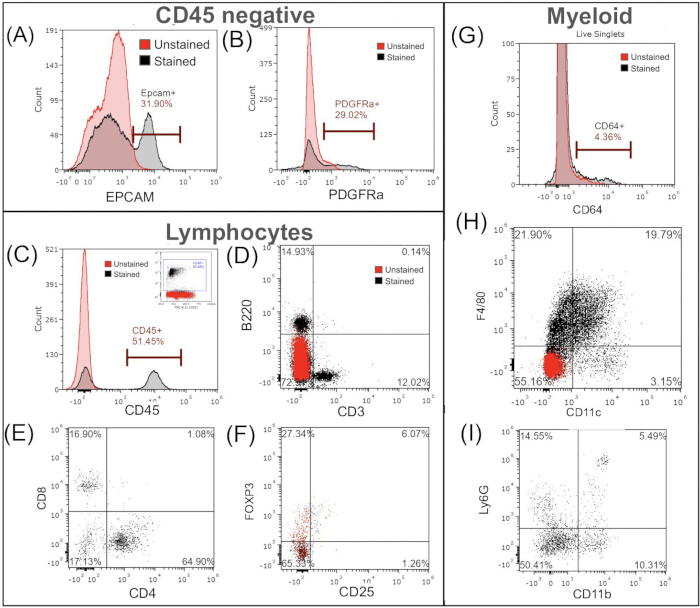
איור 3: ניתוח ציטומטרי של זרימה של רקמות שפורקו. כדי להבטיח את נוכחותן וחיוניותן של תאי מערכת החיסון, נותחו דגימות מייצגות של BALB ו-BALB NeuT. התאים עברו תחילה סינון (gating) לבדיקת חיוניות, ולאחר מכן זוהו תאי סינגלט (singlets) לפני זיהוי תתי-האוכלוסיות. כדי לוודא ששוחללו תאי שושלת אפיתליאלית וסטרומלית, הם נבחנו תחילה. EpCAM שימש לזיהוי תאים ממקור אפיתליאלי (A), ו-PDGFRa שימש לזיהוי פיברובלסטים (B). להערכת אוכלוסיות חיסוניות, 51% מכלל התאים היו CD45-חיוביים בבלוטת החלב (C). אוכלוסיות של תאי B (B220+) ותאי T (CD3+) הופקו מרקמת בלוטת חלב עכברית שפורקה (D), ואוכלוסיות של CD8+ ו-CD4+ סוננו מתאי רקמת גידול (E). כדי לקבוע אם פרוטוקול זה יכול לבודד ביעילות אוכלוסיות תאים נדירות יותר, (F) נבחנו תאי Treg ברקמת גידול באמצעות ביטוי של Foxp3+. הדבר בוצע תחילה על ידי סינון של אוכלוסיית CD3+ ו-CD4+, ובתוך אוכלוסייה זו, זיהוי תאים שהם Foxp3+ ו-CD25+ (כ-6%). (G) הערכה של מקרופאגים CD64+ מרקמת גידול. (H) תאי CD11b+ נותחו בהמשך לבדיקת ביטוי של F4/80 ו-CD11c, כאשר תאים מסוג F4/80− CD11c+ זוהו כתאי דנדריטיים. (I) נויטרופילים זוהו כתאים המבטאים CD45+, Ly6G+, ו-CD11b+, אך היו F4/80−. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
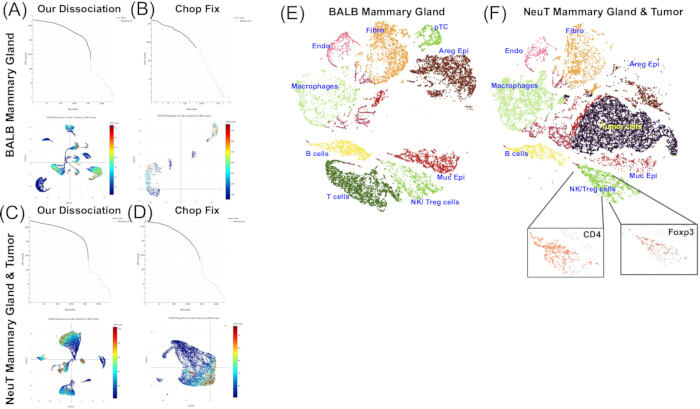
איור 4: הערכה של ספריות scRNA-Seq. דגימות מקובעות שימשו ליצירת ספריות scRNA-Seq; או באמצעות פרוטוקול פירוק תאים חיים המתואר כאן, ולאחריו קיבוע כפי שדווח בכתב יד זה, או באמצעות פרוטוקול הפירוק המסחרי המומלץ המבוסס על קיבוע ראשוני. (A) בקרת איכות עבור ספריית scRNA-Seq של בלוטת חלב מ-BALB שפוּרקה מתאים חיים. 16,182 תאים רצפו, כאשר 97.1% מהקריאות מופו באופן מהימן בתוך תאים ו-98.8% מופו באופן מהימן למערך הגששים המסונן. גרפי knee bend מוצגים למעלה, וההשלכות של UMAP מוצגות למטה. קימור knee bend חד ומקבצי תאים נפרדים מעידים על ספריות באיכות גבוהה. (B) הערכת איכות עבור ספריית scRNA-Seq של בלוטת חלב מ-BALB שפוּרקה באמצעות פרוטוקול קיבוע ראשוני מסחרי מראה היעדר knee bend ומספר תאים נמוך (n = 720). (C) ספריית scRNA-Seq של בלוטת חלב BALB NeuT נוצרה מהפרוטוקול המתואר כאן. 18,077 תאים רצפו, כאשר 97% מהקריאות מופו לתאים ו-98.9% מופו למערך הגששים המסונן. knee bend חד, יחד עם מקבצים נפרדים, מעידים על איכות טובה, בעוד שספריית BALB NeuT שפוּרקה באמצעות פרוטוקול קיבוע ראשוני מסחרי (D) מראה knee bend חלש אך מקבצי תאים שאינם נפרדים לאורך 7,119 התאים שרצפו. לאחר יצירת הספרייה, נעשה שימוש ב-Cell Ranger כדי לשלב את ספריות בלוטת החלב של BALB ו-BALB NeuT, ולאחריו ביצעו מקבץ K-Means ב-Loupe Cell Browser להשוואה ישירה. עשרה מקבצים ייחודיים מגדירים את התאים המרכיבים את בלוטת החלב של BALB/c, כפי שמוצג בגרפי T-SNE (E,F). בבלוטת חלב טרנסגנית NeuT (F) הייתה אוכלוסייה נוספת של תאי גידול. בתוך מקבץ הלימפוציטים, תאים המבטאים Cd4- ו- CD8a מפוזרים לכל אורכו. ביטוי Cd4 מוצג בתוך התמונה המוכנסת. תאי T רגולטוריים, המוגדרים על ידי ביטוי Foxp3, לא היו מספיקים כדי להוות מקבץ נפרד אך התקבצו עם תאי T, כפי שמוצג בגרף התכונות המודגש. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
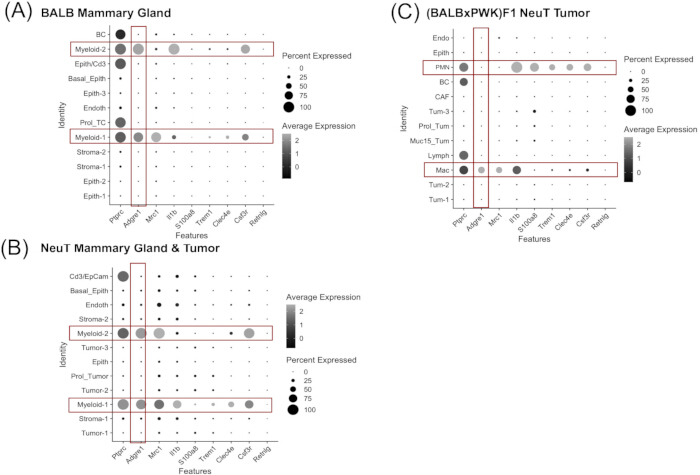
איור 5: זיהוי נויטרופילים (PMN). PMN ידועים כקשים לזיהוי בספריות scRNA-Seq בשל רמות נמוכות של תמלילי RNA וביטוי דל של Ly6g. ניתן לזהות PMN בספריות scRNA-Seq באמצעות פקודת ה-'count' ב-Cell Ranger והוספת האפשרות 'force cell = 8000' בשורת הפקודה. ניתוח זה בוצע הן עבור ספריות בלוטת החלב של BALB (A) והן עבור BALB NeuT (B), אך תאים מעטים ביטאו גנים ספציפיים ל-PMN. כל אשכולות התאים המילואידיים ב-BALB וב-BALB NeuT ביטאו גם Adgre1 (F4/80) ו-Mrc1 (CD206). תאים מעטים מאוד באוכלוסיות המילואידיות מבטאים את הגנים הספציפיים ל-PMN S100a8, Trem1, ו-Clec4e. עם זאת, ממצא זה נובע מרקע ה-BALB של המודל, שכן בספריות scRNA-Seq שהוכנו באמצעות טכניקת הדיסוציאציה מעכברי נקבה (BALBxPWK)F1 NeuT, כפי שמתואר כאן (C), ללא פקודת ה-force cell, נצפה אשכול של תאים המבטאים גנים ספציפיים ל-PMN אך לא את Adgre1. הדבר מדגיש כי פרוטוקול דיסוציאציה זה אכן יכול ללכוד PMNs בנוסף לאוכלוסיות מילואידיות אחרות. מלבנים אדומים מדגישים אשכולות המבטאים Adgre1. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| גידול BALB NeuT | ציטומטריה עם זרימה | ריצוף RNA של תא בודד (scRNA-Seq) |
| CD3 / לימפוציטים | 6% מסך התאים (12% מתאי CD45+) | 7% מסך התאים |
| CD4 / Cd4 | 3.9% מסך התאים (65% מהתאים CD45+CD3+) | 4% מסך התאים |
| CD8 / Cd8a | 1% מסך התאים (17% מהתאים CD45+CD3+) | 0.9% מכלל התאים |
| Foxp3 / Foxp3 | 0.8% מסך המכירות (33% מהתאים CD3+CD4+) | 0.7% מסך התאים |
| F4/80 / Adgre1 | 20% מסך התאים | 16% מסך התאים |
| CD64 / Fcgr1 | לא תורגם | 14% מסך התאים |
| PMN/נויטרופילים | 2% מכלל התאים (5% מתאי CD45+) | 0.05% מסך התאים |
| PDGFRa (CD140a) / סטרומה | 29% מסך התאים | 10% מסך התאים |
| EpCAM / אפיתליאלי | 32% מסך התאים | 54% מכלל התאים |
| NT, לא נבדק |
טבלה 1: השוואה של אחוזי התאים שהתקבלו מפרוטוקול הדיסוציאציה הזה באמצעות טכניקות המשך, כולל ריצוף RNA של תא בודד וציטומטריה זרימה.
דיון
פרוטוקול הדיסוציאציה הזה מייצר בעקביות תרחיפי תאים בודדים המורכבים מאוכלוסיות המייצגות את רקמת המקור. על מנת לבודד סוגי תאים מייצגים - כולל פיברובלסטים גדולים יותר ותאי גזע של אדיפוציטים - מרקמת שד, נעשה שימוש בכוח צנטריפוגלי של 500 x g14,21,22. החיוניות ואפיטופים על פני השטח של התא נשמרים באופן מהימן במגוון סוגי תאים, כולל אוכלוסיות חיסוניות, אפיתליאליות וסטרומליות. אחד היתרונות הלוגיסטיים של פרוטוקול דיסוציאציה זה הוא הזמן הקצר יחסית הנדרש למעבר מאיסוף הרקמה הראשוני לתרחיף תאים נקי המוכן לעיבוד נוסף, ללא צורך במכשור ייעודי. באופן כללי, זרימת עבודה זו אורכת כשלוש שעות מההתחלה ועד הסוף, יתרון על פני פרוטוקולי דיסוציאציה אנזימטית דומים שעשויים לדרוש חשיפה של הדגימה לאנזים למשך לילה שלם. פרוטוקול זה פותח ושימש במעבדה זו ובמעבדות אחרות בפורמט המסופק מאז 2023. ב-6 החודשים האחרונים לבדו, המעבדה ביצעה את הפרוטוקול 37 פעמים עם תוצאות דומות, וכל רמות המתמחים השלימו אותו בהצלחה. בנוסף לציטומטריה של זרימה ויצירת ספריות scRNA-Seq, הפרוטוקול שימש לבידוד לימפוציטים חודרי גידול (TIL) ומקרופאגים הקשורים לגידול (TAM) לצורך אנליזה פונקציונלית ex vivo. בעוד שהתוצאות מדגימות שפרוטוקול הדיסוציאציה יכול לזהות אוכלוסיות תאים עיקריות, חשוב לציין שציטומטריה של זרימה ו-scRNA-Seq הם שונים מיסודם. ציטומטריה של זרימה נועדה לבחון תאים לצורך ביטוי של סמנים מרובים ברמת התא הבודד ומשתמשת ב-gating וב-sub-gating כדי להשיג מטרה זו. scRNA-Seq, לעומת זאת, נועד לזהות שינויים בביטוי גנים על פני מקבץ של תאים ללא gating ו-sub-gating.
פתרון בעיות בפרוטוקול כלל את הנושאים הבאים: 1) עיכול חלקי: עיכול דגימות רקמה מושפע רבות מדיסוציאציה פיזית. יש לקצוץ את הרקמה עד שהיאre דמויה למשחה, תוך פריסתה כדי לבחון את גודלם של חלקי הרקמה. שלב זה אורך זמן רב יותר מכפי שצפוי לעיתים קרובות. דיסוציאציה חלקית גורמת למספר מופחת של תאי סטרומה ותאי אפיתל בהשוואה לתאי מערכת החיסון. 2) חיוניות נמוכה: חיוניות התאים מושפעת מזמן העיכול ומהבטחה כי נשמר יחס של 2:1 בין collagenase type II ל-collagenase D. מחסור ב-collagenase type II יוביל לירידה משמעותית בחיוניות התאים. יתרה מכך, אם חיוניות הדגימה היא בין 70% ל-85%, מערכות מסחריות להסרת תאים מתים יעילות בשיפור החיוניות ומומלצות לפני הגשת הדגימות ליצירת ספריית scRNA-Seq. 3) כמות גבוהה של פסולת תאית: פסולת תאית היא לעיתים קרובות תופעת לוואי של דיסוציאציה פיזית ועיכול. הדרך היעילה ביותר להסרת הפסולת היא באמצעות תוך עם מדרג צפיפות או תמיסה מסחרית להסרת פסולת בעלת צפיפות נמוכה משמעותית. 4) התאוששות לקויה של המשקע: התאוששות לקויה של הדגימה מושפעת בעיקר מכמות הרקמה ההתחלתית. פרוטוקול זה עבר אופטימיזציה עבור שתי בלוטות חלב או גידולים בגודל בינוני שבין 10 ל-20 מ"ג. אם גודל דגימת המוצא קטן מבלוטת חלב אחת או גידול שגודלו קטן מ-~200 מ"מ3תשואת התאים תהיה נמוכה. אם גדלי הרקמות קטנים, ניתן להפחית את הנפחים ב-50%. באופן דומה, במקרה של גידולים גדולים או בלוטות חלב מרובות (יותר מ-4 בלוטות חלב או גידולים הגדולים מ-~25 מ"ג), ניתן להגדיל את הנפחים ל-1.5 ×. דגימות הגדולות מ-~25 מ"ג יש לחלק לצורך העיבוד. 5) איכות scRNA-Seq נמוכה: איכות ספריות ה-scRNA-Seq תלויה כמעט לחלוטין באיכות הדגימה המקורית. בעבודה עם רקמות גידול, התזמון של שלב ה-GEM (gel-bead in emulsion) הראשוני ויצירת ה-cDNA הוא חיוני. מסיבה זו, שימוש בפרוטוקול המעבר באופן טבעי לקיבוע RNA מיידי, כגון מערכת כימיקלית של תאים בודדים ל-RNA מקובע המבוססת על גשושים (probes), מסיר את גורם הזמן כמשתנה המשפיע על איכות הדגימה. עם זאת, הערכת איכות ה-RNA לפני הכניסה למסלול ה-scRNA-Seq מבטיחה שהספריות שיתקבלו יהיו בעלות ערך אינפורמטיבי. 6) מספר מקבצי תאים נמוך מהצפוי: כאשר תוצאות ה-scRNA-Seq מראות רמות נמוכות של ביטוי גנים במספר מצומצם של מקבצים ייחודיים, ניתן לרצף את הספריות שוב כדי להגדיל את מספר הקריאות (עומק הרצף). בנוסף, אם המחקר מתמקד בתאי מערכת החיסון בלבד, הטהרה של אוכלוסיית ה-CD45+ לפני יצירת הספריות תגביר את רגישות הרצף.
הפרוטוקול המסחרי לקיבוע ודיסוציאציה שהוזכר לעיל התגלה כבעייתי בעיבוד של רקמת שומן. בעיקר, רקמת השומן המקובעת הייתה צפה וקשה לדיסוציאציה נוספת ולסינון יעיל. מסיבה זו, רקמת שומן אינה מומלצת עבור הפרוטוקול המסחרי לקיבוע ודיסוציאציה שנעשה בו שימוש כאן. קיבוע הרקמה לפני הדיסוציאציה לתליה של תאים בודדים (single-cell suspension) ביטל שלבי בקרת איכות, כגון מדידות חיוניות לאחר הקיבוע ודיסוציאציה. דבר זה הקשה על הערכת איכות הדגימה לפני הגשתה לרצף scRNA-seq, שלב הכרחי בתהליך דיסוציאציית הרקמה. קיבוע רקמה לצורך scRNA-Seq עלול להוביל לדגרדציה של ה-RNA. ניתן להעריך את איכות ה-RNA על ידי בחינת אורך הקריאה של הנוקלאוטידים (nt) בדגימות תאים מקובעות. ככל שאחוז הדגימה עם קריאות של >200 nt גבוה יותר, כך האיכות טובה יותר. דגימות עם ציון שלמות RNA (RNA integrity score) יציגו >30% של הדגימה עם קריאות של >200 nt, וניתן יהיה להשתמש בהן ליצירת ספריות scRNA-Seq בביטחון גבוה. הדגימות המקובעות מבלוטת החלב של BALB וממרקמות גידול BALB NeuT שדווחו כאן הראו 83% ו-82% של קריאות >200 nt, בהתאמה.
רקמות בעלות תכולת שומן גבוהה, כגון בלוטות חלב, מהוות בעיה מכיוון שאדיפוציטים עלולים להפריע להפקת תכשירים תאיים באיכות גבוהה. רוב האדיפוציטים נשארים בחלקו העליון של המבחנה הקונית וניתן להסיರם באמצעות ואקום או על ידי שפיכת הנוזל העליון. מצאנו כי בלוטות חלב שומניות במיוחד, כגון אלו מנקבות עם רקע גנטי של New Zealand Obese (NZO), דורשות שלב נוסף: ניגוב חלקו העליון של המבחנה עם מטלית מעבדה נקייה וללא סיבים כדי להקל על הסרת האדיפוציטים, ולאחריו שלבי שטיפה נוספים להסרה מלאה של השומן. לרקמות חלב יש נטייה גם לתשואות נמוכות יותר. כדי לצמצם בעיה זו, דגימות מאוגדות במידת האפשר להגדלת תשואת התאים. עבור גידולים קשיחים מאוד, קיצוץ נאות הוא חיוני, שכן הוא מספק לקולגנאזים שטח פנים מופחת לעיכול בפרק הזמן הדרוש להפקת תאים בודדים בעלי חיוניות גבוהה.
עם זאת, לפרוטוקול זה יש מגבלות. עיכול מלא של תאי אפיתל לתליה יחידה הוא מאתגר כאשר משיגים תערובת תאים הטרוגנית. גידולי השד של BALB NeuT הם בדרך כלל קשיחים, עם קפסולת גידול ומרכיב סטורמלי חסון. לעומת זאת, איסוף של תאי מערכת חיסון חודרים דורש חשיפה מועטה לאנזים, וחשיפת יתר עלולה לשנות את המצב הפנוטיפי שלהם. לכן, כדי לאסוף תאי גידול ותאי סטורמה, יש למצוא פשרה כדי לשמר את האיכות של מגוון רחב זה של סוגי תאים, כולל נויטרופילים חודרים. לפיכך, הפרופורציות של תאי אפיתל ותאי סטורמה המתקבלים בפרוטוקול זה עשויות להיות נמוכות מאלו המיוצגות באמת ברקמה המקורית. פרוטוקול זה עבר אופטימיזציה באמצעות ניסיונות רבים שהעריכו יחסי אנזימי קולגנאז וזמני דיסוציאציה כדי לקבוע את הפרקטיקות הטובות ביותר לאיסוף דגימה הטרוגנית בעלת חיוניות גבוהה של תאים באיכות גבוהה. בשימוש בפרוטוקול זה, כיוונים עתידיים כוללים אנליזה פונקציונלית ex vivo של תאי מערכת חיסון חודרים במהלך תחילתם והתקדמותם של גידולי שד, במטרה לזהות חלונות הזדמנות לטיפול.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
הנתונים המוצגים במסמך זה נרכשו, בחלקם, באמצעות מכשור ב-Genomics Core (RRID: SCR_012406), בתמיכת המשרד למחקר וחדשנות (Office of Research & Innovation) של אוניברסיטת מישיגן סטייט.
עבודה זו מומנה על ידי CA278818.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| RPMI | Gibco | 11875-093 | |
| DNAse | Invitrogen | 18047019 | |
| קולגנאז D | סיגמא | 11088866001 | |
| קולגנאז II | Worthington Biochemical | LS004177 | |
| סרום עגל עוברי | VWR | 97068-085 | |
| PBS בריכוז 10x | Gibco | 70011-044 | |
| סודיום אזיד | VWR | 0639-250G | |
| MACS Smart Strainer, 70 µמ׳ | Miltenyi Biotec | 130-110-916 | |
| MACS Smart Strainer, 30 µמ' | Miltenyi Biotec | 130-110-915 | |
| EDTA | Millipore | 324506-100ML | |
| בופר לליזיס של RBC בריכוז 10x | eBioscience/Invitrogen | 00-4300-54 | |
| ערכה לקיבוע ולחדירה (Permeabilization) של Foxp3/גורמי שעתוק | eBioscience/Invitrogen | 00-5523-00 | |
| בופר צביעה Brilliant | Invitrogen | 00-4409-42 | |
| ערכה להסרת תאים מתים Mojosort | Biolegend | 580157 | |
| בופר Mojosort (פי 5) | Biolegend | 480017 | |
| ערכה לבידוד RNA מהיר (Quick-RNA Miniprep Plus Kit) | Zymo Research | R1057 | |
| ערכה לפירוק גידולים, עכבר | Miltenyi Biotec | 130-096-730 | |
| PDGFRα PerCP-eFluor710 | Invitrogen | 46-1401-80 | |
| Epcam eF450 | Invitrogen | 48-5791-82 | |
| CD11c APC | Biolegend | 117310 | |
| CD11b AF700 | Invitrogen | 56-0112-82 | |
| צבע לבדיקת חיוניות קבוע (Fixable Viability Dye) eF780 | Invitrogen | 65-0865-14 | |
| B220/CD45R AF488 | Biolegend | 103225 | |
| CD3 PE-Cy7 | Invitrogen | 25-0031-82 | |
| CD49b PerCP-eFluor710 | Invitrogen | 46-5971-82 | |
| CD8a BV480 | Invitrogen | 414-0081-80 | |
| CD4 SB600 | Invitrogen | 63-0041-82 | |
| CD45 BV711 | Invitrogen | 407-0451-80 | |
| FOXP3 APC | Invitrogen | 17-5773-82 | |
| Ly6G APC | Invitrogen | 17-5931-82 | |
| Ly6C PECy7 | Invitrogen | 25-5932-82 | |
| CD64 PerCP-eFluor710 | 46-0641-80 | ||
| TruStain | Biolegend | 101320 | |
| ערכה להבעת גנים 10x Genomics GEM-X Flex Gene Expression Reagent Kit | 10x Genomics | (https://www.10xgenomics.com/blog/answering-your-questions-about-single-cell-analysis-in607 clinical-ffpe-samples);1000781 | |
| ציטומטר זרימה Attune NxT | Thermo Fisher Scientific | משמש לאיסוף נתוני ציטומטריה של זרימה עם ערוצי לייזר אדום, כחול וסגול. | |
| FCS Express | תוכנת De Novo | משמש לניתוח נתוני ציטומטריית זרימה. | |
| ערכת פירוק גידולים של Miltenyi | ערכה מסחרית לפירוק גידולים | ||
| ערכה של Miltenyi / פרוטוקול של Miltenyi | הערכה המסחרית" או "ערכת הייחוס | ||
| אנזים Liberase | תערובת מסחרית של thermolysin/collagenase | ||
| קיבוע בשיטת Chop | פרוטוקול מסחרי לפירוק תאים המבוסס על קיבוע ראשוני | ||
| מערכת כימיה גמישה / מערכת Flex chemistry | כימיה של תא בודד ל-RNA מקובע המבוססת על גששים | ||
| Seurat | (https://satijalab.org/seurat/) | כלי אשכול (clustering) בקוד פתוח ובתוכנות מסחריות | |
| Cell Ranger | כלי מקבץ (clustering) בקוד פתוח ומספקים מסחריים | ||
| דפדפן התאים Loupe | כלי מקבץ (clustering) בקוד פתוח ובתוכנות מסחריות | ||
| EnrichR | <קישור ל-"(https://maayanlab.cloud/Enrichr/)">(https://maayanlab.cloud/Enrichr/) | כלים להעשרת קבוצות גנים ולאטלסי תאי ייחוס | |
| Tabula Muris | https://tabula400 muris.sf.czbiohub.org/visualizations | כלים להעשרת קבוצות גנים ולאטלסי תאי ייחוס | |
| Tabula Sapiens | <קישור ל-"https://tabula-sapiens.sf.czbiohub.org/">https://tabula-sapiens.sf.czbiohub.org/ | כלים להעשרת קבוצות גנים ואטלסי תאי ייחוס | |
| Cellometer K2" מכשיר ו- "אקרידין אורנג' / פרופידיום יודיד (AOPI)" | סופר תאים אוטומטי עם צביעת חיוניות באקרידין-כתום/פרופידיום-יודיד (AO/PI) | ||
| Kimwipe | מטלית מעבדה נטולת סיבים | ||
| STEMCELL Technologies | תווך בעל מדרג צפיפות (למשל, תווך מסוג Ficoll או Percoll) | ||
| Ficoll/Percoll | להבי סקלפל מספר 10 | ||
| שני סכיני מנתחים מספר 10 | |||
| Cellometer K2 + ריאגנט AOPI | סופר תאים אוטומטי עם צביעת חיוניות באקרידין-כתום/פרופידיום-יודיד (AO/PI) | ||
| STEMCELL Technologies | תאי גזע טכנולוגיות, www.stemcell.com, 2018 | ||
| Ficoll/Percoll | תווך בעל מדרג צפיפות | ||
| 10 סכיני ניתוח | להב סכין כירורגי | ||
| ערכה לקיבוע ולהחדרה (Permeabilization) עבור Foxp3/גורמי שעתוק | תמיסה זמינה מסחרית המאפשרת צביעה תוך-גרעינית |
מקורות
- Jacob JB, et al. Identification of actionable targets for breast cancer intervention using a diversity outbred mouse model. iScience. 2023;26(4):106320. doi:10.1016/j.isci.2023.106320.
- Jacob J, et al. Activity of DNA vaccines encoding self or heterologous HER-2/neu in HER-2 or neu transgenic mice. Cell Immunol. 2006;240(2):96–106.
- Radkevich-Brown O, Jacob J, Kershaw M, Wei WZ. Genetic regulation of the response to HER-2 DNA vaccination in human HER-2 transgenic mice. Cancer Res. 2009;69(1):212–8.
- Lee SH, et al. Activation function 1 of progesterone receptor is required for mammary development and regulation of RANKL during pregnancy. Sci Rep. 2022;12(1):12286. doi:10.1038/s41598-022-16289-x.
- Autengruber A, et al. Impact of enzymatic tissue disintegration on the level of surface molecule expression and immune cell function. Eur J Microbiol Immunol (Bp). 2012;2(2):112–20.
- Bondonese A, et al. Impact of enzymatic digestion on single cell suspension yield from peripheral human lung tissue. Cytometry A. 2023;103(10):777–85.
- Jankelow A, et al. Recent advancements in tissue dissociation techniques for cell manufacturing single-cell analysis and downstream processing. Stem Cells Transl Med. 2025;14(11):szaf055. doi:10.1093/stcltm/szaf055.
- Lombardo JA, et al. Microfluidic platform accelerates tissue processing into single cells for molecular analysis and primary culture models. Nat Commun. 2021;12(1):2858. doi:10.1038/s41467-021-23238-1.
- Sun H, Xu X, Deng C. Preparation of single epithelial cells suspension from mouse mammary glands. Bio Protoc. 2020;10(4):e3530. doi:10.21769/BioProtoc.3530.
- Rodriguez de la Fuente L, Law AMK, Gallego-Ortega D, Valdes-Mora F. Tumor dissociation of highly viable cell suspensions for single-cell omic analyses in mouse models of breast cancer. STAR Protoc. 2021;2(4):100841. doi:10.1016/j.xpro.2021.100841.
- Prater M, Shehata M, Watson CJ, Stingl J. Enzymatic dissociation, flow cytometric analysis, and culture of normal mouse mammary tissue. Methods Mol Biol. 2013;946:395–409.
- Burl RB, et al. Deconstructing adipogenesis induced by β3-adrenergic receptor activation with single-cell expression profiling. Cell Metab. 2018;28(2):300–9.e4.
- Rondini EA, et al. Single cell functional genomics reveals plasticity of subcutaneous white adipose tissue during early postnatal development. Mol Metab. 2021;53:101307. doi:10.1016/j.molmet.2021.101307.
- Sharifian Gh M, Norouzi F. Guidelines for an optimized differential centrifugation of cells. Biochem Biophys Rep. 2023;36:101585. doi:10.1016/j.bbrep.2023.101585.
- Pohlmann PR, Mayer IA, Mernaugh R. Resistance to trastuzumab in breast cancer. Clin Cancer Res. 2009;15(24):7479–91.
- Gajria D, Chandarlapaty S. HER2-amplified breast cancer: mechanisms of trastuzumab resistance and novel targeted therapies. Expert Rev Anticancer Ther. 2011;11(2):263–75.
- Swain SM, et al. Pertuzumab, trastuzumab, and docetaxel for HER2-positive metastatic breast cancer (CLEOPATRA): end-of-study results from a double-blind, randomised, placebo-controlled, phase 3 study. Lancet Oncol. 2020;21(4):519–30.
- Swain SM, Shastry M, Hamilton E. Targeting HER2-positive breast cancer: advances and future directions. Nat Rev Drug Discov. 2023;22(2):101–26.
- Boggio K, et al. Interleukin 12-mediated prevention of spontaneous mammary adenocarcinomas in two lines of HER-2/neu transgenic mice. J Exp Med. 1998;188(3):589–96.
- Gsell L, et al. Multi-cellular phenotypic dynamics during the progression of an immunocompetent breast cancer model. iScience. 2025;28(11):113808. doi:10.1016/j.isci.2025.113808.
- Kilroy G, et al. Isolation of murine adipose-derived stromal/stem cells for adipogenic differentiation or flow cytometry-based analysis. Methods Mol Biol. 2018;1773:137–46.
- Orr JS, Kennedy AJ, Hasty AH. Isolation of adipose tissue immune cells. J Vis Exp. 2013;(75):e50707. doi:10.3791/50707.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב