מודלים של עכברים הם כלי מרכזי בקידום הבנתנו לגבי התפתחות עוברית. כאן, אנו מתארים פרוטוקול לצביעת חלבונים ותמלי RNA בעוברי עכבר מקובעים בשלמותם, וכיצד לבצע ניתוח כמותי של הצביעה המתקבלת בתלת-ממד. טכניקות אלו מאפשרות ויזואליזציה וניתוח של סוגי תאים ותהליכי מפתח במהלך ההתפתחות.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
שיטות אופטימליות לבחינת ביטוי של חלבונים ותעתוקי RNA במהלך התפתחותי בעוברים של עכברים בשיטת Whole-mount
167 צפיות
⸱
11 בספטמבר 2026
במאמר זה
סיכום
תקציר
מודלים של עכברים היו מכשירים מרכזיים בקידום הבנתנו לגבי התפתחות עוברית. ניתוח של ביטוי ומיקום של חלבונים ותמלילים בתוך עוברים הוא קריטי להבהרת המנגנונים התאיים והמולקולריים העומדים בבסיס ההתפתחות והמחלה. עם זאת, טכניקות מסורתיות המשמשות לניתוח תמלילים וחלבונים בעוברי עכברים הן מוגבלות. היברידיזציה של RNA in situ מאפשרת צביעה של תמלילים בשיטת whole-mount, אך חסרה יכולת ריבוי (multiplexing). לעומת זאת, חיתוך של עוברים מאפשר צביעה של מספר מטרות, אך רק בשני ממדים (2D). לאחרונה, טכניקות כגון RNAscope וצביעה אימונופלואורסצנטית הוחלו על עוברים בשיטת whole-mount, מה שמאפשר ריבוי של מטרות בשלושה ממדים (3D). שיטות אלו מאפשרות מיפוי של אינטראקציות מפתח, מסלולים וסוגי תאים הדרושים להתפתחות עוברית ללא המגבלות של הטכניקות המסורתיות.
כאן אנו מתארים שיטות אופטימליות לצביעה שלם-דגימה (whole-mount) של עוברי עכבר מקובעים בימים embryonal day (E) 8.5 ו-E9.5, תוך שימוש ב-RNAscope או באימונופלורסנציה. שתי השיטות מאפשרות זיהוי מרובה (multiplexed) של עד 4 מטרות בו-זמנית בעובר בודד. כמו כן, אנו מציגים שיטה לשילוב של צביעת אימונופלורסנציה עם RNAscope באותו עובר, כדי להדגים את האינטראקציה בין חלבונים לטרנסקריפטים במהלך ההתפתחות. בנוסף, אנו מתארים תהליך עבודה (pipeline) של דימוי קונפוקאלי וניתוח תלת-מדי של ביטוי המטרות לאורך העובר כולו ובתוך סוגי תאים התפתחותיים מוגדרים, באמצעות תוכנת Zeiss Arivis Pro. יחד, שיטות אלו מאפשרות ניתוח מקיף של מטרות חלבון וטרנסקריפט מרובות בתלת-ממד, ובכך מספקות מערכת עוצמתית לפירוק והבנת אינטראקציות תאיות ומולקולריות בשלבים המוקדמים עד האמצעיים של האמ בריוגנזה.
מבוא
מודלים של עכברים היו חיוניים לקידום ההתקדמות בביולוגיה התפתחותית, בכך שאפשרו הבנה של תהליכים התפתחותיים הרלוונטיים לבני אדם in vivo הודות להומולוגיה בין ההתפתחות של עכברים לבני אדם והיכולת לווסת ביטוי גנים באמצעות טכניקות מפתח כגון Cre-LoxP או CRISPR/Cas91,2. כ-90% מהאזורים הגנומיים שמורים בין עכברים לבני אדם3, ועכברים ובני אדם חולקים תהליכי התפתחות רבים. לדוגמה, הן עכברים והן בני אדם עוקבים אחר ציר זמן דומה של אמ בריוגנזה, הכולל היווצרות של זיגוט המתפתח לבלסטוציסט, ולאחריו השתחלה וגסטולציה4. יתרה מכך, התפתחותם של מרבית האיברים דומה בין עכברים לבני אדם. לדוגמה, הלב של בני אדם ושל עכברים עוקב אחר רצף דומה של קיפול לבבי (cardiac looping), הפרדה של העליות והחדרים, היווצרות מסתמים והיווצרות נתיבי זרימה כדי ליצור לב בעל ארבעה חדרים5. לפיכך, הן ללב של עכבר והן ללב של בן אדם, בשלבי התפתחות או לאחר התפתחות מלאה, יש דמיון מבני משמעותי6,7.
על מנת לחקור את התהליכים המתרחשים בהתפתחות נורמלית ופתולוגית, פותחו טכניקות מרובות המאפשרות ויזואליזציה מרחבית של חלבונים ותסכירי RNA מרכזיים. טכניקות אלו כוללות צביעה באימונופלואורסצנציה וטיביית RNA in situ .
היברידיזציה של RNA in situ תוארה לראשונה על ידי Gall ו-Pardue8 ועל ידי John, Brinstall ו-Jones בשנת 19699, ועל ידי Buongiorno-Nardelli ו-Amaldi10 בשנת 1970. היא משמשת לבחינת ביטוי של תמלילים ברקמה8. בקצרה, נבחרים גששים המכילים רצף RNA המשלים למטרה הרצויה, והם מסומנים במסמנים לצורך זיהוי. מסמנים אלו כוללים סימונים רדיואקטיביים, ביוטין או דיגוקסיגנין. דגימות מקובעות עוברות פרמיליזציה כדי לאפשר חדירת גששים, ולאחר מכן הגש עובר היברידיזציה לרקמה. ניתן לאחר מכן לדגום את הרקמות ישירות במידה והן סומנו רדיואקטיבית, או להדמיות את המסמנים באמצעות נוגדנים המצומדים לפוספטאזה אלקלית או לצבע פלואורסצנטי. להיברידיזציה של RNA in situ יש את היתרון של יכולת צביעה של דגימות whole-mount לצורך מיקום תלת-מדי1. עם זאת, היא מוגבלת בדרך כלל בשל היעדר יכולת Multiplexing של יותר מ-2 מטרות, אלא אם נעשה שימוש בטכניקות אופטימליות עם יישומים ספציפיים מאוד, או בשימוש בהיברידיזציה של DNA, כגון M-FISH, המשמשת לסימון פלואורסצנטי של כרומוזומים12,13.
אימונופלואורסצנציה, שפותחה לראשונה בשנת 1941 על ידי Coons et al.14,15, היא שיטה לגילוי חלבון מטרה בדגימות מקובעות או קפואות. בקצרה, הדגימות עוברות חסימה (blocking) כדי להפחית קישור לא ספציפי לאזורים ברקמה שאינם אזורי המטרה. לאחר מכן, מדגרירים את הדגימות עם נוגדן ראשוני הספציפי לאנטיגן המטרה. נוגדנים ראשוניים יכולים להיות מצומדים ישירות לצבע או לחלבון פלואורסצנטי, או שניתן לסמן אותם באמצעות נוגדן שני המצומד לפלואורופור ומכוון נגד המין שבו הופק הנוגדן הראשוני. היתרון בשימוש בנוגדנים שניים על פני נוגדנים ראשוניים מצומדים ישירות הוא הגברת האות, מה שמוביל לרגישות גבוהה יותר. ניתן להשתמש במספר נוגדנים ראשוניים שהופקו במינים שונים כדי לבצע גילוי רב-מטרתי (multiplex), תוך שימוש בנוגדנים מצומדים ישירות או בנוגדנים שניים המצומדים לפלואורופורים בעלי ספקטרי עירור ופליטה שונים.
טכניקות מסורתיות כגון היברידיזציה של RNA in situ ואימונופלואורסצנציה הן מוגבלות. בדרך כלל, היברידיזציה של RNA in situ מאפשרת גילוי של מטרה אחת בלבד בדגימה, ולכן היכולת לבחון אינטראקציות בין סוגי תאים ומסלולים שונים היא מוגבלת ביותר. יתרה מכך, אימונופלואורסצנציה מבוצעת באופן מסורתי בחתכי רקמה ולא ב-whole-mount, מה שמגביל את הרזולוציה המרחבית לממד שני (2D). טכניקות עדכניות יותר התמקדו בריבוי (multiplexing) של גילוי מטרות במערכות תלת-מדיות (3D). אופטימיזציה של פרוטוקולי אימונופלואורסצנציה אפשרה את השימוש בטכניקה ב-whole-mount16. בנוסף, פותחו טכניקות המאפשרות ריבוי של גילוי תסריטים (transcripts) באמצעות שימוש ב probes המסומנים פלואורסצנטית, באופן דומה לאימונופלואורסצנציה.
שיטת RNAscope תוארה לראשונה בשנת 2012 על ידי Wang et al. היא מבוססת על טכנולוגיית היברידיזציה של RNA in situ17, המאפשרת זיהוי מרחבי של תמלילים בדגימות מקובעות. בקצרה, דגימות מקובעות עוברות פרמיליזציה, המאפשרת חדירה של פרובים למטרה הנקשרים לרצפי תמליל משלימים. לפרובי RNAscope יש "תכנון double-Z" המורכב מאזור ספציפי לאזור של 18–25 זוגות בסיסים של RNA המטרה, אזור זנב המכיל 14 זוגות בסיסים, ואזור מפריד (spacer) המקשר בין שני "פרובי Z". שני אזורי הזנב יחד יוצרים אזור של 28bp הנקשר לקדם-מגביר (pre-amplifier). זוגות של פרובי Z קשורים מוגברים לאחר מכן באמצעות קישור של רצף מגבירים הנקשרים לאתרים על גבי הקדם-מגביר. ניתן לכוון את המגבירים באופן ספציפי באמצעות פרובים מסומנים במרקרים פלואורסצנטיים או בחזרית פרוקסידאז (HRP). הרעיון מאחורי תכנון ה-double Z של הפרובים הוא למנוע הגברה של פרובים שאינם קשורים, ובכך להפחית הגברה לא ספציפית, בעוד שהשימוש במספר מגבירים נועד להגביר את הרגישות. היתרון של RNAscope על פני היברידיזציה של RNA in situ הוא היכולת לבצע זיהוי רב-תמלי (multiplex) בדגימה אחת באמצעות שימוש במרקרים פלואורסצנטיים נבדלים עבור כל מטרה. RNAscope נמצא בשימוש נרחב בחתכים של דגימות מקובעות בפורמלין ומוטמעות בפראפין, מה שמאפשר זיהוי מרחבי של תמלילים ב-2D18. מחקרים עדכניים יותר תיארו צביעת RNAscope של דגימות שלמות (whole-mount) בעוברים של עכבר, המאפשרת ניתוח תלת-מדי (3D) של תהליכי פיתוח מרכזיים19.
כאן אנו מתארים שיטות מותאמות לצביעת עוברים של עכברים בשלבים E8.5 ו-E9.5 מקובעים בשיטת whole-mount, תוך שימוש הן בהיברידיזציה של RNAscope in situ והן באימונופלואורסצנציה. פרוטוקול זה מתאר שיטה מעודכנת לשילוב של אימונופלואורסצנציה ו-RNAscope אשר יעילה עבור עוברים בשלבים E8.5/E9.5 בשיטת whole-mount, מאפשרת הוספת ערוץ נוסף לצביעת RNAscope ב-whole-mount על ידי שילוב צביעה באמצעות גשושית RNAscope רביעית בשילוב עם הפלואורופור Opal 780, ומפרטת שיטה רחבת יישום לניתוח של עוברים צבועים. ניתן להשתמש בשיטות אלו כדי לקדם את הידע על תהליכי התפתחות מרכזיים, כגון נדידת תאים ומסלולי איתות, על ידי אפשור ויזואליזציה מרובת ערוצים (multiplexed) של עד 4 מטרות של חלבונים ותמלי RNA באמצעות צביעת אימונופלואורסצנציה ו-RNAscope, וניתוח תלת-מדי כמותי בעוברים של עכברים בשלבים E8.5/E9.5 בשיטת whole-mount במהלך ההתפתחות.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
כל הניסויים בבעלי חיים בוצעו בהתאם לחוק בעלי החיים (הליכים מדעיים) של בריטניה משנת 1986 ואושרו על ידי ועדת ביקורת רווחת בעלי החיים של אוניברסיטת אוקספורד וה-Home Office (רישיון פרויקט PP7967396).
1. דיסקציה, דהידרציה ואחסון של עוברי עכבר בשלבים E8.5 ו-E9.5
- יש לבצע קולינג (culling) לנקבות ההרה בשיטה מאושרת ביום ה-8.5 או ה-9.5 להריון (E8.5 או E9.5).
הערה: עכברים במחקר זה הוקרבו באמצעות פריקה צווארית, ולאחריה אישור מוות באמצעות דימום (exsanguination). הדימום מבוצע על ידי ביצוע חתך בחדרי הלב, המקל על הדימום. ניתן להשתמש בשיטות אחרות, כגון שאיפת CO2, אך אלו לא נבחנו בפרוטוקול זה. - פתחו תחילה את הבטן על ידי חיתוך דרך העור, ולאחר מכן דרך דופן הבטן.
הערה: יש להעביר על העכברים מטליל עם אתנול 70% כדי להפחית קשקשים וזיהום חיידקי. בעת פתיחת דופן הבטן, חשוב להרחיק את הדופן מהבטן ולאחר מכן לבצע חתך קטן. יש לחתוך את דופן הבטן בצורת V, תוך הימנעות מחיתוך שגוי של הרחם. - הסר את הרחם על ידי חיתוך בנקודת המפגש של הרחם עם הנרתיק. עבור שני קרני הרחם, הפר את הרחם מהשומן הבטני באמצעות חתכים קטנים עד להגעה לשחלה.
הערה: מומלץ לרשום את מיקומו של כל עובר בתוך הרחם. יש להוציא את השחלה יחד עם הרחם כדי לסייע בשמירה על האוריינטציה. - גזרו בנפרד עובר בודד מקרן הרחם, בתוך הרחם הסובב אותו, והניחו אותו בצלחית המכילה 1× תמיסת מלח בסיסית של הנקס (Hanks’ Basic Salt Solution) עם 5mM EDTA.
- באמצעות פינצטה עדינה, קלפו בעדינות את הרחם מהעובר, מהשלשייה ומהדסידואה המקיפה את שניהם.
- זהו את נקודת המפגש בין השליה לבין חלק הדסידואה האימהית המקיף את העובר; אמור להיות הבדל קל בצבע בין שני חלקים אלו. הפר את העובר בזהירות על ידי חיתוך דרך הדסידואה האימהית כדי לנתק את השליה ולחשוף את העובר.
- הפרידו בעדינות את העובר מתוך שק החלמון מהרקמות שנותרו. בעזרת פינצטה עדינה, הסירו את שק החלמון המקיף את העובר. הסירו את השליה (amnion). ספרו את הסומיטים כדי לקבוע את שלב ההתפתחות העוברי המדויק.
הערה: שק החלמון מקיף את העובר והוא עבה ועכור יותר. השליה (amnion) דקה, שקופה ונצמדת היטב לעובר. יש להסירה בזהירות כדי להבטיח חדירה של הגששים/נוגדנים בשלבי ההמשך. בעוברים מבוגרים יותר, ניתן ליצור חור באזור הראש באמצעות פינצטה עדינה כדי למנוע לכידה של הגשש בחדרי המוח המתפתחים. בשלב זה חשוב להסיר כמה שיותר משק החלמון. שאריות של שק החלמון פולטות פלואורסצנציה חזקה כאשר נעשה שימוש בנוגדנים שניוניים נגד עכבר (anti-mouse). - אופציונלי: שמור את שקי החלמון לצורך גנוטיפינג על ידי שטיפה ב- 500 µL של PBS או אתנול 70%, בהתאם לבדיקת הגנוטיפיקה שתבוא בהמשך, בתוך מבחנת Eppendorf של 1.5 מ"ל, כדי להסיר דם מזוהם. החזיקו את שק החלמון ב-PBS באמצעות פינצטה עדינה וערבבו ידנית. קחו את שק החלמון השטוף והניחו אותו במבחנת Eppendorf נקייה של 1.5 מ"ל או בלוחית לגנוטיפיקה. אחסנו למשך עד 4 שבועות ב-20 °C או להמשיך לטכניקת מיצוי ה-DNA המועדפת.
- באמצעות פיפט פסטור של 2 מ"ל מפוליאתילן בצפיפות נמוכה (LDPE), העבירו בעדינות את העובר למבחנת Eppendorf בעלת תחתית עגולה בנפח 2 מ"ל, המכילה 1 מ"ל של פראפורמאלדהיד (PFA) בריכוז 4% (ממלאי טרי או ממלאי מאגר קפואים), תוך הקפדה להוסיף כמות מינימלית של תמיסת דיסקציה ל-PFA.
הערה: בעת נתיצת עוברים בשלב E9.5, חתכו את קצה פטט פסטור (Pasteur pipette) בזווית כדי להגדיל את גודל הפתח. פעולה זו חשובה כדי למנוע פגיעה בעובר במהלך השאיבה בפיפטה. השימוש במבחנות Eppendorf בנפח 2 מ"ל עם תחתית עגולה הוא חשוב כדי למנוע מהעובר להיתקע בתחתית המבחנה ולאפשר הוצאה קלה יותר. הימנעו ממחזורי הקפאה והפשרה חוזרים של PFA.
זהירות: PFA הוא רעיל ומסרטן. השתמשו בציוד מיגון אישי (PPE) מתאים והימנעו משאיפה או מבליעה. PFA באבקה הוא מסוכן בשאיפה; לפיכך, יש להכינו במנדף כימיים. - דגרו את העובר ב-4% PFA למשך 16–24 שעות ב- 4 °C בנעור עדין, כאשר המבחנות ניצבות בזווית ישרה לכיוון הנעור.
- יש לבצע דהידרציה לעובר באמצעות שטיפות בסדרת מתנול. באמצעות פיפטות פסטור מ-LDPE, תוך הקפדה לא לשאוב את העובר, יש להסיר את ה-PFA ולהוסיף 1 מ"ל PBS. יש לשטוף במשך 10 דקות בטמפרטורת החדר (RT) תוך נדנוד עדין, כאשר המבחנות נמצאות ב- 90° למישור הנענדנון. חזור על השטיפות ב-25%, 50%, 75% ו-2× 10% מתנול ב-PBS.
- החליפו את שטיפת ה-10% מתנול האחרונה ב-1.5 מ"ל של 100% מתנול טרי ואחסנו ב-20 °C.
הערה: ניתן לאחסן דגימות למשך שנים בטמפרטורה של -20 °Cיש להקפיד למנוע התאיידות.
זהירות: מתנול הוא חומר דליק ורעיל. יש להשתמש בציוד מגן אישי (PPE) מתאים ולאחסן בארון לחומרים דליקים. אין לשאוף או לבלוע.
2. צביעת עוברים שלמים בשלבים E8.5 ו-E9.5 עבור חלבונים באמצעות אימונופלורסצנציה
הערה: כל שלבי השטיפה מבוצעים בנפח של 1 mL בתוך מבחנה של Eppendorf בעלת תחתית עגולה בנפח 2 mL. בצעו את שלבי השטיפה בנפח 1 mL תוך נדנוד עדין, כאשר המבחנות ניצבות בזווית של 90° למישור הנדנוד. הסירו והחליפו את הנוזל באמצעות פיפטת פסטור LDPE בנפח 2 mL, תוך הקפדה לא לשאוב את העובר. בעת שימוש בעוברי E9.5, חתכו את קצה פיפטת הפסטור כדי למנוע נזק לעובר במקרה של שאיבה בשוגג. דללו את המטנול ב-PBS. ניתן לצבוע את העוברים באופן פרטני או במבחנה עם עד 12 עוברים מאוגדים. עבור עוברי E9.5: ניתן לצבוע עד שני תנאים במבחנה אחת. במידה ומשתמשים במספר תנאים, חתכו את הזנב של אחת הקבוצות כדי שניתן יהיה להבדיל ביניהן במהלך הדמיה.
- הוציאו את העוברים מהאחסון ב-20 °C והמתינו שיגיעו לטמפרטורת החדר (RT) של 20–26 °C במשך 10–20 דקות. ודאו שלעוברים יש מספר סומיטים דומה כדי להבטיח השוואה של שלבי התפתחות דומים.
- בצעו הלבנה וחדירה (Permeabilization) של העוברים בתמיסה של מתנול 10%: דימתיל סולפוקסיד (DMSO): מימן חמצן (Hydrogen peroxide) 30% ביחס של 4:1:1 למשך שעתיים.
זהירות: מימן חמצן הוא חומר מאכל וגורם לגירוי. הוא עלול לגרום לנזק חמור לעיניים ולהיות מזיק בבליעה. אם מימן חמצן פגע בעין, יש לשטוף במים במשך מספר דקות. מימן חמצן מהווה סיכון לסביבה ימית; יש להשליכו במתקן מאושר לפינוי פסולת. יש להשתמש בציוד מגן אישי (PPE) מתאים, כולל הגנה על העיניים. אין לבלוע. - חממו מראש את גוש החימום (Heat block) ל-98 °C, והכינו את בופר חשיפת האנטיגנים מציטראט (Citrate unmasking buffer) על ידי דילול של 10 µL מבופר חשיפת האנטיגנים מציטראט ב-10.7 mL של מים מזוקקים.
- בצעו רהידרציה לדגימות על ידי שטיפה במתנול 70%, לאחר מכן שטיפה במתנול 50%, מתנול 25%, ולאחר מכן ב-PBS למשך 10 דקות כל אחת ב-RT תוך써 נדנוד (Rocking).
- חממו מראש את בופר חשיפת האנטיגנים מציטראט ל-98 °C באמצעות גוש החימום שחומם מראש למשך 20 דקות לפחות. שטפו את העוברים בבופר חשיפת האנטיגנים מציטראט למשך 3 × 10 דקות ב-RT.
- לאחר השטיפות ב-RT, הוסיפו לבופר חשיפת האנטיגנים מציטראט שחומם מראש לעוברים וחממו בגוש החימום ב-98 °C למשך 10 דקות. הוציאו מהחימום והמתינו לקירור למשך 40 דקות לפחות.
הערה: אין להשתמש בבופר חשיפת האנטיגנים מציטראט לשחזור אנטיגנים בעוברים בשלב E8.5, שכן הדבר עלול להוביל להתפרקות (Dissociation) של העובר. עוברים עלולים להפוך לדביקים כאשר הם נמצאים בבופר חשיפת האנטיגנים מציטראט, לכן יש לשמור את השטיפות במצב סטטי כדי למנוע נזק לעוברים עקב התגבשות. - שטפו את העוברים למשך 3 × 10 דקות ב-PBS + 0.1% Triton-X ב-RT תוך נדנוד. בצעו חסימה (Blocking) לעוברים למשך 16–24 שעות במינימום של 150 µL למבחנה של PBS + 0.1% Triton-X + 10% סרום חמור נורמלי ב-4 °C תוך נדנוד.
- הכינו את הנוגדנים הראשוניים על ידי דילולם ב-PBS + 0.1% Triton-X + 10% סרום חמור נורמלי בריכוזים המומלצים שעה לפני ההוספה לעוברים, ושמרו ב-4 °C.
- הסירו את תמיסת החסימה מהעוברים והוסיפו מינימום של 150 µL למבחנה מתמיסת הנוגדן המדוללת. דגרו למשך 1–3 ימים ב-4 °C תוך נדנוד.
הערה: ניתן לבצע מולטיפלקס (Multiplexing) לנוגדנים ראשוניים כל עוד כל נוגדן הופק במין שונה. שימוש בנוגדנים שהופקו בעכברים, ובנוגדנים משניים אנטי-עכברים בעקבותיהם, עלול להוביל לצביעה לא ספציפית חזקה. לחלופין, במקרים מסוימים, ניתן לבצע מולטיפלקס לנוגדנים ראשוניים ממין אחד, כאשר הנוגדנים הראשוניים הם מאיזוטייפ שונה ומשולבים עם נוגדנים משניים ספציפיים לאיזוטייפ. - שטפו את העוברים ב-PBS + 0.1% Triton-X, ולאחר מכן שטפו את העוברים למשך 6 × 30 דקות ב-PBS + 0.1% Triton-X ב-RT.
- בצעו חסימה לנוגדן המשני על ידי דילול של נוגדנים משניים מתאימים המצומדים לפלואורסצנציה ו-DAPI (או סמן גרעיני חלופי) ב-0.1% Triton-X + 10% סרום חמור נורמלי בריכוזים המומלצים שעה לפני ההוספה לעוברים ב-4 °C בחושך.
- הסירו את השטיפה והוסיפו לעוברים את תמיסת הנוגדן המשני המדוללת ודגרו למשך 16–24 שעות ב-4 °C תוך נדנוד בחושך.
הערה: אנו ממליצים להשתמש בנוגדנים משניים המצומדים לפלואורסצנציה מהסוג F(ab) fragment במקום בנוגדנים שלמים. מקטעי F(ab) קטנים יותר, ולכן בעלי חדירה טובה יותר לרקמה, והיעדר אזור ה-Fc מסייע להפחית רקע לא ספציפי. - שטפו את העוברים ב-PBS + 0.1% Triton-X, ולאחר מכן שטפו את העוברים למשך 6 × 30 דקות ב-PBS + 0.1% Triton-X ב-RT תוך נדנוד בחושך. שמרו עד 4 שבועות ב-PBS + 0.1% Triton-X ב-4 °C בחושך.
3. צביעת עוברים שלמים בשלבים E8.5 ו-E9.5 לזיהוי תמלילים באמצעות RNAscope
הערה: כל שלבי השטיפה הם בנפח של 1 mL, ומבוצעים באבוב Eppendorf של 2 mL. בצעו את שלבי השטיפה של 1 mL תוך נדנוד עדין כאשר האבובים ניצבים בזווית של 90° למישור הנדנוד. הסירו והחליפו את הנוזל באמצעות פיפטת פסטור LDPE של 2 mL, תוך הקפדה לא לשאוב את העובר. בעת שימוש בעוברים בשלב E9.5, חתכו את קצה פיפטת הפסטור כדי למנוע פגיעה בעובר במקרה של שאיבה בשוגג. יש לדלל את המטנול ב-PBS. הפעילו את תנור ההיברידיזציה לפני התחלת העבודה בטמפרטורה של 40 °C עם מעט רקמה לחה בתחתית. ניתן לצבוע עוברים באופן פרטני או באבוב המכיל עד 12 עוברים מאוגדים. עבור עוברים בשלב E9.5: ניתן לצבוע עד שני תנאים באבוב בודד. בשימוש במספר תנאים, חתכו את הזנב של אחת הקבוצות כדי שניתן יהיה להבחין ביניהן במהלך הדימות.
- יש להכין את משטח העבודה, את הפפיטות ואת המעמד על ידי ניקוי באתנול 70%, ולאחר מכן בתמיסה לדה-קונטמינציה של RNase.
- בצעו רהידרציה לעוברים באמצעות סדרת מהילה מדורגת של מתנול ב-PBS בריכוזים של 75%, 50%, 25%, PBS, ו-PBS + 0.1% Tween 20, למשך 5 דקות בכל שלב תוך כדי נדנוד עדין.
- בצעו פרמיליזציה לעוברים על ידי הדגרה ב-75 µL (3 טיפות) של protease III למשך 20 דקות בטמפרטורת החדר (RT) תוך נדנוד אנכי.
הערה: ניתן לבצע אופטימיזציה של זמן החדירה (permeabilization) בהתאם לשלב העוברי או לגודלו. זמן של 20 דקות יעיל עבור עוברי E8.5/E9.5, אך ייתכן שיידרשו זמני דגירה ארוכים יותר כדי לראות מבנים עמוקים יותר בעוברי E9.5. שלבי חדירה ממושכים מדי עלולים להוביל להתפרקות (dissociation) של העובר. - שטפו את העוברים ב-PBS + 0.01% Tween 20 למשך 3 × 5 דקות.
- הכינו גששים של RNAscope על ידי הוספת כמות של בערך 150 µL (כ-6 טיפות) של גששים מסוג C1 לתוך מבחנה מסוג Eppendorf. לדלל גששים מסוג C2–C4 בתוך הגש מסוג C1 בריכוז של 1:50 ולהדגיר במצב אנכי בתנור היברידיזציה ב- 40 °C במשך 10 דקות לפני ההנחה על העוברים.
הערה: עבור כל סט של גששים (probes) של RNAscope בניסוי, 'C' מציינת את הגדרת הערוץ. נדרש גשש C1, שכן כל שאר הגששים מדוללים בגש C1. ודאו שבתערובת כל אחת נעשה שימוש בגש אחד בלבד מכל הגדרת ערוץ. ניתן להשתמש שוב בתערובת הגששים לפחות פעם אחת× אם מאוחסן ב- 4 °C למשך עד 6 שבועות. - הסר את השטיפה האחרונה והוסף 150 µL של תערובת הגששים לכל מבחנה של עוברים. דגרו בתנור היברידיזציה במצב אנכי למשך 16–24 שעות ב- 40 °C.
- הסר את תערובת הגששים (probe mix) ושטוף ב-0.2× בופר Saline-Sodium Citrate (SSC) + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
- קבעו את העוברים לאחר מכן ב-4% PFA בטמפרטורת החדר (RT) תוך כדי נטילה עדינה, כאשר המבחנות נמצאות ב- 90° למישור הנדנוד.
- שטוף ב-0.2× בופר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
- דגרו את הדגימות במשך בערך 150 µL (6 טיפות)/מבחנה של ריאגנט Amp1 למשך 30 דקות ב- 40 °C בתנור היברידיזציה, תוך שמירה על השפופרות במצב אנכי.
- שטוף ב-0.2× בופר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
- דגרו את הדגימות בערך 150 µL (6 טיפות)/מבחנה של ריאגנט Amp2 למשך 30 דקות ב- 40 °C בתנור היברידיזציה, תוך שמירה על המבחנות במצב אנכי.
- שטוף ב-0.2× בופר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
- דגרו את הדגימות בערך 150 µL (6 טיפות)/מבחנה של ריאגנט Amp3 למשך 15 דקות ב- 40 °C בתנור היברידיזציה, תוך שמירה על השפופרות במצב אנכי.
- שטוף ב-0.2× בופר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
- דגרו ב- 150 µL (6 טיפות) HRP-C1 למשך 15 דקות ב- 40 °C במצב אנכי בתנור היברידיזציה. שטוף ב-0.2× בופר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
- דגרו את הדגימות עם פלואורופור המדולל בבופר TSA למשך 30 דקות ב- 40 °C בתנור היברידיזציה, תוך שמירה על המבחנות במצב אנכי.
הערה: ניתן להשתמש בפורופורים של RNAscope עבור גששים שונים. TSA-vivid 570 הוא הבהיר ביותר, לאחר מכן TSA-vivid 650, ולאחר מכן TSA-vivid 520. יש לבחור את הפלואורופורים בהתאם לשפע הצפוי של הגש. - שטוף ב-0.2× בופר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
- דגרו את הדגימות בחושך למשך בערך 150 µL (6 טיפות)/מבחנה של ריאגנט חוסם HRP למשך 15 דקות ב- 40 °C בתנור היברידיזציה, תוך שמירה על המבחנות במצב אנכי.
- שטוף ב-0.2× בופר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
הערה: ניתן להשהות את הפרוטוקול בשלב זה למשך 16–24 שעות על ידי השארת העוברים בשטיפה האחרונה בטמפרטורת החדר (RT). - חזרו על שלבים 3.16–3.20 עבור כל אחת מהגששים C2–C4, במידה והם בשימוש, והחליפו את HRP-C1 ב-HRP C2/C3/C4 לפי הצורך. השתמשו בפלואורופור שונה עבור כל גש נפרד.
הערה: בשימוש בגששים מסוג C4, נדרשים ערכת העזר RNAscope 4-plex והפלואורופור Opal 780. יש להשתמש ב-Opal 780 רק כאשר נדרש Multiplexing של 4 גששים, ויש להשתמש בו כפלואורופור האחרון, כיוון שהוא רגיש לפירוק. בעת בחירת פלואורופורים, חשוב להתחשב ביכולותיה של פלטפורמת המיקרוסקופיה שבה תשתמשו. יש לוודא תמיד שמערכת הדימוג כוללת אורכי גל עירור מתאימים, סינון פליטה ורגישות גלאי עבור כל הגששים שנעשה בהם שימוש. בעת צביעה ב-Opal 780, החליפו את שלבים 3.17–3.19 בביצוע הפעולות הבאות:- דגרו את הדגימות ב- 150 µL/tube TSA-DIG (מדולל 1:10 בבפר TSA) למשך 30 דקות בטמפרטורת החדר עם נדנוד עדין.
- שטוף ב-0.2× בופר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
- דגרו את הדגימות בחושך במשך בערך 150 µL (6 טיפות)/מבחנה של ריאגנט חוסם HRP למשך 15 דקות ב- 40° בתנור היברידיזציה, תוך שמירה על השפופרות במצב אנכי.
- שטוף ב-0.2× בופר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר.
- דגרו את הדגימות ב- 150 µL/tube של Opal Polaris 780 המדולל ב-Antibody Diluent/Block למשך 45 דקות ב- 40 °C בתנור היברידיזציה, תוך שמירה על המבחנות במצב אנכי
- הדגרירו את הדגימות בחושך למשך בערך 150 µL של DAPI המדולל בבופר SSC בריכוז 0.2x + 0.1% Tween 20 (ריכוז עבודה 1µg/mL) למשך 16–24 שעות ב- 4 °C בעזרת ניעור עדין, תוך שמירה על המבחנות במצב אנכי
- שטוף ב-0.2× בפר SSC + 0.1% Tween 20 למשך 3 × 8 דקות בטמפרטורת החדר. יש לאחסן דגימות לטווח קצר ב-PBS ב- 4 °C.
4. צביעה משולבת של RNAscope ואימונופלואורסצנציה בעוברים שלמים בשלב E8.5
- בצעו את שלבים 3.1–3.21 של פרוטוקול ה-RNAscope.
הערה: קיצור משך שלב החדירה (permeabilization) של ה-RNAscope עשוי לסייע בשיפור ביצועי הנוגדנים בבדיקת אימונופלואורסצנציה. - שטפו את הדגימות במשך 16–24 שעות ב-1 mL של באפר 0.2× SSC + 0.1% Tween 20 בטמפרטורת החדר (RT) תחת נדנוד (rocking).
- בצעו את שלבים 2.7–2.12 של פרוטוקול האימונופלואורסצנציה.
5. הכנת עוברים שלמים (whole-mount) לדימות באמצעות מיקרוסקופיה קונפוקלית עם סריקת נקודות או דיסק מסתובב
- לאחר הצביעה, בעזרת פיפט פסטור מסוג LDPE, שאבו בעדינות את העובר והעבירו אותו למסלייד דימוי רב-בארות או למסלייד עם חל (cavity slide), תוך הקפדה שהעובר לא יתייבש. במידת הצורך, כווןו את העובר כרצונכם, תוך הקפדה לא לפגוע בדגימה.
הערה: מסליידים עם חל מועילים להבטחת הכוון של העוברים אך עלולים להוביל לדחיסת העובר ולנזק לרקמות. מסליידים לדימוי רב-בארות עדינים יותר כלפי העוברים אך עלולים להוביל לשונות בכיוון הדימוי ועלולים להכניס ארטיפקטים מקצות הבארות. - אופציונלי – הבהרת רקמות: הבהירו את הרקמות על ידי הסרה עדינה של השטיפה האחרונה מהעובר והוספת עד 20 µL של תמיסת CUBIC-R לתוך צלחת הדימוי בטמפרטורת החדר (RT). השאירו את העובר באינקובציה אחת של CUBIC-R למשך 40 min לפחות לפני הדימוי. יש לדמיין דגימות מבהרות באותה תמיסת CUBIC-R ששימשה לאינקובציה.
אזהרה: CUBIC-R רעיל בשאיפה ועלול לגרום לגירוי בעיניים ובעור. הימנעו משאיפה והשתמשו בציוד מגן אישי (PPE) מתאים בעת הטיפול.
הערה: עוברים הופכים לשקופים לחלוטין זמן קצר לאחר החשיפה ל-CUBIC-R. הוסיפו CUBIC-R ישירות לצלחת הדימוי רק לאחר הכוונה, והקפידו לאבד את העובר. הבהרה חלקית מהפכה מתרחשת אם CUBIC-R מוסר מהעובר ומוחלף ב-PBS. - אם אינכם מבצעים הבהרת רקמות, מלאו את הבארות ב-PBS כדי להבטיח שהעוברים לא יתייבשו מדי. אם אתם משתמשים במסלייד עם חל, כסו את המסלייד באמצעות כיסוי זכוכית (coverslip) מסוג #1.5. הוסיפו מכסה למסלייד הדימוי רב-התאים.
הערה: ניתן לדמיין עוברים באמצעות מגוון רחב של מיקרוסקופי אור. בשל עובי הדגימה, חשוב לבחור מיקרוסקופ המסוגל לדמיין בעומק מתאים. בחרו עדשה מתאימה למבנה הרצוי. עדשה של 10x עם מפתח נומרי (numerical aperture) נמוך מעניקה סקירה טובה של צביעת העובר השלם, אך ייתכן שיה צורך בעדשה בעלת הגדלה ומפתח נומרי גבוהים יותר כדי להבחין במבנים קטנים או עמוקים יותר ברזולוציה גבוהה. עוברים עלולים לעיתים לזוז בצלחת הדימוי, מה שיוצר שגיאות, ולכן חשוב לצמצם את זמן הדימוי ככל הניתן.
6. ניתוח גרעינים לצורך ספירה ועוצמת אות
הערה: פרוטוקול זה עוסק בניתוח גרעינים באמצעות Zeiss Arivis Pro; ניתוחים דומים עשויים להיות אפשריים באמצעות תוכנות חלופיות לניתוח תמונות. הפרוטוקול יעיל ביותר עבור דגימות גרעיניות, כגון תמלילים (transcripts) או חלבונים גרעיניים. במקרה של ניתוח חלבונים שאינם גרעיניים, ייתכן שיהיה כדאי להשתמש בצביעה להדמיית מבנה התא, למשל CellMask, הצובעת ממברנות של תאים, ולבחון את הביטוי של סמנים בתוך התא כולו.
- המירו קבצי דימוי לפורמט SIS באמצעות ממיר Zeiss Arivis SIS. פתחו את הממיר ובחרו ב-'Add files', ולאחר מכן ב-'Browse folder'. בחרו את תיקיית תמונות המקור. בחרו בהמרה של 1-to-1. בחרו את תיקיית היעד ולחצו על 'start conversion'.
- ייבאו קבצי SIS לתוכנת Zeiss Arivis Pro על ידי בחירה ב-'file', לאחר מכן ב-'open', ובחירה בקובץ ה-SIS הרצוי.
- הכינו את הנתונים לניתוח בצינור העיבוד (pipeline analysis) על ידי סיבוב התמונות. לשם כך, בחרו ב-'Data' ולאחר מכן ב-'Transformation gallery'. בחרו בפונקציית ה-'rotation' וסובבו את העוברי כך שניתן יהיה להגדיר את אזור העניין (region of interest) בתוך תיבה מלבנית קשיחה.
- חתכו אזורי עניין על ידי בחירה ב-‘Data’, לאחר מכן ב-‘Transformation gallery’, ובחירה באפשרות ‘Crop’. גררו את הקצוות כדי לחתוך לאזור העניין ובחרו ב-‘Ok’.
הערה: עבור אזור הראש בעוברים בשלב E8.5, חתכו את האזור כך שיתמקד בראש, תוך חיתוך התמונה בגומחה הסמוכה לשלפוחית השמיעה (otic vesicle). עבור אזור הלב בעוברים בשלב E8.5, חתכו מהגומחה הסמוכה לשלפוחית השמיעה ומטה, ועד לחלקו התחתון של צינור הלב. בעת חיתוך תמונות מסובבות, הסִירו את האזורים השחורים שנוצרו כתוצר לוואי (artifact) של הסיבוב. - הפעל תהליך ניתוח (pipeline) חדש על ידי בחירה ב-'Analysis' ולאחר מכן ב-'Analysis Panel'. בחר ב-'new pipeline'.
- קביעת ROI: הגדר את ה-ROI ל-'current image set', הגדר את הערוצים ל-'All channels' ואת קנה המידה ל-'10%'. ודא שהאפשרות 'include Z' מסומנת.
הערה: ניתן להקטין את גודל התמונות (למשל, ל-50%) אם הן גדולות מדי או אם העיבוד איטי מדי; פעולה זו תפחית את רזולוציית התמונות. - אתרו גרעיני תא (סמן מס' 1) באמצעות כלי איתור הכתמים (blob finder): בחרו ב-'Add Operation', ולאחר מכן אתרו את 'Blob finder'. תחת 'Channel', בחרו בערוץ המכיל את סמן גרעיני התא. הגדירו את הקוטר ל- 6 µm ובצעו אופטימיזציה לסף ההסתברות (probability threshold) בהתבס על עוצמת הצביעה. יש לזהות את הגרעינים במישור כך שתשמר הפרדה הולמת ביניהם. הגדירו את רגישות הפיצול (split sensitivity); ערך של 5% הוא סביר עבור רוב הדגימות. הגדירו את ה'נורמליזציה' (Normalization) לנקודת הזמן הראשונה. הגדירו שם לפלט, לדוגמה: Blob finder (nuclei). ניתן להציג את האובייקטים שזוהו על ידי לחיצה על סמל ה'עין' בסרגל העליון של הפעולה.
- מצאו את הביטוי של סמן #2 באמצעות כלי איתור הכתמים (blob finder): בחרו ב-'Add Operation', ולאחר מכן אתרו את 'Blob finder'. בתיבת הערוץ (channel), בחרו בערוץ המכיל את סמן הגרעינים. הגדירו את הקוטר ל- 6 µm וביצוע אופטימיזציה לסף ההסתברות בהתבס על עוצמת הצביעה. יש לזהות 'Blobs' חיוביים לסמן מס' 2 במישור עם הפרדה מתאימה. הגדירו את רגישות הפיצול (split sensitivity); ערך של 5% הוא סביר עבור רוב הדגימות. הגדירו את ה'נורמליזציה' (Normalization) לנקודת הזמן הראשונה. הגדירו שם לפלט, לדוגמה: Blob finder (channel 2). ניתן להציג את האובייקטים שזוהו על ידי בחירה בסמל ה'עין' בסרגל העליון של הפעולה.
- מצאו את הביטוי של סמן #3 באמצעות כלי איתור הבלובים (blob finder): בחרו ב-‘Add Operation’, ולאחר מכן אתרו את ‘Blob finder’. בתפריט הערוץ (channel), בחרו את הערוץ המכיל את סמן הגרעינים. הגדירו את הקוטר ל- 6 µm ולייעו את סף ההסתברות בהתבס על עוצמת הצביעה. יש לזהות במישור 'נשקים' (Blobs) חיוביים לסמן מס' 3 עם הפרדה מתאימה. הגדירו את רגישות הפיצול (split sensitivity). ערך של 55% הוא סביר עבור מרבית הדגימות. הגדירו את ה- 'Normalization' ל- µ firsנקודת זמן t. הגדירו שם פלט, לדוגמה, Blob finder (channel 3). ניתן להציג את האובייקטים שזוהו על ידי בחירה בסמל ה'עין' בסרגל העליון של הפעולה.
- אופציונלי: מסנן נפח – אם קיימים שרי פסולת רבים בדימות, ניתן להשתמש במסנן נפח כדי להסיר ארטיפקטים. בחרו ב-'Add Operation', ולאחר מכן אתרו את 'Object Feature Filter'. הגדירו את הקלט (input) כ-Blob finder (nuclei) (או שם קבוצה אחר משלב 6.7). הגדירו את 'is type' כ-'any'. בתפריט הנפתח, בחרו Volume (נפח) והגדירו את הערך ל- > 6 µm3בחר ב-'Add filter' (הוסף מסנן). בתפריט הנפתח, בחר ב-Volume (נפח) והגדר את הערך ל- <3000 µm3תנו שם לפלט, למשל, 'nuclei'. הפעילו את ה-pipeline עד לשלב זה על ידי בחירה בכפתור שלושת הקווים במודול ולחיצה על 'run pipeline to here'.
הערה: ניתן להשתמש במסנני נפח (Volume filters) גם עבור הערוצים האחרים במידת הצורך. יש לבצע אופטימיזציה לערכי ה"גדול מ-" (greater than) וה"קטן מ-" (less than) כדי להבטיח שכל האובייקטים החיוביים נבחרים, תוך השמטת פסולת (debris). - כדי לזהות גרעינים החיוביים למסמן נוסף אחד, השתמשו בכלי ה-intersect. בחרו ב-‘Add operation’ ומצאו את כלי ה-‘compartments’. בתיבת הבחירה הראשונה, הוסיפו את פלט הגרעינים (למשל, blob finder (nuclei) או ה-‘nuclei’ שעברו סינון נפחי) וודאו שהכפתור משמאל לתיבה נבחר. בתיבת הבחירה השנייה, בחרו את הערוץ הרצוי (למשל, blob finder (channel 2)). תנו שם לפלט, לדוגמה ‘nuclei with channel 2’. חזרו על הפעולה עבור כל המסמנים הרצויים.
- כדי למצוא גרעינים החיוביים לשני סמנים נוספים או יותר, בחרו ב-'Add operation' ומצאו את הכלי 'Object Feature Filter'. הגדירו את הקלט (input) כסמן הגרעינים (למשל, 'nuclei', סוג=any) והוסיפו את המסננים מהשלב הקודם לאחר 'Has tag', למשל 'Nuclei with channel 2' ו-'Nuclei with channel 3'. תנו שם לפלט, למשל 'Nuclei with channel 2 and channel 3'. הפעילו את ה-pipeline עד לנקודה זו.
- צרו מאפיינים מותאמים אישית לספירת גרעינים על ידי בחירה בסמל טבלת הנתונים בסרגל העליון, בחירה ב-'create' (צור) ובחירה ב-'object count' (ספירת אובייקטים). תנו למאפיין תווית מתאימה (למשל, nuclei count - ספירת גרעינים) ובחרו בתפריט התגיות את הפלט הרצוי לכימות (למשל, nuclei - גרעינים). חזרו על שלב זה עבור כל קבוצה שיש לכמת.
- צרו קבוצות אובייקטים על ידי בחירה ב-‘Add operation’ ולאחר מכן ב-‘Create object groups’. בחרו בכל אחת מהקבוצות שבהן ייעשה שימוש בניתוחים תחת ה-inputs. תייגו את ה-outputs כ-‘Create object groups’. הריצו את ה-pipeline עד לשלב זה.
- ייצאו את ספירות הסיכום על ידי בחירה ב-'Add operation' ולאחר מכן ב-'Export object features'. תחת inputs, בחרו ב-'create object groups'. בחרו ספריה לשמירת הנתונים. המצב (Mode) הוא 'single table'. לחצו על features, ובחרו את המאפיינים המותאמים אישית שנוצרו בשלב 6.13.
- ייצאו את פרטי הגרעינים על ידי בחירה ב-‘Add operation’ ולאחר מכן ב-‘Export object features’. תחת inputs, בחרו את זיהוי הגרעינים (nuclei detection) שנוצר בשלב 6.7 (או 6.10 אם נעשה שימוש במסנן נפח/volume filter). בחרו תיקייה לשמירת הנתונים. מצב השמירה (Mode) הוא ‘single table’. לחצו על features, ובחרו ‘intensities’ עבור כל ערוץ (#1, #2, #3 וכו') ומאפיינים רצויים נוספים לייצוא, למשל נפח (volume).
- שמרו אובייקטים על ידי בחירת האובייקטים הדרושים להדמיה/ניתוח בתיבת שמירת האובייקטים (store objects).
- שמרו את ה-pipeline על ידי ביטול כל השלבים, בחירת 3 השורות בפינה הימנית העליונה ולחיצה על ‘Export’. בחרו בתיקייה לשמירת ה-pipeline ובצעו שמירה.
- להרצה של pipeline במצב אצווה (batch), טענו מחדש את Arivis. בסרגל העליון, בחרו ב-‘Analysis’ ולאחר מכן ב-‘Batch analysis’. בחלון שייפתח, בחרו את ה-pipeline שנשמר בשלב 6.18. תחת ‘files’, בחרו את הקבצים לניתוח ולחצו על ok. לאחר הטעינה, ניתן למחוק תצוגות שאינן רצויות. בחרו ב-‘Ok’. במסך הבא, בחרו את הספרייה לשמירת הנתונים. לחצו על ‘Run’. הנתונים יישמרו באופן אוטומטי בתיקיית הפלט שנבחרה.
סקירה כללית של זרימת העבודה מוצגת ב-איור 1.
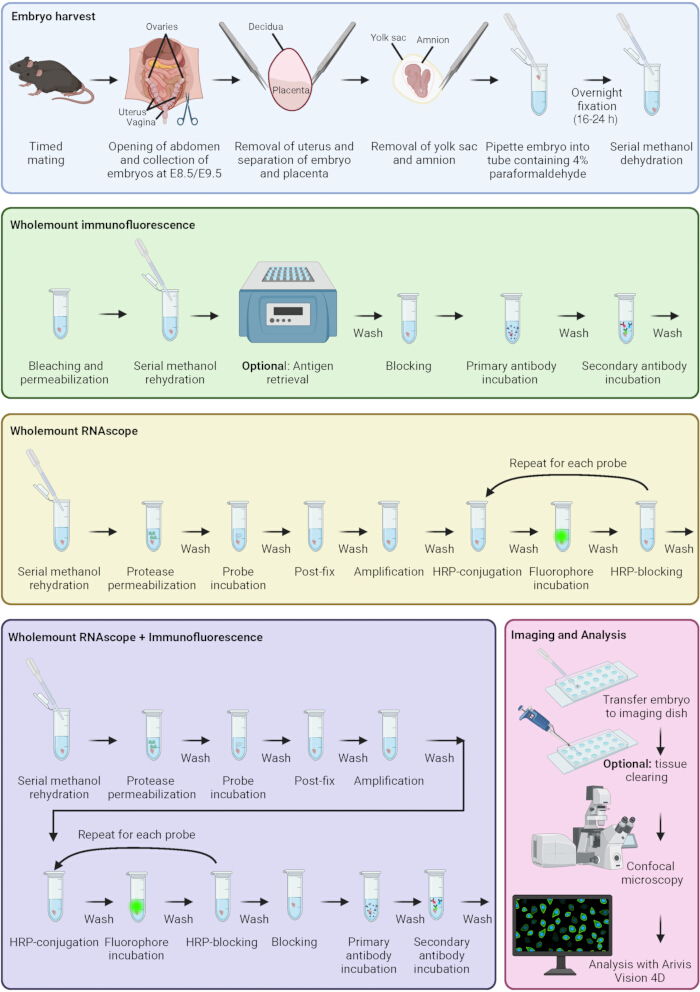
איור 1: פרוטוקול לצביעה אימונופלורסצנטית ו-RNAscope. תרשים המייצג שלבים מרכזיים של קצירת עוברים, אימונופלורסצנציה, RNAscope, שילוב של אימונופלורסצנציה ו-RNAscope, דימוי דגימות ואנליזה. תיבות צבעוניות תואמות לשלבי פרוטוקול שונים. נוצר ב-BioRender. Sparrow, D. (2026) https://BioRender.com/q6rmax8 אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
עוברי E8.5 נצבעו בשיטת אימונופלורסצנציה לפי פרוטוקול זה כדי לנתח את מספר תאי הרבד העצבי (neural crest cells) הנודדים שהיו בשלב G2/M של מחזור התא. הדגימות נצבעו באמצעות נוגדנים המכוונים ל-PHH3 כדי להדמיא את שלב G2/M של מחזור התא, ול-SOX10 כדי להדמיא תאי רבד עצבי נודדים. העוברים נצבעו בהמשך בנוגדנים משניים מתאימים. הגרעינים נצבעו ב-DAPI. הדגימות דומו באמצעות מיקרוסקופ קונפוקאלי עם דיסקה מסתובבת (spinning disk) מסוג Olympus SpinSR עם עדשה של 10x (NA = 0.4). התמונות נרכשו באמצעות מצלמת Hamamatsu Orca Fusion BT ודיסקה מסתובבת...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
כאן אנו מתארים שיטה מותאמת לניתוח מרחבי של ביטוי גנים וחלבונים בעוברים שלמים בשלבים E8.5 ו-E9.5. לשיטות אלו רזולוציה מרחבית ויכולת ריבוי (multiplexing) משופרות בהשוואה לשיטות מסורתיות של היברידיזציה של RNA in situ ואימונופלואורסצנציה של חתכים. פרוטוקול זה מתבס על פרוטוקולים עדכניים קיימים לבחינת מסלולי התפתחות בעוברים של עכברים. פרוטוקול עדכני אחד השתמש ב-RNAscope ובצביעה אימונופלואורסצנטית כדי לבחון את סיגנל ה-Wnt בעוברים, אך צבע חתכים במקום עוברים שלמים26. מחקר עדכני אחר ביצע RNAscope ו...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים כי אין להם ניגוד עניינים פינסי.
תודות
המחברים מודים לצוות במתקן ה-Cellular Imaging Core, במרכז לגנטיקה אנושית, באוניברסיטת אוקספורד, על מתן תמיכה טכנית במיקרוסקופיה ובניתוח התמונות הכלולים במאמר זה. המחברים מודים לצוות השירותים הביומדיים באוניברסיטת אוקספורד על התמיכה בתחזוקת בעלי החיים ובהשבעות מתוזמנות להפקת עוברים.
המימון למחקר זה סופק על ידי מלגת Senior Fellowship של British Heart Foundation מספר FS/SBSRF/22/3102 (DBS), קרן Additional Ventures Single Ventricle Fund (DBS), קרן John Fell, אוניברסיטת אוקספורד 0016065 (VSR), והקרן הפנימית למדעי הרפואה, אוניברסיטת אוקספורד 016707 (VSR).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| כלי פלסטיק/זכוכית | |||
| פיפטות פסטור בנפח 3 מ"ל, פוליאתילן בצפיפות נמוכה (LDPE), מדורגות | Wheaton | 711116 | |
| מבחנות Eppendorf Safe-lock מיקרו 1.5 מ"ל | Eppendorf | 0030 120.086 | |
| Ibidi µ-לבינה בעלת 18 בארות | Ibidi | 81817 | #1.5H זכוכית כיסוי, ללא טיפול |
| זכוכית כיסוי Menzel X10 בגודל 2x50 מ"מ, עובי #1.5 (0.16-0.19 מ"מ) | Thermo Scientific | 17284904 | |
| זכוכיות מיקרוסקופ עם שקעים | Marienfeld Superior | 1320000 | |
| מיקרוצנור עם אטם בטיחות 2 מ"ל | Sarstedt | 72.695.500 | מבחנה 'Eppendorf' בנפח 2 מ"ל, בעלת תחתית עגולה |
| תמיסות/בפיונים | |||
| 1x נוזל דילול/חסימה לנוגדנים | Akoya Biosciences | ARD101EA | |
| Ambion™ RnaseZap™ תמיסה לדה-קונטמינציה של RNAse | Ambion | 9780.9782 | |
| בופר להסרת מיסוך בציטראט | Vector labs | H-30 | מסומן כתר विलयן לחשיפת אנטיגן, מבוס חומצה ציטרית |
| דימתיל סולפוקסיד (DMSO) | Merck (Sigma-Aldrich) | D8418 | |
| תמיסת מלחים מאוזנת של האנקס (Hanks' Balanced Salt Solution) בריכוז 10x | Merck (Sigma-Aldrich) | H4641 | |
| תמיסת מי חמצן | Merck (Sigma-Aldrich) | H109 | 30% (משקל/משקל) ב-H2O |
| מתנול | Merck (Sigma-Aldrich) | 3213-2.5L-M | |
| סרום חמור נורמלי | Abcam | Ab7475 | ריכוז תמיסת אם של 10%, ריכוז סופי של 10% |
| אבקת פאראפורמאלדהיד (PFA) | Merck (Sigma-Aldrich) | 158127-50g | יש לדלל ל-4% במים. יש להכין במנדף כימיים. ערבב על בלוק חימום והוסף כמות קטנה של NaOH כדי להקל על ההמסה. pH 7.2-7.6 |
| סלויין פוספט רב-ערכי (PBS) | Merck (Sigma-Aldrich) | P417 | טבלייה אחת ל-20 מ"ל מים מזוקקים |
| ערכה נלווית RNAscope 4-Plex עבור ערכת ריאגנטים פלורסצנטית למולטיפלקס v2 | ACD (Bio-Techne) | 323120 | מכיל HRP-C4 וחוסם HRP |
| RNAscope™ ערכה לזיהוי פלואורסצנטי מרובה (Multiplex Fluorescent Detection Kit v2) | ACD (Bio-Techne) | 323110 | מכיל Protease Plus, Protease III, פרוטאוז IV, מימן פראוקסיד, בופר TSA, Amp1/2/3, Hrp-C1/2/3, חוסם HRP ו-DAPI |
| תמיסת באפר Saline-Sodium-Citrate (SSC) בריכוז 20X | Fisher Bioreagents | BP-1325-1 | דל לריכוז 0.2x במים מזוקקים |
| ריאגנט להבהרת רקמות Cubic-R+(M) [לבעלי חיים] | Tokyo Chemical Industry | T3741 | |
| טריטון™ 10 X | Merck (Sigma-Aldrich) | X10 | |
| Tween® 20 | Merck (Sigma-Aldrich) | P7949 | |
| היפר-טהור™ EDTA בריכוז 0.5M, pH 8 | Invitrogen | 15575020 | |
| נוגדנים ראשוניים | |||
| נוגדן אנדומוצין (V.7C7) | סנטה קרוז | SC-65495 | השתמש בדילול של 1:50. |
| נוגדן Islet 1 ונוגדן Islet 2 | בנק היברידומות של לימודי התפתחות | 34.4DS-5 | דללו ל-50% בגליצרין. השתמשו בדילול של 1:50. |
| נוגדן מונוקלונלי לעכבר PCNA (PC10) | טכנולוגיית איתות תאי | 2586S | השתמש בדילול של 1:50 |
| נוגדן מונוקלונלי מעכבר ל-P-histone H3 (Ser10) (6G3) | טכנולוגיית איתות תאי | 9706S | השתמש בדילול של 1:50 |
| P-histone H3 (Ser10) (D7N8E) XP® נוגדן מונוקלונלי מארנב | טכנולוגיית איתות תאי | 5348S | השתמש בדילול של 1:50 |
| Sox10 (E6B6I) XP® נוגדן מונוקלונלי מארנב | טכנולוגיית העברת אותות תאיים | 6961S | השתמש בדילול של 1:50 |
| נוגדנים משניים/צבעים גרעיניים | |||
| AlexaFluor® Affinipure מצומד ל-488® נוגדן Donkey anti-mouse IgG (H+L) | Jackson Immunoresearch | 715-545-151 | השתמש בדילול של 1:50 |
| AlexaFluor® Affinipure מצומד ל-647® נוגדן Donkey anti-rat IgG (H+L) | Jackson Immunoresearch | 712-605-153 | השתמש בדילול של 1:50 |
| AlexaFluor® Affinipure מצומד ל-647® פרגמנט F(ab')2 של נוגדן Donkey anti-mouse IgG (H+L) | Jackson Immunoresearch | 715-606-150 | השתמש בדילול של 1:50 |
| ציטוכין™3 Affinipure® נוגדן Donkey anti-Rabbit IgG (H+L) | Jackson Immunoresearch | 711-165-152 | השתמש בדילול של 1:50 |
| DAPI | Merck (Sigma-Aldrich) | D9542 | בשימוש ב- 1 µg/ml |
| גששים של RNAscope | |||
| RNAscope® גשושית - Mm Sp5-C4 | ACD (Bio-Techne) | 405681-C4 | גשש C4 |
| RNAscope® גשושית - Mm-Dlx2-C3 | ACD (Bio-Techne) | 5951-C3 | גש C3 |
| RNAscope® גשושית - Mm-Msx1 | ACD (Bio-Techne) | 421841 | גשש C1 |
| RNAscope® גשש - Mm-Sox10-C2 | ACD (Bio-Techne) | 435931-C2 | גש C2 |
| פלואורופורים של RNAscope | |||
| ערכת ריאגנטים Opal 780 | Akoya Biosciences | FP150101KT | מכיל את הרכיב Opal 780, Opal TSA-DIG, DMSO |
| TSA-vivid™ פלואורופור 520 | ACD (Bio-Techne) | 323271 | כעת ClariTSA™ פלואורופור 520 |
| TSA-vivid™ פלואורופור 570 | ACD (Bio-Techne) | 323272 | כעת ClariTSA™ פלואורופור 570 |
| TSA-vivid™ פלואורופור 650 | ACD (Bio-Techne) | 323273 | כעת ClariTSA™ פלואורופור 650 |
| ציוד/תוכנה | |||
| סריקת לייזר Fluoview FV400 מיקרוסקופ | ברור | fv400 | לייזרי עירור: 405/48/561/640/730 ננומטר. אורך גל שזוה (איור 3): 430-470, 50-540, 570-620, 650-710, 750-850 נ"מ. אורך גל שזוהה (איור 4) 430-470, 50-531, 570-620 ננומטר. |
| Graphpad Prism 10 | Graphpad | v10.6.1 | |
| בלוק חימום | מענק | QBT1 | |
| תנור היברידיזציה Hybrigene | Techne (Bibby Scientific) | FHB4DD | |
| מערכת מיקרוסקופ לרזולוציה-על Ixplore IX83 SpinSR | Olympus | ixplore-ix83-spinsr | לייזרי עירור: 405/48/561/640 ננומטר. מסנני פליטה: 447/60, 525/50, 617/73, 685/40. |
| Zeiss Arivis Pro | Carl Zeiss Microscopy GmbH | גרסה 4.5 (בעבר Arivis Vision 4D) | |
| מיר Zeiss Arivis SIS | Carl Zeiss Microscopy GmbH | גרסה 4.3.0 |
מקורות
- Bruter AV, Varlamova EA, Okulova YD, Tatarskiy VV, Silaeva YY, Filatov MA. Genetically modified mice as a tool for the study of human diseases. Mol Biol Rep. 2024;51(1):135.
- Rashbrook VS, Brash JT, Ruhrberg C. Cre toxicity in mouse models of cardiovascular physiology and disease. Nat Cardiovasc Res. 2022;1:806–16.
- Breschi A, Gingeras TR, Guigo R. Comparative transcriptomics in human and mouse. Nat Rev Genet. 2017;18(7):425–40.
- Mole MA, Weberling A, Zernicka-Goetz M. Comparative analysis of human and mouse development: From zygote to pre-gastrulation. Curr Top Dev Biol. 2020;136:113–38.
- Krishnan A, Samtani R, Dhanantwari P, Lee E, Yamada S, Shiota K, et al. A detailed comparison of mouse and human cardiac development. Pediatr Res. 2014;76(6):500–7.
- Anderson RH, Bamforth SD. Morphogenesis of the Mammalian Aortic Arch Arteries. Front Cell Dev Biol. 2022;10:892900.
- Wessels A, Sedmera D. Developmental anatomy of the heart: a tale of mice and man. Physiol Genomics. 2003;15(3):165–76.
- Gall JG, Pardue ML. Formation and detection of RNA-DNA hybrid molecules in cytological preparations. Proc Natl Acad Sci U S A. 1969;63(2):378–83.
- John HA, Birnstiel ML, Jones KW. RNA-DNA hybrids at the cytological level. Nature. 1969;223(5206):582–7.
- Buongiorno-Nardelli M, Amaldi F. Autoradiographic detection of molecular hybrids between RNA and DNA in tissue sections. Nature. 1970;225(5236):946–8.
- Dakou E, Vanbekbergen N, Corradi S, Kemp CR, Willems E, Leyns L. Whole-mount in situ hybridization (WISH) optimized for gene expression analysis in mouse embryos and embryoid bodies. Methods Mol Biol. 2014;1211:27–40.
- Anderson R. Multiplex fluorescence in situ hybridization (M-FISH). Methods Mol Biol. 2010;659:83–97.
- Kearney L. Multiplex-FISH (M-FISH): technique, developments and applications. Cytogenet Genome Res. 2006;114(3-4):189–98.
- Burnett R, Guichard Y, Barale E. Immunohistochemistry for light microscopy in safety evaluation of therapeutic agents: an overview. Toxicology. 1997;119(1):83–93.
- Coons AH, Creech HJ, Jones RN. Immunological properties of an antibody containing a fluorescent group. P Soc Exp Biol Med. 1941;47(2):200–2.
- Bardot E, Tzavaras N, Benson DL, Dubois NC. Quantitative Whole-mount Immunofluorescence Analysis of Cardiac Progenitor Populations in Mouse Embryos. J Vis Exp. 2017(128).
- Wang F, Flanagan J, Su N, Wang LC, Bui S, Nielson A, et al. RNAscope: a novel in situ RNA analysis platform for formalin-fixed, paraffin-embedded tissues. J Mol Diagn. 2012;14(1):22–9.
- Erben L, Buonanno A. Detection and Quantification of Multiple RNA Sequences Using Emerging Ultrasensitive Fluorescent In Situ Hybridization Techniques. Curr Protoc Neurosci. 2019;87(1):e63.
- De Bono C, Lescroart F, Zaffran S. How to Study Gene Expression and Gain of Function of Hoxb1 in Mouse Heart Development. Methods Mol Biol. 2025;2889:121–37.
- Zhao R, Moore EL, Gogol MM, Unruh JR, Yu Z, Scott AR, et al. Identification and characterization of intermediate states in mammalian neural crest cell epithelial to mesenchymal transition and delamination. Elife. 2024;13.
- Guijarro C, Kelly RG. On the involvement of the second heart field in congenital heart defects. C R Biol. 2024;347:9–18.
- Bradshaw L, Chaudhry B, Hildreth V, Webb S, Henderson DJ. Dual role for neural crest cells during outflow tract septation in the neural crest-deficient mutant Splotch(2H). J Anat. 2009;214(2):245–57.
- Zawada D, Kornherr J, Meier AB, Santamaria G, Dorn T, Nowak-Imialek M, et al. Retinoic acid signaling modulation guides in vitro specification of human heart field-specific progenitor pools. Nat Commun. 2023;14(1):1722.
- Rabadan MA, Herrera A, Fanlo L, Usieto S, Carmona-Fontaine C, Barriga EH, et al. Delamination of neural crest cells requires transient and reversible Wnt inhibition mediated by Dact1/2. Development. 2016;143(12):2194–205.
- Bhattacharya D, Rothstein M, Azambuja AP, Simoes-Costa M. Control of neural crest multipotency by Wnt signaling and the Lin28/let-7 axis. Elife. 2018;7.
- Kishimoto K, Furukawa KT, Luz-Madrigal A, Yamaoka A, Matsuoka C, Habu M, et al. Bidirectional Wnt signaling between endoderm and mesoderm confers tracheal identity in mouse and human cells. Nat Commun. 2020;11(1):4159.
- De Bono C, Liu Y, Ferrena A, Valentine A, Zheng D, Morrow BE. Single-cell transcriptomics uncovers a non-autonomous Tbx1-dependent genetic program controlling cardiac neural crest cell development. Nat Commun. 2023;14(1):1551.
- Hazra R, Spector DL. Simultaneous visualization of RNA transcripts and proteins in whole-mount mouse preimplantation embryos using single-molecule fluorescence in situ hybridization and immunofluorescence microscopy. Front Cell Dev Biol. 2022;10:986261.
- Kann AP, Krauss RS. Multiplexed RNAscope and immunofluorescence on whole-mount skeletal myofibers and their associated stem cells. Development. 2019;146(20).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב