מחקר זה משלב פרמקולוגיה של רשתות, עגינה מולקולרית (molecular docking) מאושרת וניסויי in vitro כדי להעריך קשרי מועמד בין מרכיבים של Cordyceps sinensis לתהליכים הקשורים לגלומרולונפריטיס כרונית. β-Sitosterol נבחר לאימות ברמת התרכובת ונמצא כי הוא מפחית הפעלה דלקתית ופרו-פיברוטית במודלים של תאי מזנגיום.
מאמר שיטה
הערכה מונחית-רשת של $\beta$-sitosterol במודלים של תאי מזנגיום דלקתיים ופרו-פיברוטיים הרלוונטיים לגלומרולוניפריטיס כרונית
* These authors contributed equally
במאמר זה
סיכום
תקציר
גלומרולונפריטיס כרוני (CGN) מאופיין בפגיעה דלקתית מתמשכת ובמידול פיברוטי פרוגרסיבי, אך מערכות היחסים בין תרכובות למטרות העומדות בבסיס התערבויות המבוססות על מוצרים טבעיים נותרו לא מוגדרות במלואן. מחקר זה שילב פרמקולוגיית רשת, עיגון מולקולרי (molecular docking) מאומת וניסויי in vitro כדי להעריך רכיבים מועמדים של Cordyceps sinensis (C. sinensis) בתהליכים פתולוגיים הקשורים ל-CGN. רכיבים מועמדים של C. sinensis סרקו, ומטרות הקשורות לתרכובות שהופקו ממאגר המידע ופלטפורמת הניתוח של Systems Pharmacology של הרפואה הסינית המסורתית הוחלפו עם גנים הקשורים ל-CGN. ניתוחי העשרה פונקציונלית ואינטראקציית חלבון-חלבון שימשו לתיעדוף תהליכים ביולוגיים ומטרות מפתח (hub targets). PTGS2 זוהה כמטרת חפיפה מרכזית. עיגון מולקולרי בוצע באמצעות מבנה של COX-2 קשור ל-celecoxib. עיגון מחדש של ליגנד ה-celecoxib שקו-גובש שחזר את התנוחה הקריסטלוגרפית עם RMSD של 0.876 Å, מה שביסס את פרוטוקול העיגון. β-Sitosterol ו-linoleyl acetate הראו תאימות חזויה עם אזור העיגון של COX-2, עם זיקות קישור של −7.2 ו-−7.5 kcal/mol, בהתאמה. β-Sitosterol נבחר לאישוש ברמת התרכובת בתאי מזנגיום גלומרולריים של חולדה מסוג HBZY-1. בריכוזים של 0.5–10 µM, β-sitosterol לא הפחית באופן ניכר את חיוניות התאים. בתאים שעברו גרייה של ליפופוליסכריד (LPS), β-sitosterol הפחית את הביטוי של Tnf, Il6, ו-Ptgs2, הפחית את ייצור הפרוסטגלנדין E2 (PGE2), והפחית את שכיחות חלבון הציקלואקסיגנאז-2 (COX-2). בתאים שטופלו בגורם גדילה טרנספורמטיבי β1 (TGF-β1), β-sitosterol הפחית את הביטוי של Col1a1 ו-Acta2 והפחית את שכיחות חלבון ה-alpha-smooth muscle actin (α-SMA). ממצאים אלו מספקים ראיות להגדרת היפותזה לפיה β-sitosterol מווסת הפעלה דלקתית ופרו-פיברוטית במודלים של תאי מזנגיום, אך הם אינם מבססים עיכוב אנזימטי ישיר של COX-2 או יעילות טיפולית ב-CGN.
מבוא
גלומרולונפריטיס כרוני (CGN) כולל קבוצה הטרוגנית של הפרעות גלומרולריות שעלולות להתפתח למחלה כלית כרונית ולשלב סופי של מחלה כלית1. המחלה מאופיינת בפגיעה גלומרולרית מתמשכת, הפעלה דלקתית וremodeling פיברוטי פרוגרסיבי2,3. למרות שקורטיקוסטרואידים וחומרים אימונוסופרסיביים משמשים בחלק מהמטופלים, שליטה ארוכת טווח במחלה נותרת קשה במקרים רבים, ותופעות לוואי הקשורות לטיפול הן נפוצות1,4,5. ההתקדמות של CGN כוללת תהליכים פתולוגיים המשפיעים זה על זה, כולל הפעלה חיסונית, תפקוד לקוי של האנדותל, סטרס חמצוני והצטברות של המטריקס החוץ-תאי3,6,7. לכן, זיהוי מוקדים מולקולריים המחברים בין תגובות דלקתיות ופרו-פיברוטיות עשוי לסייע ביצירת היפותזות הניתנות לבדיקה עבור אסטרטגיות התערבות הרלוונטיות למחלה.
Cordyceps sinensis (C. sinensis) שימש בהקשרים קליניים וניסיוניים הקשורים לכליות, ודווח כי הוא מפעיל השפעות אנטי-דלקתיות, אנטי-אפופטוטיות וציטופרוטקטיביות במספר מודלים של מחלה8,9,10. עם זאת, הבסיס המולקולרי שדרכו רכיביו המועמדים עשויים לקיים אינטראקציה עם מטרות רלוונטיות לדלקת גלומרולרית (glomerulonephritis) נותר ללא הגדרה מספקית11. בהינתן טבעם הרב-מרכיבי של C. sinensis וההטרוגניות המכניסטית של CGN, פרמקולוגיית רשת מספקת מסגרת שימושית לתיעדוף של קשרים מועמדים בין תרכובת-מטרה-מסלול12,13.
במחקר זה, סריקת תרכובות, איתור מטרות, ניתוח חפיפה בין מחלות לגנים, העשרה פונקציונלית, ניתוח רשת אינטראקציות בין חלבונים, דקינג מולקולרי ו- in vitro שולבו בדיקות תיקוף כדי לבחון קשרים מולקולריים פוטנציאליים בין מרכיבים מועמדים של *C. sinensis* ותהליכים פתולוגיים הרלוונטיים ל-CGN. פרוסטגלנדין-אנדופרוקסיד סינתאז 2 (PTGS2תועדף כמטרה מרכזית (hub target) מתוך רשת התרכובות-מחלות, ונבדק באמצעות סימולציית עגינה מולקולרית (molecular docking) תוך שימוש במבנה של ציקלו-אקסיגנאז-2 (COX-2) קשור לסלקוקסיב (celecoxib), עם תיקוף באמצעות עגינה חוזרת (redocking). בהתבסס על תוצאות הרשת, ניתוח העגינה וראיות קודמות לפעילות אנטי-דלקתית ואנטי-פיברוטית, β-sitosterol נבחר כתרכובת מועמדת מייצגת לצורך תיקוף (validation) בהמשך הדרך14,15,16תאי מזנגיום שעקברו גירוי באמצעות ליפופוליסכריד (LPS) שימשו להערכת שפעול דלקתי והתגובה הקשורה ל-COX-2/פרוסטגלאנדין E2 (PGE2), בעוד שגורם גדילה טרנספורמיבי β1 (TGF-βנכלל מודל המושרה על ידי 1) כדי להעריך את ביטוי סממנים פרו-פיברוטיים.
פרוטוקול
ניתוחי הפארמקולוגיה של הרשת והביואינפורמטיקה התבססו על מאגרי נתונים הזמינים לציבור ולא כללו משתתפים אנושיים או בעלי חיים. ניסויי ה-in vitro בוצעו באמצעות קו תאים מבוסס ולא דרשו אישור אתי בהתאם לדרישות המוסדיות.
סריקת מרכיבים פוטנציאליים ואחזור מטרות
מרכיבים מועמדים והמטרות התואמות להם נשבו מתוך מאגר המידע ופלטפורמת הניתוח של פרמקולוגיית מערכות ברפואה סינית מסורתית (TCMSP) באמצעות מונח החיפוש “dongchongxiacao” ב-13 ביולי 2025. תרכובים עם זמינות ביולוגית פומית חזויה של לפחות 30% ודמיון לתרופה (drug-likeness) של לפחות 0.18 נשמרו. שבעה מרכיבים מועמדים עמדו בשני קריטריוני הסינון. המשקל המולקולרי, הזמינות הביולוגית הפומית, הדמיון לתרופה ומתארי פרמקוקינטיקה זמינים אחרים נרשמו מ-TCMSP לצורך השוואה תיאורית.
המידע על קשרי תרכובת-מטרה הקשור לרכיבים שנשמרו הורד ישירות מ-TCMSP. כניסות כפולות של מטרות הוסרו ידנית בעת בניית סט המטרות הבלתי חופף, בעוד שקשרי התרכובת-מטרה המקוריים נשמרו לצורך בניית הרשת בהמשך. מכיוון ש-TCMSP סיפק שמות מטרות בצורתם המלאה ולא כסמלי גנים סטנדרטיים, כל מטרה נחפשה במאגר UniProt (נגישה ב-14 ביולי 2025). נבחרה הכניסה האנושית המתאימה, ושם המטרה הומר לסמל הגן הרשמי שלה. מערך הנתונים הסטנדרטי של תרכובת-מטרה שימש להצלבת מחלה-מטרה ולניתוח רשת תרכובת-מטרה.
איסוף גנים הקשורים לדלקת גלומרולרית וחפיפת מטרות
גנים הקשורים למחלה נשאפו מ-GeneCards, DisGeNET, PharmGKB וממאגר ה-Therapeutic Target Database באמצעות מונח החיפוש “glomerulonephritis” בתאריך 14 ביולי 2025. עבור GeneCards, נשמרו רשומות עם ציוני רלוונטיות הגבוהים מהציון החציוני של 10. רשומות מתאימות מהמאגרים האחרים נכללו בהתאם להערות המחלה-מטרה (disease-target annotations) המאושרות שלהם. שמות הגנים הותקנו לסמלי גנים רשמיים של בני אדם, ורשומות כפולות הוסרו. הליך זה הניב 1,134 גנים ייחודיים הקשורים לגלומרולוניפריטיס. מכיוון שהחיפוש השתמש במונח הרחב “glomerulonephritis”, מערך הנתונים שהתקבל נחשב לרלוונטי לתהליכים מולקולריים הקשורים לגלומרולוניפריטיס כרונית, ולא ספציפי לסוג היסטופתולוגי בודד.
מטרות הקשורות לתרכובות שהופקו מ-TCMSP הוחלפו עם קבוצת הגנים הקשורה למחלה באמצעות R. זוהו עשרים ושלוש מטרות חופפות. דיאגרמות ון הופקו באמצעות חבילת ה-R בשם venn, ורשת המטרות החופפות של התרכובות נבנתה והוצגה באופן חזותי באמצעות Cytoscape. הקשרים בין מרכיבי המועמדות למטרות החופפות מסוכמים ב- טבלה 1.
ניתוחי העשרה תפקודית ואינטראקציות בין חלבונים
ניתוחי העשרה של Gene Ontology (GO) ושל Kyoto Encyclopedia of Genes and Genomes (KEGG) בוצעו ב-R באמצעות clusterProfiler ו-org.Hs.eg.db. מונחי Gene Ontology נותחו בקטגוריות של תהליך ביולוגי, רכיב תאי ותפקוד מולקולרי. ערכי P הותאמו עבור בדיקות מרובות בשיטת Benjamini-Hochberg, ומונחים או מסלולים עם ערכי P מתוקננים הנמוכים מ-0.05 נשמרו. מונחים ומסלולים מועשירים הוצגו באמצעות תרשימי עמודות ותרשימי נקודות שנוצרו באופן עצמאי.
23 המטרות החופפות הוגשו ל-STRING, כאשר נבחר Homo sapiens כארגון ונקבע ציון אינטראקציה מינימלי הגבוה מ-0.4. רשת האינטראקציה בין חלבונים שהתקבלה יובאה ל-Cytoscape. טופולוגיית הרשת הוערכה באמצעות CytoNCA על בסיס דרגה (degree), מרכזיות בינתיות (betweenness), מרכזיות קרבה (closeness), מרכזיות וקטור עצמי (eigenvector centrality), קישוריות ממוצעת מקומית ומרכזיות הרשת. מטרות צומת (Hub targets) הוגדרו כצמתים שערכיהם של הדרגה, מרכזיות הבינתיות, מרכזיות הקרבה, מרכזיות וקטור העצמי, הקישוריות הממוצעת המקומית ומרכזיות הרשת היו כולם גבוהים מערכי החציונים המתאימים של הרשת. ניתוח זה תיעדן תשע מטרות צומת לצורך פרשנות המשך.
עגינה מולקולרית ותיקוף באמצעות עגינה חוזרת (redocking)
ביצוע עגינה מולקולרית (Molecular docking) בוצע באמצעות מבנה של cyclooxygenase-2 קשור ל-celecoxib, מזהה PDB ID 3LN1. שרשרת A וקבוצת ה-heme המשויכת אליה נשמרו כקולטן, בעוד שמולקולות מים קריסטלוגרפיות והליגנד celecoxib שסו-קריסטלו הוסרו במהלך הכנת הקולטן. הקונפורמציה הטבעית של ה-celecoxib חולצה בנפרד משרשרת A לצורך תיקוף של עגינה מחדש (redocking). אטומי מימן פולריים ומטעני Gasteiger נוספו באמצעות AutoDockTools, והקולטן נשמר בפורמט PDBQT. PDB ID 3LN1 הוא מבנה ברזולוציה של 2.40 Å של COX-2 עכברי הקשור ל-celecoxib. המבנים של β-sitosterol ושל linoleyl acetate ה obtained מ-PubChem והוכנו באמצעות Open Babel. אטומי מימן ומטעים חלקיים של Gasteiger נוספו, קשרים סיבוביים הוגדרו, וכל ליגנד הומר לפורמט PDBQT. Celecoxib, β-sitosterol ו-linoleyl acetate עוגנו באמצעות AutoDock Vina עם אותו קולטן ואותם פרמטרי חיפוש.
תיבת העגינה (docking box) מורכזה על אזור קישור ה-celecoxib הטבעי באמצעות הקואורדינאטות הבאות: center_x = 30.9886 center_y = -22.2836 center_z = -16.5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. ערך השקיפות (exhaustiveness) נקבע ל-16, מספר מצבי הפלט (output modes) ל-10, וטווח האנרגיה ל-3 kcal/mol. התנוחה (pose) המדורגת בראש הרשימה, על סמך אנרגיית הקישור הנמוכה ביותר שנחזתה, נשמרה לצורך ויזואליזציה. לצורך תיקוף הפרוטוקול, בוצע עיגון חוזר (redocking) של celecoxib טבעי תחת אותם תנאים, וחושב באמצעות PyMOL הסטייה הריבועית הממוצעת (RMSD) של האטומים הכבדים בין התנוחה הקריסטלוגרפית לתנוחה שעוגנה מחדש. סטייה ריבועית ממוצעת הפחותה מ-2 Å נחשבה לשחזור מקובל של תנוחת הייחוס. שאריות הממוקמות בטווח של 4 Å מכל ליגנד שעוגן זוהו ב-PyMOL. ציוני העגינה והתנוחות פורשו כהערכות של תאימות מבנית ולא כראיה ישירה לקישור למטרה או לעכבון אנזימטי.
תרבית תאים והכנת תרכובות
תאי מזנגיום גלומרולריים של חולדה מסוג HBZY-1 תורגדו במצע Dulbecco’s modified Eagle בתוספת גלוקוז גבוה, 10% fetal bovine serum ו-1% penicillin-streptomycin בטמפרטורה של 37 °C בתנאים לחים עם 5% CO₂. עבור כל הניסויים נעשה שימוש בתאים במעברים 2–7, ומצבם כנקיים ממיקופלסמה אומת לפני השימוש. β-Sitosterol ו-celecoxib שימשו כתרכובות מוגדרות כימית. β-Sitosterol הומס באתנול מוחלט כדי להכין תמיסת מלאי בריכוז 10 mM (בקירוב 4.15 mg/mL). במידת הצורך, בוצעה סונקציה קצרה וחימום ל-50–60 °C כדי להגיע לתמיסה צלולה באופן ויזואלי. Celecoxib הומס ב-dimethyl sulfoxide להכנת תמיסת מלאי בריכוז 10 mM (בקירוב 3.81 mg/mL). תמיסות המלאי חולקו למנות ואוחסנו בטמפרטורה של −20 °C. לפני הטיפול, תמיסות המלאי דוללו ישירות לתוך מצע תרבית שחומם מראש ועורבבו באופן מיידי.
ריכוזי חומרי הנושא הותאמו בתוך כל ניסוי. במבחן חיוניות התאים, ריכוז האתנול הסופי הותאם ל-0.2% v/v בכל הקבוצות, מכיוון שריכוז ה-β-sitosterol הגבוה ביותר שנבדק היה 20 µM. בניסוי הדלקת המופעל על ידי LPS, ריכוזי האתנול וה-dimethyl sulfoxide הסופיים הותאמו ל-0.1% ו-0.01% v/v, בהתאמה, בכל הקבוצות. בניסוי הפרו-פיברוטי המופעל על ידי TGF-β1, ריכוז האתנול הסופי הותאם ל-0.1% v/v בכל הקבוצות. נפחים שקולים של חומרי הנושא המתאימים התווספו לקבוצות הביקורת (Control), LPS ו-TGF-β1.
בדיקת חיוניות תאים
תאים נזרעו בפלטות בעלות 96 בארות בצפיפות של 5 × 10³ תאים לבערה ב-100 µL של מצע מלא, והושארו להיצמד למשך 24 h. כדי להעריך את טווח הריכוזים של β-sitosterol, תאים הודגרו עם 0.5, 1, 5, 10 או 20 µM של β-sitosterol למשך 24 h. עבור בדיקת חיוניות תאים הקשורה ל-LPS, התאים טופלו מראש ב-β-sitosterol בריכוזים של 1, 5 או 10 µM למשך 2 h, ולאחר מכן נחשפו ל-1 µg/mL של lipopolysaccharide למשך 24 h נוספות.
קבוצות הטיפול היו ביקורת, β-sitosterol בריכוז 0.5 µM, β-sitosterol בריכוז 1 µM, β-sitosterol בריכוז 5 µM, β-sitosterol בריכוז 10 µM, β-sitosterol בריכוז 20 µM, LPS, LPS בתוספת β-sitosterol בריכוז 1 µM, LPS בתוספת β-sitosterol בריכוז 5 µM, ו-LPS בתוספת β-sitosterol בריכוז 10 µM. ריאגנט Cell Counting Kit-8 הוסף בכמות של 10 µL לכל באר, והפלטות דגרו למשך 2 h. לאחר מכן נמדדה הבליעה באורך גל של 450 nm. חיוניות התאים נקבעה לאחר הפחתת ערך הבלנק (ללא תאים) והובעה ביחס לקבוצת הביקורת. כל תנאי כלל שש בארות טכניות בכל אחד משישה ניסויים ביולוגיים עצמאיים. הערכים מהבארות הטכניות מכל ניסוי חושבו כממוצע כדי ליצור ערך שחזור ביולוגי אחד לצורך ניתוח סטטיסטי.
הפעלה דלקתית המושרית על ידי LPS
עבור ניסויי הפעלה דלקתית, תאי HBZY-1 נזרעו בפלטות בעלות 6 בארות בצפיפות של 2 × 10⁵ תאים לבארה, וטופלו לאחר הגעה לכ-70%–80% התמזגות (confluence). התאים הוחזקו במצע המועשר ב-1% סרום בקר עוברי למשך 12 h לפני הטיפול. β-Sitosterol או celecoxib ניתן 2 h לפני גירוי ב-LPS. לאחר מכן, התאים נחשפו ל-1 µg/mL LPS למשך 24 h.
הקבוצות הניסיוניות היו בקרה, β-sitosterol בריכוז 10 µM, LPS, LPS בתוספת β-sitosterol בריכוז 1 µM, LPS בתוספת β-sitosterol בריכוז 5 µM, LPS בתוספת β-sitosterol בריכוז 10 µM, ו-LPS בתוספת celecoxib בריכוז 1 µM. Celecoxib נכלל כביקורת חיובית תפקודית לעיכוב של ייצור פרוסטגלנדינים התלוי ב-COX-2. בסיום הטיפול, נאספו על-נוזלי תרבית למדידת PGE2. תאים נאספו בנפרד לצורך אנליזת quantitative real-time PCR של Tnf, Il6, ו-Ptgs2 ולצורך אנליזת western blot של COX-2.
הפעלה פרו-פיברוטית המושרית על ידי TGF-β1
מודל נפרד המושרה על ידי TGF-β1 שימש להערכת הפעלה פרופיברוטית. תאי HBZY-1 נזרעו בפלטות בעלות 6 באריים בצפיפות של 2 × 10⁵ תאים לבאר ונשמרו במצע המועשר ב-1% fetal bovine serum למשך 12 h לפני הטיפול. התאים טופלו מראש ב-β-sitosterol למשך 2 h, ולאחר מכן עוברוהם בגירוי של 10 ng/mL recombinant TGF-β1 למשך 48 h.
קבוצות הטיפול כללו ביקורת, β-sitosterol (10 µM), TGF-β1, TGF-β1 + β-sitosterol (5 µM), ו-TGF-β1 + β-sitosterol (10 µM). בסיום תקופת הטיפול, התאים נאספו לצורך ניתוח quantitative real-time PCR של Col1a1 ו-Acta2 ולצורך ניתוח western blot של alpha-smooth muscle actin (α-SMA).
PCR כמותי בזמן אמת (Quantitative real-time PCR)
RNA כולל בודד מהתאים המטופלים באמצעות ריאגנט להוצאת RNA מבוסס פנול-גואנידיניום, בהתאם לפרוטוקול היצרן. ריכוז ה-RNA והטוהר שלו נקבעו באמצעות ספקטרופוטומטר. רק דגימות עם יחס A260/A280 של 1.8–2.0 שימשו לשעתוק הפוך. עבור כל דגימה, 1 µg של RNA כולל שעתקה באופן הפוך ל-DNA משלים בנפח תגובה סופי של 20 µL. ה-DNA המשלים שהתקבל דולל פי חמישה במים נקיים מנוקלאז לפני ביצוע qPCR. ה-qPCR בוצע בנפח כולל של 20 µL המכיל 10 µL של 2× SYBR Green master mix, 0.4 µL של פריימרים קדמיים ואחוריים בריכוז 10 µM כל אחד, 2 µL של DNA משלים מדולל, ו-7.2 µL של מים נקיים מנוקלאז. תנאי ההגברה כללו שלב דה-נטורציה ראשוני ב-95 °C למשך 30 s, ולאחריו 40 מחזורים של דה-נטורציה ב-95 °C למשך 5 s והתאמה-הארכה (annealing-extension) ב-60 °C למשך 30 s. לאחר מכן בוצע ניתוח עקומת המסה (melting-curve analysis) מ-65 °C עד 95 °C כדי לאמת את ספציפיות ההגברה.
הגנים שנמדדו היו Tnf, Il6, Ptgs2, Col1a1, Acta2ו- Gapdh. Gapdh שימש כגן הייחוס הפנימי. ביטוי גנים יחסי נקבע באמצעות שיטת ה-2−ΔΔCt שיטה, כאשר קבוצת הביקורת שימשה ככיול. רצפי הפריימרים מופיעים ב- טבלה נלווית 1כל דגימה נותחה בשלוש חזרות טכניות, ובוצעו שישה ניסויים ביולוגיים עצמאיים. הערכים שהתקבלו מהחזרות הטכניות חושבו כממוצע לפני ביצוע הניתוח הסטטיסטי.
מדידת PGE2 באמצעות תגובת ספיחה חיסונית קשורה לאנזים (ELISA)
על־נוזלי תרבית נאספו לאחר 24 h של גירוי ב-LPS וסובבו בcentrifuge במהירות של 1,000 × g למשך 10 min בטמפרטורה של 4 °C להסרת שיירי תאים. ריכוזי PGE2 נקבעו באמצעות ערכה מסחרית של סריקה חיסונית קשורה לאנזים (ELISA) בהתאם להוראות היצרן.
תקנים ודגימות הועמסו על פלטת הבדיקה בשכפולים. לאחר השלמת שלבי קישור הנוגדנים ופיתוח הצבע, נמדדה הבליעה באורך גל של 450 nm באמצעות קורא מיקרו-פלטות. ריכוזי PGE2 נקבעו על סמך עקומת סטנדרט לוגיסטית בעלת ארבעה פרמטרים והובעו כ-pg/mL. נותחו על-נוזלים מששה ניסויי תאים בלתי תלויים. מדידות שכפול עבור כל דגימה ביולוגית חושבו כממוצע לפני ביצוע הניתוח הסטטיסטי.
Western blotting
תאי שהטופלו עברו ליזיס בבופר למסיי radioimmunoprecipitation assay בתוספת תערובת מעכבי פרוטאז. הליזאטים דגרו על קרח למשך 30 min וסנטריפוגו ב-12,000 × g למשך 15 min בטמפרטורה של 4 °C. ריכוזי החלבונים בעיקרי השכבה (supernatants) נקבעו באמצעות בדיקת חלבון bicinchoninic acid. כמויות שוות של חלבון (30 µg לכל נתיב) עורבבו עם בופר טעינה (loading buffer) ועברו דנטורציה ב-95 °C למשך 5 min. חלבונים מניסויי LPS הופרדו על ג'לים של sodium dodecyl sulfate-polyacrylamide בריכוז 10%, בעוד שחלבונים מניסויי TGF-β1 הופרדו על ג'לים בריכוז 12%. החלבונים המופרדים הועברו לאחר מכן לממברנות polyvinylidene fluoride.
את הממברנות חסמו עם 5% חלב דל שומן ב-Tris-buffered saline המכיל 0.1% Tween 20 למשך 1 h בטמפרטורת החדר, ולאחר מכן דגרו אותן למשך לילה ב-4 °C עם נוגדנים ראשוניים נגד COX-2 (1:1000), α-SMA (1:1000) ו-GAPDH (1:5000). את COX-2 ניתוחו בדגימות מהניסוי עם LPS, בעוד שאת α-SMA ניתוחו בדגימות מהניסוי עם TGF-β1. לאחר שטיפה, דגרו את הממברנות עם נוגדנים משניים המשולבים עם horseradish peroxidase (1:5000) למשך 1 h בטמפרטורת החדר. את פסי החלבון הדמיאו באמצעות substrate לכימילומינצנציה משופרת וצולמו במערכת דימות כימילומינצנטית. זמני החשיפה היו בערך 10 s עבור COX-2, 10 s עבור α-SMA ו-2 s עבור GAPDH.
עוצמות הפסים כוונתו באמצעות ImageJ. אותות של COX-2 ו-α-SMA נורמלו לאות GAPDH התואם. Western blotting בוצע באמצעות דגימות חלבון שהתקבלו משישה ניסויים עצמאיים של תרביות תאים וטיפולים.
ניתוח סטטיסטי
ניתוחים סטטיסטיים בוצעו באמצעות GraphPad Prism. הנתונים מוצגים כממוצע ± סטיית תקן. שישה ניסויי תרבית תאים וטיפולים בלתי תלויים בוצעו עבור כל ניתוח כמותי, כאשר כל ניסוי בלתי תלוי ייצג שכפול ביולוגי אחד. מדידות של שכפולים טכניים שהתקבלו מאותו ניסוי ביולוגי מופעו כממוצע לפני הניתוח הסטטיסטי ולא נחשבו לתצפיות בלתי תלויות.
עבור בדיקת חיוניות התאים, כל ניסוי ביולוגי כלל שש בארות טכניות לכל תנאי. תגובות qPCR בוצעו בשלוש חזרות טכניות עבור כל דגימה ביולוגית, ומדידות של PGE2 בוצעו בשתי חזרות. הכימות של ה-Western blot התבססה על שש דגימות חלבון שהוכנו באופן עצמאי. לפיכך, כל עמודה כמותית כוללת שישה ערכים של חזרות ביולוגיות בודדות.
הבדלים בין קבוצות מרובות נותחו באמצעות ניתוח שונות חד-כיווני (one-way analysis of variance), ולאחריו מבחן השוואות מרובות של Tukey. ערך P דו-צדדי < 0.05 נחשב למשמעותי סטטיסטית. ערכים של חזרות ביולוגיות פרטניות הוצגו יחד עם הממוצע וסטיית התקן.
תוצאות
סריקת מרכיבים פוטנציאליים, אחזור מטרות וחיתוך מטרות
תהליך העבודה לזיהוי מטרות חופפות פוטנציאליות בין תרכובות למחלות מסוכם ב- איור 1Aשבעה תרכובות מועמדות של *C. sinensis* עמדו בקריטריוני הסינון שהוגדרו מראש של OB ≥30% ו-DL ≥0.18, כולל חומצה ארכידונית, לינואלשיל אצטט, βסיטוסטרול, פרוקסיארגוסטרול, צרוויסטרול, כולסטריל פלמיטט ו-CLR (טבלה 2במקביל, 1,134 גנים הקשורים לדלקת גלומרולו (glomerulonephritis) נשלופו מ-GeneCards, DisGeNET, PharmGKB ו-TTD, והפיזור שלהם בארבעת מאגרי המידע מוצג ב- איור 1Bניתוח חיתוך בין סט המטרות הקשור לתרכובת לבין סט הגנים הקשור למחלה זיהה 23 מטרות חופפות (טבלה 1, איור 1C). רשת המטרות החופפות של התרכובות המתאימה מוצגת ב- איור 1D, הממחישה את הקשרים בין תרכובות מועמדות מייצגות, מטרות חופפות ו-CGN. מטרות חופפות אלו כללו מספר גנים הקשורים לוויסות דלקתי, לאפופטוזיס ולאותות הקשורים לכלי דם, כגון PTGS2, CASP3, MAPK1, PPARG, TNFRSF1Aו- NOS3.
ניתוחי העשרה פונקציונלית ואינטראקציית חלבון-חלבון
על מנת לחקור את המשמעות הביולוגית של 23 המטרות החופפות, בוצעו ניתוחי העשרה של נתיבי GO ו-KEGG. התוצאות הראו כי מטרות אלו מועשרות באופן משמעותי במספר נתיבים הקשורים לדלקת ולמטבוליזם.
ניתוח GO סיווג את המטרות לקטגוריות של תהליך ביולוגי (BP), רכיב תאי (CC) ותפקוד מולקולרי (MF). מונחי ה-BP שהתעשרו באופן המשמעותי ביותר כללו תגובה לליפופוליסכריד, תגובה למולקולות ממקור חיידקי, וויסות של תהליכים במערכת השרירים. ברמה התאית, המטרות התעשרו במדרי rafts של ממברנה, קאוולא (caveola) ומדורי גרנולות אלפא של טסיות דם, בעוד שמונחי MF כגון פעילות אוקסידורדוקטאז וקישור לקולטן גרעיני הצביעו עוד יותר על תפקידים בסטרס חמצוני ובויסות שעתוקי (איור 2A).
ניתוח KEGG גילה כי נתיב השומנים והטרשחת העורקים (hsa05417) היה המועשר ביותר באופן מובהק (q-value < 1 × 10⁻⁶), לצד נתיבים כגון אותיות AGE–RAGE בסיבוכים של סוכרת, אותיות TNF, אותיות IL-17 ואותיות HIF-1 (איור 2B). באופן בולט, נתיב השומנים והטרשחת העורקים כלל 10 מתוך 23 המטרות, כולל CASP3, MAPK1, PPARG, NOS3 ו-TNFRSF1A.
בסיכומו של הדברים, תוצאות העשרה אלו מעידות על כך שהמטרות החופפות קשורות תפקודית לתהליכים ביולוגיים דלקתיים, לתגובת מאמץ ולתהליכים הקשורים לאנדותל הרלוונטיים ל-CGN.
ניתוח רשת אינטראקציות חלבון-חלבון
רשת של אינטראקציות חלבון-חלבון (PPI) נבנתה עבור 23 המטרות החופפות באמצעות STRING, מה שהוביל לרשת המכילה 23 צמתים ו-102 קשתות (איור 3A). ניתוח טופולוגי באמצעות CytoNCA זיהה תשע מטרות מרכזיות (hub targets) עם קישוריות גבוהה: PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2, ו-PRKCA (איור 3B). בין מטרות אלו, PTGS2 הראה מרכזיות בולטת ברשת ולכן נבחר לניתוח עגינה מולקולרית (molecular docking) בהמשך. תוצאות אלו מדגישות תת-קבוצה של רגולטורים מועמדים שתועדפו על בסיס הרשת, אשר עשויים להיות רלוונטיים לממשק שבין התרכובת למחלה.
עגינה מולקולרית (Molecular Docking) ותיקוף באמצעות עגינה חוזרת (Redocking)
כדי להעריך יותר להערכים את הסבירות המבנית של קשרי המועמדים הקשורים ל-PTGS2 שזוהו באמצעות ניתוח רשתות, בוצע עגינה מולקולרית (molecular docking) באמצעות מבנה של COX-2 קשור ל-celecoxib. מבנה הגביש PDB ID 3LN1 נבחר כיוון שהוא מכיל celecoxib הקשור לאתר הפעיל של COX-2, ובכך מספק כיס קישור לליגנד שהוגדר באופן ניסיוני לצורך תיקוף העגינה. תחילה הופק הליגנד celecoxib מהגביש והועגן מחדש לאותו כיס קישור. תנוחת ה-celecoxib שעוגן מחדש שחזרה באופן קרוב את התנוחה הקריסטלוגרפית, עם סטיית שורש ממוצעת (RMSD) של 0.876 Å עבור העגינה מחדש ואפיניות קישור חזויה של -12.3 kcal/mol (איור 4A). תוצאה זו הצביעה על כך שפרוטוקול העגינה היה מסוגל לשחזר את תנוחת קישור הליגנד המוכרת תחת תנאי העגינה שנבחרו.
תוך שימוש באותו רספטור, תיבת רשת (grid box) ופרמטרי עגינה (docking), בוצעו עגינה של β-sitosterol אל אזור הקשירה של COX-2 שהוגדר על ידי celecoxib. ה-β-sitosterol הראה זיקה קשירה חזויה של -7.2 kcal/mol (איור 4B). תבנית העגינה (docked pose) מוקמה בתוך אזור העגינה המוגדר מראש של COX-2, והשאריות שהקיפו את תבנית העגינה של ה-β-sitosterol כללו את ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 ו-TYR341.
לינולאיל אצטט (Linoleyl acetate) נבחן גם הוא כמועמד חישובי משני, מכיוון שנשאר ברשימת המרכיבים המועמדים ונקשר ל-PTGS2 בניתוח הרשת. תחת אותם תנאי עגינה (docking), הראה לינולאיל אצטט זיקה קישורית (binding affinity) חזויה של -7.5 kcal/mol, שהייתה נוחה מעט יותר מזו של β-sitosterol (איור 4C). התנוחה (pose) החזויה שלו הייתה ממוקמת קרוב לליגנד הייחוס celecoxib בתוך אזור העגינה. השאריות שהקיפו את לינולאיל אצטט כללו את ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335, ו-VAL509.
חיוניות תאים, הפעלת דלקת והפעלה פרו-פיברוטית
β-sitosterol נבחר לתיקוף ברמת התרכובת כיוון שזוהה כמועמד הקשור ל- PTGS2 בניתוח הרשת, והיו לו תמיכות ניסיוניות קודמות לפעילות אנטי-דלקתית ואנטי-פיברוטית. ראשית הוערכה חיוניות התאים כדי לקבוע את טווח הריכוזים המתאים לניסויים הבאים. טיפול ב-β-sitosterol בריכוזים של 0.5, 1, 5 ו-10 µM לא הפחית באופן משמעותי את חיוניות התאים בהשוואה לקבוצת הביקורת, בעוד ש-20 µM של β-sitosterol גרמו לירידה קלה. חשיפה ל-LPS הפחיתה את חיוניות התאים, וטיפול משולב ב-β-sitosterol שיפר חלקית את חיוניות התאים תחת גרייה של LPS, כאשר ההשפעה הבולטת ביותר נצפתה בריכוז של 10 µM (איור 5A). על בסיס תוצאות אלו, נעשה שימוש ב-1, 5 ו-10 µM של β-sitosterol בניסויים הבאים להפעלת דלקת המושרה על ידי LPS.
גירוי באמצעות LPS העלה באופן משמעותי את ביטוי ה-mRNA של גנים דלקתיים בתאי HBZY-1. בהשוואה לקבוצת הביקורת, קבוצת ה-LPS הראתה רמות ביטוי גבוהות יותר של Tnf, Il6, ו-Ptgs2 (איור 5B-D). טיפול ב-β-sitosterol הפחית את העלייה בביטוי של גנים אלו המושרה על ידי LPS באופן התלוי בריכוז. המגמה העיכובית הייתה בולטת ביותר בקבוצת ה-LPS בתוספת 10 µM β-sitosterol. Celecoxib, ששימש כביקורת פונקציונלית למעכב COX-2, הפחית אף הוא במידה מסוימת את ביטוי הגנים הדלקתיים, אם כי השפעתו הייתה פחות בולטת מזו שנצפתה עם 10 µM β-sitosterol עבור מספר סממנים תעתוקיים (איור 5B-D).
מכיוון ש-Ptgs2 מקודד ל-COX-2, ו-PGE2 הוא תוצר פרוסטגלנדין מרכזי במורד הפעילות של COX-2, נמדדה הפרשת PGE2 באמצעות ELISA. טיפול ב-LPS העלה את ריכוז ה-PGE2 בעיקר הנוזל של התרבית בהשוואה לקבוצת הביקורת. β-sitosterol הפחית את ייצור ה-PGE2 המושרה על ידי LPS באופן תלוי ריכוז. Celecoxib הפחית אף הוא את ייצור ה-PGE2 ושירת כביקורת חיובית לעכבה תפקודית של ציר ה-COX-2/PGE2 (איור 5E). אנליזת Western blot הראתה בנוסף כי LPS העלה את שפע חלבון ה-COX-2. טיפול ב-β-sitosterol הפחית את רמות חלבון ה-COX-2 תחת גרייה של LPS, כאשר הפחיתה חזקה יותר נצפתה בריכוז הגבוה יותר. לעומת זאת, celecoxib הפחית את ייצור ה-PGE2 אך הראה השפעה מוגבלת יותר על שפע חלבון ה-COX-2 (איור 5F).
כדי להשלים את המודל הדלקתי המושרה על ידי LPS, נעשה שימוש במודל של הפעלה פרו-פיברוטית המושרה על ידי TGF-β1 כדי להעריך אם β-sitosterol השפיע על ביטוי סממנים פיברוטיים בתאי מזנגיום. TGF-β1 הגביר באופן ניכר את ביטוי ה-mRNA של Col1a1 ו-Acta2 בהשוואה לקבוצת הביקורת (איור 6A,B). β-sitosterol הפחית את העלייה בביטוי שני הסממנים המושרת על ידי TGF-β1, וההפחתה הייתה בולטת יותר בריכוז של 10 µM מאשר בריכוז של 5 µM (איור 6A,B). ניתוח Western blot הראה עלייה מקבילה בביטוי חלבון α-SMA לאחר גירוי ב-TGF-β1, בעוד שטיפול ב-β-sitosterol הפחית את שכיחות חלבון ה-α-SMA בתאים שעובדו עם TGF-β1 (איור 6C).
זמינות נתונים:
הנתונים הגולמיים והמעובדים התומכים במחקר זה הופקדו ב-Zenodo תחת DOI: https://zenodo.org/records/216494982. תמונות הסריקה המלאה של ה-western blot מופיעות בקובץ המשליים 1.
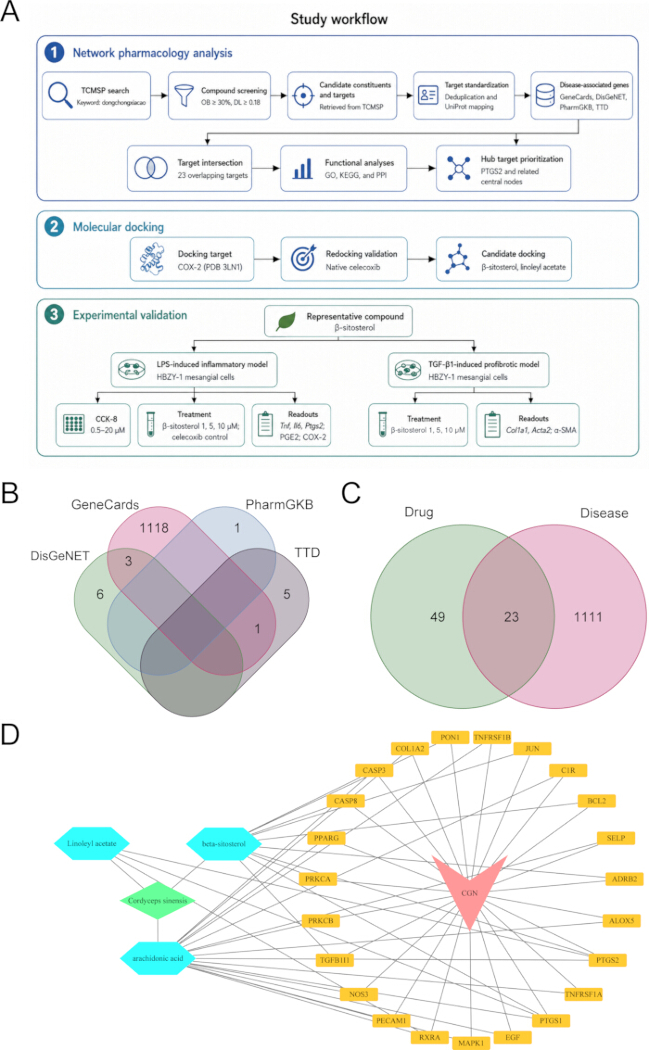
איור 1. זרימת עבודה וזיהוי מבוסס רשת של מטרות חופפות מועמדות בין תרכובות למחלה עבור C. sinensis בגלומרולוניפריטיס. (A) תרשים זרימה המראה את זיהוי התרכובות המועמדות, שליפה וסטנדרטיזציה של מטרות הקשורות לתרכובות, שליפת גנים הקשורים לגלומרולוניפריטיס, ניתוח חיתוך ובניית רשת המטרות החופפות של התרכובות. (B) דיאגרמת ון הממחישה את התפלגות הגנים הקשורים לגלומרולוניפריטיס שנשלפו מ-GeneCards, DisGeNET, PharmGKB ו-TTD. (C) דיאגרמת ון המראה את החפיפה בין מטרות הקשורות לתרכובות שהופקו מ-TCMSP לבין גנים הקשורים למחלה, שהביאה ל-23 מטרות חופפות. (D) רשת של תרכובות ומטרות חופפות. המעוין הירוק מייצג את C. sinensis, משושים כחולים מציינים תרכובות מועמדות, עיגולים צהובים מציינים מטרות חופפות, והמשולש הוורוד מייצג את CGN. קשתים מציינות את הקשרים התואמים בין תרכובת למטרה או בין מחלה למטרה. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
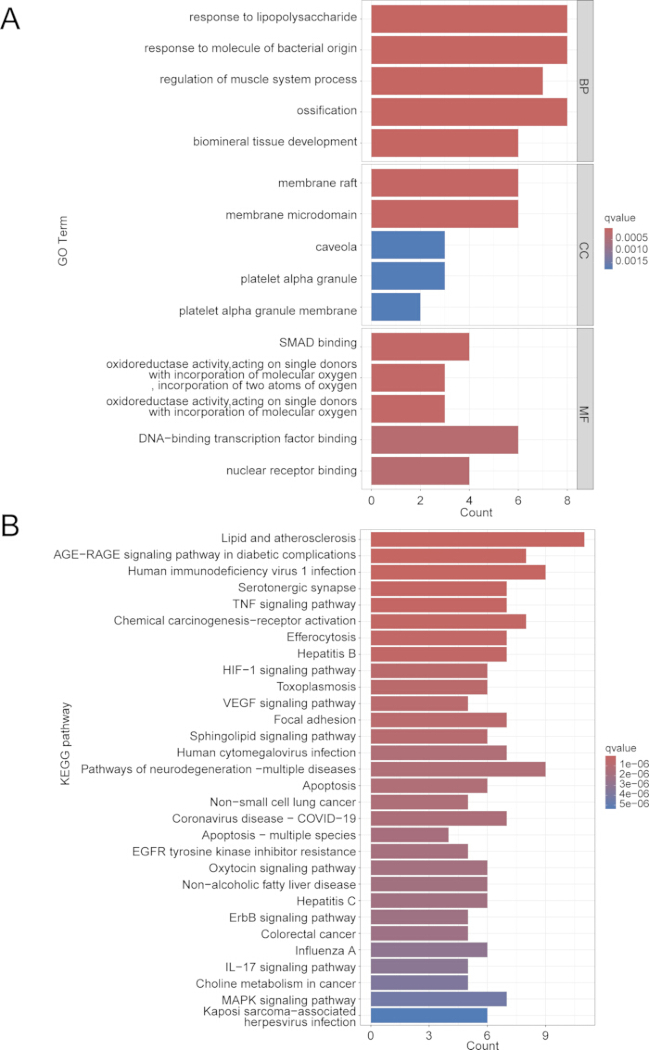
איור 2ניתוח העשרה פונקציונלית של המטרות החופפות. (A) ניתוח העשרה של GO עבור 23 המטרות החופפות. זוהו המונחים המובילים עבור BP, CC ו-MF. אורך העמודה מציין את מספר הגנים; הגוון הצבעי מייצג את ערך ה-q. (Bניתוח העשרה של KEGG עבור 23 המטרות החופפות. המסלולים מדורגים לפי מספר הגנים והמובהקות הסטטיסטית. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
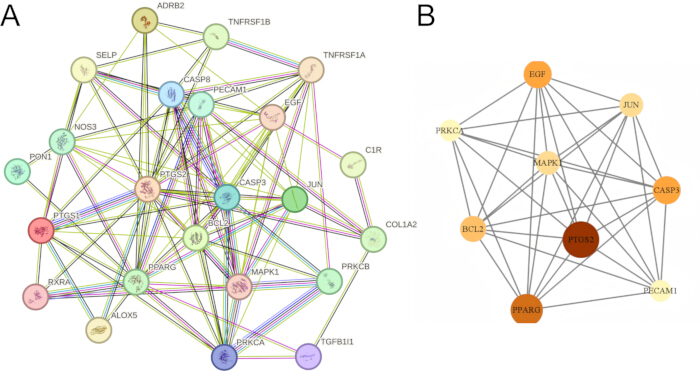
איור 3. רשת אינטראקציות חלבון-חלבון ותיעדוף מטרות מפתח (hub targets) של המטרות החופפות. (A) רשת PPI שנבנתה מ-23 המטרות החופפות באמצעות STRING עם סף ציון אינטראקציה >0.4. (B>) תשע מטרות המפתח המובילות תועדפו באמצעות ניתוח טופולוגיית רשת מבוסס CytoNCA. PTGS2 הראה מרכזיות רשת בולטת ונבחר לניתוח עגינה מולקולרית (molecular docking) בהמשך. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
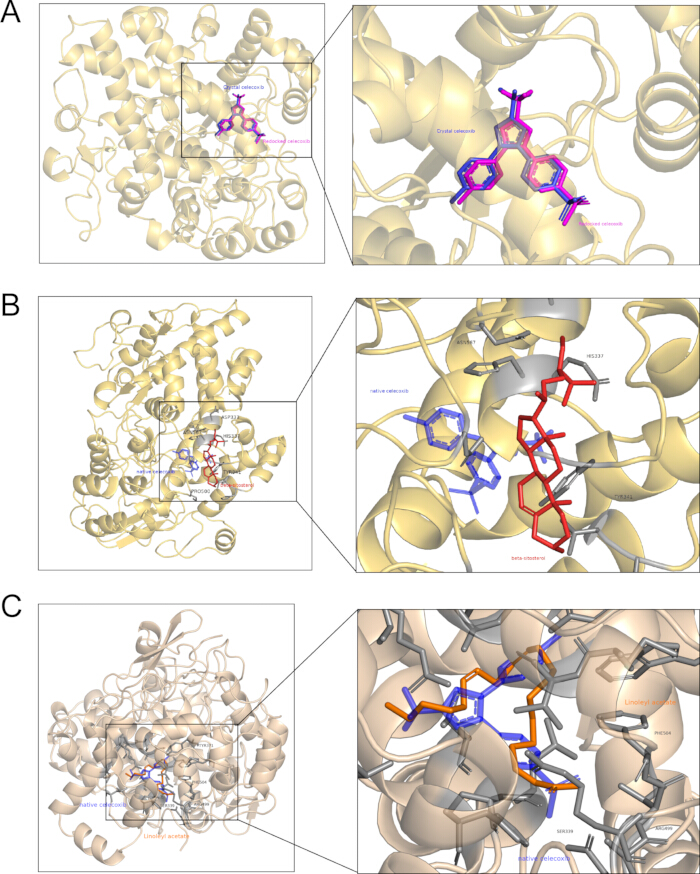
איור 4. סימולציית עגינה מולקולרית (molecular docking) ותיקוף באמצעות עגינה חוזרת (redocking) של תרכובות מועמדות נבחרות עם COX-2. (A(סמיכה של תנוחת (pose) הקריסטלוגרפיה של celecoxib ותנוחת ה-redocking שדורגה במיקום הראשון במבנה של COX-2 עכברי הקשור ל-celecoxib (PDB ID 3LN1). ה-redocking שחזר את אוריינטציית הקשירה הניסויית. (B) תנוחת העגינה (docking pose) בעלת הדירוג הגבוה ביותר של β-סיטוסטרול בתוך אזור העגינה (docking region) של COX-2 שהוגדר על ידי celecoxib. תנוחה קריסטלוגרפית של celecoxib כלולה כנקודת ייחוס מרחבית. (Cתנוחת העגינה (docking pose) בעלת הדירוג הגבוה ביותר של לינולאיל אצטט (linoleyl acetate) בתוך אותו אזור עגינה. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
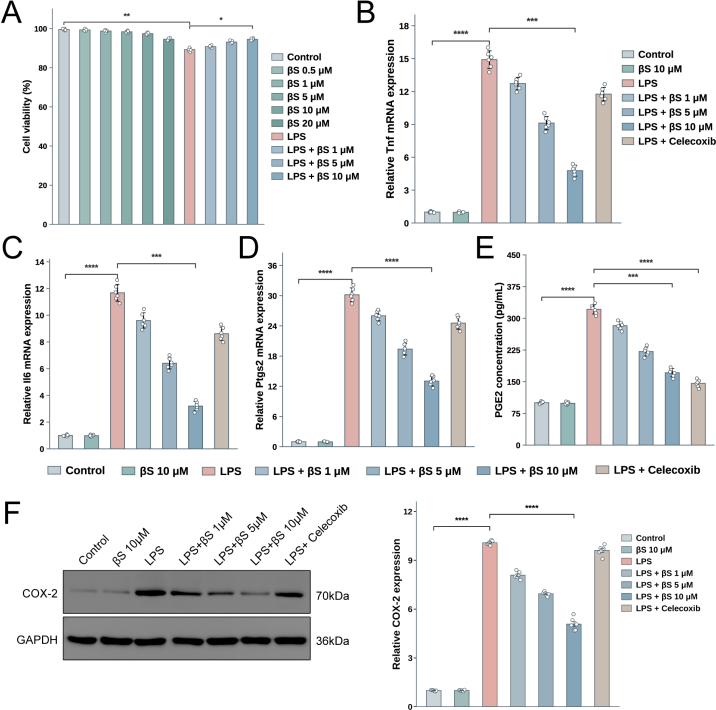
איור 5. β-Sitosterol מפחית הפעלה דלקתית וייצור PGE2 המושרים על ידי LPS בתאי מזנגיום HBZY-1. (A) חיוניות התאים נמדדה באמצעות בדיקת Cell Counting Kit-8. תאים טופלו ב-β-sitosterol בריכוזים של 0.5, 1, 5, 10, או 20 µM למשך 24 h. בקבוצות שעומלו ב-LPS, התאים טופלו מראש ב-β-sitosterol בריכוזים של 1, 5, או 10 µM למשך 2 h לפני חשיפה ל-1 µg/mL LPS למשך 24 h. חיוניות התאים מיוצגת ביחס לקבוצת הביקורת (Control). (B–D) ניתוח Quantitative real-time PCR של ביטוי mRNA של Tnf (B), Il6 (C), ו-Ptgs2 (D). ביטוי הגנים נורמל ל-Gapdh ומיוצג ביחס לקבוצת הביקורת. (E) ריכוזי PGE2 בתעקיות התרבית שנמדדו באמצעות בדיקת enzyme-linked immunosorbent assay. Celecoxib נכללה כביקורת חיובית תפקודית לדיכוי ייצור פרוסטגלנדינים תלוי COX-2. (F) תמונות מייצגות של western blot עבור COX-2 ו-GAPDH בקבוצות הטיפול המצוינות. הנתונים מוצגים כממוצע ± SD מששה ניסויים ביולוגיים בלתי תלויים, כאשר ערכי החזרים ביולוגיים בודדים מוצגים. ערכי חזרים טכניים חושבו כממוצע לפני הניתוח. השוואות בוצעו באמצעות one-way ANOVA ולאחריה מבחן השוואות מרובות של Tukey. מובהקות מסומנת על ידי סוגריים בפנלים הבודדים: *P < 0.05, **P < 0.01, ***P < 0.001, ו-****P < 0.0001. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
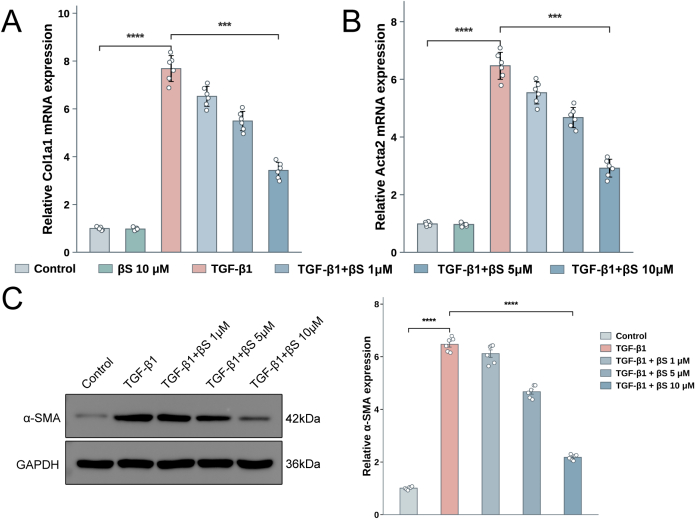
איור 6. β-Sitosterol מפחית את ביטוי הסממנים הפרו-פיברוטיים המושרים על ידי TGF-β1 בתאי מזנגיום HBZY-1. (A–B) ניתוח PCR כמותי בזמן אמת של ביטוי mRNA של Col1a1 (A) ו-Acta2 (B). ביטוי הגנים נורמל ל-Gapdh והוצג ביחס לקבוצת הביקורת (Control). (C) תמונות מייצגות של western blot עבור α-SMA ו-GAPDH בקבוצות הטיפול המצוינות. הנתונים מוצגים כממוצע ± SD משישה ניסויים ביולוגיים עצמאיים, כאשר ערכי החזרים ביולוגיים בודדים מוצגים. ערכי חזרים טכניים שוכללו לפני הניתוח. השוואות בוצעו באמצעות one-way ANOVA ולאחריו מבחן השוואות מרובות של Tukey. מובהקות מסומנת על ידי סוגריים בלוחות הבודדים: *P < 0.05, **P < 0.01, ***P < 0.001, ו-****P < 0.0001. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
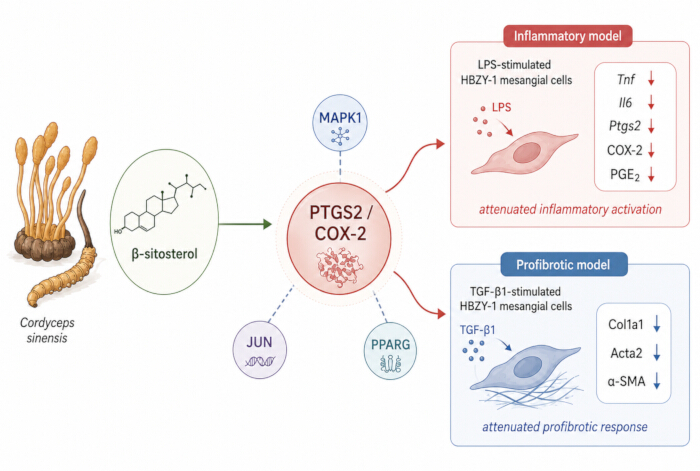
איור 7פירוש משולב של βתגובות דלקתיות ופרו-פיברוטיות הקשורות ל-sitosterol בתאי HBZY-1. ניתוחי רשת ועגינה תועדפו PTGS2/COX-2 בתוך הקשר רחב יותר שכלל MAPK1, JUNו- PPARG. β-טיפול בסיטוסטרול היה קשור להפחתות ב-LPS-induced Tnf, Il6ו- Ptgs2 ביטוי, שכיחות חלבון COX-2 וייצור PGE2, כמו גם ירידה ב-TGF-βמושרה על ידי 1 Col1a1, Acta2ו- αביטוי SMA. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| לא. | מטרה חופפת | תרכובות מועמדות הקשורות למטרה |
| 1 | PTGS1 | β-סיטוסטרול; לינולאיל אצטט; חומצה ארכידונית |
| 2 | PTGS2 | βסיטוסטרול; לינולאיל אצטט; חומצה ארכידונית |
| 3 | CASP3 | βסיטוסטרול; חומצה ארכידונית |
| 4 | CASP8 | βסיטוסטרוטול (sitosterol) |
| 5 | BCL2 | βסיטוסטרול- |
| 6 | JUN | βסיטוסטרול (sitosterol) |
| 7 | PON1 | βסיטוסטרול |
| 8 | PRKCA | βסיטוסטרול |
| 9 | TGFB1I1 | βסיטוסטרול- |
| 10 | ADRB2 | βסיטוסטרול |
| 11 | RXRA | לינולאיל אצטט; חומצה ארכידונית |
| 12 | TNFRSF1A | חומצה ארכידונית |
| 13 | TNFRSF1B | חומצה ארכידונית |
| 14 | ALOX5 | חומצה ארכידונית |
| 15 | SELP | חומצה ארכידונית |
| 16 | C1R | חומצה ארכידונית |
| 17 | COL1A2 | חומצה ארכידונית |
| 18 | PPARG | חומצה ארכידונית |
| 19 | PRKCB | חומצה ארכידונית |
| 20 | NOS3 | חומצה ארכידונית |
| 21 | PECAM1 | חומצה ארכידונית |
| 22 | MAPK1 | חומצה ארכידונית |
| 23 | EGF | חומצה ארכידונית |
טבלה 1: מטרות חופפות בין מטרות הקשורות לתרכובות שהופקו מ-TCMSP לבין גנים הקשורים לדלקת גלומרולריט (glomerulonephritis). רשומות של תרכובות-מטרה נשלפו מ-TCMSP, הוסרו כפילויות באופן ידני, וסטנדרטיזציה שלהן בוצעה לסמלי גנים רשמיים של בני אדם באמצעות UniProt.
| שם המולקולה | MW | AlogP | OB (%) | Caco-2 | BBB | DL | FASA | HL |
| חומצה ארכידונית | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| לינולאיל אצטט | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-sitosterol | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| Peroxyergosterol | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| Cerevisterol | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| כולסטריל פלמיטט | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| כולסטרול (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
טבלה 2: מרכיבים מועמדים של C. sinensis שנשלוף מתוך TCMSP באמצעות קריטריונים של סמיכות ביולוגית פומית (oral bioavailability) ובדיקת דמיון לתרופה (drug-likeness). תרכובים עם סמיכות ביולוגית פומית של לפחות 30% ודמיון לתרופה של לפחות 0.18 נשמרו. MW, משקל מולקולרי; ALogP, מקדם חלוקה חזוי בין אוקטנול למים; OB, סמיכות ביולוגית פומית; Caco-2, חדירות Caco-2 חזויה; BBB, חדירה למחסום דם-מוח; DL, דמיון לתרופה; FASA, שטח פנים נגיש שלילי שברי; HL, זמן מחצית חיים.
טבלה משלימה 1. רצפי פריימרים ששימשו ל-PCR כמותי בזמן אמת בתאי מזנגיום גלומרולריים של חולדה מסוג HBZY-1. כל הרצפים מוצגים בכיוון 5′ ל-3′.אנא לחצו כאן להורדת קובץ זה.
קובץ משלים 1. תמונות סריקה מלאות עבור Western blot.אנא לחצו כאן כדי להוריד קובץ זה.
דיון
מחקר זה שילב פרמקולוגיה של רשתות, דוקינג מולקולרי המתוקף באמצעות ליגנד-ייחוס וניסויים ברמת התרכובת כדי לבחון היפותזה הקשורה ל-PTGS2, שנגזרה מרכיבים מועמדים של C. sinensis. שבעה רכיבים עמדו בקריטריוני הסינון שהוגדרו מראש של TCMSP, ו-23 מטרות חפפו לקבוצת הגנים הקשורה לגלומרולונפריטיס. ניתוח אינטראקציות בין חלבונים תיעד תשע מטרות מרכזיות, שביניהן נבחר PTGS2 לצורך דוקינג והערכה ניסויית. דוקינג חוזר של celecoxib שחזר את תצורת הגביש שלו, בעוד ש-β-sitosterol ו-linoleyl acetate הראו תאימות חזויה בינונית עם אזור הדוקינג של COX-2. בתאי מזנגיום HBZY-1, ה-β-sitosterol הפחית את ביטוי הגנים הדלקתיים המושרה על ידי LPS, את שכיחות ה-COX-2 ואת ייצור ה-PGE2, והפחית את הביטוי של סממנים פרו-פיברוטיים המושרה על ידי TGF-β1. ממצאים אלו מקשרים בין תיעוד חישובי לבין פנוטיפים תאיים, אך הם תומכים במערכת יחסים רגולטורית מועמדת ולא במנגנון טיפולי מוגדר.
תוצאות ההעשרה מיקמו את המטרות החופפות בתוך תהליכים ביולוגיים הקשורים לעגיזה דלקתית, עקה תאית, ויסות ליפידים, תפקוד כלי דם ושקיעה מחדש של רקמה. העשירתו של תגובות לליפופוליסכריד ומוצרי חיידקים תאמה למודל הדלקתי ששימש לתיקוף ניסויי. מסלולים הקשורים ל-TNF, IL-17, AGE-RAGE ו-HIF-1 סיפקו גם הם הקשר תפקודי סביר לדלקת גלומרולרית ושקיעה מחדש maladaptive6,17,18,19. עם זאת, העשרת מסלולים משקפת ריכוז סטטיסטי של גנים מאושרים ואינה קובעת הפעלה או עיכוב של מסלול על ידי β-sitosterol12. לפיכך, יש לפרש את האנוטציה הבולטת של ליפידים ואתרוסקלרוזיס כביולוגיה דלקתית, אפופטוטית וכלי דם משותפת, ולא כראיה לכך שאתרוסקלרוזיס מייצג את מנגנון המחלה העיקרי ב-CGN. באופן דומה, רשומות של זמינות ביולוגית פומית, דמיון לתרופה ומטרות המבוססות על TCMSP שימשו לתיעודוף המועמדים.
PTGS2 הגיש כצומת רלוונטית מאחר שהייתה נוכחת בחיתוך של המחלות המורכבות, הפגינה מרכזיות רשתית גבוהה, וקושרה ניסוית לשינויים בשעתוק של Ptgs2, בשפע חלבון COX-2 ובהוצאת PGE2. התאמה זו בין המישור החישובוני למישור התאי מחזקת את הרציונל לבחינת התגובה הקשורה ל-PTGS2. עם זאת, היא אינה מעידה על כך ש-PTGS2 היא פתוגנית באופן אחיד בכליה. פרוסטנואידים נגזרים מ-COX משתתפים בזרימת הדם הכלית, בטיפול במלחים ובהומאוסטזיס אדפטיבי, ועשויים להפעיל השפעות מגנות או מזיקות בהתאם לסוג התא, לפיזור הרצפטורים, לשלב המחלה ולריכוז המקומי20,21. בנפריטיס ניסוית, celecoxib הפחיתה את התוצר הקשור ל-PGE2, בעוד ש-PGE2 עצמו השפיע על ביטוי רצפטורים לפרוסטגלנדין בתאי מזנגיום22. תצפיות אלו ממחישות כי ההשלכות הביולוגיות של COX-2 ו-PGE2 חורגות ממסלול פרו-דלקתי ליניארי פשוט20,23. השוואה עם celecoxib מסייעת להבדיל בין ביטוי המטרה לבין תפקוד האנזים. Celecoxib הפיקה את ההפחתה הברורה ביותר ב-PGE2, בהתאמה לתפקידה כמעכבת תפקודית של COX-2, אך הפעילה השפעה מוגבלת יותר על ביטוי Ptgs2 ועל שפע חלבון COX-222. β-Sitosterol הראה דפוס רחב יותר שכלל רמות נמוכות יותר של Tnf, Il6, Ptgs2, COX-2 ו-PGE2. הבדל זה אינו מעיד על עוצמת עיכוב עדיפה של COX-2. במקום זאת, הוא מרמז ש-β-sitosterol עשויה לשנות את המצב הדלקתי שבו PTGS2 משרה, בעוד ש-celecoxib מגבילה בעיקר את סינתזת הפרוסטגלנדין באמצעות עיכוב הפעילות הקטליטית. בדיקות אנזימיות ישירות, מחקרי מעורבות מטרה ושיבוש של PTGS2 יהיו דרושים כדי לקבוע האם β-sitosterol מקיימת גם היא אינטראקציה תפקודית עם COX-2.
ממצאי הרשת מרמזים גם כי אין לפרש את PTGS2 כצומת מולקולרית מבודדת. MAPK1, JUN ו-PPARG תועדפו במקביל ברשת אינטראקציית החלבונים, ובכך הם ממקמים את סינתזת הפרוסטנואידים בתוך הקשר רחב יותר של שסוואולץ וטרנסקריפציה. בתאי מזנגיום של הכליה, sphingosine 1-phosphate הגביר את ביטוי COX-2 ואת יצירת PGE2 באמצעות שסוואולץ p42/p44 MAPK התלוי בקולטן S1P 2, מה שסיפק ראיה ישירה לכך שפעילות MAPK יכולה להימצא במעלה הזרימה (upstream) של תגובת COX-2/PGE2 בסוג תאים זה24. מכיוון ש-JUN הוא מרכיב מרכזי בקומפלקס גורם השעתקה AP-1, ייתכן ש-AP-1 מהווה ממשק אחד בין הפעלת MAPK לבין שעתוק PTGS2. בתיאום עם אפשרות זו, 15-deoxy-Δ12,14-prostaglandin J2 דיכא את ביטוי COX-2 המושרה על ידי IL-1β יחד עם פעילות AP-1 בתאי מזנגיום במערכת תרבית25. במודלים תאיים שאינם מהכליה, β-sitosterol הפחית את הפעלת ERK ו-p38, את שסוואולץ NF-κB, את ביטוי COX-2 ואת ייצור ציטוקינים דלקתיים לאחר חשיפה ל-LPS14,15. תצפיות אלו מספקות הקשר סביר להפחתות המתואמות ב-Tnf, Il6, Ptgs2, COX-2 ו-PGE2 שנצפו במחקר הנוכחי. עם זאת, מחקרי ה-β-sitosterol שצוטטו נערכו בתאי מיקרוגליה או תאים אנדותליים ולא בתאי מזנגיום של הכליה, ופוספורילציה של MAPK1 ופעילות של JUN לא נמדדו כאן. לפיכך, התוצאות הנוכחיות אינן מבססות מנגנון של ויסות PTGS2 על ידי β-sitosterol התלוי ב-MAPK1 או ב-JUN. ייתכן ש-PPARG חופף לרשת הממוקדת ב-PTGS2 באמצעות ויסות שעתוקי רגיש לליפידים ומודולציה של פנוטיפ תאי מזנגיום פרו-פיברוטי, ולא כמאפק (effector) לינארי פשוט במורד הזרם של PTGS2. בתאי מזנגיום גלומרולריים, ליגנדים טבעיים וסינתטיים של PPARγ עיכבו את ביטוי הפיברונקטין המושרה על ידי TGF-β1, בעוד שעבודה נפרדת הראתה כי אגוניסטים של PPARγ הפחיתו את הפעלת תאי המזנגיום המושרה על ידי TGF-β, את ביטוי α-SMA ואת הצטברות קולגן IV באמצעות החלשה של שסוואולץ PKA ו-CREB26,27. עבודה עדכנית יותר בעכברים סוכרתיים ובתאי מזנגיום גלומרולריים שעוררו גלוקוז בריכוז גבוה מיקמה את NF-κB/COX-2 ו-PPARγ/UCP2 בתוך צירים רגולטוריים מקבילים הקשורים לדלקת ופיברוזה בכליות, מה שתומך בהתכנסות תפקודית פוטנציאלית ללא הוכחה של צימוד ישיר בין PTGS2 ל-PPARG28. ממצאים אלו מספקים הקשר ביולוגי סביר להפחתות ב-Col1a1, Acta2 ו-α-SMA שנצפו במודל TGF-β1 הנוכחי. עם זאת, ביטוי PPARG, פעילות שעתוקית וקישור ליגנדים לא הוערכו. לפיכך, הנתונים הנוכחיים אינם יכולים לייחס את התגובה הפרו-פיברוטית שנצפתה להפעלת PPARG או להגדיר מסלול שסוואולץ רצופי של MAPK1-PTGS2-PPARG. חשוב לציין כי MAPK1 ו-PPARG תועדפו ברמת רשת התרכובת-מחלה המשולבת, ואין לפרשם כמטרות ישירות של β-sitosterol בהתבסס על הניתוח הנוכחי.
יש לפרש את ניתוח העגינה (docking) במסגרת אותם גבולות ראייתיים. ערך RMSD של 0.876 Å בעגינה חוזרת (redocking) הצביע על כך שפרוטוקול העגינה הנבחר יכול לשחזר את האוריינטציה המוכרת של celecoxib במבנה 3LN1. זיקות חוזיות פחות נוחות באופן משמעותי של β-sitosterol ושל linoleyl acetate בהשוואה ל-celecoxib תמכו בהתאמה מרחבית בתוך האזור שהוגדר מראש, אך לא בעוצמת קשירה או פעולה פרמקולוגית שוות ערך29,30. ההבדל של 0.3 kcal/mol בין linoleyl acetate ל-β-sitosterol קטן מדי כדי להצדיק דירוג ביולוגי באופן מבודד. β-Sitosterol נבחר לבדיקות המשך מכיוון שהקשר שלו לרשת לווה לספרות ניסויית רחבה יותר הרלוונטית לדלקת ופיברוזיס14,15,16. מחקרים קודמים דיווחו על הפחתות ב-TNF-α, IL-6, ו-COX-2 בתאים מיקרוגליאליים ותאי אנדותל שנחשפו ל-LPS, יחד עם שינויים באיתות של MAPK ו-NF-κB14,15. חומצה ארכידונית (Arachidonic acid) דורשת פרשנות שונה כיוון שהיא מהווה סובסטרט אנדוגני של COX21. נוכחותה ברשת הנגזרת מ-TCMSP אינה מעידה על פעולה עיכובית אנטי-דלקתית וממחישה כי קשרי מטרה-תרכובת המבוססים על מאגרי נתונים אינם מגדירים כיווניות. ההפחתות במדדי דלקת התלויות בריכוז שנצפו בתאי HBZY-1 עקביות עם ממצאים תאיים מוקדמים אלו, תוך הרחבת הראיות להקשר של מזנגיום גלומרולרי14,15. מודל ה-TGF-β1 התייחס להיבט נפרד של תהליך המחלה31. β-Sitosterol הפחית את השעתוק של Col1a1 ו-Acta2 והוריד את שפע ה-α-SMA לאחר גירוי ב-TGF-β1. עבודה קודמת בתאי אפיתל אלבולאריים של בני אדם מצאה באופן דומה כי β-sitosterol הפחית את ביטוי הקולגן, הפיברונקטין וה-α-SMA המונחים על ידי TGF-β1, על אף שמאותו מחקר עסק ברקמה ובתהליך תאי שונה16. לפיכך, הממצאים הנוכחיים תומכים בפעילות נגד פנוטיפ פרו-פיברוטי בתאי מזנגיום אך אינם מבססים עיכוב של קולטן TGF-β ספציפי או מנגנון תלוי SMAD31.
מספר מגבלות מגדירות את היקף הפרשנות. קבוצת הגנים של המחלה הופקה באמצעות המונח הרחב glomerulonephritis ואינה ספציפית לתת-סוג קליני או היסטולוגי אחד של CGN. הניתוח החישובי השתמש באנוטציות אנושיות, העגינה (docking) השתמשה במבנה COX-2 של עכבר, והניסויים בוצעו בתאי HBZY-1 של חולדה. קשרים אורתולוגיים תומכים בהשוואה, אך הבדלים התלויים במין בוויסות ובזיהוי ליגנדים נותרים אפשריים. שורת תאים מסנגיאליים מונחלים בודדת אינה יכולה לייצג אינטראקציות בין תאים מסנגיאליים, פודוציטים, תאי אנדותל, תאי חיסון חודרים והמדור הטובולו-אינטרסטיציאלי. המחקר גם לא העריך קישור ישיר, פעילות אנזימטית של COX-2, תלות ב- PTGS2, תאי כליה אנושיים ראשוניים, יעילות in vivo, פרמקוקינטיקה או חשיפה כלייתית. לבסוף, בדיקה של תכשיר β-sitosterol מוגדר פותרת את חוסר העקביות המוקדם בין הרכיבים החזויים לבין תמצית לא מאופיינת, אך היא אינה קובעת כי β-sitosterol אחראי להשפעות של C. sinensis שלם או שרכיבים אחרים אינם פעילים.
בסיכומה של הדברים, הממצאים מהרשת, מהעגינה (docking) וממסמכי התאים תומכים ב-β-sitosterol כמועמד מייצג הקשור להפחתה של הפעלה דלקתית ופרו-פיברוטית בתאי HBZY-1. התוצאות עקביות עם מודולציה של תגובה הקשורה ל-PTGS2/COX-2/PGE2, אך אינן מבססות קישור ישיר ל-COX-2, סיבתיות תלוית-PTGS2, או יעילות טיפולית ב-CGN. נדרשים מחקרים נוספים לבדיקת מעורבות המטרה (target-engagement), שיבוש גנטי, תאי מקור ומחקרי in vivo (איור 7).
גילויים
המחברים מצהירים כי אין להם ניגודי利益. כלים מבוססי בינה מלאכותית (ChatGPT, OpenAI) שימשו לסיוע בעריכה לשונית ובתכנון ראשוני של איורים סכמתיים. בינה מלאכותית גנרטיבית שימשה לסיוע בהכנת טיוטות גרפיות ראשוניות של איורים 1A ו-7, אשר נסקרו לאחר מכן ותוקנו על ידי המחברים כדי להבטיח עקביות עם השיטות והתוצאות המדווחות. כל התוצרים שסייעה להם בינה מלאכותית הוערכו באופן ביקורתי ואושרו על ידי המחברים. המחברים אישרו את תוכן האיורים הסופי ונשאו באחריות מלאה ליושרה ולדיוק של כתב היד.
תודות
מחקר זה נתמך על ידי התמחות מיוחדת למאפייני נפריפת ברפואה סינית ומערבית משולבת (ZYTSZK2-3) והמחקר על אסטרטגיית התערבות של TCM במחלת כליות כרונית מנקודת מבט של ניהול מחלות כרוניות (202240169).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אתנול מוחלט | Sigma-Aldrich/Merck | E7023 | אתנול בדרגת ביולוגיה מולקולרית, 200 proof, לא דנטורי; ממס עבור βמלאי $\beta$-sitosterol. |
| AutoDock Vina | Scripps Research | גרסה 1.1.2 | סימולציית עגינה מולקולרית |
| מCבט בטיחות ביולוגית | Thermo Fisher Scientific | סדרה 1300 A2 | פעולות תרביות תאים סטריליות |
| סלקוקסיב | MedChemExpress | HY-14398 | מעכב COX-2 סלקטיבי המשמש כביקורת חיובית; תמיסת מקור בריכוז 10 mM ב-DMSO. |
| ערכה לספירת תאים 8 (Cell Counting Kit-8) | Dojindo Molecular Technologies, Inc. | CK04 | בדיקה קולורימטרית של WST-8 להערכת חיוניות תאים; מדידת בליעה באורך גל של 450 ננומטר. |
| מערכת לדימיון כימילומינצנציה | Bio-Rad Laboratories | ChemiDoc MP | רכישת דימויים של Western blot |
| חבילת ה-R clusterProfiler | Bioconductor | גרסה 4.10.0 | ניתוח העשרה של GO ו-KEGG |
| CO2 אינקובטור לתרבית תאים | Thermo Fisher Scientific | Forma Series II 3111 | דגירה של תרביות תאים ב- 37 °C ו-5% CO22 |
| נוגדן מונוקלונלי לארנב ל-COX-2 (D5H5) | טכנולוגיית איתות תאי | 12282 | Western blot שהוכח עבור COX-2 של בן אדם, עכבר וחולדה; בשימוש בדילול של 1:1,000. |
| תוסף CytoNCA | חנות האפליקציות של Cytoscape | גרסה 2.1.6 | ניתוח טופולוגי של מטרות רכז (Hub target topological analysis) |
| תוכנת Cytoscape | קונסורציום Cytoscape | גרסה 3.8.0 | ויזואליזציה ואנליזה של רשתות |
| דימתיל סולפוקסיד | Sigma-Aldrich/Merck | D2650 | BioReagent שעבר סינון סטרילי, ≥99.7%; ממס עבור תמיסת מלאי של celecoxib. |
| מאגר הנתונים DisGeNET | קבוצת האינפורמטיקה הביו-רפואית אינטגרטיבית | לא רלוונטי | שליפת גנים הקשורים למחלה עבור גלומרולוניפריטיס |
| מדיום איגל משופר של דולבקו (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | מצע בסיסי לתרבית תאי HBZY-1 |
| מצע לכימילומינצנציה מוגברת | Beyotime Biotechnology | P0018S | ויזואליזציה של פסי Western blot |
| סרום עגל עובר | Gibco/Thermo Fisher Scientific | 10099-141C | תוסף סרום לתרבית תאים |
| נוגדן חד-שבטי משפחת הארנב ל-GAPDH (D16H11) | טכנולוגיית העברת אותים תאיים | 5174 | בקרת העמסה ל-Western blot; בעל תגובתיות ל-GAPDH של בן אדם, עכבר וחולדה; נעשה בו שימוש בדילול של 1:5,000 לאחר אופטימיזציה פנימית. |
| מאגר הנתונים GeneCards | מכון ויצמן למדע | לא רלוונטי | שליפת גנים הקשורים לדלקת גלומרולולרית |
| GraphPad Prism | תוכנת GraphPad | גרסה 9.0.0.121 | ניתוח סטטיסטי של נתוני ניסויים in vitro |
| נוגדן עיזים אנטי-rabbit IgG המשורשב ל-HRP | Proteintech Group | SA00001-2 | נוגדן משני לנוגדנים ראשוניים מארנב |
| תוכנת ImageJ | המכונים הלאומיים לבריאות | גרסה 1.54 | ניתוח דנסיטומטרי של Western blot |
| מיקרוסקופ ניגודיות פאזה הפוך | Olympus | CKX53 | תצפית על מורפולוגיית תאים |
| חבילת ה-R org.Hs.eg.db | Bioconductor | גרסה 3.18.0 | אנוטציה של גנים אנושיים לצורך ניתוח העשרה |
| תמיסת פניצילין-סטרפטומייצין | Gibco/Thermo Fisher Scientific | 15140122 | תוסף אנטיביוטי לתרבית תאים |
| פרוסטגלנדין E2 ערכת בדיקה למדדי פרמטרים | R&D Systems, מותג של Bio-Techne | KGE004B | ELISA תחרותי רב-מינים עבור על-נוזלי תרביות תאים; טווח בדיקה 39–2,500 pg/mL; גילוי קולורימטרי ב-450 ננומטר. |
| מאגר הנתונים PharmGKB | מאגר ידע של פרמקו-גנומיקה | לא זמין | אחזור מטרות הקשורות למחלה |
| מאגר המידע PubChem | המרכז הלאומי למידע על ביוטכנולוגיה | לא ניתן לספק תרגום מכיוון שלא הוזן טקסט מקור. נא לספק את הטקסט לאנגלית שברצונך לתרגם לעברית. | שחזור מבני ליגנדים |
| ממברנת PVDF | Millipore/Merck | IPVH00010 | ממברנת העברה של חלבונים עבור Western blotting |
| מערכת הגרפיקה המולקולרית PyMOL | שלוה (Schr)ödinger, LLC | גרסה 2.6.2 | ויזואליזציה של תנוחת העגן (Docking pose) |
| תוכנת R | R Foundation for Statistical Computing | גרסה 4.3.2 | ניתוח חפיפת מטרות והעשרה |
| קו תאי מזנגיום גלומרולריים של חולדה (HBZY-1) | Procell Life Science & חברה בע"מ לטכנולוגיה | CL-0117 | מודל תיקוף של תאי מזנגיום in vitro |
| בנק נתוני החלבונים RCSB | מעבדה שיתופית למחקר בביואינפורמטיקה מבנית | מזהה PDB: 3LN1 | שליפת מבנה הגביש של PTGS2/COX2 |
| TGF- אנושי רקומביננטיβחלבון 1 | PeproTech, מותג של Thermo Fisher Scientific | 100-21-10UG | TGF- אנושי רקומביננטי המופק מתאי HEK293β1; גרייה פרופיברוטית בריכוז של 10 ng/mL. |
| מערכת אלקטרופורזה מסוג SDS-PAGE | Bio-Rad Laboratories | Mini-PROTEAN Tetra | הפרדת חלבונים באמצעות SDS-PAGE |
| מאגר המידע STRING | קונסורציום ELIXIR/STRING | גרסה 12.0 | בניית רשת אינטראקציות בין חלבונים |
| מאגר המידע TCMSP | מאגר נתונים של פרמקולוגיית מערכות ברפואה סינית מסורתית | לא זמין | סריקת תרכובות מועמדות מ-*Cordyceps sinensis* |
| מאגר מטרות טיפוליות | קבוצת מחקר תרופות חדשניות וביואינפורמטיקה | לא רלוונטי | שליפת מטרות טיפוליות |
| α-נוגדן ראשוני ל-SMA | Proteintech Group | 14395-1-AP | זיהוי של α-ביטוי חלבון SMA |
| β-סיטוסטרוול (דרגת טוהר >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5; תרכובת מוגדרת המשמשת לטיפול בתאים; תמיסת מלאי 10 mM באתנול מוחלט. |
מקורות
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).