במאמר זה, אנו מציגים פרוטוקול להעשרה של DNA מיטוכונדריאלי מביצי אדם בודדות באמצעות Exonuclease V, ולהכנת ספריות duplex sequencing לזיהוי מדויק ביותר של וריאנטים ב-DNA מיטוכונדריאלי באמצעות פלטפורמות ריצוף התואמות ל-Illumina.
מאמר שיטה
פרוטוקול לריצוף דופלקס (Duplex Sequencing) של DNA מיטוכונדריאלי באוציטים אנושיים בודדים
במאמר זה
סיכום
תקציר
אוקיציטים עמוסים בצפיפות במיטוכונדריה, האורגנלות המייצרות אנרגיה המכילות גנום משלהן, ה-DNA המיטוכונדריאלי (mtDNA). כל תא מכיל עותקים מרובים של mtDNA, כאשר מספר העותקים משתנה בין סוגי רקמות שונים. באוקיציטים נמצא מספר העותקים הגבוה ביותר של mtDNA, עם מאות אלפי מולקולות mtDNA לכל תא. מכיוון שמיטוכונדריה עוברות בירושה באופן בלעדי דרך השושלת האימהית, זיהוי מדויק של וריאנטים ב-mtDNA חיוני למחקרים על תורשה, הזדקנות ומחלות. נוכחותם של עותקי mtDNA מרובים מאפשרת למולקולות מסוג בר (wild-type) ומולקולות מוטנטיות להתקיים יחד באותו תא, מצב המכונה הטרופלזמיה (heteroplasmy), שבו וריאנטים בתדירות נמוכה או וריאנטים de novo עשויים להופיע בתדירויות הנמוכות מ-1%. לרצף דור הבא (NGS) קונבנציונלי חסר דיוק מספיק כדי להבדיל באופן מהימן בין וריאנטים נדירים אלה לבין שגיאות שנוספו במהלך הכנת הספרייה והרצף. כאן, אנו מציגים פרוטוקול להעשרה של mtDNA מאוקיציטים אנושיים בודדים באמצעות Exonuclease V להסרת DNA ליניארי, ולאחריו הכנת ספריית duplex sequencing לצורך ניתוח מדויק מאוד של mtDNA. זרימת עבודה זו מאפשרת רצף מתוקן-שגיאות של אוקיציטים בודדים, ומסייעת בזיהוי מהימן של וריאנטים ב-mtDNA בתדירות נמוכה ובניתוח של הטרופלזמיה ומוטגנזה de novo. הפרוטוקול מספק גישה הניתנת לשחזור לחקר וריאציות בגנום המיטוכונדריאלי באוקיציטים בודדים באמצעות פלטפורמות רצף תואמות Illumina.
מבוא
מיטוכונדריה ממלאות תפקידים בסיסיים בתהליכים תאיים חיוניים, הכוללים ייצור אנרגיה, אפופטוזיס, סיגנלינג והומאוסטזיס של סידן1. הן מחזיקות בגנום משלהן, ה-DNA המיטוכונדריאלי (mtDNA), מולקולה מעגלית דו-גדילית שאורכה ביונקים הוא כ-16.6 kb. למרות שרוב הגנים המיטוכונדריאליים הקדמונים הועברו לגנום הגרעיני במהלך האנדוסימביוזה, ה-mtDNA שומר על 37 גנים המקודדים ל-13 פוליפפטידים של פוספורילציה חמצונית (OXPHOS), 22 RNA מעבירים (tRNAs), ושני RNA ריבוזומליים (rRNAs)2. מוטציות ב-mtDNA עלולות לפגוע בביטוי ובבתפקוד של הגנים המיטוכונדריאליים ועשויות להוביל להפרעות חמורות3. מכיוון שמיטוכונדריה עוברות בירושה אך ורק דרך השושלת האימהית, ל-mtDNA של התא ביצית תפקיד קריטי בהפריה, בהתפתחות העוברית ובבריאות הצאצאים4. כתוצאה מכך, גילוי ואפיון של מוטציות ב-mtDNA ותדירותן הם בעלי עניין ניכר. לדוגמה, הבנת מוטגנזה של תאי הנבט הקשורה להזדקנות ולמחלות היא תנאי מוקדם חשוב לפיתוח אסטרטגיות טיפוליות לאי-פריון נשי.
בניגוד ל-DNA גרעיני, mtDNA קיים במספר עותקים רב בתא, החל ממאות עד אלפי עותקים בתאים סומטיים, תלוי בסוג הרקמה, ומעל 100,000 עותקים בביציות בוגרות4. מספר עותקים גבוה זה של mtDNA הופך את הביציות למתאימות מאוד לחקירת מוטגנזה מיטוכונדריאלית ברמת התא הבודד. עם זאת, זיהוי מוטציות mtDNA מסוג de novo, ובמיוחד אלו המופיעות בתדירות נמוכה מאוד, נותר מאתגר מכיוון ששיעורי השגיאות של רצף דור הבא (NGS) קונבנציונלי עולים על התדירויות של וריאנטים אמיתיים רבים5. לכן, נדרשות שיטות ריצוף מתוקנות-שגיאות כדי להבדיל בין מוטציות אמיתיות לבין ארטיפקטים שנוצרו במהלך הכנת הספריה, ההגברה והריצוף. גישה אחת כזו היא ריצוף דופלקס (DS - duplex sequencing)6,7. ב-DS, מקטעי DNA מקושרים לאדפטורים המכילים תגים מולקולריים אקראיים של 12 נוקלאוטידים דו-גדיליים לפני ההגברה. מזהים מולקולריים ייחודיים אלה מסמנים כל מולקולת DNA מקורית בשני קצותיה, מה שמאפשר לקבץ קריאות ריצוף שמקורן באותו גדיל תבנית למשפחות על בסיס רצף התג המשותף שלהן. רצף קונסנזוס של גדיל בודד (SSCS) נוצר מכל משפחת קריאות, ולאחר מכן SSCS מקבליים שנגזרים מדופלקס ה-DNA המקורי משולבים כדי להפיק רצף קונסנזוס דופלקס (DCS). רק וריאנטים שזוהו ברוב הקריאות בשני ה-SSCS המקבילים ואושרו ב-DCS שהתקבל נחשבים למוטציות אמיתיות, מה שמאפשר שיעורי שגיאה הנמוכים בכמה סדרי גודל מאלו של גישות NGS קונבנציונליות8. אסטרטגיה זו יתרונית במיוחד לזיהוי וריאנטים של mtDNA בתדירות נמוכה והטרופלסמיה בתאים בודדים.
מגבלה מרכזית של רוב פרוטוקולי ה-duplex sequencing שפורסמו היא הדרישה לכמויות גדולות יחסית של DNA כקלט במהלך הכנת הספריה, מה שהופך שיטות אלו לבלתי מתאימות ליישומים של תא בודד6,7,9. המטרה הכוללת של פרוטוקול זה היא לאפשר duplex sequencing מדויק מאוד של mtDNA מביציות אנושיות בודדות באמצעות זרימת עבודה (workflow) מותאמת להעשרה של mtDNA, הכנת ספריה וריצוף. כדי למזער את הריצוף של מקטעי DNA מיטוכונדריאלי גרעיני (NUMTs) ולשפר את יעילות הריצוף, פרוטוקול זה כולל שלב העשרה מבוסס Exonuclease V המעכל באופן סלקטיבי DNA ליניארי תוך שימור mtDNA מעגלי. זרימת העבודה הנובעת מכך מספקת גישה מעשית לזיהוי מדויק של וריאנטים ב-mtDNA בביציות בודדות, והיא מתאימה למחקרים הבוחנים הטרופלזמיה, מוטגנזה de novo, הזדקנות ומחלות מיטוכונדריאליות.
פרוטוקול
איסוף ועיבוד של ביציות אנושיות אושרו על ידי ועדת האתיקה של אוניברסיטת יוהנס קפלר בלינץ (מספר אישור 1293/2020). בצע את כל ההליכים בהתאם להנחיות המוסדיות, כולל הסכמה מושכלת, אנונימיזציה של דגימות וכל התקנות הרלוונטיות המסדירות את השימוש ברקמות אנושיות.
הערה: למרות שפרוטוקול זה מתואר עבור אווציטים אנושיים, התאימו את הפריימרים הספציפיים למין כדי להחיל את סבב העבודה על מינים אחרים. השתמשו במתכלים עם קישוריות נמוכה ל-DNA (למשל, מבחנות וטיפים של פיפטות) לאורך כל הפרוטוקול כדי למזער את אובדן הדגימות. בצעו את כל השלבים עד לטיהור הראשון במבחנת איסוף האווציטים המקורית בעלת הקישוריות הנמוכה. אין להשתמש בוורטקס לדגימות, שכן וורטקס עלול לפגוע בשרשראות ה-DNA. במקום זאת, ערבבו את מרכיבי התגובה באמצעות פיפטור עדין או נקישה עדינה של המבחנה, ולאחר מכן סבב קצר בצנטריפוגה. במידת האפשר, בצעו את בידוד ה-DNA, הכנת התערובת הראשית (master mix) והקמת התגובה בתחנות עבודה ייעודיות לריאקציית שרשרת פולימראז (PCR) או באזורים נפרדים פיזית במעבדה כדי למזער זיהומים.
1. הכנת בופרים וריאגנטים
- הכן את באפר ליזיס של אואוציטים (OLB), Tris-HCl בריכוז 10 mM, באפר TE, TEנמוך בופר, ו-10 mM Tris-NaCl בהתאם ל- טבלה 1 על ידי שילוב הנפחים המצוינים של תמיסות המלאי והבאת כל תמיסה לנפח הסופי שנקבע באמצעות מים בדרגת ביולוגיה מולקולרית. חלק את הבאפרים שהוכנו לאליקוטים של 1 מ"ל, ואחסן את האליקוטים ב- 4°C, ולהשתמש בהם תוך שנה אחת.
טבלה 1: הרכב הבאפרים שבהם נעשה שימוש במהלך הפרוטוקול. הרכבי באפרים וריכוזים סופיים להכנת 10 mM Tris-HCl, באפר TE, באפר TElow, 10 mM Tris-NaCl, ובאפר לליזיס של אואוציטים (OLB). יש להכין את כל הבאפרים באמצעות מים בדרגת ביולוגיה מולקולרית. במידת הצורך, יש לכוונן את ה-pH של תמיסות המלאי של Tris-HCl ו-EDTA לפני הכנת הבאפר, בהתאם להמלצות היצרן. OLB מועשר ב-proteinase K תרמו-לבילי מיד לפני ליזיס הדגימות, כפי שמתואר בפרוטוקול. אנא לחצו כאן להורדת קובץ זה.
2. איסוף של ביצית בודדת
הערה: ביציות אנושיות ששימשו בפרוטוקול זה נאספו מטובים שתוכננה להם הזרקה תוך-ציטופלזמית של זרע (ICSI) במרכז הפוריות (Kinderwunsch Zentrum) של בית החולים האוניברסיטאי קפלר, לינץ, אוסטריה. פרוטוקולי הגירוי השחלאי התבססו על התגובה השחלאית החזויה של המטופלת, והמינונים הותאמו למאפיינים אינדיבידואליים, כולל גיל, רמות הורמון אנטי-מילריאן (AMH) ומשקל גוף, בהתאם להמלצות של האיגוד האירופי לרבייה ואמבריולוגיה אנושית (ESHRE)10. דיכוי של בלוטת ההיפופיזה הושג באמצעות פרוטוקולים של אגוניסט להורמון משחרר גונדוטרופין (GnRH) או אנטגוניסט ל-GnRH, בשילוב עם גירוי בגונדוטרופינים לקידום הבשלת הזקיקים. צמיחת הזקיקים נוטרה באופן קבוע באמצעות אולטרסאונד טרנס-וגינלי לפני השראת הביוץ. לאחר מכן, הביציות נשאבו באמצעות שאיבה זקיקית טרנס-וגינלית, ונוזל הזקיקים המכיל את קומפלקסי ה-cumulus–oocyte (COCs) נאסף11. רק ביציות לא בשלות או לא הופריות שלא ניתן היה להשתמש בהן לטיפול ה-ICSI של המטופלת והיו נזרקות ממילא, היו זמינות למחקר לאחר קבלת הסכמה מדעת. מטופלות עם ספירת זקיקים אנטרליים (AFCs) גבוהה יותר הועדפו לפנייה לתרומת ביציות, מכיוון שהסבירות שלהן להפיק ביציות לא בשלות או לא הופריות המתאימות למחקר הייתה גבוהה יותר. כל ההליכים שבוצעו לפני בחירת הביציות למחקר חייבים לעמוד בתקנות הלאומיות המסדירות הפרייה חוץ-גופית ושימוש ברקמות אנושיות. יש לטפל בכל החומרים בתנאים סטריליים בתוך מנדף זרימה למינרית. יש לוודא שכל החומרים בעלי הסמכת CE ומצעי התרבית הבאים במגע ישיר עם הביציות הם סטריליים, חוממו מראש ל-37°C ונשמרים ב-pH של 7.20–7.40.
- אסוף COC-ים מנוזל הזקיק והעבר אותם ל-750 µL של מצע גידול GM501 תחת שמן מינרלי סטרילי, לאחר גירוי שחלאי מבוקר ושאיבת ביציות טרנס-וגינלית.
- הסר את תאי הקומולוס המקיפים את ה-zona pellucida (ZP) באמצעות עיכול אנזימטי עם היאלורונידאז. דגור את הביציות ב-500 µL של GM501 Hyaluronidase (80 U/mL) למשך 30–60 s ב-37°C, ולאחר מכן בצע שלושה שטיפות ב-750 µL של מצע גידול GM501. הסר בזהירות את שארית תאי הקומולוס באופן מכני באמצעות פיפטות להסרת תאי קומולוס (denudation pipettes).
- עבור ביציות בשלב telophase I (TI) או metaphase II (MII), פתח את ה-ZP באמצעות סדרת פולסי לייזר סמוך לגוף הקוטבי והסר את הגוף הקוטבי הראשון באמצעות מיקרו-מניפולטורים. התאם את הגדרות הלייזר בהתאם לעובי ה-ZP (1–3 פולסים; משך פולס, 1.5–2.6 ms; קוטר נקודה, 16–20 µm). השתמש בלייזר להסרת כל שארית של תאי קומולוס, ובכך צמצם למינימום את זיהום הביצית ב-DNA של תאים סומטיים.
- העבר כל ביצית בנפרד ל-2–3 µL של 1× phosphate-buffered saline (PBS) בתוך מבחנה בנפח 200 µL בעלת קישור נמוך (low-binding tube). הקפא מיד את המבחנה ב-−20°C. לאחסון לטווח ארוך, העבר את הביציות הקפואות ל-−80°C.
הערה: לאחר ההפשרה, בצע את המשך הפרוטוקול ברצף ללא הפסקה עד לסיום שלב ההגברה הראשון. - כדי לנטר זיהום פוטנציאלי של DNA סביבתי לאורך הפרוטוקול, כלול ביקורת שלילית העומדת על 2 µL של 1× PBS ללא ביצית במהלך הכנת הספריה (משלב 4 ואילך). טפל בביקורת השלילית באופן זהה לכל דגימות הביציות. לא אמור להופיע DNA שניתן לזיהוי בביקורת השלילית בשום שלב של הפרוטוקול.
3. סינתזת מתאם
הערה: הכינו את המתאמים לפני תחילת הכנת הספריה. אחסנו מתאמים מסנתזים ב-−80°C למשך עד 3 חודשים. הכינו אליקוטים כדי למנוע מחזורי הקפאה-הפשרה חוזרים, ואל תקפיאו מחדש מתאמים לאחר הפשרתם. כל רצפי האוליגונוקלאוטידים המשמשים בפרוטוקול זה מפורטים ב- טבלה 2.
טבלה 2: אוליגונוקלאוטידים ופריימרים ששימשו במהלך הפרוטוקול. הטבלה מפרטת את כל האוליגונוקלאוטידים ששימשו עבור סינתזת מתאם (adapter), הגברת ספרייה, תגובת שרשרת פולימראז כמותית (qPCR), כימות ספרייה והערכת העשרה של DNA מיטוכונדריאלי (mtDNA), יחד עם הרצפים שלהם, שיטות הטיהור, הכמויות שסופקו או ריכוזי המלאי המומלצים, והיצרן. רצף האוליגונוקלאוטיד הנושאי המוצג הוא רצף לדוגמה ששימש בפרוטוקול זה. הכוכבית (*) בתוך רצפי הפריימרים מסמנת קשר פוספורותיואט. הנוקלאוטידים הרנדומליים (N) במתאם mws55 מייצגים את המזהה המולקולרי הייחודי (UMI), בעוד ש-Y מסמנת בסיס פירימידין דגנרטיבי (C או T). אלא אם צוין אחרת, האוליגונוקלאוטידים סונתזו באמצעות טיהור סטנדרטי בשיטת הסמכה (desalting). אנא לחצו כאן להורדת קובץ זה.
- הכינו אליקוט של 96% ethanol (EtOH) ואחסנו אותו ב-−20°C עבור שלבי הטיהור הבאים. הכינו 80% EtOH טרי רגע לפני השימוש.
- ערבבו 20.5 µL של כל אחד מהאוליגו-נוקלאוטידים mws51_short בריכוז 100 µM ו-mws55 בריכוז 100 µM במבחנה בעלת קישור נמוך (low-binding) של 200 µL כדי לקבל נפח כולל של 41 µL (2,000 pmol מכל אוליגו-נוקלאוטיד).
- דגרו את האוליגו-נוקלאוטידים המשולבים ב-95°C למשך 5 דקות בתרמוסייקלר כאשר טמפרטורת המכסה מוגדרת ל-110°C. הפעילו את הטיימר לאחר שהדגימה תגיע ל-95°C, כבו את התרמוסייקלר לאחר 5 דקות, והשאירו את המבחנות בתוך התרמוסייקלר למשך שעה אחת כדי לאפשר קירור איטי לטמפרטורת החדר (RT) ואנילינג ("annealed adapter").
- הכינו תערובת מאסטר להארכה (Extension Master Mix) על ידי שילוב של 1× NEB Buffer 2 (5.6 µL מהמלאי בריכוז 10×), 3.5 mM deoxynucleotide triphosphates (dNTPs; 5.6 µL מהמלאי בריכוז 10 mM), 11.5 U של Klenow fragment (2.3 µL מהמלאי בריכוז 5 U/µL), ו-2.5 µL של מים בדרגת ביולוגיה מולקולרית לנפח סופי של 16 µL.
- הוציאו 1 µL מהאדפטר שעבר אנילינג שהוכן בשלב 3.3, דללו אותו ביחס של 1:20 בבופר TElow, סמנו את האליקוט כ-"annealed" ואחסנו אותו ב-4°C עבור אלקטרופורזה של ג'ל אגרוז.
- הוסיפו 16 µL של תערובת המאסטר להארכה ל-40 µL שנותרו מהאוליגו-נוקלאוטידים שעברו אנילינג וערבבו היטב.
- דגרו את התגובה ב-37°C למשך שעה אחת כאשר מכסה התרמוסייקלר מוגדר ל-47°C.
- טהרו את האוליגו-נוקלאוטידים המוארכים על ידי שקיעה ב-EtOH. הוסיפו 28 µL של ammonium acetate (NH4OAc) ל-56 µL של תערובת התגובה וערבבו היטב.
- העבירו את כל התגובה למבחנה בעלת קישור נמוך של 1.5 mL והוסיפו 168 µL של 96% EtOH קר מהקרח.
- הפכו את המבחנה מספר פעמים ודגרו ב-−20°C למשך 30 דקות כדי להשקיע את ה-DNA.
- הכינו 1 mL של 80% EtOH טרי קררו אותו ל-−20°C. קררו מראש את הצנטריפוגה ל-4°C.
- סובבו בצנטריפוגה ב-14,000 × g למשך 30 דקות.
- הסירו בזהירות את הנוזל העליון (supernatant) מבלי להפריע למשקע (pellet). הוסיפו 1 mL של 80% EtOH קר מהקרח מבלי לערבב או להפוך את המבחנה.
- סובבו בצנטריפוגה ב-14,000 × g למשך 5 דקות.
- הסירו את כל שאריות ה-EtOH וייבשו את משקע ה-DNA באוויר למשך 10–15 דקות, עד שלא יישאר נוזל נראה והמשקע ייראה שקוף. אין לייבש את האוליגו-נוקלאוטידים יותר מדי.
- המסו מחדש את המשקע ב-41 µL של מים בדרגת ביולוגיה מולקולרית.
- הוציאו 1 µL, דללו אותו ביחס של 1:20 בבופר TElow, סמנו את האליקוט כ-"extended" ואחסנו אותו ב-4°C.
- הכינו תערובת מאסטר להגבלה (Restriction Master Mix) על ידי שילוב של 47 µL של מים בדרגת ביולוגיה מולקולרית, 1× CutSmart Buffer (10 µL מהמלאי בריכוז 10×), ו-15 U של HpyCH4III (3 µL מהמלאי בריכוז 5 U/µL) לנפח סופי של 60 µL.
- הוסיפו 60 µL של תערובת המאסטר להגבלה ל-40 µL של אוליגו-נוקלאוטידים מטוהרים וערבבו היטב.
- דגרו את התגובה ב-37°C למשך 16 שעות כאשר מכסה התרמוסייקלר מוגדר ל-47°C.
- הכינו 6.5 mL של 80% EtOH טרי וקררו אותו ל-−20°C. קררו מראש את הצנטריפוגה ל-4°C.
- העבירו את האדפטרים שעברו עיכול למבחנה בעלת קישור נמוך של 1.5 mL והוסיפו 900 µL של מים בדרגת ביולוגיה מולקולרית.
- הוסיפו 500 µL של NH4OAc וערבבו היטב.
- חלקו את התמיסה לשישה אליקוטיים של 250 µL במבחנות בעלות קישור נמוך של 1.5 mL. הוסיפו 500 µL של 96% EtOH קר מהקרח לכל מבחנה.
- הפכו את המבחנות מספר פעמים ודגרו ב-−20°C למשך 30 דקות כדי להשקיע את ה-DNA.
- סובבו בצנטריפוגה ב-14,000 × g למשך 30 דקות. הסירו בזהירות את הנוזל העליון מבלי להפריע למשקע. הוסיפו 1 mL של 80% EtOH קר מהקרח לכל מבחנה מבלי לערבב או להפוך. סובבו בצנטריפוגה ב-14,000 × g למשך 5 דקות.
- הסירו את כל שאריות ה-EtOH וייבשו את משקעי האדפטרים באוויר.
- המסו מחדש כל משקע ב-6.7 µL של בופר Tris-NaCl ואחדו את כל שש התמיסות כדי לקבל נפח סופי של 41 µL. הוציאו 1 µL, דללו אותו ביחס של 1:10 בבופר TElow, סמנו את האליקוט כ-"cut" ואחסנו אותו ב-4°C.
- הכינו אליקוטיים של מלאי האדפטרים ואחסנו אותם ב-−80°C. מדדו את ריכוז האדפטר וקבעו את יחסי הבליעה A260/280 ו-A260/230 של אליקוט ה-"cut" באמצעות ספקטרופוטומטר. ריכוז האדפטר הצפוי הוא 30–50 µM, עם יחס A260/280 של >1.7 ויחס A260/230 של >1.9.
- הריצו את אליקוטי ה-"annealed", "extended" ו-"cut" על ג'ל אגרוז של 2% במתח של 125 V למשך 45 דקות כדי לאמת את היווצרות האדפטר ואת השלמת העיכול ההגבלי (איור 1).
הערה: אליקוט ה-"annealed" אמור להכיל שני פסים המייצגים את הפракציות שעברו אנילינג ואלו שלא. האדפטר שעבר אנילינג צפוי לנדוד לערך של כ-90 bp ומורכב מאזור של 13-bp רב-גדילי עם בליטה (overhang) חד-גדילית של 68-nt, בעוד שהאוליגו-נוקלאוטידים שלא עברו אנילינג נדודים לערך של כ-60 bp. לאחר ההארכה, האדפטר מורכב מאזור של 37-bp רב-גדילי עם בליטה בצורת Y של 44-nt וצפוי לנדוד לערך של כ-110 bp. לאחר העיכול ההגבלי, מקטע של 8-bp מוסר מהאדפטר. שלושה פסים אמורים להיות נראים: פס דומיננטי בערך של כ-100 bp (האדפטר הסופי) ושני פסים חלשים בערך של כ-60 bp (אוליגו-נוקלאוטידים שנותרו ללא אנילינג) ו-8 bp (מקטע הגבלה).
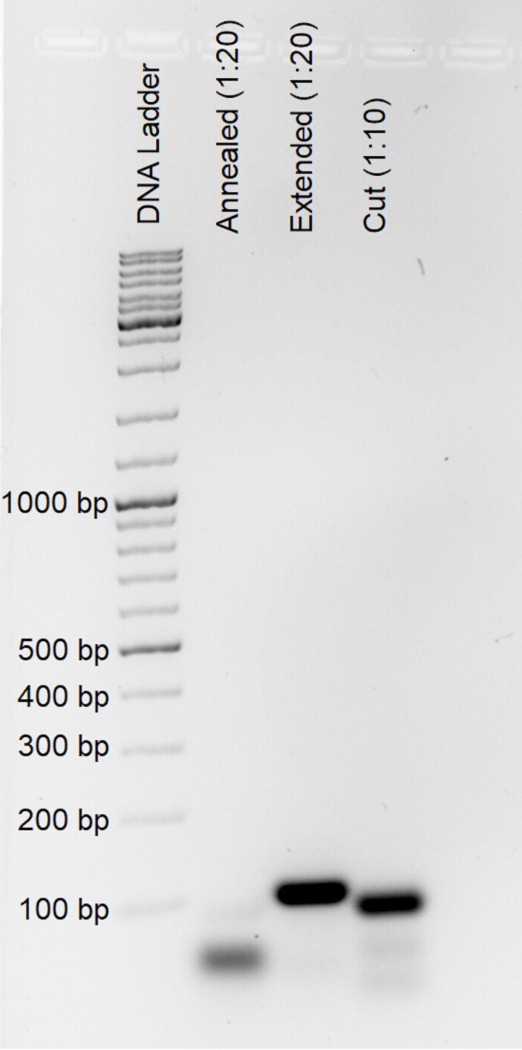
איור 1. ניתוח מייצג של גודל הפרגמנטים עבור תוצרי ביניים ואדפטורי duplex sequencing סופיים. נדגמים שנאספו במהלך סינתזת האדפטורים לאחר ביצוע אינוסינג של אוליגוניוקלאוטידים (“annealed”, מהול 1:20), הרחבת מילוי (“extended”, מהול 1:20), ועיכול עם אנזים ההגבלה HpyCH4III (“cut”, מהול 1:10) נותחו באמצעות אלקטרופורזה של ג'ל אגרוז 2% כדי לאמת את היווצרותם הנכונה של אדפטורי ה-duplex sequencing. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
4. ליזיס של ביצית בודדת
- הכינו OLB מועשר ב-proteinase K תרמו-לבילי (OLB+) על ידי הוספת 1 µL של proteinase K תרמו-לבילי (0.120 U/µL) ל-99 µL של OLB כדי להגיע לריכוז סופי של 0.0012 U/µL של proteinase K.
- הפשיר את הביציות (oocytes) ב-RT. הוסף מיד 4 µL של OLB+ לכל ביצית. שטוף את דפנות המבחנה מספר פעמים בעזרת תמיסת הליזה כדי להבטיח מעבר מלא של הביצית לתמיסה ולמנוע מהדגימה להידבק לדופן המבחנה.
- ערבב את הדגימה ביסודיות, בצע ספינטריגציה קצרה כדי לרכז את התוכן בתחתית המבחנה, והדגר ב-37°C למשך 16 h בטרמוסייקלר כאשר טמפרטורת המכסה מכוונת ל-47°C.
הערה: לא מבוצעת הערכה עצמאית של ליזת הביציות לפני הפרגמנטציה. דגירה של 16 h תחת תנאי הליזה המפורטים מספיקה בדרך כלל לליזה מלאה של ביצית בודדת. עם זאת, כמות ה-DNA המופקת עשויה להשתנות עקב אובדן דגימות במהלך הטיפול והבדלים במספר עותקי ה-mtDNA בין ביציות. - בטל את פעילות ה-proteinase K התרמו-לבילי על ידי הדגרת הדגימות ב-55°C למשך 15 min בטרמוסייקלר כאשר טמפרטורת המכסה מכוונת ל-75°C.
הערה: השלם את המשך תהליך העבודה ללא הפסקה לאחר הליזה וביטול פעילות ה-proteinase K, אלא אם שלב מאוחר יותר בפרוטוקול מגדיר במפורש נקודת עצירה.
5. עיכול באמצעות Exonuclease V
- יש להמתין עד שהדגימות יגיעו לטמפרטורת החדר (RT) לפני ההמשך.
- הכינו תערובת מאסטר של Exonuclease V על ידי שילוב של 4 µL של מגנזיום כלוריד (MgCl₂) בריכוז 25 mM, 1 µL של Tris-HCl בריכוז 10 mM, 1 µL של אדנוזין טריפוספט (ATP) בריכוז 10 mM, ו-1 µL של Exonuclease V (מלאי של 10 U/µL) כדי להגיע לנפח סופי של 7 µL.
- הכינו תמיסת עבודה של ribonuclease A (RNase A) בריכוז 1 mg/mL על ידי דילול של 1 µL של מלאי RNase A בריכוז 10 mg/mL ב-99 µL של מים בדרגת ביולוגיה מולקולרית. הוסיפו כ-0.1 µL מתמיסת ה-RNase A המדוללת לכל דגימה של אווציט שעבר ליזה.
הערה: השתמשו בפיפט מתאים לשלב זה. בעת עיבוד מספר דגימות בו-זמנית, ניתן להשתמש בפיפט רב-ערוצי מתאים, בתנאי שננקטו אמצעי זהירות למניעת זיהום צולב בין הדגימות. מכיוון שדיוק הפיפטינג עלול לרדת בעת חלוקת נפחים קטנים כל כך עם פיפט רב-ערוצי, יש לבדוק את כל הערוצים בקפידה. לחלופין, טבילה קצרה של קצה הפיפט בתמיסת ה-RNase A המדוללת מספיקה להעברה של כ-0.1 µL. סטיות קלות מנפח זה אינן משפיעות על ביצועי הפרוטוקול. יש לוודא את הנפח המועבר המשוער מראש באמצעות פיפט חד-ערוצי. - הוסיפו 7 µL מתערובת המאסטר של Exonuclease V לכל דגימה של אווציט שעבר ליזה וערבבו היטב. דגרו את הדגימות ב-37°C למשך שעה אחת בטרמוסייקלר, כאשר טמפרטורת המכסה מוגדרת ל-47°C.
- הוסיפו 38 µL של באפר TE לכל דגימה כדי להגיע לנפח תגובה סופי של כ-51 µL. בצעו אינאקטיבציה תרמית של האנזימים על ידי דגירה של הדגימות ב-70°C למשך 30 דקות בטרמוסייקלר, כאשר טמפרטורת המכסה מוגדרת ל-75°C.
- עברו מיד להכנת הספרייה.
6. פרגמנטציה
- בצעו שבירה של ה-DNA לגודל מקטע ממוצע של כ-550 זוגות בסיסים (bp) באמצעות סוניקציה.
הערה: פרוטוקול זה מתאר פרגמנטציה של DNA באמצעות מכשיר סוניקציה ממוקדת Covaris M220, אשר יכונה להלן הסוניקטור; עם זאת, ניתן להשתמש גם במערכות שוות ערך. מכיוון שהדגימות מכילות שיירי תאים בנוסף ל-DNA לאחר הליזיס, יש לאפטם את תנאי הפרגמנטציה עבור המכשיר וסוג הדגימה הספציפיים כדי להשיג התפלגות גודל מקטעים צרה יחסית המרוכזת סביב גודל המקטע המתוכנן. - העבירו את כל נפח הדגימה (כ-51 µL) לשפופרת סוניקציה ממוקדת של 50 µL.
- בצעו שבירה של ה-DNA למשך 70 s תוך שימוש ב-Duty Factor של 10%, Peak Incident Power של 75 W, ו-200 Cycles per Burst בטמפרטורה של 20°C.
- העבירו מיד כל דגימה שבורה (כ-50 µL) משפופרת השבירה לשפופרת low-binding של 200 µL, מכיוון ששפופרות השבירה אינן low-binding. ניתן להשתמש שוב בשפופרת איסוף הביציות המקורית למטרה זו. בדקו את מכסה שפופרת השבירה לנוכחות נוזל שאריתי והחזירו כל דגימה שנותרה כדי למקסם את השחזור של הדגימה.
- המשיכו מיד לשלבי ה-end repair וה-A-tailing.
7. תיקון קצוות/הוספת זנב A (A-Tailing)
- הכינו תערובת מאסטר לתיקון קצוות/הוספת זנב A (End Repair/A-Tailing Master Mix) המכילה 7 µL של End Prep Reaction Buffer ו-3 µL של End Prep Enzyme Mix.
- הוסיפו 10 µL מתערובת המאסטר לתיקון קצוות/הוספת זנב A לכל דגימה כדי להגיע לנפח תגובה סופי של 60 µL. ערבבו היטב על ידי שאיבה ופליטה (pipetting) עם הפפיטה 10 פעמים.
- דגרו את הדגימות בטמפרטורה של 20°C למשך 30 min כאשר מכסה התרמוסייקלר כבוי, ולאחר מכן דגרו ב-65°C למשך 30 min כאשר טמפרטורת המכסה מוגדרת ל-75°C.
- עברו מיד לשלב הליגציה של האדפטורים.
8. ליגציה של מתאמים
- הכינו תערובת מאסטר לליגציה (Ligation Master Mix) המכילה 30 µL של Ligation Mix ו-1 µL של Ligation Enhancer.
- המיסו מנת עבודה (aliquot) אחת של האדפטור המסונתז ודללו אותה ביחס של 1:4000 בבופר Tris-NaCl.
- הוסיפו 1.5 µL מהאדפטור המדולל לכל דגימת DNA שעברה תיקון קצוות (end-repair) והוספת זנב A (A-tailing). הוסיפו 31 µL מתערובת המאסטר לליגציה וערבבו היטב.
- דגרו את הדגימות בטמפרטורה של 20°C למשך 15 דקות. הוסיפו 1 µL מהאדפטור המדולל לכל דגימה כדי להגיע לנפח תגובה סופי של 93.5 µL. ערבבו היטב ודגרו ב-4°C למשך 16 שעות.
- עברו מיד לשלב הטיהור.
9. טיהור של DNA עם מתאמים מקושרים
- יש להמתין עד שהחרוזיים המגנטיים ובאפר TElow יגיעו לטמפרטורת החדר (RT) למשך 30 דקות לפחות. במהלך זמן זה, הכין EtOH 80% טרי. הכן תמיסת אוליגונוקלאיד נשא (carrier oligonucleotide) על ידי הוספת 1 µL של אוליגונוקלאיד נשא (רצף שאינו מיוצג בגנום האנושי; רעה טבלה 2) ל-99 µL של באפר TElow כדי להגיע לריכוז סופי של 1 nM.
- העבר 74.8 µL של חרוזיים מגנטיים, התואמים ליחס חרוזים-לדגימה של 0.8×, למבחנה עם קישור נמוך (low-binding) בנפח 1.5 mL. הוסף את מלוא הנפח של 93.5 µL של DNA עם מתאם (adapter-ligated DNA) וערבב היטב.
- דגור את תערובת החרוזים-דגימה ב-RT למשך 15 דקות. לאחר 7.5 דקות, ערבב בעדינות את התסמין וסבב את המבחנה בצנטריפוגה לזמן קצר.
- סבב את המבחנה בצנטריפוגה לזמן קצר, הנח אותה על מעמד מגנטי ודגור למשך 5 דקות כדי לאפשר הפרדה מלאה של החרוזים. הסר בזהירות והשלך את העלייה (supernatant) הצלולה, ולאחר מכן סגור את המבחנה מיד.
- הוסף 400 µL של EtOH 80%, דגור למשך 30 שניות והסר את ה-EtOH. הוסף 200 µL של EtOH 80%, דגור למשך 30 שניות והסר את ה-EtOH.
- הסר את המבחנה מהמעמד המגנטי וסבב אותה בצנטריפוגה לזמן קצר. החזר את המבחנה למעמד המגנטי, הסר כל שארית של EtOH ויבש את החרוזים באוויר למשך פחות מ-5 דקות.
- הוסף 50 µL של באפר TElow מועשר באוליגונוקלאידים נשאים. הסר את המבחנה מהמעמד המגנטי וחזר את החרוזים לתמיס (resuspend) ביסודיות באמצעות פיפוט.
- דגור את התסמין ב-RT למשך 5 דקות, תוך ערבוב מדי פעם. סבב את המבחנה בצנטריפוגה לזמן קצר, החזר אותה למעמד המגנטי ודגור למשך 5 דקות נוספות.
- במהלך 5 הדקות האחרונות של ההפרדה המגנטית הראשונה, הכן מבחנה חדשה בנפח 1.5 mL עם קישור נמוך המכילה 40 µL של חרוזיים מגנטיים. העבר 50 µL מהאלואט (eluate) למבחנה שהוכנה כדי לבצע את הטיהור השני ביחס חרוזים-לדגימה של 0.8×.
- ערבב היטב ודגור ב-RT למשך 15 דקות. לאחר 7.5 דקות, ערבב בעדינות את התסמין וסבב את המבחנה בצנטריפוגה לזמן קצר.
- הנח את המבחנה על המעמד המגנטי ודגור למשך 5 דקות כדי לאפשר הפרדה מלאה של החרוזים. הסר בזהירות והשלך את העלייה הצלולה, ולאחר מכן סגור את המבחנה מיד.
- הוסף 400 µL של EtOH 80%, דגור למשך 30 שניות והסר את ה-EtOH. הוסף 200 µL של EtOH 80%, דגור למשך 30 שניות והסר את ה-EtOH.
- הסר את המבחנה מהמעמד המגנטי וסבב אותה בצנטריפוגה לזמן קצר. החזר את המבחנה למעמד המגנטי, הסר כל שארית של EtOH ויבש את החרוזים באוויר למשך פחות מ-5 דקות.
- הוסף 15.5 µL של Tris-HCl לכל דגימה. הסר את המבחנה מהמעמד המגנטי וחזר את החרוזים לתמיס ביסודיות באמצעות פיפוט.
- דגור את התסמין ב-RT למשך 5 דקות, תוך ערבוב מדי פעם. סבב את המבחנה בצנטריפוגה לזמן קצר, החזר אותה למעמד המגנטי ודגור למשך 5 דקות נוספות.
- העבר 15 µL מהאלואט למבחנה חדשה בנפח 200 µL עם קישור נמוך. הסר 1 µL מהאלואט ודלל אותו ביחס של 1:10 ב-Tris-HCl לצורך אנליזות של attomole quantitative PCR (qPCR) ו-mtDNA enrichment qPCR.
10. הערכת אטומול
הערה: קבעו את הכמות המקורבת של DNA עם מתאמים מקושרים (adapter-ligated DNA) כדי להתאים את כמות ה-DNA המוחדרת ואת מספר המחזורים המשמשים ב-PCR של ההגברה והאינדקסס (indexing PCRs) הבאים. מכיוון שכמות הדגימה מוגבלת, מדידות ריכוז ישירות עשויות שלא להיות אמינות; לכן, העריכו את כמות ה-DNA באמצעות qPCR. נתחו את תוצרי ההגברה באמצעות אלקטרופורזה בג'ל אגרוז כדי להעריך את התפלגות גודל הפרגמנטים ולזהות דימרים של מתאמים (adapter dimers) שנותרו. ערכי Cq עשויים להשתנות בהתאם לריאגנטים ולמכשיר ה-real-time PCR שבשימוש. התאמות לערכי Cq בהתבסס על זיהוי דימרים של מתאמים, כמו גם כמויות ה-DNA המוחדרות לשלבים הבאים ומספרי מחזורי ה-PCR, מבוססות בעיקר על תצפיות אמפיריות ועשויות לדרוש אופטימיזציה עבור הכנות ספריות בודדות.
- הכינו תערובת מאסטר (Master Mix) ל-qPCR של attomole המכילה 5 µL של 2× KAPA HiFi HotStart Reaction Mix (להלן תערובת ה-PCR בנאמנות גבוהה 2×), 1 µL של Dual-NEBNext Universal PCR Primer for Illumina (בריכוז 10 µM; להלן הפריימר האוניברסלי לספרייה), 1 µL של פריימר mws20 (בריכוז 10 µM), 0.5 µL של 20× EvaGreen, ו-0.5 µL של מים בדרגת ביולוגיה מולקולרית לכל תגובה.
- הוסיפו 8 µL מתערובת המאסטר לכל באער ייעודי בלוחית 96 באערים תואמת qPCR. הוסיפו 2 µL מהדגימה המדוללת ביחס של 1:10 כדי להגיע לנפח תגובה סופי של 10 µL.
- אטמו את הלוחית וסובבו אותה קצרות בצנטריפוגה לפני הכנסתה למכשיר ה-real-time PCR.
- בצעו qPCR באמצעות תנאי מחזורי תרמיים כדלקמן: 45 s ב-98°C, ולאחריהם 45 מחזורים של 15 s ב-98°C, 30 s ב-65°C, ו-45 s ב-72°C.
- קבעו את מחזור הכימות (Cq) על ידי הגדרת סף הפלואורסצנציה ל-1,000 יחידות פלואורסצנציה יחסיות (RFU).
הערה: בחרו סף פלואורסצנציה התואם למכשיר ה-real-time PCR והשתמשו באותו סף בכל הניסויים כדי לאפשר השוואה בין ערכי Cq. - הפרידו את תוצרי ההגברה של ה-qPCR על ג'ל אגרוז בריכוז 1.5% במתח של 125 V למשך 40 min.
- בדקו את הג'ל לאיתור דימרים של אדפטורים שנותרו. דימרים של אדפטורים נעים לערך של כ-130 bp (איור 2).
- אם נראים דימרים של אדפטורים, התאימו את ערך ה-Cq באמצעות מקדם תיקון Cq של attomole (ACF) המתאים המוצג ב-איור 2. בחרו את ה-ACF בהתאם לעוצמת פס הדימרים של האדפטורים שנצפה בג'ל האגרוז, תוך שימוש בדוגמאות המייצגות ב-איור 2 כייחוס. ערך Cq של attomole מתוקן ACF של 22–26 הוא אופטימלי; עם זאת, ערכים של <29 הם בדרך כלל מקובלים.
הערה: במקום לתקן את ערך ה-Cq, ניתן לבצע טיהור נוסף בעת הצורך; עם זאת, הדבר עלול להוביל לאובדן משמעותי של הספרייה. דגימות עם פסי דימרים חזקים של אדפטורים קשורות בדרך כלל לערכי Cq גבוהים ב-attomole qPCR, מה שמעיד על כמות נמוכה של DNA שהוכנסה. דגימות עם ערכי Cq של ≥29 מייצרות בדרך כלל גדלי משפחה גדולים ועומקי ריצוף נמוכים של DNA מיטוכונדריאלי (<100×) ולכן עשויות להיות מוחרגות מהריצוף. מכיוון שערכי Cq תלויים במכשיר ה-real-time PCR ובתנאי הבדיקה, קבעו ערכי סף ספציפיים למעבדה בעת יישום פרוטוקול זה.
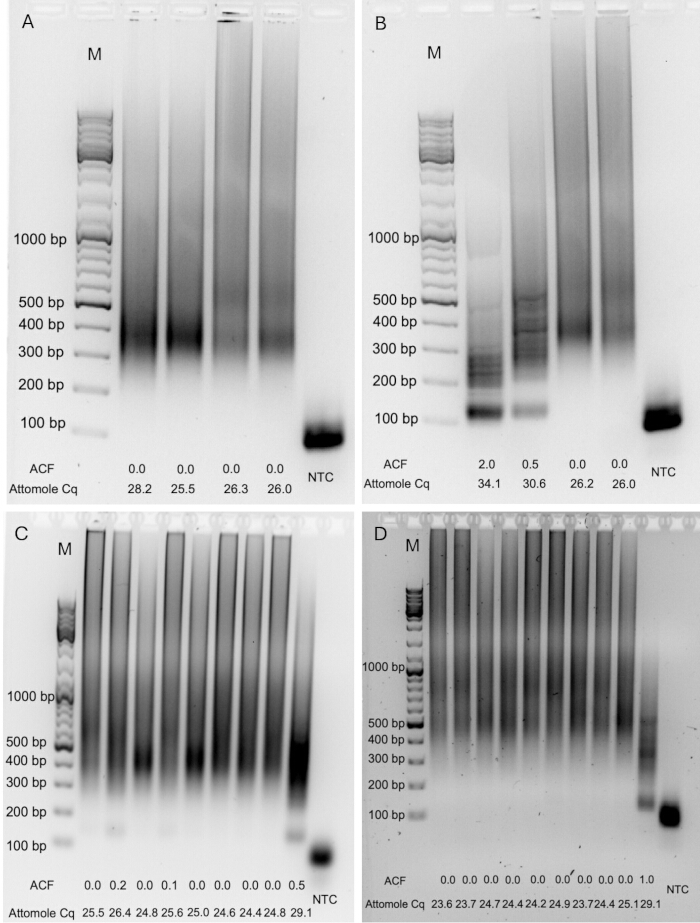
איור 2. תוצרי quantitative PCR (qPCR) כמותיים במימד של attomole המשמשים להערכת קלט הספרייה ולזיהוי דימרים של מתאמים/פריימרים. תוצרי qPCR מוגברים במימד של attomole נותחו באמצעות אלקטרופורזה של ג'ל אגרוזה 1.5% כדי להעריך את התפלגות גודל הפרגמנטים ולזהות שאריות של דימרים של מתאמים/פריימרים. (A–D) דוגמאות מייצגות המראות ספריות עם כמויות שונות של DNA עם מתאמים מקושרים ורמות משתנות של דימרים של מתאמים/פריימרים. מקדם תיקון ה-attomole Cq (ACF) ומחזור הכימות (Cq) הבלתי מתוקן התואם מוצגים עבור כל דגימה. M, סולם גודל DNA; NTC, בקרת ביקורת ללא תבנית. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
11. הערכת העשרת ה-DNA המיטוכונדריאלי (אופציונלי)
הערה: העריכו את העשירה של ה-DNA המיטוכונדריאלי (mtDNA) באמצעות qPCR תוך שימוש בפרימרים המכוונים לגן ND6 המיטוכונדריאלי ולאלמנטים גרעיניים של Alu. חשבו את ההפרש בערכי ה-Cq בין המטרות הגרעיניות למיטוכונדריאליות כדי להעריך את העשירה של ה-mtDNA. השתמשו בערך ה-Cq המוחלט של המטרה המיטוכונדריאלית כדי להעריך את כמות ה-mtDNA בדגימה. ערכי ה-Cq עשויים להשתנות בהתאם לריאגנטים, לחומרים המתכלים ולמכשיר ה-real-time PCR שבשימוש. התאימו את רצפי הפרימרים למינים אחרים. עיינו בפרסומים קודמים עבור פרימרים ספציפיים לעכברים ולקוף מקאק12,13. שלב זה הוא אופציונלי ומספק הערכה גסה של העשירה של ה-mtDNA לפני הריצוף.
- הכינו תערובות מאסטר (Master Mixes) נפרדות עבור המטרות המיטוכונדריאליות והגרעיניות. עבור כל תגובה, ערבבו 5 µL של 2× PowerUp SYBR Green Mix, כ-0.4 µL מכל פריימר בזוג הפריימרים המתאים (10 µM כל אחד), ו-2.1 µL של מים בדרגת ביולוגיה מולקולרית.
- הוסיפו 8 µL מתערובת המאסטר המתאימה לכל באער מוגדר בלוחית 96-באער תואמת qPCR. הוסיפו 2 µL של הדגימה המדוללת ביחס של 1:10 כדי להגיע לנפח תגובה סופי של 10 µL.
- אטמו את הלוחית וסובבו אותה קצרה בצנטריפוגה לפני הכנסתה למכשיר ה-real-time PCR.
- בצעו qPCR תוך שימוש בתנאי מחזור תרמי הבאים: 2 min ב-95°C, ולאחר מכן 45 מחזורים של 15 s ב-95°C, 20 s ב-56°C ו-30 s ב-72°C.
- קבעו את ה-Cq על ידי הגדרת סף הפלואורסצנציה ל-100 RFU.
הערה: בחרו סף פלואורסצנציה התואם למכשיר ה-real-time PCR והשתמשו באותו סף בכל הניסויים כדי לאפשר השוואה של ערכי Cq. התאימו את ערכי ה-Cq ליעילות ההעשרה שהתקבלה מהריצוף לאחר ביצוע הריצוף, והשתמשו בערכים אלו כסימוכין להכנות ספריות עוקבות. - חשבו את ה-ΔCq הקשור להעשרה על ידי חיסור ה-Cq של המטרה הגרעינית מה-Cq של המטרה המיטוכונדריאלית (CqmtDNA − CqnDNA). ברגע שנתוני ריצוף ראשוניים יהיו זמינים, צרו עקומת סטנדרט ספציפית למעבדה כדי להעריך את חלקם של קריאות הריצוף שמקורן ב-mtDNA.
הערה: אם נתוני ריצוף עדיין אינם זמינים, ניתן להשתמש ב-Equation 1 כדי לקבל הערכה גסה של אחוז קריאות הריצוף הצפוי ממקור mtDNA, באמצעות עקומת סטנדרט לדוגמה שנוצרה משבע ספריות של אווציטים (ΔCq = −0.8, 16.83%; ΔCq = −2.1, 33.62%; ΔCq = −3.0, 45.57%; ΔCq = −3.9, 60.34%; ΔCq = −5.0, 77.98%; ΔCq = −6.2, 89.25%; ΔCq = −8.4, 95.09%). יש להשיג ערך ΔCq <−1 כדי להבטיח הסרה יעילה של DNA גרעיני. ניתן לפצות על יעילויות העשרה נמוכות יותר על ידי הקצאת קריאות ריצוף נוספות כדי להשיג עומק ריצוף מספיק של mtDNA; עם זאת, הדבר עלול להגביר את זיהום ה-nuclear mitochondrial DNA segment (NUMT). מכיוון שהקשר בין ΔCq לתוכן ה-mtDNA תלוי בריאגנטים, בחומרים מתכלים, במכשור ובסביבת הניסוי, יש להתייחס ל-Equation 1 ככיול לדוגמה ויש לקבוע עקומות סטנדרט ספציפיות למעבדה במידת האפשר.
Estimated mtDNA (%) = −11.006 × ΔCq + 13.776 (1)
12. הגברת הספרייה
הערה: בצעו את ההגברה הראשונה בשני שלבי PCR רצופים. בצעו את ה-PCR הראשון באמצעות פריימר בודד כדי ליצור הגברה ליניארית. לאחר מכן, הוסיפו את הפריימר השני כדי לאפשר הגברה אקספוננציאלית במהלך ה-PCR השני.
- קבע את כמות ה-DNA להכנסה עבור ה-PCR הראשון להגברה, בהתבסס על תוצאות ה-qPCR של ה-attomole.
- עבור ספריות של ביצית בודדת, השתמשו בדגימות עם ערך Cq של attomole qPCR הגבוה בדרך כלל מ-22. אם לדגימה יש ערך Cq נמוך יותר, דללו אותה לערך Cq של כ-22 בהתאם ל- טבלה 3ספריות עם ערכי Cq של 29≤ מייצרות בדרך כלל גדלי משפחות גדולים ועומקי ריצוף רדודים של mtDNA, ולפיכך אינן מומלצות להמשך הכנת ספריות או לריצוף.
- הכינו תערובת מאסטר (Master Mix) להגברה המכילה 20 µL מתוך 2× תערובת PCR בעלת נאמנות גבוהה (high-fidelity PCR mix) ו- 4 µL של הפריימר mws20 (10 µM) לכל תגובה.
- הוסף 24 µL של תערובת המאסטר להגברה אל 14 µL של הדגימה המדוללת.
- בצעו את תגובת ה-PCR להגברה ליניארית תחת תנאי המחזור התרמי הבאים: 45 שניות ב- 98°C, ולאחריהם 12 מחזורים של 15 שניות ב- 98°C, 30 שניות ב- 60°C, ו-45 שניות ב- 72°C, ולאחר מכן 2 דקות ב- 72°C.
- הוסף 4 µL של הפריימר האוניברסלי לספרייה (10 µM) וערבב היטב.
- בצע את ה-PCR להגברה אקספוננציאלית לפי תנאי המחזור התרמי הבאים: 45 שניות ב- 98°C, ולאחר מכן 9 מחזורים של 15 שניות ב- 98°C, 30 שניות ב- 65°C, ו-45 שניות ב- 72°C, ולאחר מכן הארכה של 2 דקות ב- 72°C.
הערה: לאחר השלמת ההגברה הראשונה, ניתן לאחסן את הדגימות ב- 4°C ואת הפרוטוקול ניתן להמשיך מאוחר יותר במידת הצורך. יש לבצע את כל השלבים הקודמים, מליזיס הביצית ועד להגברה הראשונה, ללא הפסקה. - הוסף 10 µL של מים בדרגת ביולוגיה מולקולרית לכל דגימה.
- טהרו את ה-DNA שהועשיר באמצעות 40 µL של חרו지를 מגנט (0.8× (נפח הדגימה), בהתאם להליך טהרת חרוזי המגנט השני המתואר בשלבים 9.9–9.15. שטפו את החרוזים פעמיים עם 200 µL של 80% EtOH, השג את ה-DNA ב- 15.5 µL של Tris-HCl, והעברה 15 µL של האלוואט למבחנה חדשה 200 µL מבחנה בעלת קישוריות נמוכה.
הערה: זוהי נקודת עצירה מתאימה. יש לאחסן את ה-DNA המטוהר ב- 4°C או להמשיך מיד לאינדוקס.
טבלה 3: מקדמי דילול ומקדמי תיקון תואמים של מחזור הכמות (Cq) בתגובת שרשרת פולימראז כמותית (qPCR), המשמשים לסטנדרטיזציה של כמות ה-DNA להגבלה הראשונה של תגובת שרשרת פולימראז (PCR) להגברת הספרייה. דגימות עם ערכי Cq של qPCR ב-attomole שהיו נמוכים מערך המטרה דוללו עם מים בדרגת ביולוגיה מולקולרית לפני ה-PCR הראשון להגברה. ערך ה-Cq המתוקן התקבל על ידי הוספת מקדם תיקון הדילול המתאים לערך ה-Cq שנמדד ניסויית, ושימש לאחר מכן לקביעת מספר מחזורי ה-PCR לאינדקסים ועומק הריצוף המטרה (טבלה 4). נפחי הדגימה והמים יוצרים נפח קלט סופי של 14 µL עבור ה-PCR הראשון להגברה. הכוכבית (*) מציינת כי יש להוסיף את מקדם תיקון הדילול הרשום לערך ה-Cq של qPCR ב-attomole שנמדד ניסויית כדי לקבל את ה-Cq המתוקן. מקדמי התיקון נקבעו באופן אמפירי עבור תהליך עבודה זה. אנא לחצו כאן להורדת קובץ זה.
13. אינדקס
- קבע את מספר מחזורי ה-PCR לאינדוקס (indexing) באמצעות ערך ה-Cq של ה-qPCR ב-attomole, המתוקן עבור דימרים ומיהולים, בהתאם ל- טבלה 4.
- הכינו תערובת מאסטר לאינדקסייה המכילה 25 µL מתוך 2× תערובת PCR בעלת נאמנות גבוהה (high-fidelity PCR mix) ו- 10 µL של 10 µM זוג פריימרים עם אינדקס כפול ייחודי עבור כל דגימה.
- הוסף 35 µL של תערובת המאסטר לאינדקס אל 15 µL של כל דגימה שעברה הגברה.
- בצע את ה-PCR לאינדוקס (indexing PCR) תחת תנאי מחזור תרמי הבאים: 45 שניות ב- 98°C, ולאחר מכן מספר מתאים של מחזורים המורכבים מ-15 שניות ב- 98°C, 30 שניות ב- 65°C, ו-45 שניות ב- 72°C, ולאחריו שלב הארכה סופי ב- 72°C למשך 2 דקות.
- טהרו את הספריות המאינדקסות באמצעות 40 µL של חרוזי מגנט (0.8× נפח הדגימה). שטוף את החרוצים פעמיים ב-80% EtOH ובצע אלוציה של ה-DNA לתוך 21 µL של TEנמוך בופר
- העבירו את התמצית (eluate) למבחנה בעלת קישור נמוך ל-DNA.
- מדוד את ריכוז ה-DNA באמצעות Qubit High Sensitivity DNA Assay או בדיקה פלואורומטרית שוות ערך.
- יש לאחסן את הספריות ב- 4°C לפני הריצוף או ב-−80°C לאחסון לטווח ארוך.
הערה: זוהי נקודת עצירה בטוחה.
טבלה 4: מספרי מחזורי תגובת שרשרת פולימראז (PCR) לאינדוקס ועומק רצף המטרה שנקבעו על פי מחזור הכימות (Cq) המתוקן של תגובת שרשרת פולימראז כמותית (qPCR) באטומול. ערך ה-Cq המתוקן משלב את ערך ה-Cq של ה-qPCR באטומול שנמדד ניסיונית, יחד עם כל מקדם תיקון רלוונטי של דימר-אדפטור (איור 2) ומקדם תיקון דילול (טבלה 3). ערך ה-Cq המתוקן שימש לקביעת מספר מחזורי ה-PCR לאינדוקס ומספר קריאות הרצף הזוגיות (paired-end) המומלץ להקצאה לכל ספרייה לצורך איחוד (pooling). הקצאות קריאות הרצף למטרה משמשות כהנחיה ראשונית ועשויות לדרוש אופטימיזציה ספציפית למעבדה, בהתאם למכשיר ה-PCR בזמן אמת, לפלטפורמת הרצף, לאסטרטגיית המולטיפלקס ולדרישות הניסוייות. אנא לחצו כאן להורדת קובץ זה.
14. בקרת איכות
- העריכו את איכות הספרייה, התפלגות גודל הפרגמנטים ואת נוכחותם של שאריות מתאם (adapter) או דימרים של פריימרים באמצעות Bioanalyzer, TapeStation או מכשיר שקול לניתוח פרגמנטים של חומצות גרעיניות. גדלי הפרגמנטים צריכים לנוע בין כ-300 ל-1,000 bp. שיאים קטנים של שאריות (<5% מעוצמת הפלואורסצנציה של הדגימה [RFU] בעקבה של ה-Bioanalyzer) היו בדרך כלל מקובלים (איור 3A–D). שאריות של מתאם או דימרים של פריימרים הופיעו כשיאים מובחנים בכ-70–150 bp (איור 3E–H). ריכוז הספרייה הסופי צריך להיות לפחות 5 ng/µL. עיינו ב-קובץ משלים 1 (מדריך לפתרון בעיות>) אם אחד מקריטריוני איכות אלה אינו מתקיים.
- (אופציונלי) אם זוהו דימרים של מתאם או פריימרים (איור 3E–H), התאימו את נפח הספרייה ל-50 µL באמצעות מים בדרגת ביולוגיה מולקולרית, הוסיפו 40 µL של חרוזי מגנט (0.8× נפח הדגימה), ובצעו טיהור נוסף. שטפו את החרוזים פעמיים עם 80% EtOH ואלואו (elute) את הספרייה המטוהרת לתוך 21.5 µL של בופר TElow.
- (אופציונלי) חזרו על ניתוח בקרת האיכות (שלב 14.1) כדי לוודא הסרה מלאה של דימרים של מתאם ופריימרים.
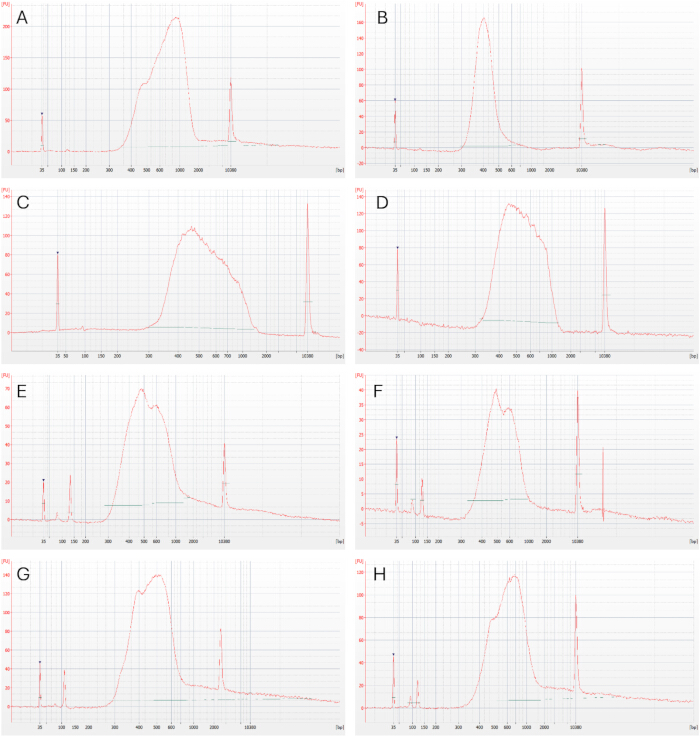
איור 3ניתוח מקטעים מייצג של ספריות ריצוף עם אינדקסים. אלקטרופורוגרמות מייצגות שהופקו באמצעות ניתוח מקטעים ב-Bioanalyzer, המראות את איכות הספריה לאחר PCR לאינדוקס. (A–D) ספריות עם התפלגות גודל מקטעים צפויה (כ-300-1000 bp) וללא דימרים של אדפטורים/פריימרים שניתן לזהותם, המתאימות לריצוף ללא טיהור נוסף. (E–H) ספריות המכילות שאריות של דימרים של אדפטורים ו/או פריימרים, הדורשות טיהור נוסף באמצעות חרו지를 מגנטיים לפני הריצוף. שיאים בכ-35 bp וב-10,380 bp תואמים למסמנים הפנימיים התחתון והעליון, בהתאמה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
15. איסוף לדגימות (Pooling) וריצוף
- מדוד את הריכוז של כל ספרייה עם אינדקס באמצעות בדיקת כימות ספריות מבוססת qPCR התואמת לספריות שהוכנו בשיטת Illumina, כגון Collibri Library Quantification Kit, בהתאם לפרוטוקול היצרן. דלל כל ספרייה ביחס של 1:100,000 בבফার הדילול של הספריה המסופק ונתח כל דגימה לפחות בשכפול; מדידות בשלישייה מומלצות. נתח את התקנים בשלישייה.
- חשב את ערך מחזור הכימות (Cq) הממוצע עבור כל דגימה ותקן. צור עקומת תקן מערכי ה-Cq הממוצעים של התקנים וחשב את הריכוז של כל ספרייה בהתאם להוראות היצרן.
- בצע איחוד (Pooling) של הספריות בהתאם למספר הקריאות הזוגיות (paired-end reads) המתוכנן, אשר נקבע מערך ה-Cq של ה-qPCR באטומול המתוקנן לדילול ולדימרים של האדפטורים שהתקבל בשלב 10 ומההקצאות המופיעות ב-Table 4.
הערה: יחס האיחוד תלוי בערך ה-Cq המתוקנן של כל ספריית ציט אווצית (oocyte) ובמספר הקריאות הזוגיות המיועד. הערכים ב-Table 4 הם מקורבים ועשויים להשתנות בין מכשירי PCR בזמן אמת. קבע ערכים ספציפיים למעבדה לצורך ביצועים אופטימליים. - חשב את חלק האיחוד היחסי עבור כל ספרייה על ידי חילוק מספר הקריאות הזוגיות המיועד שלה בסכום הקריאות המיועדות לכל הספריות. קבע את הכמות הנדרשת מכל ספרייה על ידי הכפלת שבר זה בסכום המולרי הכולל של המאגר המאוחד הסופי, ולאחר מכן חשב את נפח הספרייה המתאים מתוך הריכוז המולרי שנמדד. שלב את הנפחים המחושבים ליצירת המאגר המאוחד הסופי.
- בצע ריצוף לספריות המאוחדות באמצעות פלטפורמת ריצוף של Illumina או פלטפורמה אחרת התואמת לרצפי אדפטורים של Illumina. השתמש בתצורת paired-end עם אורך קריאה מינימלי של 2 × 150 bp. קריאות ארוכות יותר, כגון 2 × 250 או 2 × 300 bp, מומלצות כיוון שהן משפרות את היכולת לזהות ולסנן קריאות שמקורן במקטעי DNA מיטוכונדריאלי גרעיני קצרים יותר (NUMTs).
- בצע ריצוף לספריות המאוחדות, לדוגמה, על פלטפורמת Illumina NovaSeq 6000 תוך שימוש בכימיית ריצוף באמצעות סינתזה (sequencing-by-synthesis) דו-ערוצית עם SP Reagent Kit v1.5 (500 cycles) ותצורת paired-end של 2 × 250 bp הכוללת 5% PhiX spike-in. טען את הספרייה ובצע את הריצוף בהתאם להוראות היצרן. ביצועי ריצוף מייצגים צריכים להגיע ל-≥75% בסיסים עם ציון איכות של ≥Q30 ו-≥60% מקבצים (clusters) שעוברים את הסינון.
16. ניתוח ביואינפורמטי
הערה: זרימת העבודה הבאה מתארת ניתוח נתונים ב-Galaxy באמצעות כלי הניתוח של Du Novo8,14,15. ניתן לבצע את הניתוח גם באמצעות התקנה מקומית של Du Novo או תוכנות אחרות שפותחו עבור נתוני duplex sequencing.
- העלו את קובצי ה-FASTQ מסוג paired-end שעברו דה-מולטיפלקס (demultiplexed), אשר הופקו באמצעות BCL Convert או כלי דה-מולטיפלקס שווה-ערך, להתקנת Galaxy מקומית או למופע Galaxy הזמין לציבור14.
- העריכו את איכות קריאות הריצוף באמצעות FastQC (גרסת Galaxy 0.72+galaxy1). בחנו, לכל הפחות, את המודולים Per Base Sequence Quality, Per Sequence GC Content ו-Adapter Content.
- ייצרו רצפי קונסנזוס של גדיל יחיד (SSCSs) ו-DCSs מקובצי ה-FASTQ בעלי הקריאות הזוגיות (paired-end) לאחר ביצוע דה-מולטיפלקס, באמצעות צינור העיבוד Du Novo (גרסת Galaxy 3.0.2). השתמשו בגודל משפחה מינימלי של שלוש קריאות ליצירת SSCS, וקבעו נוקלאוטיד קונסנזוס כאשר הוא מופיע בלפחות 70% מהקריאות.15אפשרו תיקון שגיאות ברקודי בר (barcode) עם עד שלושה אי-התאמות. לעיוני בהוראות מפורטות על השימוש בצינור העיבוד (pipeline), פנו למדריך ה-Du Novo של רשת ההדרכה של Galaxy (Galaxy Training Network).16.
- השתמש ב-Sequence Content Trimmer (גרסת Galaxy 0.2.3) כדי להסיר בסיסים המיוצגים על ידי "NRYSWKMBDHV" ולפסול קריאות הקצרות מ-10 bp.
- הסר את 10 הנוקלאוטידים הראשונים מהקצה ' 5′ קצצו את קצוות כל רצף DCS באמצעות FASTQ Trimmer (גרסת Galaxy 1.1.5) כדי להפחית הטיות הקשורות לתיקון קצוות (end-repair). יישרו את רצפי ה-DCS הקצוצים לגנום הייחוס האנושי, כגון GRCh38.p14 המכיל את רצף הייחוס המעודכן של קיימברידג' (rCRS; NC_012920.1), באמצעות BWA-MEM (גרסת Galaxy 0.7.17.1).
הערה: ניתן להשתמש בהרכבות אחרות של הגנום האנושי, כולל T2T-CHM13v2.0 או הרכבות חדישות יותר. - סננו את קובצי ה-BAM באמצעות BAMTools Filter, המסנן מאגרי נתונים של BAM על פי מגוון מאפיינים (Galaxy version 2.5.2+galaxy1). השאירו קריאות עם איכות מיפוי >20 הממפות ל-chrM, מייצגים יישומים ראשוניים (primary alignments), הם בזוגות, הם מזווגים כראוי, ויש להם בן-זוג ממופה. קריטריונים אלו מפחיתים יישומים פוטנציאליים שמקורם ב-NUMT17.
- בצעו יישור לשמאל (Left-align) של הקריאות באמצעות Bam Left Align (גרסת Galaxy 1.3.1). קצצו אזורים חופפים של קריאות DCS בזוגות באמצעות BAMUtil clipOverlap (גרסת Galaxy 1.0.15+galaxy1).
- בצעו זיהוי של וריאנטים של נוקלאוטיד בודד (SNVs) והכנסות/מחיקות (indels) באמצעות הכלי Call variants with LoFreq (גרסת Galaxy 2.1.5+galaxy2) עם הגדרות ברירת המחדל.
- יש להסיר קריאות DCS של קצוות מזווגים (paired-end) המכילות יותר משני וריאנטים, במידה וישנם, כדי להפחית זיהום פוטנציאלי של NUMT. דגימות עם העשרה יעילה של mtDNA הן בדרך כלל נקיות מקריאות ניתנות לזיהוי שמקורן ב-NUMT; עם זאת, דילול לא מספיק של DNA גרעיני עלול להוביל לרצפים שמקורם ב-NUMT.
- יש לבחון כל ספרייה לאיתור זיהום פוטנציאלי בין דגימות באמצעות הבדלים ברצפי mtDNA הספציפיים לתורם, כולל וריאנטים מקובעים והטרופלזמיות בתדירות גבוהה. אם מזוהה זיהום בין דגימות, יש ליישם את אמצעי הזהירות המתוארים ב- קובץ משלים 1 (מדריך לפתרון בעיות)אם התפלגות גודל הפרגמנטים חורגת מהטווח המומלץ או אם גודל הפרגמנט הממוצע הוא >900 bp, בצע טיהור כפול לסלקציה לפי גודל כפי שתוספר בעבר18.
- בצע ניתוחים המשכיים (downstream analyses) של הווריאנטים שהתגלו בהתאם למטרות המחקר.
- כלול רק דגימות עם עומק ריצוף DCS מיטוכונדריאלי ממוצע של ≥100× עבור ניתוח המשך. לא הוחלו ספי thresholds מינימליים קבועים עבור מספר קריאות paired-end, או עבור תנובת ה-SSCS או ה-DCS.
תוצאות
ספריות ריצוף Duplex הוכנו מביציות אנושיות המייצגות שלבי הבשלה שונים, כולל ביציות בשלבי germinal vesicle (GV), metaphase I (MI), MII, pronuclear-stage (0PN) ו-TI. ספריות שהוכנו בהצלחה רוצצו בפלטפורמת Illumina NovaSeq 6000 באמצעות תא זרימה SP עם קריאות paired-end של 2 × 250 bp. ניתוח הנתונים בוצע ב-Galaxy באמצעות צינור העיבוד Du Novo לצורך קיבוץ משפחות קריאות ויצירת קריאות קונסנזוס8,14,15. מדדי ריצוף מייצגים עבור ספריות שעובדו בהצלחה מסוכמים ב-Supplementary Table 1, בעוד שדגימות שהניבו תוצאות תת-אופטימליות במהלך הכנת הספריות והוצאו מהריצוף מסוכמות ב-Supplementary Table 2.
מספר שלבי בקרת איכות בוצעו לאורך הכנת הספריה כדי להעריך את כמות ה-DNA עם האדפטרים, את העשרת ה-mtDNA, את ריכוז הספריה ואת התפלגות גודל הפ фрагמנטים. שלב בקרת האיכות הראשון היה בדיקת attomole qPCR, ששימשה להערכת כמות ה-DNA עם האדפטרים (איור 4A,B). ערך מחזור הכמות (Cq) המחושב הותאם כאשר זוהו דימרים של אדפטרים או פריימרים באמצעות אלקטרופורזה בג'ל אגרוז של תוצרי ההגברה של ה-qPCR (איור 2A–D). דימרים של אדפטרים או פריימרים נצפו בדרך כלל בדגימות עם ערכי Cq גבוהים יותר, דבר המעיד על כמויות נמוכות יותר של DNA עם אדפטרים. בשימוש בתנאים המתוארים בפרוטוקול זה, התקבל ערך Cq מותאם ממוצע של 25.8 ב-attomole qPCR (טבלה משלימה 1). בהתבסס על ערך ה-Cq המתוקן, כמות ה-DNA להכנסה עבור ה-PCR הראשון של ההגברה הותאמה בהתאם לסכימת הדילול המוצגת ב-טבלה 3. דגימות עם ערכי Cq מתוקנים של ≥22 שימשו ללא דילול, בעוד שדגימות עם ערכי Cq מתוקנים של <22 דוללו לפני ההגברה. התאמה זו בוצעה כדי למקסם את גודל משפחת הקריאות (read-family size) ולהפחית את מספר קריאות הריצוף הנדרשות. דגימות עם ערכי Cq מתוקנים של >28 הניבו בדרך כלל משפחות קריאות גדולות יותר (גודל משפחה ממוצע, 21.8), מה שהוביל לפחות DCSs ולעומק ריצוף mtDNA ממוצע של <200× (טבלה משלימה 1). התאמת ערך ה-Cq המתוקן לטווח של 22–28 הובילה לגודל משפחה ממוצע של 7.91, קרוב לגודל משפחה של כשישה שדווח בעבר כאופטימלי עבור duplex sequencing6,7. עם זאת, גדלי משפחה גדולים יותר עשויים להיות יתרוניים עבור דגימות עם כמות קלט נמוכה מאוד, כגון תאי ביצית בודדים, מכיוון שהם יכולים להגדיל את עומק הריצוף.
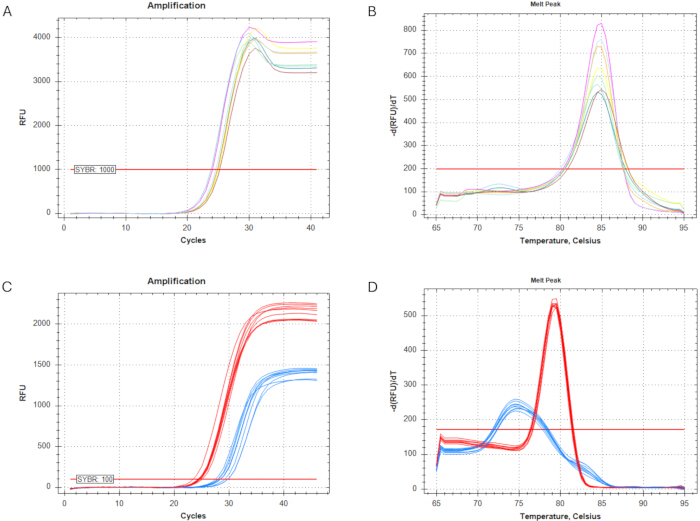
איור 4. בדיקות Quantitative PCR (qPCR) ששימשו לכימות הספרייה ולהערכת העשרה של DNA מיטוכונדריאלי (mtDNA). DNA מטוהר עם מתאמים מקושרים דולל ביחס של 1:10 לפני ניתוח ה-qPCR. (A) עקומות הגברה מבדיקת ה-attomole qPCR ששימשה להערכת כמות ה-DNA עם המתאמים המקושרים. סף הפלואורסצנציה נקבע ל-1,000 יחידות פלואורסצנציה יחסיות (RFU). (B) ניתוח עקומת התכה של בדיקת ה-attomole qPCR. (C) עקומות הגברה מבדיקת ה-qPCR להעשרת mtDNA. סף הפלואורסצנציה נקבע ל-100 RFU. הגברה של יעד ה-NADH dehydrogenase subunit 6 (ND6) המיטוכונדריאלי מוצגת באדום, והגברה של יעד אלמנט החזרתי גרעיני מסוג Alu מוצגת בכחול. (D) ניתוח עקומת התכה של תוצרי ה-qPCR המיטוכונדריאליים והגרעיניים. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
לפני איחוד הספריות, כל הספריות נותחו באמצעות Bioanalyzer או TapeStation כדי להעריך את התפלגות גודל הפרגמנטים ולזהות שאריות של דימרים של מתאמים או פריימרים. דוגמאות מייצגות של ספריות אופטימליות וספריות המכילות שאריות של דימרים של מתאמים או פריימרים מוצגות ב-איור 3A–H. דימרים של מתאמים או פריימרים הופיעו כפיקים בגובה של כ-70–150 bp (איור 3E–H); כאשר זוהו, הספריות הועברו לטיהור נוסף באמצעות חרוזי מגנט לפני הריצוף. מכיוון שבחירת גודל (size selection) הושמטה במכוון כדי למזער את אובדן הדגימות, לספריות שרוצפו היה גודל אינסרט חציוני של 275 bp (טבלה נלווית 1).
העשרה של mtDNA נאמדה באמצעות qPCR תוך שימוש באתרים של מטרות מיטוכונדריאליות וגרעיניות, מה שאיפשר לחזות את חלקן של קריאות הריצוף הצפויות להיות ממופות לגנום המיטוכונדריאלי (איור 4C,D). ערכי ה-Cq הממוצעים היו 25.2 עבור המטרה המיטוכונדריאלית ו-29.7 עבור המטרה הגרעינית (טבלה נלווית 1), מה שמתאים ל-ΔCq ממוצע (CqmtDNA − CqnDNA) של −4.5. בממוצע, 67.5% מקריאות הריצוף מסוג paired-end מופו לגנום הייחוס המיטוכונדריאלי. הן הערכת העשרה של mtDNA והן ערך ה-Cq המתוקן של ה-qPCR ב-attomole נלקחו בחשבון במהלך איחוד הספריות. לספריות עם ערכי Cq מתוקנים גבוהים יותר והעשרה יעילה יותר של mtDNA הוקצו באופן יחסי פחות קריאות ריצוף, בהתאם לתוכנית הקצאת הריצוף המוצגת ב-טבלה 4, וזאת כדי לקדם פלט ריצוף מאוזן בין הדגימות.
על בסיס ערכי ה-Cq של qPCR ב-attomole המתוקנים, הוקצה ממוצע של 4 מיליון קריאות paired-end לספרייה (טבלה 4). בשל יצירת קלסטרים לא יעילה, התקבל ממוצע של 1.3 מיליון קריאות paired-end לספרייה לאחר הריצוף; עם זאת, תפוקת ריצוף זו הייתה מספיקה לניתוח duplex sequencing בהמשך (טבלה נספחת 1). מיפוי ה-DCSs לגנום המיטוכונדריאלי הייחוס הניב עומק ריצוף חציוני של 567× לאורך הגנום המיטוכונדריאלי (איור 5A,B,D; טבלה נספחת 1). בממוצע, נוצרו 344,554 SSCSs ו-96,322 DCSs לספרייה (טבלה נספחת 1). לספריות שהתקבלו היה גודל ממוצע של משפחות קריאות של 8.32, כאשר גדלי משפחות גדולים יותר נצפו בדרך כלל בספריות עם ערכי qPCR Cq ב-attomole מתוקנים גבוהים יותר (איור 5C,E; טבלה נספחת 1). תוצאות אלו עקביות עם אלו שהושגו במחקר קודם שבוצע בצפיפות קלסטרים אופטימלית, שבו הושג עומק ריצוף חציוני של 1,440× עבור mtDNA19.
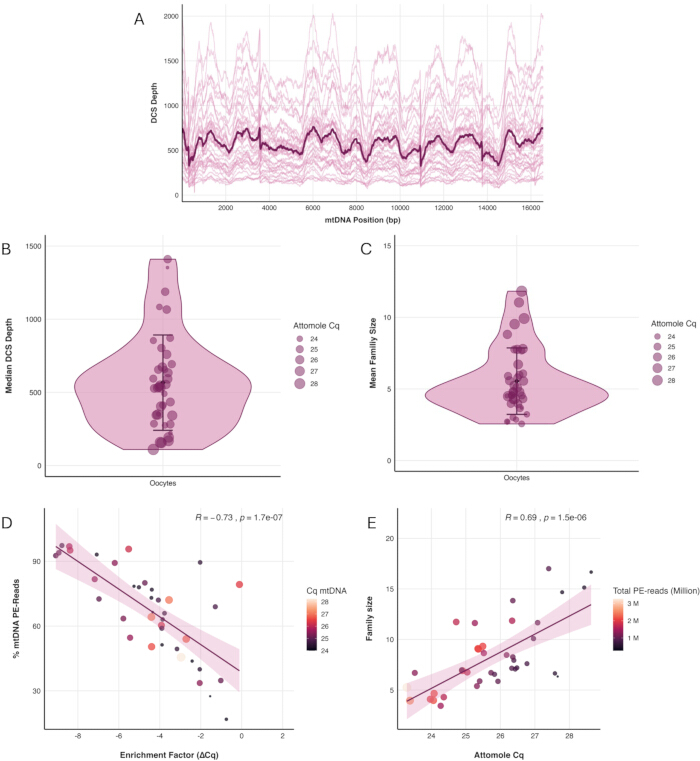
איור 5. ביצועי ריצוף של ספריות duplex sequencing מביצית בודדת. (A) עומק רצף קונסנזוס דופלקס (DCS) לאורך הגנום המיטוכונדריאלי. קווים דקים מייצגים ספריות בודדות, והקו המודגש מייצג את העומק הממוצע בכל הספריות. (B) התפלגות עומק ה-DCS החציוני עבור ספריות בודדות. (C) התפלגות גודל משפחת ה-DCS הממוצע עבור ספריות בודדות. ב-(B) וב-(C), כל נקודה מייצגת ספרייה אחת, וצבע הנקודה מציין את מחזור הכימות (Cq) של qPCR attomole. (D) מתאם פירסון בין אומדן העשרה של mtDNA (ΔCq) לבין פרופורציית קריאות הריצוף שהותאמו לגנום המיטוכונדריאלי הייחוס. (E) מתאם פירסון בין ערך ה-Cq של qPCR attomole לבין גודל משפחת ה-DCS הממוצע. ב-(D) וב-(E), כל נקודה מייצגת ספרייה אחת; צבע הנקודה מציין את ערך ה-Cq של qPCR attomole, וגודל הנקודה מייצג את המספר הכולל של קריאות paired-end שהתקבלו עבור אותה ספרייה. n = 39 ספריות. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
טבלה נלווית 1. מדדי איכות של הריצוף והספריות עבור ספריות duplex sequencing אופטימליות של ציותות אנושיות. טבלה זו מסכמת מדדי איכות של הספריות לפני הריצוף, מדידות תגובת שרשרת פולימראז כמותית (qPCR), ביצועי ריצוף ותוצאות ניתוח duplex sequencing עבור ספריות שעברו את בקרת האיכות ונכללו בניתוחים המשלימים. הפרמטרים המדווחים כוללים את שלב התפתחות הציותה, תוצאות qPCR להעשרה של DNA מיטוכונדריאלי (mtDNA), מדידות qPCR של attomole, מקדם תיקון של adapter-dimer (ACF), מספר מחזורי PCR של האינדקס, עומק הריצוף המתוכנן של paired-end, ריכוז הספרייה, תפוקת הריצוף, העשרת mtDNA, ספירות קריאות של רצף קונסנזוס של גדיל בודד (SSCS) ורצף קונסנזוס דופלקס (DCS), סטטיסטיקות של גודל משפחה, עומק ריצוף והתפלגויות של גודל המקטע (insert-size). מזהי הדגימות עוברו אנונימיזציה לפני הניתוח. מספר קריאות ה-paired-end המתוכנן נקבע בהתאם לערך מחזור הכמות (Cq) המתוקן של מדידת ה-attomole qPCR (טבלה 4). אנא לחץ כאן כדי להוריד קובץ זה.
טבלה משלימה 2. מדדי איכות לפני ריצוף עבור ספריות של ציותות אנושיות שאינן אופטימליות, אשר הוצאו מניתוחי duplex sequencing בהמשך התהליך. טבלה זו מסכמת את תוצאות בקרת האיכות שלפני הריצוף עבור ספריות שלא עמדו בקריטריונים להכללה בניתוחי ריצוף המשכיים. הפרמטרים המדווחים כוללים את מזהה הדגימה, שלב ההתפתחות של הביצית (oocyte), תוצאות תגובת שרשרת פולימראז כמותית (qPCR) להעשרת דנ"א מיטוכונדריאלי (mtDNA), מקדם תיקון של דימרים של מתאמים (ACF), מחזור כימות qPCR מתוקן באטומול (Cq), מספר מחזורי תגובת שרשרת פולימראז (PCR) לאינדקס, וריכוז הספרייה שנמדד באמצעות Qubit High Sensitivity DNA Assay. ספריות הוצאו מהניתוח בהתאם לקריטריוני בקרת האיכות המתוארים בפרוטוקול. אנא לחצו כאן כדי להוריד קובץ זה.
קובץ משלים 1. מדריך לפתרון בעיות להכנת ספריית duplex sequencing של DNA מיטוכונדריאלי מהביצית הבודדת. קובץ משלים זה מספק המלצות לפתרון בעיות בשלבים קריטיים של תהליך העבודה, כולל מניעת אובדן דגימות, הכנת מתאמים והערכת איכות, טיהור באמצעות חרוזי מגנט, בקרת איכות של הספרייה, ביצועי ריצוף, זיהום בין דגימות וזיהום של מקטעי DNA מיטוכונדריאלי גרעיני (NUMT). המדריך משלים את הפרוטוקול הראשי ויש לעיין בו כאשר מדדי האיכות של הספרייה או ביצועי הריצוף חורגים מהטווחים המומלצים. אנא לחצו כאן כדי להוריד קובץ זה.
דיון
וריאנטים של mtDNA שזוהו בביציות משקפים שילוב של מוטגנזה דה נובו (de novo mutagenesis), שינויים בהטרפלזמיה לאורך דורות, והשפעות של הזדקנות ומחלות על קו הנבט הנקבי. פרוטוקול זה מתאר שיטה להעשרה של mtDNA מביציות בודדות, ולאחריה הכנת ספריית ריצוף כפול (duplex sequencing) וריצוף, המאפשרים זיהוי וניתוח מדויקים מאוד של מוטציות ב-mtDNA. למרות מספר העותקים הגבוה של mtDNA הנמצא בביציות, תהליך עבודה זה דורש הכנה של ספריית ריצוף מלאה מתא בודד. כתוצאה מכך, טיפול זהיר בדגימה הוא חיוני לאורך הפרו prosedur, כפי שמפורט גם ב-קובץ משלים 1 (מדריך לפתרון בעיות). למרות טיפול זהיר בדגימה, כ-5% מהכנות הספריות עלולות להיכשל עקב אובדן של ביציות במהלך שלבי הטיפול הראשוניים או אובדן דגימה במהלך הכנת הספרייה.
בקרת איכות לאורך תהליך הכנת הספריה ואחריו חיונית כדי לאמת הצמדה מוצלחת של מתאמים, להעריך העשרה של mtDNA, למטב את כמות ה-DNA להגברה, לזהות שאריות של מתאמים או דימרים של פריימרים, ולקבוע האם נדרשים שלבי טיהור או הגברה נוספים. שימוש באותו מכשיר qPCR בזמן אמת עבור הכנות ספריה שונות מספק תנאי תגובה עקביים ומשפר את יכולת ההשוואה, השחזור והמהימנות של המדידות המשמשות לבקרת איכות במراحل מאוחרות יותר ולאופטימיזציה של הפרוטוקול. מספר מחזורי ה-PCR להגברת הספריה ולאינדקסציה המתוארים בפרוטוקול זה עשויים לדרוש התאמה כאשר נעשה שימוש במכשירים, אנזימים או ריאגנטים שונים. שלב ההגברה הראשוני מחולק לשלב הגברה ליניארית באמצעות פריימר בודד, ולאחריו הגברה אקספוננציאלית לאחר הוספת הפריימר השני. אסטרטגיה זו ממזערת את הסבירות ששגיאות שהוכנסו במהלך מחזור ההגברה הראשון יופצו לרמות שבהן יהיה קשה להבחין ביניהן לבין מוטציות DNA אמיתיות. מספר המחזורים המומלץ נבחר כדי להשיג גודל משפחת קריאות אופטימלי לניתוח duplex sequencing; עם זאת, הם עשויים לדרוש אופטימיזציה בהתאם לכמות ולאיכות ה-DNA המוזן. דגימות עם כמות DNA נמוכה יותר עשויות לדרוש מחזורי הגברה נוספים, בעוד שדגימות עם כמות DNA גבוהה יותר עשויות לדרוש פחות מחזורים כדי למנוע הגברה יתר ולשמור על מורכבות הספריה.
למרות שפרוטוקול זה מודגם באמצעות ציטות אנושיות בודדות, תהליך העבודה אינו מוגבל לדגימות אנושיות. יישמנו בעבר את אותה גישה כדי לחקור מוטגנזה של תאי נבט בעכברים ובמקאקים12,13, מה שמעיד על כך שהכנת ספריות לריצוף דופלקס (duplex sequencing) ישימה לציטות ממינים מרובים לאחר אופטימיזציה של רצפי הפריימרים הספציפיים למין, ובמידת הצורך, של פרמטרים ניסיוניים אחרים. למרות הישימות הרחבה של ריצוף דופלקס, תהליך העבודה להעשרה של mtDNA והכנת ספריות המתואר כאן אינו ניתן להעברה בקלות לתאים סומטיים בודדים, מכיוון שמספר עותקי ה-mtDNA שבהם נמוך בדרך כלל בכמה סדרי גודל מאשר בציטות, מה שמגביל את כמות ה-DNA הזמינה להכנת הספריות. עם זאת, ניתן להפיק ספריות ריצוף דופלקס מדגימות של תאים סומטיים במסה (bulk) כאשר הן משולבות עם העשרה אופטימלית של mtDNA לפני הכנת הספריות. מגבלה נוספת של ריצוף דופלקס היא הדרישה לפרגמנטציה של ה-DNA, שעלולה להחדיר שגיאות ארטיפקטואליות, במיוחד בקרבת קצוות הפרגמנטים. כתוצאה מכך, בסיסים הממוקמים מקצוות הפרגמנטים מוחרגים בדרך כלל מניתוחים המשכיים, וגם הזיהוי והאפיון של הכנסות (insertions) ומחיקות (deletions) עשויים להיות מושפעים מתהליך הפרגמנטציה. התקדמויות אחרונות בטכנולוגיות ריצוף של קריאות ארוכות (long-read sequencing), במיוחד אלו שפותחו על ידי Oxford Nanopore Technologies, עשויות לאפשר בסופו של דבר ריצוף מדויק מאוד של מולקולות DNA מיטוכונדריאליות שלמות ללא פרגמנטציה. עם זאת, השגת הדיוק הנדרש לזיהוי מוטציות מהימן תלויה כיום בניתוח של מולקולות DNA טבעיות שאינן מוגברות. מכיוון שכמות ה-DNA הנוכחת בציטות בודדת אינה מספיקה לגישות אלו, יישומן על סוג דגימה זה אינו מעשי כעת.
בהשוואה לגישות ששימשו במחקרים קודמים, כולל PCR לטווח ארוך וריצוף מקבילי מאסיבי קונבנציונלי20,21,22, פרוטוקול זה מציע מספר יתרונות. כל שלב של הגברה כרוך בסיכון להחדרת מוטציות ארטיפקטואליות שעלולות להטעות את הזיהוי של וריאנטים בתדירות נמוכה, מה שמחייב לעיתים קרובות ספי תדירות של אלל מיעוט של לפחות 1%. לעומת זאת, שיעור השגיאות הנמוך משמעותית המושג על ידי duplex sequencing משפר את דיוק זיהוי המוטציות ועולה על זה של גישות ריצוף קונבנציונליות5. כתוצאה מכך, שיטה זו מספקת מסגרת מהימנה יותר לזיהוי וכימות של מוטציות נדירות ב-mtDNA. באמצעות זרימת עבודה זו, הראינו בעבר כי בניגוד לרוב הרקמות הסומטיות, אוציטים נמנעים במידה רבה מהצטברות של מוטציות ב-mtDNA הקשורה לגיל19. השאלה האם אפקט הגנה לכאורה זה נשמר במצבי מחלה המשנים את המיקרו-סביבה השחלתית, כגון אנדומטריוזיס, ופוגעים באיכות האוציטים, נותרה לא ידועה ומצדיקה חקירה נוספת.
גילויים
המחברים מצהירים כי אין להם ניגודי אינטרסים.
תודות
אנו מודים בכנות לצוות של מרכז הפוריות במחוץ לגוף (In Vitro Fertilization Center) של בית החולים האוניברסיטאי קפלר בלינץ (Kepler University Hospital Linz) על תמיכתם באיסוף ביציות. אנו מודים גם ל-N. Stoler ול-A. Nekrutenko על פיתוח מופע ניתוח ה-duplex sequencing ב-Galaxy ועל מתן הנחיות לניתוח הנתונים. עבודה זו נתמכה על ידי מלגת שרדינגר של קרן המדע האוסטרית (FWF) (DOI: 10.55776/J4096; BA) ועל ידי פרויקט Stand-Alone של ה-FWF (DOI: 10.55776/P36928; BA). KDM נתמך, בחלקו, על ידי מענק R01GM116044 של המכונים הלאומיים לבריאות (National Institutes of Health) ועל ידי קרן ההקדשה Willaman Chair של מכללת Eberly למדעים באוניברסיטת פנסילבניה (The Pennsylvania State University).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 96 זוגות פריימרים ייחודיים עם אינדקס כפול | New England Biolabs | E6440S/L | זוגות פריימרים עם אינדקס כפול ייחודיים עבור PCR לאינדוקס |
| אתנול מוחלט, בדרגת ביולוגיה מולקולרית, 96% | Fisher BioReagents | 15518181 | הכינו אתרינול 80% טרי באמצעות מים בדרגת ביולוגיה מולקולרית |
| אגרוז, בעל אלקטרו-אנדוזמוזה נמוכה | Biozym | 840000 | להכנת ג'לים של אגרוז בריכוז של 1.5% ו-2% |
| תמיסת אמוןיום אצטט, 5 M | Thermo Fisher Scientific | J60688.AD | משמש להשקה באתנול |
| ATP, 10 mM | New England Biolabs | P0756S/L | משמש לעיכול באמצעות Exonuclease V |
| מכשיר אלקטרופורזה אוטומטי | Agilent Technologies | G2992AA | נעשה שימוש במכשיר ה-Agilent 2100 Bioanalyzer שהפסקתו שיווקו; ניתן להשתמש במכשיר 4150 TapeStation או במכשיר מקביל לניתוח מקטעי חומצות גרעין. |
| ערכת DNA ברגישות גבוהה ל-Bioanalyzer | Agilent Technologies | 5067-4626 | להערכת התפלגות גודל הספרייה ובדיקת דימרים של מתאמים/פריימרים |
| אוליגונוקלאיד נשא | Integrated DNA Technologies (IDT) | סינתזה בהתאמה אישית | רצף שאינו משלים לגנום האנושי. רצף לדוגמה מופיע בטבלה 2. הכין תמיסת מלאי בריכוז 100 nM ודלל אותה לריכוז סופי של 1 nM. |
| מערכת CFX96 Touch לזיהוי PCR בזמן אמת | Bio-Rad | 12011319 | המכשיר ששימש במחקר זה אינו מיוצר עוד; ניתן להשתמש במכשיר CFX Opus 96 או במכשיר PCR בזמן אמת (real-time PCR) מקביל, אם כי ערכי ה-Cq עשויים להשתנות. |
| ערכה לכימות ספריות Collibri | Invitrogen | A38524100 | לכימות של ספריות עם אינדקסים לפני איחודן |
| תוכנית להסרת תאי קומולוס המכילה היאלורונידאז (80 U/mL) | Gynemed | 4 HY 0010 | GM501 היאלורונידאז |
| מבחנה ל-PCR בעלת קישור נמוך ל-DNA, 200 µL | Corning | PCR-02-L-C | מבחנה Axygen Maximum Recovery |
| מבחנה בעלת קישור נמוך ל-DNA, 0.5 מ"ל | Biozym | 710136 | |
| מבחנה עם קישור נמוך ל-DNA, 1.5 מ"ל | Biozym | 710176 | |
| DNA Polymerase I, פרגמנט גדול (Klenow) (5 U/µL) | New England Biolabs | M0210S/L | בשימוש במהלך הארכת המתאם |
| תערובת dNTP (ריכוז שווה של dATP, dCTP, dGTP ו-dTTP), 10 mM | New England Biolabs | N0447S/L | נעשה בו שימוש במהלך הארכת המתאם |
| EDTA, 0.5 M (pH 8.0) | Fisher BioReagents | 10628203 | מרכיבי תמיסרי TE ו-TElow |
| צבע EvaGreen, 20× | Biotium | 31077-T | בשימוש ב-qPCR ברמת אטומול |
| Exonuclease V (RecBCD), 10 U/µL | New England Biolabs | M0345S/L | משמש לעיכול של DNA ליניארי |
| מסרק בגובה קבוע | Bio-Rad | 1704446EDU | עבור אלקטרופורזה של ג'ל אגרוז |
| מכשיר לאולטרסוניקציה ממוקדת | Covaris | 500295 | מכשיר an ultrasonicator ממוקד M220 |
| מבחנה לאולטרסוניקציה ממוקדת, 50 µL | Covaris | 520166 | פקק הברגה לסיב AFA microTUBE-50 |
| צבע טעינה לג'ל, 6× | Thermo Fisher Scientific | R1161 | צבע טעינה ל-DNA מסוג TriTrack |
| שמן מינרלי GM501 | Gynemed | 4 MO 0100 | משמש לכיסוי של מצע איסוף הביציות למניעת התאיידות ולשמירה על תנאי תרבית סטריליים ויציבים, כולל טמפרטורה, אוסמולליות ו-pH, במהלך הטיפול בביציות |
| תערובת PCR בנאמנות גבוהה, 2× | KAPA Biosystems | KK2602 | KAPA HiFi HotStart ReadyMix |
| ערכה לבדיקת DNA פלואורומטרית ברגישות גבוהה | Invitrogen | Q32854 | ערכה לבדיקת Qubit dsDNA ברגישות גבוהה |
| אנזים הגבלה HpyCH4III (5 U/µL) | New England Biolabs | R0618S/L | משמש לעיכול רסטריקציה של מתאם |
| צנטריפוגה למעבדה, מקוררת | Eppendorf | 5406000313 | חייב לתמוך ב-14,000 × ג'רמי אט (Jeremy At) 4 °C |
| מערכת לייזר לפתיחת הזונה פלוסידה (zona pellucida) | Vitrolife | 19310/0146 | משמש להסרת הגוף הקוטבי |
| ערכה להכנת ספרייה | New England Biolabs | E7645S/L | ערכה להכנת ספריות DNA מסוג NEBNext Ultra II; כוללת ריאגנטים לתיקון קצוות/הוספת זנב A וליגציה |
| תמיסת מגנזיום כלוריד, 25 mM | New England Biolabs | B9021S/L | משמש לעיכול באמצעות Exonuclease V |
| ריאגנט לטיהור באמצעות חרוזי מגנט | Beckman Coulter | A63881 | חרוזי AMPure XP |
| מעמד מגנטי | Invitrogen | 12-321-D | להפרדה באמצעות חרוזי מגנט |
| מיקרו-מניפולטור | לואיגס & Neumann GmbH | SM II/2 | משמש להסרת הגוף הקוטבי |
| מיקרוסקופ | Olympus | IX51 | משמש להסרת הגוף הקוטבי |
| מים בדרגת ביולוגיה מולקולרית | Thermo Fisher Scientific | 327290010 | משמש להכנת ריאגנטים ודילולים |
| תווך גידול לביציות | Gynemed | 4 GM 501H-20 | תווך גידול GM501 |
| פלטת PCR, 96 בארות | Biozym | AF4TI-0960-C | בארות שקופות, מסגרת שקופה, פרופיל נמוך, עם שוליים (skirted) |
| איטום לפלטת PCR | Bio-Rad | MSB1001B | תואם למכשיר ה-PCR בזמן אמת |
| סליין בבופר פוספט (PBS), 20× | טכנולוגיית איתות תאי | 9808S | דלל עד ל-1× עם מים בדרגת ביולוגיה מולקולרית |
| פיפטות למניפולציה והעברה של תאי קומולוס–קומפלקסים של אווציט ותאי גוף-צהוב (COCs) ואווציטים | CooperSurgical | MXL3-150 (150 µm) | משמש להסרה מכנית של תאי ה-cumulus ולהעברה של COCs ואוציטים. למידע על גדלי פיפטות נוספים, עיינו באתר היצרן. |
| ספק כוח לאלקטרופורזה של ג'לים | Bio-Rad | 1645050 | ספק כוח בסיסי PowerPac |
| PowerUp SYBR Green Master Mix, 2× | Applied Biosystems | 15350929 | משמש לבדיקות qPCR מיטוכונדריאליות וגרעיניות |
| פלואורומטר Qubit | Invitrogen | Q33238 | נעשה שימוש במכשיר ה-Qubit 1 Fluorometer שאינו משווק עוד; ניתן להשתמש בגרסה חדישה יותר או במכשיר מקביל לכימות פלואורומטרי של חומצות גרעין. |
| RNase A, 10 mg/mL | Thermo Fisher Scientific | 10753721 | יש לדלל לריכוז של 1 מג/מ"ל לפני השימוש |
| ספקטרופוטומטר | Thermo Fisher Scientific | NDULTRAGL | נעשה שימוש במכשיר NanoDrop OneC שהופסק ייצורו; ניתן להשתמש בגרסה חדישה יותר או בספקטרופוטומטר שווה ערך למדידת מיקרו-נפחים. |
| צבע ג'ל DNA מסוג SYBR Safe | Invitrogen | S33102 | עבור אלקטרופורזה של ג'ל אגרוז |
| מעגל תרמי (Thermal cycler) | Bio-Rad | 1861096 | מעגל תרמי T100 |
| פרוטינאז K תרמו-לבילי (0.120 U/µL) | New England Biolabs | P8111S/L | משמש לליזיס של ביצית בודדת |
| בופר Tris-acetate-EDTA (TAE), 50× | Fisher Scientific | BP1332-1 | דלל ל-1× עבור אלקטרופורזה של ג'ל אגרוזה |
| Tris-HCl (pH 8.0), 1 M | Fisher BioReagents | 10336763 | משמש להכנת ריאגנטים ולדילולים |
| Tween 20 | Fisher BioReagents | 11417160 | מרכיבי באפר ליזיס של ביציות (Oocyte Lysis Buffer) |
| סולם DNA אוניברסלי | Thermo Fisher Scientific | SM0333 | סולם DNA מוכן לשימוש GeneRuler (100–1,000 bp) |
| תא Wide Mini-Sub Cell GT | Bio-Rad | 1704468EDU | עבור אלקטרופורזה של ג'ל אגרוז |
| מגש ג'ל שקוף ל-UV עבור Wide Mini-Sub Cell GT (15 × 7 ס"מ) | Bio-Rad | 1704426 | עבור אלקטרופורזה של ג'ל אגרוז |
מקורות
- Dyall SD, Brown MT, Johnson PJ. Ancient invasions: from endosymbionts to organelles. Science. 2004;304:253-257. doi:10.1126/science.1094884.
- Pakendorf B, Stoneking M. Mitochondrial DNA and human evolution. Annu Rev Genomics Hum Genet. 2005;6:165-183. doi:10.1146/annurev.genom.6.080604.162249.
- Ng YS, Turnbull DM. Mitochondrial disease: genetics and management. J Neurol. 2016;263:179-191. doi:10.1007/s00415-015-7884-3.
- Shoubridge EA, Wai T. Mitochondrial DNA and the mammalian oocyte. In: St John JC, editor. Current Topics in Developmental Biology. Vol. 77: The Mitochondrion in the Germline and Early Development. San Diego (CA): Academic Press; 2007. p. 87-111. doi:10.1016/S0070-2153(06)77004-1.
- Fox EJ, Reid-Bayliss KS, Emond MJ, Loeb LA. Accuracy of next generation sequencing platforms. Next Gener Seq Appl. 2014;1:1000106. doi:10.4172/jngsa.1000106.
- Kennedy SR, et al. Detecting ultralow-frequency mutations by Duplex Sequencing. Nat Protoc. 2014;9:2586-2606. doi:10.1038/nprot.2014.170.
- Schmitt MW, et al. Detection of ultra-rare mutations by next-generation sequencing. Proc Natl Acad Sci U S A. 2012;109:14508-14513. doi:10.1073/pnas.1208715109.
- Stoler N, et al. Family reunion via error correction: an efficient analysis of duplex sequencing data. BMC Bioinformatics. 2020;21:96. doi:10.1186/s12859-020-3419-8.
- Abascal F, et al. Somatic mutation landscapes at single-molecule resolution. Nature. 2021;593:405-410. doi:10.1038/s41586-021-03477-4.
- The ESHRE Guideline Group on Ovarian Stimulation, Ata B, Bosch E, Broer S, Griesinger G, Grynberg M, et al. ESHRE guideline: ovarian stimulation for IVF/ICSI: an update in 2025. Hum Reprod. 2026;41:498-514. doi:10.1093/humrep/deag018.
- The ESHRE Working Group on Ultrasound in ART, et al. Recommendations for good practice in ultrasound: oocyte pick up. Hum Reprod Open. 2019;2019:hoz025. doi:10.1093/hropen/hoz025.
- Arbeithuber B, et al. Age-related accumulation of de novo mitochondrial mutations in mammalian oocytes and somatic tissues. PLoS Biol. 2020;18:e3000745. doi:10.1371/journal.pbio.3000745.
- Arbeithuber B, et al. Advanced age increases frequencies of de novo mitochondrial mutations in macaque oocytes and somatic tissues. Proc Natl Acad Sci U S A. 2022;119:e2118740119. doi:10.1073/pnas.2118740119.
- The Galaxy Community. The Galaxy platform for accessible, reproducible, and collaborative data analyses: 2024 update. Nucleic Acids Res. 2024;52:W83-W94. doi:10.1093/nar/gkae410.
- Stoler N, Arbeithuber B, Guiblet W, Makova KD, Nekrutenko A. Streamlined analysis of duplex sequencing data with Du Novo. Genome Biol. 2016;17:180. doi:10.1186/s13059-016-1039-4.
- Nekrutenko A, Stoler N. Calling very rare variants. Galaxy Training Network. Available from: https://training.galaxyproject.org/training-material/topics/variant-analysis/tutorials/dunovo/tutorial.html. Accessed July 25, 2026.
- Barnett DW, et al. BamTools: a C++ API and toolkit for analyzing and managing BAM files. Bioinformatics. 2011;27:1691-1692. doi:10.1093/bioinformatics/btr174.
- Illumina. Double sided size selection and bead clean up. Illumina Knowledge Base. Available from: https://knowledge.illumina.com/library-preparation/general-library-prep/library-preparation-general-library-prep-reference_material-list/000006157. Accessed July 25, 2026.
- Arbeithuber B, et al. Allele frequency selection and no age-related increase in human oocyte mitochondrial mutations. Sci Adv. 2025;11:eadw4954. doi:10.1126/sciadv.adw4954.
- Mertens J, et al. Mitochondrial DNA variants segregate during human preimplantation development into genetically different cell lineages that are maintained postnatally. Hum Mol Genet. 2022;31:3629-3642. doi:10.1093/hmg/ddac059.
- Mertens J, et al. Children born after assisted reproduction more commonly carry a mitochondrial genotype associating with low birthweight. Nat Commun. 2024;15:1232. doi:10.1038/s41467-024-45446-1.
- Van Der Kelen A, et al. The interplay between mitochondrial DNA genotypes, female infertility, ovarian response, and mutagenesis in oocytes. Hum Reprod Open. 2025;2025:hoae074. doi:10.1093/hropen/hoae074.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב