אלמנטים רגולטוריים מסוג cis המגזרים מרטרו-וירוסים אנדוגניים מווסתים את ביטוי הגנים בשלבים מוקדמים של העובר. פרוטוקול זה מתאר את מחיקתם באמצעות CRISPR-Cas9 בתאי גזע פלוריפוטנטיים נאיביים של בני אדם, וזאת כדי להעריך את תפקידם בבקרת ביטוי גנים ובתהליכי התפתחות סביב שלב ההשתבצות (peri-implantation).
מאמר שיטה
מחיקה גנטית של אלמנטים רגולטוריים בסיס (Cis-Regulatory Elements) לניתוח תפקוד הגנום הלא-מקודד במודלים אנושיים של טרום-השתרשות
91 צפיות
⸱
11 בספטמבר 2026
* These authors contributed equally
במאמר זה
סיכום
תקציר
אלמנטים של בקרה בציס (Cis-regulatory elements) מתאמים את ביטוי הגנים באופן מבוקר מרחבית וזמנית, ותורמים לביסוס מצבים תאיים מובחנים במהלך ההתפתחות. חלק ניכר מאלמנטים של בקרה בציס הפעילים באופן שעתוקי בעוברי פרימטים מקורם באינטגרציות רטרו-ויראליות עתיקות לקו הנבט. רטרו-וירוסים אנדוגניים אלה, הידועים גם כרטרו-טרנספוזונים עם חזרות טרמינליות ארוכות (long terminal repeat retrotransposons), שומרים על פעילות בקרה פנימית ולעתים קרובות הם ספציפיים למין, מה שהופך אותם למועמדים חזקים לבקרת היבטים של התפתחות עוברית המבדילים בין מינים. הגבלות אתיות ומשפטיות על מחקר בעוברי אדם הגבילו היסטורית חקירה ישירה של בקרה גנטית במהלך עובריות האדם (human embryogenesis). תאי גזע פלוריפוטנטיים נאיביים של אדם ומודלים תלת-מדיים של בלאסטוציסטים מבוססי תאי גזע מספקים מערכות חלופיות לחקר תהליכי התפתחות מוקדמים. פרוטוקול זה מתאר מחיקה של אלמנטים של בקרה בציס המגזורים מרטרו-וירוסים אנדוגניים בתאי גזע פלוריפוטנטיים נאיביים של אדם באמצעות CRISPR-Cas9. קומפלקסים של ריבנוקלאופרוטאין הכוללים Cas9 ו-single-guide RNA הרכבים מראש מועברים באמצעות נוקלאופקציה (nucleofection), ולאחריהם ביצוע שיבוט של תא בודד, גנוטיפינג מבוס PCR, ריצוף סנגר, הרחבה, הקפאה (cryopreservation) והערכת יציבות גנומית של השורות הערוכות. שיבוטי המחיקה שהתקבלו מסוג wild-type, הטרוזיגוטים והומוזיגוטים או המיזיגוטים מספקים פלטפורמה לבחינת התרומה של אלמנטים בודדים המגזורים מרטרו-וירוסים אנדוגניים לבקרה גנטית במודלים של אדם לפני השתבצות. שיטה זו מאפשרת בירור תפקודי ישיר של רצפים רגולטוריים לא-מקודדים הספציפיים למין, ותומכת בחקר מנגנוני שעתוק המעורבים בהתפתחות מוקדמת של בני אדם.
מבוא
בקרה מדויקת של ביטוי גנים במהלך ההתפתחות היא יסודית לביסוסם של מערכות ביולוגיות מורכבות. חלק ניכר ממידע רגולטורי זה מקודד על ידי אלמנטים רגולטוריים בסיס (cis-regulatory elements - CREs), שהם רצפי DNA שאינם מקודדים המכילים אתרי קישור לגורמי שעתוק השולטים בפעילות השעתוק1. במהלך embryogenesis של פרימטים, חלק נכבד מה-CREs הפעילים נגזר מרטרו-וירוסים אנדוגניים (ERVs), הידועים גם כרטרו-טרנספוזונים בעלי חזרות קצביות ארוכות (LTR)2,3. ERVs מקורם בזיהומים רטרו-וירוסליים עתיקים של תאי הנבט שהפכו לקבועים באוכלוסייה. לאורך זמן אבולוציוני, רוב ההחדרות של ERV צברו מוטציות ששיבשו את מסגרות הקריאה הפתוחות המקודדות לחלבונים ויראליים, מה שהוביל לעיתים קרובות להיווצרות של solo LTRs4. למרות ניוון זה, רצפים רבים הנגזרים מ-ERV שומרים על פעילות רגולטורית מולדת ולעיתים קרובות הם ספציפיים למין, מה שהופך אותם למועמדים חזקים להנעת תהליכי התפתחות השונים בין מינים. ERVs יכולים לתפקד כמעצבים (enhancers), כפרומוטורים או כאלמנטים של גבולות כרומטין ובכך לווסת תוכניות של ביטוי גנים וארגון תלת-מדי של הגנום5,6.
משפחות רבות של ERV צעירות מבחינה אבולוציונית הופכות לפעילות שעתוקית באופן תלוי-שלב במהלך ההתפתחות של יונקים לפני השתבצות. הפעלה זו מקוללת על ידי היפומתיליזציית DNA נרחבת המאפיינת את השלבים המוקדמים של העובר, אשר חושפת אתרי קישור של גורמי שעתוק בתוך ה-LTRs7,8,9,10. ראיות מצטברות מצביעות על כך שהקו-אופציה של ERVs כ-CREs תורמת באופן משמעותי לאמבריוגנזה של יונקים. בעכברים, אלמנטים של murine endogenous retrovirus-L מבוטאים מאוד בשלב התא השני ותורמים להפעלת הגנום של הזיגוט על ידי תפקוד כפרומוטורים של גנים1. הרטרוטרנספוזון הספציפי לעכבר MT2B2 מתפקד גם הוא כפרומוטור המניע ביטוי של איזופורם שמור של CDK2AP1 הדרוש להתרבות עוברית12. בבני אדם, משפחות ERV שונות יכולות לפעול כמגבירים (enhancers) או כפרומוטורים המווסתים את ביטוי הגנים של הטרופובלסט13. ERVs ממשפחת ה-human endogenous retrovirus K (HML-2), ובמיוחד תתי-הסוגים LTR5_Hs, הם פעילים שעתוקית משלב שמונת התאים ועד לשלב הבלסטוציסט9. אלמנטים של LTR5_Hs יכולים לתפקד כמגבירים14,15,16,17, ולפחות השבחה אחת ספציפית לבני אדם חיונית להתפתחות לפני השתבצות באמצעות הפעלת ZNF729, גורם שעתוק המווסת מאות פרומוטורים של גני בית (housekeeping genes) בתאי גזע פלוריפוטנטיים נאיביים של בני אדם (hnPSCs)14. יחד, ממצאים אלו מדגימים כי ERVs עיצבו מחדש רשתות ויסות גנטיות התפתחותיות ועשויים לתרום להיבטים ספציפיים למינים של התפתחות סביב השתבצות.
תאי גזע פלוריפוטנטיים נאיביים אנושיים (hnPSCs) דומים לאפיבלסט האנושי של שלב טרום-השתבצות מבחינת הטרנסקריפטום שלהם, מצב מתילציית ה-DNA, ובתאים נקביים, מצב האקטיבציה של כרומוזום X18. תרביית hnPSCs יציבה דורשת Leukemia inhibitory factor, את מעכב ה-mitogen-activated protein kinase שנקרא PD0325901, את מעכב ה-atypical protein kinase C שנקרא Gö6983, ועיכוב של נתיב השהאות Wnt, אשר מכונה באופן קולקטיבי תנאי תרבית PXGL19. תחת תנאים אלו, hnPSCs שומרים על היכולת להתמיין לשושלות של טרופובלסט והיפובלסט20,21,2. הם יכולים גם ליצור בלאסטואידים, מודלים תלת-מדיים מבוססי תאי גזע המשחזרים מאפיינים מרכזיים של הבלאסטוציסט האנושית23,24,25,26,27,28,29. בלאסטואידים מספקים מערכת ניסויית הניתנת להרחבה לבחינת מאפיינים ספציפיים לאדם של אמבריוגנזה מוקדמת, תוך הפחתת המגבלות האתיות והמשפטיות הקשורות לשימוש בעוברי אדם. כתוצאה מכך, hnPSCs ובלאסטואידים מציעים פלטפורמה בעלת ערך לבחינה תפקודית של רצפים רגולטוריים המעורבים בהתפתחות אנושית בשלבי טרום-השתבצות ומסביב להשתבצות (peri-implantation).
טכנולוגיית CRISPR-Cas9 (Clustered regularly interspaced short palindromic repeat-associated protein 9) מאפשרת עריכה ממוקדת של לוקוסים גנומיים בתאי יונקים ונמצאת בשימוש נרחב במחקרי גנומיקה פונקציונלית30. המערכת משתמשת ב-single-guide RNA (sgRNA), שאורכו בדרך כלל 17–24 זוגות בסיסים, כדי לכוון את Cas9 לרצף גנומי משלים הסמוך ל-protospacer-adjacent motif. לאחר מכן, Cas9 חותך את שני גדילי ה-DNA, מה שיוצר שבר דו-גדילי. בהיעדר תבנית תיקון הומולוגית, תיקון via חיבור קצוות לא הומולוגי (non-homologous end joining) עלול להוביל להחדרות או מחיקות של נוקלאוטידים30. כאשר שני sgRNAs מעוצבים כך שיקיפו CRE, חיתוך סימולטני יכול להסיר את הרצף המתווך וליצור אלל של אובדן תפקוד (loss-of-function) של ה-CRE. עם זאת, בחינה פונקציונלית של CREs ממקור ERV ב-hnPSCs נותרה מאתגרת מבחינה טכנית, כיוון שהעברה מבוססת פלסמיד עלולה להוביל לנצילות עריכה נמוכה, sgRNAs שאינם מוגנים רגישים לפירוק, ותרביות קונבנציונליות של hnPSC תלויות לעיתים קרובות בתאי מאכיל (feeder cells) של פיברובלאסטים עובריים של עכבר.
הפרוטוקול הנוכחי נותן מענה למגבלות אלו על ידי העברת קומפלקסים של ריבונוקלאו-פרוטאין Cas9-sgRNA שהורכבו מראש לתוך hnPSCs via נוקלאופקציה31,32. גישה זו מונעת אינטגרציה של פלסמידים, מגבילה את משך פעילות ה-Cas9, ומאפשרת מחיקה יעילה של CREs שמקורם ב-ERV. באמצעות תהליך עבודה זה, הושגו יעילי מחיקה מלאה של ERV של כ-10%–78.9%, כאשר מחיקות הומו-זיגוטיות או המי-זיגוטיות הושגו בממוצע של 43.6% מהקלונים שבודדו. קווי ה-hnPSC הערוכים שנוצרו יכולים לשמש לחקירת התרומה של אלמנטים רגולטוריים בודדים ממקור ERV לביטוי גנים ולפנוטיפים התפתחותיים מוקדמים (איור 1). החידוש בשיטה זו טמון בשילוב של עריכה גנומית מבוססת ריבונוקלאו-פרוטאין עם מודלים של תאי גזע פלוריפוטנטיים נאיביים אנושיים, כדי לאפשר בחינה תפקודית ישירה של אלמנטים רגולטוריים לא מקודדים ספציפיים למין במהלך ההתפתחות הטרום-שבילית האנושית.
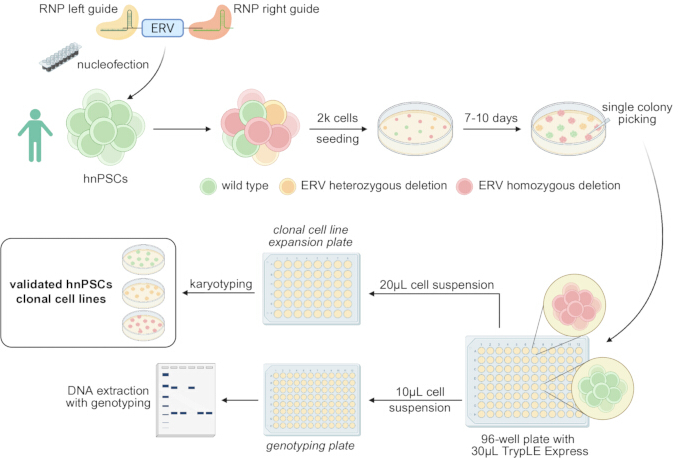
איור 1סקירה כללית של תהליך מחיקת ה-ERV בתאי גזע פלוריפוטנטיים נאיביים אנושיים. אלמנטים רגולטוריים מסוג cis שנגזרו מרטרו-וירוסים אנדוגניים (ERV) נמחקים באמצעות קומפלקסים של ריבונוקלאו-פרוטאין (RNP) המורכבים מ-Cas9 ו-sgRNA (single-guide RNA) זוגי, המועברים לתאי גזע פלוריפוטנטיים נאיביים של בן אדם (hnPSCs) באמצעות נוקלאופקציה. לאחר התאוששות וזריעה בצפיפות נמוכה, קולוניות בודדות מבודלות, מורחבות, עוברות גנוטיפינג וקריוטיפינג כדי לזהות שיבוטים (clones) עם מחיקה מסוג wild-type, הטרוזיגוטית והומוזיגוטית. אנא לחצו כאן כדי להצגת גרסה מורחבת של דמות זו.
פרוטוקול
קו תאי הגזע הפלוריפוטנטיים הנאיביים האנושיים PB04 נוצר על ידי תכנות מחדש של תאי דם פריפריים מתורמים מתנדבים שסיפקו הסכמה מדעת בכתב, בהתאם להנחיות המוסדיות והלאומיות הרלוונטיות, ובאישור ועדת האתיקה המוסדית הרלוונטית (המכון למדעי הרפואה של אוניברסיטת טוקיו, מספר אישור 21-68-0409).33תאים אלו עברו אימות STR ונבדקו באופן שגרתי לזיהום במייקופלזמה. כלי המחקר שנעשה בהם שימוש בפרוטוקול זה מפורטים ב- טבלת חומרים.
1. תרבית של תאי גזע פלוריפוטנטיים נאיביים אנושיים
- הכנת מצעי התרבית
הערה: יש להתחיל עם תאי גזע פלוריפוטנטיים נאיביים אנושיים (hnPSCs) המגודלים על שכבות מאכילה של פיברובלסטים עובריים של עכבר (MEF) שעברו אינאקטיבציה. יש לבצע מעבר (Passage) לתאים לפחות פעם אחת לאחר ההפשרה ולפני ביצוע עריכה גנומית.
הערה: יש לחמם ל-37 °C רק את נפח מצע ה-PXGL הדרוש לשימוש מיידי. אין לחמם את מלאי המצע שוב ושוב.- הכנת מצע בסיס N2B27 ומצע PXGL
- ערבבו 500 mL של DMEM/F-12 עם ריכוז גלוקוז גבוה עם 50 mL של מצע Neurobasal. הוסיפו L-glutamine לריכוז סופי של 2 mM ו-2-mercaptoethanol לריכוז סופי של 10 µM.
זהירות: יש לטפל ב-2-mercaptoethanol בהתאם לנהלי הבטיחות הכימית של המוסד. - הוסיפו 5 mL של תוסף N2, 10 mL של תוסף B27, ו-10 mL של תמיסת antibiotic-antimycotic, במידת הצורך. סננו את המצע באמצעות יחידת סינון בעלת גודל נקבים של 0.2 µm או 0.45 µm, במידת הצורך.
- שמרו את מצע הבסיס N2B27 שהתקבל ב-4 °C בחושך למשך עד חודש אחד.
- העריכו את נפח מצע ה-PXGL הדרוש לשבוע אחד. המסיפו למצע הבסיס N2B27 את החומרים 1 µM PD0325901, 2 µM XAV939, 2 µM Gö6983, ו-10 ng/mL recombinant human leukemia inhibitory factor.
- הוסיפו 10 µM Y-27632 למצע ה-PXGL בעת הפשרה, מעבר, נוקלאפקציה (nucleofecting) או זריעה של hnPSCs כתאים בודדים. שמרו את מצע ה-PXGL ב-4 °C בחושך למשך עד שבוע אחד.
- ערבבו 500 mL של DMEM/F-12 עם ריכוז גלוקוז גבוה עם 50 mL של מצע Neurobasal. הוסיפו L-glutamine לריכוז סופי של 2 mM ו-2-mercaptoethanol לריכוז סופי של 10 µM.
- הכנת מצע השטיפה
הערה: השתמשו במצע שטיפה המכיל bovine serum albumin (BSA) במהלך סב הצנטריפוגה כדי להפחית את אובדן ה-hnPSCs עקב היצמדות לכלי פלסטיק מתכלים.- הוסיפו BSA ל-50 mL של DMEM/F-12 כדי להגיע לריכוז סופי של 0.1%. שמרו את מצע השטיפה ב-4 °C למשך עד חודשיים.
- הכנת מצע MEF
- הוסיפו 50 mL של fetal bovine serum, 1 mM sodium pyruvate, ו-5 mL של תוסף L-glutamine מיוצב ל-500 mL של מצע Dulbecco’s modified Eagle עם ריכוז גלוקוז גבוה.
- הוסיפו תמיסת antibiotic-antimycotic, במידת הצורך. סננו את המצע באמצעות יחידת סינון בעלת גודל נקבים של 0.2 µm או 0.45 µm, במידת הצורך, ושמרו את מצע ה-MEF ב-4 °C למשך עד חודש אחד.
- הכנת מצע בסיס N2B27 ומצע PXGL
- הכנת שכבות מאכילה של MEF
הערה: תאי MEF מספקים תמיכה לצמיחת hnPSCs34. השתמשו ב-MEFs שעברו אינאקטיבציה על ידי הקרנת גמא או טיפול ב-mitomycin C. ניתן להפיק את ה-MEFs במעבדה35 או לרכוש אותם ממקור מסחרי. MEFs המופקים מעכברים מסוג CD1 או CF1 מתאימים לפרוטוקול זה. הניסויים המתוארים כאן בוצעו באמצעות CF1 MEFs שנרכשו.- הכינו את מספר בארות ה-MEF המצופות הדרושות 48 שעות לפני הפשרה או מעבר של ה-hnPSCs. צפו את משטח תרבית הרקמה ב-0.05–0.1 mL/cm2 של תמיסת ג'לטין 0.1% והדגירו ב-37 °C למשך 30 דקות.
- שאבו את תמיסת הג'לטין וזרוו 2–3 × 10⁴ MEFs שעברו אינאקטיבציה לכל cm2 במצע MEF.
- הדגירו את ה-MEFs ב-37 °C, 95% לחות, ו-5% CO₂ למשך לפחות 48 שעות לפני השימוש. החליפו את מצע ה-MEF כל 3 ימים כאשר שכבות המאכילה אינן בשימוש מיידי.
- השתמשו בשכבות המאכילה של ה-MEF תוך 7 ימים מהזריעה. בחנו את שכבות המאכילה לפני זריעת hnPSCs והשליכו בארות המראות התנתקות נרחבת או הידרדרות.
- מעבר (Passage) של hnPSCs
- שאבו את מצע ה-PXGL מתרבית ה-hnPSC. הוסיפו 0.05–0.1 mL/cm2 של ריאגנט לפירוק תאים והדגירו את התאים ב-37 °C למשך 5 דקות.
- פפיטטו בעדינות את המושבות מספר פעמים באמצעות פפיטה של 1,0 µL כדי ליצור תגסוס תאים. העבירו את התגסוס למבחנה קונוית של 15 mL המכילה 5–10 mL של מצע שטיפה והפכו את המבחנה שלוש פעמים.
- סבבו את התאים בצנטריפוגה ב-250 × g למשך 3 דקות. במהלך הסב, שאבו את המצע משכבת מאכילה מוכנה של MEF, שטפו את שכבת המאכילה פעם אחת עם phosphate-buffered saline, ושאבו את תמיסת השטיפה.
- שאבו את מצע השטיפה ממעל למשקע (pellet) של ה-hnPSC ללא הפרעה למשקע. השביו את התאים בתגסוס במצע PXGL המכיל 10 µM Y-27632 וזרוו את התאים ביחס פיצול (split ratio) של 1:3 או 1:4 על שכבת המאכילה המוכנה של MEF.
- בצעו מעבר לתאים כל 3–4 ימים והדגירו אותם ב-37 °C, 7% CO₂, ו-5% O₂.
2. זיהוי ותכנון מחיקה של אלמנט בקרה במיקום cis שמקורו ברטרו-וירוס אנדוגני
הערה: הפרוטוקול הבא מותאם לאלמנטים רגולטוריים של cis (CREs) שמקורם ברטרו-וירוסים אנדוגניים (ERV), אך ניתן להתאימו ל-CREs מוגדרים אחרים.
- זיהוי הקואורדינטות הגנומיות של ה-ERV
- בחרו מועמד ERV בהתאם לשאלה הביולוגית ולראיות הזמינות לפעילות של פרומוטור, אנהנסר (enhancer) או גבול כרומטין.
- פתחו את ה-UCSC Genome Browser (גישה ב-15 במאי 2026), בחרו את המין ואת הרכבת הגנום המתאימים36, ונווטו לסעיף ה-Repeats.
- הגדירו את ערוץ ה-RepeatMasker למצב Full (עדכון אחרון של הערוץ ב-UCSC ב-18 באוקטובר 2022). רעננו את הדפדפן ואתרו את ה-ERV המועמד, המוצג כ-LTR retrotransposon.
הערה: RepeatMasker מזהה ומסווג אלמנטים ניתנים להעברה (transposable elements) באמצעות משאבים מאושרים כגון RepBase ו-Dfam37–39. - בחרו את ה-LTR המועמד כדי להציג את הקואורדינטות הגנומיות שלו. רשמו את קואורדינטות ה-ERV ואת אזורי ה-10 bp הנמצאים מיד במעלה הזרם (upstream) ובמורד הזרם (downstream) של האלמנט.
הערה: עבור אלמנט LTR5_Hs הממוקם ב-chr1:20763512–207636074 בהרכבה hg38, השתמשו ב-chr1:207635012–207635112 לתכנון המדריך השמאלי וב-chr1:207636074–207636174 לתכנון המדריך הימני.
- תכנון ה-guide RNAs באמצעות Benchling
- פתחו פרויקט ב-Benchling (גישה ב-15 במאי 2026). בחרו ב-+ , נווטו ל-CRISPR ובחרו ב-CRISPR guides.
- בחרו ב-Import from chromosomal coordinates, בחרו את הרכבת הגנום המתאימה והזינו את הקואורדינטות של אזור ה-10 bp במעלה הזרם של ה-ERV.
- בחרו ב-single guide כסוג התכנון והגדירו את אורך המדריך ל-20 bp. בחרו את ה-protospacer-adjacent motif התואם לנוקלאז Cas9 והשתמשו ב-NGG בעת שימוש ב-Streptococcus pyogenes Cas9.
- הפעילו את Include masked regions in off-target search תחת ההגדרות המתקדמות.
הערה: השמיטו guide RNAs שחזויים לטרגוט רצפים חוזרים מרובי עותקים. שבירה במספר לוקוסים גנומיים עלולה להפחית את חיוניות התאים ולסבך את הפרשנות. - בדקו את האזור הגנומי בדפדפן הגנום ואשרו שרצף המדריך אינו חופף לאלמנט חוזר סמוך. בחרו ב-Finish.
- נווטו למפת הרצף (Sequence map) ובחרו את הרצף המלא. בחרו ב-Design CRISPR, ולאחר מכן ב-+.
- בחרו מדריך עם ציון on-target חזוי גבוה וציון off-target חזוי נמוך40. תכננו את המדריך שנבחר במעלה הזרם כמדריך השמאלי וחזרו על הפרוצדורה באמצעות אזור ה-10 bp במורד הזרם של ה-ERV כדי להשיג את המדריך הימני.
- בצעו ניתוח off-target נוסף in silico באמצעות COSMID41 (גישה ב-15 במאי 2026). השמיטו מדריכים שחזויים לטרגוט גנים מקודדים, CREs אחרים או אלמנטים חוזרים מרובי עותקים.
- תכנון ה-guide RNAs באמצעות CRISPOR
- פתחו את אזור ה-10 bp במעלה הזרם של ה-ERV ב-UCSC Genome Browser. בחרו ב-View, ולאחר מכן ב-DNA sequence, ובחרו ב-Get DNA כדי לקבל את רצף מעלה הזרם בפורמט FASTA.
- פתחו את CRISPOR (גרסה 5.2)42 והדביקו את רצף מעלה הזרם בפורמט FASTA לשדה Step 1.
- בחרו את הרכבת הגנום המתאימה תחת Step 2 ובחרו ב-hg38 בעת עבודה עם הלוקוס האנושי בדוגמה. בחרו את ה-protospacer-adjacent motif המתאים תחת Step 3 ושלחו את הרצף לניתוח.
- סקרו את המדריכים המועמדים המדורגים לפי ציון ספציפיות ובחרו מדריך עם ציון ספציפיות גבוה ויעילות חזויה מתאימה.
- תכננו את המדריך שנבחר כמדריך השמאלי. חזרו על שלבים 2.3.1–2.3.4 באמצעות אזור ה-10 bp במורד הזרם של ה-ERV כדי להשיג את המדריך הימני.
- השיגו כל מדריך כ-single-guide RNA שבו ה-CRISPR RNA היברידיז לפני כן ל-trans-activating CRISPR RNA.
- תכנון פריימרים ל-PCR לצורך גנוטיפינג
- הרחיבו את המרווח הגנומי של ה-ERV בכ-50 bp במעלה הזרם וב-50 bp במורד הזרם.
הערה: עבור הלוקוס בדוגמה chr1:20763512–207636074, השתמשו במרווח המורחב chr1:207634612–207636574. - ייבאו את הרצף המורחב ל-Primer3 (גרסה 4.1.0)43.
- הגדירו את אורכי הפריימר המינימלי, האופטימלי והמקסימלי ל-18, 20 ו-25 נוקלאוטידים, בהתאמה; את טמפרטורות ההמסה המינימלית, האופטימלית והמקסימלית ל-57 °C, 59 °C ו-62 °C, בהתאמה; ואת תכני ה-GC המינימליים, האופטימליים והמקסימליים ל-30%, 50% ו-70%, בהתאמה.
- הגדירו את טווח גודל המוצר כדי לייצר אמפליקון המקיף את ה-ERV המלא ואת שני אתרי השבירה של ה-guide-RNA. תכננו פריימר אחד במעלה הזרם ופריימר אחד במורד הזרם של ה-ERV המטרגט.
- אשרו שניתן להבחין בין מוצרי ה-wild-type למוצרי המחיקה (deletion) הצפויים באמצעות אלקטרופורזה של ג'ל אגרוז. סמנו את זוג הפריימרים כפריימרים 1 ו-2, כפי שמוצג ב-איור 2A.
- הרחיבו את המרווח הגנומי של ה-ERV בכ-50 bp במעלה הזרם וב-50 bp במורד הזרם.
3. ביצוע נוקלאופקציה (Nucleofection) של ה-guide RNAs הזוגיים לתוך hnPSCs
- הכינו פלטה של 12 בארות המכילה שכבות מאכיל של MEF שעברו אינאקטיבציה 48 שעות לפני הנוקלאופקציה (nucleofection). חשבו את מספר תגובות הנוקלאופקציה הנדרשות והשתמשו בתגובה אחת עבור כל זוג של מדריך שמאלי (left-guide) ומדריך ימני (right-guide).
- עבור כל תגובה, ערבבו 3.6 µL של תוסף נוקלאופקציה עם 16.4 µL של תמיסת נוקלאופקציה והמתינו עד שהתערובת תגיע לטמפרטורת החדר.
- הכינו את קומפלקסי הריבנוקלאופרוטאין של Cas9 עם המדריך השמאלי והמדריך הימני במבחנות נפרדות. עבור כל מדריך, ערבבו 2.9 µL של phosphate-buffered saline, 0.6 µL של sgRNA בריכוז 10 µM, ו-0.5 µL של נוקלאז Cas9 בעל נאמנות גבוהה (high-fidelity) בריכוז 62 µM, והדגירו בטמפרטורת החדר למשך 10–20 דקות.
- בזמן הדגרת הריבנוקלאופרוטאין, שאבו את מצע התרבית מה-hnPSCs, הוסיפו כמות מספקת של ריאגנט לפירוק תאים כדי לכסות את התאים, והדגירו ב-37 °C למשך 5 דקות.
- הוסיפו 5 mL של מצע שטיפה ואספו את התאים המפורקים. סבבו בצנטריפוגה במהירות של 250 × g למשך 3 דקות, שאבו את העלייה (supernatant), והשביו בעדינות את המשקע (pellet) ב-2 mL של מצע PXGL המכיל 10 µM Y-27632.
- ספרו 2–3 × 10⁵ תאים עבור כל תגובת נוקלאופקציה. סבבו את מספר התאים הנדרש בצנטריפוגה במהירות של 250 × g למשך 3 דקות, שאבו את העלייה לחלוטין, והסירו נוזלים שנותרו באמצעות טיפ של פיפט של 10 µL מבלי להפריע למשקע.
הערה: אל תבצעו דילול של MEF לפני הנוקלאופקציה. ספרו את תערובת התאים המפורקים כ-hnPSCs יחד עם שאריות ה-MEFs. - ערבבו 2 µL של קומפלקס Cas9 עם המדריך השמאלי עם 2 µL של קומפלקס Cas9 עם המדריך הימני ועזבו באמצעות פיפוט חמש פעמים. הוסיפו 4 µL מתערובת הריבנוקלאופרוטאין המשולבת ל-20 µL של תמיסת הנוקלאופקציה.
- השביו את משקע ה-hnPSC בתערובת הנוקלאופקציה המלאה ללא יצירת בועות. העבירו את התרחיף לבאר אחת של מיקרו-קווקט (microcuvette) לנוקלאופקציה, ולאחר מכן הקישו בעדינות על הקווקט כדי לוודא שהנוזל מכסה את התחתית.
הערה: המשיכו מיד לאחר השביה של התאים. עבדו לא יותר משתי תגובות בו-זמנית. - בצעו נוקלאופקציה לתאים באמצעות תוכנית P3 Primary Cell DN-10. השביו מיד את התאים שעברו נוקלאופקציה במצע PXGL שחומם מראש ומכיל 10 µM Y-27632.
- זריעו את התאים לבאר אחת בפלטת מאכיל MEF של 12 בארות שהוכנה מראש, והזיזו את הפלטה בעדינות בתבנית בצורת T כדי לפזר את התאים באופן שווה.
- הדגירו את התאים למשך יומיים לפחות לפני תחילת הגזירה הקלונלית (clonal derivation). שמרו מאגר נפרד של hnPSCs שלא עברו עריכה וגזרו קווים קלונליים מסוג wild-type במקביל.
4. הפקת שורות תאי hnPSC קלונאליות
- הכינו צלחת 10 cm המכילה שכבת מזיני MEF שעברו אינאקטיבציה, 48 שעות לפני זריעת תאים בודדים.
- שאבו את מצע הגידול מתרביות ה-hnPSC שעברו נוקלאופקציה ומתרביות wild-type מקבילות. הוסיפו ריאגנט לפירוק תאים והדגירו את התאים ב-37 °C למשך 5 דקות.
- הוסיפו 5 mL של מצע שטיפה ואספו את התאים המפורקים. סובבו את התאים בצנטריפוגה במהירות של 250 × g למשך 3 דקות, שאבו את עליון הנוזל (supernatant), והשעיו את התאים באופן יסודי ב-40 µL של מצע PXGL המכיל 10 µM Y-27632.
הערה: צרו סספנסיה מלאה של תאים בודדים. פירוק לא מלא עלול להוביל להיווצרות של מושבות המכילות גנוטיפים מעורבים. - ספרו את התאים וזרעו כ-2,0 תאים על צלחת מזיני MEF 10 cm שהוכנה מראש, בתוך מצע PXGL המכיל 10 µM Y-27632. פזרו את התאים באופן שווה כדי למזער מגע בין מושבות המתפתחות.
- חלקו את שארית סספנסיית התאים לשני חלקים. הקפיאו חלק אחד כגיבוי, ובחלק השני בודדו DNA גנומי לצורך גנוטיפינג של האוכלוסייה הכוללת (bulk-population genotyping).
- גדלו את התאים שנזרעו בדלילות למשך 7–10 ימים. אין להחליף את המצע ביום הראשון לאחר הזריעה; בימים 2–4, החליפו מדי יום 3 mL מצע ב-3 mL מצע PXGL טרי, ומיום 5 ואילך, החליפו מחצית מהמצע מדי יום. בחנו את התרבית מדי יום ועברו לבחירת מושבות (colony picking) כאשר ניתן להבחין במושבות של תאים בודדים המופרדות מרחבית.
הערה: התאימו את תקופת הגידול בהתאם לקצב הגדילה של קו ה-hnPSC.
5. ביצוע גנוטיפינג בשיטה קולקטיבית (bulk genotyping) של אוכלוסיות הטיפוס הפראי והאוכלוסיות הערוכות
הערה: השתמשו בערכה להפקת DNA גנומי כדי להפיק DNA גנומי מהאוכלוסייה הכוללת. ייתכן שיה צורך בבדיקת DNA פולימרזים שונים כדי למטב את תגובות ה-PCR הללו. עבור הניסויים המתוארים כאן, נעשה שימוש שגרתי ב-master mix של DNA פולימרז בעל נאמנות גבוהה (high-fidelity).
- בודד DNA גנומי מאוכלוסיות התאים של סוג הבר (wild-type) והתאים הערוכים באמצעות ערכה להפקת DNA גנומי.
- בצע הגברה של האזור הגנומי המטרה באמצעות PCR עם פריימרים 1 ו-2 ו-DNA polymerase מתאים. השתמש בתערובת master mix של DNA polymerase בעלת נאמנות גבוהה (high-fidelity) בנפח תגובה כולל של 20 µL המכיל 10 µL של 2× master mix, 7 µL של H₂O, 0.5 µL של 10 µM פריימר 1, 0.5 µL של 10 µM פריימר 2, ו-2 µL של DNA גנומי בריכוז של כ-50 ng/µL. עבור ה-PCR המוצג ב-איור 2 המתייחס לאלמנט LTR5_Hs הממוקם בקואורדינטות chr1:207635112–207636074 (hg38), רצפי הפריימרים היו CCCCTCCAAGATGACCAGTT (פריימר 1) ו-GGCCTCGCAAATCTTAACCC (פריימר 2). פרמטרי המחזורים היו 98 °C (30 s), 30 מחזורים של 98 °C (10 s), 64 °C (30 s), ו-72 °C (45 s), ולאחריהם שלב הארכה סופי ב-72 °C למשך 10 min.
- הוסף DNA גנומי מאוכלוסיית סוג הבר כביקורת.
- הפרד את תוצרי ה-PCR באמצעות אלקטרופורזה על ג'ל אגרוז בריכוז 1% הצבוע בצבע DNA בטוח בבופר TAE (Tris-acetate-EDTA). הרץ את הג'ל במתח של 80 V למשך כ-45 min. הוסף DNA ladder במסלול הראשון להערכת גודל הפסים.
- דמה את פסי ה-DNA שהוגברו באמצעות מערכת דיגיטלית להדמיית ג'לים.
- השווה בין התוצרים שהתקבלו מאוכלוסיות סוג הבר והאוכלוסיות הערוכות. ב-איור 2B, פריימרים 1 ו-2 מגבירים פס של 1,468 bp מאללים של סוג הבר ופס של 50 bp מאללים ערוכים.
- וודא שזוג הפריימרים מייצר תוצרי אורך מלא ותוצרי מחיקה (deletion) שניתן להבחין ביניהם לפני המעבר לבחירת מושבות.
- תכנן מחדש את ה-guide RNAs או בצע אופטימיזציה לתנאי הנוקלאפקציה כאשר לא מזוהה תוצר מחיקה.
6. בידוד והרחבת מושבות מתא בודד
הערה: קבעו את מספר המושבות לבחירה בהתאם ל-PCR של האוכלוסייה הכוללת. התחילו עם לפחות 48 מושבות ערוכות כאשר מזוהה תוצר מחיקה ברור. בחרו כ-שמונה מושבות מאוכלוסיית ה-wild-type המקבילה. שאפו להשיג עודף של שיבוטים (לדוגמה, 4 שיבוטי wild-type, 5 הומוזיגוטים ו-3 הטרוזיגוטים).
- הכנת הפלטות והריאגנטים
- קבעו את מספר המושבות שיועברו לעיבוד והכינו את מספר בארי ה-MEF feeder-layer התואם בפלטה בעלת 48 בארים לפחות 48 h לפני בחירת המושבות. ביום בחירת המושבות, שאבו את מצע ה-MEF, שטפו כל באר פעם אחת עם phosphate-buffered saline, שאבו את תמיסת השטיפה, והוסיפו מצע PXGL המכיל 10 µM Y-27632.
- הוסיפו 30 µL של ריאגנט לפירוק תאים (cell-dissociation reagent) למספר הבארים הנדרש בפלטת 96 בארים בעלת תחתית עגולה. דללו את ריאגנט המטריקס החוץ-תאי (extracellular matrix reagent) ביחס של 1:4 ב-DMEM/F-12 קר והכינו את מספר הבארים הנדרש בפלטת 96 בארים שנייה עם מצע PXGL המכיל 10 µM Y-27632. הוסיפו את ריאגנט המטריקס החוץ-תאי המדולל לכל באר כדי להגיע לריכוז סופי של 20 µL/mL.
הערה: השתמשו בפלטת 96 בארים זו, שהיא ללא תאי מאכילה (feeder-free), לצורך גנוטיפינג כדי למנוע הגברה של DNA גנומי של עכבר. - טפטפו טיפות של כ-40 µL של מצע שטיפה על פני השטח הפנימיים של מכסה סטרילי של צלחת 10 cm. הניחו את פלטת הפירוק, פלטת ההתרחבות, פלטת הגנוטיפינג ומכסה הצלחת בתוך קבינת בטיחות ביולוגית.
- בחירת המושבות
הערה: בצעו את בחירת המושבות תחת מיקרוסקופ בתוך קבינת בטיחות ביולוגית. עיבדו את המושבות בקבוצות של שמונה כאשר אתם משתמשים בפיפט עם מרווח קצוות מתכוונן (adjustable tip-spacing pipette).- כווןו פיפט ל-20 µL והרכיבו קצה פיפט סטרילי. הכינו את הקצה על ידי טבילה בטיפת מצע שטיפה וביצוע שתי פעולות פיפטינג.
- זהו מושבה מבודדת מרחבית שנראית כמי שהגיעה מתא בודד. הימנעו ממושבות שנוגעות במושבות סמוכות או מכילות תת-מושבות נפרדות הנראות לעין, ובחרו מושבות המייצגות את טווח הגדלים והמורפולוגיות הקיימים בתרבית.
- גרדו בעדינות מתחת למושבה עם קצה הפיפט המוכנה, שאבו את המושבה שהופרדה, והעבירו אותה לבאר אחת בפלטת 96 הבארים בעלת התחתית העגולה המכילה 30 µL של ריאגנט לפירוק תאים. חזרו על הפעולה עד ששמונה מושבות הועברו לעמודה אחת בפלטה.
- דגרו את המושבות בריאגנט לפירוק התאים למשך 5–10 min ב-37 °C. כווןו פיפט עם מרווח קצוות מתכוונן למרווח המתאים לפלטת 96 בארים ופרקו כל מושבה על ידי ביצוע פיפטינג כ-15 פעמים.
- בחנו את הבארים במיקרוסקופ ואשרו שהמושבות פורקו. שאבו 20 µL מכל תמיסת מושבה מפורקת, התאימו את מרווח הפיפט לפורמט של פלטת 48 בארים, והעבירו את התמיסה לבאר ה-MEF התואמת בפלטת ההתרחבות הקלונלית.
- שאבו את השארית של כ-10 µL מכל תמיסת מושבה, התאימו את מרווח הפיפט לפורמט של פלטת 96 בארים, והעבירו את התמיסה לבאר התואמת בפלטת הגנוטיפינג ללא תאי המאכילה.
- חזרו על הפרוצדורה עד למספר הנדרש של מושבות ערוכות (edited) ומושבות מסוג wild-type שנבחרו. החזירו את פלטות ההתרחבות והגנוטיפינג לאינקובטור.
7. טיפוס גנוטי ושימור של קווי תאים קלונאליים
הערה: השתמש בריאגנט למיצוי מהיר של DNA גנומי במקום בערכה בעת עיבוד של שיבוטים רבים.
- מיצוי DNA גנומי
- דגרו את פלטת הגנוטיפיקה למשך 24–48 שעות לאחר ביצוע בחירת המושבות (colony picking) ואשרו כי נראה מספר מספיק של תאים צמודים בכל באר. שאבו את המצע והוסיפו 20 µL של תמיסה למיצוי מהיר של DNA גנומי לכל באר.
- דגרו את הפלטה בטמפרטורת החדר למשך 5 דקות והעבירו את הנפח המלא מכל באר לבאר התואמת בפלטת PCR. אטמו את פלטת ה-PCR בעזרת רדיד אלומיניום.
- דגרו את הפלטה בטמפרטורה של 65 °C למשך 6 דקות, ולאחר מכן ב-98 °C למשך 2 דקות. השתמשו ב-2–4 µL מהליזאט שהתקבל ישירות כתבנית DNA עבור ה-PCR.
- זיהוי ותיקוף של השיבוטים הערוכים
- בצעו הגברה של האזור הגנומי המיועד באמצעות פריימרים 1 ו-2 תחת תנאי ה-PCR ומחזורי התגובה שתוארו קודם לכן. כללו DNA משיבט wild-type לא ערוך ומאוכלוסיית bulk ערוכה כביקורות.
- הפרידו את תוצרי ה-PCR באמצעות אלקטרופורזה בג'ל אגרוז תחת התנאים המפורטים בשלבים 5.4–5.5. השוו את גדלי פסי ה-PCR שהתקבלו מהקוים השיבוטיים לביקורות של ה-wild-type ואוכלוסיית ה-bulk הערוכה, כפי שמוצג ב-איור 2C.
- גזרו את פסי ה-PCR הרלוונטיים באמצעות סכין מנתח נקייה וטהרו את ה-DNA מתוך מקטעי הג'ל הגזורים באמצעות קיט. שלחו את תוצרי ה-PCR המטוהרים לריצוף סנגר (Sanger sequencing) לספק ריצוף מתאים, בצעו יישור (align) של תוצאות הריצוף מול רצף הייחוס, ואשרו את נקודת החיבור של המחיקה (deletion junction) ואת הגנוטיפ של כל שיבט. השליכו או העריכו מחדש שיבטים המייצרים תוצרי PCR בלתי צפויים או תוצאות ריצוף מעורפלות.
- הרחבה, הקפאה (cryopreservation) ובקרת איכות של השיבטים המתוקפים
- זהו את הבארים התואמות בפלטת ההרחבה השיבוטית לאחר אישור הגנוטיפ. הרחבו לפחות שני שיבטים ערוכים שהופקו באופן עצמאי ומספר שיבטי wild-type שהופקו במקביל באמצעות אותו הליך שיבוט של תא בודד.
- הקפיאו מספר מספיק של מבחנות מכל שיבט ערוך ושיבט wild-type מתוקף לפני תחילת ניסויי המשך. שמרו את אוכלוסיית ה-bulk הערוכה כגיבוי עד שהקוים השיבוטיים הנדרשים יתוקפו ויוקפאו.
- בצעו אנליזת קריוטיפ או הערכה מאושרת אחרת של יציבות גנומית בשיבטי ה-hnPSC שנבחרו. ודאו כי השיבטים הנבחרים שומרים על המורפולוגיה ומאפייני הגדילה הצפויים של hnPSC לפני השימוש בהם בניסויי המשך.
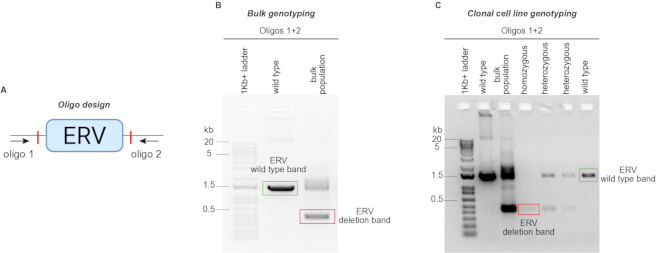
איור 2הערכה מבוססת PCR של מחיקת ERV. (A(תכנון הפריימרים לגנוטיפינג הממוקמים במעלה ובמורם של ה-ERV המיועד).B) PCR מייצג של אוכלוסיית מסה (bulk-population), המראה את המוצר מסוג הבר (wild-type) באורכו המלא ואת מוצר המחיקה הקטן יותר. זיהוי מוצר המחיקה מאשר עריכה מוצלחת ומסייע בקביעת מספר המושבות שייבחרו לסריקה קלונלית. (C) טיפוס גנטי (Genotyping) מייצג ב-PCR של קווי תאים קלונאליים בודדים לפני ריצוף סנגר (Sanger sequencing). קלונים מסוג בר (Wild-type) מייצרים את המוצר באורכו המלא, קלונים הטרוזיגוטים מייצרים הן את המוצר באורכו המלא והן מוצרי מחיקה (deletion), וקלונים הומוזיגוטים למחיקה מייצרים רק את מוצר המחיקה הקטן יותר. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
תוצאות
סבב העבודה מאפשר יצירה של שורות תאי גזע פלוריפוטנטיים נאיביים אנושיים (hnPSC) קלונאליים הנושאים מחיקות ממוקדות של אלמנטים רגולטוריים מסוג cis (CREs) המופקים מרטרו-וירוסים אנדוגניים (ERV). כפי שמסוכם ב-איור 1, RNA מנחה יחיד (sgRNA) בזוגות מתוכנן כך שיקיף את ה-ERV הרלוונטי, מורכב בנפרד עם Cas9, משולב לפני נוקלאופקציה, ומוחדר לתוך hnPSCs. לאחר ההתאוששות, האוכלוסייה הערוכה נזרעה בצפיפות נמוכה כדי לאפשר היווצרות ובידוד של מושבות שנוצרו מתאים בודדים.
ביצוע PCR לאוכלוסייה כוללת (Bulk-population PCR) מספק אינדיקציה ראשונית לשאלה האם המחיקה המתוכננת התרחשה. פריימרים הממוקמים מחוץ לשני אתרי החיתוך של ה-sgRNA מגבירים תוצר גדול יותר מהאלל מסוג הבר (wild-type) ותוצר קטן יותר מהאלל עם המחיקה (איור 2A, B). זיהוי של שני התוצרים באוכלוסייה הערוכה מעיד על כך שהתרבית מכילה תערובת של תאים שלא נערכו ותאים שעברו עריכה. אי-זיהוי של תוצר המחיקה מרמז על עריכה לא יעילה ומצביע על כך שיש לבחון מחדש את עיצוב המדריכים (guide design), את הרכבת הריבונוקלאיפרוטאין או את תנאי הנוקלאופקציה לפני ביצוע ברירה נרחבת של מושבות. טיפוס גנטי (Genotyping) באמצעות PCR של שיבוטים בודדים מבדיל בין גנוטיפים של סוג בר, הטרוזיגוטים והומוזיגוטים למחיקה (איור 2C). שיבוטי סוג בר מייצרים רק את התוצר באורך המלא, שיבוטים הטרוזיגוטים מייצרים הן את התוצר באורך המלא והן את תוצר המחיקה, ושיבוטים הומוזיגוטים למחיקה מייצרים רק את תוצר המחיקה הקטן יותר. ריצוף סנגר (Sanger sequencing) של תוצרי ה-PCR מאשר את נקודת החיבור הצפויה של המחיקה ואת זהותו של האלל שהוגבר.
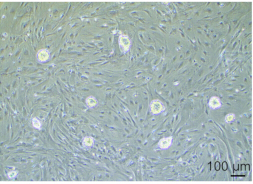
מושבות של תא בודד נראות בדרך כלל לאחר 7–10 ימים של תרבית וניתן לזהותן על פי ההפרדה המרחבית והמורפולוגיה הדחוסה שלהן (איור 3). יש לבחור מושבות על פני טווח הגדלים והמורפולוגיות שנצפו, כיוון שמחיקה של אלמנט בקרה תפקודי עלולה לשנות את התנהגות השגשוג או הדיפרנציאציה. יש להימנע ממושבות הנובעות מתאים חופפים או מתאים שלא הופרדו במלואם, שכן הן עלולות להכיל גנוטיפים מעורבים.
 0
איור 3מורפולוגיה מייצגת של מושבות hnPSC לפני בחירת מושבות. תמונת מיקרוסקופיה בשדה בהיר של מושבות hnPSC המופרדות מרחבית בשלב המשמש לבידוד קלונאלי. סרגל קנה מידה = 100 µm. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
בכלל לוקסי ERV שנבדקו, תדרי המחיקה המלאה נעו בין 10%–78.9% מהשבטי hnPSC שבודדו, כאשר תדרי המחיקה ההומוזיגוטית או ההמיזיגוטית הממוצעים והחציוניים היו 43.6% ו-45.8%, בהתאמה (טבלה 1). השונות שנצפתה משקפת ככל הנראה הבדלים ספציפיים ללוקוס בפעילות המדריך, נגישות הכרומטין, הרקע של שורת התאים ותנאי הגידול. הפקה מקבילה של שבטי פרא (wild-type) מספקת ביקורות שעברו את אותה היסטוריה של שיבוט תא בודד, הרחבה ותרבית כמו השבטים הערוכים.
| מדריך שמאלי | מדריך נכון | פריימר PCR קדמי | פריימר PCR הפוך | שבטים שנבחרו | סוג בר | הטרו- מחיקה זיגוטית | קו- מחיקה מלאה | ביטול- התוצאה הרצויה- סדר מדידות | יעיל | פסים שאינם נראים בבירור | % הטרוגניות זיגוטי | % הומוגניזציה זיגוטי | ||||
| TAATGACCG TGTAATTTATA | AACAGCCATG ATGATGG | CCCCTCCAAG ATGACCAGTT | GGCCTCGCAA ATCTTAACCC | 24 | 6 | 6 | 6 (Homo זיגוטי (zygous) | 1 | 13 | 5 | 46.2 | 31.6 | ||||
| TTGATTTAGA AAGATCAGTG | TCTGACAGC ACTGATCTGAA | CCCCAACCC ACCATTACCTA | TTGGGAGCTG TCTTGCCTAA | 24 | 3 | 3 | 1 (Homo זיגוטי | 0 | 6 | 7 | 50.0 | 64.7 | ||||
| AGGCAGTCCT TGTCCCACAG | CTAGAAA AGCATCCACGT | CTACCTTGGA GCCCCTTC | TCTCCCTCCTT CTCTGCT | 24 | 1 | 4 | 12 (Homo זיגוטי (zygous) | 3 | 8 | 4 | 50.0 | 60.0 | ||||
| TTACTAGTTAT TGAGTGAAG | TGTATGTGT CCTCAATTGTG | TTGGTCACT TGGCATTTGTG | TCCCCTTGTT CACCTTGACT | 48 | 1 | 2 | 15 (Homo זיגוטי | 1 | 4 | 29 | 50.0 | 78.9 | ||||
| CCAAGTTAGG TGGCAAGTCC | ATGGATGACT ATCAGTAATA | CCATCTGTGA GCGCTTTTGG | GGGTTTGAG TCCCTGCCATT | 24 | 15 | 0 | 2 (Homo זיגוטי (zygous) | 3 | 18 | 4 | 0.0 | 10.0 | ||||
| TCAATGCAGT GTTAGATTCC | GGAGGGAGT CTGAGTATTCG | CTGAGTGACG CAGCTGGATA | CAAGACTGCC TCACAC | 48 | 26 | 13 | 6 (Homo זיגוטי (zygous) | 1 | 40 | 2 | 32.5 | 13.0 | ||||
| TAACCAATAGA ATGTGGCAA | GAATGTCT CCTTGAAAGA | TGGCTCCCA ACATCCCAAT | AACGCTTGAG GGGAATGGAT | 48 | 14 | לא זמין (המי זיגוטי (zygous) | 4 (חצי זיגוטי (zygous) | 1 | 15 | 29 | לא זמין | 21.1 | ||||
| CCTTTCCAATA TTTATGCCT | AAATATTAAC AAGTGCAATA | ACTTTGAGG AGAATGGGCATC | GGTGTTTATT CCAGGGACGC | 24 | 4 | לא רלוונטי (חצי זיגוטי | 9 (המיי זיגוטי (zygous) | 0 | 4 | 11 | לא זמין | 69.2 | ||||
טבלה 1: יעילות מחיקה גנטית של ERVs. הנתונים מוצגים עבור ERVs השייכים למשפחת LTR5_Hs. קווי תאים קלונאליים נוצרו כדי לבחון האם אלמנטים של LTR5_Hs מווסתים את הביטוי של הגנים המצוינים. הטבלה כוללת את הקואורדינטות הגנומיות של כל ERV, RNA מנחה (guide RNA) ששימש למחיקה, פריימרים ל-PCR ששימשו לטיפוס הגנטי (genotyping), ותוצאות טיפוס גנטי של הקלונים. "Effective" (יעיל) מתייחס לקלונים עם תוצאות טיפוס גנטי הניתנות לפירוש. "Undesired rearrangements" (סידורים מחדש לא רצויים) מתייחסים לתוצרים שלא תאמו את הגדלים הצפויים של תוצרי הטיפוס הפראי (wild-type) או תוצרי המחיקה. "Bands not clearly visible" (פסים שאינם נראים בבירור) מתייחס לדגימות שבהן לא התקבל תוצר PCR הניתן לפירוש. אחוזי המחיקה חושבו כאשר המכנה היה מספר הקלונים עם תוצאות טיפוס גנטי הניתנות לפירוש. "Heterozygous deletions" (מחיקות הטרוזיגוטיות) מתייחסות לקלונים שבהם ה-ERV נמחק באחד משני האללים. "Complete deletions" (מחיקות מלאות) מתייחסות לקלונים שבהם ה-ERV נמחק בשני העותקים של הכרומוזום (קלונים הומוזיגוטים) או בעותק הכרומוזומלי היחיד במקרה של כרומוזומי מין (קלונים המיזיגוטים).
ניתן להרחיב לאחר מכן את שיבוטי ה-wild-type, ההטרוזיגוטים, וההומוזיגוטים או ההמיזיגוטים עם המחיקה, להקפיא אותם (cryopreservation) ולהעריך את היציבות הגנומית שלהם. קווים אלו מספקים פלטפורמה לחקירת ההשפעות של CREs בודדים המגזרים מ-ERV על ביטוי גנים, פרוליפרציה של תאים, דיפרנציאציה של שושלות תאים ומודלים מבוססי תאי גזע של התפתחות אנושית מוקדמת.
דיון
פרוטוקול זה מתאר גישה המבוססת על ריבנוקלאופרוטאין CRISPR-Cas9 למחיקת רצפי CRE המופקים מ-ERV בתאי hnPSCs. השיטה משלבת תכנון של sgRNA בזוגות, הובלה זמנית של קומפלקסים מוכנים מראש של Cas9-sgRNA, גזירה קלונאלית, סריקה מבוססת PCR, ריצוף סנגר והערכת יציבות גנומית. מכיוון שתאי hnPSCs רגישים לפירוק ולהפרעות בתרבית, מספר שלבים הם קריטיים להצלחה, כולל שמירה על תרביות בריאות הנתמכות בתאי פיד (feeder), שימוש בתליה מלאה של תאים בודדים, מזעור הזמן שבין תליית התאים לנוקלאופקציה, והוספת Y-27632 למצע במהלך מניפולציות גורמות למעמדה (stress). השיטה דורשת גם בחירה קפדנית של המדריכים (guides), כיוון ש-ERVs הם רצפים חוזרים ומדריכים שלא נבחרו כראוי עלולים לחתוך מספר לוקוסים גנומיים. לכן, הערכת יעילות מחוץ למטרה (off-target) צריכה לכלול אזורים חוזרים ולהוציא מדריכים עם פעילות חזויה בגנים מקודדים, ב-CREs אחרים, או באלמנטים טרנספוזבליים מרובי עותקים.
ביצוע טיפוס גנטי (genotyping) לאוכלוסייה כוללת (Bulk-population) הוא נקודת הכרעה חשובה בתהליך העבודה. זיהוי של תוצר המחיקה לפני בחירת המושבות מאשר כי החיתוך והמחיקה אכן התרחשו, ומסייע בקביעת מספר המושבות שיש לסנן. כאשר לא מזוהה תוצר מחיקה, הפעולה המתקנת היעילה ביותר היא בדרך כלל תכנון מחדש של sgRNA אחד או של שניהם, במקום להמשיך ישירות לבידוד מושבות בהיקף נרחב. שיעור התאוששות נמוך לאחר נוקלאופקציה עשוי לנבוע מאיכות נמוכה של תאי המוצא, הסרה חלקית של שאריות המדיום מהמשקע התאי, עיבוד מושהה לאחר התגסוס, או מניפולציה מרובה של התאים. דיסוציאציה לא מלאה של תאים בודדים עלולה להוביל להיווצרות של מושבות המכילות גנוטיפים מעורבים, בעוד שזריעה בצפיפות גבוהה עלולה לגרום למיזוג של מושבות סמוכות. ניתן לצמצם בעיות אלו באמצעות דיסוציאציה יסודית אך עדינה, זריעה דלילה ובחירה של מושבות מבודדות היטב.
יעילות המחיקה המלאה של ה-ERV נעה בין 10% – 78.9% בקרב הלוקוסים שנבדקו, עם ממוצע של 43.6%. טווח זה מעיד על כך שיעילות העריכה תלויה מאוד בלוקוס ועשויה להשתנות גם בין שורות של hnPSC ותנאי תרבית. פעילות מחזור התא יכולה להשפיע על יעילות העריכה של CRISPR-Cas9, ולכן הבדלים בקצב השגשוג עשויים להשפיע על התאוששות הכלונים30. בנוסף, מחיקה של ERV בעל תפקיד רגולטורי חיוני עשויה להפחית את השגשוג, לשנות את מורפולוגיית המושבות או למנוע התאוששות של כלונים הומוזיגוטים. חלק מהאוכלוסיות הערוכות עשויות לרכוש שינויים גנומיים מפצים המאפשרים המשך גדילה. מסיבות אלו, יש לנתח מספר כלונים שהופקו באופן עצמאי, ויש לאש פנוטיפים בלתי צפויים לאחר הפקה מחדש או הפשרה של כלונים נוספים. אישור הגנוטיפ, ניתוח קריוטיפ והשוואה עם כלוני wild-type מקבילים הם חיוניים לפני פרשנות של השלבים הבאים.
מגבלה עיקרית של שיטה זו היא התפוקה הנמוכה שלה. כל לוקוס דורש עיצוב נפרד של מדריך (guide), נוקלאופקציה, בידוד מושבות, גנוטיפינג, אישור רצף והתרחבות. כתוצאה מכך, השיטה מתאימה ביותר לבדיקה תפקודית ממוקדת של ERVs נבחרים ולא לסריקה של כל הגנום. מניפולציה מרובת-מטרות (Multiplex) או מניפולציה של משפחות ERVs באמצעות רגולטורים אפיגנטיים מבוססי dCas9 יכולה להשפיע על אלמנטים קשורים רבים בו-זמנית14, אך גישה זו עלולה להוביל להשפעות רחבות יותר מחוץ למטרה (off-target) ולא יכולה לזהות בקלות איזו השבחה בודדת אחראית לפנוטיפ. לעומת זאת, האסטרטגיה הנוכחית מאפשרת מחיקה ספציפית ללוקוס ומאפשרת לייחס השפעות מולקולריות או התפתחותיות באופן ישיר ל-CRE מוגדר שמקורו ב-ERV.
השיטה רלוונטית במיוחד כיוון ש-ERVs תרמו רבות לאבולוציה של רשתות בקרה ביונקיים ויכולים לתפקד כפרומוטורים, אנחנסרים (enhancers) ואלמנטים רגולטוריים אחרים במהלך התפתחות מוקדמת5,6,13,14,4,45,46,47. כבר הוכח כי חלק מה-ERVs הבודדים ממלאים תפקידים התפתחותיים חיוניים12,13,14. ניתן להשתמש בקווי ה-hnPSC הערוכים שנוצרו באמצעות פרוטוקול זה לניתוח ביטוי גנים, בדיקות פרוליפרציה, דיפרנציאציה של שושלות דו-מדית, ויצירת בלאסטואידים אנושיים או מודלים עובריים אחרים המבוססים על תאי גזע14,23. יישומים אלה צריכים להתבצע במסגרת הגבולות האתיים והרגולטוריים הרלוונטיים למחקר של מודלים עובריים המבוססים על תאי גזע אנושיים48,49,50.
התקדמויות עתידיות בעריכה גנומית, בטיפול אוטומטי בשיבוטים ובגנוטיפינג בתושבה גבוהה עשויות לאפשר הערכה סיסטמטית יותר של השבצות ERV בודדות51. עד שגישות כאלה יהיו זמינות באופן שגרתי, השיטה הנוכחית מציעה מסגרת הניתנת לשחזור לבדיקת אלמנטים רגולטוריים לא-מקודדים נבחרים ברזולוציה של לוקוס בודד. יתרונה המרכזי הוא היכולת לקשור מחיקה גנומית מוגדרת לפנוטיפים מולקולריים והתפתחותיים במודל אנושי של טרום-השתבצות, ובכך לסייע בהבהרת האופן שבו רצפים המהווים נגזרים של ERV, הייחודיים למין, עיצבו תוכניות רגולטוריות של גנים במהלך העיבּר הגבחי של בני אדם.
גילויים
לא הוצהרו ניגודי עניינים.
תודות
ד"ר Jaaved Mohammed מוכר על דיונים מועילים בנושא עריכה גנומית. קרן Max Planck מוכרת על תמיכתה במחקר זה ובמעבדת Fueyo. Merel Wentink נא לספק את הטקסט באנגלית לתרגום.קיבל מלגת Erasmus+ (מזהה 50377).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 2-מרקפטואתנול | Gibco | 21985023 | נוסף למצע בסיס N2B27. יש לטפל בהתאם לנהלי בטיחות הכימיים של המוסד. |
| 4D Nucleofector X-Unit | Lonza | AAF-1003X | מכשיר המשמש לנוקלאופקציה. |
| אגרוז סטנדרט, 1 ק"ג | רוט | 3810.4 | מש להכנת ג'לים לאלקטרופורזה של DNA. |
| נוקלאז Alt-R S. pyogenes Cas9 HiFi V3 | Integrated DNA Technologies | 1081060 | נוקלאז Cas9 בעל נאמנות גבוהה המשמש להרכבת קומפלקסים של ריבנוקליאופרוטאין. |
| RNA מנחה יחיד סינתטי Alt-R | Integrated DNA Technologies | לא זמין | sgRNAs מותאמים אישית שתוכננו כדי להקיף את ה-ERV שנבחר. ניתן למצוא את רצפי המדריכים בטבלה 1. |
| אנטיביוטיקה-אנטימיקוטיקה | Gibco | 15240062 | תוסף אנטימיקרוביאלי רשות עבור מצעים לתרבית תאים. |
| מיקרוסקופ Axiovert 40 CFL | Zeiss | 491202-0002-001 | מש לתצפית שגרתית על MEF ו-hnPSCs במהלך תרבית. |
| תוסף B-27, 50× | Gibco | 17504044 | תוסף המומס במצע בסיס N2B27. |
| אלבומין בקר פראקציונציית V, תמיסה בריכוז 7.5% | Gibco | 15260037 | נוסף לתוכה לשטיפה כדי להפחית את אובדן ה-hnPSCs כתוצאה מהיצמדות לכלי פלסטיק מתכלים. |
| מעגל תרמי C10 Touch עם תבנית תגובה מהירה בעלת 96 בארות | Bio-Rad | 1851196 | מכשיר המשמש להגברה ב-PCR. |
| פיברובלסטים עובריים של עכברי CF1, מקרינים | Thermo | A234181 | תאי מאכיל (feeder cells) מסוג MEF שעברו אינאקטיבציה, המשמשים לתמיכה בתרבית של hnPSC. ניתן להשתמש בחלופה מאושרת שהוכנה במעבדה. |
| סופר תאים אוטומטי Countess 3 | Thermo / Invitrogen | AMQAX20 | מש לספירת MEFs או hnPSCs. |
| DMEM/F-12 | Gibco | 11330032 | מרכיב במדיום N2B27 ובמדיום שטיפה; משמש גם לדילול של ריאגנט המטריצה החוץ-תאית. |
| Dulbecco’מלחים של פוספט-סליין (PBS) ללא סידן ומגנזיום | Gibco | 14190144 | מש לשטיפת שכבות מזינות. |
| תמיסת ג'לטין מלאה של ESGRO | Sigma-Aldrich | SF08 | מש לציפוי כלי תרבית לפני זריעת תאי מזין מסוג MEF. |
| FBS Supreme | PAN-Biotech | P30-3031 | מש להכנת מצע גידול ל-MEF. |
| יחידת סינון, 1,0 מ"ל, 0.22 µm גודל נקבובית | Corning | 431098 | מש לסינון סטרילי של מצעי תרבית בנפחים גדולים. |
| יחידת סינון, 50 מ"ל, 0.22 µm גודל נקבוביות | Corning | 431097 | מש לסינון סטרילי של מצעי תרבית. |
| תווך קריו-שימור FreSR-S | STEMCELL Technologies | 5859 | מש להקפאה (cryopreservation) של hnPSCs. |
| מערכת דימוי ג'לים GelDoc | Bio-Rad | 170-8195 | ציוד המשמש להדמיית פסי DNA מגילי אלקטרופורזה. |
| מטריצת קרום בסיס Geltrex Flex נקייה מ-LDEV, מאושרת ל-hESC, עם ריכוז מופחת של גורמי גדילה | Thermo | A40046803 | מטריצה חוץ-תאית המשמשת לתרבית של hnPSCs בהיעדרה של MEFs. |
| סולם DNA מסוג Generuler 1 Kb Plus | Fischer Scientific | 11581625 | מש למדידת גדלי פסי DNA באלקטרופורזה. |
| תוסף GlutaMAX | Gibco | 35050061 | תוסף L-glutamine מיוצב המשמש במצע גידול של MEF. |
| ג'ö6983 | Bio-Techne | 2285/10 | מעכב פרוטאין קינאז C אטיפי המשמש להכנת מצע PXGL. |
| Dulbecco עם ריכוז גלוקוז גבוה’מצע איגל משונה (modified Eagle medium) | Gibco | 11965092 | תווך בסי המשמש להכנת תווך גידול ל-MEF. |
| קריוטיפינג | חיים&מוח | לא זמין | מש לזיהוי חריגות בכרומוזומים. |
| L-גלוטמין | Gibco | 25030081 | נוסף למצע בסיס N2B27. |
| ערכה למיצוי gDNA בשיטת Monarch Spin | New England Biolabs | T3010 | ערכה למיצוי DNA גנומי מאוכלוסיות מאסיביות שעברו עריכה. |
| פיפטה בעלת 8 ערוצים עם מרווחים מתכווננים Move It, 30–300 µL | Eppendorf | 3125000176 | מש להעברת מושבות מופרדות בין פלטת הגנוטיפיקציה בעלת 96 בארות לפלטת ההרחבה בעלת 48 בארות. |
| תוסף N-2, 100× | Gibco | 17502048 | תוסף המתווסף למצע הבסיס N2B27. |
| מצע נוירובזאלי (Neurobasal Medium) | Gibco | 21103049 | מרכיב של מצע הבסיס N2B27. |
| מיקרוסקופ סטריאו עם זום של Nikon | Nikon | SMZ1270 | מש לברירת מושבות של hnPSC. |
| ניקוי Gel ו-PCR באמצעות NucleoSpin | Machery-Nagel | 740609.25 | למיצוי DNA מג'לים לפני ריצוף לפי שיטת סנגר (Sanger sequencing). |
| ערכה S ל-4D-Nucleofector עבור תאי מקור P3 | Lonza | V4XP-3032 | ערכה של ריאגנטים לנוקלאפקציה המשמשת להחדרה של קומפלקסים של ריבונוקלאופרוטאין Cas9-sgRNA. כוללת קובטות. |
| קו התאים PB04 | מתנה מפרופ' Hiromitsu Nakauchi | לא זמין | מאושר באמצעות STR, נבדק למיקופלסמה. פורסם ב-PMID: 26023098.33 |
| פריימרים ל-PCR | Sigma-Aldrich | לא זמין | מש לגנוטיפינג של שיבוטים של hnPSCs באמצעות PCR. הרצפים מופיעים בטבלה 1. |
| PD0325901 | Selleck Chemicals | S1036 | מעכב MEK המשמש להכנת מצע PXGL. |
| Phusion Green Hot Start II High-Fidelity PCR Master Mix | Thermo | F56L | תערובת מאסטר (Master mix) המכילה DNA polymerase לצורך גנוטיפיקציה ב-PCR. |
| תמיסה למיצוי DNA מסוג QuickExtract | Biosearch Technologies | QE09050 | מש להפקה מהירה של DNA גנומי מלוחיות טיפוס גנטי של תאים קלונליים. |
| גורם עיכוב לוקמיה אנושי רקומביננטי | Gibco | 30-05-50UG | נוסף למצע PXGL. ניתן להשתמש בהכנה פנימית מקבילה שעברה תיקוף. |
| ריצוף סנגר | Eurofins | לא זמין | מש לריצוף DNA לצורך אימות גנוטיפים. |
| סודיום פירובט, 10 mM | Gibco | 11360070 | נוסף למצע גידול של MEF. |
| צבע ג'ל DNA מסוג SYBR Safe | Thermo | S3102 | צבע לג'לים של אלקטרופורזה של DNA. |
| אנזים TrypLE Express, 1×, פנול אדום | Gibco | 12605036 | מש לפירוק תאי גזע פלוריסנטים אנושיים (hnPSCs) במהלך מעבר (passaging), הכנה לנוקלאופקציה והשגת שורות תאים קלונאליות. |
| מים, נקיים מנוקלאזים, בדרגת ביולוגיה מולקולרית, טהורים במיוחד | Thermo | J71786.AP | מש עבור ה-PCR של הגנוטיפיקה. |
| XAV939 | מערכות להנחיית תאים | SM38-50 | מעכב של מסלול Wnt המשמש להכנת מצע PXGL. |
| Y-27632 | STEMCELL Technologies | 72304 | מעכב ROCK מתווסף במהלך הפשרה, מעבר (passaging), התאוששות מנוקלאופקציה וזריעה של תאים בודדים. |
מקורות
- Wittkopp PJ, Kalay G. Cis-regulatory elements: molecular mechanisms and evolutionary processes underlying divergence. Nat Rev Genet. 2011;13(1):59–69.
- Jacques PÉ, Jeyakani J, Bourque G. The majority of primate-specific regulatory sequences are derived from transposable elements. PLoS Genet. 2013;9(5):e1003504. doi:10.1371/journal.pgen.1003504.
- Trizzino M, et al. Transposable elements are the primary source of novelty in primate gene regulation. Genome Res. 2017;27(10):1623–33.
- Grandi N, Tramontano E. Type W Human Endogenous Retrovirus (HERV-W) Integrations and Their Mobilization by L1 Machinery: Contribution to the Human Transcriptome and Impact on the Host Physiopathology. Viruses. 2017;9(7):162. doi:10.3390/v9070162.
- Senft AD, Macfarlan TS. Transposable elements shape the evolution of mammalian development. Nat Rev Genet. 2021;22(11):691–711.
- Fueyo R, Judd J, Feschotte C, Wysocka J. Roles of transposable elements in the regulation of mammalian transcription. Nat Rev Mol Cell Biol. 2022;23(7):481–97.
- Oomen ME, et al. An atlas of transcription initiation reveals regulatory principles of gene and transposable element expression in early mammalian development. Cell. 2025;188(4):1156–1174.e20.
- Göke J, et al. Dynamic transcription of distinct classes of endogenous retroviral elements marks specific populations of early human embryonic cells. Cell Stem Cell. 2015;16(2):135–41.
- Grow EJ, et al. Intrinsic retroviral reactivation in human preimplantation embryos and pluripotent cells. Nature. 2015;522(7555):221–5.
- Xiang Y, Liang H. The Regulation and Functions of Endogenous Retrovirus in Embryo Development and Stem Cell Differentiation. Stem Cells Int. 2021;2021:6660936. doi:10.1155/2021/6660936.
- Macfarlan TS, et al. Embryonic stem cell potency fluctuates with endogenous retrovirus activity. Nature. 2012;487(7405):57–63.
- Modzelewski AJ, et al. A mouse-specific retrotransposon drives a conserved Cdk2ap1 isoform essential for development. Cell. 2021;184(22):5541–5558.e22.
- Frost JM, et al. Regulation of human trophoblast gene expression by endogenous retroviruses. Nat Struct Mol Biol. 2023;30(4):527–38.
- Fueyo R, et al. A human-specific regulatory mechanism revealed in a pre-implantation model. Nature. 2025;647(8088):238–47.
- Fuentes DR, Swigut T, Wysocka J. Systematic perturbation of retroviral LTRs reveals widespread long-range effects on human gene regulation. eLife. 2018;7:e35989. doi:10.7554/eLife.35989.
- Pontis J, et al. Hominoid-Specific Transposable Elements and KZFPs Facilitate Human Embryonic Genome Activation and Control Transcription in Naive Human ESCs. Cell Stem Cell. 2019;24(5):724–735.e5.
- Xiang X, et al. Human reproduction is regulated by retrotransposons derived from ancient Hominidae-specific viral infections. Nat Commun. 2022;13(1):463. doi:10.1038/s41467-022-28105-1.
- Theunissen TW, et al. Molecular Criteria for Defining the Naive Human Pluripotent State. Cell Stem Cell. 2016;19(4):502–15.
- Bredenkamp N, et al. Wnt Inhibition Facilitates RNA-Mediated Reprogramming of Human Somatic Cells to Naive Pluripotency. Stem Cell Rep. 2019;13(6):1083–98.
- Guo G, et al. Human naive epiblast cells possess unrestricted lineage potential. Cell Stem Cell. 2021;28(6):1040–1056.e6.
- Io S, et al. Capturing human trophoblast development with naive pluripotent stem cells in vitro. Cell Stem Cell. 2021;28(6):1023–1039.e13.
- Okubo T, et al. Hypoblast from human pluripotent stem cells regulates epiblast development. Nature. 2024;626(7998):357–66.
- Shahbazi MN, Pasque V. Early human development and stem cell-based human embryo models. Cell Stem Cell. 2024;31(10):1398–418.
- Kagawa H, et al. Human blastoids model blastocyst development and implantation. Nature. 2022;601(7894):600–5.
- Yu L, et al. Large-scale production of human blastoids amenable to modeling blastocyst development and maternal-fetal cross talk. Cell Stem Cell. 2023;30(9):1246–1261.e9.
- Liu X, et al. Modelling human blastocysts by reprogramming fibroblasts into iBlastoids. Nature. 2021;591(7851):627–32.
- Yu L, et al. Blastocyst-like structures generated from human pluripotent stem cells. Nature. 2021;591(7851):620–6.
- Sozen B, et al. Reconstructing aspects of human embryogenesis with pluripotent stem cells. Nat Commun. 2021;12(1):5550. doi:10.1038/s41467-021-25853-4.
- Yanagida A, et al. Naive stem cell blastocyst model captures human embryo lineage segregation. Cell Stem Cell. 2021;28(6):1016–1022.e4.
- Pacesa M, Pelea O, Jinek M. Past, present, and future of CRISPR genome editing technologies. Cell. 2024;187(5):1076–100.
- Hendel A, et al. Chemically modified guide RNAs enhance CRISPR-Cas genome editing in human primary cells. Nat Biotechnol. 2015;33(9):985–9.
- Kim S, et al. Highly efficient RNA-guided genome editing in human cells via .delivery of purified Cas9 ribonucleoproteins. Genome Res. 2014;24(6):1012–9.
- Masaki H, et al. Interspecific in vitro. assay for the chimera-forming ability of human pluripotent stem cells. Development. 2015;142(18):3222–30.
- Thomson JA, et al. Embryonic stem cell lines derived from human blastocysts. Science. 1998;282(5391):1145–7.
- Conner DA. Mouse Embryo Fibroblast (MEF) Feeder Cell Preparation. Curr Protoc Mol Biol. 2000;51(1):23.2.1–23.2.7.
- Casper J, et al. The UCSC Genome Browser database: 2026 update. Nucleic Acids Res. 2026;54(D1):D1331–D1335.
- Bao W, Kojima KK, Kohany O. Repbase Update, a database of repetitive elements in eukaryotic genomes. Mob DNA. 2015;6:11. doi:10.1186/s13100-015-0041-9.
- Storer J, et al. The Dfam community resource of transposable element families, sequence models, and genome annotations. Mob DNA. 2021;12(1):2. doi:10.1186/s13100-020-00230-y.
- Tarailo-Graovac M, Chen N. Using RepeatMasker to identify repetitive elements in genomic sequences. Curr Protoc Bioinformatics. 2009;25:4.10.1–4.10.14.
- Doench JG, et al. Optimized sgRNA design to maximize activity and minimize off-target effects of CRISPR-Cas9. Nat Biotechnol. 2016;34(2):184–91.
- Cradick TJ, et al. COSMID: A Web-based Tool for Identifying and Validating CRISPR/Cas Off-target Sites. Mol Ther Nucleic Acids. 2014;3(12):e214. doi:10.1038/mtna.2014.64.
- Concordet JP, Haeussler M. CRISPOR: intuitive guide selection for CRISPR/Cas9 genome editing experiments and screens. Nucleic Acids Res. 2018;46(W1):W242–W245.
- Untergasser A, et al. Primer3—new capabilities and interfaces. Nucleic Acids Res. 2012;40(15):e115. doi:10.1093/nar/gks596.
- Dopkins N, Nixon DF. Activation of human endogenous retroviruses and its physiological consequences. Nat Rev Mol Cell Biol. 2024;25(3):212–22.
- Li P, Yamanaka S. Transposable element regulation in mammalian germ cells and other contexts: multilayered repression, fertility, and regulated activation. Epigenomics. 2026;0(0):1–18.
- Yu H, et al. Dynamic reprogramming of H3K9me3 at hominoid-specific retrotransposons during human preimplantation development. Cell Stem Cell. 2022;29(7):1031–1050.e12.
- Xiang Y, et al. Endogenous retroviruses synthesize heterologous chimeric RNAs to reinforce human early embryo development. Science. 2026;391(6783):eadv5257. doi:10.1126/science.adv5257.
- Arias AM, et al. Human stem cell-based embryo models: innovation, ethics, and policy. Hum Reprod. 2026;41(6):830–46.
- Bentzen HB, et al. A guide to using embedded ethics in human stem-cell-based embryo model research. Nat Cell Biol. 2026;28(4):665–73.
- Clark AT, et al. Stem cell-based embryo models: The 2021 ISSCR stem cell guidelines revisited. Stem Cell Rep. 2025;20(6):102514. doi:10.1016/j.stemcr.2025.102514.
- Liu D, Cao D, Han R. Recent advances in therapeutic gene-editing technologies. Mol Ther. 2025;33(6):2619–44.