מחקר זה בחן את רמות הביטוי של miR-3619-5p בסרום של חולים עם סוכרת מסוג 2, ובדק את התפקיד הרגולטורי של מולקולה זו בלבלב βתפקוד התא. miR-3619-5p מופחת (downregulated) ב-T2DM ועשוי להיות מעורב בוויסות של הלבלב βתפקוד התאים על ידי מיקוד ב-MTA3.
מאמר מחקר
המשמעות הקלינית של ביטוי miR-3619-5p במטופלים עם סוכרת מסוג 2 והשפעתו על השגחה של תאי בטא (β) בלבלב
במאמר זה
סיכום
תקציר
המאפיין הפתולוגי המרכזי של סוכרת מסוג 2 (T2DM) הוא לבלבי β-כשל בתאים; לפיכך, זיהוי של סמנים ביולוגיים במחזור הדם ויעדים מולקולריים יעילים המווסתים את הלבלב βהומאוסטזיס התאי הוא בעל חשיבות מעשית משמעותית. כמיוליקולות רגולטוריות מרכזיות של ביטוי גנים, miRNA ממלאות תפקיד חשוב בשגשוג, באפופטוזיס ובהפרשת אינסולין של תאי הלבלב β-תאים. מטרת מחקר זה היא לבחון את דפוסי הביטוי והערך הקליני של miR-3619-5p בסרום של חולי T2DM, ולהבהיר את תפקידו הרגולטורי בלבלב β-שגשוג תאים. RT-qPCR שימש לגילוי הביטוי של miR-3619-5p ו-MTA3. עקומות ROC שימשו להערכת הביצועים האבחנתיים. ביואינפורמטיקה ובדיקות dual-luciferase שימשו לתיקוף הקשר בין המטרה לליגנד. שגשוג תאים נמדד באמצעות בדיקת CCK-8, ואילו אפופטוזה נבחנה באמצעות ציטומטריה זרימה. רמות הפרשת אינסולין נמדדו באמצעות ELISA. התוצאות הראו כי miR-3619-5p ו-MTA3 היו מופחתיים (downregulated) בחולי T2DM ובלבלב β-תאים. ייתכן ש-miR-3619-5p הוא סמן ביולוגי (biomarker) לאבחנה של T2DM; ביטוי יתר שלו מקדם פרוליפרציה של תאים, מעכב אפופטוזיס ומגביר הפרשת אינסולין. miR-3619-5p מכוון ומבקר את MTA3, ושניהם נמצאים במתאם חיובי מובהק. מימיק (mimic) של miR-3619-5p עשוי להפוך את הנזק שנגרם על ידי si-MTA3 לתאי הלבלב βתפקוד התא. לסיכום, miR-3619-5p מופחת (downregulated) ב-T2DM ויש לו ערך אבחנתי. miR-3619-5p עשוי להשתתף בבקרת הלבלב βתפקוד תאי על ידי התמקדמות ב-MTA3.
מבוא
סוכרת מסוג 2 (T2DM), הפרעה מטבולית כרונית, באה לידי ביטוי בעיקר כעמידות לאינסולין המלווה באובדן פרוגרסיבי של תפקוד הפרשת האינסולין, והיא מהווה יותר מ-80% מכלל מקרי הסוכרת1. הפתוגנזה שלה מורכבת, ומערבת שילוב של גורמים גנטיים וסביבתיים, כמו גם חריגות בבקרת התאים והמולקולות2,3. היות שתאי β בלבלב הם התאים העיקריים האחראים להפרשת אינסולין, ירידה חריגה ביכולת השכפול שלהם היא גורם מרכזי להפרשה לא מספקת של אינסולין ב-T2DM4. כיום, האבחנה הקלינית של T2DM נשענת בעיקר על מדדים מסורתיים כגון גלוקוז בדם והמוגלובין גליקOZיל (HbA1c); עם זאת, הרגישות שלהם לסריקה מוקדמת ולניבוי התקדמות המחלה מוגבלת5. קיים צורך דחוף בזיהוי של ביומרקרים רגישים וספציפיים ומטרות בקרה מרכזיות כדי לספק אסטרטגיות חדשות לאבחון וטיפול מדויקים ב-T2DM.
תחת השפעת רעילות גלוקוז (glucotoxicity) המושרה על ידי היפרגליקמיה ממושכת, שגשוג תאי β בלבלב מוגבל ואפופטוזה גוברת, מה שמוביל לאובדן הדרגתי של הפרשת אינסולין התלויה בגלוקוז; תהליך זה הוא גורם מרכזי המניע את התקדמות המחלה6,7. MicroRNAs (miRNAs) מעורבים בתהליכים פיזיולוגיים מגוונים בתאים8, ומפעילים השפעה רגולטורית מכריעה על תהליכים פיזיולוגיים, כולל שגשוג תאי איים בלבלב, אפופטוזה והפרשת אינסולין9,10. מחקרים מרובים הוכיחו כי miRNAs שונים מובעים באופן חריג ב-T2DM ומעורבים באופן הדוק בפתוגנזה של המחלה11,12,13. miR-3619-5p משתתף בתהליכים ביולוגיים, כולל שגשוג תאים ואפופטוזה, והמחקרים הנוכחיים עליו התמקדו בעיקר בתחום האונקולוגיה14,15. ביטוי חריג של miR-3619-5p נצפה בגידולים ממאירים, כולל קרצינומה של תאי קשקש בעור, סרטן ריאה, סרטן המעי הגס והחLביטוי חריג של miR-3619-5p נצפה בגידולים ממאירים, כולל קרצינומה של תאי קשקש בעור, סרטן ריאה, סרטן המעי הגס וסרטן קיבה, שם הוא מווסת גנים מטרתים כדי להשפיע על שגשוג תאי גידול, גרורות ואפופטוזה16,17,18,19. עם זאת, נותר פער ברור במחקר בנוגע למאפייני הביטוי הקליניים, הרלוונטיות הקלינית ומנגנוני הוויסות של תפקודי הלבלב על ידי miR-3619-5p ב-T2DM.
כחבר מרכזי במשפחת ה-MTA, חלבון ה-MTA3 מתווך אינטראקציות בין חלבונים ובקרה של שעתוק גנים, והוא מעורב באופן נרחב בתהליכים פיזיולוגיים מרכזיים, הכוללים פרוליפרציה של תאים, אפופטוזיס ומטבוליזם20. מחקרים עדכניים על MTA3 התמקדו בעיקר באונקולוגיה21,22,23, כאשר מחקרים מוגבלים בלבד בחנו את תפקידו במחלות מטבוליות, ובמיוחד ב-T2DM. מספר מחקרים מצאו כי MTA3, כגן הקשור לסוכרת, משתתף בבקרה של פיברוזיס בכבד המושרה על ידי היפרגליקמיה24. נתון זה מרמז כי MTA3 עשוי להיות מעורב בהתקדמות של T2DM; עם זאת, השאלה האם הוא מווסת על ידי miR-3619-5p בהקשר של T2DM טרם אומתה.
לסיכום, המחקר הקיים על miR-3619-5p הוגבל במידה רבה למודלים של גידולים ותהליכי דלקת; פרופיל הביטוי הקליני שלו ב-T2DM ותפקידו בלבלב βהומאוסטזיס התאי והפרעות במטבוליזם של גלוקוז נותרו למחקר נוסף. לפיכך, מחקר זה נועד לאמת את קשר המטרה בין miR-3619-5p ל-MTA3 באמצעות הערכת הביטוי והמשמעות הקלינית של miR-3619-5p בסרום של חולי T2DM, ולבדוק את תפקידו הרגולטורי בלבלב β-שגשוג תאים, ובכך מספק בסיס תיאורטי חדש למחקר על הפתוגנזה של T2DM ולכן לאבחון קליני ולטיפול.
פרוטוקול
מחקר זה אושר על ידי ועדת האתיקה הרפואית של בית החולים TongzhouBay People's Hospital (מספר אישור 2024122001). ההליכים שבוצעו במחקר זה עומדים בעקרונות הצהרת הלסינקי. השגת הסכמה מדעת מכל המשתתפים האישיים שנכללו במחקר. השגת הסכמה לפרסום עבור נתוניו של כל אדם שנכלל במחקר.
נשואי המחקר
במחקר זה נבחרו רטרוספקטיבית 102 מטופלים עם T2DM שאובחנו בבית החולים שלנו בין ינואר 2022 ליוני 2023. משתתפים רשאיים עמדו בקריטריונים האבחנתיים ל-T2DM, כולל סוכר בדם בצום ≥7.0 mmol/L וסוכר בדם שעתיים לאחר האכלה ≥11.1 mmol/L, לא קיבלו טיפול באינסולין או בתרופות אנטי-דיבטיות מהדור החדש במהלך 3 החודשים הקודמים, לא סבלו מסיבוכים חמורים בלב, בכבד, בכליות או באיברים אחרים, ולא היה להם היסטוריה של גידולים ממאירים, מחלות אוטואימוניות או מחלות זיהומיות, והיו להם רשומות קליניות מלאות. מטופלים עם סוכרת מסוג 1 או סוגים ספציפיים אחרים של סוכרת, כאלה שהיו במצב של סטרס עקב זיהום חמור, טראומה, ניתוח או סיבות אחרות, כאלה שהשתמשו בגלוקוקורטיקואידים, במדכאי חיסון או בתרופות דומות במהלך 3 החודשים הקודמים, ונשים הרות או מניקות הוחרגו מהמחקר. קבוצת ביקורת הכוללת 80 אנשים שעברו בדיקות בריאות שגרתיות בבית החולים שלנו במהלך אותה תקופה נכללה אף היא.
איסוף דגימות
כל המשתתפים במחקר צמו למשך 8–12 h לפחות; 5 mL של דם ורידי נאספו בשעות הבוקר המוקדמות והועברו למבחנות EP נקיות מ-RNase, צנטריפוגו (3000 × g, 10 min) להפרדת הסרום, ואושרו בטמפרטורה של -80 °C לשימוש עתידי.
תרבית תאים וטיפול
איור הלבלב של חולדה βאת קו התאים INS-1 גידלו במצע RPMI 1640 המכיל 10% FBS ו-1% פניצילין-סטRepartitionטומייסין. תאי INS-1 גודלו במצע המכיל 25 mM גלוקוז כדי לבסס מודל של נזק תאי המושרה על ידי רמות גלוקוז גבוהות (HG).25בקבוצה שלא טופלה, תאי INS-1 גודלו במצע RPMI 1640 (המכיל 11.1 mM גלוקוז).
הטרנספקציה בוצעה באמצעות ערכת טרנספקציה עם miR-3619-5p mimics, בקרת miRNA ריקה (miR-NC), si-MTA3 ובקרת ריקה (si-NC). ה-miR-3619-5p mimic, ה-miR-3619-5p inhibitor, ה-siRNA והבקרות השליליות התואמות נרכשו כולם מ-RiboBio. ריכוז miRNA mimic: 50 nM; ריכוז miRNA inhibitor: 100 nM; ריכוז siRNA: 50 nM. ניסויים המשכיים בוצעו 48 h לאחר הטרנספקציה. הרצפים הרלוונטיים מוצגים ב-Supplementary Table 1.
תגובת שרשרת פולימראז עם שעתוק הפוך כמותי (RT-qPCR)
השתמשו בריאגנט TRIzol כדי למסל את ה-RNA הכולל מסרום, בעוד שהשתמשו בערכת miRNeasy Mini Kit כדי למסל RNA כולל מתאים. לצורך זיהוי של miR-3619-5p, בוצע תמלול הפוך באמצעות ערכה לתמלול הפוך; לאחר סינתזת ה-cDNA, נעשה שימוש בערכה לכימות miRNA, כאשר U6 שימש כביקורת פנימית. לצורך זיהוי של MTA3, בוצע תמלול הפוך ל-cDNA באמצעות ערכה לתמלול הפוך של mRNA, ובוצע RT-qPCR באמצעות ערכה לכימות mRNA, כאשר GAPDH שימש כביקורת פנימית. השינויים בביטוי של miR-3619-5p ו-MTA3 נותחו באמצעות שיטת 2--ΔΔCt שיטה. רצפי הפריימרים מוצגים ב- טבלה נלווית 1.
בדיקת דו-לוסיפראז (DLR)
ה-3'-UTRs של MTA3 מסוג בר (WT) ומסוג מוטנטי (MUT), המכילים את אתר הקישור של miR-3619-5p, שובטו אל תוך וקטור pmirGLO. הווקטור הועבר (co-transfected) יחד עם mimic של miR-3619-5p ומעכב (inhibitor) של miR-3619-5p לתאי 293T באמצעות סוכני טרנספקציה. קבוצות הבקרה לטרנספקציה כללו: קבוצת פלסמיד דגיקה ריקה (Control) וקבוצת טרנספקציה של בקרת miRNA שלילית (miR-NC). לאחר 48 h, נמדדה פעילות לוסיפראז יחסית באמצעות מערכת דו-לוסיפראז, כאשר פעילות Renilla luciferase שימשה כבקרת פנימית. כל קבוצה כוללת שלושה שחזורים ביולוגיים בלתי תלויים, כשכל שחזור ביולוגי מורכב משלושה שחזורים טכניים.
בדיקת התרבות תאים
זריעה של התאים שעברו טרנספקציה לתוך פלטה של 96 בארות. לאחר גידול למשך 0 h, 24 h, 48 h, ו-72 h, בהתאמה, יש להוסיף 10 μL של ריאגנט CCK-8 לכל בארה, לדגור ב-37 °C למשך 2 h, ולמדוד את הבליעה באורך גל של 450 nm באמצעות קורא מיקרופלטות.
בדיקת אפופטוזיס
שטפו את התאים שלוש פעמים ב-PBS, ולאחר מכן השעיו אותם ב-200 μL של תמיסת קישור (binding buffer) המכילה 10 μL של Annexin V-FITC ו-5 μL של PI. דגרו למשך 15 min בטמפרטורת החדר בחושך. הוסיפו 300 μL של תמיסת קישור, ולאחר מכן נתחו מיד את התאים באמצעות ציטומטר זרימה (flow cytometer) כדי לחשב את שיעור האפופטוזיס.
ספיחה חיסונית תלוית אנזימים (ELISA)
תאים שעברו טרנספקציה נזרעו בלוחית של 96 בארות והורעבו למשך לילה ב-37 °C. מצע התרבית הוחלף בתמיסה המכילה 25 mM גלוקוז והתאים תורבעו למשך 1 h; לאחר מכן נאסף מצע התרבית מתאי ה-INS-1 שעברו טיפול כדי למדוד את הפרשת האינסולין. תאי ה-INS-1 הושחאו מחדש במתנול חומצי, עברו סוניקציה, והעלייה נאספה כדי לקבוע את תכולת האינסולין הכוללת. נעשה שימוש בערכה ל-Rat Insulin ELISA, והבדיקה בוצעה בהתאם להוראות היצרן. הבדיקה משתמשת בתקני ייחוס שסופקו עם ערכת הבדיקה כדי לבנות עקום כיול; ריכוז האינסולין המוחלט מחושב על סמך ערכי הבליעה של הדגימות, כאשר יחידת הריכוז המוחלט היא μIU/mL. לבסוף, יכולת הפרשת האינסולין הוערכה על ידי נורמליזציה של רמות האינסולין שנמדדו במצע התרבית ביחס לתכולת האינסולין התוך-תאית הכוללת. הנתונים בגרפים הסטטיסטיים מוצגים כשינויים במכפלה (fold changes), שחושבו ביחס לקבוצת הביקורת.
Western blot
תאים שעברו טרנספקציה מכל קבוצה נאספו, והוסיפו להם תחליל ליזיס RIPA. ריכוז החלבון הכולל נקבע בשיטת BCA. 50 μg של חלבון כולל ערבבו עם loading buffer בריכוז 5× והורתחו למשך 10 min. לאחר הפרדה באלקטרופורזה של ג'ל SDS-polyacrylamide בריכוז 10%, הועברו החלבונים לממברנת polyvinylidene fluoride. ביצעו חסימה עם 5% חלב רזה למשך 1 h; הוסיפו את הנוגדנים הראשוניים MTA3 (1:1000) ו-GAPDH (1:1000) והדגירו למשך לילה ב-4 °C; שטפו את הממברנה ב-TBST, ולאחר מכן הוסיפו נוגדן משני מסוג goat anti-rabbit IgG המסומן ב-HRP (1:1000) והדגירו בטמפרטורת החדר למשך 1 h; ביצעו ויזואליזציה באמצעות שיטת הכמילומינצנציה ECL.
ניתוח סטטיסטי
נתונים כמותיים מוצגים כממוצע ± סטיית תקן. לפני ביצוע הניתוח הסטטיסטי, נעשה שימוש במבחן Shapiro–Wilk כדי לאמת את נורמליות הנתונים, ובמבחן Levene כדי להעריך את הומוגניות השונויות, וזאת כדי לקבוע את התאמתו של מבחנים פרמטריים. תוצאות מבחנים אלו הצביעו על כך שכל הנתונים הכמותיים במחקר זה היו בעלי התפלגות נורמלית ועמדו בהנחת הומוגניות השונויות; לפיכך, נעשה שימוש במבחנים פרמטריים לצורך הניתוח הסטטיסטי. למשלוח נתונים משתי קבוצות נעשה שימוש במבחן t למדגמים בלתי תלויים, בעוד שעבור השוואות בין מספר קבוצות נעשה שימוש בניתוח שונות חד-כיווני (ANOVA) עם מבחן פוסט-הוק של Tukey. תרשימי פיזור שימשו להערכת קשרים ליניאריים בין משתנים. ניתוח מתאם פירסון הוחל במקרים שבהם התקיימו הנחות הנורמליות והליניאריות. ניתוח מתאם פירסון כלל את כל 102 המשתתפים; לא הוצאו ערכים חריגים. הצטברות הנקודות שנצפתה בתרשים הפיזור נובעת מחפיפה של תצפיות המדגם. כל הניסויים כללו שלוש דגימות חוזרות, וכל ניסוי חזר על עצמו שלוש פעמים. ערך p של <0.05 נחשב למשמעותי מבחינה סטטיסטית.
תוצאות
השוואה של מאפיינים דמוגרפיים ופרמטרים מטבוליים קליניים בקרב משתתפי המחקר
תוצאות ההשוואה הראו כי רמות ה-FBG וה-HbA1c היו גבוהות באופן משמעותי בחולים עם T2DM (P < 0.001), בעוד שלא נצפו הבדלים משמעותיים בפרמטרים אחרים (P > 0.05) (טבלה 1).
ביטוי וחשיבות קלינית של miR-3619-5p
ניתוח RT-qPCR גילה כי הביטוי של miR-3619-5p בסרום של חולי T2DM היה נמוך באופן משמעותי (P < 0.001; איור 1A). ניתוח עקומת ROC הראה כי ה-AUC עבור miR-3619-5p באבחון T2DM היה 0.871 (95% CI: 0.820–0.922) (איור 1B). יתרה מכך, תוצאות ניתוח מתאם פירסון (Pearson) שנערך בקרב 102 חולים עם T2DM הראו כי ביטוי miR‑3619‑5p היה קשור באופן מובהק והפוך ל-FBG (איור 1C) ול-HbA1c (איור 1D).
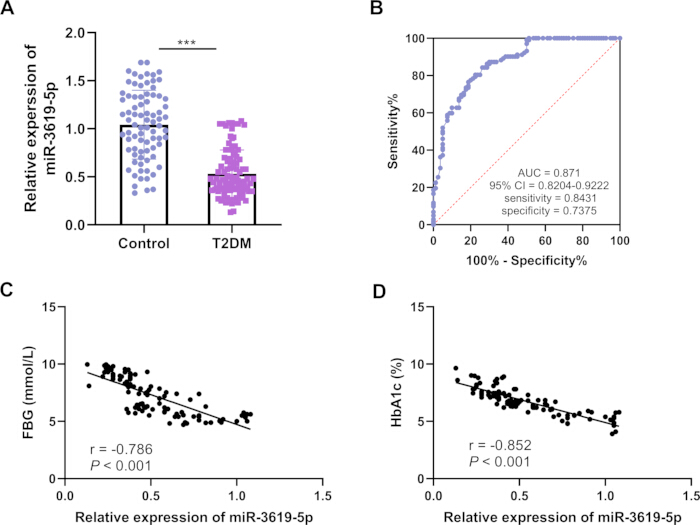
איור 1ביטוי ומשמעות קלינית של miR-3619-5p. (Aניתוח RT-qPCR של ביטוי miR-3619-5p בסרום של חולים עם T2DM.B) עקומת ROC לאבחון T2DM באמצעות miR-3619-5p. (Cניתוח מתאם פירסון (Pearson) בין הביטוי היחסי של miR-3619-5p לבין רמת הסוכר בדם בצום (FBG).ד׳) ניתוח מתאם פירסון בין הביטוי היחסי של miR-3619-5p לבין HbA1c. פסי השגיאה מייצגים את סטיית התקן (SD); קבוצת ביקורת, n = 80; T2DM, n = 102. ***P < 0.001 אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
ההשפעה של miR-3619-5p על תפקוד תאי בטא (β) בלבלב
ביצענו בדיקות תפקוד תאיים בתאי לבלב מסוג INS-1 β-תאים שטופלו ב-HG כדי לדמות את התקדמות ה-T2DM. התוצאות גילו כי הביטוי של miR-3619-5p פחת באופן משמעותי לאחר טיפול ב-HG (P < 0.001), בעוד שהטרנספקציה של mimic ל-miR-3619-5p הובילה לעלייה ניכרת בביטויו (P < 0.01; איור 2A). בנוגע לשגשוג תאים ואפופטוזה, טיפול ב-HG עיכב באופן ניכר את שגשוג התאים ועודד אפופטוזה (P < 0.001), בעוד שה-mimic של miR-3619-5p קידם פרוליפרציה ועכב אפופטוזיס בעקבות טיפול ב-HG (P < 0.01; איור 2B,Cתוצאות ה-ELISA הראו כי הפרשת האינסולין פחתה באופן משמעותי לאחר טיפול ב-HG (P < 0.001), בעוד שה-mimic של miR-3619-5p הגביר את הפרשת האינסולין בעקבות טיפול ב-HG (P < 0.01; איור 2D).
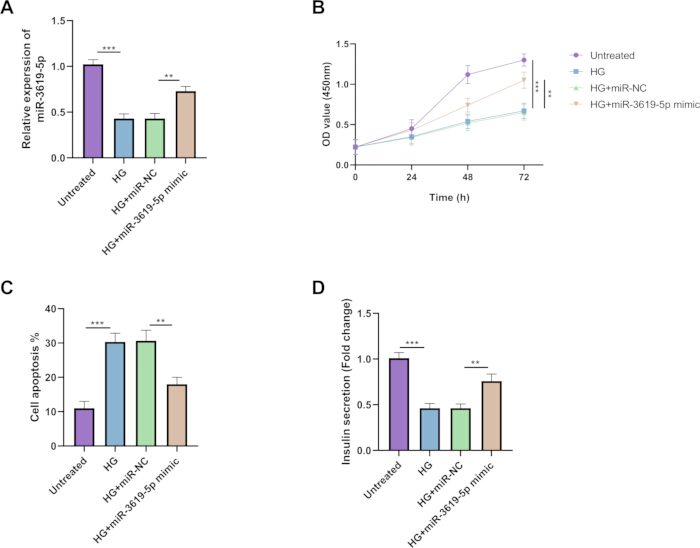
איור 2השפעת miR-3619-5p על הלבלב βתפקוד תא. תאי לבלב מסוג INS-1 βתאים טופלו ב-HG כדי לדמות את התקדמותה של T2DM.Aנעשה שימוש ב-RT-qPCR כדי לזהות את הביטוי של miR-3619-5p בתאים.Bשגשוג תאים הוערך באמצעות בדיקת CCK-8.Cהשתמשו בציטומטריה זורמת (Flow cytometry) כדי להעריך אפופטוזה של תאים.ד'השתמשו ב-ELISA כדי למדוד את רמות הפרשת האינסולין (שנומליזציה לפי תכולת האינסולין התוך-תאית הכוללת). פסי השגיאה מייצגים את סטיית התקן (SD), n = 3. ***P < 0.001; **P < 0.01 אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
תיקוף של מטרות miR-3619-5p
חיזויים בביואינפורמטיקה חשפו סך של 174 גנים מטרה בארבעה מאגרי נתונים (איור 3A), ואתר הקישור של MTA3 מראה דרגה גבוהה של שימור (Context++ score: -0.31; Context++ score percentile: 98). זוהה אתר קישור משלים בין miR-3619-5p לבין אזור ה-3'-UTR של MTA3 (איור 3B). תוצאות ה-DLR הראו כי פעילות הלוקיפראז היחסית של MTA3 WT עלתה באופן משמעותי בקבוצת ה-mimic של miR-3619-5p, מה שמעיד על כך ש-miR-3619-5p יכול להיקשר ל-MTA3 (איור 3C).
הביטוי של MTA3 היה מופחת באופן ניכר בסרום של חולי T2DM (איור 3D); ביטויו הופחת באופן משמעותי גם בתאי INS-1 שטופלו ב-HG, בעוד שמימיק (mimic) של miR-3619-5p העלה את ביטוי MTA3 (איור 3E). תוצאות Western blot הראו כי ה-miR-3619-5p mimic העלה את רמות החלבון של MTA3, בעוד שה-miR-3619-5p inhibitor הפחית באופן משמעותי את ביטויו (איור משלים 1ניתוח מתאם פירסון (Pearson) חשף מתאם חיובי מובהק בין רמות miR-3619-5p לבין רמות MTA3 בסרום של 102 מטופלים עם T2DM (איור 3Fתוצאות אלו מהוות תיקוף נוסף לתפקידו הרגולטורי החיובי של miR-3619-5p על MTA3.
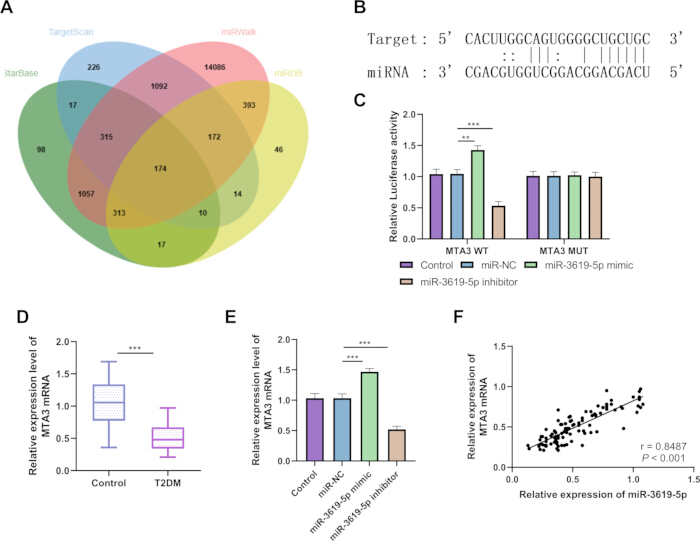
איור 3: תיקוף של מטרות miR-3619-5p. (A) גנים מטרה משותפים של miR-3619-5p שזוהו בארבעה מאגרי נתונים: TargetScan, miRWalk, StarBase ו-miRDB. (B) אתר קישור של miR-3619-5p ל-3’-UTR של MTA3. (C) בדיקת DLR (n = 3). (D) ניתוח RT-qPCR של ביטוי MTA3 בסרום של חולים עם T2DM (ביקורת, n = 80; T2DM, n = 102). (E) ניתוח RT-qPCR של ביטוי MTA3 בתאים (n = 3). (F) ניתוח מתאם פירסון של ביטוי miR-3619-5p ו-MTA3 בסרום של חולים עם T2DM (ביקורת, n = 80; T2DM, n = 102). פסי השגיאה מייצגים את סטיית התקן (SD). ***P < 0.001; **P < 0.01 אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
השפעות ה-MTA3 על הלבלב βתפקוד תא
התוצאות הראו כי si-MTA3 הפחית עוד יותר את ביטוי ה-MTA3 בעקבות טיפול ב-HG, בעוד שטרנספקציה משותפת עם miR-3619-5p mimic הפכה אפקט זה (איור 4A). si-MTA3 עיכב עוד יותר את השגשוג של תאים שעברו טיפול ב-HG, קידם אפופטוזיס והחמיר את הפגיעה בהפרשת אינסולין; לעומת זאת, טרנספקציה משותפת עם ה-miR-3619-5p mimic הפכה את הפנוטיפים התאיים הנ"ל שתווכו על ידי si-MTA3, ובכך שיחמה את שגשוג התאים, הפחיתה את האפופטוזיס והקלה את עיכוב הפרשת האינסולין (איור 4B–D).
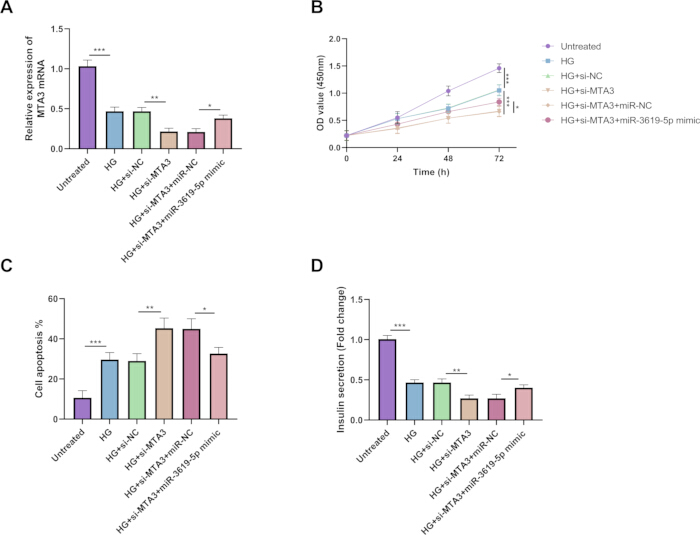
איור 4השפעת MTA3 על הלבלב βתפקוד תא. si-MTA3 ו-mimic של miR-3619-5p הועברו לתוך תאים (transfected) כדי לחקור לעומק את השפעת MTA3 על הלבלב βתפקוד התא. (A) ניתוח RT-qPCR של ביטוי MTA3 בתאים. (Bשגשוג תאים הוערך באמצעות בדיקת CCK-8.Cשיעור האפופטוזיס נקבע באמצעות ציטומטריה של זרימה.ד') רמות הפרשת אינסולין שנמדדו ב-ELISA (נורמלו לפי תוכן האינסולין התו-תאי הכולל). פסי השגיאה מייצגים את סטיית התקן (SD), n = 3. ***P < 0.001; **P < 0.01; *P < 0.05 אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
לסיכום, התוצאות מדגימות שבדגימות קליניות הביטוי של miR-3619-5p בסרום מופחת באופן משמעותי בחולים עם T2DM, וכי miR-3619-5p נמצא במתאם משמעותי עם FBG ו-HbA1c; ניסויים מבוססי תאים אישרו כי miR-3619-5p יכול לווסת באופן ספציפי את MTA3, ובכך להשפיע על החיוניות ועל תפקוד הפרשת האינסולין של תאי β לבלב של חולדה מדגם INS-1. יחד, תוצאות אלו מרמזות כי miR-3619-5p מעורב בויסות תפקוד תאי β בלבלב, ובכך הן מממשות באופן ראשוני את מטרת המחקר שלו לבדוק את תפקידו של miR-3619-5p בסוכרת מסוג 2 ואת מנגנוני הוויסות הפוטנציאליים שלו.
זמינות נתונים:
כל מערכי הנתונים הגולמיים והמעובדים התומכים במסקנות מחקר זה הועלו כ- קובץ משלים 1.
| אינדיקטורים | קבוצת ביקורת (n = 80) | קבוצת T2DM (n = 102) | ערך p |
| גיל (שנים) | 51.41 ± 9.70 | 52.29 ± 7.03 | 0.478 |
| מגדר (זכר/נקבה) | 43/37 | 54/48 | 0.914 |
| BMI (ק"ג/מ"ר)2) | 24.04 ± 3.10 | 24.81 ± 3.04 | 0.093 |
| כולסטרול כולל (mmol/L) | 4.60 ± 0.64 | 4.78 ± 0.65 | 0.068 |
| TG (ממול/ליטר) | 1.61 ± 0.18 | 1.67 ± 0.26 | 0.093 |
| HDL-C (ממול/ליטר) | 1.43 ± 0.13 | 1.38 ± 0.18 | 0.085 |
| LDL-C (ממול/ליטר) | 2.55 ± 0.29 | 2.63 ± 0.31 | 0.067 |
| FBG (ממול/ליטר) | 4.96 ± 0.97 | 7.16 ± 1.64 | <0.001 |
| HbA1c (%) | 4.42 ± 0.49 | 6.77 ± 1.16 | <0.001 |
טבלה 1: השוואה של פרמטרים קליניים בין הנבדקים. T2DM, סוכרת סוג 2; BMI, מדד מסת גוף; TC, כולסטרול כולל; TG, טריגליצרידים; HDL, ליפופרוטאינים בצפיפות גבוהה; LDL, ליפופרוטאינים בצפיפות נמוכה; FBG, גלוקוז בדם בצום; HbA1c, המוגלובין גליקוזילטי.
טבלה משלימה 1: רצפי הפריימרים והריאגנטים ששימשו במחקר זה.אנא לחצו כאן להורדת קובץ זה.
איור משלים 1: ביטוי חלבוני של MTA3. ניתוח Western blot של רמות חלבון MTA3. (A) רמות חלבון MTA3. (B) תמונות Western blot גולמיות של MTA3. (C) תמונות Western blot גולמיות של GAPDH. פסי השגיאה מייצגים את סטיית התקן (SD), n = 3. ***P < 0.001; **P < 0.01אנא לחצו כאן להורדת הקובץ.
קובץ משלים 1: נתונים גולמיים.אנא לחצו כאן כדי להוריד קובץ זה.
דיון
המאפיינים הפתולוגיים המרכזיים של T2DM הם עמידות לאינסולין ותפקוד לקוי של הלבלב βתפקוד לקוי של תאים, עם יכולת פרולפרציה מופחתת ומספר נמוך יותר של תאי לבלב β-תאים כגורמים מרכזיים להפרשה לא תקינה של אינסולין וכמניעים עיקריים להתקדמות המחלה26זיהוי מולקולות מפתח שיכולות לווסת את הלבלב βשגשוג תאי בטא ושיפור תפקודם הם בעלי משמעות רבה לאבחון מדויק ולטיפול בסוכרת מסוג 2 (T2DM).
כמולקולות רגולטוריות מרכזיות של ביטוי גנים, miRNAs ממלאים תפקיד קריטי בבלב β-שגשוג תאים, אפו פטוזיס והפרשת אינסולין. miRNAs רבים קשורים באופן הדוק לנופתגנזה של T2DM27,28,29Song וחב' מצאו כי השתקה (knockdown) של miR-3619-5p מעכבת נדידת תאים בסרטן המעי הגס.30מחקרים אחרים מצאו כי miR-3619-5p נמצא בביטוי נמוך (downregulated) בחולים עם סוכרת העוברים דיאליזה פריטונאלית.31עם זאת, תפקידם ומנגנוני הפעולה של miR-3619-5p ב-T2DM טרם דווחו. מחקר זה מצא כי ביטוי miR-3619-5p בסרום של חולים עם T2DM היה נמוך משמעותית בהשוואה לקבוצת הביקורת הבריאה, ממצא העולה בקנה אחד עם ממצאיהם של Costa et al.31, מה שמעיד כי ביטוי מופחת של miR-3619-5p עשוי להיות קשור קשר הדוק להתחלה ולהתפתחות של T2DM. ניתוח קורלציה הצביע על כך שביטוי miR-3619-5p נמצא במתאם שלילי עם FBG ו-HbA1c, מה שמעיד כי ביטוי נמוך יותר של miR-3619-5p קשור לבקרת גליקמית דלה יותר בחולים. הדבר מאשר עוד כי miR-3619-5p עשוי להיות מעורב בתהליך של הפרעה מטבולית ב-T2DM, וכי רמת הביטוי שלו עשויה לשקף את חומרת המחלה; ממצא זה עולה בקנה אחד עם הממצאים של Chen et al., שדיווחו כי RNA בעלי ביטוי דיפרנציאלי עשויים להיות מעורבים במטבוליזם של ליפידים, בהפרשת אינסולין ובויסות גלוקוז32הממצאים מניתוח עקומת ה-ROC מצביעים על כך שייתכן והוא משמש כסמן ביולוגי לאבחון T2DM, ובכך מפצה על חוסר הרגישות באבחון מוקדם הקשור למדדי סוכר בדם מסורתיים.
ירידה חריגה ביכולת השכפול של תאי β בלבלב היא מרכיב מרכזי בכשל של איים בלבלביים ב-T2DM; קידום השכפול של תאי β בלבלב והגדלת מספר התאים הם המפתח לשיפור תפקוד הפרשת האינסולין33,34. מחקר זה הדגים באמצעות ניסויים תאיים כי miR-3619-5p מקדם באופן ניכר שכפול של תאי INS-1 ומעכב אפופטוזיס, ובכך מגביר את הפרשת האינסולין. הדבר מרמז כי miR-3619-5p עשוי לשפר את תפקוד הפרשת האינסולין על ידי קידום שכפול תאי β בלבלב ועיכוב אפופטוזיס, ובכך להשתתף בפתוגנזה של T2DM. ממצא זה עולה בקנה אחד עם מנגנוני הוויסות של miRNAs בשכפול תאי β בלבלב שתוארו במחקרים קודמים, כגון miR-26a-5p ו-miR-765, המקדמים שכפול ודיפרנציאציה של תאי β בלבלב על ידי ויסות הביטוי של גנים מטרת35,36.
מחקר זה עשה שימוש בחיזויים בביואינפורמטיקה ובבדיקות DLR כדי לאשר כי MTA3 הוא גן מטרה של miR-3619-5p. כחלבון הקשור לגרורות (metastasis-associated protein), MTA3 מעורב באופן נרחב בתהליכים פיזיולוגיים מרכזיים כגון שגשוג תאים, אפופטוזיס ומטבוליזם.20מחקרים מצאו כי MTA3 משתתף בבקירה של פיברוזיס של הכבד המושרה על ידי רמות גלוקוז גבוהות.24דיכוי של MTA3 המתווך על ידי T2DM קשור לעלייה בעקה חמצונית באשכים37במחקר זה, נצפתה רמה מופחתת (downregulation) של MTA3 בתאים שטופלו ב-HG. בשילוב עם תוצאות בדיקות השגחה של התרבות תאים, ההשערה היא ש-si-MTA3 עשוי לתרום לפתוגנזה של T2DM על ידי עיכוב של הלבלב β-שגשוג תאים, בעוד ש-miR-3619-5p עשוי להקל על עיכוב זה על ידי ויסות ביטוי MTA3, ובכך לשפר את הלבלב β-תפקוד התא. הבהרה של מנגנון זה מזקקת עוד יותר את הרשת המולקולרית של ויסות miRNA של הלבלב β-שגשוג תאים ומספק נקודת מבט חדשה למחקר על הפתוגנזה של T2DM.
לממצאי מחקר זה יש ערך קליני וטרנסלציוני פוטנציאלי. ניתן לזהות serum miR-3619-5p בדם ורידי פריפרי, ואם הדבר יתאשש במחקרי קוהורט רחבי היקף בעתיד, הוא עשוי להוות סמן ביולוגי עזר שיסייע לקלינאים בזיהוי אנשים הנמצאים בסיכון ללבלב β-תפקוד לקוי של תאי בטא, ובכך לאפשר סיווג סיכונים מוקדם יותר. miR-3619-5p יכול להקל על נזקים ללבלב המושרים על ידי היפרגליקמיה β-תאים על ידי מיקוד ובקרה של מסלול ה-MTA3 כדי לשמר β-הישרדות תאים והפרשת אינסולין. ממצאים אלו מרמזים כי לציר miR-3619-5p/MTA3 יש פוטנציאל לשמש כמטרה חדשה להגנה על תאי האיים בסוכרת, ובכך לספק תובנות ניסיוניות בסיסיות לפיתוח עתידי של תרופות מבוססות חומצות גרעין או מעכבי מולקולות קטנות להגנה על תפקוד האיים.
יש לציין מספר מגבלות במחקר הנוכחי: ראשית, המחקר שלנו נערך במרכז בודד; ייתכן שקיימת הטיית בחירה, והשונות הבין-אישית בקרב המשתתפים מוגבלת יחסית. מחקרים עתידיים צריכים להגדיל את גודל המדגם ולבצע מחקרים רב-מרכזיים כדי לאשש את פרופיל הביטוי ואת הערך הקליני של miR-3619-5p. שנית, מחקר זה תיקף את התפקיד הרגולטורי של miR-3619-5p בלבלב β-שגשוג תאים ברמה התאית בלבד ולא ביצעה תיקוף נוסף באמצעות ניסויי חיות. מחקרים עתידיים צריכים לבסס מודל חיות של T2DM כדי לחקור מעמיק יותר את מנגנוני הפעולה שלו in vivo. שלישית, ל-miRNAs יש בדרך כלל מאפיינים רב-תפקודיים, ו-miR-3619-5p עשוי לווסת גם מגוון של גנים קשורים. במקביל, מערכות טרנספקציה in vitro המשתמשות במימיקה (mimics) או במעכבים של miRNA חשופות להשפעות פוטנציאליות חוץ-מטרה (off-target effects); התערבות מלאכותית במינונים גבוהים עלולה להפעיל או לעכב באופן לא ספציפי מסלולי איתות מרובים, מה שמקשה על שכפול מלא של אופן הפעולה הנצפה בתנאים פיזיולוגיים. מחקר עתידי דורש סריקת מטרות מקיפה יותר של כלל התסריפטום (whole-transcriptome) כדי להבחין בין ויסות ממוקד ספציפי לבין השפעות ביולוגיות לא ספציפיות הנובעות מהשפעות חוץ-מטרה. רביעיית, בעוד שבמחקר זה נעשה שימוש בהתערבות של 25 mM גלוקוז במודל הגלוקוז הגבוה in vitro, לא הוקמה קבוצת ביקורת אוסמוטית של מניטול; כתוצאה מכך, לא ניתן היה להבחין באופן מלא בין השפעות מטבוליות ספציפיות לגלוקוז לבין השפעות הנובעות מעקה אוסמוטי. ניסויים עתידיים צריכים לכלול ביקורת אוסמוטית כדי להבהיר יותר את המנגנון שדרכו רמות גבוהות של גלוקוז משפיעות על תאי INS-1. לבסוף, קיים חוסר התאמה בין-מינית בין הדגימות הקליניות למודלים התאיים in vitro; למרות שתאי INS-1 הם מודל in vitro קלאסי לחקר הבשלות התפקודית של הלבלב β-תאים, לא ניתן להשוות באופן ישיר את מנגנוני הבקרה שנצפו בתאי חולדה לתהליכים ביולוגיים ממשיים בבני אדם. לפיכך, יש לנקוט משנה זהירות בפירוש הקשר הרגולטורי בין miR-3619-5p ל-MTA3 שזוהה במחקר זה ברמה התאית in vitro עבור יישומים קליניים. מחקרים עתידיים יצטרכו להשתמש בתאי לבלב אנושיים βמודלים תאיים או איים של תאי בטא ראשוניים מבני אדם כדי לתקף באופן נוסף את השימור של מסלול זה בין מינים.
miR-3619-5p נמצא ברמה נמוכה (downregulated) בסרום ובלבלב β-תאים של חולים עם T2DM; באמצעות התמקדות ב-MTA3, miR-3619-5p יכול להקל על פגיעה בלבלב המושרה על ידי היפרגליקמיה βתפקוד לקוי של תאים, לעודד לבלב β-שגשוג תאים, עיכוב אפופטוזיס ושיפור הפרשת אינסולין. מחקר זה מרמז כי miR-3619-5p עשוי לסייע בסיווג סיכוני סוכרת, וכי ציר ה-miR-3619-5p/MTA3 הוא מטרה פוטנציאלית להגנה על איים לבלביים. בעתיד, נבצע מחקר עוקבה בהיקף רחב יותר כדי לתקף את ערכו הקליני ונבצע תיקוף פונקציונלי in vivo באמצעות מודלים של סוכרת בבעלי חיים; במקביל, נבצע ניתוח מעמיק של מסלולי השליחה במורד ה-MTA3 המתווכים שינויים בתפקוד האיים, ונבחן באופן נוסף את הפוטנציאל התרגומי של מטרה זו לטיפול להגנה על איים לבלביים.
גילויים
למחברים אין אינטרסים פיננסיים או לא-פיננסיים רלוונטיים להצהיר עליהם.
תודות
מחקר זה נתמך על ידי אסטרטגיות מניעה עבור חולים עם סוכרת וזיהומי דרכי השתן (מס' MSZ2025119).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| Annexin V-FITC/PI Apoptosis Detection Kit | Roche, Switzerland | 11684795910 | צביעה ב-Annexin V-FITC (10 µL) ו-PI (5 µL); אינקובציה של 15 דקות בחושך |
| Cell Counting Kit-8 (CCK-8) | Dojindo, Japan | CK04 | בדיקה קולורימטרית לחיוניות תאים; 10 µL לבאר, אינקובציה של 2 שעות, מדידת OD450 |
| D-Glucose | Sigma-Aldrich | G7021 | נוסף למצע התרבית בריכוז 25 mM כדי לבסס מודל של נזק תאי מושרה על ידי גלוקוז גבוה (HG) |
| Dual-Luciferase Reporter Assay System | Promega, USA | E1910 | מדידה רצפית של פעילות לוציפראז של גחליליות ושל Renilla |
| Fetal bovine serum (FBS) | Gibco, USA | 10437028 | תוסף בריכוז סופי של 10% |
| Flow cytometer | Beckman Coulter, USA | CytoFLEX | ניתוח בציטומטריה זרימה לחישוב שיעור האפופטוזיס |
| GAPDH antibody | Abcam, UK | ab181602 | Western blot |
| GAPDH primers | Sangon Biotech, China | Custom synthesis | גן בית (Housekeeping gene) לנורמליזציה של mRNA |
| Goat Anti-Rabbit IgG H&L (HRP) | Abcam, UK | ab6721 | Western blot |
| HEK293T cell line | ATCC, USA | CRL-3216 | תאי כליה עובריים של בן אדם; יעילות טרנספקציה גבוהה לבדיקות לוציפראז |
| INS-1 cell line | Sunncell, China | SNL-332 | קו תאי אינסולינומה של חולדה; גודלו ב-RPMI 1640 עם 10% FBS ו-1% פניצילין-סטרפטומייצין |
| LightCycler 480 II Real-Time PCR System | Roche, Switzerland | 5015278001 | הגברה ב-Real-time PCR; פורמט של פלטת 96 בארות או 384 בארות |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | ריאגנט טרנספקציה מבוסס ליפידים |
| Microplate reader | BioTek, Agilent | Synergy H1 | מדידת בליעה; ריכוזי דגימות נגזרים מעקומות סטנדרט |
| miR-3619-5p inhibitors | RiboBio, China | miR20017999-1-5 | RNA גדילי יחיד מסונתז כימית לעיכוב תפקוד miR-3619-5p |
| miR-3619-5p mimics | RiboBio, China | miR10017999-1-5 | RNA דו-גדילי מסונתז כימית לביטוי יתר של miR-3619-5p |
| miR-3619-5p primers | Sangon Biotech, China | Custom synthesis | פריימרים ספציפיים לזיהוי miR-3619-5p |
| miR-NC (miRNA blank control) | RiboBio, China | miR2N0000001-1-5 | ביקורת שלילית שאינה מכוונת למטרה עבור ניסויי miRNA mimic/inhibitor |
| miRNeasy Mini Kit | Qiagen, Germany | 217004 | מיצוי RNA כולל מדגימות תאים |
| miScript II RT Kit | Qiagen, Germany | 218160 | שעתוק הפוך עבור miRNA; משתמש ב-poly(A) tailing וב-oligo-dT priming |
| miScript SYBR Green PCR Kit | Qiagen, Germany | 218073 | qPCR מבוסס SYBR Green לזיהוי miRNA |
| MTA3 antibody | Invitrogen, USA | PA5-100022 | Western blot |
| MTA3 primers | Sangon Biotech, China | Custom synthesis | פריימרים ספציפיים לזיהוי mRNA של MTA3 |
| NanoDrop 2000 spectrophotometer | Thermo Fisher Scientific, USA | ND-2000 | הערכת ריכוז וטוהר של RNA |
| Penicillin-Streptomycin | Gibco, USA | 15140122 | תמיסת אנטיביוטיקה בריכוז 1% למניעת זיהום חיידקי |
| pmirGLO Dual-Luciferase miRNA Target Expression Vector | Promega, USA | E1330 | וקטור דוחות Dual-luciferase לתיקוף מטרה של miRNA; מכיל גנים של לוציפראז גחליליות ושל Renilla |
| PrimeScript RT Reagent Kit with gDNA Eraser | TaKaRa, Japan | RR047A | שעתוק הפוך הכולל שלב להסרת DNA גנומי |
| Rat Insulin ELISA Kit | Invitrogen, USA | ERINS | זיהוי כמותי של אינסולין המהוגר על ידי תאי INS-1 אל תוך מצע התרבית |
| RPMI 1640 medium | Gibco, USA | 11875093 | מצע תרבית בסיסי; מועשר ב-10% FBS ו-1% פניצילין-סטרפטומייצין |
| si-MTA3 | RiboBio, China | siB170209084646-1-5 | siRNA קצר המכוון ל-MTA3 לצורך השתקת גן (knockdown) |
| si-NC (blank control for siRNA) | RiboBio, China | siB06525141922-1-5 | ביקורת siRNA שאינה מכוונת למטרה |
| SYBR Green Master PCR Mix | TaKaRa, Japan | RR820A | הגברת qPCR מבוססת SYBR Green |
| TRIzol Reagent | Invitrogen, USA | 15596026 | מיצוי RNA כולל מדגימות סרום |
| U6 primers | Sangon Biotech, China | Custom synthesis | רפרנס אנדוגני לנורמליזציה של miRNA |
מקורות
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.