מחקר זה משלב רקמות אנושיות זוגיות, שני קווי תאים של קרצינומה של תאי קשקשת בריאה, בדיקות יציבות של RNA וחלבונים, ניסויי הצלה גנטית ומודל קסנוגרפט של knockdown ל-FOXD1, וזאת כדי לבחון את הבקרה של FOXD1 הקשורה ל-METTL3 ולספק מסגרת ניתנת לשחזור לחקירת מנגנונים אונקוגניים פוסט-טרנסקריפציונליים.
מאמר מחקר
בקרה של FOXD1 הקשורה ל-METTL3 מקדמת התקדמות של קרצינומה סקוואמוזית של הריאה: גישה ניסיונית רב-מודלית
* These authors contributed equally
במאמר זה
סיכום
תקציר
לאפשיומה של תאי קשקש בריאות (LUSC) יש אפשרויות טיפול מוגבלות, דבר המניע לחקירה של מסלולים מולקולריים התומכים בצמיחת תאי גידול. ביטוי של Forkhead box D1 (FOXD1) נבדק באמצעות ניתוח אינטראקטיבי של פרופילי ביטוי גנים (GEPIA), תגובת שרשרת פולימראז עם שעתוק הפוך כמותית (qRT-PCR), WESTERN BLOTTING ואימונוהיסטוכימיה ברקמות מזווגות ובקווי תאים. FOXD1 או methyltransferase-like 3 (METTL3) הושחתו בתאי LUSC, ונבדקו חיות תאים, אפופטוזה, נדידה, N6-methyladenosine (m6A) גלובלי, יציבות תעתוק ויציבות חלבון. מודל קסנוגרפט של השתקת FOXD1 בחן את תפקידו של FOXD1 in vivo; METTL3 לא עבר מניפולציה בבעלי חיים.
ביטוי של FOXD1 היה גבוה יותר ברקמות ובתאים של LUSC בהשוואה לבקרות תואמות. השתקת FOXD1 הפחיתה את החיוניות ואת הנדידה, הגבירה את האפופטוזיס ודיכאה את גדילת הקסנוגרפט. ביטוי של METTL3 נמצא במתאם עם FOXD1 ברקמות LUSC מזווגות. בתאים תרביתיים, השתקת METTL3 הפחיתה את רמות m6A הגלובליות ואת שכיחות FOXD1, בעוד שביטוי מחדש של FOXD1 הציל באופן חלקי את הפנוטיפים הקשורים לכך. בדיקות של Actinomycin D, cycloheximide ו-MG132 היו עקביות עם שינויים בתוך יציבות ה-RNA והחלבון של FOXD1 הקשורים ל-METTL3.
נתונים אלה תומכים בקשר תפקודי בין METTL3 ל-FOXD1 בתאי LUSC. In vivo, השתקה של FOXD1 דיכאה את צמיחת הקסנוגרפט והפחיתה את צביעת Ki-67, מה שביסס את FOXD1 כמעודד של צמיחת קסנוגרפטים. קשירה ישירה בין METTL3 ל-FOXD1, מודיפיקציית m6A ספציפית לאתר, תלות ב-reader ותיקוף in vivo של מסלול METTL3–FOXD1 המלא טרם הוכחו.
מבוא
סרטן הריאה נותר גורם מוביל לתמותה מסרטן ברחבי העולם1,2. קרצינומה של תאי קשקש בריאה (LUSC), תת-סוג היסטולוגי עיקרי של סרטן ריאה שאינו תאי קטנים (NSCLC), מופיעה לעיתים קרובות לאחר שטיפול מקומי ריפואי כבר אינו בר ביצוע3,4. הטיפול הסיסטמי השתפר, אך מטופלים רבים עדיין חווים תוצאות דלות5. לפיכך, הגדרת תוכניות מולקולריות התומכות בצמיחת LUSC עשויה לחשוף סמנים ביולוגיים הניתנים לבדיקה והשערות טיפוליות.
Forkhead box D1 (FOXD1) הוא פקטור שעתוק המעורב בסרטני מעי גס ופי הטבעת, ראש וצוואר, קיבה, קשקש oral ושד6,7,8,9,10. ב-NSCLC, ביטוי של FOXD1 נקשר לתוצאות קליניות שליליות ולצמיחת תאים וגרורות בניסויים11,12. MicroRNA-30a-5p מדכא גם הוא את שגשוג התאים ואת נדידתם ב-LUSC על ידי targeting של FOXD113. תצפיות אלו מזהות את FOXD1 כווסת אפשרי של LUSC, אך הן אינן מבססות כיצד הביטוי שלו נשמר במחלה זו.
N6-methyladenosine (m6A) הוא מודיפיקציה הפיכה של RNA המותקנת, מוסרת ומפורשת על ידי חלבוני כותב (writer), מוחק (eraser) וקורא (reader). מערכת בקרה זו יכולה להשפיע על עיבוד ה-RNA, התרגום והפירוק שלו, ושיבוש שלה נקשר לפנוטיפים ממאירים ולתגובה לטיפול14,15,16,17. Methyltransferase-like 3 (METTL3) הוא רכיב קטליטי של קומפלקס הכותב של m6A; עם זאת, מתאם בין METTL3 ל-FOXD1 לבדו אינו יכול להוכיח מתילציה ישירה או רגולציה המתווכת על ידי חלבון קורא.
השערנו כי METTL3 מקדם את התקדמות ה-LUSC על ידי שימור ביטוי של FOXD1 באמצעות בקרה פוסט-טרנסקריפציונלית הקשורה ל-m6A. באמצעות שילוב של דגימות קליניות זוגיות, שני קווי תאי גידול, ניסויי אובדן תפקוד (loss-of-function) וניסויי הצלה (rescue), ניתוחים של יציבות תמלילים וחלבונים, ומודל קסנוגרפט של השתקה (knockdown) של FOXD1, מחקר זה מספק מסגרת תפקודית לבחינת הקשר בין METTL3 ל-FOXD1, תוך הבחנה בין קשר כללי לבין מתילציה ישירה באתר ספציפי.
פרוטוקול
איסוף רקמות אנושיות בוצע בהתאם להצהרת הלסינקי ואושר על ידי הוועדה לבקרת מוסדית (Institutional Review Board) של בית החולים הראשון של אוניברסיטת ג'ילין (מספר אישור 2022-339; 22 ביולי 2022), והסכמה מושכלת בכתב התקבלה מכל המשתתפים. הפרוטוקול לניסויים בבעלי חיים אושר על ידי ועדת ניהול בעלי חיים של בית החולים הראשון של אוניברסיטת ג'ילין (מספר אישור 2022-0015; 25 בינואר 2022) ובוצע בהתאם להנחיות המוסדיות לטיפול ושימוש בבעלי חיים.
נבדקי המחקר
דגימות מאוכלסות כללו 12 זוגות של רקמות LUSC ראשוניות ורקמות סמוכות שאינן גידול שנאספו ממטופלים שעברו ניתוח בין ינואר 2019 לדצמבר 2020. מטופלים רשאיים היו כאלו עם LUSC ראשוני שהוכח פתולוגית, ללא גרורות מתועדות וללא טיפול המכוון ל-LUSC במהלך 6 החודשים שקדמו לכך. המקרים נבחרו באמצעות טבלת מספרים אקראית וכללו שבעה גברים וחמש נשים בגילאי 30–65 שנים. הסכמה מדעת בכתב התקבלה מכל המשתתפים.
שורות תאים
תאי אפיתל ברונכיאליים אנושיים BEAS-2B (RRID: CVCL_0168), תאי LUSC SK-MES-1 (RRID: CVCL_0630), ותאי NCI-H226 (RRID: CVCL_1544) התקבלו מבנק התאים של האקדמיה הסינית למדעים. התאים תוחזקו בתווך Dulbecco's modified Eagle הכולל 10% סרום עגל עוברי ו-1% פניצילין-סטרפטומייצין ב- 37 °C ב-5% CO2מזהים מסחריים מאוחדים במסמך הנלווה. טבלת חומרים.
סריקת siRNA (Small interfering RNA) והצלה
שלושה RNA קטנים ומעכבים (siRNAs) אינדיבידואליים המכוונים ל-FOXD1 או ל-METTL3 נסרקו בתאי SK-MES-1 ו-NCI-H226. השהיית הביטוי (Knockdown) נבדקה 48 שעות לאחר הטרנספקציה באמצעות PCR עם שעתוק הפוך כמותי (qRT-PCR) וסמיכה מערבית (western blotting). siRNA-1 של FOXD1 שימש לבדיקות תפקודיות של FOXD1 בהמשך, כיוון שהוא גרם להפחתה הגדולה ביותר בשתי השורות התאיות. בניסויי METTL3 בהמשך נעשה שימוש בריאגנט si-METTL3 שנבחר מתוך הסריקה. הרשומה הארכיונית אינה מזהה SmartPool ולא שומרת רצף או מזהה ספק שניתן לשייך בוודאות. עבור ניסויי הצלה (rescue experiments), התאים קיבלו את ריאגנט si-METTL3 שנבחר, את מבנה ביטוי העודף (overexpression construct) של FOXD1, או את שניהם; הביטוי והפנוטיפים התאיים נבחנו 48 שעות לאחר הטרנספקציה.
בידוד RNA ו-qRT-PCR
RNA כולל בודד מרקמות או תאים באמצעות ריאגנט פנול-גואנידיניום, ועבר תמלול הפוך באמצעות ערכה מסחרית לתמלול הפוך. qRT-PCR בוצע עם תערובת TB Green master mix במערכת real-time PCR (RRID: SCR_018051). רצפי הפריימרים מופיעים ב-Table 1. ביטוי יחסי ננורמל לגליסראלדהיד 3-פוספטאט דהידרוגנאז (GAPDH). הרכבת התגובה והמעגלים התרמיים בוצעו לפי פרוטוקול היצרן עבור תערובת ה-master mix שצוינה.
ו׳וסטן בלוטינג (Western blotting)
רקמות או תאים הולבשו בבופר radioimmunoprecipitation assay (RIPA) המכיל מעכבי פרוטאז. כמויות חלבון שוות הופרדו באמצעות sodium dodecyl sulfate–polyacrylamide gel electrophoresis (SDS-PAGE) והועברו לממברנות polyvinylidene fluoride (PVDF). הממברנות הועשרו ללילה בטמפרטורה של 4 °C עם נוגדנים נגד FOXD1 (1:1,000), METTL3 (1:1,000; RRID: AB_2142033), או GAPDH (1:2,000; RRID: AB_10622025), ולאחר מכן עם anti-rabbit immunoglobulin G המשורשר ל-horseradish peroxidase למשך 1 h בטמפרטורת החדר. האותים פותחו באמצעות enhanced chemiluminescence, כאשר GAPDH שימש כבקרת טעינה. טבלת החומרים מפרטת את הנוגדנים הראשוניים המסחריים ורושמת את הרכיב המשני כנוגדן זיהוי anti-rabbit immunoglobulin G.
חיוניות תאים ואפופטוזיס
למדידות חיוניות, תאי LUSC של ביקורת ותאים שעברו טרנספקציה נזרעו בלוחות 96-בארים בריכוז של 2,000 תאים לבאר. במרווחי זמן של 12 שעות, הוספו 10 µL של ריאגנט cell counting kit-8 לכל באר, הלוחות דגרו במשך 1 h בטמפרטורה של 37 °C, והבליעה נמדדה ב-450 nm. לניתוח אפופטוזיס, נזרעו 1 × 10⁵ תאים לבאר בלוחות 6-בארים והם נותחו 48 h לאחר הטרנספקציה. תאים שנאספו עובדו בהתאם להוראות של ערכת Annexin V–fluorescein isothiocyanate (FITC)/ propidium iodide (PI), הוסעהו מחדש ב-100 µL של binding buffer, נצבעו עם 5 µL מכל ריאגנט למשך 30 min בטמפרטורת החדר בחושך, ונותחו באמצעות ציטומטריית זרימה תוך 4 h.
נדידה בשיטת Transwell
תאי LUSC שעברו טרנספקציה הוכנסו למצע ללא סרום בתא העליון של ה-transwell; התא התחתון הכיל 500 µL של מצע המועשר ב-10% fetal bovine serum. לאחר 24 h, תאי המהגרים קובעו באמצעות 4% paraformaldehyde ונצבעו ב-crystal violet למשך 10 min. תאים שאינם מהגרים על פני השטח העליון של הממברנה הוסרו באמצעות מקלון צמר גפן. תאי המהגרים צולמו במיקרוסקופ תחת הגדרות רכישה זהות וכמתו באמצעות ImageJ (RRID: SCR_003070).
מודיפיקציית מתילציה של m6A
שכיחות ה-m6A הגלובלית נמדדה באמצעות בדיקת מתילציה של RNA קולורימטרית. לאחר מיצוי ה-RNA והערכת איכותו, הועברו 200 ng של RNA לכל באר של הבדיקה. נוגדן לכידה (50 µL) נוסף למשך 60 min בטמפרטורת החדר. הבארה נשטפו שלוש פעמים, דגרו עם 50 µL של נוגדן זיהוי למשך 30 min, נשטפו ארבע פעמים, ודגרו עם תמיסה להגברת אות למשך 30 min. הבליעה נמדדה ב-450 nm. כל השלבים בוצעו בהתאם להוראות המצורפות לערכה.
בדיקת יציבות mRNA
תאי LUSC נזרעו בצלחות 6-בארים ועברו טרנספקציה עם RNA מפריע קטן כשליטה שלילית (si-NC) או RNA מפריע קטן המכוון ל-METTL3 (si-METTL3). לאחר 48 h, נוסף actinomycin D בריכוז 5 µg/mL כדי לעצור את השעתוק. תאים נאספו בנקודות זמן של 0 h, 2 h, 4 h ו-6 h, בוצע בידוד של RNA כולל, ושפע הטרנסקריפט של FOXD1 נמדד באמצעות qRT-PCR.
בדיקות (CHX) Cycloheximide ו-MG132
עבור כל בדיקת נקודת קצה של מעכב, הושוו תאי בקרה עם וקטור שלא טופלו, תאי בקרה עם וקטור שטופלו במעכב, ותאים עם ביטוי יתר של METTL3 שטופלו במעכב. MG132 שימש בריכוז של 10 µM, ו-CHX בריכוז של 20 µM; ליסאטים נאספו לאחר 12 h עבור western blotting. עבור סדרת הזמנים של CHX, תאים שעברו טרנספקציה עם si-NC או si-METTL3 טופלו ב-20 µM CHX ונאספו בנקודות זמן של 0 h, 3 h, 6 h ו-9 h. שפע חלבון FOXD1 נמדד באמצעות western blotting.
ניסויי In vivo
עכברי BALB/c nude אתאימיים בני חמישה שבועות חולקו לקבוצת ביקורת שלילית ולקבוצת SK-MES-1 עם knockdown של FOXD1 (n = 8 עכברים לקבוצה). כל עכבר קיבל הזרקה תת-עורית של כ-8 × 10⁶ תאים. מעקב אחר הגידול החל שבוע לאחר השחלה; גודל הגידול נמדד מדי 4 ימים במשך 20 ימים רצופים. העכברים הומתו בהומניוטיקה על פי פרוטוקולים מוסדיים מאושרים ביום ה-27 לאחר ההזרקה, מיד לאחר המדידה האחרונה, והגידולים הוצאו, נשקלו צולמו. להשחלה שימשו אוכלוסיות תאי SK-MES-1 בעלות knockdown יציב של FOXD1 ואוכלוסיות תאי ביקורת שלילית תואמות.
אימונוכימיה
הגידולים שהוצאו הוטמעו בפרפין ונחתכו לעובי של 4–5 µm. הפרוסות עברו דפרפיניזציה, רהידרציה, דגירה למשך לילה ב-4 °C עם נוגדן ראשוני, ולאחר מכן דגירה עם הנוגדן המשני המתאים למשך 30 min. תאים חיוביים לאנטיגן הודגמו באמצעות תשת diaminobenzidine. FOXD1 ו-Ki-67 נבחנו בשיבובים (xenografts), כאשר פרוסות זוגיות עובדו באותה סדרת צביעה וצולמו תחת הגדרות רכישה זהות.
ניתוח סטטיסטי
הניתוחים הסטטיסטיים בוצעו באמצעות GraphPad Prism גרסה 8 (RRID: SCR_002798) ו-R (RRID: SCR_001905). להשוואות בין שתי קבוצות נעשה שימוש במבחן t של Student, ולהשוואות הכוללות יותר משתי קבוצות נעשה שימוש בניתוח שונות (ANOVA). בניתוחים של רקמות אנוש מזווגות נעשה שימוש ב-12 זוגות מטופלים; סיכומי in vitro מייצגים שלושה ניסויים ביולוגיים עצמאיים; בניתוחי xenograft נעשה שימוש בשמונה עכברים לכל קבוצה. חזרות טכניות לא נחשבו כתצפיות עצמאיות. הנתונים מוצגים כממוצע ± סטיית תקן. ערך P < 0.05 דו-זנבי נחשב למשמעותי מבחינה סטטיסטית.
תוצאות
ביטוי של FOXD1 מוגבר ברקמות LUSC אנושיות
שאילתה בניתוח אינטראקטיבי של פרופיל ביטוי גנים (GEPIA) הראתה שפע גבוה יותר של תמלילי FOXD1 ב-LUSC מאשר בדגימות ריאה נורמליות, בעוד שההשוואה בקרצינומה אדנומטית של הריאה לא הגיעה למשמעות סטטיסטית (איור 1A). ניתוח של 12 זוגות של רקמות LUSC ורקמות סמוכות שאינן גידול העניק את אותו כיוון שינוי באמצעות qRT-PCR ו-western blotting (איור 1B,C). צביעה אימונוהיסטוכימית הראתה גם היא אות FOXD1 חזק יותר בחתכים של גידולים מאשר ברקמה סמוכה זוגית (איור 1D).
השחלה (knockdown) של FOXD1 מפחיתה את החיוניות ואת הנדידה ומגבירה אפופטוזה בתאי LUSC
שפע התעתוק של FOXD1 היה גבוה יותר בתאי SK-MES-1 ו-NCI-H226 מאשר בתאי BEAS-2B (איור 2A). נסקרו שלושה RNA מפריעים קטנים (siRNA) המכוונים ל-FOXD1; siRNA-1 הפיק את ההפחתה הגדולה ביותר שזוהתה באמצעות qRT-PCR ו-western blotting ונבחר לבדיקות המשך (איור 2B,C). ביחס לבקרת השלילה, השתקה של FOXD1 הפחיתה את אות ה-Cell Counting Kit-8 (איור 2D), הגבירה את מספר התאים החיוביים ל-Annexin V (איור 2E), והפחיתה את הנדידה ב-Transwell (איור 2F) בשני קווי התאים של LUSC. רכיב נבחר יחיד הועבר לשלבים הבאים, ולכן התוצאות הפונקציונליות אינן מהוות הוכחה לשלילה של השפעות מחוץ למטרה (off-target effects) באופן שאינו תלוי רצף.
הביטוי של METTL3 נמצא במתאם עם FOXD1 בדגימות LUSC
מתילציה של m6A היא מודיפיקציה כימית דינמית והפיכה הנפוצה רבות באוקריוטים, המהווה רגולציה על ידי מתילטרנספראזות ודמתילאזות, ומזוהה ומעובדת על ידי חלבונים קושרים של m6A18. אות m6A גלובלי היה גבוה יותר ב-12 רקמות LUSC מאשר ברקמות סמוכות מצומדות, והיה גבוה יותר גם בשני קווי תאי LUSC מאשר בתאי BEAS-2B (איור 3A). תמלילים המקודדים ל-METTL3, METTL14, WTAP ו-RBM15 היו מוגברים בדגימות הגידולים הצומדות (איור 3B). על פני נתוני GEPIA ומערכת 12 הגידולים, FOXD1 הראה את הקשר החיובי הברור ביותר עם METTL3; הקשר עם RBM15 היה חלש יותר (איור 3C,D). Western blotting הראה בנוסף שפע גבוה יותר של METTL3 ברקמות גידול (איור 3E). ניתוחים אלו מבססים שונות משותפת (co-variation), ולא רגולציה ישירה.
השקטה של METTL3 משנה את שכיחות FOXD1 ואת הפנוטיפים של תאי LUSC
שלושה RNA קטנים ומעכבים (siRNAs) המכוונים ל-METTL3 נסרקו בתאי SK-MES-1 ו-NCI-H226 באמצעות qRT-PCR ו-western blotting (איור 4A,B). השתקה (knockdown) של METTL3 הפחיתה את אות ה-m6A הגלובלי (איור 4C). ביטוי יתר של FOXD1 העלה את רמות ה-FOXD1 מבלי להגביר את METTL3 (איור 4D), וניסוי ההצלה (rescue) בארבע קבוצות אישש את הירידה בשפע של FOXD1 לאחר השתקת METTL3 ואת השחזרו באמצעות ה-construct של FOXD1 (איור 4E,F). השתקת METTL3 הפחיתה את החיוניות והנדידה והגבירה את האפופטוזיס; ביטוי מחדש של FOXD1 נתנגד חלקית לשינויים אלו (איור 4G–I). לפיכך, נתוני ההצלה עקביים עם הפועלה של FOXD1 במורד הזרם (downstream) של METTL3 בתאים בתרבית.
הפרעה ל-METTL3 קשורה ליציבות של ה-RNA והחלבון של FOXD1
ראיות גוברות מצביעות על כך שמודיפיקציית m6A של mRNA מווסתת היבטים שונים של מחזור ה-mRNA, כולל שחלוף (splicing) של pre-mRNA, תרגום, ייצוא גרעיני-ציטופלסמי, פירוק ושחלוף19,20. SRAMP זיהה מוטיבים מועמדים של m6A ב-RNA של FOXD1, ו-m6A2Target רשם את METTL3 כ-"writer" חזוי הקשור ל-FOXD1 בתאי H1299 (איור 5A,B). פלטים אלו מבסיסי הנתונים הם מחוללי היפותזות ואינם מדגימים קישור או מתילציה ספציפית לאתרים בתאי LUSC. בעקבות חסום שעתוק באמצעות actinomycin D, רמות ה-RNA של FOXD1 ירדו במהירות רבה יותר לאחר knockdown של METTL3 מאשר בתאי ביקורת (איור 5C). שפע ה-FOXD1 היה גבוה יותר בתאים עם ביטוי יתר של METTL3 שטופלו ב-MG132 מאשר בביקורות וקטור שטופלו ב-MG132, בעוד שדפוס זה לא נצפה לאחר טיפול ב-CHX (איור 5D,E). מהלך הזמן של ה-CHX הראה אובדן מהיר יותר של חלבון FOXD1 לאחר knockdown של METTL3 (איור 5F). יחד, בדיקות אלו עקביות עם שינויים ב-RNA של FOXD1 וביציבות החלבון הקשורים ל-METTL3, אך אינן מזהות את האדנוזין שעבר מודיפיקציה, אינן מדגימות קישור ישיר, ואינן מגדירות "reader" של m6A.
השקתה של FOXD1 מדכאת את צמיחת קסנוגרפט של LUSC
כדי לבחון את תפקוד FOXD1 in vivo, תאי SK-MES-1 של ביקורת ותאים עם knockdown של FOXD1 הושתלו תת-עורית בעכברים עירומים (n = 8 לכל קבוצה). החל משבוע לאחר ההשתלה, הגדלים של הגדוליים נמדדו מדי 4 ימים למשך 20 ימים, והם נאספו ביום ה-27 לאחר ההזרקה. הגדולים שהוצאו היו קטנים יותר בקבוצת ה-knockdown של FOXD1 (איור 6A), עקומות הצמיחה שלהם עלו לאט יותר (איור 6B), ומשקלם הסופי היה נמוך יותר (איור 6C). גם צביעת FOXD1 ו-Ki-67 הייתה מופחתת בגידולים עם knockdown (איור 6D). ניסויים אלו מעריכים knockdown של FOXD1 בלבד; הם אינם בוחנים עיכוב של METTL3 in vivo.
בסיכום הדברים, FOXD1 היה מופרס ביתר (overexpressed) ברקמות ובתאים של קרצינומה סקוואמוזית של הריאה ותמך בהתרבות, בהגירה ובצמיחת קסנוגרפט. השתקת METTL3 הפחיתה את רמות m6A הגלובליות, הפחיתה את הביטוי של FOXD1 ופגעה בפנוטיפים תאיים ממאירים, בעוד שביטוי מחודש של FOXD1 הפך את השפעות אלו באופן חלקי. בדיקות היציבות תומכות בבקרה פוסט-טרנסקריפציונלית של FOXD1 הקשורה ל-METTL3, אך אינן מבססות מתילציה ספציפית לאתר או הצלה (rescue) של המסלול המלא in vivo. תכנון המחקר מסוכם ב-איור 7.
זמינות נתונים:
כל הנתונים שנותחו במחקר זה כלולים במאמר ובאיוריו. נתונים מספריים אנונימיים העומדים בבסיס הסיכומים המדווחים זמינים מהמחבר המקשר על פי בקשה סבירה, בכפוף לדרישות הממשל המוסדי והגנת המשתתפים. לא נעשה שימוש בקובצי סימולציה או בקוד ניתוח מותאם אישית.
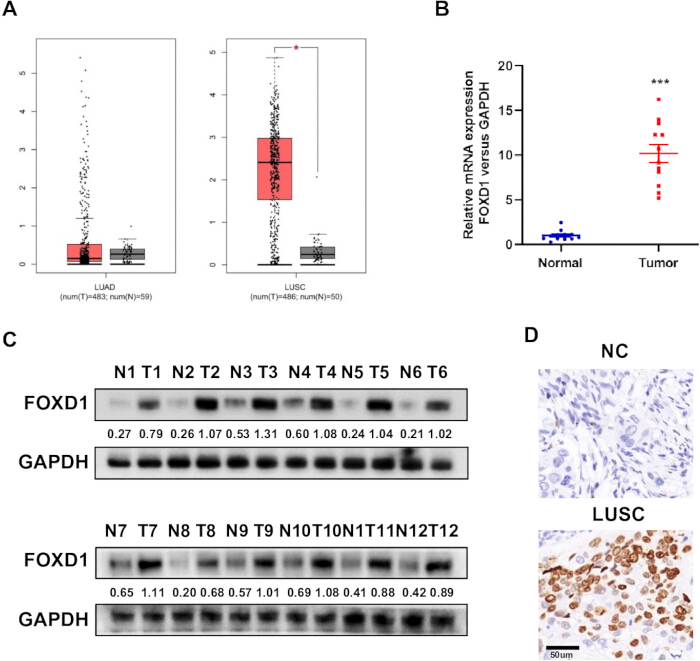
איור 1: ביטוי של FOXD1 בדגימות של סרטן ריאה אנושי. (A) השוואת GEPIA של שכיחות תמלילי FOXD1 באדנוקרצינומה של הריאה (LUAD) ובקרצינומה של תאי קשקש בריאה (LUSC) לעומת דגימות ריאה נורמליות. (B) שכיחות תמלילי FOXD1 ב-12 זוגות של LUSC ורקמות סמוכות שאינן גידוליות. (C) שכיחות חלבון FOXD1 באותן רקמות מזווגות. (D) אימונוהיסטוכימיה מייצגת של FOXD1. רקמה אנושית n = 12 זוגות; חזרות טכניות בסגנון in vitro אינן משנות את ה-n ברמת המטופל. סרגל קנה מידה בלוח D = 50 µm. ***P < 0.001. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
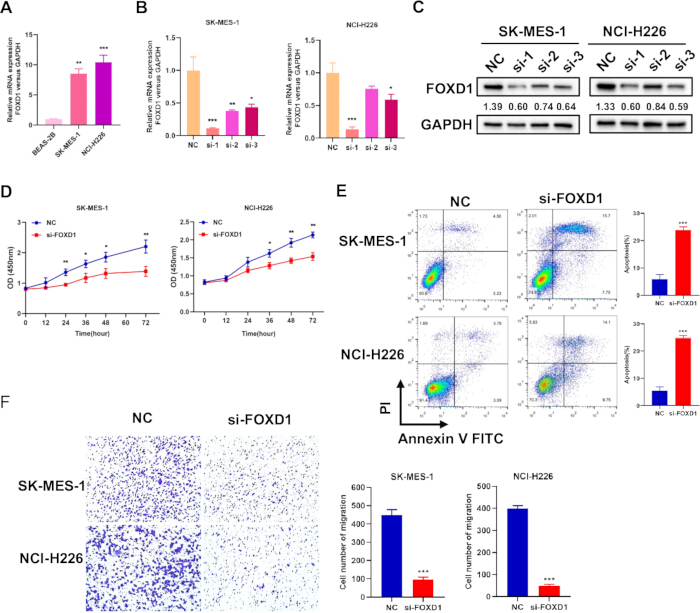
איור 2: השפעות של השתקת FOXD1 בתאי SK-MES-1 ו-NCI-H226. (A) שפע תמלילי FOXD1 בתאי BEAS-2B, SK-MES-1 ו-NCI-H226. (B) סריקת qRT-PCR של שלושה RNA קטנים ומפריעים (siRNAs) המכוונים ל-FOXD1 כ-48 שעות לאחר הטרנספקציה. (C) סריקת Western-blot של אותם שלושה siRNAs המכוונים ל-FOXD1. (D) בדיקת cell counting kit-8 לאחר השתקת FOXD1. (E) ניתוח אפופטוזיס באמצעות Annexin V–fluorescein isothiocyanate/propidium iodide ב-48 שעות. (F) מדידת נדידה ב-Transwell כ-24 שעות לאחר זריעת תאים שעברו טרנספקציה; תמונות שדה הראייה שנשמרו מוצגות ללא סרגל קנה מידה רטרוספקטיבי כיוון שנתוני כיול לא היו זמינים. בוצעו שלושה ניסויים ביולוגיים עצמאיים. *P < 0.05; **P < 0.01; ***P < 0.001. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
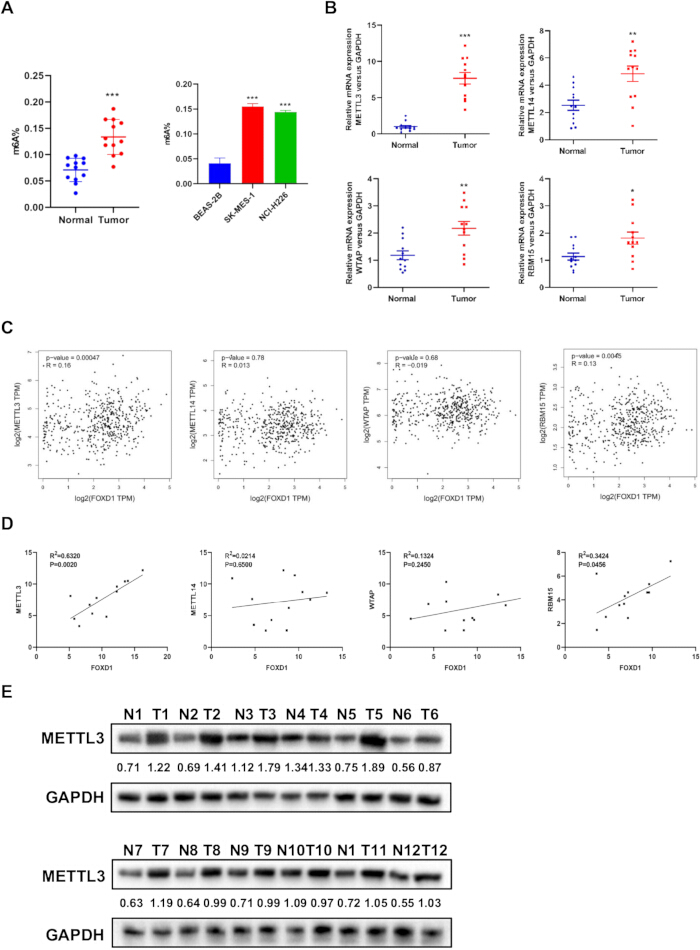
איור 3: N6-methyladenosine גלובלי והקשר בין METTL3 ל-FOXD1. (A) אות m6A גלובלי ברקמות זוגיות ובתאי BEAS-2B, SK-MES-1, ו-NCI-H226. (B) תמלולי METTL3, METTL14, WTAP, ו-RBM15 ב-12 זוגות של רקמות LUSC ורקמות סמוכות. (C) מתאמי GEPIA בין FOXD1 לבין כל writer. (D) מתאמים בין FOXD1 לתמלולי writer ב-12 גידולי LUSC. (E) חלבון METTL3 ברקמות LUSC זוגיות ורקמות סמוכות. רקמה אנושית n = 12 זוגות; בדיקות תאים מייצגות שלושה ניסויים ביולוגיים בלתי תלויים. *P < 0.05; **P < 0.01; ***P < 0.001. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
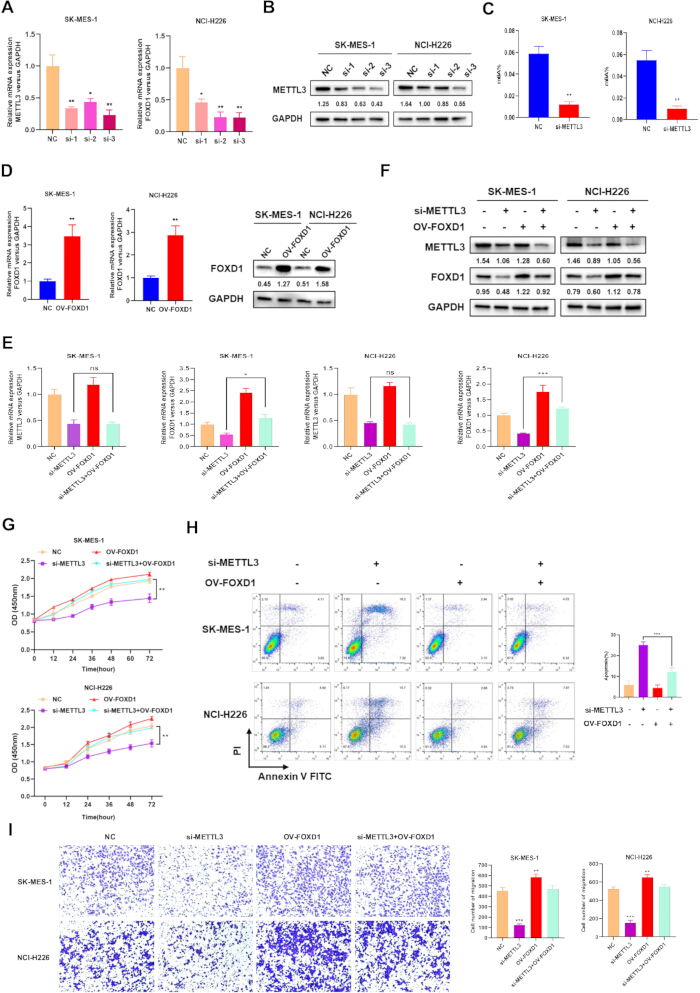
איור 4: השתקה של METTL3, הצלה על ידי FOXD1 ופנוטיפים של תאי LUSC. (A) סריקת qRT-PCR של שלושה RNA עם הפרעה קטנים (siRNA) המכוונים ל-METTL3, 48 שעות לאחר טרנספקציה. (B) סריקת Western-blot של אותם שלושה siRNA המכוונים ל-METTL3. (C) אות m6A גלובלי לאחר השתקת METTL3. (D) שכיחות של תמלילי וחלבון FOXD1 לאחר ביטוי יתר של FOXD1. (E) שכיחות תמלילי METTL3 ו-FOXD1 בתנאי בקרה, si-METTL3, ov-FOXD1, ותנאי משולב של si-METTL3 + ov-FOXD1, שנמדדה באמצעות qRT-PCR. (F) שכיחות חלבוני METTL3 ו-FOXD1 באותן קבוצות הצלה שנמדדה באמצעות Western blotting. (G) בדיקת Cell Counting Kit-8. (H) אפו פטוזיס באמצעות ציטומטריה של זרימה. (I) נדידה ב-Transwell. בוצעו שלושה ניסויים ביולוגיים בלתי תלויים. המספרים מתחת לפסי ה-western-blot מציינים יחסי חלבון מטרה/GAPDH מנורמלים. ns, לא מובהק; *P < 0.05; **P < 0.01; ***P < 0.001. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
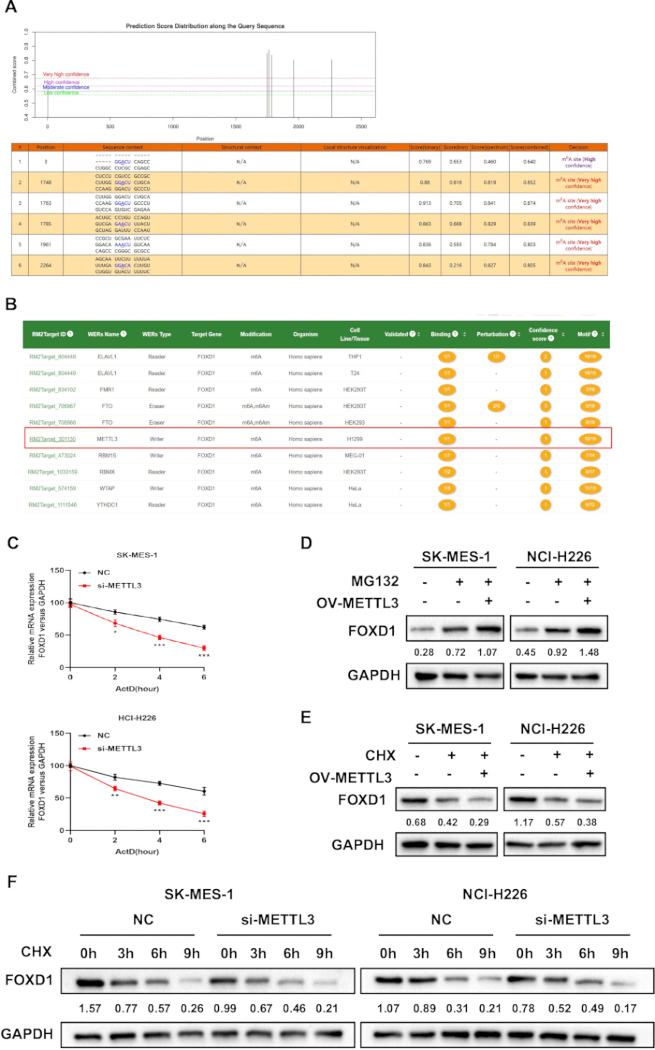
איור 5: METTL3 קשור לבקרת התעתק והחלבון של FOXD1. (A) אתרי N6-methyladenosine בתוך התעתק FOXD1 כפי שחזו SRAMP. (B) חיזוי באמצעות m6A2Target המזהה את METTL3 כ-writer מועמד הקשור ל-FOXD1. (C) שפע יחסי של mRNA של FOXD1 לאחר טיפול באקטינומיצין D בריכוז 5 µg/mL בתאי ביקורת שלילית ובתאים עם knockdown של METTL3 בנקודות זמן של 0 h, 2 h, 4 h ו-6 h. (D) שפע חלבון FOXD1 בתאי ביקורת עם וקטור ללא טיפול, תאי ביקורת עם וקטור שטופלו ב-MG132, ותאים עם ביטוי יתר של METTL3 שטופלו ב-MG132 (10 µM MG132). (E) שפע חלבון FOXD1 בתאי ביקורת עם וקטור ללא טיפול, תאי ביקורת עם וקטור שטופלו ב-CHX, ותאים עם ביטוי יתר של METTL3 שטופלו ב-CHX (20 µM CHX). (F) ביטוי חלבון FOXD1 לאחר טיפול ב-CHX בריכוז 20 µM למשך 0 h, 3 h, 6 h ו-9 h בתאי ביקורת שלילית ובתאים עם knockdown של METTL3. GAPDH שימש כביקורת העמסה. ניסויי התאים בוצעו בשלוש חזרות ביולוגיות בלתי תלויות. הבלוטים המוצגים הם מייצגים; המספרים מתחת לפסים מציינים יחסי FOXD1/GAPDH מנורמלים. *P < 0.05; **P < 0.01; ***P < 0.001. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
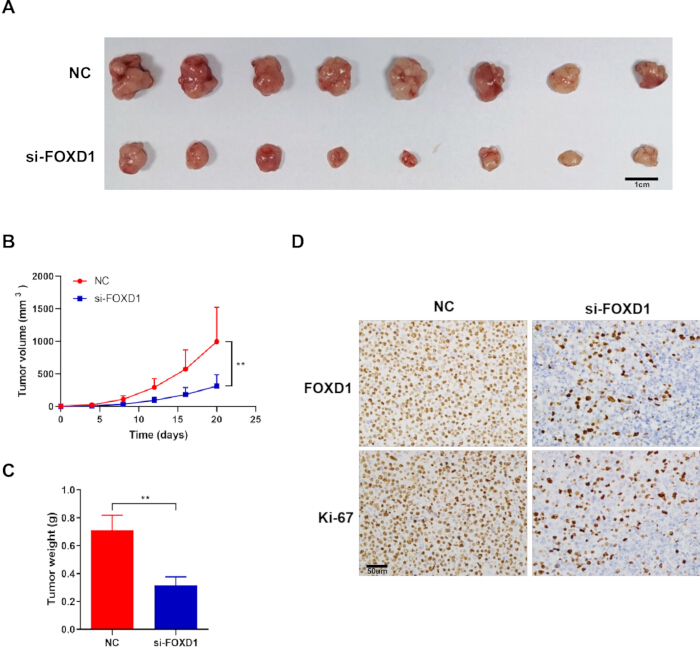
איור 6: השתקת FOXD1 מדכאת את צמיחת קסנוגרפט של SK-MES-1. (A) גידולים שהוצאו מקבוצות ביקורת שלילית ומקבוצות השתקת FOXD1; סרגל קנה מידה = 1 cm. (B) צמיחת הגידול שנמדדה מדי 4 ימים במשך 20 ימים, החל משבוע לאחר ההשתלה, עם איסוף ביום ה-27 לאחר ההזרקה. (C) משקל הגידול בעת האיסוף. (D) דוגמה של אימונוהיסטוכימיה ל-FOXD1 ו-Ki-67 ברקמת קסנוגרפט; סרגל קנה מידה = 50 µm. n = 8 עכברים לקבוצה; **P < 0.01. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
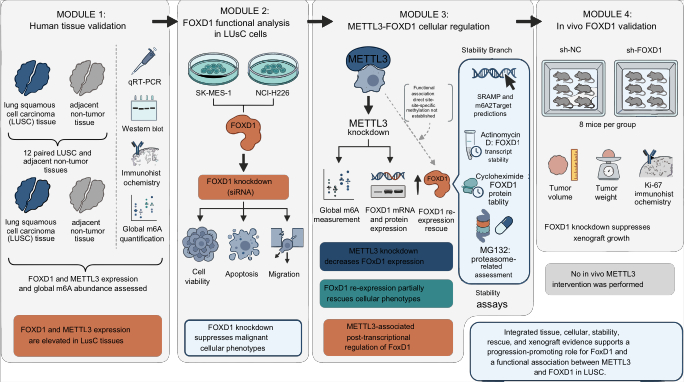
איור 7מערך המחקר הכולל וגבולות הראיותרקמות LUSC จับוזגות (n = 12 זוגות) וקווי תאים שימשו לאפיון של FOXD1, METTL3 ו-m6A גלובלי; לאחר הפרעה גנטית והצלה (rescue), בוצעו בדיקות חיוניות, אפופטוזיס, נדידה ויציבות. מודל קסנוגרפט של השתקה (knockdown) של FOXD1 (n = 8 עכברים לכל קבוצה) נוטר במשך 20 ימים. הדיאגרמה מבדילה בין ראיות ל-METTL3 המבוססות על תאים לבין ראיות ספציפיות ל-FOXD1. in vivo ראיות ומזהה קישור ישיר, m6A ספציפי לאתר, זהות קורא, ו- in vivo פעילות METTL3 כבלתי נבדקת. אנא לחץ כאן כדי לצפות בגרסה מורחבת של איור זה.
| Gene | Direction | Sequence (5′–3′) |
| FOXD1 | Forward | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Reverse | CGGAATCGGACGCAAGTCTT |
| GAPDH | Forward | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Reverse | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | Forward | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Reverse | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | Forward | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Reverse | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | Forward | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Reverse | CACTTAAAACACCGGCATTGG |
| WTAP | Forward | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Reverse | CTGCTGGACTTGCTTGAGGTAC |
טבלה 1: רצפי פריימרים לתגובת שרשרת פולימראז עם שעתוק הפוך כמותי (Quantitative reverse-transcription polymerase chain reaction). הרצפים מדווחים בכיוון 5′–3′.
דיון
תהליך העבודה הנוכחי תומך בתפקידו של FOXD1 ב-LUSC על פני רקמות זוגיות, שני קווי תאים ומודל קסנוגרפט. FOXD1 היה גבוה יותר בדגימות גידול ובתאי LUSC, והדלתו הפחיתה את החיוניות ואת הנדידה תוך הגברת האפופטוזיס. ממצאים אלו תואמים לדיווחים הקושרים את FOXD1 לצמיחה, פלישה, עמידות לטיפול ותוצאות רעות במספר סוגי סרטן 10,11,12,13,21,22,23,24,25,26,27,28. הם גם מרחיבים תצפיות קודמות ב-LUSC על ידי קישור פנוטיפים מבוססי תאים לניסוי קסנוגרפט של knockdown ל-FOXD1.
ניתוחי רקמות תאים ותאים צמדו קישור נוסף בין שכיחות FOXD1 לבין METTL3 ו-m6A גלובלי. ארבעה גנים של "כותבים" (writers) היו מוגברים ב-12 זוגות הגידולים, אך METTL3 הראה את הקשר החיובי החזק ביותר עם FOXD1. בתאים בתרבית, דילול של METTL3 הפחית את ה-m6A הגלובלי ואת שכיחות FOXD1, וביטוי מחדש של FOXD1 הציל באופן חלקי את הפנוטיפים הנלווים של חיוניות, אפופטוזיס ונדידה. נתונים אלה תומכים בקשר תפקודי בין METTL3 ל-FOXD1 בתאים שנבדקו, באופן העולה בקנה אחד עם ההשפעה הרחבה של ויסות m6A על פנוטיפים ממאירים29,30,31,32,33,34,35,36.
מספר נקודות בפרוטוקול הן חשובות להשגת רבמיקרוביות (reproducibility). יש לאשר את יעילות השבבת (knockdown) בכל סוג תא לפני ביצוע בדיקות תפקודיות, ותנאי ההצלה (rescue) צריכים לאמת את השחזור של FOXD1 מבלי לפרש את המבנה (construct) כביטוי יתר של METTL3. טיפולים ב-Actinomycin D, CHX ו-MG132 חייבים להשתמש בריכוזים ובזמני הדגימה המצוינים בפרוטוקול. יש לשלוט בצפיפות התאים, במדרג הסרום ובשדה הדמיון העקבי בבדיקות Transwell. אם חוקר מתאים את זרימת העבודה, ייתכן ש-RNA בעלת סיכה קצרה (short hairpin RNA) יציבה או עריכה גנומית יהיו עדיפים לניסויי in vivo ארוכי טווח, אך חלופות אלה דורשות תיקוף עצמאי.
למחקר מספר מגבלות. הקוהורט האנושי כלל 12 דגימות מזווגות ולא תוכנן למודל של תוצאות. רק RNA קטן מפריע (siRNA) נבחר אחד הועבר לבדיקות פונקציונליות, ולכן לא הושגה תיקוף של השפעות מחוץ למטרה (off-target) שאינן תלויות ברצף. פרשנות ה-Western-blot מוגבלת לערכים הנורמליים המוצגים בדמויות; לא בוצעו בדיקות הסקה בדיעבד (post hoc). תחזיות של SRAMP ו-m6A2Target, מדידות m6A גלובליות ובדיקות יציבות אינן מהוות תחליף לשיקוע חיסוני של RNA (RIP), שיקוע חיסוני של RNA מתילטור (MeRIP), מוטגנזה מכוונת לאתר או הצלה תלוית-קורא. METTL3 לא הופר in vivo, ולכן נתוני הקסנוגרפט אינם יכולים לתמוך בטענה לגבי METTL3 in vivo.
מחקרים עתידיים צריכים לבחון עיכוב פרמקולוגי של METTL3, למפות אתרי m6A הקשורים ל-FOXD1 וקישור ישיר, לזהות את חלבון ה-reader הרלוונטי, ולחזור על אסטרטגיית ההצלה in vivo. תידרש גם קוהורט גדולה יותר עם אנוטציה עצמאית כדי להעריך תוצאים קליניים. במסגרת היקפו הנוכחי, המחקר תומך ב-FOXD1 כווסת תפקודי של LUSC ומספק ראיות מבוססות תאים לכך ש-METTL3 משפיע על שכיחות ה-FOXD1; הוא אינו מבסס מסלול מלא של METTL3-m6A-reader-FOXD1.
גילויים
המחברים מצהירים כי אין להם ניגוד עניינים.
תרומת המחברים:
D.A. ו-Q.D. תרמו לאיסוף נתונים ולהשגת מידע קליני. K.W. ו-S.F. ביצעו ניסויי ביולוגיה מולקולרית וניתוח נתונים. L.G. השתתף בתכנון המחקר ובפירוש הנתונים. H.Z. ביצע ניתוח סטטיסטי וסייע באימות הנתונים. Y.S. ביצע ניסויי חיות וניתוח אימונוהיסטוכימי. Q.P. תרם למבחני נדידה ולמשאבים ניסיוניים. G.L. הגה והנחה את המחקר וכתב את טיוטת כתב היד. כל המחברים סקרו, ערכו ואישרו את כתב היד.
תודות
המחברים מודים ל-Zhe Tang ול-Yan Zhang על סיוע טכני בביצוע תגובת שרשרת פולימראז כמותית (qPCR) ובבדיקת Western blotting, בהתאמה, ול-Yang Li על סיוע בבדיקות חיוניות תאים ואפופטוזיס. מחקר זה מומן על ידי Natural Science Foundation of Tibet Autonomous Region (מספר XZ202001ZR0040G).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מערכת 7500 Fast Real-Time PCR | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| אקטינומיצין D | Sigma-Aldrich | SBR00013 | בדיקת יציבות RNA, 5 µg/mL |
| ערכה לבדיקת אפופטוזיס Annexin V-FITC/PI | BD Biosciences | 556547 | אפופטוזיס במדידת ציטומטריה של זרימה |
| עכברי BALB/c nude אתיימיים | לא רלוונטי | לא רלוונטי | שבח תמיכה תת-עורי (Subcutaneous xenograft) |
| BEAS-2B | בנק התאים של האקדמיה הסינית למדעים | https://www.cellosaurus.org/CVCL_0168 | תאי אפיתל ברונכיאליים שאינם גידוליים כביקורת; RRID: CVCL_0168 |
| ערכה לספירת תאים-8 | Beyotime | C0037 | חיוניות תאים |
| סגול גבישי (Crystal violet) | במידה ולא סופק טקסט מקור לתרגום, נא לספק את התוכן המיועד לעיבוד. | לא רלוונטי | צביעת Transwell, 10 דקות |
| ציקלוהקסימיד | MedChemExpress | HY-12320 | בדיקות יציבות חלבונים, 20 µM |
| ערכה למצע DAB | לא רלוונטי | K//A | ויזואליזציה של אימונוהיסטוכימיה |
| מדיום Eagle משונה של Dulbecco | Gibco | 11995065 | תרבית תאים |
| ריאגנט כימילומינצנציה משופר | Thermo Fisher Scientific | A38556 | גילוי באמצעות Western-blot |
| סרום עגל עוברי | Gibco | 10091148 | תרבית תאים, 10% |
| סייטומטר זרימה | לא רלוונטי | לא רלוונטי | מדידת אפופטוזיס |
| נוגדן FOXD1 | Thermo Fisher Scientific | PA5-27142 | תסמיכי חלבון (Western blot), 1:1,000; אימונוהיסטוכימיה |
| בנאית לביטוי יתר של FOXD1 | לא רלוונטי | K/A | הצלה של FOXD1 |
| נוגדן GAPDH | Cell Signaling Technology | 5174 | בקרת טעינה ל-Western-blot, 1:2,000 (RRID: AB_10622025) |
| GEPIA | אוניברסיטת בקין | http://gepia.cancer-pku.cn/ | שאילתות ביטוי ומתאם; RRID: SCR_018294 |
| GraphPad Prism | תוכנת GraphPad | גרסה 8 | ניתוח סטטיסטי; RRID: SCR_002798 |
| נוגדן anti-rabbit immunoglobulin G המצומד ל-Horseradish peroxidase | לא רלוונטי | מכיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן באנגלית שברצונך לתרגם לעברית. | Western blot, שעה אחת בטמפרטורת החדר |
| ImageJ | המכונים הלאומיים לבריאות | https://imagej.nih.gov/ij/ | כימות תמונות הגירה; RRID: SCR_003070 |
| נוגדן Ki-67 | לא רלוונטי | לא רלוונטי | אימונוהיסטוכימיה של קסנוגרפט |
| m6A2Target | משאב רשת | http://m6a2target.canceromics.org/ | אסוציאציה חזויה בין ווסת m6A למטרה |
| נוגדן למתילטרנספראז דמוי 3 (Methyltransferase-like 3) | Proteintech | 15073-1-AP | Western blot, 1:1,000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | בדיקת עיכוב פרוטאוזום, 10 µM |
| בדיקה קולורימטרית של N6-methyladenosine | Epigentek | P-9005-96 | מדידה גלובלית של m6A |
| NCI-H226 | בנק התאים של האקדמיה הסינית למדעים | https://www.cellosaurus.org/CVCL_1544 | מודל תאי LUSC; RRID: CVCL_1544 |
| מיקרוסקופ Olympus | Olympus | המודל לא הוקלט | דימות Transwell |
| פניצילין-סטריפטומייצין | Gibco | 10378016 | תרבית תאים, 1% |
| ממברנת פוליוינילידן פלואוריד | Merck | IPVH00010 | העברה ב-Western-blot |
| ערכה של ריאגנטים לשעתוק הפוך PrimeScript | Takara | RR037A | סינתזת דנ"א משלים |
| פרויקט R לחישוב סטטיסטי | R Foundation | https://www.r-project.org/ | ניתוח סטטיסטי; RRID: SCR_001905 |
| בופר ליזיס לבדיקת שיקוע חיסוני רדיואקטיבי (Radioimmunoprecipitation assay) | Beyotime | P0013B | הפקה של חלבונים |
| RNAiso Plus | Takara | 9108 | מיצוי RNA |
| ריאגנטים של siRNA | לא רלוונטי | לא רלוונטי | השתקת FOXD1 ו-METTL3; נבחר siRNA-1 |
| SK-MES-1 | בנק התאים של האקדמיה הסינית למדעים | https://www.cellosaurus.org/CVCL_0630 | מודל תאי LUSC ומודל קסנוגרפט; RRID: CVCL_0630 |
| SRAMP | משאב רשת | http://www.cuilab.cn/sramp | חיזוי אתרי m6A מועמדים ב-FOXD1 |
| תערובת מאסטר ל-PCR עם TB Green | Takara | RR820A | qRT-PCR |
| סוכן טרנספקציה | לא רלוונטי | לא רלוונטי | החדרה של siRNA ופלסמידים |
| סבבי Transwell | לא רלוונטי | לא רלוונטי | בדיקת נדידה (Migration assay) |
מקורות
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.