פרוטוקול זה מתאר את הבנייה וההערכה המולקולרית של זן רקומביננטי רב-גנים ללא סמן של Escherichia coli , שתוכנן לשילוב כרומוסומלי של גנים הקשורים לעמידות וספיחה של מתכות כבדות.
מאמר שיטה
שילוב כרומוזומלי ללא סמן של קסטה רב-גנית ב-Escherichia coli לצורך פיתוח ביו-סננות למתכות כבדות
במאמר זה
סיכום
תקציר
זיהום במתכות כבדות נותר אתגר סביבתי משמעותי בשל העמידות, הרעילות והביואקומולציה של מזהמי מתכות. חיידקים שעברו הנדסה גנטית מציעים גישה פוטנציאלית לסנפית (remediation) של מתכות כבדות; עם זאת, מערכות ביטוי מבוססות פלסמיד עלולות להציב מגבלות הקשורות לתחזוקת הפלסמיד ולסלקציה אנטיביוטית. מחקר זה מתאר פרוטוקול לבניית זן רקומביננטי של E. coli ללא מרקר, שתוכנן עבור אינטגרציה כרומוזומלית של גנים הקשורים לעמידות ולסקוואסטרציה (sequestration) של מתכות כבדות. קסאט רב-גני באורך 4,741 bp הכולל את cadD, cadA, ומתלותיונין (mt), יחד עם מערכת תצוגה על פני השטח של חלבון ממברנה חיצונית ליפופרוטאיני A (Lpp-OmpA) וגן רפורטר של חלבון פלואורסצנטי ירוק (gfp) תחת בקרתו של פרומוטור קונסטיטוטיבי של pyruvate dehydrogenase (Ppdh), תוכנן וסונתז. המבנה שובט לתוך וקטור האינטגרציה pKIKOArsBKm והוכנס לתוך E. coli MG1655 באמצעות רקומבינציה מתווכת lambda (λ) Red. קסאט העמידות לקנמיצין הוסר לאחר מכן באמצעות מערכת הרקומבינציה flippase–flippase recognition target (FLP-FRT). הרכבת המבנה והאינטגרציה הכרומוזומלית הוערכו באמצעות אנליזה של אנזימי הגבלה, בידוד פלסמידים והגברה באמצעות תגובת שרשרת פולימראז (PCR), בעוד שאובדן העמידות לאנטיביוטיקה הוערך באמצעות בדיקת רגישות לאנטיביוטיקה. הגברה של מקטעי cadD, cadA, ו- mt הצפויים מתוך DNA גנומי, יחד עם היעדר DNA פלסמידי שניתן לזיהוי, סיפקו ראיות התואמות לאינטגרציה כרומוזומלית של הקסאט הרב-גני. אף על פי שפרוטוקול זה מניח תשתית לבנייה ולהערכה מולקולרית של הזן הרקומביננטי, אישור סופי של לוקוס האינטגרציה, ביטוי גני תפקודי, יציבות גנטית לטווח ארוך וביצועי ביוסורפציה של מתכות כבדות דורשים תיקוף ניסויי נוסף.
מבוא
זיהום במתכות כבדות הפך לסוגיה סביבתית מרכזית בשל העמידות, חוסר התפרקות ביולוגית והרעילות של מזהמי מתכת. בניגוד למזהמים אורגניים, מתכות כבדות מצטברות במערכות אקולוגיות וחודרות לשרשרת המזון באמצעות ביו-אקומולציה (bioaccumulation) וביו-מגניפיקציה (biomagnification), ובכך מהוות סיכון חמור לבריאות הסביבה והאדם. טכנולוגיות שיקום קונבנציונליות, הכוללות שיקוע כימי, חילוף יונים וסינון ממברנתי, קשורות לרוב לעלויות תפעול גבוהות, ליעילות מוגבלת בריכוזי מתכת נמוכים וליצירת מזהמים משניים. כתוצאה מכך, אסטרטגיות של שיקום ביולוגי זכו לתשומת לב גוברת כחלופות בנות-קיימא לסביבה וכלכליות להסרת מתכות כבדות1.
מבין הגישות הביולוגיות הללו, ביוסורפציה חיידקית התגלתה כטכנולוגיה מבטיחה לסנירת מתכות כבדות. ביוסורפציה כוללת ספיגה פסיבית של יוני מתכת על ידי חומרים ביולוגיים באמצעות אינטראקציות פיזיקו-כימיות בין יוני המתכת לקבוצות פונקציונליות, כגון קבוצות קרבוקסיל, הידרוקסיל, אמינו ופוספט, הנמצאות על פני השטח של התא המיקרוביאלי2. אינטראקציות אלו מקלות על הסרת המתכת באמצעות מנגנונים של חילוף יונים, קומפלקסציה, קואורדינציה והשקעה. בשל יחס שטח פנים לנפח גבוה, צמיחה מהירה וכימיה מגוונת של פני השטח של התא, חיידקים הם ביוסורבנטים יעילים במיוחד. היעילות של ביוסורפציה חיידקית תלויה בגורמים מרובים, כולל מין החיידק, מאפייני יון המתכת, pH, טמפרטורה ונוכחות של יונים מתחרים3. בנוסף לספיחה פסיבית, חיידקים יכולים להסיר באופן פעיל מתכות כבדות באמצעות סקוסטרציה תוך-תאית, ביו-אקומולציה, ביו-מינרליזציה ומנגנוני ניקוי רעלים אחרים, ובכך להגביר את יכולתם להסרת מתכות4.
הסתגלות חיידקים לסביבות המזוהמות במתכות כבדות מתווכת על ידי מנגנוני עמידות מגוונים, הכוללים משאבות השחלה (efflux pumps) הקשורות לממברנה, חלבוני קישור למתכות, מערכות דה-טוקסיפיקציה אנזימטיות ונתיבי חמצון-חיזור ששומרים יחד על הומיאוסטזיס של מתכות בתוך התא. מספר אופרוני עמידות למתכות כבדות, כולל מערכות ה- mer, chr, ars, ו- cad , אופיינו רבות והם מהווים משאבים גנטיים בעלי ערך להנדסה של ביוסורבנטים חיידקיים. אופרון ה- mer מתווך דה-טוקסיפיקציה של כספית על ידי חיזור של Hg2⁺ רעיל לכספית יסודית נדיפה (Hg°)5, בעוד שאופרון ה- chr מעניק עמידות לכרומט על ידי חיזור של Cr6⁺ ל-Cr3⁺ פחות רעיל 6. באופן דומה, אופרון ה- ars מנטרל רעילות של ארסנאט באמצעות חיזור לארסניט ואחריו השחלה פעילה7. הגן cadA , שזוהה ב- Staphylococcus aureus RN4220 וב- Bacillus megaterium TWSL_4, מקודד ל-P-type ATPase המייצא באופן פעיל יוני קדמיום מהציטופלזמה, ובכך מפחית את הרעילות התוך-תאית ותורם לעמידות החיידק למתכת8,9. חלבוני קישור למתכות, כגון מטאלותיאונינים ופיטוכלאטינים, מגבירים עוד יותר את הסבילות למתכות כבדות על ידי סקסטרציה (בידוד) של יוני מתכת ומניעת אינטראקציה ביניהם לבין מרכיבים תאיים חיוניים10.
התקדמויות אחרונות בביולוגיה סינתטית אפשרו הנדסה רציונלית של ביוסורבנטים בקטריאליים בעלי יכולות קשירה משופרות למתכות. מחקרים קודמים הדגימו הסרה משופרת של מתכות כבדות באמצעות ביטוי יתר של חלבונים קושרי מתכת ב- Bacillus subtilis ו- Pseudomonas putida11, אימוביליזציה של תאים בקטריאליים בתוך מטריצות אלגינאט או ביופילמים לשיפור היציבות והיכולת לשימוש חוזר12, והחדרה של פפטידים סינתטיים קושרי מתכת ל- E. coli על מנת להגביר את הביוסורפציה של כספית וארסניק13. למרות התקדמויות אלו, רוב הביוסורבנטים המהונדסים מסתמכים על מערכות ביטוי מבוססות פלסמיד הדורשות סלקציה אנטיביוטית רציפה והן רגישות לאי-יציבות של הפלסמיד, לאובדן בשל סגרגציה, למספר עותקים משתנה של הגנים ולעומס מטבולי מוגבר. מגבלות אלו מפחיתות את התאמתם ליישומים סביבתיים ותעשייתיים שבהם יציבות גנטית ארוכת טווח ובטיחות ביולוגית הן קריטיות.
לפיכך, פיתוח אסטרטגי של ביוסורבנטים חיידקיים דורש שילוב של מיקרוביולוגיה, ביולוגיה מולקולרית, ביולוגיה סינתטית והנדסה סביבתית. התקדמויות בתחומי הגנומיקה, הפרוטאומיקה והמטבולומיקה שיפרו עוד יותר את הבנתנו לגבי תגובות חיידקים לעקה של מתכות כבדות, ובכך סייעו בזיהוי של גנים חדשים ומסלולים רגולטוריים להנדסת ביוסורבנטים משופרים.
בניגוד לגישות קונבנציונליות המבוססות על פלסמידים, מחקר זה מבסס פלטפורמה הנדסית לבניית רקומביננט רב-גנתי, נטול סמנים ומשולב כרומוזומלית. *E. coli* זן הנושא גנים הקשורים לעמידות לספיגה של מתכות כבדות. אסטרטגיית ההנדסה משלבת λ רקומבינרינג אדום (Red recombineering), כריתת סמן בתיווך FLP-FRT, קסטה רב-גנית קונסטיטוטיבית, ותכנון לתצוגה על פני השטח המבוסס על Lpp-OmpA. הקסטה הרב-גנית כללה cadD (619 bp), cadA (2,564 bp), ומטאלותיונין (mt(154 bp), אשר נבחרו על בסיס תפקידיהם שדווחו בעבר בעמידות למתכות כבדות ובסגרגיריות של מתכות (metal sequestration). הגנים אורגנו תחת ה- Ppdh פרומוטור, עם אתרי קישור לריבוסומים בודדים, ו- מיטוכונדריה חובר ל-Lpp-OmpA למטרת לוקליזציה לפני השטח. רצף במורד הזרם gfp גן דגלי (reporter gene) שולב בתוך הקונסטרוקט.
הקססטה תוכננה לשילוב כרומוזומלי בתוך E. coli MG1655, במקום תחזוקה מתמשכת על פלסמיד רב-עותקים. אסטרטגיה זו נבחרה כדי לבסס מסגרת הנדסית שעשויה להפחית את התלות בתחזוקת פלסמידים ובסלקציה רציפה באמצעות אנטיביוטיקה. השרה של גזירה המתווכת על ידי FLP-FRT של הסמן לברירה לעמידות לאנטיביוטיקה שולבה בזרימה העבודה, ובדיקות רגישות לאנטיביוטיקה שימשו להערכת הפנוטיפ שהתקבל. המחקר הנוכחי מתמקד בהרכבת הקונסטרוקטים ובהערכה מולקולרית של הזן הרקומביננטי. יציבות גנטית ארוכת טווח, ביטוי פונקציונלי של הגנים המשולבים, לוקליזציה של חלבונים, הסרת מתכות כבדות וביצועים סביבתיים לא הובחנו ודורשים תיקוף ניסיוני נוסף.
פרוטוקול זה מיועד לחוקרים בתחומי הביולוגיה המולקולרית, הביוטכנולוגיה המיקרוביאלית והביולוגיה הסינתטית השואפים לבנות זנים חיידקיים עם ריבוי גנים המשולבים בכרומוזום וללא סמנים. השיטה מתאימה במיוחד להנדסה גנטית בקנה מידה מעבדתי ולהערכה מולקולרית של זני E. coli רקומביננטיים שתוכננו למחקרי ביו-רמדיאציה של מתכות כבדות בעתיד, ולא לצורך יישום סביבתי ישיר.
פרוטוקול
כל הניסויים בוצעו בהתאם להנחיות הבטיחות הביולוגית של המעבדה המוסדית ולתקנות הרלוונטיות לטיפול במיקרואורגניזמים שעברו שינוי גנטי. כל החומרים והתוכנות ששימשו במחקר הנוכחי מפורטים בטבלת החומרים.
1. תכנון וניתוח in silico של המבנה הרב-גני.
- בחירת הגנים לעמידות למתכות כבדות.
- בחר את הגנים לעמידות למתכות כבדות cadD (619 bp), cadA (2,564 bp), ומתאלותיונין (mt; 154 bp), שזוהו בעבר מ- Staphylococcus epidermidis TWSL_17, Bacillus megaterium TWSL_4, ו- Staphylococcus warneri TWSL_6, בהתאמה.
- השג את רצפי הנוקלאוטידים של cadD, cadA, ו- mt ממאגר הנתונים NCBI GenBank באמצעות מספרי הגישה MK900473.1, MK327282.1, ו- MK900456.1, בהתאמה.
הערה: גנים אלה נבחרו על בסיס אפיון קודם של זני החיידקים המקור עבור סבילות והסרה של מתכות כבדות, ומקורות רצפי הנוקלאוטידים של כל אלמנט גנטי שנשלב במבנה הביוסורבנט מפורטים בטבלה 1.
- ביצוע אנליזה in silico של הגנים הנבחרים והחלבונים המקודדים.
- ייבא את רצפי הנוקלאוטידים של cadD, cadA, ו- mt לתוכנה (למשל, SnapGene) ובצע אנליזה של רצפי הקידוד.
- תרגם את רצפי הנוקלאוטידים לרצפי חומצות האמינו התואמים להם באמצעות שרת התרגום של ExPASy.
- שלח את רצפי חומצות האמינו החזויים של CadD, CadA, ו- Mt ל- I-TASSER ובצע חיזוי של מבני החלבון התלת-ממדיים ואתרי קישור פוטנציאליים לליגנדים.
- בצע אנליזה של רצפי החלבונים CadD, CadA, ו- Mt באמצעות שרת TMHMM לחיזוי דומיינים טרנס-ממברנליים.
- בצע אנליזה של רצפי החלבונים באמצעות שרת ExPASy TMPRED לחיזוי פרופילי הידרופוביות ואזורים הקשורים לממברנה.
הערה: רשום את שאריות הקישור לליגנדים החזויות, את הפרמטרים המבניים, את הדומיינים הטרנס-ממברנליים ואת פרופילי ההידרופוביות לצורך פרשנות עתידית של התפקודים החזויים והמיקום של החלבונים המקודדים.
- תכנון קסטת הרב-גנים.
- תכנן קסטת רב-גנים באורך 4,741-bp המכילה את הפרומוטר הקונסטיטוטיבי של אופרון פירובאט דהידרוגנאז (Ppdh), cadD, cadA, Lpp-OmpA, mt, וגן דשן gfp.
- מקם את הגנים הנבחרים במורד הזרם (downstream) של הפרומוטר הקונסטיטוטיבי Ppdh ושלב אתר קישור לריבוזום (RBS; 5′-AGGAGG-3′) במעלה הזרם (upstream) של כל רצף קידוד.
- חבר את רצף המתאלותיונין לרצף Lpp-OmpA כדי ליצור את רכיב ה-Lpp-OmpA-Mt המיועד למיקום של המתאלותיונין בממברנה החיצונית של החיידק.
- שלב את gfp במורד הזרם של הגנים הקשורים למתכות כבדות כדשן להערכה עתידית של ביטוי המבנה.
- אמת את האוריינטציה, את מיקומי הנוקלאוטידים ואת הארגון הכללי של האלמנטים הגנטיים במבנה הסופי באורך 4,741-bp באמצעות SnapGene.
- סינתזה ושכפול של מבנה הרב-גנים.
- שלח את מבנה הרב-גנים הסופי באורך 4,741-bp לסינתזה מסחרית ושכפול לתוך וקטור pET-21a בין אתרי ההגבלה BamHI ו- XhoI.
- עם קבלת מבנה pET-21a הרקומיננטי, שחזר את הפלסמיד על פי הוראות הספק והמשך בטרנספורמציה לתוך E. coli BL21(DE3).
הערה: E. coli BL21(DE3) שימש להפצה ראשונית של מבנה הרב-גנים המסונתת מסחרית שסופקה בוקטור הביטוי pET-21a. למרות ש- BL21(DE3) משמש בעיקר לביטוי חלבון רקומביננטי, הוא תואם גנוטיפית ל- pET-21a ושימש בהצלחה במחקר זה. לחלופין, ניתן להשתמש בזני שכפול ייעודיים כגון E. coli DH5α או TOP10 להפצה ראשונית של הפלסמיד, שכן ביטוי T7 RNA polymerase אינו נדרש בשלב זה.
2. בניית קסטת הביוסורבנט רב-הגנים.
- הפוך את המבנה המסונתז ל- *E. coli* BL21(DE3).
- הפשרה .E. coli תאי BL21(DE3) כשירים (competent) תאים על קרח.
- הוסיפו 10–100 נ"ג של הפלסמיד הרקומיבננטי pET-21a המסנתז, המכיל את מבנה הביוסורבנט (biosorbent construct), ל- 50 µL של *E. coli* תאי BL21(DE3) כשירים (competent cells). ערבבו בעדינות את התוכן ללא פיפוט חוזר.
- הדגרימו את תרחיף התאים על קרח למשך 30 דקות.
- בצע הלם תרמי לתאים ב- 42 °C למשך 45 שניות.
- העבירו מיד את המבחנות לקרח והדגירו למשך 2 דקות.
- הוסף 500 µL של (מחומם מראש (37 °C), מצע SOC סטרילי (Super optimal medium with catabolic repressor) ללא אנטיביוטיקה. דגרו את התרבית ב- 37 °C עם ניעור (180 rpm) למשך שעה אחת כדי לאפשר התאוששות.
- הפצה 100 µL של התרבית שעברה טרנספורמציה על צלחות אגר LB (Luria-Bertani) המכילות אמפיסילין (100 µg/mL). הדגרירו את הפלטות למשך 16–18 שעות ב- 37 °C.
- יש לאמת את קיומם של טרנספורמנטים חיוביים הנושאים את הפלסמיד הרקומיננטי.
- בחר מושבה בודדת ומבודדת היטב מתוך צלחת האגר הסלקטיבית והזרק אותה לתוך 5 מ"ל של מצע LB נוזלי (LB broth) המכיל אמפיסילין (100 µg/mL).
- דגרו את התרבית למשך 16–18 שעות ב- 37 °C עם ניעור (180 rpm).
- בודד DNA פלסמידי מתרבית חיידקים שגודלה במשך 16–18 שעות.
- העבירו 5 מ"ל של תרבית חיידקים שגודלה במשך 16–18 שעות לפקום צנטריפוגה ואספו את התאים על ידי צנטריפוגציה ב-11,000 × ג למשך 1 דקה. השליך את העליליות לחלוטין.
- השעה את משקע התאים באופן יסודי ב- 250 µL של תמיפת ET קרה מאוד.
- הוסף 250 µL של באפר ליזיס (lysis buffer) שהוכן טרי, וערבב בעדינות על ידי היפוך השפופרת מספר פעמים (אין להשתמש בוורטקס). הדגר את התערובת על קרח למשך 5 דקות.
- הוסף 300 µL ממסל היותירה (neutralization solution) וערבב בעדינות על ידי היפוך השפופרת מספר פעמים (אין להשתמש בוורטקס).
- סבב את התערובת בצנטריפוגה ב-11,000 × ג במשך 10 דקות, ולאחר מכן העבר בזהירות את הנוזל העליון (supernatant) למבחנה חדשה למיקרוצנטריפוגה, מבלי להפריע למשקע (pellet).
- הוסיפו פנול שעבר שיווי משקל עם TE לסופרנטנט שנאסף ביחס נפחי של 1:1 וערבבו היטב. צנטריפוגו במהירות של 11,000 × ג׳ למשך 10 דקות, ולאחר מכן העבירו בזהירות את השכבה המימית העליונה למבחנת מיקרוצנטריפוגה נקייה מבלי להפריע לממשק.
זהירות: פנול הוא חומר מאכל רב ורעיל שעלול לגרום לכוויות כימיות חמורות. יש לטפל בכל התמיסות המכילות פנול בתוך מבתח כימי מאושר תוך לבישת ציוד מגן אישי מתאים. - הוסיפו אתנול מוחלט בנפח כפול מנפח הפאזה המימית שהופקה, ולאחר מכן נפח של 0.1 מ-נתרן אצטט בריכוז 0.1 N. ערבבו היטב והדגרימו בטמפרטורה של −20 °C למשך 15 דקות כדי לאפשר שקיעה של ה-DNA.
- סבבו את הדגימה בצנטריפוגה במהירות של 11,000 × ג למשך 20 דקות. הסר את הנוזל העליון (supernatant) בזהירות, מבלי להזיז את משקע ה-DNA.
- שטפו את משקע ה-DNA באתנול 70% (נפח/נפח) וסובבו בצנטריפוגה כדי לשקיע מחדש את ה-DNA. הסירו בזהירות את האתנול והשאירו את המשקע להתייבש באוויר.
- המס את משקע ה-DNA היבש ב- 20 µL של באפר TE או מים נקיים מנוקליאזות.
נקודת עצירה: יש לאחסן את ה-DNA הפלסמי המבודל בטמפרטורה של −20 °C עד אשר יידרשו לצורך עיכול באמצעות אנזימי הגבלה ואימות של הפלסמיד הרקומיננטי.
- אששו את הפלסמיד המבודד באמצעות עיכול באנזימי הגבלה.
- הכן/הכיני 50 µL תגובת עיכול רסטריקציה במבחנה מיקרו-צנטריפוגית סטרילית המכילה 500 ננוגרם של DNA פלסמידי, 5 µL מתוך 10× בופר לאנזים הגבלה, 10 U של כל אחד מ-BamHI ו-XhoI, ומים נקיים מנוקלאז עד לנפח סופי של 50 µL.
הערה: BamHI ו-XhoI נבחרו מכיוון שאתרי הגבלה אלה שימשו לשבט של קסטת הגן הביוסורבנטי המסונתזת אל תוך הווקטור pET-21a.
- הכן/הכיני 50 µL תגובת עיכול רסטריקציה במבחנה מיקרו-צנטריפוגית סטרילית המכילה 500 ננוגרם של DNA פלסמידי, 5 µL מתוך 10× בופר לאנזים הגבלה, 10 U של כל אחד מ-BamHI ו-XhoI, ומים נקיים מנוקלאז עד לנפח סופי של 50 µL.
- דגרו את תערובת התגובה ב- 37 °C למשך שעה אחת.
- הפרידו והעריכו את מקטעי ה-DNA שעברו עיכול באמצעות אלקטרופורזה על ג'ל אגרוז, כדי לאמת את נוכחותה ואת הגודל הצפוי של קסטת הגנים של הביוסורבנט.
- הכינו תמיסת אגרוז בריכוז 1% (משקל/נפח) באמצעות 100 מ"ל של 1× בופר TAE.
- חממו את תרחיף האגרוז במיקרוגל עד להמסה מלאה של האגרוז ועד שהתמיסה תיראה צלולה. צננו את האגרוז הנוזלי לטמפרטורה של כ- 60 °C.
- הוסף 10× צבע DNA Safe Stain לאגרזה המותכת והמקולרת, כדי להגיע לריכוז סופי של 1×ערבבו בעדינות כדי למנוע היווצרות בועות אוויר.
- שפכו את תערובת האגרוזה לתבנית יציקה לג'ל המכילה מסרק מתאים. הסירו בועות אוויר גלויות והניחו לג'ל להתקשות לחלוטין בטמפרטורת החדר.
- העבירו את הג'ל שהתגבש לתא האלקטרופורזה והוסיפו כמות מספקת של 1× בופר ריצה TAE לכיסוי הג'ל. הוצא את המסרק בזהירות.
- ערבב 5 µL של כל דגימת DNA עם 1 µL מתוך 6× בופר טעינה ל-DNA והעמיסו את התערובת לתוך בארות בודדות.
- בצעו אלקטרופורזה במתח של 100 V למשך 40 דקות או עד להשגת הפרדה מספקת של מקטעי ה-DNA.
- יש להדגים את פסי ה-DNA באמצעות מאיר UV (transilluminator) ולהקליט את תמונת הג'ל באמצעות מערכת תיעוד ג'לים מתאימה.
זהירות: קרינת על-סגול עלולה לגרום לפגיעה בעיניים ובעור. יש להשתמש במגנה ובציוד הגנה מתאים מפני קרינת UV בעת הפעלת מאיר-UV (UV transilluminator).
הערה: יש לכלול דגימת פלסמיד שאינו מעוכר כביקורת, כדי לאמת את השגת עיכול מלא על ידי אנזים ההגבלה בג'ל האגרוז.
- שמור את הזן הרקומיננטי המאושר.
- העבר מושבה רקומביננטית מאושרת לתוך 5 מ"ל של מצע LB נוזלי המכיל אמפיסילין (100 µg/mL) והדגירה תתבצע במשך 16–18 שעות ב- 37 °C עם ניעור (180 סל"ד).
- ערבבו את התרבית שגודלה במשך 16–18 שעות עם גליצרין סטרילי כדי להגיע לריכוז סופי של 15% גליצרין (v/v).
- חלק את מלאי הגליצרול (glycerol stock) למבחנות קירור (cryovials) סטריליות ואחסן בטמפרטורה של −80 °C.
נקודת עצירה: אחסנו מנות גליצרול ב-−80 °C לשימור לטווח ארוך לפני ההמשך לשלב השילוב הכרומוזומלי.
3. שיבוט של קסטת הביוסורבנט לתוך וקטור האינטגרציה הכרומוזומלית (pKIKOArsBKm) ואינטגרציה לתוך הגנום של המארח (E. coli MG1655)
- שכפל את קסטת הגנים של הביוסורבנט (biosorbent) אל תוך וקטור האינטגרציה pKIKOArsBKm.
- עבדו בעיכול נפרד של הפלסמיד הרקומיננטי pET-21a, הנושא את קסטת הגנים של הביוסורבנט, ואת וקטור האינטגרציה pKIKOArsBKm באמצעות SacI ו-BamHI.
- הכן 50 µL תגובת עיכול רסטריקציה המכילה 500 ננוגרם של DNA פלסמידי, 1× בופר לאנזים הגבלה, 1 U מכל אחד של SacI ו-BamHI, ומים נקיים מנוקלאז עד לנפח סופי של 50 µLדגרו את תערובת התגובה ב- 37 °C למשך שעה אחת.
- הפרידו את מקטעי ה-DNA שעברו עיכול באמצעות אנזימי הגבלה על ידי אלקטרופורזה של ג'ל אגרוז, כפי שמתואר בשלב 2.2.6.
- גזרו את הפסים המתאימים לקסטת הגן הביוסורבנטי (biosorbent) בגודל 4,741 bp ולוקטור ה-pKIKOArsBKm הליניארי. העבירו כל פרוסת ג'ל שנגזרה לתוך מבחנה למיקרוצנטריפוגה שנשקלה מראש.
הערה: יש לצמצם את חשיפת מקטעי ה-DNA מטרת למקרי קרינת UV במהלך הוויזואליזציה והגזירה. - טהרו את קסטת הגן של הביוסורבנט שהוצאה ואת וקטור pKIKOArsBKm הליניארי מהג'ל אגרוזה.
- שקלו את המבחנה המכילה את פרוסת הג'ל וחשבו את מסת האגרוז שהוצאה על ידי חיסור משקל המבחנה הריקה.
- הוסף 1× תמיסת TE בנפח השווה לחמישה גדלים ממסת פרוסת הג'ל, תוך שימוש ביחס של 5 µL של באפר TE לכל 1 מ"ג אגרוז (למשל, הוספה של 500 µL של תמיפת TE לפרוסת ג'ל במשקל 100 מ"ג).
- דגרו את המבחנה במקלח מים ב- 65 °C עד שהאגרוז נמס לחלוטין. יש להמתין עד שהדגימה תתקרר לטמפרטורת החדר לפני שמתקדמים למיצוי בפנול.
- בצעו את השלבים 2.2.3.6–2.2.3.10 כדי לבצע מיצוי פנול והשקה של מקטעי ה-DNA המטרה.
נקודת עצירה: יש לאחסן את ה-DNA המטוהר בטמפרטורה של −20 °C עד אשר יידרשו לצורך שיבוט (cloning) או ליגציה (ligation) עוקבים.
- בצע ליגציה של קסטת הגן של הביוסורבנט המטוהרת לתוך וקטור pKIKOArsBKm שעבר ליניאריזציה, באמצעות T4 DNA ligase, ביחס מסה של מקריב לווקטור של כ-3:1.
- הכינו 10 µL תגובת ליגציה המכילה 150 ננוגרם (ng) של קסטת הגנים הביוסורבנטית המופקת, 49.2 ננוגרם (ng) של וקטור pKIKOArsBKm ליניארי, 1 µL של באפר T4 DNA ligase בריכוז 10X, ו-3 יחידות (U) של T4 DNA ligase. הוסיפו מים נקיים מנוקליאז (nuclease-free water) עד לנפח סופי של 10 µLתוך שמירה על יחס מסות של מקטע מוכנס (insert) לווקטור של בערך 3:1.
- ערבבו בעדינות את התגובה באמצעות פיפוט והדגרירו למשך 16–18 שעות ב- 4 °C.
- המר 5 µL של תערובת תגובת הליגציה אל תוך *E. coli* Pir1 תאים.
- הפשרה *E. coli* תאי Pir1 כשירים על קרח.
- הוסף 5 µL של תערובת תגובת הליגציה ל- 50 µL של .E. coli תאים כשירים מסוג Pir1. ערבבו בעדינות את התכנים ללא פיפטציה חוזרת.
- שמור את תרחיף התאים על קרח למשך 30 דקות.
- העבירו את התאים הלם חום ב- 42 °C למשך 45 שניות.
- החזירו את המבחנות מיד לקרח והשאירו אותן שם למשך 2 דקות.
- הוסף 500 µL של [מרכיב], סטרילי וחומם מראש (37 °C) מצע SOC ללא אנטיביוטיקה. אפשרי לתאים להתאושש במשך שעה אחת ב- 37 °C עם ניעור במהירות של 180 rpm.
- פלטה 100 µL של תערובת הטרנספורמציה עלה אגר LB המכיל kanamycin (50 µg/mL) באמצעות פוזריסטרילי. דגרו את הצלחות ב- 37 °C למשך 16–18 שעות.
- בחרו מושבות רקומביננטיות מבודדות היטב העמידות לקנמיצין מלוחיות ה-LB אגר.
- יש לאשר את נוכחותו של הפלסמיד הרקומיננטי המשולב באמצעות בידוד פלסמיד כפי שמתואר בשלב 2.2.3, ולאחר מכן באמצעות אלקטרופורזה על ג'ל אגרוז כפי שמתואר בשלב 2.2.6.
נקודת עצירה: יש לאחסן את תגובת הליגציה שהושלמה בטמפרטורה של −20 °C עד אשר יידרשו עבור התרשמה (transformation) ואימות עוקבים של מבנה ה-pKIKOArsBKm הרקומביננטי.
- עבדו בעיכול נפרד של הפלסמיד הרקומיננטי pET-21a, הנושא את קסטת הגנים של הביוסורבנט, ואת וקטור האינטגרציה pKIKOArsBKm באמצעות SacI ו-BamHI.
- העברה (Transformation) של תוצר הליגציה המכיל את מבנה ה-pKIKOArsBKm הרקומביננטי אל *E. coli* MG1655.
- הכנה λ תאי מאכסן לרקומבינציה מסוג Red.
- הכנת תאים כשירים כימית (chemically competent) *E. coli* תאי MG1655.
- בחר מושבה בודדת ומבודדת היטב של *E. coli* MG1655 מלוחית אגר LB והעבירו אותה ל-5 מ"ל של מרק LB. דגרו את התרבית ב- 37 °C במשך 16–18 שעות תוך כדי ניעור.
- העבירו 0.5 מ"ל מהתרבית של הלילה לתוך 50 מ"ל של מצע Super Optimal Broth (SOB) סטרילי. דגרו את התרבית ב- 37 °C בניעור במהירות של 180 rpm עד שה-OD₆₀₀ מגיע ל-0.35–0.45.
- העבירו מיד את התרבית לאמבט קרח וקררו היטב.
- העבירו את התרבית המקוררת לנבובת צנטריפוגה סטרילית בנפח 50 מ"ל שקוררה מראש, וסובבו בצנטריפוגה ב- 10,000 × ג במשך 10 דקות ב- 4 °C.
- הסיר בזהירות את הנוזל העליון (supernatant) והשעה בעדינות את משקע התאים ב-20 מ"ל של מים דה-יונזיים (deionized water) קרים.
- סובב את תרחיף התאים בצנטריפוגה במהירות של 10,000 × גמר במשך 10 דקות ב- 4 °Cיש להסיר בזהירות את הנוזל העליון (supernatant).
- שחזר בעדינות את משקע התאים ב-2 מ"ל של סידן כלוריד (calcium chloride) בריכוז 0.1 M, קרר לטמפרטורת קרח, והשאר את התרחוף על קרח למשך 30 דקות.
- סבב את התוך תלויים בצנטריפוגה במהירות של 10,000 × ג במשך 5 דקות ב- 4 °Cלאחר מכן, הסר בזהירות את הנוזל העליון (supernatant).
- שחזר בעדינות את משקע התאים הסופי ב-1 מ"ל של 0.1 M CaCl2 קר במיספר.₂העבר/העבר מספיק מהחומר 80 µL מנות (aliquots) של התרחיף בעל המסמכות הכימית (chemically competent) *E. coli* תאי MG1655 לתוך מבחנות מיקרו-צנטריפוגה סטריליות ומקוררות מראש. השתמש בתאים בעלי כשירות כימית (competent) E. coli תאי MG1655 לשימוש מיידי לטרנספורמציה או אחסון של המנות ב- (−)80 °C עד לשימוש.
- טרנספורמציה של תאים בעלי כשירות כימית *E. coli* תאי MG1655 עם ה- λ פלסמיד רקומבינציית Red pKD46 באמצעות הליך טרנספורמציה בחום (heat-shock).
- הוסיפו 100 ng של פלסמיד pKD46 ל- 80 µL של מבחנה למיקרוצנטריפוגה מקוררת המכילה תאי חיידקים בעלי כשירות כימית (chemically competent) *E. coli* תאי MG1655. ערבבב את התוכן בעדינות ללא פיפוט חוזר.
- דגרו את תרחיף התאים על קרח למשך 30 דקות.
- חשוף את התאים להלם חום ב- 42 °C למשך 45 שניות.
- העבירו את המבחנות מיד לקרח והשאירו אותן שם למשך 2 דקות.
- הוסף 500 µL של מצע SOC סטרילי ללא אנטיביוטיקה. דגרו את התרבית ב- 30 °C עם ניעור (180 סל"ד) למשך שעה אחת כדי לאפשר התאוששות.
- פיזור 100 µL של התרבית שעברה טרנספורמציה על צלחות אגר LB המכילות אמפיסילין (100 µg/mL). הדגרירו את הצלחות למשך 16–18 שעות ב- 30 °C.
הערה: שמירה על *E. coli* MG1655(pKD46) ב- 30 °C עד לשימוש בשלב 3.2.2 כדי לשמור על פלסמיד pKD46 הרגיש לטמפרטורה.
- הכנת תאים כשירים כימית (chemically competent) *E. coli* תאי MG1655.
- הכנת תאים אלקטרו-קומפטנטים (Electrocompetent) .E. coli תאי MG1655(pKD46).
- החדירו 1 מ"ל של תרבית שגודלה במשך 16–18 שעות *E. coli* תרבית של MG1655(pKD46) לתוך בקבוק ארלנמאייר המכיל 250 מ"ל של מצע LB מועשר באמפיסילין (100 µg/mL) והדגרימו את התרבית ב- 30 °C עם ניעור במהירות של 180 rpm עד שערך ה-OD₆₀₀ מגיע ל-0.35–0.40.
- הוסף L-arabinose בריכוז 10% (משקל/נפח), שעקר בסינון, עד לריכוז סופי של 0.1% (משקל/נפח) כדי להשרות את הביטוי של ה- λ חלבוני רקומבינציה של Red.
הערה: עבור תרבית של 250 מ"ל, יש להוסיף 2.5 מ"ל של L-arabinose בריכוז 10% (משקל/נפח) כדי להגיע לריכוז סופי של כ-0.1% (משקל/נפח). - דגרו את התרבית המהומה למשך 15 דקות נוספות ב- 30 °C עם ניעור במהירות של 180 rpm.
- העבירו את בקבוק ארלנמאייר המכיל את התרבית לאמבט קרח והדגירו למשך 40 דקות.
- העבירו את התרבית המקוררת לתוך מבחנות צנטריפוגה שקוללו מראש ואספו את התאים על ידי סבוב בצנטריפוגה במהירות של 1,800 × ג' במשך 15 דקות ב- 4 °Cהסר בזהירות את העלייה (supernatant).
- השעה בעדינות את משקע התאים ב-30 מ"ל של גליצרול 10% (נפח/נפח) קר, ולאחר מכן סבב במרכזפוגה במהירות של 3,000 × ג במשך 5 דקות ב- 4 °C.
- הסיר את הנוזל העליון וחזור על השטיפה המתוארת בשלב 3.2.2.6 פעמיים נוספות, כך שיהיו סך הכל שלושה שטיפות עם גליקרול 10% (v/v) קר מאוד. לאחר השטיפה האחרונה, השלך בזהירות את הנוזל העליון ותלה את המשקע ב- 200 µL של גליצרול 10% (v/v) קר מאוד.
- העבירו את התאים בעלי היכולת להפוך למספיקים חשמלית (electrocompetent) *E. coli* תאי MG1655(pKD46) לתוך 50 µL יש לחלק למנות (aliquots) ולשמור את התאים על קרח עד לאלקטרופורציה.
הערה: השתמשו בתאים האלקטרו-קומפטנטים שהוכנו זה עתה באופן מיידי לאלקטרופורציה. לחלופין, חלקו את התאים למשבצות (aliquots) בתוך מבחנות מיקרו-צנטריפוגה סטריליות, והקפיאו בטמפרטורה של -80 °C, ולהפשיר על קרח לפני השימוש הבא.
- יש לבצע ליניאריזציה לקונסטרוקט האינטגרציה הרקומביננטי שהתקבל בשלב 3.1.5.
- בצע עיכול לפלסמיד הרקומיננטי pKIKOArsBKm, הנושא את קסטת הגן של הביוסורבנט, באמצעות אנזים ההגבלה NotI כדי להפוך את קונסטרקט האינטגרציה ללינארי.
- יש לאשר את העיכול המלא של הפלסמיד הרקומיננטי באמצעות אלקטרופורזה על ג'ל אגרוז, כפי שמתואר בשלב 2.2.6.
- טהרו את מקטע ה-DNA הליניארי מתערובת תגובת העיכול באמצעות מיצוי בפנול והשקעת DNA, כפי שמתואר בשלבים 2.2.3.6–2.2.3.10.
- בצע אלקטרופורציה של קונסטרקט האינטגרציה הליניארי לתוך תאים אלקטרו-קומפטנטים *E. coli* MG1655(pKD46).
- הוסיפו כ-250 ננוגרם (ng) של ה-DNA הליניארי המטוהר משלב 3.2.3.3 אל 50 µL של תאים אלקטרו-קומפטנטים (electrocompetent) שהוכנו רגע לפני הבדיקה *E. coli* תאי MG1655(pKD46). ערבבו בעדינות והעבירו את תערובת התאים-DNA לכובית אלקטרופורציה שקוללה מראש.
- בצעו אלקטרופורציה לתאים במתח של 1.8 kV וקיבול של 600 $\mu\text{F}$ Ωו- 25 µF באמצעות מכשיר אלקטרופורטור.
- הוסף באופן מיידי 500 µL של מצע SOC לקוובט electroporation וערבב בעדינות את התאים עד להומוגניות.
- העבירו את תרחיף התאים שהושג למבחנת מיקרוצנטריפוגה סטרילית, ואפשרו לתאים להתאושש במשך שעה אחת ב- 37 °C עם ניעור במהירות של 180 rpm.
- הפצה 100 µL של תרחיף התאים שהופקו על צלחות אגר LB המועשרות בקנמיצין (50 µg/mL) והדגירה תתבצע במשך 16-18 שעות ב- 37 °C.
- סננו את המושבות הרקומביננטיות כדי לבדוק שילוב כרומוזומלי.
- בחרו מושבות בודדות העמידות לקנמיצין והחדירו כל אחת מהן לשפופרה נפרדת המכילה 10 מ"ל מצע LB broth עם קנמיצין בריכוז סופי של 50 µg/mL.
- גדלו את התרביות במשך 16–18 שעות ב- 37 °C עם ניעור במהירות של 180 סל"ד.
- העבירו 5 מ"ל מכל תרבית למבחנה סטרילית נפרדת ובודדו את ה-DNA הפלסמי כפי שמתואר בשלב 2.2.3.
- נתחו את ה-DNA שהבודד באמצעות אלקטרופורזה על ג'ל אגרוז כפי שמתואר בשלב 2.2.6.
- זהו את הדגימות שבהן לא ניתן להבחין ב-DNA פלסמי באמצעות אלקטרופורזה של ג'ל אגרוזה, ושמור דגימות אלו להערכה עתידית של שילוב כרומוסומלי.
- בודדו DNA גנומי מ-5 המ"ל הנותרים מכל תרבית שנשמרה בשלב 3.2.5.3, והשתמשו ב-DNA הגנומי המבודד כתבנית להגברה באמצעות PCR של ה- cadD, cadAו- מיטוכונדריה גנים כפי שמתואר בשלב 3.2.7.
- העבירו 5 מ"ל של תרבית חיידקים שגודלה במשך 16–18 שעות לפקום צנטריפוגה סטרילי, ושקעו את התאים על ידי צנטריפוגה במהירות של 11,000 × ג' במשך 10 דקות ב- 4 °Cיש להשליך את העילוי.
- שחזר בעדינות את משקע התאים ב-5 מ"ל של תמיסת סליין עם בופר פוספט (PBS) סטרילית. סבב בצנטריפוגה במהירות של 11,000 × ג' במשך 10 דקות ב- 4 °Cולבסוף, הסר את הנוזל העילי לחלוטין.
- שחזר את משקע התאים השטוף ב- 100 µL של תמיסת ליזוזים (50 mg/mL) והדגרירו את התוךה ב- 37 °C למשך שעה אחת.
- הוסף 500 µL של תמיסת Guanidine thiocyanate בריכוז 5 M לתאים שעובדו בליזוזים. ערבבו בעדינות והדגירו בטמפרטורת החדר למשך 10 דקות.
זהירות: גואנידין תיוכיינאט הוא חומר מזיק ועשוי לשחרר גזים רעילים כאשר הוא מעורבב עם חומצות או עם מלבין. יש להשתמש בציוד מגן אישי מתאים ולטפל בתמיסות המכילות גואנידין בהתאם לנהלי הבטיחות הכימית של המוסד. - הנח את הדגימה על קרח למשך 10 דקות, ולאחר מכן הוסף 250 µL של אמוןיום אצטט (ammonium acetate) בריכוז 7.5 M קר מאוד, תוך כדי ערבוב עדין. השהה את התערובת על קרח למשך 10 דקות נוספות.
- הוסיפו פנול שעבר שיווי משקל עם TE לליזט ביחס של 1:1 (נפח/נפח). ערבבו היטב במערבל וורטקס וסבבו בצנטריפוגה במהירות של 10,000 × ג למשך 15 דקות.
זהירות: פנול וכלורופורם הם רעילים ומגשרים (קורוזיביים). יש לטפל בפנול בתוך מופע כימי מאושר תוך לבישת ציוד מגן אישי מתאים. - העבירו בזהירות את השכבה המימית העליונה למבחנה חדשה למיקרוצנטריפוגה שהיא סטרילית, מבלי להפריע לממשק.
- הוסיפו 0.1 נפח של תמיסת סודיום אצטט ו-2 נפחים של אתנול מוחלט לשלב המימי שחולץ. ערבבו בעדינות על ידי הפיכה, ולאחר מכן הדגרירו ב־20 °C למשך 20 דקות.
- סבבו את הדגימה בצנטריפוגה במהירות של 10,000 × ג למשך 15 דקות. הסר בזהירות את הנוזל העליון (supernatant) מבלי להסיט את משקע ה-DNA.
- שטפו את משקע ה-DNA באמצעות 100 µL של אתנול 70% (נפח/נפח).
- סבוב בצנטריפוגה במהירות של 10,000 × ג במשך 10 דקות, הסירו את האתנול שנותר, ויבשו את משקע ה-DNA באוויר בטמפרטורת החדר למשך 10 דקות.
- המס מחדש את משקע ה-DNA המיובש ב-20–50 µL של באפר TE או מים נקיים מנוקליאז (nuclease-free water).
נקודת עצירה: יש לאחסן את ה-DNA הגנומי המבודד בטמפרטורה של −20 °C עד אשר יידרשו לניתוח מולקולרי בהמשך.
- הערכת אינטגרציה כרומוזומלית באמצעות PCR ספציפי לגן ואנליזה של DNA פלסמידי.
- הכינו בנפרד 25 µL תערובות תגובת PCR להגברה של ה- cadD, cadAו- מיטוכונדריה (mt) גנים.
- עבור כל תגובה, הוסף את הפריימרים קדימה (forward) ולאחור (reverse) המתאימים עד לריכוז סופי של 0.4 µM כל אחד, יחד עם 1× בופר PCR, 200 µM מכל dNTP, 1.5 mM MgCl2₂, 100 ננוגרם (ng) של DNA גנומי שבודד בשלב 3.2.6, ו-Taq DNA polymerase בריכוז של 0.2 יחידות (U)/µLהוסף מים נטולי נוקלאז עד לנפח תגובה סופי של 25 µL.
- שכפל את הגנים מטרת באמצעות PCR לפי תוכנית המחזורים הבאה: דנטורציה ראשונית ב- 95 °C במשך 5 דקות; בצע 35 מחזורים של דנטורציה ב- 94 °C למשך 30 שניות, עיגון (annealing) למשך 30 שניות בטמפרטורה הספציפית לגן הרשואה ב- טבלה 2, והסניפה ב- 72 °C למשך 1 דקה; לאחר מכן בצעו הארכה סופית ב- 72 °C למשך 5 דקות.
- נתחו את תוצרי ה-PCR באמצעותת הולכה חשמלית של ג'ל אגרוז כפי שמתואר בשלב 2.2.6, יחד עם סולם DNA של 1 kB כמסמן לגודל המולקולרי.
- העריכו את תוצרי ה-PCR על ידי השוואת מהירות נדידתם עם סולם DNA של 1 ק"ב, וזהו את הפסים התואמים לגדלי האמפליקון המצופים של 619 זוג בסיסים עבור cadD, 2,564 bp עבור cadA, ו-154 bp עבור mt.
הערה: היעדר DNA פלסמי שניתן לזיהוי, בשילוב עם הגברה של ה- cadD, cadAו- מיטוכונדריה מקטעים מ-DNA גנומי מספקים ראיות התומכות באינטגרציה כרומוזומלית של קסטת הגנים של הביוסורבנט.
- הכינו בנפרד 25 µL תערובות תגובת PCR להגברה של ה- cadD, cadAו- מיטוכונדריה (mt) גנים.
- הכנה λ תאי מאכסן לרקומבינציה מסוג Red.
4. הסרת סמן העמידות לקנמיצין.
- הכנת תאי E. coli MG1655 רקומביננטיים בעלי יכולת אלקטרו-קומפטנציה עם קסטת הגנים של Biosorbent .
- בצע אינוקולציה של מושבה רקומביננטית של E. coli MG1655 הנושאת את קסטת ה-biosorbent המשולבת בכרומוזום (שאישורה בוצע בשלב 3.2.7), אל תוך 5 mL של מצע LB broth בתוספת kanamycin (50 µg/mL).
- דגור את התרבית ב-37 °C עם ניעור ב-180 rpm עד שה-OD₆₀₀ יגיע ל-0.4–0.6.
- העבר את התרבית לקרח מיד לאחר שה-OD₆₀₀ הגיע ל-0.4–0.6 ודגור על קרח למשך 15 min.
- קצור את התאים על ידי סנטריפוגציה ב-4,000 × g למשך 10 min ב-4 °C והסר את הנוזל העליון (supernatant).
- שטוף את משקע התאים פעמיים עם מים דה-יונזים קרים מאוד (בטמפרטורת קרח), ולאחר מכן בצע שטיפה אחת עם glycerol 10% (v/v) קר מאוד.
- סספנד מחדש את משקע התאים הסופי ב-50 µL של glycerol 10% (v/v) קר מאוד.
הערה: שמור את התאים ואת כל התמיסות קרים מאוד לאורך הליך השטיפה כדי לשמר את יכולת האלקטרו-קומפטנציה.
- אלקטרפורציה של פלסמיד העזר pCP20
- הוסף 50 ng של פלסמיד העזר pCP20 ל-50 µL של תאים בעלי יכולת אלקטרו-קומפטנציה. ערבב בעדינות והעבר את התערובת לקובט אלקטרפורציה שקולל מראש.
- בצע אלקטרפורציה לתאים באמצעות ההגדרות הבאות: 2.5 kV, 600 Ω, ו-25 µF.
- הוסף מיד 1 mL של מצע SOC לקובט וסספנד בעדינות את התאים.
- העבר את התאים שהחלימו למבחנה סטרילית ודגור ב-30 °C עם ניעור ב-180 rpm למשך 1 h.
- פרוס 100 µL מהתרבית שהחלימה על מצעי LB agar בתוספת ampicillin (100 µg/mL). דגור את הצלחות למשך 16–18 h ב-30 °C.
- בחר מושבות בודדות מבודלות היטב כדי לאשר את הרקומביננטים החיוביים.
- אשר את נוכחות פלסמיד pCP20 על ידי בידוד פלסמידים כפי שמתואר בשלב 2.2.3, ולאחריו אלקטרופורזה של ג'ל אגרוז כפי שמתואר בשלב 2.2.6.
הערה: שמור את התאים שעברו טרנספורמציה ב-30 °C כדי לשמר את פלסמיד pCP20 הרגיש לטמפרטורה.
- הסרת קסטת העמידות ל-kanamycin.
- בצע אינוקולציה של מושבה מאושרת העמידה לאמפיסילין משלב 4.2 אל תוך מצע LB broth ללא אנטיביוטיקה ודגור למשך 16–18 h ב-42 °C עם ניעור ב-180 rpm כדי להשרות ביטוי של FLP recombinase ולהסיר את פלסמיד pCP20 הרגיש לטמפרטורה.
- בצע ריסוס (streak) של התרבית שגדלה במשך 16–18 h בנפרד על מצעי LB agar ללא אנטיביוטיקה, עם kanamycin (50 µg/mL) ועם ampicillin (100 µg/mL). דגור כל צלחת למשך 16–18 h ב-37 °C.
- זהה מושבות הגדלות רק על LB agar ללא אנטיביוטיקה אך אינן גדלות על צלחות המכילות kanamycin או ampicillin. בחר מושבות אלו כרקומביננטים פוטנציאליים נטולי סמנים (marker-free).
- טהר את הרקומביננטים נטולי הסמנים על ידי ריסוס מחדש של מושבה בודדת על מצעי LB agar טריים ללא אנטיביוטיקה.
נקודת עצירה: שמור זני רקומביננטים מטהרים נטולי סמנים כמלאי גליצרול ב-80− °C עד שיהיה דרוש אישור מולקולרי או אפיון תפקודי בהמשך.
5. נתוח ביטוי GFP של הביוסורבנט התאי המלא שהוכן באמצעות מיקרוסקופיה פלואורסצנטית.
- הכנת תרביות חיידקים לחשיפה למתכות כבדות.
- בצע הזרקה (Inoculation) של 5 µL מתרבית שגודלה במשך 16–18 שעות של E. coli MG1655 רקומביננטית ללא סמן, הנושאת את מבנה הביוסורבנט המוטמע בכרומוזום משלב 4.3.4, לתוך ציר LB המכיל Cd2⁺, Zn2⁺ או Pb2⁺ בריכוזים סופיים של 1, 5, 10, 50, 100, 500 או 1000 ppm.
- להכנת תמיסות המתכות הכבדות, הכן תחילה תמיסות סטוק סטריליות בריכוז 2,000 ppm של Cd2⁺, Zn2⁺ ו-Pb2⁺ על ידי המסה של קדמיום כלוריד (CdCl₂), אבץ כלוריד (ZnCl₂) ועופרת ניטראט [Pb (NO₃)₂] בדרגת ניתוח (analytical grade), בהתאמה, בתוך ציר LB סטרילי.
- סטריליז את כל תמיסות הסטוק באמצעות סינון דרך מסנן ממברנה של 0.22 µm. אחסן את תמיסות הסטוק הסטריליות בטמפרטורה של 4 °C עד לשימוש.
- הכן תמיסות עבודה טריות על ידי דילול של כל תמיסת סטוק בציר LB סטרילי לריכוזי יוני מתכת סופיים של 1, 5, 10, 50, 100, 500 ו-1,000 ppm.
הערה: הכן כל תמיסת מתכת בנפרד כדי למנוע שיקוע או אינטראקציות בין יוני מתכת שונים.
- הכן ארבעה תנאי ביקורת: E. coli MG1655 מסוג פרא (wild-type) שגודלה תחת אותם תנאים כמו הזן הרקומביננטי; E. coli MG1655 רקומביננטית ללא סמן הנושאת את הקסט הרב-גני המוטמע בכרומוזום, שגודלה בציר LB ללא הוספת מתכות כבדות, כביקורת רקומביננטית ללא מתכת; זן E. coli JM109 המבטא GFP המכיל פלסמיד pQBIT-GFP-T7, כביקורת ביולוגית חיובית ל-GFP; וציר LB שלא הוזרקו לו חיידקים המכיל את ריכוזי המתכות הכבדות המתאימים, כביקורת אביוטית.
- דגרא את כל התרביות במשך 16–18 שעות בטמפרטורה של 37 °C עם ניעור במהירות של 180 rpm.
- בצע הזרקה (Inoculation) של 5 µL מתרבית שגודלה במשך 16–18 שעות של E. coli MG1655 רקומביננטית ללא סמן, הנושאת את מבנה הביוסורבנט המוטמע בכרומוזום משלב 4.3.4, לתוך ציר LB המכיל Cd2⁺, Zn2⁺ או Pb2⁺ בריכוזים סופיים של 1, 5, 10, 50, 100, 500 או 1000 ppm.
- הכנת סליידים למיקרוסקופ.
- טפטף באמצעות פיפטה 1 µL מכל תרבית חיידקים על סלייד זכוכית נקי ונפרד. פזר את התרבית ליצירת שכבת תאים דקה ואחידה, והשאר את המריחה להתייבש לחלוטין באוויר.
- השג תמונות פלואורסצנציה.
- בחן את הדגימות שהוכנו באמצעות מיקרוסקופ פלואורסצנציה בהגדלה של 600×, המצויד בסט פילטרים של FITC (אורך גל עירור, 460–490 nm).
- צלם תמונות פלואורסצנציה ותמונות שדה בהיר (bright field) תואמות תוך שימוש בהגדרות מיקרוסקופ זהות עבור כל הדגימות הרקומביננטיות ודגימות הביקורת.
הערה: שמור על זמן חשיפה, הגבר (gain), עוצמת תאורה והגדלה זהים עבור כל הדגימות כדי לאפשר השוואה ישירה של עוצמת פלואורסצנציית ה-GFP בין הטיפולים.
זהירות: הימנע מחשיפה ממושכת של הדגימות לאור עירור כדי למזער פוטובליצ'ינג (photobleaching) של ה-GFP.
תוצאות
In-silico עיצוב של מבנה הביוסורבנט הרב-גני
לקסטת הביוסורבנט הרב-גנית שתוכננה היה אורך כולל של 4,741 bp, והיא הייתה מורכבת מהפרומוטור הקונוסטיטיבי Ppdh , שאחריו הופיעו הגנים לעמידות למתכות כבדות cadD, cadA, ו- mt, המסודרים כאופרון פוליסיסטרוני. אתרי קישור לריבוזום (RBS) בודדים שולבו במעלה הזרם של כל רצף מקודד כדי לאפשר תרגום יעיל, בעוד שגן דשיין gfp נכלל במורד הזרם של הגנים הביוסורבנטיים כדי לאפשר ניטור של ביטוי המבנה (איור 1).
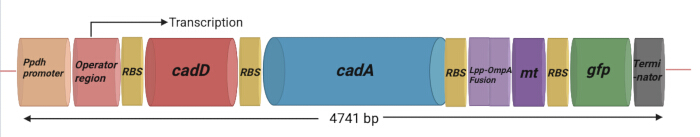
איור 1: תכנון וארגון של המבנה הרב-גני. הקסאט הרב-גני באורך 4,741-bp תוכנן עם פרומוטור קונסטיטוטיבי של pyruvate dehydrogenase (Ppdh) , ואחריו אזור אופרטור להנעת ביטוי של גנים הקשורים לעמידות ולסקוואסטרציה (קיבוע) של מתכות כבדות. המבנה מכיל את הגנים לעמידות למתכות כבדות cadD ו- cadA, את הגן למטאלותיונין (mt) , רכיב תצוגה על פני השטח המורכב מחלבון ממברנה חיצונית מסוג lipoprotein outer membrane protein A (Lpp-OmpA) המהוזה ל- mt במטרה להביא למיקום על פני תא, ואת הגן הדוחה (reporter gene) gfp . אתרי קישור לריבוזום (RBS; 5′-AGGAGG-3′) בודדים שולבו במעלה הזרם של רצפי הקידוד הרלוונטיים לתמיכה בתרגום בתוך הקסאט הרב-גני. רצף טרמינטור ממוקם במורד הזרם של gfp. הקסאט המלא תוכנן כמבנה באורך 4,741-bp לצורך שיクלון מאוחר יותר ואינטגרציה כרומוזומלית ב- E. coli. קיצורים: Ppdh = פרומוטור pyruvate dehydrogenase; RBS = אתר קישור לריבוזום; Lpp-OmpA = lipoprotein–outer membrane protein A; mt = מטאלותיונין; gfp = גן לחלבון פלואורסצנטי ירוק; bp = זוגות בסיסים; E. coli = Escherichia coli. אנא לחצו כאן לצפייה בגרסה גדולה יותר של איור זה.
כדי להקל על סקווסטרציה (sequestration) של מתכות חוץ-תאיות, ה- מיטוכונדריה הגן חובּר לעגן ממב⼀ר חיצוני מסוג Lpp-OmpA כדי לאפשר לוקליזציה של חלבון המטלותיון על פני השטח. בהתבסס על עיצוב המבנה, CadD ו-CadA כוונו לממברנה הפנימית כחלבוני שינוע מתכות טרנס-ממברנליים, בעוד שחלבון החיבור Lpp-OmpA-Mt כוון לממברנה החיצונית. חלבון הדגל GFP תוכנן לביטוי ציטופלזמי כדי להקל על ניטור ביטוי הגן של הביוסורבנט (איור 2).
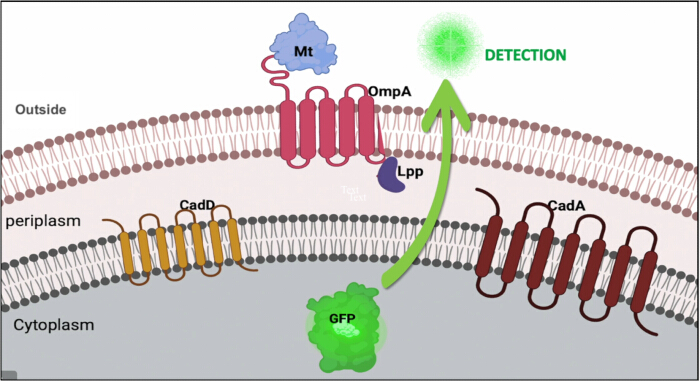
איור 2: לוקליזציה חזויה של חלבונים המבוטאים מקונסטרוקט הביוסורבנט הרב-גני. CadD ו-CadA תוכננו ללוקליזציה בתוך הממברנה הפנימית, חלבון היתוך של ליפופרוטאין חלבון ממברנה חיצונית A (Lpp-OmpA)-מטאלותיונין כוון לממברנה החיצונית, וחלבון פלואורסצנטי ירוק נכלל כחלבון דווח ציטופלזמי. קיצורים: Lpp-OmpA = lipoprotein–outer membrane protein A; Mt = metallothionein; GFP = green fluorescent protein. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
מקורי רצפי הנוקלאוטידים של כל אלמנט גנטי שנשלב במבנה הביוסורבנט מפורטים בטבלה 1.
| אלמנט גנטי במבנה הביוסורבנט | מיקום במבנה (bp) | מקור/סימוכין |
| Ppdh | 7-74 | .Gao et al. 200214 |
| מפעיל | 75-92 | אזור האופרטור של cad D של Staphylococcus epidermidis זן TWSL_22 : מספר גישה ב-NCBI Gene Bank: MK900473.1 |
| cadD | 97-716 | מספר גישה (accession no) ב-NCBI Gene Bank: MK900473.1 |
| cadA | 770-3334 | מספר גישה (accession no) ב-NCBI Gene Bank: MK327282.1 |
| Lpp-OmpA | 3385-3754 | Stathopoulo et al. 1995. 15 |
| מיטוכונדריה (mt) | 3755-3909 | מספר גישה ב-NCBI Gene Bank: MK900456.1 |
| GFP | 3960-4679 | וקטור TPMV_P-EGFP_H-His6, מספר גישה ב-NCBI Gene Bank: MF379627.1 |
| טרמינטור | 4684-4741 | אזור הטרמינטור (Terminator region) של האופרון cadAC של Bacillus megaterium זן TWSL-4 : מספר גישה (accession no) ב-NCBI Gene Bank: MK327282.1 |
טבלה 1: מקורות רצפי הנוקלאוטידים עבור האלמנטים הגנטיים במבנה הביוסורבנט. הטבלה מסכמת את האלמנטים הגנטיים ששולבו במבנה הרב-גני באורך 4,741-bp, כולל מקורות הרצפים שלהם, מספרי גישה (accession numbers) או הפניות, ומיקומי הנוקלאוטידים בתוך המבנה הגני. קיצורים: Ppdh = פרומוטור של pyruvate dehydrogenase; Lpp-OmpA = חלבון ליפו-פרוטאין–outer membrane protein A; mt = metallothionein; gfp = גן של חלבון פלואורסצנטי ירוק; NCBI = המרכז הלאומי למידע ביולוגי; bp = זוגות בסיסים.
טרנספורמציה ואימות של המבנה המסונתז לתוך E. coli BL21(DE3)
הפלסמיד הרקומביננטי pET-21a הנושא את קסדרת הגנים של הביוסורבנט אומת בהצלחה באמצעות עיכול באנזימי הגבלה (איור 3A). עיכול כפול עם BamHI ו-XhoI הניב שני מקטעי DNA התואמים למסגרת וקטור pET-21a (בגודל 5,331 bp) ולקסדרת הגנים של הביוסורבנט (בגודל 4,741 bp), בדומה לגודל המבנה הצפוי. למרות ששני מקטעי ה-DNA הראו הפרדה מוגבלת בג'ל אגרוז בריכוז 1% בשל גדליהם הדומים, שני המקטעים היו ניתנים להבחנה בבירור, מה שאישר את שלמותו של המבנה הרקומביננטי.
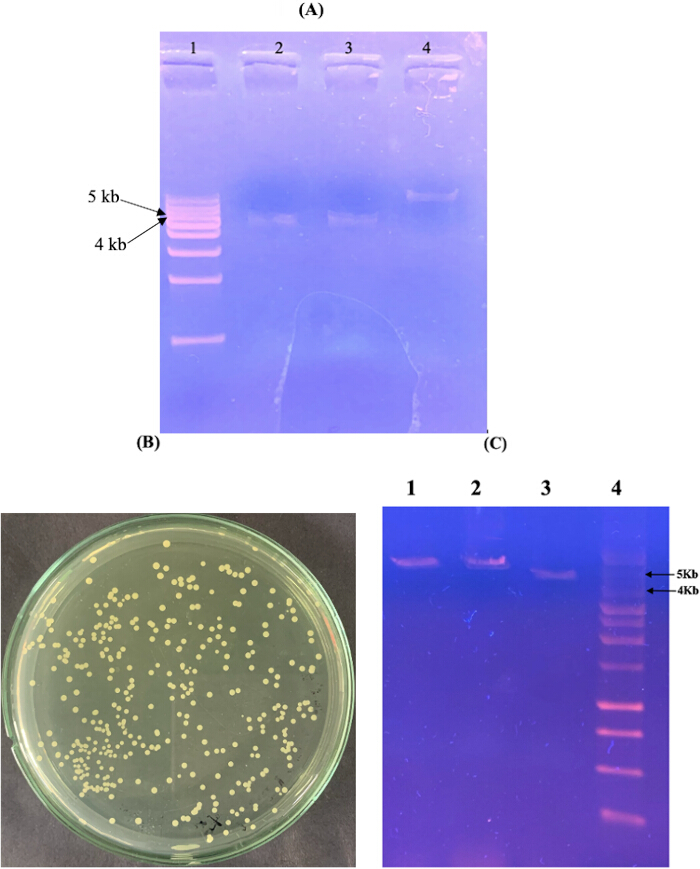
איור 3בנייה ואימות של הפלסמיד הביוסורבנטי הרקומביננטי. (A) ניתוח באמצעות אנזימי הגבלה של מבנה הביוסורבנט המסונתז ששובט לתוך וקטור הביטוי pET-21a. נתיב 1, סולם DNA של 1 kb; נתיבים 2–3, פלסמיד רקומביננטי שעבר עיכול כפול, המראה את שלד וקטור pET-21a (בגודל 5,331 bp) ואת קסטת הגן של הביוסורבנט (בגודל 4,741 bp); נתיב 4, פלסמיד רקומביננטי שלא עבר עיכול. (B) עמיד לאמפיצילין *E. coli* טרנספורמנטים של BL21(DE3) הנושאים את הפלסמיד הביוסורבנטי הרקומביננטי. (ג) ניתוח באמצעות אנזימי הגבלה של פלסמידים שבודדו מטרנספורמנטים מייצגים. נתיב 1, פלסמיד שעבר עיכול על ידי BamHI; נתיב 2, פלסמיד שעובד עם XhoI; נתיב 3, BamHI/XhoI פלסמיד שעבר עיכול כפול; נתיב 4, סולם DNA של 1 kb. קיצורים: DNA = חומצה דאוקסיריבנוקלאית; bp = זוגות בסיסים; kb = קילו-בסיסים; .E. coli = Escherichia coli אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
בעקבות טרנספורמציה של הפלסמיד הרקומביננטי לתוך E. coli BL21(DE3), הופקו בהצלחה מושבות העמידות לאמפיסילין (איור 3B). DNA פלסמידי שבודד מטרנספורמנטים מייצגים נותח לאחר מכן באמצעות עיכור באנזימי הגבלה. עיכור עם BamHI, XhoI והעיכור הכפול המשולב הניבו את פרופילי ההגבלה המצופים, מה שאישר את השכפול המוצלח של הפלסמיד הביוסורבנטי הרקומביננטי בתוך E. coli BL21(DE3) (איור 3C).
הערכה של השילוב הכרומוזומלי של קסטת הגנים לספיחה ביולוגית לתוך E. coli MG1655
קסטת הגנים של הביוסורבנט שוכפלה בהצלחה אל תוך וקטור השילוב הכרומוזומלי pKIKOArsBKm. שי Clones רקומביננטיים נבחרו בתחילה על מצע LB agar מועשר בקנמיצין (50 µg/mL) (איור 4A). ניתוח באמצעות אנזימי הגבלה אישר את השכפול המוצלח של קסטת הביוסורבנט אל תוך וקטור השילוב (איור 4B). ליניאריזציה של הפלסמיד הרקומביננטי עם NotI הניבה את מקטע ה-DNA הצפוי בגודל של כ-8.9 kb, בעוד שעיכול כפול עם BamHI ו- SacI שחרר את קסטת הביוסורבנט בגודל 4.7 kb מהשלד של הוקטור בגודל 4.2 kb, מה שאישר את ההחדרה הנכונה של המבנה אל תוך pKIKOArsBKm. הפלסמיד שלא עבר עיכול הראה את הקונפורמציות הצפויות של nicked ו-supercoiled.
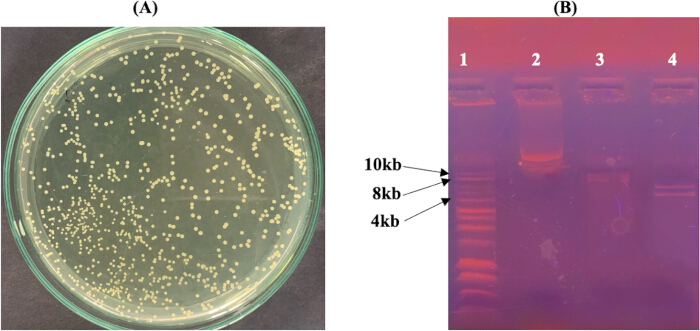
איור 4בניית וקטור השילוב הכרומוזומלי הרקומיבננטי הנושא את קסירת הגנים של הביוסורבנט. (A) עמיד לקנמיצין *E. coli* מושבות Pir1 הנושאות את הפלסמיד הרקומיננטי pKIKOArsBKm. (B) ניתוח אנזימי הגבלה של pKIKOArsBKm רקומביננטי. נתיב 1, סולם DNA של 1 kb; נתיב 2, פלסמיד רקומביננטי לא מעוכב; נתיב 3, פלסמיד שעבר לינאריזציה באמצעות NotI (בערך 8.9 kb); נתיב 4, BamHI/SacI פלסמיד שעבר עיכול כפול המראה את שלד הווקטור בגודל 4.2 קילו-בסיסים (kb) ואת קסטת הביוסורבנט בגודל 4.7 קילו-בסיסים (kb). קיצורים: DNA = חומצה דאוקסיריבנוקלאית; kb = קילו-בסיסים; E. coli = Escherichia coli. אנא לחצו כאן כדי לצפות בגרסה מורחבת של דמות זו.
המבנה הרקומיננטי הליניארי pKIKOArsBKm הוכנס לאחר מכן לתאי E. coli MG1655(pKD46) אלקטרו-קומפטנטיים כדי להקל על אינטגרציה כרומוזומלית בתיווך λ Red. לאחר סלקציה על מצע המכיל kanamycin, בודדו DNA גנומי ו-DNA פלסמידי מקולוניות רקומיננטיות מייצגות כדי לאמת את הצלחת האינטגרציה.
כפי שמוצג ב-איור 5, DNA גנומי בודד מקולוניות רקומביננטיות נבחרות (נתיב 1), בעוד שלא נצפה DNA פלסמי בר-גילוי לאחר בידוד פלסמידים (נתיב 2). הגברה באמצעות PCR בעזרת הפריימרים הספציפיים לגנים המתוארים ב-טבלה 2 הניבה אמפליקונים בגדלים המצופים עבור cadD (619 bp), cadA (2,564 bp), ו- mt (154 bp) מההכנה של ה-DNA הגנומי (נתיבים 4–6). יחד, היעדר DNA פלסמי בר-גילוי והזיהוי של שלושת הגנים מטרה בהכנת ה-DNA הגנומי סיפקו ראיות העקביות עם שילוב כרומוזומלי של קסטת הביוסורבנט הרב-גנית ב- E. coli MG1655.
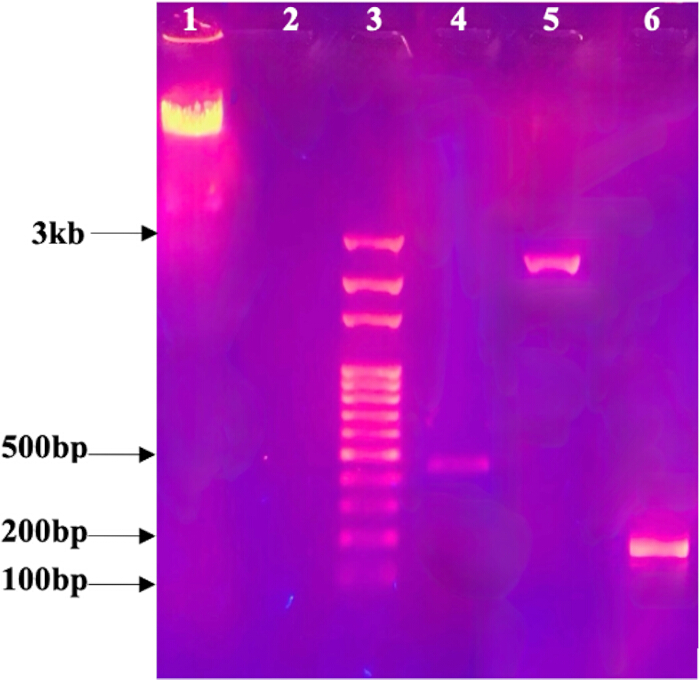
איור 5: הערכה מולקולרית של זן רקומביננטי של E. coli הנושא קסטרה גנטית של ביוסורבנט. נתיב 1, DNA גנומי שבודד מ- E. coli MG1655 רקומביננטי; נתיב 2, בידוד פלסמיד מקולוניה רקומביננטית תואמת המראה היעדר של DNA פלסמי שניתן לזיהוי; נתיב 3, סולם DNA של 100 bp; נתיב 4, הגברה ב-PCR של cadD (619 bp); נתיב 5, הגברה ב-PCR של cadA (2,564 bp); נתיב 6, הגברה ב-PCR של mt (154 bp). קיצורים: DNA = חומצה דאוקסיריבנוקלאית; PCR = תגובת שרשרת פולימראז; bp = זוגות בסיסים; mt = מטאלותיאונין; E. coli = Escherichia coli. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| רצף ה-DNA של מטרה | שם הפריימר | רצף אוליגנוקלאוטיד (5’→3’) | *Tנראה שהטקסט שהזנת אינו שלם (הקלדת רק את האותיות "an"). אנא ספק את הטקסט המלא באנגלית שברצונך לתרגם, ואשמח לבצע עבורך את התרגום המקצועי למסמכי JoVE בהתאם להנחיות. (℃) | הגודל הצפוי של תוצר ה-PCR (bp) |
| cadD | SD-EF | GAATTCATGATTCA GACTATTGTAACTG | 50 | 619 |
| SE-XHR | CTCGAGAAATATAA ATCCTAAAATTGTTTG | |||
| cadA | PD-BF | GGATCCGACACAAT GAAACACGAAGA | 56 | 2564 |
| PF-XHR | CCGCTCGAGCGGCAT GTAATTTTTCATTTTGA GTAAGCGAAG | |||
| מיטוכונדריה | SEmtF | GGAATTCATGGAAAAAT GTGCGAGACCGAAC | 48 | 154 |
| SEmtR | CCGCTCGAGTGCAGTT GCACAGCTACAATC |
טבלה 2: פרטי הפריימרים להגברה של cadD, cadA, ו-mt. הטבלה מפרטת את רצפי הפריימרים הקדמיים וההפוכים ששימשו להגברת PCR של cadD, cadA, ו- mt, יחד עם טמפרטורות ההכשרה (annealing) התואמות וגדלי האמפליקון הצפויים. *Tan- טמפרטורת הכשרה עבור כל זוג פריימרים שיושם ב-PCR.
הערכה של כריתת סמן עמידות לקנמיצין מ- E. coli MG1655 רקומביננטי
בעקבות טרנספורמציה עם הפלסמיד העזר pCP20, התקבלו מושבות עמידות לאמפיסילין על מצע LB agar בתוספת ampicillin (100 µg/mL). DNA פלסמי התואם ל-pCP20 זוהה לאחר בידוד פלסמיים מתרנספורמנטים מייצגים (איור 6).
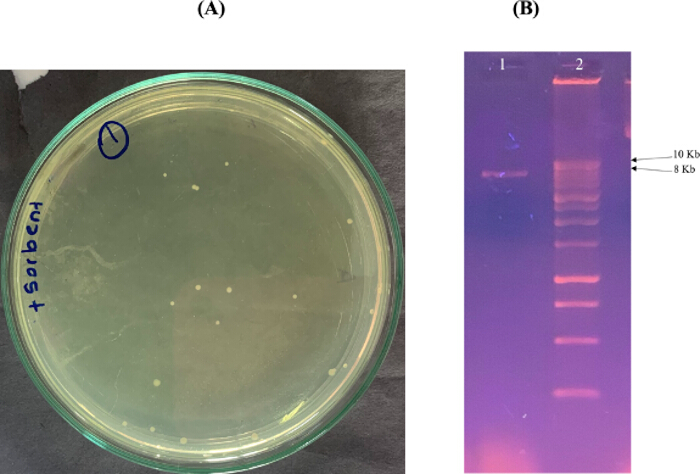
איור 6: אישור של טרנספורמציה של pCP20 לתוך E. coli MG1655 רקומביננטי הנושא את קסטת הביוסורבנט המשולבת בכרומוזום. (A) טרנספורמנטים עמידים לאמפיסילין לאחר הכנסת הפלסמיד העוזר pCP20. (B) אלקטרופורזה של ג'ל אגרוז המאשרת את נוכחותו של הפלסמיד pCP20. נתיב 1, פלסמיד pCP20 מבודד (~9.3 kb); נתיב 2, סולם DNA של 10 kb. קיצורים: DNA = חומצה דאוקסיריבנוקלאית; kb = קילו-בסיסים; E. coli = Escherichia coli. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
בעקבות הסרה של הסימן באמצעות רקומינזת FLP וטיפול תרמי לניקוי (curing) של pCP20, נבחנו המושבות הרקומיננטיות באמצעות בדיקת רגישות לאנטיביוטיקה. כפי שמוצג ב-איור 7, המושבות שנבחנו צמחו על מצע LB agar ללא אנטיביוטיקה, אך לא צמחו על מצע LB agar בתוספת kanamycin (50 µg/mL) או ampicillin (100 µg/mL). פנוטיפ זה של רגישות לאנטיביוטיקה היה עקבי עם אובדן העמידות ל-kanamycin ואובדן העמידות ל-ampicillin בעקבות הליך הסרת הסימן וניקוי הפלסמיד.
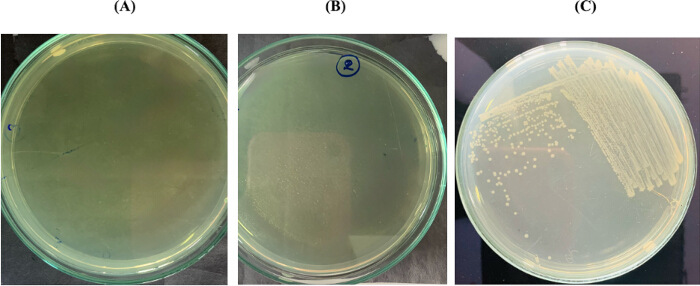
איור 7: אישור של השרה באמצעות פליפאז (flippase) של חיתוך סמן העמידות לקנמיצין והסרה של פלסמיד העזר pCP20. (A) היעדר צמיחה בקטריאלית על מצע אגר Luria-Bertani בתוספת קנמיצין (50 µg/mL). (B) היעדר צמיחה בקטריאלית על מצע אגר LB בתוספת אמפיסלין (100 µg/mL). (C) צמיחה בקטריאלית תקינה על מצע אגר LB ללא אנטיביוטיקה, המאשרת את חיוניות התאים לאחר חיתוך הסמן. קיצורים: LB = Luria-Bertani; E. coli = Escherichia coli. אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
ניתוח במיקרוסקופיה פלואורסצנטית של E. coli MG1655 הנושא את תכנית הביוסורבנט
E. coli MG1655 רקומביננטי שהופק באמצעות פרוצדורת אינטגרציה כרומוזומלית נבדק לאיתור פלואורסצנציה ירוקה לאחר חשיפה ל-Cd2⁺, Zn2⁺, ו-Pb2⁺ בריכוזים שנעו בין 1 ל-1,000 ppm. לא נצפתה פלואורסצנציה ירוקה ניתנת לגילוי בתאים רקומביננטיים באף אחד מריכוזי המתכות שנבדקו. לא זוהה אות פלואורסצנציה בארבעת דגימות הביקורת.
דיון
הפרוטוקול המוצג כאן מתאר זרימת עבודה לבניית רקומביננט רב-גנִי, חסר-סמן, המשולב בכרומוזום *E. coli* זן המכיל גנים הקשורים לעמידות ולסקווסטרציה (sequestration) של מתכות כבדות. השיטה משלבת הרכבה של קסטרה רב-גנית, שיבוט אל וקטור האינטגרציה pKIKOArsBKm, λ שילוב כרומוסומלי בתיווך Red, השכרה של סמן ברירה בתיווך FLP-FRT, הערכה מולקולרית של מושבות רקומביננטיות ומיקרוסקופיה פלואורסצנטית. הגישה תוכננה כדי למנוע תחזוקה של המבנה הסופי על פלסמיד רב-עותקים וכדי להפיק זן רקומביננטי ללא סמן העמידות לקנמיצין.
מספר שלבים הם קריטיים ליישום מוצלח של פרוטוקול זה. במהלך אינטגרציה המתווכת על ידי λ Red, שמירה על הפלסמיד pKD46 הרגיש לטמפרטורה ב-30 °C לפני הרקומבינציה והשראה של חלבוני הרקומבינציה של λ Red באמצעות L-arabinose חשובים לביצוע יעיל של הנדסה גנומית (recombineering)16,17. הכנת תאי E. coli MG1655(pKD46) אלקטרו-קומפטנטים דורשת גם שמירה של התאים ותמיסורי השטיפה בטמפרטורה נמוכה וצמצום של מלחים שיוריים לפני electroporation. יש להליניאריזציה מלאה וניקוי של מבנה ה-pKIKOArsBKm הרקומביננטי לפני electroporation, מכיוון ש-DNA ליניארי משמש כסובסטרט לרקומבינציה המתווכת על ידי λ Red. דווח בעבר כי מערכת האינטגרציה pKIKO מסוגלת להכיל מקטעי DNA גדולים יחסית ולתמוך באינטגרציה כרומוזומלית יעילה18,19. לאחר הברירה, יש להעריך את המושבות המועמדות באמצעות הכנות של DNA פלסמידי וגנומי כאחד. במחקר הנוכחי, היעדר DNA פלסמידי שניתן לזיהוי, יחד עם הגברה של cadD, cadA, ו- mt מההכנה של ה-DNA הגנומי, סיפקו ראיות העולות בקנה אחד עם אינטגרציה כרומוזומלית. עם זאת, בדיקות אלו לבד אינן קובעות באופן מוחלט את אירוע האינטגרציה הגנומי המדויק. PCR ספציפי לאתרי החיבור (Junction-specific PCR), רצף על פני גבולות האינטגרציה, או רצף גנומי מלא עשויים לספק אישור ישיר יותר של אתר האינטגרציה ביישומים עתידיים של הפרוטוקול.
הסרת הסמן היא מרכיב קריטי נוסף בשיטה. מערכת הרקומבינציה FLP-FRT מספקת אמצעי להסרת סמני עמידות לאנטיביוטיקה המשמשים לבחירה לאחר הנדסה גנומית16,20. לאחר הכנסת פלסמיד העזר pCP20 הרגיש לטמפרטורה, התרבויות המותמרות מוחזקות ב-30 °C, ולאחר מכן מדגגות ב-42 °C כדי לעודד הסרת סמן באמצעות FLP ואובדן של pCP20. לאחר מכן יש להעריך את המושבות על מצעים ללא אנטיביוטיקה, מצעים המכילים קנמיצין ומצעים המכילים אמפיסילין. צמיחה על מצע ללא אנטיביוטיקה, המלווה בהיעדר צמיחה על מצעים המכילים קנמיצין ואמפיסילין, מספקת גישת סריקה מעשית לזיהוי מושבות מועמדות נטולות סמנים לאחר הליך ההסרה והניקוי. אם נשארות מושבות עמידות לאנטיביוטיקה, עשוי להידרש ניקוי תלוי טמפרטורה ובידוד נוסף של מושבות בודדות לפני המשך אפיון. אסטרטגיית השילוב הכרומוזומלי המשמשת כאן שונה משיטות ביטוי קונבנציונליות המבוססות על פלסמידים.
מערכות פלסמידים יכולות לספק מספר עותקים גבוה יותר של גנים ולכן עשויות להיות בעלות יתרון כאשר נדרש ביטוי חזק של חלבון רקומביננטי. עם זאת, מערכות מבוססות פלסמיד עלולות להיות מושפעות מסגגרגציית פלסמידים, מספר עותקים משתנה, עומס מטבולי ותלות בלחץ סלקטיבי לשמירה על הפלסמיד. אינטגרציה כרומוזומלית מבטלת את הצורך לשמור על קסטת הביוסורבנט הסופית כפלסמיד חוץ-כרומוזומלי ונבחרה בפרוטוקול זה כדי לספק קונפיגורציה גנטית עמידה יותר. מחקרים קודמים תיארו אינטגרציה כרומוזומלית כגישה לשיפור השמירה הגנטית במהלך חלוקת התאים21,22. עם זאת, היציבות הגנטית ארוכת הטווח של הזן הרקומביננטי שנוצר במחקר הנוכחי לא הוערכה באופן ישיר. לכן, אין לראות ביציבות גנטית משופרת תוצאה שהוכחה ניסיונית של פרוטוקול זה. התכנון הרב-גני הוא מאפיין נוסף של השיטה. במקום להכניס גן בודד הקשור למתכת, הקסטה משלבת את cadA, cadD, ומתאלוטיונין (mt) יחד עם תכנון להצגה על פני השטח באמצעות Lpp-OmpA ועם רפורטר gfp . אסטרטגיות קודמות לביוסורבנטים חיידקיים רקומביננטיים התמקדו בדרך כלל בחלבונים בודדים הקושרים מתכת או בדטרמיננטים של עמידות11,13,23,24. הקונפיגורציה המודולרית המשמשת כאן מאפשרת שילוב של מרכיבים גנטיים מרובים בתוך תהליך עבודה אחד של אינטגרציה כרומוזומלית. לכן, ניתן להתאים את הפרוטוקול למבנים רב-גניים אחרים על ידי שינוי הגנים, הפרומוטר, הרפורטר או מרכיבי ההצגה על פני השטח בהתאם ליישום המיועד. עם זאת, הגדלת גודל הקסטה ומספר הגנים המבויים עשויים להשפיע על יעילות הרקומינציה, התעתוק, התרגום והעומס המטבולי התאי, ויש לקחת זאת בחשבון בעת התאמת השיטה.
מגבלה חשובה של המחקר הנוכחי היא שלא הודגמה ביטוי תפקודי של הקסטה ההנדסית תחת התנאים הניסיוניים שנבדקו. לא נצפתה פלואורסצנציית GFP ניתנת לגילוי לאחר חשיפת התאים הרקומיננטיים ל-Cd2⁺, Zn2⁺, או Pb2⁺. כתוצאה מכך, הנתונים הנוכחיים אינם מבססים ביטוי תפקודי של הקסטה הרב-גנית המלאה ואינם מדגימים ביוסורפציה של מתכות כבדות על ידי השבט הרקומיננטי. אינטגרציה כרומוזומלית מניבה בדרך כלל מספר עותקים נמוך יותר של גנים מאשר מערכות פלסמידיות מרובות עותקים, וביטוי רקומיננטי יכול להיות מושפע גם מאתר ההחדרה הגנומי ומפעילות הפרומוטר22,25. תגובות תאיות למעקה של מתכות כבדות עשויות להשפיע בנוסף על ביטוי גנים הטרולוגיים26,27. גורמים אלה מהווים שיקולים אפשריים ולא הסברים שביססו ניסיונית להיעדר פלואורסצנציה ניתנת לגילוי במחקר הנוכחי. בעת יישום פרוטוקול זה, היעדר פלואורסצנציה ניתנת לגילוי צריך להוביל להערכה של תנאי התרבית, תנאי החשיפה למתכת, פעילות הפרומוטר וביטוי הגן המדווח. מדידות עצמאיות של תמלול וייצור חלבונים יעזרו להבחין בין ביטוי לא מספיק לבין מגבלות של גילוי פלואורסצנציה. ביטוי סימולטני של חלבונים רקומיננטיים מרובים עשוי להטיל דרישות מטבוליות נוספות על המאכסן, במיוחד תחת תנאי תרבית מאמצים28.
אפשרויות אלו דורשות הערכה ניסיונית ישירה לפני שניתן יהיה לקבוע את הסיבה להיעדר פלואורסצנציית GFP ניתנת לגילוי. לפרוטוקול יש גם מגבלות באפיון הזן הרקומיננטי הסופי. PCR ספציפי לגן והיעדר DNA פלסמי שניתן לגילוי מספקים ראיות העולות בקנה אחד עם אינטגרציה כרומוזומלית, אך אינן קובעות את הרצף המדויק של אתר האינטגרציה או את היציבות הגנטית לטווח ארוך. רגישות לאנטיביוטיקה מספקת סינון מעשי לאחר הסרת הסמן, אך ניתן להשלימה בניתוח מולקולרי של האזור המכיל את ה-FRT כאשר נדרש אישור ישיר יותר. בנוסף, מיקרוסקופיה פלואורסצנטית מספקת הערכה איכותנית של פלואורסצנציית GFP ניתנת לגילוי, אך אינה מחליפה מדידות כמותיות של שעתוק או שפע חלבוני. לכן, Quantitative reverse-transcription PCR, ניתוח חלבונים, מדידות פלואורסצנציה כמותיות ואישור מבוסס רצף עשויים לחזק את האפיון של זנים שנוצרו באמצעות פרוטוקול זה.
נדרשים אופטימיזציה נוספת ואפיון פונקציונלי לפני שניתן יהיה להעריך את הזן ההנדסי כבסורבנט ביולוגי תפקודי למתכות כבדות. מדידות ישירות של ספיגת או הסרת מתכת נחוצות כדי לקבוע את ביצועי הבסורפציה הביולוגית. יש לאמת ניסיונית גם את ביטוי החלבון ואת מיקומו, במיוחד עבור חלבון היתוך Lpp-OmpA-metallothionein. ניסויי מעבר (passaging) ארוכי טווח יהיו נחוצים כדי לקבוע האם שילוב בכרומוזום מספק את היציבות הגנטית הצפויה תחת תנאי תרבית רלוונטיים. הנדסה גנומית ללא סמנים (Marker-free) עשויה להקל על סבבים עוקבים של מודיפיקציה כרומוזומלית ללא הצטברות של מספר סמנים ברירה, ובכך לספק הזדמנויות לפיתוח נוסף של מבנים רב-גניים15,27.
באופן כללי, פרוטוקול זה מספק מסגרת מתודולוגית לבנייה ולהערכה של זן חיידקי רקומביננטי רב-גנים, ללא סמנים, המוטמע כרומוזומלית. העיצוב המודולרי שלו עשוי להיות מותאם לשילובים אחרים של גנים הקשורים למתכות, מערכות דשיין (reporter systems), או יישומים של ביולוגיה סינתטית. העבודה הנוכחית מבססת את זרימת העבודה להנדסה ולסריקה; ביטוי פונקציונלי, יציבות גנטית לטווח ארוך, לוקליזציה של חלבונים וביצועי ביוסורפציה של מתכות כבדות טרם תוקפו ניסיונית, בטרם ניתן יהיה להסיק מסקנות לגבי יישומים סביבתיים או יישומים של ביו-סנפציה (bioremediation).
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
עבודה זו נתמכה על ידי מענק מחקר, AP/3/2/2018/CG/33, מאוניברסיטת קולומבו.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.22 μm מסנן ממברנה | ThermoFisher Scientific | 596-3320 | נראה כי לא סופק טקסט מקור לתרגום. אנא ספק את הטקסט באנגלית כדי שאוכל לתרגמו לעברית בהתאם להנחיות המקצועיות. |
| ס marker DNA של 1 kb | Promega Corporation | G5711 | נא לספק את הטקסט למסמך שברצונך לתרגם. |
| סולם DNA של 10 kb | לא רלוונטי | לא רלוונטי | סמן גודל מולקולרי ששימש עבור איור 6 |
| סולם DNA של 100 bp | לא רלוונטי | לא רלוונטי | סמן גודל מולקולרי ששימש עבור איור 5 |
| בופר T4 DNA ligase בריכוז 10X | Promega Corporation | C1263 | לא סופק טקסט מקור לתרגום. נא לספק את הטקסט באנגלית כדי שאוכל לתרגמו לעברית בהתאם להנחיות. |
| 6× תמיסת טעינה ל-DNA | לא רלוונטי | לא רלוונטי | משמש לאלקטרופורזה של ג'ל אגרוז |
| אגרוז | עיצובים מולקולריים | A113-3 | לא סופק טקסט לתרגום. נא לספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| אמוניום אצטט | לא רלוונטי | לא רלוונטי | הוכן כתמיסה בריכוז 7.5 M להפקת DNA גנומי |
| Ampicillin | ThermoFisher Scientific | J60977.14 | כיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן באנגלית שברצונך לתרגם לעברית. |
| אנזים ההגבלה BamHI | New England BioLabs | R0136S | אנא ספק את הטקסט למסמך שברצונך לתרגם. |
| קדמיום כלוריד | ThermoFisher Scientific | 219141000 | נא ספק את הטקסט באנגלית שברצונך לתרגם. |
| סידן כלורי | ThermoFisher Scientific | 012316.A7 | אנא ספק את הטקסט המקור באנגלית שברצונך לתרגם. |
| צנטריפוגה | ThermoFisher Scientific | Heraeus Fresco 21 / 75002478 | לא סופק טקסט לתרגום. אנא ספק את הטקסט באנגלית כדי שאוכל לתרגם אותו לעברית בהתאם להנחיות המקצועיות. |
| מים דה-יוניים | ThermoFisher Scientific | 751-610 | כיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן באנגלית שברצונך לתרגם לעברית. |
| צבע DNA בטוח (DNA Safe Stain) | עיצובים מולקולריים | C138 | אנא ספק את הטקסט המקור באנגלית שברצונך לתרגם לעברית. |
| תערובת dNTP | Promega Corporation | U1511 | מכיוון שלא סופק טקסט למסמך המקור, אין תוכן לתרגום. נא לספק את הטקסט באנגלית כדי שאוכל לבצע את התרגום המקצועי לעברית בהתאם להנחיות. |
| ציוד אלקטרופורזה | BioRad | 1704405 | נראה כי לא סופק טקסט למעבר. אנא ספק את התוכן באנגלית שברצונך לתרגם לעברית. |
| קובית אלקטרופורציה | BioRad | 1652086 | נראה כי לא סופק טקסט למסמך המקור. אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| אלקטרופורטור | BioRad | 1652100 | נראה כי לא הוזן טקסט מקור לתרגום. אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| Escherichia coli BL21(DE3) | אוניברסיטת קולומבו, המחלקה לכימיה | לא רלוונטי | לא נמצא תוכן לתרגום. |
| Escherichia coli MG1655 | המחלקה למדעי החיים וטכנולוגיה, מכון המדעים של טוקיו, יוקוהמה, יפן | לא רלוונטי | נראה כי לא סיפקת טקסט לתרגום. אנא הזן את הטקסט באנגלית שברצונך לתרגם לעברית. |
| Escherichia coli תאי Pir1 כשירים (competent cells) | ThermoFisher Scientific | C101010 | נא לספק את טקסט המקור באנגלית לתרגום. |
| Escherichia coli תאי BL21(DE3) קומפטנטיים | ThermoFisher Scientific | C600003 | לא סופק טקסט לתרגום. נא לספק את הטקסט ממנו תרצה שאתרגם. |
| Escherichia coli זן JM109 המכיל את הפלסמיד pQBIT-GFP-T7 | המחלקה למדעי החיים וטכנולוגיה, מכון המדעים של טוקיו, יוקוהמה, יפן | נא לספק את טקסט המקור באנגלית לצורך התרגום. | נא לספק את הטקסט למסמך שברצונך לתרגם. |
| בופר ET | לא רלוונטי | לא רלוונטי | להכנת 1 ליטר של תמיסת ET, המיסו 6.06 גרם של Tris base ו-3.72 גרם של EDTA בכ-800 מ"ל של מים מזוקקים. כווןו את ה-pH לערך הנדרש באמצעות HCl, ערבבו היטב, והשלימו את הנפח הסופי ל-1 ליטר באמצעות מים מזוקקים. |
| אתנול | ThermoFisher Scientific | T038181000CS | נא לספק את הטקסט באנגלית שברצונך לתרגם. |
| אתילנדיאמיןטטרהאצטיק חומצה (EDTA) | ThermoFisher Scientific | 17892 | לא סופק טקסט לתרגום. אנא ספק את התוכן באנגלית שברצונך לתרגם לעברית. |
| מיקרוסקופ פלואורסצנציה | מיקרוסקופים של Coastal | Olympus BX53/ 11679 | נראה כי לא סופק טקסט מקור לתרגום. אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| מכשיר אלקטרופורזה של ג'ל | Bio Rad | 1704405 | נא לספק את טקסט המקור באנגלית לצורך תרגום. |
| חומצה אצטית גלציאלית | MilliporeSigma | PHR1748 | לא סופק טקסט למסמך זה. |
| גליקרול | MilliporeSigma | G5516 | אין תוכן לתרגום. |
| גואנידין תי tersediaציאנאט | ThermoFisher Scientific | 433941000 | לא סופק טקסט לתרגום. נא לספק את טקסט המקור באנגלית. |
| חומצה כלורית (HCl) | MilliporeSigma | 1.00317 | מכיוון שלא סופק טקסט מקור לתרגום, נא לספק את התוכן באנגלית שברצונך לתרגם לעברית. |
| קנמיצין | ThermoFisher Scientific | 15160054 | אנא ספק את הטקסט באנגלית שברצונך לתרגם. |
| L-ערבינוז | ThermoFisher Scientific | 365185000 | לא סופק טקסט לתרגום. נא לספק את התוכן באנגלית כדי שאוכל לתרגם אותו לעברית בהתאם להנחיות. |
| עופרת(II) חנקט | ThermoFisher Scientific | 211565000 | כיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן באנגלית שברצונך לתרגם לעברית. |
| לוריה–אגר Bertani (LB) | עיצובים מולקולריים | C120 | נא ספק את הטקסט המקור באנגלית שברצונך לתרגם. |
| לוּרְיה (Luria)–מצע נוזלי ברטני (LB) | עיצובים מולקולריים | C121 | נראה כי לא סופק טקסט לתרגום. אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| בופר ליזיס | לא רלוונטי | לא רלוונטי | להכנת תמיסת הליזה, ערבבו את הנפחים המתאימים של תמיסות מלאי של NaOH בריכוז 5 M ו-SDS בריכוז 20% (משקל/נפח) כדי להגיע לריכוזים סופיים של 0.2 N NaOH ו-1% (משקל/נפח) SDS. השלימו לנפח הסופי הנדרש באמצעות מים מזוקקים וערבבו היטב. |
| ליזוזים | ThermoFisher Scientific | 89833 | אין תוכן לתרגום. |
| מגנזיום כלוריד (MgCl2)2) | אנא ספק את הטקסט באנגלית שברצונך לתרגם. | לא רלוונטי | בשימוש בריכוז סופי של 1.5 mM בתגובות PCR |
| תמיסת נטרול | מכיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן הדרוש כדי שאוכל להמיר אותו לאנגלית בהתאם להנחיות המקצועיות שלך. | לא רלוונטי | הכינו את באפר הניטרול, תוך שימוש באסטט פוטסיום 3 M ובחומצה אצטית קרחית. התאימו את התמיסה לנפח הסופי הנדרש באמצעות מים מזוקקים וערבבו היטב. |
| אנזים ההגבלה NotI | New England BioLabs | R0189S | אין טקסט למסירה. נא ספק את הטקסט באנגלית לתרגום. |
| pCP20 | המחלקה למדעי החיים וטכנולוגיה, מכון המדע של טוקיו, יוקוהמה, יפן | לא רלוונטי | נא ספק את הטקסט למסירה לצורך תרגום. |
| מכונת PCR | ThermoFisher Scientific | Applied Biosystems MiniAmp / A37834 | נראה כי לא סופק טקסט למקור לתרגום. אנא ספק את התוכן באנגלית שברצונך לתרגם לעברית. |
| פלסמיד pET-21a ב-E. coli BL21(DE3) | אוניברסיטת קולומבו, המחלקה לכימיה | לא רלוונטי | נא לספק את הטקסט באנגלית שברצונך לתרגם. |
| סלקסן פוספט מחוייץ (Phosphate buffered saline) | MilliporeSigma | P4474 | אנא ספק את הטקסט שברצונך שאתרגם. |
| pKD46 | Creative Biogene | OVT2612 | נא ספק את הטקסט באנגלית שברצונך לתרגם. |
| pKIKOArsBKm | Addgene | 46766 | בשל העדר טקסט מקור, לא ניתן לבצע תרגום. אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| אשלגן אצטט | MilliporeSigma | 236497 | אנא ספק את הטקסט באנגלית שברצונך לתרגם. |
| בופר לאנזים רסטריקציה | לא רלוונטי | לא רלוונטי | משמש לתגובות עיכול באנזימי הגבלה |
| אנזים ההגבלה SacI | New England BioLabs | R0156 | נא לספק את הטקסט באנגלית לתרגום. |
| אינקובטור שוקר | טכנולוגיית גבישים ותעשיות | IS-A6 | אנא ספק את הטקסט באנגלית שברצונך לתרגם. |
| סודיום אצטט | ThermoFisher Scientific | A13184.30 | מכיוון שלא סופק טקסט מקור לתרגום, אנא הזן את הטקסט שברצונך לתרגם מאנגלית לעברית. |
| סודיום דודציל סולפט (SDS) | ThermoFisher Scientific | 15525017 | לא הוזן תוכן לתרגום. נא לספק את הטקסט המקור באנגלית. |
| נתרן הידרוקסיד (NaOH) | MilliporeSigma | 567530 | נראה כי לא סופק טקסט למסירה. אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| מצע מצע גידול עשיר במיוחד (SOB) | MilliporeSigma | H8032 | כיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן באנגלית שברצונך לתרגם לעברית. |
| מצע SOC (Super optimal medium with catabolic repressor) | ThermoFisher Scientific | J60255.AK | אין תוכן לתרגום. |
| T4 DNA ligase | Promega Corporation | M1801 | אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| בופר TAE | ThermoFisher Scientific | B49 | לא סופק טקסט למסמך זה. נא ספק את הטקסט באנגלית לתרגום. |
| Taq DNA polymerase | Promega Corporation | M3001 | נראה כי לא סופק טקסט למעבר. אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| בופר TE | MilliporeSigma | 93283 | אנא ספק את הטקסט באנגלית שברצונך לתרגם. |
| פנול שעבר שיווי משקל עם TE | ThermoFisher Scientific | 15513039 | נא לספק את הטקסט המקור באנגלית לתרגום. |
| Tris base | לא רלוונטי | לא רלוונטי | משמש להכנת תמיסת ET |
| בופר PCR אוניברסלי | Promega Corporation | M7911 | נא לספק את הטקסט להתרגום. |
| מעבה אור UV (UV trans-illuminator) | Labexchange | TFX-35M, 021425 | אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| ספקטרופוטומטר UV/Visible | בדיקות מיקרוביולוגיות | Jenway 6300, TE15 | נא לספק את הטקסט באנגלית לתרגום. |
| אמבט מים | ThermoFisher Scientific | TSGP05 | מכיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן באנגלית המיועד לתרגום לעברית. |
| אנזים ההגבלה XhoI | New England BioLabs | R0146S | נראה כי לא סופק טקסט למסמך זה. אנא ספק את הטקסט באנגלית שברצונך לתרגם. |
| צנק כלוריד | ThermoFisher Scientific | A16281.36 | נראה כי לא הוזן טקסט למסמך המקור. אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. |
| פריימרים | |||
| פריימר קדימה ל-cadD (SD-EF) | אין נתונים | לא רלוונטי | 5′-GAATTCATGATTC AGACTATTGTAACTG-3′ |
| פריימר הפוך ל-cadD (SE-XHR) | נא לספק את הטקסט באנגלית לתרגום. | מכיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן המדעי שברצונך לתרגם מאנגלית לעברית. | 5′-CTCGAGAAATATAA ATCCTAAAATTGTTTG-3′ |
| פריימר קדמי ל-cadA (PD-BF) | לא רלוונטי | לא רלוונטי | 5′-GGATCCGACACAAT GAAACACGAAGA-3′ |
| פריימר הפוך ל-cadA (PF-XHR) | לא רלוונטי | לא ייתכן | 5′-CCGCTCGAGCGGCA TGTAATTTTTCATTTTGA GTAAGCGAAG-3′ |
| פריימר קדמי ל-mt (SEmtF) | לא רלוונטי | לא רלוונטי | 5′-GGAATTCATGGAAAAAT GTGCGAGACCGAAC-3′ |
| פריימר הפוך של ה-mt (SEmtR) | לא רלוונטי | לא רלוונטי | 5′-CCGCTCGAGTGCAGTTG CACAGCTACAATC-3′ |
| שם התוכנה/הכלי | גרסה/שרת | כתובת URL | תאריך גישה |
| כלי ExPASy | שרת TMPRED | https://embnet.vital-it.ch/cgi-bin/TMPRED_form_parser | 30-01-2023 |
| ExPASy Translate | כלי התרגום של ExPASy | https://web.expasy.org/translate/ | לא רלוונטי |
| I-TASSER | בשל העובדה שלא סופק טקסט מקור לתרגום, לא ניתן להפיק תרגום לעברית. אנא ספק את הטקסט המדעי המיועד לתרגום. | I-TASSER הוא שרת לחיזוי מבנה חלבוני המשלב חיזוי מבוסס תבנית (template-based) עם מידול מבוססThreading (threading) וסימולציות של קיפול חלבוני. הוא מנצל מידע ממספר תבניות כדי לבנות מודלים של מבנה החלבון, ובכך משפר את הדיוק בהשוואה לשיטות המסתמכות על תבנית בודדת. התהליך כולל זיהוי תבניות רלוונטיות באמצעות חיפוש במאגרי מבנים, בניית מודלים ראשוניים, ואופטימיזציה של המבנים באמצעות הרצה של סימולציות דינמיקה מולקולרית או חיפוש גלובלי במרחב התצורות. I-TASSER מספק למשתמשים מספר מודלים מובילים, יחד עם הערכות של רמת הביטחון (confidence score) בכל חלק מהמבון החזוי, מה שמאפשר לחוקרים להעריך את אמינות התוצאה עבור אזורים ספציפיים בחלבון. | 24-02-2023 |
| NCBI GenBank | מאגר הנתונים GenBank | https://www.ncbi.nlm.nih.gov/genbank/ | לא רלוונטי |
| SnapGene | v.7.1.2 | לא רלוונטי | לא רלוונטי |
| TMHMM | גרסה 2.0 | https://services.healthtech.dtu.dk/services/TMHMM-2.0/ | 16-01-2023 |
מקורות
- Volesky B. Detoxification of metal-bearing effluents: biosorption for the next century. Hydrometallurgy. 2001;59(2-3):203-16.
- Ayangbenro AS, Babalola OO. A new strategy for heavy metal polluted environments: a review of microbial biosorbents. Int J Environ Res Public Health. 2017;14(1):94.
- Das S, Dash HR, Chakraborty J. Genetic basis and importance of metal resistant genes in bacteria for bioremediation of contaminated environments with toxic metal pollutants. Appl Microbiol Biotechnol. 2016;100(7):2967-84.
- Volesky B. Biosorption of heavy metals. Biotechnol Prog. 1995;11(3):235-50.
- Barkay T, Miller SM, Summers AO. Bacterial mercury resistance from atoms to ecosystems. FEMS Microbiol Rev. 2003;27(2-3):355-84.
- Cervantes C, et al. Interactions of chromium with microorganisms and plants. FEMS Microbiol Rev. 2001;25(3):335-47.
- Cai L, Liu G, Rensing C, Wang G. Genes involved in arsenic transformation and resistance associated with different levels of arsenic-contaminated soils. BMC Microbiol. 2009;9:4.
- Silver S, Phung LT. Genes and enzymes involved in bacterial oxidation and reduction of inorganic arsenic. Appl Environ Microbiol. 2005;71(2):599-608.
- Kumari WMNH, et al. Characterization of a Bacillus megaterium strain with metal bioremediation potential and in silico discovery of novel cadmium binding motifs in the regulator, CadC. Appl Microbiol Biotechnol. 2021;105(6):2573-86.
- Hamer DH. Metallothionein. Annu Rev Biochem. 1986;55:913-51.
- Kazy SK, D’Souza SF, Sar P. Uranium and thorium sequestration by a Pseudomonas sp.: mechanism and chemical characterization. J Hazard Mater. 2009;163(1):65-72.
- Yan G, Viraraghavan T. Heavy-metal removal from aqueous solution by fungus Mucor rouxii. Water Res. 2003;37(18):4486-96.
- Pazirandeh M, Wells B, Ryan RL. Development of bacterium-based heavy metal biosorbents: enhanced uptake of cadmium and mercury by Escherichia coli expressing a metal binding motif. Appl Environ Microbiol. 1998;64(10):4068-72.
- Gao H, Jiang X, Pogliano K, Aronson AI. The E1β and E2 subunits of the Bacillus subtilis pyruvate dehydrogenase complex are involved in regulation of sporulation. J Bacteriol. 2002;184(10):2780-8.
- Stathopoulos C, Georgiou G, Earhart CF. Characterization of Escherichia coli expressing an Lpp′OmpA(46-159)-PhoA fusion protein localized in the outer membrane. Appl Microbiol Biotechnol. 1996;45(1-2):112-9.
- Datsenko KA, Wanner BL. One-step inactivation of chromosomal genes in Escherichia coli K-12 using PCR products. Proc Natl Acad Sci U S A. 2000;97(12):6640-5.
- Yu D, et al. An efficient recombination system for chromosome engineering in Escherichia coli. Proc Natl Acad Sci U S A. 2000;97(11):5978-83.
- Sabri S, et al. Knock-in/Knock-out (KIKO) vectors for rapid integration of large DNA sequences, including whole metabolic pathways, onto the Escherichia coli chromosome at well-characterised loci. Microb Cell Fact. 2013;12:60.
- Wang J, et al. Converting Escherichia coli MG1655 into a chemical overproducer through inactivating defense system against exogenous DNA. Synth Syst Biotechnol. 2020;5(4):333-42.
- Cherepanov PP, Wackernagel W. Gene disruption in Escherichia coli: TcR and KmR cassettes with the option of Flp-catalyzed excision of the antibiotic-resistance determinant. Gene. 1995;158(1):9-14.
- Liu M, et al. Metabolic engineering of Escherichia coli to improve recombinant protein production. Appl Microbiol Biotechnol. 2015;99(24):10367-77.
- Persad AK, Williams ML, LeJeune JT. Rapid loss of a green fluorescent plasmid in Escherichia coli O157. AIMS Microbiol. 2017;3(4):872-84.
- Jeiranikhameneh M, et al. Designing novel construction for cell surface display of protein E on Escherichia coli using non-classical pathway based on Lpp-OmpA. AMB Express. 2017;7(1):53.
- Dissanayake DMDC, Kumari WMNH, Chandrasekharan NV, Wijayarathna CD. Isolation of heavy metal-resistant Staphylococcus epidermidis strain TWSL_22 and evaluation of heavy metal bioremediation potential of recombinant E. coli cloned with isolated cadD. FEMS Microbiol Lett. 2023;370:fnad092.
- Bryant JA, Sellars LE, Busby SJW, Lee DJ. Chromosome position effects on gene expression in Escherichia coli K-12. Nucleic Acids Res. 2014;42(18):11383-92.
- Busuioc M, Ciofu O, Høiby N. Cellular responses to environmental stress in bacteria. FEMS Microbiol Rev. 2010;34(6):1042-64.
- Outten FW, Outten CE, Hale J, O'Halloran TV. Transcriptional activation of an Escherichia coli copper efflux regulon by the chromosomal MerR homologue, CueR. J Biol Chem. 2001;276(9):6346-54.
- Zaslaver A, et al. Just-in-time transcription program in metabolic pathways. Nat Genet. 2004;36(5):486-91.
- Thomason LC, Costantino N, Shaw DV, Court DL. Multicopy plasmid modification with phage lambda Red recombineering. Plasmid. 2007;58(2):148-58.