אנו מציגים תהליך עבודה של דילול פליטה מעוררת תלת-ממדי (3D STED), המשלב בדיקות קליטה (uptake assays) והפרעה פרמקולוגית, כדי להדמיות של תעבורת חלבוני ממברנה בדיסקים דמיוניים של כנפי Drosophila שלמות ברזולוציה-על כמעט איזוטרופית.
מאמר שיטה
ויזואליזציה של תעבורת חלבונים בהקשר של רקמה שלמה באמצעות ננוסקופיה ברזולוציה-על ב-Drosophila
במאמר זה
סיכום
תקציר
זבוב הפירות Drosophila melanogaster משמש באופן נרחב לחקר מסלולי איתות תאיים והתפתחותיים שמורים in vivo. מסלולי איתות רבים, כולל איתות Wnt, תלויים באירועי הפרשה, אנדוציטוזה ותעתוע תוך-תאי המוסדרים בקפידה. עם זאת, ויזואליזציה של הדינמיקה של חלבונים הקשורים לממברנה בתוך רקמות אפיתליאליות שלמות, כגון דיסקים אימגינליים של כנף, נשארת מאתגרת בשל גודלן הקטן והארגון העמודי הצפוף של תאים אלו. כאן, אנו מציגים פרוטוקול המשלב ננוסקופיה בתלת-ממד מבוססת דילול פליטה מעוררת (3D STED) עם בדיקות ספיגה (Uptake assays) והפרעות פרמקולוגיות בדיסקים אימגינליים של כנף ב-Drosophila. זרימת עבודה זו מאפשרת דימות ברזולוציית-על של דינמיקת חלבונים הקשורים לממברנה בתוך ארכיטקטורה של רקמה שלמה ברזולוציה כמעט איזוטרופית. באמצעות שימוש בתאים המפרישים Wingless כדוגמה, אנו מדגמים את הלוקליזציה והתעתוק של Wingless (Wg) בממברנה האפיקלית. כדי לנתח תהליכי תעתוק דינמיים, זרימת העבודה של הדימות משולבת עם בדיקת ספיגה המסמנת באופן סלקטיבי חלבונים העוברים הפרשה והפנמה מחדש בתוך חלון זמן מוגדר. בשילוב עם מעכבים כימיים וויזואליזציה באמצעות ננוסקופיית 3D STED, גישה זו מאפשרת ניתוח תפקודי של דינמיקת תעתוק הממברנה. יחד, זרימת עבודה זו מספקת מסגרת ורסטילית לחקר ארגון הממברנה ותעתוק חלבונים ברזולוציה סוב-תאית בדגימות רקמה שלמות של Drosophila.
מבוא
זבוב הפירות Drosophila melanogaster הוא אורגניזם מודל נפוץ בביולוגיה של ההתפתחות, אבולוציה, התנהגות ומחקר ביו-רפואי, כולל חקר הסרטן ומחלות אנושיות אחרות1,2. מסלולי העברת אותות תאיים בסיסיים רבים שמורים מאוד בין Drosophila לבין חולייתנים, מה שהופך את מערכת מודל זו לבעלת ערך מיוחד לחקר מנגנונים ביולוגיים שמורים in vivo.
בפרוטוקול זה, דיסקה דמיונית (imaginal disc) של כנף Drosophila משמשת כמערכת מודל לחקר דינמיקה הקשורה לממברנה בתוך נתיב השיגנלינג של Wingless (Wg)/Wnt. נתיבי שיגנלינג התפתחותיים רבים מסתמכים על הפרשה, מיקום ממברנלי, אנדוציטוזה ותעתוע תוך-תאי של מולקולות סיגנל המווסתים באופן הדוק3. כך הדבר גם בגבול הגבי-בטני (DV) של הדיסקה הדמיונית של הכנף, שם Wg מופרש מתאי ייצור בממברנה האפיקלית ומועבר לתאי קליטה שכנים באמצעות אינטראקציות עם גליפיקנים (glypicans)4,5,6,7. בתאי הקליטה, Wg נקשר לקולטני Frizzled ומפעיל שיגנלינג Wnt במורד הנתיב. בנוסף למאגר ה-Wg המועבר הרחק מגבול ה-DV, חלק מה-Wg מופנמ פנימה שוב על ידי תאי הייצור ומועבר דרך המערכת האנדוזומלית ליעדים תוך-תאיים מובחנים8,9,10. לפיכך, תאי הייצור של Wg בגבול ה-DV מהווים מודל מצוין לחקירת תעתוע ממברנלי, דינמיקת הפרשה והמנגנונים התאיים המווסתים את פעילות השיגנלינג in vivo.
עם זאת, הארכיטקטורה העמודית מאוד של תאי אפיתל בדיסקים דמיוניים (imaginal disc) הופכת את הוויזואליזציה למאתגרת, שכן היא דורשת רזולוציה גבוהה ואיזוטרופית יותר מזו שמיקרוסקופיה קונפוקלית קונבנציונלית יכולה לספק כדי להבחין בבעבועים (vesicles) בודדים. כדי להתגבר על מגבלות אלו, ביצענו אופטימיזציה להכנת הרקמה, לצביעה ולתנאי הדמיה עבור ננוסקופיה ברזולוציה-על (super-resolution) ברקמות Drosophila שלמות. באופן ספציפי, ביססנו תהליך עבודה לננוסקופיה תלת-ממדית המבוססת על פליטה מושרה (3D STED), המאפשרת ויזואליזציה אורתוגונלית של לוקליזציה של חלבונים קשורי-ממברנה לאורך הציר האפיקלי-בזאלי של האפיתל11,12. 3D STED מתאימה במיוחד ליישום זה מכיוון שהיא מספקת רזולוציה אקסיאלית משופרת בהשוואה למיקרוסקופיה קונפוקלית קונבנציונלית, מה שמאפשר ויזואליזציה של מבנים תת-תאיים עדינים ברקמות צפופות13,14. באמצעות גישה זו, ניתחנו את אזור הממברנה האפיקלית של תאים המפרישים Wg בגבול ה-DV של הדיסק הדמיוני של הכנף, וזיהינו Wg בממברנה האפיקלית לצד חלבונים קשורי-ממברנה אחרים, כגון Discs large 1 (Dlg1) או Evenness interrupted/Wntless (Evi/Wls).
כדי לחקור לעומק את דינמיקת התעבורה של חלבונים, תהליך הדמיה זה שולב עם בדיקת ספיגה (uptake assay) שבוססה בעבר15. בדיקה זו מאפשרת זיהוי סלקטיבי של חלבונים שעברו הפרשה ולאחר מכן ר-הפנמה (re-internalization) בתוך חלון זמן מוגדר, ובכך מאפשרת ויזואליזציה של מאגר דינמי של חלבונים הנעים דרך ממברנת הפלזמה. כדי להרחיב את יעילותה, בדיקת הספיגה שולבה עם הפרעות פרמקולוגיות, דבר שאפשר לנתח כיצד תהליכים תאיים ספציפיים משפיעים על דינמיקת התעבורה בממברנה. יחד, גישות אלו מספקות מסגרת רבת-עוצמה לחקר מנגנוני תעבורת חלבונים, הפרשה ואיתות בהקשר הרקמתי הטבעי שלהם ברזולוציה מרחבית גבוהה.
יתרה מכך, הפרוטוקול תואם למגוון רחב של גישות צביעה, כולל פרוטוקולי אימונופלואורסצנציה סטנדרטיים. שילוב של צבעים פלואורסצנטיים הוא אפשרי אף הוא, ובכך מורחב טווח המבנים התאיים והמטרות המולקולריות שניתן לדמיין. בכל המקרים, יש לבחור פלואורופורים התואמים למיקרוסקופיית STED. למרות שהפרוטוקול הנוכחי מתמקד בדימות STED תלת-ממדי בשני צבעים (אדום ואדום-רחוק), ניתן להתאים את תהליך העבודה בקלות לפלואורופורים נוספים ולהגדרות דימות חלופיות, ובכך להגביר את הגמישות שלו עבור יישומים ניסיוניים מגוונים.
יחד, פרוטוקול זה מבסס מסגרת ורסטילית לשילוב ננוסקוப்பיה ברזולוציה גבוהה בשיטת STED עם גישות של הפרעה פונקציונלית ברקמות שלמות של Drosophila. זרימת העבודה מספקת בסיס למחקרים עתידיים שיבחנו ארגון ממברנות, תעבורת חלבונים ודינמיקה של איתות ברזולוציה סוב-צלולית בתוך סביבות רקמה מורכבות.
פרוטוקול
1. טיפול משולב במעכב ex vivo ובדיקת ספיגה
הערה: עיין בטבלת החומרים לקבלת מידע מפורט על הכימיקלים והחומרים שנעשה בהם שימוש.
- הכנת מצעים ותמיסות
- הכינו מצע SchM+.
- הוסיפו 4% סרום בקר עוברי (FBS) למצע שניידרר לחרקים (Schneider’s insect medium) ועבדו לערבוב היטב.
הערה: יש להכין מצע SchM+ טרי ביום הניסוי.
- הוסיפו 4% סרום בקר עוברי (FBS) למצע שניידרר לחרקים (Schneider’s insect medium) ועבדו לערבוב היטב.
- הכנה 1× PBS-T.
- הוסף 0.1% Triton X-100 ל-1× מלחים בבופר פוספט (PBS) וערבב היטב.
- הכן תמיסות של תרכובות כימיות.
אזהרה: תרכובות כימיות רבות מבין אלה המופיעות להלן נחשבות לציטוטוקסיות, ולכן חיוני לטיפול זהיר תחת מCהוד עם ציוד מתאים ופינוי פסולת הולם.- Dynasor2-24: המיסו Dynasor2-24 (המוכר גם כ-Dyngo-4a) בתוך דימתיל סולפוקסיד (DMSO), בה accordance עם הוראות היצרן, להכנת תמיסת מלאי בריכוז 10 mM. לצורך הטיפול, דללו את תמיסת המלאי ביחס של 1:1000 או 1:2000 ב-SchM+ כדי להגיע לריכוזים סופיים של 10 µM או 5 µMבהתאמה.
- ביקרת DMSO: לדלל DMSO ביחס של 1:1000 ב-SchM+ ולהשתמש 200 µL כביקורת שלילית בכל ניסוי.
- הכינו בופר חומצי עבור בדיקת ספיגה (uptake assay).
- הכינו תמיסה של 0.1 M גליצין (Glycine) ב-dH2O2.O
- התאם את ה-pH ל-3.5 באמצעות HCl (חומצה כלורית) בריכוז 37%.
- הכינו מצע SchM+.
- איסוף דגימות
- שמרו את הזבובים ב- 25 °C במחזור של 12 שעות אור ו-12 שעות חושך.
- אספו פיתיקים משלב לבה 3 (L3) מהמבחנות באמצעות פינצטה והניחו אותם בלוח צביעה מזכוכית בעל 12 בארות, כאשר כל בארה מלאה ב-SchM+.
הערה: הכין מספיק רקמה כדי לכלול תמיד דגימות ביקורת בכל חזרה ניסיונית. - פתחו את הזחלים בקצה האחורי והפכו אותם.
- הסר את המעי ואת גוף השומן מרקמת הזחליל ההפוכה באופן יסודי ככל האפשר, תוך השארת הרקמה טבולה ב-SchM+.
- לאחר מכן, העבירו את הרקמה לשפרורת PCR בנפח 0.2 מ"ל המכילה SchM+.
הערה: אנו מניחים רק 6–7 זחלים הפוכים לכל מבחנה של תגובת שרשרת פולימראז (PCR), כדי להבטיח טבילה מלאה ותנועה חופשית של הרקמה.
הערה: יש להימנע ממילוי יתר של המבחנה ברקמה כדי למנוע ארטיפקטים במהלך הצביעה. עיין ב- טבלת חומרים לקבלת מידע מפורט על הכימיקלים והחומרים שנעשה בהם שימוש במחקר זה.
- Ex vivo טיפול במעכב ובדיקת ספיגה
- הסר את מצע ה-SchM+ מהדגימה.
- הוסיפו תמיסה של תרכובת כימית שהוכנה מראש לפי הצורך, לדוגמה, 200 µL של 5 µM תמיסת Dynasor2-24.
אזהרה: תרכובות כימיות אלו נחשבות לציטוטוקסיות, ולכן חיוני לטיפול זהיר במכסוף כימיים עם ציוד מתאים ופינוי פסולת נאות. - הוסף 200 µL של תמיסת DMSO (1:1000) לדגימת הביקורת, המהווה ביקורת שלילית.
- עבור בדיקת הספיגה (Witte et al., 202115), הוסף נוגדן ראשוני לתמיסת התרופה: עבור anti-Wg, השתמש בדילול של 1:20 לזיהוי Wg, ועבור anti-GFP לזיהוי חלבונים המסומנים בחלבון פלואורסצנטי ירוק (GFP), השתמש בדילול של 1:40.
- דגרו את הדגימות בטמפרטורת החדר (RT) למשך 90 דקות בחושך.
הערה: בדיקת הספיגה (Uptake assay) היא אופציונלית וניתן להשמיטה בקלות מהפרוטוקול במידה ואינה נחוצה. כמו כן, ניתן להשתמש בתרכובות כימיות אחרות בהתאם לשאלת המחקר. מומלץ לבצע טיטרציה של התרכובת ולמצוא את הריכוז המיטבי עבור כל יישום ספציפי. פנה ל- טבלת חומרים למידע מפורט על הכימיקלים והחומרים ששימשו במחקר זה.
- קיבוע דגימות
- הסר את תמיסת הצביעה משלב 1.3 מיד עם סיום זמן האינקובציה.
- (אופציונלי) שטפו את הדגימות פעמיים עם 200 µL של +SchM.
- להסרה נכונה של הנוגדן הראשוני בבדיקת הספיגה (uptake assay), שטפו את הרקמה במשך 5 דקות עם בופר חומצי בטמפרטורת החדר (RT).
- שטוף במהירות 3× במשך 3 דקות עם SchM+.
- קבע את הדגימות בפורמלהיד 4% ב-SchM+ למשך 30 דקות בטמפרטורת החדר.
- דגירה עם נוגדן ראשוני
הערה: אם נדרש נוגדן ראשוני נוסף לצד הנוגדן ששימש בניסוי הספיגה (uptake assay), יש להחילו בשלב זה ולעבד אותו בהתאם לנהלי צביעה סטנדרטיים של אימונוהיסטוכימיה.- חסמו את הרקמה עם 4% סרום עז נורמלי ב-1× PBS-T למשך 30 דקות לפחות בטמפרטורת החדר תחת ערבוב עדין.
- הסר את תמיסת החסימה.
- הוסף תמיסת נוגדן ראשוני ל-1× PBS בריכוז הרצוי (דוגמאות: anti-wg ביחס של 1:200, anti-dlg1 ביחס של 1:50 או anti-GFP ביחס של 1:200, או כל נוגדן נדרש אחר)
- דגרו את הדגימות ב- 4 °C במהלך הלילה תחת ערבוב עדין.
- (רשות) בצעו אינקובציה של הנוגדן הראשוני למשך 1.5 שעות לפחות בטמפרטורת החדר (RT) תחת ניעור עדין.
- הערה: עיין ב- טבלת חומרים לקבלת מידע מפורט על הכימיקלים והחומרים שנעשה בהם שימוש במחקר זה.
- דגירה עם נוגדן משני
- הסר את תמיסת הנוגדן הראשוני.
הערה: השתמש בתמיסת הנוגדן הראשוני שנעשה בה שימוש בשלב 1× ניתן להשתמש ב-PBS מספר פעמים כאשר הוא מאוחסן במבחנת תגובה נקייה בנפח 1.5 מ"ל ב- 4 °C. - שטוף את הרקמה 3× 10 דקות ב-1× PBS-T תחת ניעור עדין.
הוסף נוגדנים שניים רצויים בדילול של 1:200 ב-1× PBS-T עם צביעה נגדית של הגרעין ב-Hoechst33342 בדילול של 1:2000. נוגדנים משניים עבור STED כוללים anti-mouse Alexa Fluor 594 מעוף, goat anti-rabbit Alexa Fluor 594, goat anti-rabbit STAR635P ו-goat anti-mouse STAR635P. עיין ב- טבלת חומרים למידע מפורט על הכימיקלים והחומרים ששימשו במחקר זה. - דגרו בנוגדן משני למשך לילה ב- 4 °C (רשות: דגירה למשך 1.5 שעות לפחות תחת ניעור עדין בטמפרטורת החדר).
- שטוף את הרקמה למחרת, ביום השלישי× 10 דקות ב-1× PBS-T תחת ערבוב עדין. הדגימות מוכנות כעת להרכבה לצורך דימוי STED. ראה את כל זרימת העבודה איור 1.
הערה: אופטיקת מיקרוסקופים מתוכננת בדרך כלל עבור 23 °C פעולה, אלא אם נדרשים תנאים אחרים. יציבות הטמפרטורה היא קריטית, שכן תנודות גורמות לסחיפה תרמית ויכולות להשפיע על תזמון הלייזר. טמפרטורת חדר יציבה של 20–23 °C (≤ ±±1 °C מומלץ (תנודות)16., עם 21.5–22 °C לעיתים קרובות מפצים עבור חום הנוצר מהמיקרוסקופ. כל רכיבי המיקרוסקופ צריכים להגיע לשיווי משקל תרמי לפני הדמיה. דגריטורים המותקנים על השולחן (Stage-top incubators) מספקים בקרה מדויקת על טמפרטורת הדגימה, אך מאהלים עלולים לכלוא חום ולהגביר את הסחף (drift). קירור פעיל משפר את היציבות. במחקר זה, דגריטור שנבנה בהתאמה אישית (EMBL Heidelberg) שמר על טמפרטורה של 21.5 ±± 0.05 °Cתוך מזעור הסחף התרמי והבטחת ביצועים יציבים של STED בתלת-ממד.
- הסר את תמיסת הנוגדן הראשוני.
2. הכנת דגימות עבור ננוסקופיה ודימות ברזולוציה-על בשיטת 3D STED
- הכנות של ציוד וחומרים:
- הגדירו את המיקרוסקופ.
- הקפידו להשתמש במיקרוסקופ מתאים לניסוי. במקרה זה, נעשה שימוש במיקרוסקופ Leica Stellaris 8 STED Falcon.
- השתמש בעדשה אובייקטיבית מתאימה. במקרה זה, נעשה שימוש בעדשה מסוג HC PL APO 86x/1.20 W motCORR STED white.
- כדי לאפשר דימוי תקין, הפעל את מערך המיקרוסקופ כולו לפחות שעתיים לפני הדימוי (ראה הערה לאחר שלב 1.6.4).
- הכינו צלחיות מצופות poly-L-lysine.
- הכינו תמיסת poly-L-lysine עם 0.6% poly-L-lysine ו-0.002% Photo Flo ב-dH2O2חלק את התמיסה למכריעות (aliquots) ואחסן אותן לטווח ארוך ב-20 °Cלאחר ההפשרה, יש לשמור ב- 4 °C ניתן להשתמש שוב עד 10 פעמים.
- הוסף 200 µL של תמיסת poly-L-lysine אל תחתית של זכוכית כיסוי בעובי 1.5H µ-צלחת (∅(35 מ"מ)
- הניחו את הצלחונות בנטייה אנכית לייבוש.
- לאחר שהתמיסה של poly-L-lysine התייבשה לחלוטין, חזרו על פעולת הציפוי פעם נוספת.
- הוסיפו בזהירות רכיבי ריווח מלקי ציפורניים בשני צדדיו של תחתית הזכוכית של כיסוי העצמים (coverslip).
- לאחר ההרכבה, כסו את הדגימות באמצעות 1.5H round (∅לוחיות כיסוי (12 מ"מ) (ראו איור 2).
- הגדירו את המיקרוסקופ.
- הסדרי קיבוע עבור STED בתלת-ממד
- הערה: עבור ננוסקופיית STED בתלת-ממד (ראו את ההערה לאחר שלב 2.2.12), חיוני להתאים את מקדמי השבירה בין עדשת ה-STED לבין התווך המקבע (דוגמה כאן: עדשת מים ו-1× תוכנית הרכבה של PBS).
- הניחו את הדגימות בתוך צלחת פטרי קטנה הממולאת ב-1× PBS.
- הוסף 15 µL מתוך 1× PBS כטיפה על גבי הצלחית המצופה ב-poly-L-lysine שהוכנה מראש.
- בצעו דיסקציה של דיסקי הדמיה (imaginal discs) של הכנף מרקמת הזחלים שנותרה והניחו אותם ב- 15 µL 1× טיפת PBS.
- וודאו שדיסקי הכנף (wing discs) מודבקים לכיסוי הזכוכית המצופה ואינם צפים.
- אין ללחוץ את הדיסקים בכוח; יש להניח להם לשקוע אל הזכוכית המכסה בעדינות מרבית. כדי להבטיח אוריינטציה נכונה, ודאו שדיסקי הכנף מורכבים כך שהממברנה הפריפודלית (peripodal membrane) פונה כלפי מטה אל הזכוכית המכסה.
- לאחר ההרכבה, כסו את הדגימות ב-1.5H עגול (∅זכוכיות כיסוי (12 מ"מ).
- ודאו שקצוות זכוכית הכיסייה מונחים על המרווחים של ללק הציפורnails שהוצמדו קודם לכן, כדי למנוע מעיכה של הדגימה.
- אטמו את לבידת הכיסוי בעזרת לק לציפורניים מכל הצדדים כדי למנוע התאיידות של חומר העיגון.
- שמרו את הצלחות בחשיכה עד לצילום הסופי.
- התאימו את טמפרטורת הדגימה לטמפרטורת תא הדגירה של המיקרוסקופ על ידי הנחת הדגימה בתא הדגירה לפחות 30 דקות לפני הדימות במיקרוסקופ.
- כדי למנוע כל תזוזה של הדגימה, ייסבו את הצלחית בתוך תומך המיקרוסקופ באמצעות דבק רגיש ללחץ (למשל, Blu Tack).
הערה: המונחים 2D STED ו-3D STED מתארים את סוג שיפור הרזולוציה, ולא האם נרכשה תמונה בודדת או סדרת תמונות (z-stack)12,17STED דו-ממדי (2D STED) משפר רק את הרזולוציה הלטרלית (x,y), בדרך כלל עד ל- <50 ננומטר, בעוד שהרזולוציה האקסית (z) נשארת דומה לזו של מיקרוסקופיה קונפוקלית (~600 ננומטר). היא חסונה יחסית ובדרך כלל סובלנית להתאמה לא מושלמת של מקדם השבירה בין הדגימה לבין תווך הטבילה של העדשה.12שיטת 3D STED משפרת הן את הרזולוציה הלטרלית והן את הרזולוציה האקסיאלית, עם שיפור משמעותי במיוחד לאורך ציר ה-z. באמצעות אופטימיזציה של הפלואורופור ותנאי הדיפלציה (depletion) של ה-STED, ניתן להשיג רזולוציה כמעט איזוטרופית של כ-100-120 נ"מ בדגימות ביולוגיות.17,18עם זאת, תבנית הדיפלציה (depletion) ב-STED בתלת-ממד רגישה מאוד לאברציות ספריות. לכן, דימוי מוצלח מחייב התאמה קפדנית של מקדם השבירה וכיוון מדויק של טבעת התיקון של העדשה לאורך הממשי של לבישת הזכוכית (coverslip).
- דרישות והגדרה לננוסקופיה
- הפעל את כל רכיבי המיקרוסקופ הנדרשים בהתאם להוראות היצרן.
- אל תפעילו את מפסקי הלייזר עדיין.
- הגדירו את הטמפרטורה של תא הדגירה של המיקרוסקופ ל-22–23 °C לפחות 1.5 שעות לפני הדמיה.
- הנח גם את הדגימה בתא המיקרוסקופ והמתן לפחות 30 דקות להסתגלותה לטמפרטורה.
- הדליקו את המחשב ופתחו את התוכנה LAS X (גרסה 4.9.0).
- בחר דימוי STED בחלון הפתיחה והפעיל את התוכנה
- כאשר התוכנה נטענת, סובב את מפתחות הבטיחות של שני הלייזרים כאשר נורותיהם מאירות בצבע ירוק.
- עברו אל ה- השג לחץ על הלשונית ובחר את עדשת ה-STED המתאימה (HC PL APO 86x/1.20 W motCORR STED).
- עבור אל ה- תצורה השתמש במקש ה-tab ולחץ על הכפתור עבור תצורת הלייזר.
- לחצו על כל מריצי הלייזר כדי להפעיל אותם פעיל.
- עבור אל ה- תצורה השתמש במקש ה-Tab ולחץ על הכפתור עבור מיקרוסקופיית STED (דיפלה של פליטה נגמרת בגירוי).
- לחץ יישור הקרניים.
- חזרו על יישור הקרניים לאחר 30 דקות ושעתיים של דימות כדי להבטיח יישור אופטימלי – חזרו על הפעולה לאחר מכן במידת הצורך, למשל, כאשר מזהים ירידה ברזולוציה או רקע גבוה יותר.
- יישרו את טבעת התיקון (הממונעת) של האובייקט לעובי הזכוכית של כיסוי התבנית (coverslip), באמצעות אות ההחזרה של פני השטח של כיסוי התבנית:
- עבור אל ה- רכישה לחצו על הטאב והתחילו לקבוע את ערך ה-motCORR.
- צור ערוץ חדש עבור פלואורסצנציית GFP ב- קונפוקאלי במצב זה, יש לבצע פוקוס על תאי הדגימה.
- לחץ על ה- בשידור חי לחץ על הכפתור והעבר את הדגימה למיקום שבו לא נמצאה דגימה.
- הפסק את הדימות החי.
- יש לוודא כי רק גלאי ה-HyDS משמש לערוץ זה.
- הגדר את ה- מסנן חסם-פס (Notch filter) תצורה ל- החזרה.
- לחץ על ה- הכוונה לחצן ובחר אוריינטציית xzy.
- הפחית את מהירות הדמיית החיים המהירה ל-100 Hz אם הדגימה נראית לא יציבה או מראה תנועה בציר z.
- התחל בדימות חי על ידי לחיצה על ה- תגובה מהירה בשידור חי כפתור
- אתר את זכוכית הכיסוי של הדגימה, שתופיע כקו
- כוון את ערך ה-motCORR עד שהאות של קו זה יהיה חד וצר ככל האפשר
הערה: עם כיסוי זכוכית (coverslip) בעובי 1.5H, הערך נמצא בדרך כלל בטווח של 48%–56%. - כעת התחילו בבחירת הערוצים עבור הדמיון ב- רכישה טבלה
- פנה אל טבלה 1 עבור ההגדרות לזיהוי Alexa Fluor 594 ו-STAR635P במצב STED.
- דימות
- בחר את אזור הדימוי דרך העיניות של המיקרוסקופ.
- סובב את הדגימה בזהירות כדי ליישור אנכי של גבול ה-DV (איור 2).
- סגרו את התריס במקרה של המיקרוסקופ ועברו לדימות קונפוקאלי, תוך הפעלת המיקרוסקופ באמצעות המחשב.
- לחץ שידור חי מהיר לחצן, כוון את הפוקוס ובדוק את האוריינטציה של גבול ה-DV.
- הפסק את הדימיון החי.
- (אופציונלי) צלם תמונת סקירה (overview) באוריינטציית xyz במצב קונפוקאלי (הגדר את לייזר ה-STED ל-0% בשני הערוצים) לצורך התייחסות מאוחרת בשלב זה. הפעל את לייזר ה-STED לאחר צילום תמונת הסקירה.
- בחר את כיוון ה-xzy והתאם את הקו המופיע לאזור המדויק לצילום אורתוגונלי.
- לחץ על ה- שידור חי מהיר לחצן וכוונון המיקוד במידת הצורך.
- כוון את מיקום ה-x של הדגימה באמצעות גלגל ה-z במיקרוסקופ.
- ודאו שלייזרי ה-STED פועלים עבור שני הערוצים וכי כל ההגדרות נכונות.
- לחץ התחל את הניסוי.
- העוצמה לפיקסל (גלאי במצב ספירת פוטונים) היא בין 50 ל-300 פוטונים שזוהו; נתון זה תלוי גם בעוצמת הלייזר, בזמן השהייה של הפיקסל ובמספר צבירות השורות (line accumulations) שבוצעו. אם מודול מדידות חיי פלואורסצנציה (FLIM) (Falcon) זמין, יש לוודא שזוהה פחות מפוטון אחד לכל פולס לייזר.
- התאימו את הערכים כנדרש עבור הדגימה הבודדת.
- אתגרים עבור ננוסקופיית STED
- כדי להמחיש אזור מורפולוגי ספציפי ב-3D STED, סובבו והכווינו את הדגימה במיקרוסקופ כדי להגדיר את הרקמה בדיוק רב עם הציר הנדרש, לפני המעבר ממבט XY למבט XZ. השגיג את חופש הפעולה הזה על ידי קיבוע על פטריות עגולות שניתן להזיזן בהתאם לדרישות הניסוי (איור 2).
- במהלך סריקת xz, הדגימה מורחקת פיזית לאורך ציר z, דבר שגרם בתחילה לתזוזה קלה של הצלחת במישור xy עקב התנודות לאורך הציר האנכי. כדי למנוע כל תזוזה של הצלחות, קבעו את הצלחת למחזיק הדגימות של המיקרוסקופ באמצעות דבק מסיכה (Blu Tack). דבר זה איפשר סיבוב חופשי, תוך מניעת תנועה אנכית (ציר z).
- כדי למנוע התאיידות של מדיום הקיבוע (mounting medium) והתייבשות של הרקמה, כיסויות הזכוכית נחתמו בלק גוף.
- כדי למנוע סחיפת דגימות עקב הבדלי טמפרטורה בין הדגימה למיקרוסקופ, העבירו את הדגימות לתא הדגירה של המיקרוסקופ לפחות 30 דקות לפני הצילום, וכך אפשרו להן להגיע לטמפרטורה של המיקרוסקופ.16.
- לבחירת הנוגדן המשני, פעל לפי השלבים הבאים:
- מגוון רחב של פלואורופורים מתאים להדמיית STED, אך רק תת-קבוצה מהם משלבת תכונות ספקטרליות ופוטו-פיזיקליות נוחות עבור STED דו-צבעי המשתמש בלייזר דפלציה (depletion) יחיד (במקרה זה, 775 ננומטר). השתמשו באורך גל דפלציית STED אחד עבור שני הפלואורופורים כדי להבטיח יישור כרומטי (chromatic alignment) מובנה ולבטל את הצורך בתיקון הסטה כרומטית, על ידי הגדרת שני הערוצים עם תבנית דפלציית STED זהה.
- זוגות פלואורופורים נפוצים כוללים את STAR RED/STAR635P, ATTO 647N/ATTO 643, בשילוב עם Alexa Fluor 594, STAR 580 או STAR ORANGE18,19כאן נעשה שימוש בשילוב המקובל של Alexa Fluor 594 ו-STAR635P. למרות שספקטרומי הפליטה שלהם חופפים חלקית, יש לרכוש את הפלואורופורים במצב של שורה-אחר-שורה (line-by-line mode) תוך שימוש בחלון גילוי צר עבור Alexa Fluor 594 כדי למזער את ה-crosstalk (ראה טבלה 1). מכיוון שדבר זה מפחית את יעילות הגילוי של Alexa Fluor 594, הקצו את הצביעה האימונוהיסטוכימית הבהירה יותר לערוץ זה.
תוצאות
כדי לקבוע תנאי דימות מתאימים לננוסקופיית 3D STED בדיסקים דמיוניים (imaginal discs) של הכנף, ביצענו תחילה צביעת אימונופלואורסצנציה סטנדרטית של Wg והחלבון Dlp הקשור לממברנה האפיקלית. Wg זוהה באמצעות Alexa Fluor 594, בעוד Dlp סומן ב-STAR635P, שני פלואורופורים התואמים לננוסקופיית STED (איור 3). תמונות נרכשו הן ללא דלטור STED כדי להשיג תמונות באיכות קונפוקלית והן עם דלטור STED לדימות ברזולוציה גבוהה (super-resolution) תוך שימוש בהגדרות המתוארות בשלב 2.3 (איור 3).
השוואה ישירה של אותו אזור רקמה שדומם בתנאי קונפוקליות ו-STED כחתכים במישור xz הדגימה את העלייה המשמעותית ברזולוציה המרחבית המסופקת על ידי ננוסקופיית 3D STED (איור 3A–D′). מבנים שנראו כאותות מוארכים בתמונות קונפוקליות (איור 3A,A′, ו-איור C,C′) נפתרו למספר נקודות (puncta) נפרדות במצב STED (איור 3B,B′, ו-איור D,D′). שיפור זה נצפה הן בערוצי Alexa Fluor 594 והן בערוצי STAR635P, ושימש לאופטימיזציה של פרמטרי הצביעה והדימוג כדי להשיג את איכות האות הגבוהה ביותר ורזולוציה איזוטרופית ברקמת wing disc שלמה.
בשלב הבא, שילבנו את בדיקת ספיגת ה-Wg15 עם עיכוב פרמקולוגי כדי לחקור את הובלת ה-Wg בממברנה האפיקלית ואת המיחזור שלו באמצעות אנדוציטוזה תלוית קלתירין. השתמשנו בזן זבובים עם תגית אנדוגנית של Wg::GFP20, מה שאפשר זיהוי של Wg::GFP חוץ-תאי באמצעות נוגדן anti-GFP, תוך שמירה על תאימות לנוגדים נוספים ממקור עכברי.
דיסקים אימגינליים של כנף טופלו ב-Dynasore 2-24, מעכב דינמין המכוון לאנדוציטוזה תלוית קלתרין ודינמין21,22, ולאחר מכן הועמדו לבדיקת ספיגת Wg. Wg::GFP חוץ-תאי סומן עם נוגדן anti-GFP כדי לנטר את ההפנמה, בעוד שצביעת anti-Dlg1 שימשה להדמיית מורפולוגיית הרקמה. Wg זוהה באמצעות Alexa Fluor 594 והודמיה במצב STED, בעוד ש-Dlg1 סומן עם STAR635P (איור 4). דיסקים של ביקורת שטופלו ב-DMSO הראו הפנמה הדרגתית של Wg::GFP לאורך בדיקת הספיגה, כאשר אות אנדוציטוטי זוהה עד לעומק של כ-14 µm (איור 4A,A′). הניסוי חזר על עצמו באופן עצמאי פעמיים לפי הפרוטוקולים המתוארים בסעיפים 1 ו-2 (איור 4B,C). בחזרה הראשונה, טיפול ב-5 µM Dynasore2-24 ביטל לחלוטין את ספיגת ה-Wg (n = 4; איור 4B,B′). בחזרה השנייה, הפנמת ה-Wg הופחתה אך לא בוטלה (n = 4; איור 4C,C′), כאשר עומק החדירה המקסימלי פחת לכ-5 µm.
שונות כזו נצפית בדרך כלל בניסויי עיכוב פרמקולוגיים וככל הנראה משקפת הבדלים ביעילות המעכב או בעיתוי. עיכוב חלקי, חדירה מוגבלת של המעכב לרקמה, התאוששות של האנדוציטוזה במהלך הבדיקה, או עיכובים שנוצרו בשל שלבי השטיפה החומצית והקיבוע עשויים לתרום להפנימה שיורית של Wg. עם זאת, שני הניסויים הראו בעקביות הפחתה ניכרת בבליעת Wg ובעומק החדירה בהשוואה לבקרי ה-DMSO, דבר המעיד על עיכוב מוצלח של האנדוציטוזה. ממצאים אלה מדגישים גם כי תזמון מדויק לאורך כל הפרוטוקול הוא קריטי לקבלת תוצאות הדירות.
אות שארית הקשור לממברנה נצפה לעיתים לאחר הסרה חומצית (acid stripping), וסביר להניח שהוא מייצג מולקולות Wg::GFP שכבר חדרו לבורות אנדוציטוטיות מוקדמות ולכן לא היו נגישות להסרה באמצעות נוגדנים23,24,25.
יחד, ניסויים אלו מדגימים כי שילוב של בדיקת ספיגת Wg עם הפרעה פרמקולוגית וננוסקופיית 3D STED מאפשר ויזואליזציה של דינמיקת תעבורת הממברנה בדיסקים דמיוניים של כנף שלמים. הם מזהים בנוסף פרמטרים מרכזיים ליישום מוצלח של הפרוטוקול, כולל שילובי פלואורופור ונוגדנים מתאימים, טיפול אופטימלי במעכבים, תזמון קפדני של בדיקת הספיגה, והרכבה מיידית של הדגימה לפני הדימוי.
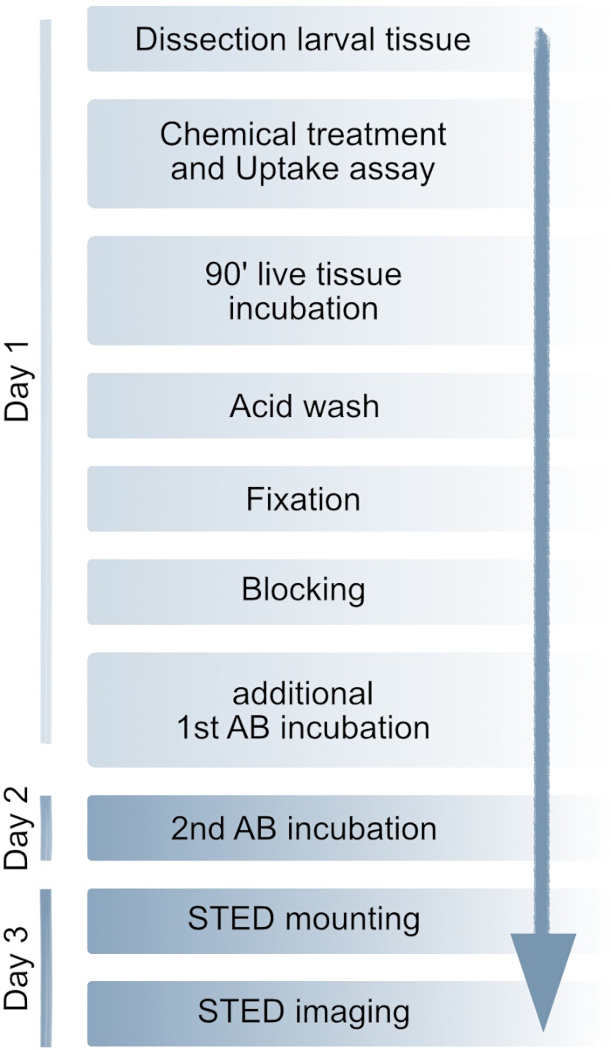
איור 1: זרימת העבודה של השיטה. ניתן להשלים את הפרוטוקול המלא תוך 3 ימים. באופן רשות, ניתן לבצע את הדגירה של הנוגדן המשני באותו היום. הליכים מפורטים מופיעים בסעיף הפרוטוקול. AB: נוגדן. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
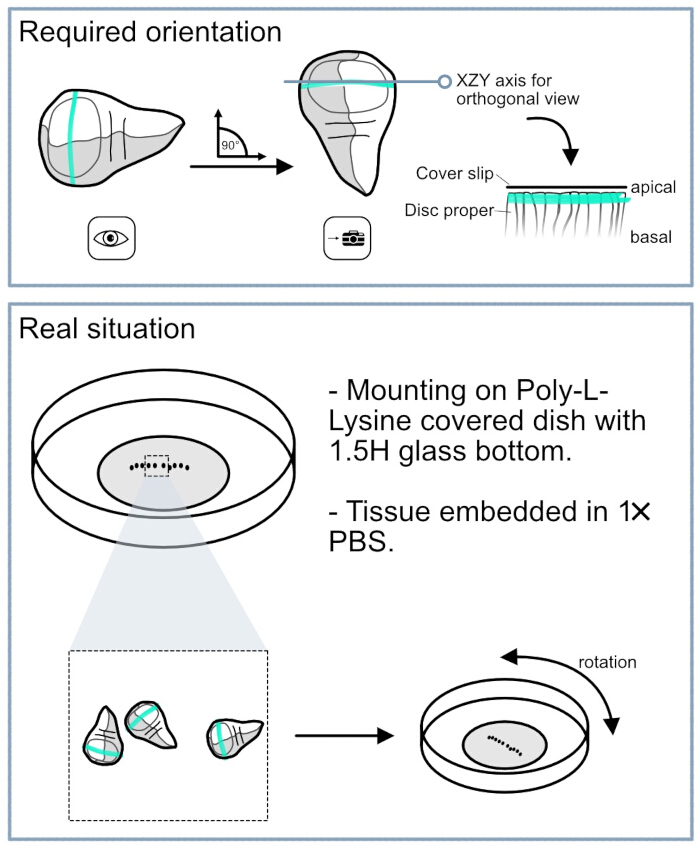
איור 2: אתגרים בהרכבת דיסקי כנף של Drosophila עבור 3D STED. בפאנל העליון, מוצגת האוריינטציה הנדרשת של דיסקי הכנף. לצורך ניתוח של תאים המפרישים Wg, חיוני שגבול ה-DV יהיה מיושר באופן אנכי מושלם במבט דרך העינית. יישור זה מאפשר לסובב את מבט המצלמה למישור האורתוגונלי, מה שמאפשר מיקוד מדויק של אוכלוסיית התאים הרצויה. הפאנל התחתון מציג את ההגדרות המעשיות ששימשו לטיפול בדיסקי כנף במהלך הדמיה. דיסקי הכנף הורכבו בצלחות פטרי עגולות בעלות תחתית של כיסוי זכוכית 1.5H. פני השטח של כיסוי הזכוכית קושיו ב-poly-L-lysine כדי להקל על היצמדות הרקמה. עיצוב הצלחת העגולה מאפשר סיבוב בתוך מחזיק המיקרוסקופ, מה שמאפשר יישור אנכי מדויק של גבול ה-DV כנדרש להדמיה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
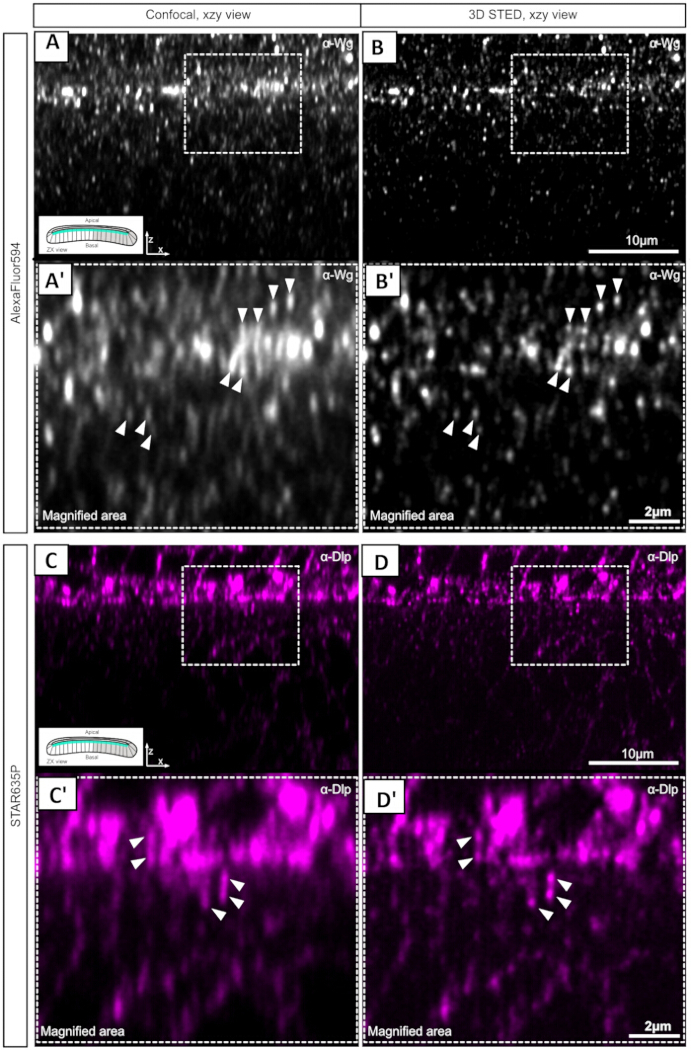
איור 3: השוואה בין דימוי קונפוקאלי לדימוי 3D STED בגבול ה-DV של דיסקיות כנף של Drosophila. (A) תמונה קונפוקאלית של תאים מפרישי Wg בגבול ה-DV המוצגת במישור XZ. צביעה אנטי-Wg זוהתה באמצעות Alexa Fluor 594. (A’) תצוגה מוגדלת של האזור המסומן המראה אותות מוארכים (ראשי חצים) באזור הממברנה האפיקלית. (B,B’) אותו אזור שצולם באמצעות ננוסקופיית 3D STED. המוצג הוא אות ה-Alexa Fluor 594. בהשוואה לדימוי קונפוקאלי, 3D STED מפריד את האותות המוארכים לנקודות (puncta) נפרדות וחושף מספר אותות בודדים (ראשי חצים). (C) תמונה קונפוקאלית של ערוץ STAR635P מאותו דגימה שהוצגה ב- A וב- B. כדוגמה, Dlp זוהה באמצעות נוגדן משני המשוך ל-STAR635P, המדגיש את הממברנה האפיקלית. (C’) תצוגה מוגדלת המראה אותות מוארכים בתמונה הקונפוקאלית. (D) תמונת 3D STED של אותו אזור שהוצג ב- C. (D’) תצוגה מוגדלת המדגימה כי האותות הרחבים והמוארכים שנצפו במיקרוסקופיה קונפוקאלית מופרדים לנקודות נפרדות על ידי דימוי 3D STED. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
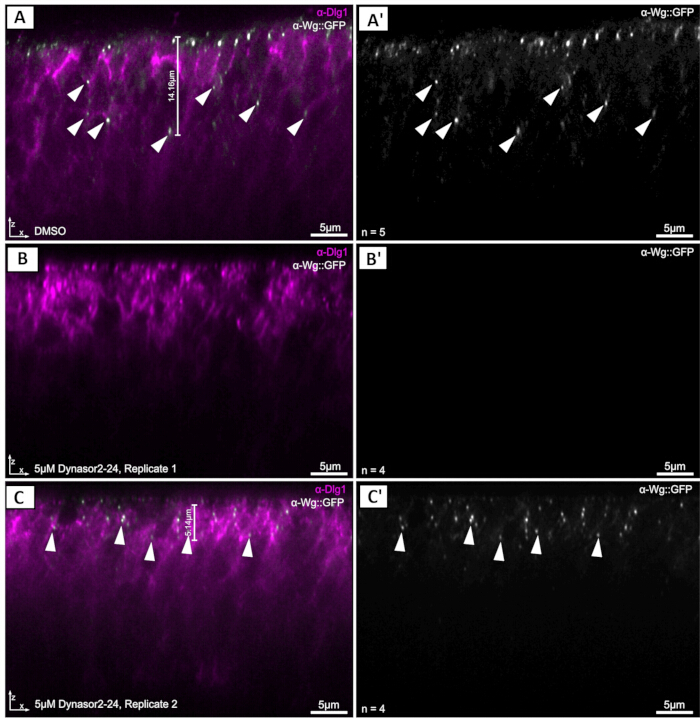
איור 4: שילוב של עיכוב כימי עם בדיקת ספיגת Wg בדיסקים אימגינליים של כנף Drosophila המדומיינים באמצעות 3D STED. (A,A’) דיסק ביקורת מייצג שטופל ב-DMSO (n = 5). Wg::GFP חוץ-תאי (אפור) מסומן ביעילות, ו-Wg::GFP שהופנם מזוהה בתוך התא (ראשי חצים). Dlg1 (מגנטה) מסמן את מורפולוגיית הרקמה ואת האזור האפיקלי של הדיסק עצמו. (B,B’) דגימה מייצגת מחזרה 1 שטופלה ב-5 µM Dynasore2-24 לעיכוב אנדוציטוזה התלויה בכלאתרין ודינמין (n = 4). אות ה-Wg::GFP נעלם בעקבות בדיקת הספיגה. (C,C’) דגימה מייצגת מחזרה 2 שטופלה ב-5 µM Dynasore2-24 (n = 4). אות Wg::GFP שיורי נותר ניתן לזיהוי ליד הפני השטח האפיקליים (ראשי חצים), אך האות התוך-תאי מוגבל לכ-5 µm הראשונים של הרקמה, בהשוואה לכ-14 µm בביקורות שטופלו ב-DMSO (סרגלי מדידה ב-A וב-C). Dlg1 (מגנטה) משמש כסימוכין מורפולוגי. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| הגדרות | ערוץ Alexa Fluor 594 | ערוץ STAR635P |
| מטרה | 86x/1.2 HC PL APO CS2 (מים) | 86x/1.2 HC PL APO CS2 (מים) |
| גודל פיקסל | 37 ננומטר × 37 nm | 37 ננומטר × 37 ננומטר |
| זום | 1.2 | 1.2 |
| חלון גילוי | 3072 × 1536 פיקסלים | 3072 × 1536 פיקסלים |
| ממוצע שורה | 1 | 1 |
| הצטברות קווים | 16 | 16 |
| מהירות סריקה | 100–200 | 100–200 |
| גודל חור הפשיר (Pinhole) | 70 μm | 70 μm |
| קו לייזר עירור | 580 nm | 638 ננומטר |
| עוצמת קו לייזר העירור | 4%–10% (תלוי בדגימה) | 8%–10% (תלוי בדגימה) |
| גלאי | HyD X2, 595–625 ננומטר | HyD X4, 650–740 nm |
| לייזר עירור לסגירה זמנית של טאו (Tau gating) | 0.5–8 ns | 0.5–8 ns |
| קו לייזר לדיפלציה | 775 nm | 775 nm |
| עוצמת לייזר לדילול (Depletion) | 65-75% (תלוי בדגימה) | 65-75% (תלוי בדגימה) |
| עיבוד תמונה לאחר צילום המבוסס על זמן חיים (τ(מיקרוסקופיית פליטה מעכבת דיפוזיה - STED) | τ-חוזק: 10 | τ-חוזק: 10 |
| τ-דיכוי רקע: פעיל | τ-דיכוי רקע: פעיל | |
| החלקה: 0 | החלקה: 0 |
טבלה 1: הגדרות מיקרוסקופ מפורטות עבור פלואורופורים במיקרוסקופ STELLARIS SP8. סיפקנו את ההגדרות שבהן השתמשנו עבור הפלואורופורים Alexa Fluor 594 ו-Star635P.
דיון
הדמיון הוויזואלי של תנועת ממברנות ודינמיקת איתות בתוך רקמות שלמות נותר מאתגר מבחינה טכנית, ובמיוחד בתאים אפיתליאליים בעלי פולריזציה גבוהה, כגון אלו הנמצאים בדיסקי הדמיה של כנפי Drosophila. המורפולוגיה העמודית והצרה של תאים אלו מגבילה את המידע שניתן להפיק באמצעות מיקרוסקופיה קונפוקלית קונבנציונלית, במיוחד כאשר מנתחים לוקליזציה של חלבונים לאורך הציר האפיקלי-בזאלי. בפרוטוקול זה, טיפלנו במגבלות אלו על ידי שילוב ננוסקופיית 3D STED11,12 עם בדיקות קליטה מבוססות נוגדנים והפרעות פרמקולוגיות. יחד, גישות אלו מאפשרות ויזואליזציה של אירועי תעבורת חלבונים דינמיים בתוך סביבת הרקמה הטבעית שלהם, ברזולוציה מרחבית שאינה ניתנת להשגה באמצעות הדמיה קונפוקלית סטנדרטית.
יתרון מרכזי של זרימת העבודה הוא השימוש בננוסקופיית 3D STED לחקירת תהליכים הקשורים לממברנה ברקמות שלמות. השוואה ישירה בין דימוי קונפוקאלי לדימוי STED הראתה כי אותות מוארכים שנצפו במיקרוסקופיה קונפוקאלית יכולים להיות מופרדים לנקודות (puncta) נפרדות באמצעות דימוי 3D STED (איור 3), מה ששיפר באופן משמעותי את הוויזואליזציה של חלבונים בממברנה האפיתלית. רזולוציה מוגברת זו היא בעלת ערך מיוחד לניתוח מסלולי הפרשה, אנדוציטוזה ותעבורה תוך-תאית, שבהם מיקום מדויק של וזיקולות בודדות ושל קומפלקסים חלבוניים הקשורים לממברנה הוא חיוני. יתרה מכך, היכולת להשיג מבטים אורתוגונליים מאפשרת לבחון את ארגון החלבונים והתעבורה שלהם לאורך הציר האפיקלי-בזאלי של תאי אפיתל.
שילוב של הפרעות פרמקולוגיות עם בדיקת הספיגה מרחיב עוד יותר את האפשרויות הניסיוניות של השיטה. בעוד שבדיקת הספיגה מסמנת באופן סלקטיבי חלבונים שעברו הפרשה וספיגה חוזרת בתוך חלון זמן מוגדר, טיפולים פרמקולוגיים מאפשרים להפריע למסלולי הובלה ספציפיים. השילוב של גישות אלו מספק, אם כן, תובנה ישירה לגבי האופן שבו תהליכים תאיים משפיעים על דינמיקת הובלת חלבונים in vivo. כפי שהודגם, ויזואליזציה של Wg::GFP שנספג תחת עיכוב של אנדוציטוזה תלוית קלתין הובילה לאובדן האות הפנימי של החלבון המסומן בממברנה האפיקלית ו/או להפחתה באות הספיגה התוך-תאי, מה שממחיש כיצד ניתן להשתמש בזרימה זו כדי לחקור מנגנוני הובלה בתוך ההקשר הרקמתי הפיזיולוגי שלהם. באופן רחב יותר, גישה זו משלימה אסטרטגיות גנטיות קלאסיות ומחזקת עוד יותר את התועלת של Drosophila כמערכת מודל למחקרים מכניסטיים של מסלולי איתאות.
מספר גורמים הם קריטיים ליישום מוצלח של הפרוטוקול. ראשית, בחירת הנוגדנים הראשוניים היא מכרעת, שכן נדרש סימון חסון וספציפי לצורך זיהוי אמין של האות. עם זאת, הזמינות המוגבלת של נוגדנים מתוקתקים נגד חלבונים אנדוגניים של Drosophila נותרה מגבלה מרכזית. בפרוטוקול זה, עובדה זו הצריכה שימוש בקו Wg::GFP מתויג אנדוגנית, מכיוון שנוגדנים רבים הנמצאים בשימוש נפוץ ב- Drosophila הופקו בעכבר, דבר המגביל סימון אימונולוגי מרובה (multiplex immunolabeling). למרות שצבעים פלואורסצנטיים יכולים לספק חלופה לסימון מבנים תאיים כגון ממברנות, מיטוכונדריה או אברונים אחרים, רוב הצבעים הזמינים מסחרית עברו אופטימיזציה עבור תאים בתרבית וקשה ליישמם ביעילות ברקמות שלמות של Drosophila.
בנוסף, יש להעריך בקפידה את התאימות של נוגדנים משניים ופלואורופורים לננוסקופיית STED, שכן לא כל הפלואורופורים מספקים עוצמת אות, יציבות פוטוכימית או יעילות דפלציה מספקת בתנאי דימות של STED19,26. התוצאות המוצגות כאן מדגישות עוד יותר את החשיבות של הכנת הדגימה והטיפול ברקמה. באופן דומה, יש לבצע אופטימיזציה קפדנית של טיפולים פרמקולוגיים, שכן ריכוזי תרופה גבוהים מדי עלולים לפגוע בשלמות הרקמה וליצור ארטיפקטים של דימות המסתרים אותות ביולוגיים. אוריינטציה מדויקת של הרקמה חשובה באותה מידה, שכן נדרש יישור מדויק של הגבול הדורסו-ונטרלי כדי להשיג מבטים אורתוגונליים ולדמות באופן הדיר את אוכלוסיות התאים הרצויות (איור 2).
ניתן להכניס מספר התאמות כדי להתאים את זרימת העבודה לדרישות ניסיוניות שונות: ניתן לכוון את משך בדיקת הספיגה (Uptake assay) כדי לאזן בין סימון חלבון מספיק לבין שמירה על שלמות הרקמה. באופן דומה, ריכוזי המעכבים עשויים לדרוש תיחור (titration) בהתאם לסוג הרקמה, לשלב ההתפתחותי או למסלול השליחייה הנבדק. הפרוטוקול תואם גם למגוון גישות צביעה, כולל אימונופלורסנציה סטנדרטית, אימונופלורסנציה חוץ-תאית ואסטרטגיות סימון מבוססות פלואורופור, בתנאי שהפלואורופורים הנבחרים מתאימים לננוסקופיית STED. למרות שזרימת העבודה הנוכחית מתמקדת בדימות דו-צבעי, ניתן להרחיב את יישומיה באמצעות פלואורופורים נוספים ותצורות דימות שונות.
בעוד שפרוטוקול זה פותח באמצעות דיסקים דמיוניים של כנף Drosophila ומסלול השעור Wg/Wnt כמערכת מודל, הגישה אינה מוגבלת ליישומים אלו. ניתן להתאים את זרימת העבודה בקלות לרקמות אחרות של Drosophila, וככל הנראה היא ניתנת להעברה למודלים של חרקים אחרים עם ממדי רקמה ותכונות אופטיות דומות. באופן כללי יותר, השילוב של בדיקות ספיגה (Uptake assays), הפרעות פרמקולוגיות וננוסקופיית 3D STED מספק מסגרת ורסטילית לחקר ארגון ממברנה, תעבורת חלבונים, הפרשה ודינמיקה של אותות in vivo. יכולת זו צפויה להיות בעלת ערך לא רק למחקרים בסיסיים של מסלולי איתות התפתחותיים, אלא גם למחקר ביו-רפואי השואף להבין פגמים בתעבורה הקשורים למחלה. על ידי מתן אפשרות לוויזואליזציה ישירה של אוכלוסיות חלבונים דינמיות ברזולוציה תת-תאית בתוך רקמות שלמות, השיטה מספקת פלטפורמה עוצמתית לחקר המנגנונים התאיים המווסתים איתות במערכות ביולוגיות מורכבות.
גילויים
המחברים מצהירים כי אין להם ניגודי עניינים.
תודות
M.B. ו-M.H. נתמכים על ידי מרכז המחקר השיתופי CRC/SFB1324 של ה-Deutsche Forschungsgemeinschaft (מספר פרויקט 331351713) העוסק במנגנונים ובתפקודים של שילוח Wnt. ברצוננו להודות למעבדה המרכזית למיקרוסקופיה של האור ב-DKFZ (LMCF) על מומחיותה ותמיכתה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מבחנות תגובת PCR בנפח 0.2 מ"ל | Biozym | 711068 | |
| מבחנה לתגובה בנפח 1.5 מ"ל | Sarstedt | 72.706.700 | |
| תחתית של כיסוי זכוכית בעובי 1.5H μ-צלחת פטרי, 35 מ"מ | Ibidi | #81158 | |
| מכסי זכוכית עגולים (12 מ"מ) בעובי 1.5H | מרינפלד | אנא ספק את טקסט המקור באנגלית לתרגום. | |
| לוח צביעה מזכוכית בעל 12 בארות | מרינפלד | CET6.20 | |
| פורמאלדהיד 37% | Merck | F8775 | |
| anti-dlg1 | DSHB | 4F3 | |
| אנטי-dlp | DSHB | 13G8 | |
| אנטי-GFP | Invitrogen | A11122 | |
| anti-mouse Alexa Fluor 594 | Invitrogen | A21201 | |
| anti-mouse STAR635P | Abberior | ST635P-1001 | |
| anti-rabbit Alexa Fluor 594 | Invitrogen | A11012 | |
| anti-rabbit STAR635P | Abberior | ST635P-1002 | |
| anti-Wg | DSHB | 4D4 | |
| Blu Tack | Bostik | 30811745 | דבק רגיש ללחץ |
| DMSO | VWR | SIAL472301 | |
| פינצטה Dumont 5 | דומונט | מס' 5 | |
| Dynasor2-24 | MCE | HY-13863 | |
| סרום עגל רב-עוברי (FBS) | Sigma-Aldrich | F7524 | |
| גליצין | ג'רבו | 10.231.000 | |
| מיקרוסקופ Leica Stellaris 8 STED Falcon | Leica Microsystems | לא רלוונטי | |
| לקק ציפורניים | מהות | לא רלוונטי | |
| סרום עיזים רגיל | שליחון תאי | 5425S | |
| מטרה: עדשה הלבנה HC PL APO 86x/1.20 W motCORR STED | Leica Microsystems | לא רלוונטי | |
| טבליות PBS | טכנולוגיות חיים | 18912014 | |
| Photo Flo | Kodak | לא רלוונטי | |
| פולי-L-ליזין | Sigma-Aldrich | P1524 | |
| תוכנית מזון למשכי חרקים של שנאידר (Schneider's insect medium) | סיגמא | S0146 | |
| Triton-X100 | Sigma-Aldrich | T9284 |
מקורות
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.