מחקר זה נועד לבחון את המנגנונים המולקולריים הפוטנציאליים העומדים בבסיס ההשפעות הנוגדות חמצון והנוגדות דלקת של amygdalin במודל של alopecia areata בעכברי C3H/HeJ ובמודל של פגיעה במלנוציטים אפדרמליים ראשוניים של בני אדם שגרמה H2O2.
מאמר מחקר
אמיגדלין מווסת את השיגנלינג של FOXO3a כדי לעכב עקה חמצונית ולשפר אלופציה אראטה בעכברים
* These authors contributed equally
במאמר זה
סיכום
תקציר
מאמר זה נועד לבחון את המנגנון של ההשפעה הטיפולית של אמיגדלין (AMG) על אלופציה אריאטה (AA). צביעת Hematoxylin-eosin שימשה לבדיקת הרעילות הכבדית והכלייתית של AMG. לאחר הקמת מודל AA בעכברי C3H/HeJ ובמלנוציטים אפידרמליים ראשוניים של בני אדם (HPEMs) שנפגעו על ידי H2O2, ובעקבות התערבות באמצעות AMG, נוטרו תכולת המינים הreactive של החמצן (ROS) ורמות החלבון והגן של forkhead box O3A (FOXO3a). ערכות ביוכימיות או בדיקת enzyme-linked immunosorbent assay שימשו לזיהוי התכנים של superoxide dismutase (SOD), catalase (CAT), glutathione peroxidase 4 (GPX-4), malondialdehyde (MDA), interleukin-15 (IL-15), interferon-gamma (IFN-γ), ו-interleukin-6 (IL-6). Western blot בוצע כדי להעריך את רמות ה-MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4, IFN-γ, IL-6, ו-IL-15. ChIP-PCR בוצע כדי להעריך את העשירה של AMG בפרומוטורים של SOD, CAT, ו-GPX-4 ב-FOXO3a. במקביל, נחקרו ROS, אפופטוזה, ורמות החלבון והגן של FOXO3a, SOD, CAT, ו-GPX-4 ב-HPEMs עם ביטוי נמוך של FOXO3a. ל-AMG אין רעילות פוטנציאלית לכבד או לכליות והוא יכול להפחית את ביטוי חלבוני MHC I ו-IL-15 בעור, כמו גם את רמת ה-IL-15 בסרום. AMG יכול להגביר את ביטוי החלבון והגן של FOXO3a בעור, כמו גם את רמות ה-SOD, CAT, ו-GPX-4, תוך הפחתת רמות ROS ו-MDA. AMG יכול לעכב את MHC I, IFN-γ, IL-6, ו-IL-15, MDA, אפופטוזה, וייצור ROS ב-HPEMs, ולהגביר את תכני ה-SOD, CAT, ו-GPX-4. חשוב לציין, כי AMG יכול להעלות את ביטוי הגנים והחלבונים של FOXO3a, SOD, CAT, ו-GPX-4, ולהעשיר את FOXO3a בפרומוטורים של SOD, CAT, ו-GPX-4. נתונים אלו מרמזים כי AMG יכול לקדם את ביטוי FOXO3a ולעכב עקה חמצונית ותגובות דלקתיות, ובכך לשפר את מצב ה-AA בעכברי C3H/HeJ.
מבוא
אלופציה אריאטה (AA) היא הפרעה אוטואימונית המאופיינת בנשירה פתאומית של שיער ללא השארת צלקות, ושכיחותה העולמית היא כ-2–3%, עם למעלה מ-30 מיליון חולים בסין1. נתונים אפידמיולוגיים מראים כי המחלה יכולה להשפיע על אנשים בכל קבוצות הגיל, אך היא שכיחה יותר בקרב מבוגרים צעירים, כאשר כ-60% מהחולים חווים את ההתפרצות הראשונה לפני גיל 20, ביחס כמעט שווה בין גברים לנשים1,2. ברמה עולמית, השכיחות השנתית של AA היא כ-0.2–0.3%, כאשר 40% מהמקרים הם AA באתר בודד, 35% AA באתרים מרובים, 5% קרחת מלאה ו-2% אלופציה אוניברסלית3,4,5. מבחינת סיבוכים, לכ-30% מהחולים יש שקעים בציפורניים, חריצים אורכיים ונזקים אחרים, ושיעור התחלואה הנלווית למחלות אוטואימוניות כגון הפרעות בבלוטת התריס וויטיליגו גבוה מהרמות הנצפות באוכלוסייה הכללית6,7. מהיבט מזיק, AA אינה משפיעה רק על המראה החיצוני אלא נוטה לגרום גם לבעיות פסיכולוגיות כגון דיכאון וחרדה, כאשר כ-70% מהחולים עם התפרצות ראשונית חוו אירועי סטרס משמעותיים בתוך 3 חודשים לפני תחילת המחלה8,9. ללא טיפול לאורך זמן, חולים עלולים להתקדם לקרחת מלאה או לאלופציה אוניברסלית, דבר המשפיע קשות על התפקוד החברתי ועל איכות חייהם10.
נכון להיום, הרפואה המערבית משתמשת בעיקר בשילוב של תרופות מקומיות, תרופות לבליעה, פיזיותרפיה והשתלת שיער לטיפול ב-AA11,12. טיפול מקומי כולל בעיקר תמיסת minoxidil וקורטיקוסטרואידים (כגון קרם fluticasone propionate), אשר ממריצים את זקיקי השיער ומעכבים תגובות חיסוניות מקומיות כדי לעודד צמיחת שיער, אך שימוש ממושך עלול להוביל לתגובות לוואי כגון אטרופיה של העור13,14. עבור חולים עם מחלה פרוגרסיבית, מדכאי חיסון דרך הפה (כגון prednisone ו-cyclosporine) יכולים לווסת ביעילות את התגובה החיסונית הסיסטמית, אך נדרש ניטור קבוע של תפקודי הכבד והכליות12,15. בפיזיותרפיה, קרינת ultraviolet בטווח צר ובאורך גל בינוני וטיפול בלייזר בעוצמה נמוכה משפרים את המיקרוסירקולציה כדי לסייע לצמיחת שיער, אך נדרשים טיפולים מרובים, וההשפעה משתנה מאדם לאדם16,17. במקרים עקשניים, ניתוח להשתלת שיער יכול להשתיל זקיקי שיער בריאים לאזור הקירחה, אך קיים סיכון לכישלון ההשתלה, ונדרש תחזוקה תרופתית18. יתרונות הטיפול ברפואה מערבית טמונים בתחילת השפעה מהירה ובסטנדרטיזציה גבוהה, במיוחד עבור AA מוקדם ומקומית19. עם זאת, חסרונותיו כוללים נטייה להישנות (rebound) בשימוש בתרופות הורמונליות, תופעות לוואי משמעותיות של מדכאי חיסון, ויעילות מוגבלת עבור חולים עם קירחה מלאה/אלופציה אוניברסלית20,21. בנוסף, מחזור הטיפול ארוך (בדרך כלל 3–6 חודשים), והעלות גבוהה (למשל, עלות שנתית של מעכבי JAK וסוכנים ביולוגיים, העולה על 100,000 yuan), דבר המגביל את יישומם הנרחב19,22. בשל הסיבות הרבות שהוזכרו לעיל, המחברים חשים צורך דחוף לחקור תרופות מטרות חדשות.
עקה חמצונית תורמת באופן משמעותי למנגנון הפתוגני של AA. במהלך תהליך סינתזת הפיגמנט במלנוציטים, מיוצרת כמות גדולה של מימן פראוקסיד (H2O2)23,24. בנסיבות רגילות, ניתן לנקות זאת באמצעות אנזימים נוגדי חמצון (כגון superoxide dismutase (SOD) ו-catalase (CAT))25. עם זאת, בקרב אנשים עם AA, פעילות האנזימים נוגדי החמצון היא לרוב נמוכה יותר, מה שמוביל להצטברות של תוצרי חמצון וגורם לנזק ל-DNA ולאפופטוזיס של תאים26,27. מצב של עקה חמצונית זו יפעיל עוד יותר את התגובה הדלקתית, וישחרר מתווכי פרו-דלקתיים (כגון TNF-α ו-IFN-γ), מה שיצור מעגל קסמים של עקה חמצונית ודלקת28. התגובה הדלקתית תוקפת את זקיקי השיער באמצעות לימפוציטים T, מה שגורם לזקיקי השיער להיכנס לשלב מנוחה ולנשור29. ניסויים קליניים מצאו כי למטופלים עם AA יש לעיתים קרובות מחלות אוטואימוניות אחרות (כגון מחלות בלוטת התריס)30, מה שמרמז כי הפרה חיסונית סיסטמית משמשת כגורם מעורר קריטי. בנוסף, עקה חמצונית ודלקת מקדמות יחד אפופטוזיס של תאי זקיק השערה, והשיבוש באותות האפופטוטיים יפגע עוד יותר ביכולת ההתחדשות של זקיק השערה, וימנע מהשיער לצמוח מחדש31. לכן, הטיפול ב-AA צריך לקחת בחשבון פעילות נוגדת חמצון, נוגדת דלקת וויסות של מסלולי אפופטוזיס כדי לשבור את מעגל הקסמים הזה.
אמיגדלין (AMG) הוא תרכובת גליקוזיד ציאנוגנית המופיעה באופן טבעי, ונמצאת בעיקר בזרעי צמחים השייכים למשפחת ה-Rosaceae (כגון גרעיני משמש, שקד, אפרסק ונשפר)32,33,34. מחקרים קודמים הראו כי AMG יכול לשפר פסוריאזיס על ידי הגברת תפקוד מחסום העור35. במקביל, ההשפעות האנטי-אפופטוטיות והאנטי-חמצוניות של AMG מאפשרות את השימוש בו לטיפול ב-AA36,37. ראיות קודמות אישרו גם כי AMG יכול לעכב את התגובה הדלקתית כדי להקל על תסמיני AA בעכברי C3H/HeJ38. עם זאת, המנגנון המולקולרי שבאמצעותו AMG מעכב דלקת ומקל על עקה חמצונית כדי לצמצם את ה-AA לא דווח באופן מקיף. מחקר זה הדגים בעיקר אירועי עקה חמצונית המתווכים על ידי שביל הסיגנלינג של forkhead box O3A (FOXO3a) כתוצאה מהתערבות של AMG בטיפול במודל AA של עכברי C3H/HeJ ובמודל פגיעה של מלאנוציטים אפידרמליים ראשוניים של בני אדם (HPEMs) המושרה על ידי H2O2.
פרוטוקול
אישור אתי והסכמה להשתתפות
הפרוטוקולים הניסויים הכוללים בעלי חיים אושרו על ידי ועדת האתיקה של Scientist Biotechnology Co., Ltd. (מספר אישור אתי: SYST-2024-014), בהתאם להנחיות ARRIVE 2.0 ומדריך ה-NIH לטיפול בבעלי חיים במעבדה. כמו כן, ועדת האתיקה של בית החולים המהי של מחוז סיצ'ואן (Sichuan Provincial People’s Hospital) העניקה אישור לשימוש אתי בדגימות קליניות מאנשים עבור in vitro ניסויים (מספר אישור אתי: 2024103). הושגה הסכמה מדעת מכל תורמי הרקמות. כל הפרטים המסחריים של הרכיבים והציוד ששימשו במחקר זה מופיעים ב- טבלת חומרים.
הקמת מודל AA בעכברי C3H/HeJ ומתן AMG
בהתבסס על הספרות הקודמת, הוקם מודל AA בעכברי C3H/HeJ והם טופלו ב-AMG38,39. בקצרה, שלושים עכברות C3H/HeJ (בגיל 6–8 שבועות) עברו תקופת אקלימציה של שבוע לפני שחולקו באופן אקראי לחמש קבוצות נפרדות: Control, AA, AMG-L, AMG-M ו-AMG-H. למעט קבוצת הביקורת, מודל ה-AA בארבע הקבוצות הנותרות הוקם על ידי מריחת 0.05 g של קרם imiquimod על עור הגב של העכברים. מריחה זו בוצעה שלוש פעמים בשבוע, ובסך הכל ניתנו תשעה מנתקים. שטח העור שנמרח היה 1.5 cm × 1.5 cm. עכברים הן בקבוצת הביקורת והן בקבוצת ה-AA קיבלו 0.02 mL/g של תמיסת סלין נורמלית על ידי gavage מדי יום. עכברים בקבוצות ה-AMG קיבלו זריקות תוך-קיבתיות במינונים של 60, 90 ו-120 mg/kg מדי יום. תקופת המתן נמשכה 21 ימים. לצורך תצפית כללית והערכה של מודל ה-AA, נדרשת פריקרה (alopecia) מעגלית מוגדרת היטב בקוטר ≥ 1 cm, ללא צלקות או דלקת חמורה, ועם מוטות שיער שבורים. עכברים המראים דלידול שיער דיפוזי בכל הגוף, כיבובים חמורים בעור או צמיחה מהירה וספונטנית של שיער מוחרגים מהניסוי.
HPEMs
בהתאם לשיטה הקודמת40, נבחרו רקמות עור בריאות ממטופלים שעברו ברית מילה בבית החולים והושרגו באלכוהול 75% למשך 5 min. לאחר מכן, רקמות העור נשטפו שוב ושוב ב-PBS המכיל ampicillin (100 U/mL) ו-streptomycin sulfate (100mg/mL), והודגרו בתמיסת dispase II בטמפרטורה של 4°C למשך לילה לצורך עיכול. שכבות האפידרמיס שהופרדו ובודדו נקיצו וסוננו דרך ממבנה סטרילי כדי להפיק את תרחף התאים. לאחר צנטריפוגציה, נאספו תאי השכבה התחתונה ששקעו, ולאחר מכן הושעו מחדש במצע melanocyte 254 ללא סרום ונזרעו שוב בצפיפות של כ-5 × 10⁵ בבקבוקי תרבית ותובעתו באינקובטור CO2. לאחר שלושה מעברים, נעשה שימוש במלנוציטים טהורים עבור הניסויים הבאים.
הקמה של H2O2מודל פגיעה ממתח חמצוני במלנוציטים אנושיים המושרה על ידי [Source missing/blank] והתערבות באמצעות AMG
מלנוציטים אנושיים עם דרגת התמזגות של 60% עד 80% חולקו לקבוצת ביקורת ולקבוצות עם ריכוזים שונים של H2O2 (200, 400, 600, 800, ו- 1000 µM). לאחר דגירה של 24 שעות, חיוניות התאים הייתה הוערך בשיטת CCK-8. לאחר מכן, הריכוז האופטימלי של H2O2 הושתמש להקמת מודל של עקה חמצונית במלנוציטים, וריכוזים שונים של AMG (0.1, 0.25, 0.5, 1, 2.5, 5 ו-10 מ"ג/מ"ל) נוספו לתרבית למשך 24 שעות. לאחר מכן נבחר מדד חיוניות התאים כדי להעריך ולסנן את ריכוז ה-AMG.
בדיקת H&E
רקמות כבד וכליות של עכברים קובעו ב-4% פאראפורמאלדהיד למשך 24 שעות ונטמנו בפאראפין, לאחר מכן בוצע תהליך דהידרציה (הסרת מים) בשלבים הבאים: 70% אתנול למשך 4 שעות, 80% אתנול למשך שעתיים, 90% אתנול למשך שעתיים, 95% אתנול למשך שעתיים, אתנול אניהידרי פעמיים, שעה בכל פעם; וקסילן פעמיים, 30 דקות בכל פעם.38,39,41לאחר מכן, 4-µm חתכים בפרפין עברו צביעת H&E&צביעת E, הותיבשו, עברו בירירות (clearing) ועוגנו עם דבק ניטרלי (neutral gum). סורק 3D HISTECH שימש לדיגיטציה של חתכי הרקמה, ותמונות בהגדלה של 20× ו-40× תמונות תועדו בהגדלות שונות.
בדיקה אימונו-סורבנטית תלוית אנזים (ELISA) וזיהוי ביוכימי
רקמות עור הומוגניזו בתמיסת בופר ביחס של 1:9 (משקל/נפח), ולאחר מכן הופרדו בצנטריפוגה ב-1006–1789 × g למשך 10 דקות. לאחר כימות חלבונים בסרום, בתמריות מרקמות עור ובסופרנאט של תאים באמצעות BCA, נמדדו רמות של MDA, IL-6, IL-15 ו-IFN-γ באמצעות ערכות ELISA המתאימות. פעילויות האנזים של SOD, CAT ו-GPX-4 זוהו בהתאם להוראות של הערכות הביוכימיות הרלוונטיות.
ציטומטריה זורמת לגילוי מיני חמצן רהאקטיביים (ROS)
השתמשו במצע גידול נטול סרום לצורך דילול 10µM DCFH-DA ביחס של 1:1000. לאחר מכן, רקמות עור של עכבר או מלנוציטים אנושיים הוכנו כתלי תאים בריכוז של 1–20×106 תאים/מ"ל באמצעות 10µM DCFH-DA. התאים דגרו ב- 37°C במשך 20 דקות. במהלך תקופה זו, התאים נוערו ועורבבו מדי 3–5 דקות. לאחר שלושה שטיפות במצע נטול סרום, נמדדו רמות ה-ROS התוך-תאיים באמצעות ציטומטריית זרימה, כאשר אורכי גל העירור והפליטה נקבעו ל-488nm ו-525nm, בהתאמה.42,43.
מדידת אימונופלורסצנציה
דגרו נוגדן ראשוני FOXO3a (בדילול 1:1000) עם 4-µm חתכים של רקמת עור או HPEMs מקובעים למשך לילה ב- 4°Cלאחר מכן, הדגימות טופלו בנוגדנים משניים המסומנים בפלואורופורים מסוג Alexa Fluor וצבעו נגדי בתמיסת DAPI. לבסוף, הפרוסות נבחנו ותועדו באמצעות מיקרוסקופיה פלואורסצנטית. לצורך דימות פלואורסצנטי של ROS, נעשה שימוש ב-4-µm נתחים קפואים של רקמת עור או שקופיות HPEMs הוחממו מחדש בטמפרטורת החדר והובשו. סביב הרקמה סומן עיגול באמצעות עט היסטוכימי. השקופיות טופלו בחומר למניעת פלואורסצנציה עצמית (autofluorescence quencher) למשך 5 דקות ולאחר מכן נשטפו תחת מים זורמים למשך 10 דקות. תמיסת צביעה ל-ROS הוטפלה ודגרה בחושך ב- 37°C במשך 30 דקות. החתכים עברו שלושה שלבי שטיפה של 5 דקות ב-PBS באמצעות שייקר להסרת צבע. לאחר מכן, טפטפו תמיסת צביעה ב-DAPI והדגישו אותה במשך 10 דקות בתנאי חשיכה ובטמפרטורת החדר. הזכוכיות נחתמו באמצעות תווך למניעת פלואורסצנציה (quencher). לאחר מכן נבחנו הדגימות, ותמונות נאספו באמצעות מיקרוסקופ פלואורסצנציה. פרופילי העירור/פליטה הם 330–380/420 ננומטר עבור DAPI ו-510–560/590 ננומטר עבור Cy3.
וסטן בלוט (Western blot)
עבור רקמת עור של עכבר או מלנוציטים אנושיים, 50 מ"ג של רקמת העור או 2 × 10⁵ תאים ו-1 מ"ל של תמיסת ליזיס RIPA, מועשרת במעכבי פרוטאז, הועברו לפרוטוקול בתוך מבחנת מיקרו-צנטריפוגה בנפח 1.5 מ"ל. לאחר 30 דקות במי קרח, בוצעה צנטריפוגציה למשך 5 דקות ב-12,000 g כדי לאסוף את פראקציית העילוי. לאחר שנקבע ריכוז החלבון בשיטת BCA, תמיסת החלבון ו-5× ערבבו תמיסת טעינה SDS ביחס נפחי של 4:1, ולאחר מכן הרתיחו במכחול מתכתי ב- 95 °C במשך 5 דקות. לאחר שהמדגם הועבר לאלקטרופורזה ב-SDS-PAGE בריכוז של 10% במתח של 80V או 120V, הועברו החלבונים בהעברה חשמלית (electrotransfer) לממברנה של 0.22-µm ממברנת PVDF בזרם קבוע של 200 mA למשך שעה אחת44,45לאחר מכן, חסמו את הממברנות בטמפרטורת החדר במנער צנטריפוגלי למשך שעה אחת באמצעות 5% חלב דל שומן (שהוכן עם בופר TBST). לאחר מכן, חשפו את הממברנות לנוגדנים ראשוניים ספציפיים ל- complex התאימות רקעיתית גדולה מחלקה I (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β-אקטין (1:1000), SOD (1:1000), CAT (1:1000), גלוטתיון פרוקסידאז 4 (GPX-4) (1:1000), ו-FOXO3a (1:1000) ב- 4 °C במהלך הלילה. ולאחר מכן, הדמיונות נחשפו לנוגדן משני (1:10,000) למשך שעה אחת בטמפרטורת החדר. נעשה שימוש בריאגנט כימילומנסנטי ECL לפיתוח וללכידת תמונות באמצעות ChemiScope 6100.
תגובת שרשרת פולימראז עם שעתוק הפוך כמותי (qRT-PCR)
ראשית, ה-RNA מהדגימה של רקמת עור של עכבר או ממלנוציטים אנושיים הופק בהתאם להוראות היצרן של ערכת מיצוי ה-RNA הכולל (total RNA). בהתאם להוראות ההפעלה של ערכת השעתוק ההפוך, פרמטרי מכשיר ה-PCR נקבעו כדלקמן: 25°C במשך 10 דקות, 42°C במשך 15 דקות, ו- 85°C במשך 5 דקות כדי לקבל דגימות cDNA. באופן דומה, הפרמטרים להגדרת מכשיר ה-PCR היו כדלקמן כדי להשיג מספר עותקים מספיק של DNA: דנטורציה ראשונית: 95°C למשך 5 דקות, מחזור אחד; דנטורציה: 95°C למשך 10 שניות, 40 מחזורים; אפשרה (Annealing) והארכה: 60°C למשך 30 שניות, 40 מחזורים. הביטוי הנורמל של הגן המבוקש מחושב באמצעות הנוסחה הבאה: 2‑ΔΔCq (ΔΔCq = Cqמטרה‑Cqβאקטין-)46,47המידע על רצפי הפריימרים של הגנים עבור qRT-PCR מוצג ב- טבלה 1.
ניתוח ChIP-PCR
ניתוח ChIP-PCR בוצע בהתאם לפרוטוקול הקודם48. ראשית, התאים עברו קישור צולב (cross-linking) עם 1% formaldehyde למשך 10 דקות, ותמיסת glycine הוספה כדי להפסיק את תגובת הקישור הצולב. לאחר שטיפה עם PBS מקורר מראש המכיל PMSF, התאים עברו ליסיס באמצעות SDS lysis buffer המכיל PMSF. לאחר מכן, ה-chromatin DNA שובש למקטעים שגודלם נע בעיקר בין 200 ל-1,000 bp באמצעות ultrasonic cell disruptor, וגודל המקטעים אומת על ידי אלקטרופורזה בג'ל agarose. דגימות הכרומטין המשובש הושעו שוב ב-ChIP dilution buffer המכיל PMSF, ו-20µL מהדגימה נלקחו כקבוצת בקרת input. שאר הדגימות טופלו מראש עם Protein A+G Agarose/Salmon Sperm DNA. לאחר מכן, הוסף 0.5µg של נוגדן ראשוני, ואחריו דגירה למשך לילה ב-4°C עם ניעור איטי. קבוצת הבקרה השלילית טופלה בכמות שווה של rabbit IgG. למחרת, הוספו חרוזי Protein A+G agarose כדי ללכוד את קומפלקסי האנטיגן-נוגדן, והקומפלקסים נשטפו ברצף עם low salt immune complex wash buffer, high salt immune complex wash buffer, LiCl immune complex wash buffer ו-TE buffer. הקומפלקסים שהושגו באמצעות אימונו-שיקוע (immunoprecipitated) הולוכו (eluted) באמצעות elution buffer, והן תוצרי ההלוכה והן הדגימות בקבוצת בקרת ה-input עברו טיפול בחום ב-65°C למשך 4 שעות כדי לשבור את הקשרים הצולבים. לאחר עיכול חלבונים באמצעות proteinase K, ה-DNA בודד באמצעות חילוץ phenol-chloroform ולאחריו השקיעה באתנול. ה-DNA המטוהר הומס ב-TE buffer ושימש לניתוח qRT-PCR בהמשך. מידע על רצפי הגנים עבור ChIP-PCR מוצג ב-Table 2.
האתרים הגנומיים המועמדים עבור ChIP-PCR נבחרים באמצעות חיזוי in silico באמצעות מאגר הנתונים JASPAR (https://jaspar.elixir.no/). באופן ספציפי, החוקרים שלפו את רצפי הפרומוטור המשתרעים על פני 2000 bp במעלה ה-TSS של הגנים CAT, SOD ו-GPX4. רצפים אלה נסרקו לאיתור מוטיבים של קישור FOXO3a באמצעות מטריצת משקלי מיקום (PWM) המתאימה. כדי לאזן בין הרגישות לספציפיות, קבעו המחברים סף של ציון פרופיל יחסי של >80%. מבין כל המוטיבים החזויים שעמדו בקריטריון זה, בחרו המחברים את שני האתרים המשוערים בעלי הציונים הגבוהים ביותר עבור כל גן כאזורים מועמדים לאימות באמצעות ChIP-PCR. לדוגמה, בגן CAT, האתרים שנבחרו ממוקמים ב-733- bp ו-1259- bp ביחס ל-TSS. הנוגדן anti-FOXO3a ששימש במחקר זה הוא נוגדן בדרגת ChIP הזמין מסחרית. כדי להבטיח ספציפיות, החלו המחברים שני ביקורות שליליות עצמאיות עבור כל בדיקת ChIP-PCR: נוגדן isotype IgG ולוכס גנומי שלילי. ביקרת ה-isotype IgG בוצעה כהסמכה חיסונית מקבילה באמצעות IgG לא-חיסוני מאותו מין. עבור הלוקס הגנומי השלילי, תכננו המחברים זוג פריימרים ספציפי המכוון לאזור שאינו קושר, שחסר בו כל מוטיב קונסנזוס חזוי של FOXO3a. אזור ביקורת זה אפשר למחברים לשלול העשרה הנובעת מגזירה מקרית של כרומטין או הגברה לא ספציפית של PCR. פי ההעשרה חושבו באמצעות אסטרטגיית נורמליזציה בת שלושה שלבים.
שלב 1: הזנת ΔCt מנורמל, ΔCt [IP מנורמל] = Ct[IP]-(Ct[Input]-log₂(DF)) (1)
ΔCt [IgG מנורמל] = Ct[IgG] - (Ct[Input] - log₂(DF)). (2)
DF = מקדם דילול הקלט (Input Dilution Factor); בניסוי, DF = 10, כיוון שנעשה שימוש ב-10% קלט.
שלב 2: ΔΔCt בין IP ל-IgG:
ΔΔCt [IP/IgG] =ΔCt [normalized IP]-ΔCt [normalized IgG] (3)
שלב 3: פי כמה העשרה (Fold enrichment) = 2(-ΔΔCt [IP/IgG]). (4)
ניתוח סטטיסטי
הנתונים מוצגים כממוצע ± סטיית תקן בהתבסס על לפחות שלושה ניסויים עצמאיים. ניתוחים סטטיסטיים בוצעו באמצעות תוכנת GraphPad Prism (גרסה 6.0). השוואה של נתונים בין קבוצות מרובות בעלות התפלגות נורמלית והומוגניות של השונות הוערכה באמצעות ניתוח שונות חד-כיווני (ANOVA), ולאחריו מבחן post-test של Tukey. מובהקות סטטיסטית נקבעה עבור p < 0.05.
תוצאות
ל-AMG אין רעילות כבדית-כלייתית בעכברי C3H/HeJ תקינים
כדי לזהות בבירור את הרעילות הפוטנציאלית של AMG לכבד ולכליות מנקודת מבט ניסויית, חוקרים ניהלו שלושה מינונים (60, 90 ו-120 mg/kg) שנחקרו בעבר בעכברי C3H/HeJ תקינים באמצעות הזנה בבלון קיבתי (gavage) 38. כפי שמוצג ב-איור 1, לאחר מתן תוך-קיבתי של AMG בשלושה מינונים למשך 21 ימים, מבנה האונה הכבדית היה ברור, כאשר ההפטוציטים היו מסודרים באופן מאורגן. הרקמות הקורטיקליות והמדולריות של הכליה היו תקינות, ולא נצפו נזקים או נגעים בגלומרולים או בצינורות הכליה. במהלך תקופת מתן ה-AMG, אף אחד מהעכברים לא הפגין ביטויים התנהגותיים חריגים. למעשה, במאמר זה לא נבדקו נתונים ביוכימיים של רעילות/משקל גוף, דבר שעשוי להשפיע על הסבירות לכך ש-AMG אינו גורם לרעילות בכבד ובכליות. עם זאת, בהתבסס על תוצאות הבדיקה ההיסטופתולוגית של הכבד והכליות, נתונים אלו מרמזים בחלקם כי טיפול ב-AMG עבור AA במינונים שנקבעו על ידי המחברים הוא סביר.
AMG מעכב את ההיווצרות וההתפתחות של AA וכן את ייצור ה-ROS
ראשית, הם מדדו את מדדי ה-MHC I וה-IL-15 שהם קשור באופן מהותי להופעה ולהתקדמות של AA. כפי שמוצג ב- איור 2A–Cתחת תנאים פתולוגיים של סימולציית AA, כמות חלבוני MHC I ו-IL-15 ברקמות העור של עכברי C3H/HeJ עלתה באופן משמעותי (p < 0.001). לעומת זאת, הטיפולים ב-AMG-M וב-AMG-H הובילו להדרה משמעותית (downregulation) של רמות הביטוי של שני חלבונים אלה (p < 0.01 או p < 0.001). באופן דומה, שלושת המינונים של הטיפול ב-AMG דיכאו באופן משמעותי את רמת ה-IL-15 בסרום (p < 0.001, איור 2D). יתרה מכך, תוצאות האימונופלואורסצנציה הצביעו על כמות גדולה של ROS בעור העכברים מקבוצת ה-AA, בעוד שההתערבות באמצעות AMG הפחיתה באופן משמעותי את הביטוי של ROS בהשוואה לקבוצת ה-AA (p < 0.001, איור 2E ו-F). באופן עקבי, תוצאות ציטומטריית הזרימה הראו כי רמות ה-ROS ברקמות העור של קבוצת ה-AA היו גבוהות באופן משמעותי בהשוואה ל- קבוצת הביקורת. עם זאת, בהשוואה לקבוצת ה-AA, ההתערבות ב-AMG הפכה את העלייה ב-ROS (p < 0.001, איור 2G ו- H).
AMG עורר את ביטוי החלבון והגן של FOXO3a
כדי לבחון את השפעת ה-AMG על FOXO3a, בדקו המחברים את רמות הביטוי שלו הן ברמה החלבונית והן ברמה הגנטית. תוצאות האימונופלואורסצנציה הדגימו כי בקבוצת ה-AA נרשמה ירידה ניכרת בביטוי חלבון FOXO3a, בעוד ש-AMG הגביר את רמת חלבון FOXO3a ברקמת העור של עכברי C3H/HeJ (p < 0.001, איור 3A ו- B). נתונים נוספים מ-qRT-PCR מצביעים על כך ש-AMG העלה באופן משמעותי את ביטוי הגן FOXO3a (p < 0.001; איור 3C). באופן דומה, ניסוי Western blot העיד כי AMG עלה באופן משמעותי ביטוי החלבון של FOXO3a (p < 0.05 או p < 0.001, איור 3D ו- ה).
AMG עיכבה אירועי עקה חמצונית ברקמות העור של עכברי AA
ההתקדמות הפתולוגית של AA המגורה על ידי עקה חמצונית מובילה להחמרתה. תוצאות הבדיקות הביוכימיות ב-איור 4 מראות כי בהשוואה לקבוצת הביקורת, מדדי נוגדי החמצון SOD, CAT ו-GPX-4 ברקמות העור של עכברים מקבוצת ה-AA עוכבו באופן משמעותי (p < 0.001, איור 4A ו-B), בעוד שמדד הפרו-חמצון MDA עלה באופן ניכר (p < 0.001, איור 4C). כפי שצופה, החוקרים מצאו כי לאחר טיפול ב-AMG, מדדי נוגדי החמצון עלו באופן משמעותי, בעוד שמדדי הפרו-חמצון ירדו באופן משמעותי (p < 0.001; איור 4A–C). באופן דומה, נתוני ה-Western blot העלו גם הם כי התערבות באמצעות AMG הגבירה באופן משמעותי את רמות ביטוי החלבון של מדדי נוגדי החמצון SOD, CAT ו-GPX-4 (p < 0.001; איורים 4D ו-4E).
AMG הפחית את תהליכי האפופטוזיס והדלקת של HPEMs שגורו על ידי H2O2
התוצאות המוצגות ב-איור 5A מעידות כי ריכוזים עולים של H2O2 (200–1000 µM) פגעו באופן הדרגתי בחיוניות של HPEMs (p < 0.001). מביניהם, 600 µM H2O2 היה הריכוז המתאים ביותר להפחתת חיוניות התאים של HPEMs (p < 0.001). יתרה מכך, המחברים מצאו כי בתנאי של גרייה של תאי HPEM על ידי 600 µM H2O2, ריכוז של 0.1–10 mg/mL של AMG יכול להעלות באופן משמעותי את חיוניות התאים (p < 0.05 או p < 0.001, איור 5B). בהתאמה לתוצאות הניסויים בבעלי חיים, המחברים מצאו גם כי AMG עיכב באופן משמעותי אפופטוזיס ב-HPEMs שגורו על ידי H2O2, כפי שמעידה ציטומטריה עם זרימה לזיהוי אפופטוזיס ב-איור 5C ו-D (p < 0.001). עבור מדד ה-MHC I, ניתוח Western blot הדגים עוד כי AMG דיכא באופן ניכר את ביטוי החלבון ב-HPEMs שהיו נתונים לפגיעה שגורתה על ידי H2O2 (p < 0.05 או p < 0.01; איורים 5E ו-5F). לזיהוי גורמי דלקת, תוצאות ELISA העידו כי AMG הפחית באופן משמעותי את שפע הציטוקינים הפרו-דלקתיים, כולל IFN-γ, IL-6 ו-IL-15, ב-HPEMs שגורו על ידי H2O2 (p < 0.001; איור 5G). בנוסף, העיכוב של שלושת החלבונים הפרו-דלקתיים הללו על ידי AMG תוקף עוד באמצעות ניתוח Western blot, כפי שמוצג ב-איור 5H ו-I (p < 0.01 או p < 0.001).
AMG הפחית את רמות ה-ROS של HPEMs שהשראו על ידי H2O2
בהשוואה לתאי HPEM שלא טופלו ב-H2O2 וב-AMG, גרייה באמצעות 600 µM H2O2 קידמה באופן משמעותי את ייצור ה-ROS, כפי שמעידות תוצאות ניסויי האימונופלואורסצנציה (p < 0.001, איור 6A ו-B) וניסויי ציטומטריית הזרימה (p < 0.001, איור 6C ו-D), בהתאמה. באופן מעניין, AMG הפחית באופן משמעותי את כמות ה-ROS (p < 0.001, איור 6).
AMG הגביל את אירוע העקה החמצונית של HPEMs שהושרה על ידי H2O2
בדומה לכך, המחברים העריכו כיצד AMG משפיע על עקה חמצונית בתאי HPEMs שהושרה על ידי H2O2בהשוואה לקבוצת הביקורת, H2O2 הגירוי הוביל לירידה בתפקודיהם של SOD, CAT ו-GPX-4 (p < 0.001, איור 7A ו- B), בעוד שהעלה באופן משמעותי את רמות ה-MDA (p < 0.001, איור 7C). באופן מפתיע, התערבות ה-AMG הגבירה באופן משמעותי את הפעילויות של SOD, CAT ו-GPX-4 (p < 0.001, איור 7A ו- B), תוך הפחתת רמת ה-MDA (p < 0.001, איור 7C). תוצאות נוספות של Western blot איששו כי ההתערבות ב-AMG הגבירה באופן משמעותי את ביטוי החלבון של SOD, CAT ו-GPX-4 (p < 0.05 או p < 0.01, איור 7D ו- ה).
AMG העלה את רמת FOXO3a ואת SOD, CAT ו-GPX-4 המווסתים על ידי FOXO3a ב-HPEMs שהושרים על ידי H2O2
בהשוואה לקבוצת הביקורת, גרייה של H2O2 הובילה להפחתה ניכרת בביטוי הגן FOXO3a (p < 0.001, Figure 8A), בעוד שהתערבות של AMG הנמיכה משמעותית השפעה זו (p < 0.05, Figure 8A). ניתוחי Western blot נוספים (p < 0.05, Figure 8B ו- C) ואימונופלורסנציה (p < 0.05, Figure 8D ו- E) אישרו גם הם כי יישום של AMG העלה באופן משמעותי את ביטוי החלבון של FOXO3a. ניסוי ChIP-PCR אישש כי AMG יכול להגביר את רמות הביטוי של SOD (p < 0.001), CAT (p < 0.01) ו-GPX-4 (p < 0.01), כפי שמוצג ב-Figure 8F–I, וכן את רמת ההעשרה של FOXO3a בפרומוטרים של SOD (p < 0.001), CAT (p < 0.001) ו-GPX-4 (p < 0.001) (Figure 8J–L).
AMG דיכאה תופעות של עקה חמצונית ואפופטוזיס המהוונות על ידי FOXO3a ב-HPEMs שגורו באמצעות H2O2
בתחילה, החוקרים הקימו שורת HPEM עם ביטוי נמוך של FOXO3a, שאופיינה בירידה משמעותית ברמות ביטוי החלבון (p < 0.001, Figure 9A and B) והגן (p < 0.001, Figure 9C>) של FOXO3a. תוצאות ציטומטריית הזרימה הצביעו עוד על כך שבהשוואה לקבוצת ה-H2O2, AMG הפחית באופן ניכר את רמות ה-ROS ואת האפופטוזיס התאי ב-HPEMs עם ביטוי FOXO3a נמוך (p < 0.001, Figure 9D–G). במקביל, AMG העלה באופן משמעותי את ביטוי החלבון והגן של FOXO3a (p < 0.01, Figure 9H–J) ואת רמות הביטוי של חלבוני SOD, CAT ו-GPX-4 המהוונות על ידי FOXO3a (p < 0.05, p < 0.01, או p < 0.001, Figure 9H, K–O) והגנים שלהם ב-HPEMs עם ביטוי FOXO3a נמוך.
זמינות נתונים:
כל נתוני הגלם זמינים במאגר הנתונים הציבורי בכתובת ה-URL הבאה https://doi.org/10.5281/zenodo.22090466.
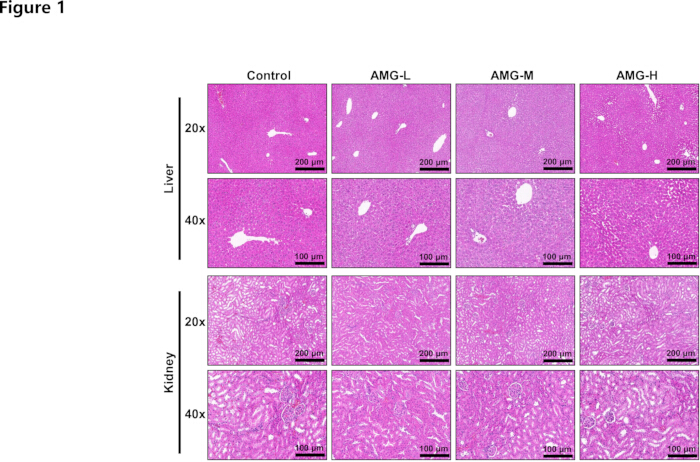
איור 1: צביעת HE. צביעת HE שימשה להערכת הרעילות התלויה במינון של AMG (במינונים של 60, 90 ו-120 mg/kg) בכבד ובכליות של עכברי C3H/HeJ תקינים. לא נצפה נזק פתולוגי ספציפי לכבד ולכליות תחת הגדלה של 20× (200 µm) ו-40× (100 µm). n = 6. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
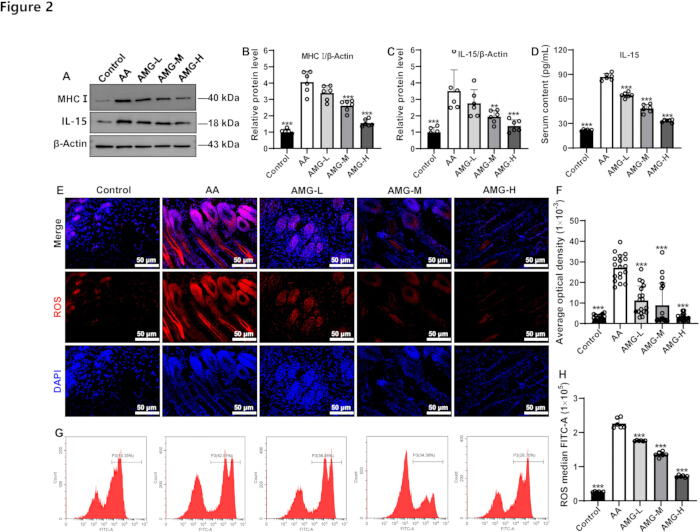
איור 2השפעות של AMG על MHC I, IL-15 ו-ROS בדגימות עור של עכברי AA. (א–ג), AMG הפחית את רמות הביטוי החלבוני של MHC I ו-IL-15, כפי שהוערך באמצעות Western blot. (ד'), AMG הופחת רמות IL-15 בסרום של העכברים.ה ו- F), AMG הפחית את רמות ה-ROS בדגימות עור של עכברים, כפי שזוהה על ידי בדיקת IF. (ג' ו- H), AMG הפחית את רמות ה-ROS בדגימות עור של עכברים, כפי שנקבע באמצעות ציטומטריית זרימה. תוצאות הניסוי מוצגות כערך ממוצע ± סטיית תקן (SD). **p < 0.01 ו- ***p < 0.001 לעומת קבוצת ה-AA; n = 6. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
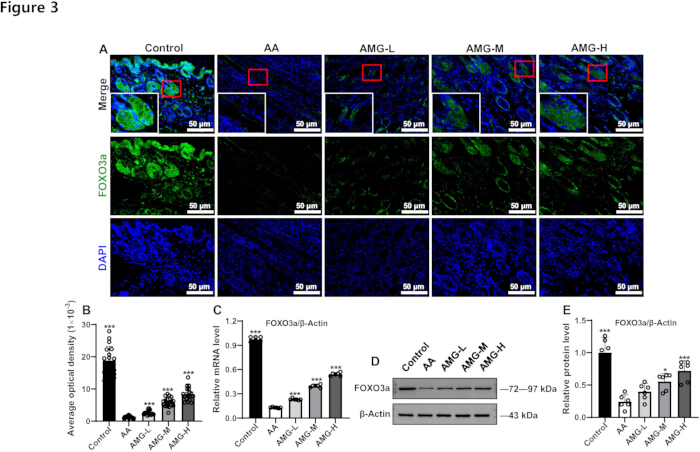
איור 3: השפעות של AMG על רמות החלבון והגן של FOXO3a בדגימות עור של עכברי AA. (A) AMG העלה את רמות החלבון FOXO3a, כפי שנמדד בבדיקת IF. (B) התוצאות הכמותיות של ה-IF. (C) AMG העלה את ביטוי הגן FOXO3a. (D) AMG העלה את ביטוי החלבון FOXO3a, כפי שזוהה ב-Western blot. (E) התוצאות הכמותיות של ה-Western blot. תוצאות ניסיוניות מוצגות כ-mean ± SD. *p < 0.05 ו-***p < 0.001 בהשוואה לקבוצת ה-AA; n = 6. נא ללחוץ כאן כדי לצפות בגרסה מורחבת של איור זה.
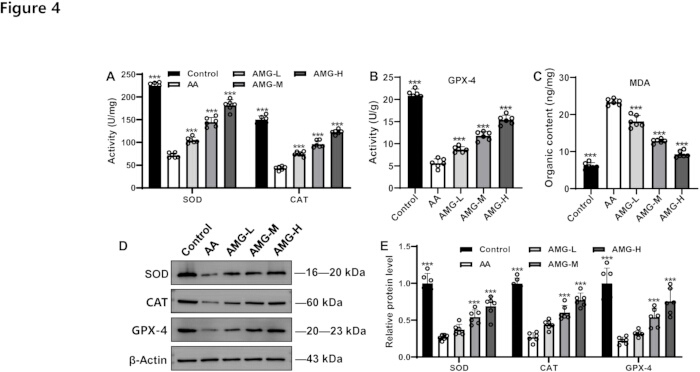
איור 4: השפעות של AMG על מדדי עקה חמצונית בדגימות עור של עכברי AA. (A) AMG הגביר את רמות ה-SOD וה-CAT, כפי שהוערכו באמצעות ערכה לבדיקה ביוכימית. ב-(B) וב-(C), AMG העלה את רמות ה-GPX-4 והפחית את רמות ה-MDA. (D) פסי חלבון מייצגים של SOD, CAT ו-GPX-4. (E) תוצאות כמותיות של ביטוי חלבון עבור SOD, CAT ו-GPX-4. תוצאות ניסיוניות מוצגות כערך ממוצע ± SD. ***p < 0.001 בהשוואה לקבוצת ה-AA; n = 6. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
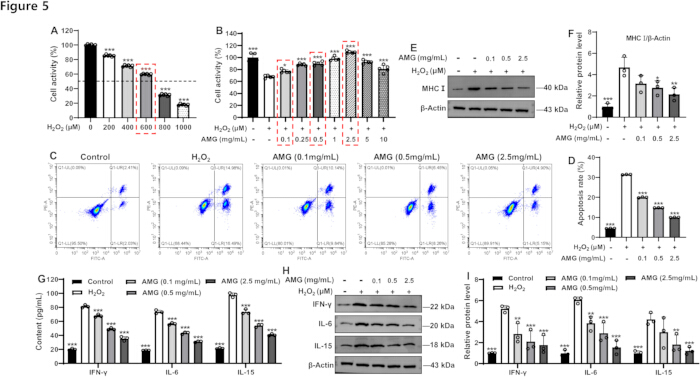
איור 5השפעות של AMG על מדדי אפופטוזיס ודלקת של HPEMs שהושרכו על ידי H2O2. (Aהשלכות של ריכוזים משתנים של H2O2 על חיוניות של HPEMs (n = 6). (Bהשפעות של ריכוזים משתנים של AMG על יכולת השרידות של HPEMs שהשראו על ידי H2O2 גירויים (n = 6). (כּנעשה שימוש בניתוח ציטומטריה זרימתית כדי להעריך אפופטוזיס בתאי HPEMs שנוצרה על ידי H והתווכה על ידי AMG.2O2 גירויים. (ד'(התוצאות הסטטיסטיות של אפופטוזיס של תאים.)ה(פס Western blot של MHC I. (פ(התוצאה הכמותית של הביטוי היחסי של חלבון MHC I. (Gהשפעות של AMG על IFN-γ, IL-6, ו-IL-15 בתאי HPEMs שדוחו על ידי H2O2 גירויים. (הפסים של Western blot עבור IFN-γ, IL-6, ו-IL-15. (I) התוצאה הכמותית של הרמה היחסית של חלבוני IFN-γ, IL-6 ו-IL-15. התוצאות הניסיוניות מוצגות כערך ממוצע ± סטיית תקן *p < 0.05, **p < 0.01 ו- ***p < 0.001 לעומת ה-H2O2 קבוצה; n = 3. נא ללחוץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
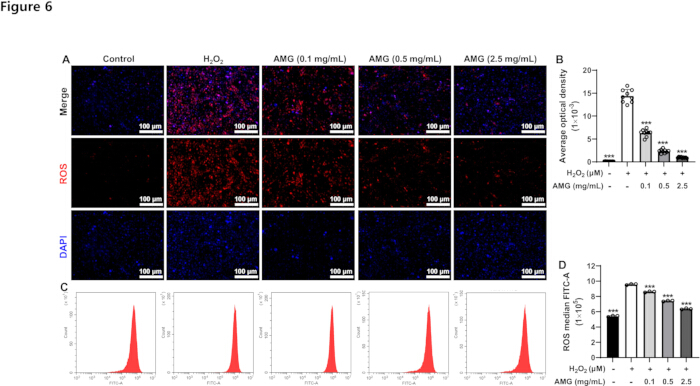
איור 6: השפעות של AMG על ROS בתאי HPEMs שהושרות על ידי H2O2. (A) תמונת פלואורסצנציה של ROS. (B) תוצאות סטטיסטיות כמותיות של פלואורסצנציית ROS. (C) תמונת ציטומטריה של זרימה של ROS. (D) תוצאות סטטיסטיות כמותיות של ציטומטריה של זרימה עבור ROS. תוצאות ניסיוניות מוצגות כערך ממוצע ± SD. ***p < 0.001 לעומת קבוצת ה-H2O2; n = 3. אנא לחץ כאן כדי לצפות בגרסה מוגדלת של איור זה.
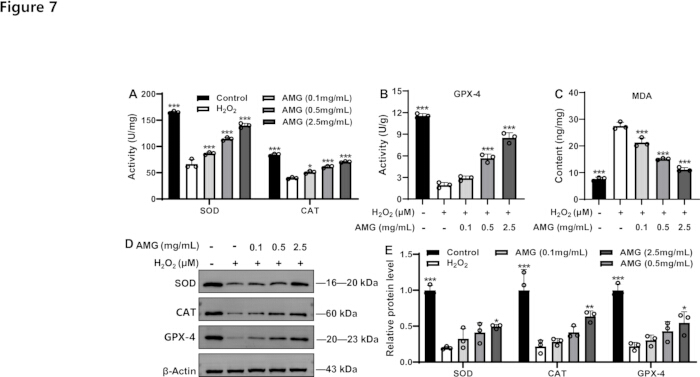
איור 7: השפעות של AMG על מדדי עקה חמצונית בתאי HPEMs שהושרה על ידי H2O2. רמות ה-SOD, (A) CAT, (B) GPX-4, ו-(C) MDA בתאי HPEMs נמדדו באמצעות ערכות ביוכימיות או ערכות ELISA. פסי Western blot של SOD, CAT ו-GPX-4 (D), ותוצאותיהם הכמותיות (E). תוצאות הניסוי מוצגות כממוצע ± SD. *p < 0.05, **p < 0.01 ו- ***p < 0.001 בהשוואה לקבוצת ה-H2O2; n = 3. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
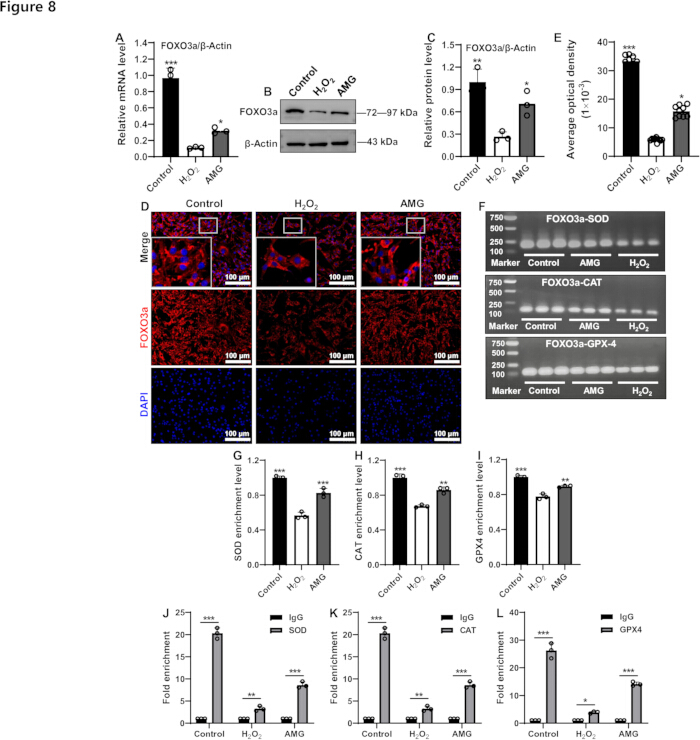
איור 8: השפעות של AMG על FOXO3a בתאי HPEMs שעברו השראה על ידי H2O2. (A) רמת הביטוי של הגן FOXO3a. פסי Western blot של FOXO3a (B) והתוצאות הכמותיות שלהם (C). תמונת הפלואורסצנציה של FOXO3a (D) ותוצאות הסטטיסטיקה הכמותית של הפלואורסצנציה (E). (F) תבניות אלקטרופורזה מייצגות של ChIP-PCR עבור FOXO3a-SOD, FOXO3a-CAT, ו-FOXO3a-GPX-4. ניתוח כמותי של ערכי האפור של פסי ה-ChIP-PCR עבור SOD (G), CAT (H), ו-GPX-4 (I). רמות ההסחפה של FOXO3a בפרומוטרים של SOD (J), CAT (K), ו-GPX-4 (L) זוהו באמצעות ChIP-PCR. תוצאות הניסוי מוצגות כערך ממוצע ± SD. *p < 0.05, **p < 0.01 ו-***p < 0.001 לעומת קבוצת ה-H2O2, או לעומת הקבוצות המצוינות; n = 3. נא ללחוץ כאן להצגת גרסה גדולה יותר של איור זה.
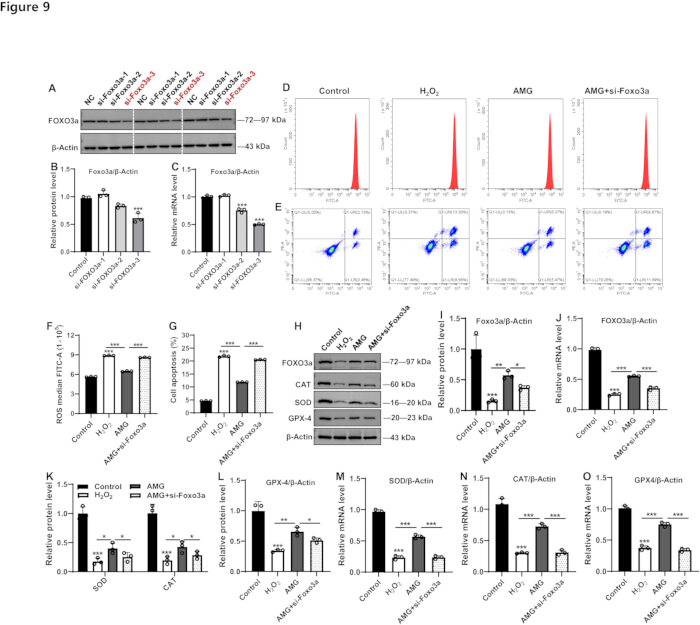
איור 9: השפעות של AMG על עקה חמצונית ואפופטוזיס בתאי HPEMs עם ביטוי נמוך של FOXO3a וגירויי H2O2. (A) רצועות Western blot של FOXO3a והתוצאה הכמותית שלהן (B). (C) תוצאה כמותית של ביטוי mRNA של FOXO3a. (D) גרף ציטומטריה של זרימה של ROS ואפופטוזיס של תאים (E). והממצאים הסטטיסטיים הנלווים (F ו-G). (H) רצועות western blot של FOXO3a, SOD, CAT, ו-GPX-4. (I) התוצאה הכמותית של ביטוי חלבון FOXO3a. (J) תוצאה כמותית של ביטוי mRNA של FOXO3a. (K ו-L) תוצאות כמותיות של ביטוי חלבון SOD, CAT, ו-GPX-4. תוצאות כמותיות של ביטוי הגנים SOD (M), CAT (N), ו-GPX-4 (O). תוצאות ניסיוניות מוצגות כממוצע ± SD. *p < 0.05, **p < 0.01, ו- ***p < 0.001 לעומת קבוצת הביקורת, או לעומת הקבוצות המצוינות; n = 3. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
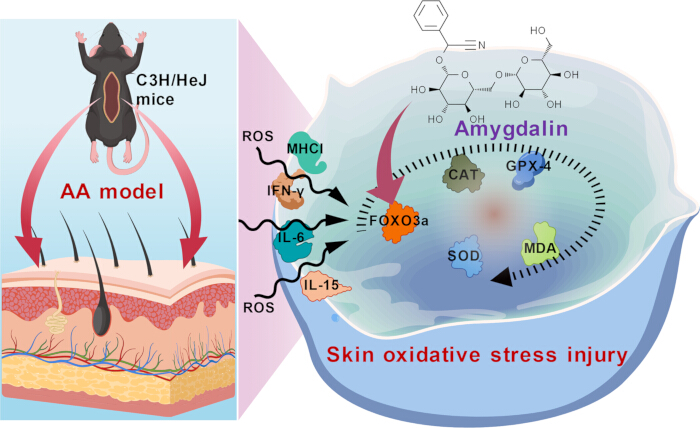
איור 10: תרשים סכמטי. תרשים זה ממחיש את המנגנון שבאמצעותו AMG מעורר את ביטוי FOXO3a, ובכך מעכב עקה חמצונית ודלקת ומשפר את ה-AA. האיור נוצר על ידי המחברים באמצעות BioGDP.com, ואין בעיות זכויות יוצרים. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
| גנים | מינים | רצפים (5' - 3') | אורך (bp) |
| FOXO3a | עכבר | קדמי: GCAAGCCGTGTACTGTGGA | 116 |
| היפוך: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | אנוש | קדמי: CGGACAAACGGCTCACTCT | 150 |
| הפוך: GGACCCGCATGAATCGACTAT | |||
| SOD | אנושי | קדימה: AAAGATGGTGTGGCCGATGT | 167 |
| היפוך: CAAGCCAAACGACTTCCAGC | |||
| חתול | בן אדם | קדימה: CTATCCTGACACTCACCGCC | 129 |
| הפוך: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | אנוש | קדימה: GCAAGGGCATCCTGGGAAAT | 84 |
| הפוך: GTTCTTGTCGATGAGGAACTGTG | |||
| β-אקטין | אדם | קדמי: AATCTGGCACCACACCTTCTACAA | 172 |
| הפוך: GGATAGCACAGCCTGGATAGCAA | |||
| β-אקטין | עכבר | קדמי: GTGCTATGTTGCTCTAGACTTCG | 174 |
| הפוך: ATGCCACAGGATTCCATACC |
טבלה 1: מידע על רצפי גנים עבור qRT-PCR. הפריימרים ששימשו ל-qRT-PCR.
| גנים | מינים | רצפים (5' - 3') | אורך (bp) |
| SOD | אנוש | קדימה: TGCCAGAAGAGGGACAGAACAGG | 173 |
| היפוך: ATCCGCCCACAGACACGAGAG | |||
| CAT | בן אדם | קדמי: GGGAAGCAGATTTCTCCAGTG | 141 |
| היפוכית: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | אדם | קדימה: TGGCACATTTTGGGGTTGGAAC | 103 |
| הפוך: TGAACGCTCCTCCTCCTTAAACG |
טבלה 2: מידע על רצפי גנים עבור ChIP-PCR.הפריימרים ששימשו ל-ChIP-PCR.
דיון
ל-AMG עצמו אין רעילות ישירה. הוא עובר הידרוליזה על ידי אנזימים מיקרוביאליים במעיים או על ידי חומצה בקיבה, תהליך המייצר ומשחרר מימן ציאניד רעיל ביותר49. מימן ציאניד נספג לאחר מכן במהירות דרך מערכת העיכול אל זרם הדם ומתפשט ברקמות הגוף, ובכך גורם להיפוקסיה ברקמות של מערכת העצבים, מערכת הלב וכלי הדם ומערכת הנשימה50. מבחינת מנגנון הפעולה, מימן ציאניד נקשר ליוני הברזל בציטוכרום אוקסידאז, חוסם את שרשרת הנשימה התאית, מה שמוביל להיפוקסיה של הרקמות ולהפרעות מטבוליות תאיות, ומעורר הרעלה חריפה51. התסמינים הרעילים כוללים כאב ראש, בחילה, הקאות וקשיי נשימה49,52. במקרים חמורים, הדבר עלול להוביל לכשל נשימתי ולמוות49,52. לכן, הבטחת טווח מינון בטוח של AMG היא תנאי מוקדם לחקר השפעותיו הפרמקולוגיות. במחקר זה, אישרו המחברים תחילה באמצעות בדיקה פתולוגית כי המינונים שבהם השתמשו (60, 90 ו-120 mg/kg) לא גרמו לרעילות בכבד או בכליות בעכברי C3H/HeJ נורמליים, דבר המהווה את הבסיס למחקרים נוספים על טיפול באלופציה אראטה באמצעות AMG.
IFN-γ משמש כמניע קריטי לדלקת במהלך התפתחות AA, והוא מופרש בעיקר על ידי תאי T פעילים מסוג CD4+/CD8+53,54,55. הוא משבש את הפריבילגיה האימונולוגית של זקיקי השיער (למשל על ידי עיכוב הביטוי הנמוך של MHC I), מה שדוחף תאי T אוטוראקטיביים לתקוף את המלנוציטים של זקיקי השיער, ומוביל לוואקואליזציה של תאי האם של השערה ולקראטיניזציה חריגה של בסיס השערה56,57. ניסויי חיות הראו כי עכברים חסרי את הגן IFN-γ מראים עמידות ל-AA58. IL-6 ו-IL-15 יכולים להגביר תגובות חיסוניות מסוג Th1 על ידי הפעלת רצף העברת האות JAK/STAT וקידום שחרור של IFN-γ 59. יתרה מכך, IL-15 יכול לעורר פרוליפרציה של תאי NK ותאי T, ובכך להחמיר את ההסננה הדלקתית סביב מבני זקיקי השיער60. בסיסי שערה נורמליים חומקים ממעקב חיסוני בזכות ביטוי נמוך של MHC I, בעוד שבחולי AA, ישנו ביטוי מוגבר וחריג של MHC I, ההופך את המלנוציטים של זקיקי השיער למטרה לתקיפה של תאי T61. במחקר זה, ציינו המחברים כי טיפול ב-AMG הפחית באופן משמעותי את רמות החלבונים של MHC I ו-IL-15 בעור של עכברי C3H/HeJ. ניסויי חיות קודמים אישרו גם הם כי AMG יכול לעכב את רמות ה-IFN-γ וה-IL-6 בעכברי AA38. בפגיעה של HPEMs המושרית על ידי H2O2, MHC I, כמו גם ציטוקינים פרו-דלקתיים הכוללים IFN-γ, IL-6 ו-IL-15, הוגבלו במידה ניכרת לאחר טיפול ב-AMG. נתונים אלו מרמזים כי הפוטנציאל של AMG לטיפול ב-AA עשוי להיות קשור לשמירה על האיזון בין חסינות לדלקת.
חוסר האיזון בין מערכת אנזימי הנוגדי החמצון (SOD, CAT, ו-GPX-4) לבין סמני פריקסדציה של ליפידים, MDA ו-ROS, ממלא תפקיד מכריע בפתוגנזה של AA62. SOD מפחית עקה חמצונית על ידי קטליזה של המרת O2·⁻ ל-H2O2, בעוד ש-CAT ו-GPX-4 מפרקים באופן נוסף H2O2 ל-H2O, ובכך מונעים את הצטברותם של ROS. עדויות מצביעות על כך ש-ROS מרובה עלול להוביל לפריקסדציה של ליפידים, מה שגורם לרמות MDA מוגברות ולפגיעה ישירה בתאי זקיקי השיער63. בחולים עם AA, יכולת הפינוי של ROS בזקיקי השיער פוחתת, והצטברות MDA מחמירה את המוות האפופטוטי של תאי פפילת השערה, מה שגורם לזקיקי השיער להיכנס לשלב המנוחה בטרם עת63. יתרה מכך, עקה חמצונית עשויה לעודד שחרור של הגורם הפרו-דלקתי IFN-γ, ובכך להחמיר את ההתקפה החיסונית ואת דגנרציית זקיקי השיער64. במחקר זה, החוקרים הבהירו כי התערבות באמצעות AMG הפחיתה את ביטוי ה-ROS המוגבר בעורם של עכברי AA ואת הפגיעה בתאי HPEM המושרה על ידי H2O2. במקביל, חקירות ניסיוניות in vivo ו-ex vivo הראו כי טיפול ב-AMG הגביר משמעותית את מדדי נוגדי החמצון (SOD, CAT, ו-GPX-4), בעודו מחליש את המדד הפרו-חמצוני MDA. עדויות אלה מעידות כי שמירה על מאזן העקה החמצונית היא התרומה של AMG לטיפול ב-AA. בהתחשב בכך שפגיעה בפעילות של GPX-4 תוביל ליצירה בלתי מבוקרת של MDA, הדבר עשוי להפעיל את תהליך הפרופטוזיס. תהליכים מולקולריים אלו עשויים לתרום גם להחמרת ה-AA ולשמש כמנגנון פוטנציאלי לטיפול ב-AMG. כל אלו דורשים אימות ניסיוני נוסף בעתיד.
כגורם שחלוף מרכזי, FOXO3a עשוי להיות מעורב בפתוגנזה של AA הן דרך נתיבים של עקה חמצונית והן דרך נתיבים של ויסות חיסוני65זה יכול להעתק לגוף הגרעין תחת עקה חמצונית, ובכך להעלות את הביטוי של אנזימי אנטי-אוקסידנט מרכזיים כגון SOD ו-CAT כדי לפנות ROS עודף ולהפחית נזק חמצוני לרקמת הקרקפת. על ידי הפחתת העומס החמצוני המקומי, FOXO3a יכול לייצב את הפריבילגיה החיסונית של זקיקי השיער ולבלום את התקיפה האוטואימונית המניעה איבוד שיער ללא צלקות. בנוגע לוויסות עקה חמצונית, הפעלת FOXO3a יכולה להעלות את הביטוי של אנזימי אנטי-אוקסידנט כגון SOD ו-CAT ולעכב הצטברות של ROS.65עם זאת, פגיעה בתפקוד של FOXO3a עלולה להוביל להגברה של ייצור MDA, תוצר מרכזי של פריקסדציה של ליפידים, ובכך להחמיר את אפופטוזיס התאים 66. ברמת הוויסות החסוני, FOXO3a מעורר התקפות אוטואימוניות על ידי ויסות של אנטיגנים המוגבלים ל-MHC I.67מחקר זה דיווח כי AMG העלה באופן דרמטי את רמות החלבון והגן של FOXO3a ברקמת העור של עכברי C3H/HeJ ובתאי HPEMs שעברו השראה על ידי H2O2. יתרה מכך, AMG הפחית את רמות ה-ROS ואת אפופטוזיס התאים, בעודו מעלה את ביטוי FOXO3a ואת הרמות של SOD, CAT ו-GPX-4 המווסתים על ידי FOXO3a בתאי HPEM בעלי ביטוי FOXO3a נמוך. ממצאי אלה מצביעים יחד על כך שההשפעה הטיפולית של AMG על AA קשורה באופן הדוק למאזן הרגולטורי המתווך על ידי FOXO3a בין עקה חמצונית לאפופטוזיס תאי. בהתחשב בקשר הסיבתי של FOXO3a המתווך על ידי AMG לשיפור AA, יש צורך לבצע ביטוי יתר של FOXO3a או עיכוב פרמקולוגי תחת התערבות של AMG במחקרים עתידיים. בנוסף, נותר לבחון האם FOXO3a המתווך על ידי AMG יכול להפחית עקה חמצונית ולסנן תגובות דלקתיות כדי להגן על תאי גזע של זקיקי שיער מפני נזק המושרה על ידי ROS והרס המתווך על ידי מערכת החיסון. נקודה נוספת שראוי לציין היא האם AMG מפעיל את השפעתו הנוגדת חמצון על ידי נטרול ישיר של הרעילות של H₂O₂ או באמצעות ויסות של העברה תוך-תאית של אותות, נותר נושא שטרם נפתר במחקר זה.
לסיכום, מחקר זה אישר תחילה כי AMG לא היה רעיל פוטנציאלית לכבד ולכליות במינונים שנבדקו. יתרה מכך, הוכח ברמה המולקולרית כי AMG עשוי לקדם את הביטוי של FOXO3a, ובכך להפעיל תעתוקית את הביטויים של SOD, CAT ו-GPX-4, ולעכב תגובות דלקתיות ואירועי אפופטוזיס לטיפול ב-AA (איור 10). עם זאת, קיימות במחקר זה מספר מגבלות שעדיין יש לבחון ולהבהיר במחקרים עתידיים. ראשית, הבהרת הרעילות לטווח ארוך והתכונות הפרמקוקינטיות של AMG בבעלי חיים עם AA משמשת כבסיס ותנאי מקדים למחקר מעמיק על השפעותיו הפרמקולוגיות ומנגנוניו המולקולריים. שנית, ההשפעות הפרמקולוגיות של AMG בטיפול ב-AA עדיין דורשות אישור באמצעות מחקרים רחבי היקף במספר מודלים של בעלי חיים וניסויים קליניים. מבחינת המנגנון המולקולרי, עדיין יש צורך לבצע ניסויי הצלה (rescue experiments) כדי לאשש עוד יותר האם FOXO3a הוא זה שמתווך את ההשפעה הפרמקולוגית של AMG. השאלה האם מדובר בפעילות נוגדת חמצון ישירה של AMG או בהשפעה נוגדת חמצון המופעלת על ידי FOXO3a המתווך על ידי AMG, דורשת חקירה נוספת.
גילויים
לכותבים אין ניגודי עניינים להצהיר.
תרומת המחברות:
שון הוא: חקירה, מתודולוגיה, כתיבה – גרסה מקורית. ג'ינסונג ליו, ג'יאווי וואנג, וז'ה דאי: ארגון נתונים. יוג'נג גונג, ויי לו, ו샤וואי שַה: תוכנה, ויזואליזציה ואימות. שון הוא: הקצאת מושגים, כתיבה – סקירה &עריכה, רכש מימון, ופיקוח
תודות
עבודה זו נתמכה על ידי ועדת הבריאות של מנהיגי מחוז סיצ'ואן (2024-221).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 5×All-In-One MasterMix (עם ערכת AccuRT להסרת DNA גנומי) | Applied Biological Materials Inc., ג'יאנגסו, סין | G492 | |
| βנוגדן לאקטין | Affinity Biosciences Co., Ltd., ווהאן, סין | AF7018 | |
| אמיגדלין | Chengdu Herbpurify Co., Ltd., צ'נגדו, סין | K-001-181216 | |
| נוגדן לקטלאז | Proteintech, ווהאן, סין | 66765-1-Ig | |
| ערכה לבדיקת קטלאז | Elabscience, ווהאן, סין | E-BC-K031-M | |
| עכברי C3H/HeJ | Chengdu Yaokang Biotechnology Co., Ltd., צ'נגדו, סין | N000190 | |
| ערכה לבדיקת ChIP | Beyotime Biotechnology, שנגחאי, סין | P2078 | |
| תווך גידול 254 | Gibco, Thermo Fisher Scientific, אמריקה | M-254-500 | |
| סוכן צביעה DAPI | Servicebio, ווהאן, סין | G1012 | |
| Dispase II | Shanghai Yuanye Bio-Technology Co., Ltd., שנגחאי, סין | S25046 | |
| EvaGreen Express 2×תערובת qPCR מוכנה (MasterMix) ללא צבע | Applied Biological Materials Inc., ג'יאנגסו, סין | MasterMix-ES | |
| Fast black HB | Sangon Biotech Co., Ltd., שנחאי, סין | A602008-0025 | |
| סרום עגל עוברי | כל הירוק | 13011-8611 | |
| מיקרוסקופ פלואורסצנציה | SOPTOP | CX40 | |
| נוגדן FOXO3a | Proteintech, ווהאן, סין | 10849-1-AP | |
| מיקרוטום להקפאה | Thermo | קריוטום E | |
| נוגדן ל-Glutathione peroxidase 4 | Proteintech, ווהאן, סין | 67763-1-Ig | |
| ערכה למדידת גלוטתיון פראוקסידאז 4 | Elabscience, ווהאן, סין | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., רוקוויל, מרילנד, ארה"ב | —— | |
| קרם Imiquimod | Sichuan Mingxin Pharmaceutical Co. Ltd., צ'נגדו, סין | H20030129 | |
| נוגדן לאינטרפרון גמא | Proteintech, ווהאן, סין | 15365-1-AP | |
| ערכה לגילוי interferon gamma | Elabscience, ווהאן, סין | E-EL-H0108 ו-E-EL-M0048 | |
| נוגדן לאינטרלוקין 6 | Proteintech, ווהאן, סין | 21865-1-AP | |
| ערכה לבדיקת אינטרלוקין 6 | Elabscience, ווהאן, סין | E-EL-H6156 ו-E-EL-M0044 | |
| נוגדן לאינטרלוקין 15 | Affinity Biosciences Ltd., ווהאן, סין | DF2521 | |
| ערכה לזיהוי אינטרלוקין 15 (Interleukin 15 kit) | Elabscience, ווהאן, סין | E-EL-H0222 ו-E-EL-M0728 | |
| ערכה למדידת מלונדיאלדהיד (Malondialdehyde kit) | Elabscience, ווהאן, סין | E-EL-0060 | |
| נוגדן MHC | Affinity Biosciences Ltd., ווהאן, סין | DF8558 | |
| מיקרוסקופ אופטי | ZEISS | Primo Star | |
| סכין לחיתוך פאראפין | Thermo Scientific | HM325 | |
| תוכנה לסריקה פתולוגית | 3DHISTECH (הונגריה) | צופה שקופיות 2.5.0 | |
| תמיסת פניצילין-סינטרויד (Penicillin-synthroid solution) | Biosharp, בייג'ינג, סין | BL505A | |
| IgG של ארנבת | Beyotime Biotechnology, שנגחאי, סין | A7016 | |
| ערכה לבדיקת ROS | Beyotime Biotechnology, שנגחאי, סין | S0033M | |
| נוגדן ל-Superoxide dismutase 1 | Proteintech, ווהאן, סין | 10269-1-AP | |
| מכשיר להטמעה של רקמות | Wuhan Junjie Electronics Co., Ltd., ווהאן, סין | JB-P5 | |
| מחלץ מים מרקמה (Tissue hydroextractor) | Thermo Scientific | STP420 ES | |
| ערכה לבידוד RNA כולל | Foregene, צ'נגדו, סין | RE-03014 | |
| ערכה למדידת סך superoxide dismutase | Elabscience, ווהאן, סין | E-BC-K020-M | |
| וזלין לבן | Shanghai Aladdin Biochemical Technology Co., Ltd., שנגחאי, סין | P434227 |
מקורות
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.