אנו מספקים פרוטוקול מפורט וניתן לשחזור לניתוח, צביעה אימונוהיסטוכימית והרכבה של מערכת הראייה של Drosophila בשלבי התפתחות ובבגרות לצורך דימוי ברזולוציה גבוהה. שיטות אלו מאפשרות ויזואליזציה של דפוסי הנוירובלסטים, התמיינות נוירונלית, תקיעת אקסונים של פוטורספטורים וארגון הנוירופיל בבוגרים, ובכך מציעות מסגרת רב-גונית לחקר התפתחות מערכת הראייה.
מאמר שיטה
פרוטוקול לניתוח, צביעה אימונוהיסטוכימית והרכבה של מערכת הראייה של ה-Drosophila
במאמר זה
סיכום
תקציר
מערכת הראייה של ה-Drosophila היא מודל רב-עוצמה לחקר האופן שבו נוצר גיוון נוירונלי וכיצד הוא משתלב במעגלים עצביים תפקודיים - שאלה מרכזית במדעי המוח ההתפתחותיים. היא מורכבת מהרשתית ומארבעה נוירופילים מובחנים: הלמינה (lamina), המדולה (medulla), הלובולה (lobula) ולוח הלובולה (lobula plate), אשר יחד יוצרים מבנה מאורגן מאוד המעבד קלט חזותי מהרשתית ומעביר אותו למרכזים גבוהים יותר במוח. במהלך ההתפתחות, מערכת הראייה עוברת עיצוב מחדש משמעותי. במהלך התפתחות הזחלים, נוירובלסטים נוצרים באופן הדרגתי מהנוירואפיתליום ומתחלקים באופן אסימטרי כדי להפיק תת-סוגים נוירונליים מגוונים על ידי שילוב של תוכניות תבניות מרחביות וזמניות. נוירונים אלו מבצעים לאחר מכן דיפרנציאציה ויוצרים קשרי סינפסה מדויקים הבונים את המעגלים התפקודיים של מערכת הראייה הבוגרת. ניתן לחקור תהליכים דינמיים אלו באופן מהימן באמצעות צביעה אימונוהיסטוכימית בשלבי הזחל, הגולם והבוגר. כאן, אנו מספקים פרוטוקול מפורט וניתן לשחזור לדיסקציה ולצביעה אימונוהיסטוכימית של מערכת הראייה של Drosophila בשלבי התפתחות ובשלב הבוגר. אנו מתמקדים בעיקר בדימוג מייצג של נוירובלסטים של זחלים כדי להדגיש תבניות מרחביות-זמניות וספציפיקציה נוירונלית, וכדי להדגים את המורפולוגיה של הנוירופיל בבוגר. הדבר מספק מסגרת חסונה להדמיה של מערכת הראייה המתפתחת של ה- Drosophila.
מבוא
ה- דרוזופילה melanogaster מערכת הראייה משמשת כמודל התפתחותי חשוב לחקר המנגנונים התאיים והמולקולריים העומדים בבסיס התפתחות מערכת העצבים. מבניה הסטריאוטיפיים ביותר, ארגז הכלים הגנטי הנרחב ותהליכי ההתפתחות השמורים שלה קידמו את הבנתנו לגבי התפתחות תאי גזע עצביים, התמיינות עצבית, הרכבת מעגלים וארגון המוח. מערכת הראייה של הזבוב מורכבת מהרשתית של העין המורכבת ומארבעה נוירופילים אופטיים - הלאמינה (lamina), המדולה (medulla), הלובולה (lobula) ולוח הלובולה (lobula plate) - המסודרים במעגל היררכי מורכב.1תאי הפוטורספטורים החושיים ברשתית מזהים אור וממירים אותו לאותים עצביים.2,3,4אותות אלו עוברים דרך אינטרונורונים מקומיים ונוירונים היטלתיים (projection neurons) המקשרים בין ארבעת הנוירופילים האופטיים, שם שלבי עיבוד עוקבים מחלצים מאפיינים חזותיים כגון ניגודיות, תנועה וצבע.4,5המידע החזותי המעובד מועבר לאחר מכן למרכזים גבוהים יותר במוח באמצעות נוירוני הקרנה חזותיים לצורך אינטגרציה נוספת.4,5,6.
האוואלה האופטית (optic lobe) המתפתחת עוברת סדרה של אירועים התפתחותיים המתוזמנים במדויק, אשר הופכים נוירואפיתל (NE) פרוליפרטיבי לרשת מעגלים עצביים מורכבת7,8. ה-NE מקורה בלוחיות העין (optic placode) במהלך העוברגנזה7,8. במהלך שלבי הלרבה, תאי הנוירואפיתל מבצעים בתחילה פרוליפרציה באמצעות חלוקות סימטריות כדי להרחיב את מאגר התאי progenitor. לאחר מכן, הם עוברים בהדרגה להפוך לנוירובלסטים, אשר מתחלקים באופן אסימטרי כדי לייצר נוירונים ותאי גליא של מערכת הראייה הבוגרת9,10,11,12,13. מנגנוני תבניות מרחביים-זמניים מגדילים את מגוון זהויות הנוירונים, כאשר נוירונים שנוצרו לאחרונה יוצרים שכבות קונצנטריות בתוך המדולה (medulla) המתפתחת, ובהמשך מבדילים עצמם למעגלים פונקציונליים במהלך התפתחות הגולם14,15,16,17,18,19. שילוב של רמזים מרחביים-זמניים מפעיל גורמי שעתוק נוירונליים ספציפיים לסוגי תאים, שביטוים המתמשך קובע את סוגי התאים הנוירונליים14,15,20,21,22. מנגנונים דומים קיימים בלאמינה (lamina) ובבלובולה (lobula) כדי לקבוע זהויות נוירונליות14,23,24,25,26.
דימוי אימונופלואורסצנציה של מערכת הראייה המתפתחת הפך לשיטה המועדפת להדמיית האירועים התאיים והמולקולריים העומדים בבסיס התפתחותה. ויזואליזציה מוצלחת תלויה לא רק בהכנת דגימות רקמה באיכות גבוהה ובריאגנטים אמינים לצביעה אימונוהיסטוכימית, אלא גם בניתוח מדויק ובoriention (כוון) נכון של הדגימה במהלך הקיבוע (mounting)27,28. מבנים התפתחותיים ותהליכים תאיים שונים מחייבים את הדגימות להיות מכוונות בדרכים ספציפיות כדי לחשוף את המאפיינים האנטומיים של המוח. מספר מאמרים ופרוטוקולים תיארו בפירוט את הניתוח והצביעה האימונוהיסטוכימית של מוח ה- Drosophila28,29,30,31,32. עם זאת, רק בודדים התייחסו לכך בהקשר של תהליך התפתחותי נחקר באופן נרחב במערכת הראייה27.
כאן אנו מציגים פרוטוקול מקיף לניתוח, צביעה אימונוהיסטוכימית והרכבה של מערכות ראייה בזריקים ובבוגרים. שיטה פשוטה וחסכונית לניתוח מוח של זריקים משתמשת במחטי מזכרת זמינות, מה שהופך את הפרוצדורה לנגישה עבור מעבדות ומסגרות הוראה עם כלים מיוחדים מוגבלים לניתוח. אנו מדגימים את הפרוטוקול באמצעות דוגמאות מייצגות, כולל ויזואליזציה של המעבר מהנוירו-אפיתליום לנוירובלאסט (NE to NB) בזריקים, ארגון נוירונלי קונצנטרי בתוך המדולה המתפתחת, והנוירופילים של האונה האופטית בבוגרים. אנו מספקים גם דוגמאות הממחישות ניתוחים של דפוסים מרחביים וזמניים ומיקוד פוטורספטורים במערכת הראייה המתפתחת ובבוגרים. יחד, נהלים אלה וכיווני הרכבה מוגדרים מספקים מסגרת מעשית להשגת תמונות הניתנות לשחזור ובאיכות גבוהה של מערכת הראייה של Drosophila בשלבי התפתחותה ובבגרותה למחקרי נוירו-התפתחות.
פרוטוקול
1. הכנת ריאגנטים וציוד
נתיחה וצביעה אימונוהיסטוכימית מוצלחות של מערכת הראייה ב-Drosophila דורשות הכנה של כל الريאגנטים והציוד לפני תחילת הניסוי. הכנה מראש של כל התמיסות ממזערת את זמן הטיפול ברקמה ומסייעת בשימור המורפולוגיה של הרקמה לאורך הפרוצדורה. יש להכין ולהחזיק בהישג יד את הריאגנטים הבאים:
- מלח פוספט רב-ערכי (1x PBS): הכין 1x PBS מתמיסת מלאי 10x לצורך הפרדה של רקמות, שטיפה והכנת ריאגנטים. PBS מספק סביבה איזוטונית השומרת על שלמות הרקמה במהלך הטיפול. אחסן את ה-1x PBS בטמפרטורה של 4 °C.
- תווך להפרדה: להפרדה, השתמש בתווך Schneider's לחרקים קפוא. תווך Schneider's מנוסח לתמוך ברקמות של Drosophila על ידי חיקוי הדוק של ההרכב היוני של המולימף של חרקים, והוא מומלץ להפרדות ממושכות.
- תמיסת קיבוע (4% formaldehyde ב-1x Phosphate Buffered Saline עם Triton X-100 (PBST)): הכין תמיסת 4% formaldehyde טרייה מתמיסת מלאי של 16% formaldehyde ב-1x PBST כדי להבטיח קיבוע אופטימלי ושימור של הרקמה.
זהירות: Formaldehyde הוא חומר ריאקטיבי מאוד ורעיל במקרה של שאיפה, בליעה או ספיגה דרך העור. יש לטפל בו במנדף כימיים תוך שימוש בציוד מגן אישי (PPE) מתאים, ולהשליכו לפסולת מסוכנת ייעודית ל-formaldehyde. - בופר שטיפה (1x PBST): הכן PBST (בופר 1x PBS המכיל 0.3% Triton X-100) לשימוש כשטיפה ולחדירות (permeabilization).
- תמיסת חסימה: השתמש ב-5% bovine serum albumin (הכנה מ-30% BSA ב-1x PBST) או ב-5% normal goat serum (5% NGS ב-1x PBST) כתמיסת חסימה. תמיסה זו מסייעת בהפחתת קישור לא ספציפי של נוגדנים. אחסן ב-4 °C לשימוש ארוך טווח.
- הכנת צלחות מצופות Sylgard: צלחות הפרדה מצופות Sylgard מספקות משטח רך המקבע את הרקמות ומגן על קצוות פינצטות עדינות. ערבב בסיס Sylgard 184 וחומר מקשה ביחס של 10:1 עד לאיחוד מלא. שפוך לצלוחיות פטרי לשכבה אחידה, ולאחר מכן קבע ב-37 °C למשך 2–4 ימים עד לייבוש. זמן העבודה של Sylgard 184 שעבר קטליזה בטמפרטורת החדר (22–25 °C) הוא כ-2 h, לכן השתמש בתערובת בתוך פרק זמן זה.
- קרר מראש את כל תווכי ההפרדה והבופרים, והשאר אותם על קרח במהלך הכנת הדגימות, ההפרדה והצביעה האימונוהיסטוכימית כדי לשמר את מורפולוגיית הרקמה ולהפחית פירוק. לפני תחילת הפרוטוקול, ודא שכל כלי ההפרדה, זכוכיות המיקרוסקופ, כיסויי הזכוכית, תווך הקיבוע, הפינצטות או מחטי ההפרדה מוכנים ונגישים. אסוף זבובים או זחלים בשלב ההתפתחות המתאים והשאר אותם מוכנים להפרדה.
לא נדרש אישור אתי או הנחיה לעבודה עם Drosophila melanogaster.
2. נתיחה, צביעה אימונוהיסטוכימית והרכבה של מוח הזחלים
- דיסקציה:
- אסוף 8–10 זחלי Drosophila בשלב השלישי (third-instar) הנודדים מתוך המבחנה באמצעות מברשת צבע לחה, ושטוף אותם בלוחית נקודות מזכוכית עם 1X PBS קר מאוד כדי להסיר שאריות מזון.
- בעזרת פינצטה או מברשת קטנה, העבר זחל בודד מלוחית הנקודות למטבע של 1X PBS קר מאוד או למדיום Schneider's במרכז פטריה של 150 mm (ללא Sylgard).
- החזק את הזחל באזור מרכז הגוף בעזרת מחט של מזרק 1 mL ביד הלא-דומיננטית. ביד הדומיננטית, בצע חיתוך רוחבי עם מחט המזרק באותו מיקום, כך שהזחל יחולק לשני חצאים (איור 1A–B).
זהירות: מחטי מזרקים הן חדות ועלולות לגרום לפציעה. השליך חפצים חדים משומשים למכל ייעודי לחפצים חדים. - החזק את החצי הקדמי של הזחל (שניתן לזהות לפי ווים שחורים בפה) בקצה החתך בעזרת היד הלא-דומיננטית. בעזרת מחט המזרק ביד הדומיננטית, דחף בעדינות את וויי הפה פנימה דרך חלל הגוף, בדומה להפיכת גרב. פעולה זו הופכת את הקוטיקולה של הזחל, ויוצרת דגימה הפוכה (inside-out). שיטת הדיסקציה ההפוכה מהירה יותר ומסייעת בשמירה על המוח ועל דיסקי העין מפני נזק (איור 1C–D).
- לאחר הפיכת הקוטיקולה, ניתן לראות את המוח מחובר לדיסקים האימגינליים (imaginal discs) ולוויי הפה. בעזרת מחט מזרק, הסר רקמות מיותרות, כולל המעי, בלוטות הרוק וגוף השומן (איור 1E).
- העבר את המוח המבודד ללוחית הנקודות המכילה 300 µL של 1X PBS קר מאוד, הנשמרת על קרח (איור 1F).
- חזור על שלבים 2.1.2–2.1.6 עד לבידוד מספר מספיק של מוחות, או עד שיעברו 20 דקות.
הערה: זמן הדיסקציה לא יעלה על 20 דקות כדי לשמור על איכות רקמה גבוהה. - השתמש בפיפטה של 200 μL כדי לשאוב את רוב הבאפר מהמוחות, תוך השארת כמות מספיקה כדי שישארו טבולים.
- קיבוע: הוסף 200 μL של תמיסת קיבוע קרה (4% formaldehyde) למוחות בכלי הדיסקציה וכסה עם זכוכית מיקרוסקופית, ולאחר מכן הנח את הכלי על רוקר שולחני במהירות ניעור של 28 ובזווית ניעור של 8° למשך 20 דקות.
הערה: הימנע ממהירויות ניעור גבוהות כדי למנוע התפרקות של הרקמה.
זהירות: formaldehyde הוא חומר מסוכן. השתמש בציוד מיגון אישי מתאים, כולל כפפות, חלוק מעבדה, מסכת פנים והגנה על העיניים בעת טיפול בתמיסות המכילות formaldehyde. - שאוב את תמיסת הקיבוע, ולאחר מכן הוסף 200 μL באפר שטיפה (1X PBS עם 0.3% Triton X-100). בצע שתי שטיפות מהירות של PBST, ולאחריהן שתי שטיפות של 20 דקות.
הערה: Triton X-100 הוא דטרגנט החיוני להגברת חדירות דגימות הרקמה ולהקל על חדירת הנוגנים. - חסימה: שאוב את ה-PBST והוסף תמיסת חסימה (5% Normal Goat Serum או 5% BSA ב-1x PBST) למוחות. דגור למשך 40 דקות בטמפרטורת החדר.
הערה: דגירה בתמיסת חסימה רוויעה את אתרי הקישור הבלתי ספציפיים ברקמה, ובכך מפחיתה את הצביעה ברקע ומגבירה את ספציפיות הנוגדן. שלב זה מומלץ, אם כי ניתן לוותר עליו אם צביעת הנוגדן ספציפית ומראה רקע מינימלי.
- צביעה אימונוהיסטוכימית
- הכן תערובת נוגדים ראשוניים בדילול המומלץ בתוך כ-50 μL של PBST לשטיפה.
הערה: שמור את מנות הנוגדים על קרח במהלך ההכנה כדי לשמר את יציבות ופעילות הנוגדן. - העבר את המוחות מבئر הזכוכית למבחנות מיקרו-צנטריפוגה של 1.5 mL. הסר את תמיסת החסימה העודפת מהמוחות, והשאר כמות מספיקה כדי שישארו טבולים.
- הכן את תמיסת תערובת הנוגדים והוסף אותה למבחנה עם המוחות. ערבב בעדינות באמצעות פיפטה עם טיפ של 20 µL כדי להבטיח פיזור אחיד של הנוגדנים.
הערה: דגירת מוחות בתמיסת נוגדן ראשוני של 50 µL מפחיתה את צריכת הנוגדים מבלי לפגוע באיכות הצביעה. - דגור את המבחנות המכילות את המוחות על מעמד בטמפרטורה של 4 °C למשך 16 שעות.
הערה: ניתן לבצע דגירה של נוגדנים ראשוניים למשך 48–72 שעות ב-4 °C כדי לשפר את הצביעה במקרים מסוימים. ניתן להשתמש שוב בנוגדים ראשוניים לפחות 3 פעמים מבלי להפחית את איכות הצביעה. - הוסף 200 μL של PBST. בצע 2 שטיפות מהירות ולאחריהן 2 שטיפות ארוכות של 20 דקות כל אחת.
- הכן תערובת נוגדים שניוניים בדילולים המומלצים בתוך כ-250 μL של PBST לשטיפה.
הערה: בצע את כל הדגורות לאחר הוספת הנוגדים השניוניים בחשכה כדי למנוע חשיפה לאור, שעלולה לגרום לפוטו-בליצ'ינג (photobleaching). - הסר PBST עודף, ולאחר מכן הוסף את תערובת הנוגדים השניוניים למוחות. דגור למשך 2 שעות בטמפרטורת החדר (22–25 °C) או 16 שעות ב-4°C על רוקר, כשהוא מכוסה בקופסת קרטון כדי לשמור על חשיכה.
- חזור על שלבי השטיפה שלעיל (2 שטיפות מהירות, ולאחריהן 2 שטיפות ארוכות של 20 דקות כל אחת) באמצעות PBST.
נקודת עצירה: ניתן לאחסן מוחות ב-PBST בטמפרטורה של 4 °C למשך עד שבוע. עם זאת, מומלץ לדמות את הדגימות בהקדם האפשרי לאחר ההרכבה כדי למזער אובדן אות כתוצאה מפירוק רקמה או דעיכה של הפלואורופור.
- הכן תערובת נוגדים ראשוניים בדילול המומלץ בתוך כ-50 μL של PBST לשטיפה.
- הרכבה של האונות האופטיות של הזחל
- הכן זכוכית מיקרוסקופית על ידי ניקוי עם 70% ethanol והשאר אותה להתייבש למשך 5 דקות (איור 2E).
- הדבק שני רצועות מקבילות של סרט דביק דו-צדדי במרכז הזכוכית המיקרוסקופית, תוך השארת מרווח של 5–10 mm בין הרצועות.
- בעזרת פיפטה של 200 µL עם טיפ קצוץ, העבר את המוחות לזכוכית מיקרוסקופית נקייה אחרת והסר רקמות מיותרות, כגון דיסקים אימגינליים של הרגליים, שעלולות להפריע לאזור העניין במהלך הדמיון.
הערה: ניתן להשאיר רקמות קטנות שאינן מפריעות לאזור העניין שלנו במהלך הדמיון כפי שהן בזמן ההרכבה. - העבר את המוחות לזכוכית המיקרוסקופית המכילה את הסרט הדו-צדדי.
הערה: ודא שהמוחות לא מתייבשות ושהן תמיד טבולים בבאפר 1x PBST. - זהה את הכיוון הקדמי-אחורי (anterior–posterior) של כל מוח של זחל תחת מיקרוסקופ סטריאוסקופי, תוך שימוש במורפולוגיה הבולטת האופיינית של המוח ובמיקומו של חבל העצבים הגבי (VNC) כסימנים אנטומיים (איור 2A–D).
- הרכבה קדמית: מקם את המוח כך שהצד הבולט פונה כלפי מעלה, הרחק מהזכוכית, וה-VNC פונה כלפי הזכוכית (איור 2A, איור 3A).
- הרכבה אחורית: מקם את המוח כך שהצד הבולט פונה אל הזכוכית וה-VNC פונה הרחק מהזכוכית (איור 2B, איור 3F).
- הרכבה צדית: חתוך את המוח המורכב קדמית ואת ה-VNC לאורכה לאורך קו האמצע בעזרת מחט מזרק 1 mL או מחט טונגסטן דקה כדי ליצור שני חצאי מוח חצויים (איור 2C). סובב כל המיספירה ב-90° ומקם אותה כך שהצד הצדי, של ה-lobula-plug, פונה אל כיסוי הזכוכית (coverslip) והמשטח החתור המדיאלי פונה הרחק ממישור הדמיון (איור 2D, איור 3K).
הערה: התאם את מיקום המוח תחת המיקרוסקופ הסטריאוסקופי לפי הצורך כדי להגיע לאוריינטציה הרצויה. שמור על המוח טבול במהלך המיקום. - שאוב את רוב הבאפר, תוך השארת כמות מספיקה כדי לשמור על המוחות טבולים.
- הוסף 20–40 μL של מדיום הרכבה (SlowFade Gold Antifade) לאזור המכיל את המוחות והפץ אותו באופן אחיד בעזרת פיפטה של 20 μL.
- הנח בזהירות כיסוי זכוכית כך שיישען על שתי רצועות הסרט ואיטם את הקצוות עם לכה לציפורניים.
הערה: אם נוצרים בועות גדולות לאחר הנחת כיסוי הזכוכית, הוסף עוד מדיום הרכבה למרווח שבין הכיסוי לזכוכית עד שהבועות ייעלמו.
3. ניתוח, צביעה אימונוהיסטוכימית והשבעה של מוח בוגר
- דיסקציה: דיסקציה של מוח בוגר היא תובענית יותר מבחינה טכנית ומצריכה טיפול זהיר. מומלץ מאוד להשתמש בפינצטה חדה מפלדת אל-חלד לביצוע דיסקציה של מוח בוגר.
- הרדמו מספר מספיק של זבובים בוגרים בגיל הנדרש על משטח הרדמה ב-CO2, ולאחר מכן העבר אותם למגבון רקמה לח שהונח על דלי קרח כדי לשמור על ההרדמה במהלך הדיסקציה.
הערה: לאחר ההרדמה, ניתן לשמור על הזבובים לחים עם מגבון רקמה על קרח במהלך הדיסקציה, מה שמבטל את הצורך להשאיר את משטח ה-CO2 פעיל ומקל על הטיפול. - באמצעות פינצטה עדינה, הרם בעדינות את הזבוב הבוגר ברגליו והנח אותו בצלחת פטרי מצופה ב-Sylgard.
- קבע את הזבוב לפלטה מצופה ב-Sylgard על ידי החדרת סיכה מלמעלה דרך מרכז החזה, הרחק מאזור המוח. טבול את הזבוב בטיפה של באפר 1X PBS קר מאוד/Schneider's Media ומקם את ראש הזבוב לדיסקציה על ידי סיבוב הזבוב לכיוונך או הזזת הפלטה.
זהירות: סיכות דיסקציה הן חדות ועלולות לגרום לפציעה. השלך אותן למיכל ייעודי לחפצים חדים. - באמצעות פינצטה ביד הדומיננטית, הסר בזהירות את החרטום ואת הקוטיקולה הפרונטלית שבין העיניים כדי לחשוף חלקית את המוח. פעולה זו יוצרת פתח מתחת לקוטיקולה של הרשתית המאפשר לפינצטה להקל על דיסקציית המוח לאחר מכן.
- באמצעות פינצטה עדינה, אחוז בעדינות ברשתית בקצוותיה החיצוניים ביותר ומשוך אותה לצדדים. היזהר לא לדקור את האונות האופטיות בזמן קילוף הרשתית.
- נקה בזהירות רקמות שיאריות, כגון קנה הנשימה (trachea) או המעי הקדמי, המחוברות למוח.
- העבר את המוח הנקי לפלטת נקודות זכוכית המכילה 200 µL של 1X PBS, השמורה על קרח.
- חזור על שלבי הדיסקציה 3.1.2 עד 3.1.7 עד לאיסוף מספר מספיק של מוחות או עד לחלוף 30 דקות.
- השתמש בפיפטה של 200 µL כדי לשאוב את ה-PBS מהמוחות, והשאר כמות מספקת רק כדי לשמור עליהם טבולים.
- קיבוע: הוסף 200 μL של תמיסת קיבוע קרה (4% formaldehyde ב-1X PBS) לפלטת נקודות הזכוכית המכילה את מוחות הזבובים הבוגרים שעברו דיסקציה, ולאחר מכן הנח את הפלטה, כשהיא מכוסה בזכוכית כיסוי מיקרוסקופית, על רוקר שולחני במהירות ניעור של 28 למשך 30 דקות.
זהירות: Formaldehyde הוא חומר מסוכן. הרכב כפפות מתאימות, חלוק מעבדה והגנה על העיניים בעת טיפול בתמיסות המכילות formaldehyde. - שאוב את תמיסת הקיבוע, השאר כמות מספקת לטבילת המוחות, והוסף 200 µL PBST. בצע 3 שטיפות מהירות ו-2 שטיפות ארוכות, כל אחת למשך 20 דקות.
- חסימה: הסר את ה-PBST והדגר את המוחות בתמיסת חסימה (5% NGS או 5% BSA) למשך 45 דקות.
- העבר את המוחות למבחנה של 1.5 mL והסר את רוב תמיסת החסימה, השאר רק כמות מספקת כדי לשמור על המוחות טבולים.
- הרדמו מספר מספיק של זבובים בוגרים בגיל הנדרש על משטח הרדמה ב-CO2, ולאחר מכן העבר אותם למגבון רקמה לח שהונח על דלי קרח כדי לשמור על ההרדמה במהלך הדיסקציה.
- צביעה אימונוהיסטוכימית
- הכן תערובת נוגדנים ראשוניים בדילול המתאים ב-50 µL של PBST.
- הוסף את תערובת הנוגדנים הראשוניים למבחנה עם המוחות והדגר למשך 12–16 שעות ב-4 °C.
- שאוב את תמיסת הנוגדנים, ולאחר מכן הוסף PBST לשני שטיפות מהירות ושתי שטיפות ארוכות של 20 דקות כל אחת.
- הכן תערובת נוגדנים שניוניים בדילולים המומלצים ב-250 µL של PBST.
- הסר את ה-PBST ולאחר מכן הוסף את תערובת הנוגדנים השניוניים. הדגר על רוקר שולחני בטמפרטורת החדר (22–25 °C) למשך שעתיים, או השאר למשך 12–16 שעות ב-4 °C בחשיכה.
- חזור על השטיפות (3 מהירות ו-2 ארוכות, כל אחת למשך 20 דקות).
נקודת עצירה: עצור בשלב זה ושמור את המוחות ב-PBST ב-4 °C למשך שבוע.
- קיבוע של אונות אופטיות בוגרות
- הכן סלייד מיקרוסקופי על ידי ניקיונו עם 70% אתנול.
- הכן גשר זכוכית כיסוי על ידי הנחת שתי זכוכיות כיסוי של 18 x 18 מ"מ על טיפה קטנה של דבק רב-תכליתי ליצירת מרווח (פחות מ-1 מ"מ) ביניהן עבור המוחות (איור 2F).
- באמצעות קצה פיפטה חתוך של 200 µL, העבר מוחות נקיים לסלייד והסר רקמות, כגון קנה נשימה או קוטיקולה של הראש, שעלולות להפריע לשדה הראייה במהלך הדמיון.
- העבר את המוחות הנקיים לצד הקיבוע שהוכן בשלב 3.3.2.
הערה: שמור על המוחות טבולים ב-1x PBST לאורך כל תהליך הקיבוע ואל תאפשר להם להתייבש. - תחת מיקרוסקופ סטריאו, זהה את הכיוון האנטרי-פוסטריורי של כל מוח בוגר על פי המורפולוגיה הכללית שלו. המשטח הקמור תואם לצד האנטרי, בעוד המשטח הקעור תואם לצד הפוסטריורי.
- קיבוע אנטרי: מקם את המוח כך שהמשטח האנטרי והאונות האנטנליות פונים לעבר זכוכית הכיסוי (איור 4A).
- קיבוע פוסטריורי: מקם את המוח כך שהמשטח הפוסטריורי פונה לעבר זכוכית הכיסוי והאונות האנטנליות פונות הרחק מזכוכית הכיסוי (איור 4D).
- קיבוע לטרלי: מקם את המוח כך שהנוירופילים הוויזואליים מכוונים במקביל למישור הדמיון. הנח את המוח במצב אנטרי, סובב אותו ב-90°, והשען אותו על קצה זכוכית הכיסוי המשמשת כמרווח (איור 4G).
- שאוב את רוב באפר ה-1x PBST, השאר כמות מספקת כדי לשמור על המוחות טבולים.
- הוסף 40 μL של תמיסת קיבוע (עדיף VECTASHIELD Antifade Mounting Media) על האזור המכיל את המוחות, ולאחר מכן פזר אותה באופן שווה בעזרת פיפטה של 20 μL. הוסף תמיסת קיבוע נוספת במידת הצורך.
הערה: VECTASHIELD Antifade Mounting Media עובדת היטב עם סלייד בעל גשר זכוכית כיסוי מכיוון שהצמיגות הגבוהה שלה עוזרת לה להישאר במרווח שבין זכוכיות הכיסוי. - הנח בזהירות זכוכית כיסוי של 22 x 22 מ"מ כך שתנוח על שתי זכוכיות הכיסוי. הסר בועות על ידי הוספת תמיסת קיבוע נוספת מהמרווח.
- אטום את הקצוות באמצעות לק ציפורניים (איור 2F).
4. רכישת תמונות ועיבוד תמונות
- רכשו תמונות באמצעות מיקרוסקופ קונפוקאלי Leica STELLARIS 8 עם עדשות 40x (NA = 1.3) ו-63x טבילי שמן (NA = 1.4), ברזולוציה של 1024 × 1024 פיקסלים.
- אספו Z-stacks עם z-step של 1 µm במהירות סריקה של 200 Hz.
- בצעו הדמיה באמצעות סריקה דו-כיוונית עם טווח זום של 0.75–1.0x, בהתאם לדגימה.
- בצעו את הגילוי בהגדרת gain של 100 תוך שימוש בגלאי המתאים לכל פלואורופור.
הערה: השתמשו באורכי גל של עירור של 405, 488, 555, ו-647 nm, והתאימו את עוצמת הלייזר בהתאם לנוגדן ולפלואורופור המודגמים. - רכשו תמונות באמצעות תוכנת הרכישה של Leica ועבדו אותן באמצעות Fiji/ImageJ2 גרסה 2.16.0/1.54p.
תוצאות
ניתוח מוצלח, צביעה אימונוהיסטוכימית וכיווני הרכבה נכונים הם חיוניים כדי לשמר את המבנה הכללי של האונה האופטית המתפתחת וללכוד במדויק את מאפייניה האנטומיים, את המעברים ההתפתחותיים ואת סוגי התאים. כיווני הרכבה שונים מספקים מבטים משלימים של מערכות הראייה של זחלי ומבוגרים של Drosophila ומאפשרים ויזואליזציה של אזורים אנטומיים ומאפיינים נוירונליים שונים.
אוריינטציות להרכבת זחליים:
סעיף זה מדגים אוריינטציות קיבוע מייצגות המקלות על דימות של האונה האופטית המתפתחת בזחליים (איור 3). הסכמה של מוח הזחל מדגישה את מבני האונה האופטית העיקריים, כולל ה-OPC, המדולה והלמינה (איור 3A). קיבוע קדמי (anterior mount) מראה את ה-OPC, את המעבר מנוירואפיתליום לנוירובלאסט (NE-to-NB), את רצועת הנוירובלאסטים של המדולה ואת הלמינה המתפתחת. מוח בקיבוע קדמי שנצבע ב-Deadpan (Dpn), E-Cadherin (ECad) ו-Dachshund (Dac) מדגיש מבנים אלו (איור 3B). אוריינטציה זו מאפשרת גם להבחין ברצף גורמי השעתוק הזמני בנוירובלאסטים של המדולה, כפי שניתן לראות מהביטוי הרצפי של Hth, Opa, Erm ו-Ey (איור 3C). ניתן להדמות באוריינטציה קדמית גם אקסונים של פטורצפטורים, המסומנים עם נוגדי anti-Chp, המשולבים עם נוירוני למינה (איור 3D, E). קיבוע אחורי (posterior mounting) חושף את מרכז השכפול הפנימי (IPC) ואת קצות ה-OPC, ובכך מספק מבטים משלימים של האונה האופטית המתפתחת (איור 3F, G-H). אקסונים של פטורצפטורים (Chp-positive) המשולבים עם נוירוני למינה ניתנים להדמיה גם באוריינטציה אחורית (איור 3I, J). יחד עם הקיבוע הקדמי, אוריינטציה זו מספקת גישה משלימה לאזורים שונים של מערכת הראייה המתפתחת בזחל. קיבוע צדי (lateral mounting) חושף את התבניות המרחביות של ה-OPC לצד ארגון קונצנטרי של הנוירונים (איור 3K). קיבוע צדי מספק בו-זמנית מבט על הארגון הקונצנטרי של נוירוני המדולה (איור 3L). אוכלוסיות נוירונליות מייצגות כוללות נוירונים אינטרינזיים של המדולה חיוביים ל-Bsh שאינם תלויים בדומיין מרחבי (Mi1) ונוירונים טרנס-מדולריים חיוביים ל-TfAP-2 (Tm1, Tm2, Tm4, ו-Tm6), כמו גם תת-סוגים נוירונליים ספציפיים לאזור כגון Dm8, DRA-Dm8 ו-Dm11 (איור 3L). Vsx ו-Optix (Optix-GAL4>GFP) נמצאים בנוירואפיתליום (NE) אך לא בנוירובלאסטים (NB), בעוד ש-Rx נמצא הן ב-NE והן ב-NBs19. בנוסף, Vsx ו-Rx מובטאים בנוירונים פוסט-מיטוטיים ספציפיים התואמים לדומיינים המרחביים שלהם19 (איור 3M). ניתן להדמות אקסונים של פטורצפטורים המכוונים ללמינה ולמדולה באוריינטציה צדית (איור 3N, O). אוריינטציות קיבוע אלו מאפשרות ניתוח של האופן שבו התבנית המרחבית והזמנית של נוירובלאסטים במדולה מובילה להיווצרות זהויות נוירונליות מובחנות14,22.
אוריינטציות קיבוע למבוגרים: סעיף זה מציג סכימה ודוגמה מייצגת של אוריינטציות קיבוע לדימוי של האונה האופטית של Drosophila בוגרת. קיבוע קדמי (Anterior mounting) מספק מבט פרונטלי של האונה האופטית, החושף את ה-lamina, ה-medulla וההיבטים הקדמיים של ה-lobula וה-lobula plate (איור 4A). נוגדן Anti-Bruchpilot (Brp) מסמן את ה-neuropils האופטיים, בעוד ש-Bsh מסמן נוירונים מסוג Mi1 בקורטקס של ה-medulla (איור 4B). באותה אוריינטציה, נוגדן anti-Chaoptin (Chp) מסמן אקסונים של פטורצפטורים המקרינים אל ה-lamina וה-medulla (איור 4C). אוריינטציית קיבוע אחורית (Posterior mounting) חושפת אזורים עמוקים יותר של האונה האופטית, ומאפשרת ויזואליזציה של ה-medulla neuropil בעומק (איור 4D, E). באוריינטציה זו, צביעת Chp מפרטת את קצוות הפטורצפטורים בתוך ה-medulla (איור 4F). קיבוע צדי (Lateral mounting) מספק מבט מהצד של האונה האופטית, המאפשר ויזואליזציה סימולטנית של ה-lamina, ה-medulla, ה-lobula וה-lobula plate (איור 4G, H). Bsh מסמן נוירונים של ה-lamina (L4 ו-L5) יחד עם נוירונים פנימיים של ה-medulla (Mi1), בעוד ש-Brp מגדיר את גבולות ה-neuropil. הקרנות של פטורצפטורים מכוונות אל תוך ה-lamina וה-medulla (איור 4I), ומספקות סקירה כללית של ארגון המערכת החזותית במבוגר.
יחד, אוריינטציות הקיבוע הקדמית, האחורית והצדית מציעות מבטים משלימים של מערכות הראייה המתפתחות והבוגרות, ובכך מאפשרות לחוקרים לבחון אזורים אנטומיים שונים, מאפיינים התפתחותיים ואוכלוסיות נוירונליות בהתאם למטרות הניסוייות שלהם.
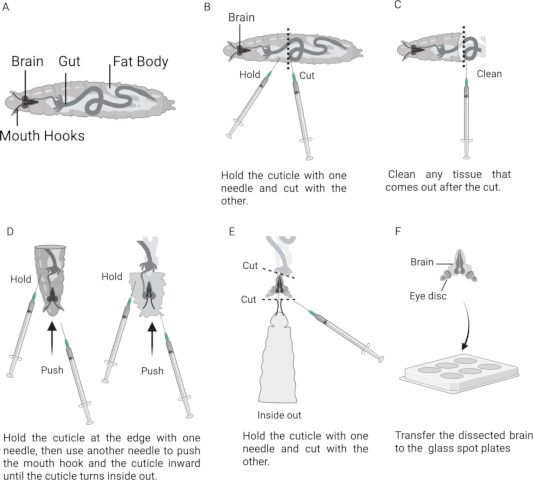
איור 1: נתיחה של מוח זחלי Drosophila באמצעות שיטת מחט המזרק. (A) תרשים של זחל בשלב מאוחר של הג'יג השלישי המראה את מיקום המוח ומבנים אנטומיים קשורים. (B) מראה את הזחל ממוקם בין שתי מחטי מזרק, כאשר הקו המקווקו מצביע על האתר המשוער של ההפרדה הרוחבית. (C) החצי הקדמי של הזחל לאחר הסרת רקמות מסביבות. (D) שלבים עוקבים המראים הפיכה של הקוטיקולה של הזחל בעזרת מחטי מזרק. (E) דגימה הפוכה המראה את המוח, הדיסקים האימגינליים (imaginal discs) וויתרי הפה. (F) מוח זחלי מבודד בלוחית זכוכית. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
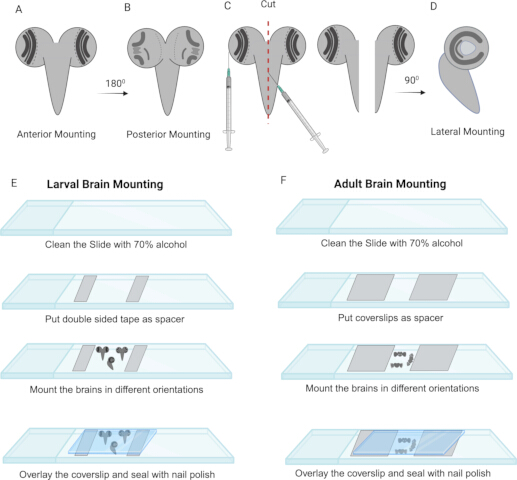
איור 2: שלבי הרכבה של האונה האופטית בזחלי Drosophila ובבוגרים. (A) אוריינטציית הרכבה קדמית של מוח הזחל. (B) אוריינטציית הרכבה אחורית של מוח הזחל. (C) חצייה דו-צדדית של המוח המורכב קדמית באמצעות מחט מזריקה. (D) אוריינטציית הרכבה צדית של המוח החצוי. (E) שלבים מייצגים להרכבת מוח הזחל. (F) שלבים מייצגים להרכבת מוח הבוגר. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
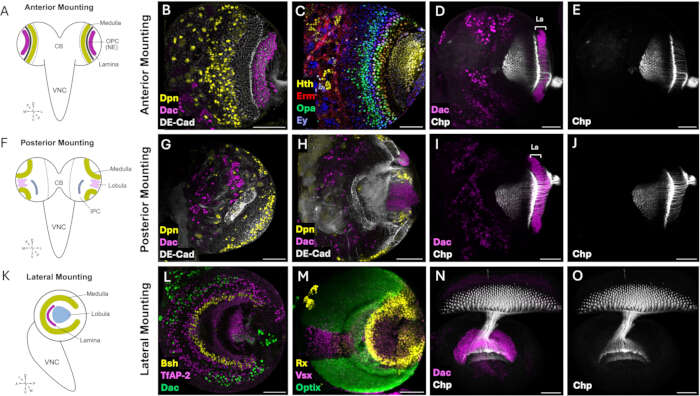
איור 3: אוריינטציות הרכבה לדימוי של מערכת הראייה של פשוש Drosophila בשלב הזחל. (A) סכימה הממחישה את אוריינטציית ההרכבה הקדמית של מוח זחל בשלב השלישי, כאשר הפני השטח הקדמיים פונים לעבר כיסוי הזכוכית (coverslip). (B) תמונת קונפוקלית מייצגת של מוח זחל שהורכב באופן קדמי, המראה את מרכז השגשוג החיצוני (OPC) מסומן עם anti-DE-Cadherin (DE-CAD, אפור), נוירובלסטים של המדולה המסומנים עם anti-Deadpan (Dpn, צהוב), והלמינה המתרכבת המסומנת עם anti-Dachshund (Dac, מגנטה). (C) תמונה של NBs של המדולה המבטאים באופן רצופי את גורמי השעתוק הזמניים Homothorax (Hth), Odd-paired (Opa), Earmuff (Erm), ו-Eyeless (Ey) במהלך התפתחות הנוירובלסטים. (D-E) תמונה מייצגת של אקסונים של פטורצפטורים המוקרנים מדיסק הדמיוני של העין אל הלמינה והמדולה המתרכבות. (F) סכימה הממחישה את אוריינטציית ההרכבה האחורית של מוח הזחל, כאשר הפני השטח האחוריים פונים לעבר כיסוי הזכוכית. (G) תמונת קונפוקלית של פני השטח האחוריים השטחיים של האונה האופטית, המראה את מרכז השגשוג הפנימי (IPC) ונוירובלסטים של המדולה הממוקמים בקצות ה-OPC (tOPC). (H) חיתוך אופטי שנקבע עמוק יותר בתוך האונה האופטית האחורית, המדגיש את ה-IPC ואת הלובולה המתרכבת. (I-J) מבט אחורי של אקסונים של פטורצפטורים המוקרנים אל האונה האופטית המתרכבת. (K) סכימה הממחישה את אוריינטציית ההרכבה הצדית של מוח זחל חצוי (hemisected), כאשר פני השטח המדיאליים החתוכים פונים לעבר כיסוי הזכוכית כדי להמחיש את הארגון הקונצנטרי של המדולה המתרכבת יחד עם הלמינה ופקק הלובולה. (L) תמונת קונפוקלית מייצגת המראה את הסידור הקונצנטרי של אוכלוסיות נוירונים במדולה, כולל נוירוני Mi1 המסומנים על ידי Brain-specific homeobox (Bsh), נוירוני Tm1, Tm2, Tm4, ו-Tm6 המסומנים על ידי TfAP-2, נוירוני Dm8 חיוביים ל-Dachshund (Dac) במדולה הוונטרלית, ונוירוני DRA-Dm8 ו-Dm11 באזור השולי הדורסלי, הממחישים את הארגון המרחבי של תתי-סוגי נוירונים במדולה. (M) השלכה של עוצמה מקסימלית (Maximum intensity projection) של מרכז השגשוג החיצוני המראה את תחומי התבנית המרחבית המוגדרים על ידי גורמי השעתוק Vsx, Optix (Optix-GAL4>GFP), ו-Rx באונה האופטית המתרכבת. (N-O) תמונה מייצגת של אקסונים של פטורצפטורים באוריינטציית הרכבה צדית, המראה את הקרנותיהם והכוונתם בתוך הלמינה והמדולה המתרכבות. סרגל קנה מידה = 50 µm. קיצורים: La = למינה. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
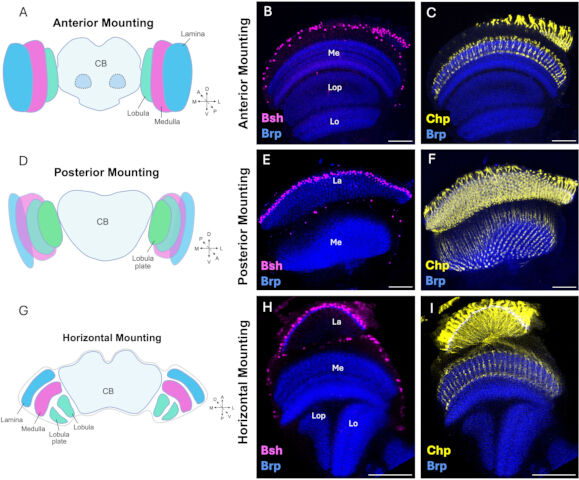
איור 4: אוריינטציות של קיבוע לצורך הדמיה של מערכת הראייה של Drosophila בוגרת. (A) תרשים הממחיש את אוריינטציית הקיבוע הקדמית של מוח בוגר, כאשר הפני השטח הקדמיים פונים לכיסוי הזכוכית. (B) תמונת קונפוקל מייצגת של מוח בוגר המקובע באופן קדמי, המראה נוירונים Mi1 חיוביים ל-Brain-specific homeobox (Bsh) (במגנטה) בתוך קורטקס המדולה (medulla cortex) ונוירופילים המסומנים עם anti-Bruchpilot (Brp, כחול). אוריינטציה זו מספקת מבט קדמי על הלמינה (lamina), המדולה, הלובולה (lobula) ולוח הלובולה (lobula plate) ההיקפיים. (C) תמונה מייצגת של אקסונים של פוטורספטורים המסומנים עם anti-Chaoptin (Chp, צהוב) המושלחים אל הנוירופילים של הלמינה והמדולה. (D) תרשים הממחיש את אוריינטציית הקיבוע האחורית של מוח בוגר, כאשר הפני השטח האחוריים פונים לכיסוי הזכוכית. (E) תמונת קונפוקל מייצגת של מערכת הראייה של בוגר המקובעת באופן אחורי, המדגישה את השכבות העמוקות יותר של נוירופיל המדולה המסומנים עם anti-Brp. (F) מבט אחורי של אקסונים של פוטורספטורים המסומנים עם anti-Chaoptin (Chp, צהוב) המראה את המיקוד שלהם בתוך נוירופיל המדולה. (G) תרשים הממחיש את אוריינטציית הקיבוע הצדית של מוח בוגר, כאשר אונה אופטית אחת ממוקמת במקביל לכיסוי הזכוכית כדי להדמיות את הארגון הכללי של מערכת הראייה. (H) מבט צדי מייצג של האונה האופטית בבוגר המראה נוירוני למינה חיוביים ל-Bsh (L4 ו-L5) ונוירוני Mi1 של המדולה (במגנטה), יחד עם נוירופילים המסומנים עם anti-Brp (כחול), החושפים את הארגון המרחבי של הלמינה, המדולה, הלובולה ולוח הלובולה. (I) תמונה מייצגת של אקסונים של פוטורספטורים המסומנים עם anti-Chaoptin (Chp, צהוב) המושלחים אל נוירופילים של הלמינה והמדולה המסומנים עם anti-Brp (כחול). סרגל קנה מידה = 50 µm. קיצורים: Me = Medulla; La = Lamina; Lo = Lobula; Lop = Lobula plate. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
דיון
פרוטוקול זה מספק שיטה מהימנה לניתוח, צביעה אימונוהיסטוכימית והשבעה של מערכות ראייה של זחלים ומבוגרים של Drosophila עבור דימוי קונפוקאלי ברזולוציה גבוהה. ההליך שומר על השלמות המבנית והמורפולוגיה של האונות האופטיות בשלבי התפתחותן ובבגרותן, תוך אספקת אוריינטציות השבעה המאפשרות ויזואליזציה אופטימלית של תהליכי התפתחות מרכזיים, אוכלוסיות נוירונליות ומבני נוירופיל. דוגמאות מייצגות המתוארות כוללות את המעבר מנוירואפיתל לנוירובלסט (NE-to-NB), תבניתיות מרחבית-זמנית בתוך המדולה, תכוון של אקסונים של פוטורספטורים באונה האופטית והארגון של נוירופילים במערכת הראייה של המבוגר9,10,13,14,23. לפיכך, פרוטוקול זה מציע מסגרת גמישה שניתן להתאימה בקלות לוויזואליזציה של תהליכים או סוגי תאים אחרים בכל שלב התפתחותי.
בהשוואה לשיטות שפורסמו בעבר, פרוטוקול זה משלב הליכים מותאמים עבור מערכות ראייה של Drosophila בשלב הזחל ובשלב הבוגר, ומציע מספר אוריינטציות של קיבוע המותאמות לשאלות ניסוייות שונות. למרות שמספר פרוטוקולים שפורסמו מתארים דיסקציה וצביעה אימונוהיסטוכימית של מוח Drosophila28,29,30,31,32, מעט מהם מתמקדים ספציפית במערכת הראייה בהקשר של תהליכים התפתחותיים27. הפרוטוקול מתאר שיטת דיסקציה חלופית לזחלים המשתמשת במזרקים זמינים של 1 mL במקום בפינצטות עדינות ייעודיות. למרות שגישה זו דורשת עקומת למידה תלולה יותר, היא מציעה חלופה נקייה, זולה ומהירה שעשויה להיות בעלת ערך רב במיוחד למעבדות הוראה ולקבוצות מחקר עם גישה מוגבלת לציוד דיסקציה ייעודי. למיטב הבנתנו, שיטת דיסקציה זו פחות מאמצת את המוח מאשר שיטת הפינצטות, השואבת את המוח במהלך הדיסקציה ולעתים קרובות גורמת לפגיעה בו. יתרה מכך, פרוטוקול הצביעה האימונוהיסטוכימית שלנו משתמש באופן מושכל בתערובות נוגדים בנפחים מופחתים מבלי לפגוע באיכות הצביעה, ובכך חוסך בנוגדים מסחריים שיקרים לרוב. יחד, מאפיינים אלו מספקים יתרונות מעשיים מבחינת נגישות, דיסקציה וקיבוע, תוך שהם מאפשרים התאמה מהירה של הפרוטוקול לדרישות ניסוייות שונות.
יישום מוצלח של הפרוטוקול תלוי בתשומת לב קפדנית למספר שלבים מרכזיים. ניתן לטפל באתגרים נפוצים בדרך כלל על ידי התאמת נהלי הדיסקציה, הקיבוע, הצביעה או ההרכבה. מאמץ מכני מופרז במהלך דיסקציה, טלטול או פיפטינג עלול לגרום לנזק לרקמה או לפרגמנטציה. לכן, יש לבצע את הדיסקציות במהירות ב-PBS קר בקרח, תוך שימוש בתנועות עדינות בעת הסרת רקמות סובבות ובמהלך הטלטול והפיפטינג שלאחר מכן. קיבוע לקוי, המזוהה על ידי עיוות של הרקמה, אובדן של המורפולוגיה או צביעה לא עקבית, עלול לנבוע מזמן קיבוע לא מספיק או מתמיסת קיבוע לא מתאימה. שימוש בתמיסת פורמלהיד שהוכנה טרייה וטבילה מלאה של הרקמה במהלך הקיבוע מסייעים בשמירה על מורפולוגיית הרקמה ועל עקביות הצביעה. צביעה חלשה או לא אחידה עלולה לנבוע מפרמבליזציה לא מספיקה, חדירת נוגדנים לא הולמת או אינקובציה לא אופטימלית של נוגדנים. הגברת הפרמבליזציה או הארכת זמן האינקובציה של הנוגדנים, ובמידת הצורך הארכת האינקובציה של הנוגדן הראשוני ב-4 °C, עשויות לשפר את חדירת הנוגדנים ואת הצביעה. צביעת רקע גבוהה עלולה לנבוע מחסימה או שטיפה לא מספקות, או מרכז נוגדנים גבוה מדי. חסימה ושטיפה נאותות, יחד עם התאמה מתאימה של ריכוז הנוגדנים, יכולות לסייע בהפחתת צביעה לא ספציפית. אוריינטציה שגויה של ההרכבה עלולה להסתיר את אזור העניין או למקם אותו רחוק מדי מהזכוכית. ארגון מחדש של המוח בהתאם לסימנים האנטומיים המתוארים בפרוטוקול ומיקום אזור העניין קרוב לזכוכית יכולים להקל על הדמיה של המאפיין האנטומי הנכון.
למרות הגמישות שלו, ייתכן שיהיה צורך בהתאמה של הפרוטוקול עבור רקמות ספציפיות, שלבים התפתחותיים, נוגדנים ודרישות דימוי. לדוגמה, רקמות מסוימות עשויות להפיק תועלת מקיבוע קצר יותר על קרח, בעוד שנוגדנים מסוימים עשויים לדרוש דגירה ממושכת ב-4 °C למשך עד שבוע, או לחלופין, דגירה קצרה יותר ב-22–25 °C. ניתן להעריך את איכות הקיבוע על ידי שימור המורפולוגיה הכללית של המוח ואונה האופטית, גבולות רקמה ברורים, ומינימום של עיוות, פרגמנטציה או ניתוק. באופן דומה, ניתן להעריך פרמיאביליזציה הולמת על ידי צביעה אחידה יחסית של הנוגדנים לאורך כל הרקמה, המעידה על חדירה מספקת של הנוגדנים. שיקולים אלו מאפשרים גמישות בהתאמת תנאי הקיבוע, הפרמיאביליזציה, הצביעה וההרכבה ליישום הניסויי הספציפי, תוך שימור מערכת הראייה של ה-Drosophila.
גילויים
המחברים מצהירים כי אין ניגודי עניינים. המחברים סקרו ואישרו את כל העריכות הסופיות.
כלי לעריכת שפה (Grammarly) שימש לתיקון שגיאות כתיב ולניסוח מחדש של משפטים.
תודות
הנוגדנים המונוקלונליים Brp, Dac, DE-Cad ו-Chp הושגו מה-Developmental Studies Hybridoma Bank, שהוקם על ידי ה-NICHD של ה-NIH ומתוחזק באוניברסיטת אייווה, המחלקה לביולוגיה, Iowa City, IA 52242. A.B., A.R. ו-C.S. זכו לתמיכה מ-Tamkeen באמצעות ה-NYU Abu Dhabi Research Institute Award למרכז הגנומיקה וביולוגיית מערכות של NYU Abu Dhabi (ADHPG-CGSB) ומאת NIH RO1 EY017916 ל-C.D.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| סיכות קיבוע לחרקים Austerlitz, 0.15mm | Fine Science Tools | 26002-15 | |
| נוגדן: Mouse anti-Brp | Developmental Studies Hybridoma Bank | nc82 | דילול 1:50 |
| נוגדן: Mouse anti-Chp | Developmental Studies Hybridoma Bank | 24B10 | דילול 1:50 |
| נוגדן: Rat anti-DE-CAD | Developmental Studies Hybridoma Bank | DCAD2 | דילול 1:20 |
| נוגדן: Mouse anti-Dac | Developmental Studies Hybridoma Bank | mAbdac1-1 | דילול 1:100 |
| נוגדן: Sheep anti-GFP | BioRad | 4745-1051 | דילול 1:200 |
| נוגדן: Rabiit anti-Bsh | Desplan lab | - | דילול 1:1000 |
| נוגדן: Guinea pig anti-Hth | Desplan lab | - | דילול 1:100 |
| נוגדן: Guinea pig anti-TfAP-2 | Desplan lab | - | דילול 1:500 |
| נוגדן: Rabbit anti-Ey | Desplan lab | - | דילול 1:200 |
| נוגדן: Rat anti-Erm | Desplan lab | - | דילול 1:100 |
| נוגדן: Guinea pig anti-Rx | Desplan lab | - | דילול 1:300 |
| נוגדן: Rabbit anti-Vsx | Desplan lab | - | דילול 1:100 |
| נוגדן: Donkey anti-mouse IgG מצומד ל-Alexa Fluor 405 | Abcam | ab175658 | דילול 1:250 |
| נוגדן: Donkey anti-mouse IgG מצומד ל-Alexa Fluor 488 | Jackson ImmunoResearch | 715-547-003 | דילול 1:400 |
| נוגדן: Donkey anti-mouse IgG מצומד ל-Alexa Fluor 555 | ThermoFisher Scientific | A31570 | דילול 1:500 |
| נוגדן: Donkey anti-mouse IgG מצומד ל-Alexa Fluor 647 | Jackson ImmunoResearch | 715-605-151 | דילול 1:250 |
| נוגדן: Donkey anti-guinea pig IgG מצומד ל-Alexa Fluor 405 | Jackson ImmunoResearch | 706-475-148 | דילול 1:250 |
| נוגדן: Donkey anti-guinea pig IgG מצומד ל-Alexa Fluor 555 | Sigma-Aldrich | SAB4600297-5OUL | דילול 1:500 |
| נוגדן: Donkey anti-guinea pig IgG מצומד ל-Alexa Fluor 647 | Jackson ImmunoResearch | 706-605-148 | דילול 1:250 |
| נוגדן: Donkey anti-rabbit IgG מצומד ל-Alexa Fluor 405 | Abcam | ab175651 | דילול 1:250 |
| נוגדן: Donkey anti-rabbit IgG מצומד ל-Alexa Fluor 555 | Invitrogen | A31572 | דילול 1:500 |
| נוגדן: Donkey anti-rat IgG מצומד ל-Alexa Fluor 555 | Abcam | Ab150154 | דילול 1:500 |
| נוגדן: Donkey anti-sheep IgG מצומד ל-Alexa Fluor 488 | Jackson ImmunoResearch | 713-545-147 | דילול 1:400 |
| מזרק BD 1ml כולל מחט 25g x 16mm, 120 יחידות | BD | 303175 | |
| אלבומין משרת בקר (BSA), 30% | Sigma-Aldrich | A7284-50ML | |
| לוחית כיסוי מזכוכית 18 x 18 mm | VWR | 631-0120 | |
| לוחית כיסוי מזכוכית 24 x 24 mm | VWR | 631-0126 | |
| סרט דביק דו-צדדי 19mm x 33m | Scotch | AMS12354 | |
| זבוב: Canton S | BDSC | 64349 | |
| זבוב: Optix-GAL4 | Kyoto | 104266 | |
| זבוב: nls-GFP/CyO-YFP | BDSC/ Desplan lab | 4775 | |
| Flystuff Drosophila Ultimate Flypads | Genesee Scientific Corporation | 59-172B | |
| דלי קרח עם מכסה, עגול, 4L, כחול | Corning | 432123 | |
| תוכנת עיבוד תמונה (FIJI) | (National Institutes of Health, Bethesda, MD, USA) | Fiji/ImageJ2 version 2.16.0/1.54p | |
| מגבונים מדויקים Kimtech Science | Kimberly-Clark Professional | 05511 | |
| סרט איטום למעבדה | Parafilm M | PM-996 | |
| שקופיות למיקרוסקופ | VWR | 8037/1 | |
| צנטריפוגה קטנה | VWR | 521-2848 | |
| לק | Mumuso | 2023/11/05 | |
| סרום עיזים רגיל | Sigma-Aldrich | G9023 | |
| מברשת צבע | Camlin | S-66 | |
| פראפורמאלדהיד (PFA) | Sigma | P6148 | |
| צלחיות פטרי 100mm x 15mm | Falcon | 351029 | |
| סליין בבופר פוספט (PBS) | Sigma | P5493 | |
| לוחיות בדיקה מזכוכית עם 9 שקעים PYREX® | Corning | 7220-85 | |
| רוקר (שולחני) | Fisherbrand | 8861025 | |
| מבחנות Safelock 1.5mL | Eppendorf | O219706H | |
| מדיום Schneider's לחרקים | Sigma | S0146 | |
| חומר למניעת דהייה Slowfade gold antifade | Invitrogen | S36936 | |
| אלסטומר סיליקון Sylgard 184 | Dow | 4019862 | |
| TritonX-100 | Sigma | 93426 | |
| מחטי טונגסטן 0.25 mm | Fine Science Tools | 10130-10 | |
| מחטי טונגסטן 0.5 mm | Fine Science Tools | 10130-20 | |
| דבק רב-תכליתי UHU | UHU | 40815 | |
| פינצטה עדינה במיוחד | WPI | 500235 | |
| חומר קיבוע למניעת דהייה Vectashield | Vector | H-1000 | |
| מערבל וורטקס | VWR | VM-3000 |
מקורות
- Nériec N, Desplan C. From the Eye to the Brain: Development of the Drosophila Visual System. Curr Top Dev Biol. 2016;116:247–71.
- Montell C. Drosophila visual transduction. Trends Neurosci. 2012;35(6):356–63.
- Currier TA, Pang MM, Clandinin TR. Visual processing in the fly, from photoreceptors to behavior. Genetics. 2023;224(2),1–28.
- Fischbach KF, Dittrich APM. The optic lobe of Drosophila melanogaster. I. A Golgi analysis of wild-type structure. Cell Tissue Res. 1989;258(3):441–75.
- Dorkenwald S, et al. Neuronal wiring diagram of an adult brain. Nature. 2024;634(8032):124–38.
- Matsliah A, et al. Neuronal “parts list” and wiring diagram for a visual system. bioRxiv: The Preprint Server for Biology. Preprint posted online April 2024.
- Younossi-Hartenstein A, Nassif C, Green P, Hartenstein V. Early neurogenesis of the Drosophila brain. J Comp Neurol. 1996;370(3):313–29.
- Zhang Y, Li X. Development of the Drosophila Optic Lobe. Cold Spring Harb Protoc. 2024;2024(3):108156.
- Apitz H, Salecker I. A Challenge of Numbers and Diversity: Neurogenesis in the Drosophila Optic Lobe. J Neurogenet. 2014;28(3-4):233–49.
- Egger B, Gold KS, Brand AH. Notch regulates the switch from symmetric to asymmetric neural stem cell division in the Drosophila optic lobe. Development. 2010;137(18):2981–7.
- Sato M, Yasugi T, Minami Y, Miura T, Nagayama M. Notch-mediated lateral inhibition regulates proneural wave propagation when combined with EGF-mediated reaction diffusion. Proc Natl Acad Sci U S A. 2016;113(35):E5153–62.
- Wang W, et al. Notch signaling regulates neuroepithelial stem cell maintenance and neuroblast formation in Drosophila optic lobe development. Dev Biol. 2011;350(2):414–28.
- Yasugi T, Sugie A, Umetsu D, Tabata T. Coordinated sequential action of EGFR and Notch signaling pathways regulates proneural wave progression in the Drosophila optic lobe. Development. 2010;137(19):3193–203.
- Bakshi A, Ben El Kadhi K, Desplan C. Decoding neuronal diversity: Mechanisms governing neural cell fate in Drosophila. Curr Opin Neurobiol. 2025;93.
- Holguera I, Desplan C. Neuronal specification in space and time. Science (1979). 2018;362(6411):176–80.
- Konstantinides N, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316–22.
- Li X, et al. Temporal patterning of Drosophila medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456–62.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila visual center. Dev Biol. 2013;380(1):12–24.
- Chen YC, et al. Single-locus chromatin memory enables flexible spatial fate specification in the Drosophila visual system. bioRxiv. Published online August 21, 2026:2026.08.09.743789.
- Erclik T, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365–70.
- Simon F, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila optic lobe. Nat Neurosci. 2026;29(5):1068–78.
- Bhattacharya A, Rao H, Sen SQ. Chromatin priming and Hunchback recruitment integrate spatial and temporal cues in Drosophila neuroblasts. eLife15:RP110150.
- Bostock MP, Prasad AR, Donoghue A, Fernandes VM. Photoreceptors generate neuronal diversity in their target field through a Hedgehog morphogen gradient in Drosophila. Elife. 2022;11:e78093.
- El-Danaf RN, et al. Morphological and functional convergence of visual projection neurons from diverse neurogenic origins in Drosophila. Nat Commun. 2025;16(1):1–15.
- Pinto-Teixeira F, et al. Development of Concurrent Retinotopic Maps in the Fly Motion Detection Circuit. Cell. 2018;173(2):485–98.
- Xu C, Ramos TB, Rogers EM, Reiser MB, Doe CQ. Homeodomain proteins hierarchically specify neuronal diversity and synaptic connectivity. Elife. 2023;12:RP90133.
- Arain U, Valentino P, Islam IM, Erclik T. Dissection, Immunohistochemistry and Mounting of Larval and Adult Drosophila Brains for Optic Lobe Visualization. J Vis Exp. 2021;(170):e61273.
- Zhang Y, Li X. Immunostaining of Drosophila Brains to Study Optic Lobe Development. Cold Spring Harb Protoc. 2024;2024(3):108157.
- Daul AL, Komori H, Lee CY. Immunofluorescent staining of Drosophila larval brain tissue. Cold Spring Harb Protoc. 2010;2010(7):pdb.prot5460.
- Sweeney ST, Hidalgo A, de Belle JS, Keshishian H. Dissection of adult Drosophila brains. Cold Spring Harb Protoc. 2011;2011(12):1472–4.
- Tito AJ, Cheema S, Jiang M, Zhang S. A Simple One-step Dissection Protocol for Whole-mount Preparation of Adult Drosophila Brains. J Vis Exp. 2016;(118):55128.
- Wu JS, Luo L. A protocol for dissecting Drosophila melanogaster brains for live imaging or immunostaining. Nat Protoc. 2006;1(4):2110–5.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב