מתוארת שיטה מפורטת להערכת פנוטיפים מוטנטיים של גנים רלוונטיים ולקביעת תפקידם בהיתוך מיובלאסטים באמצעות עוברים של Drosophila. גישה זו מאפשרת אפיון שיטתי של תפקוד גנים במהלך התפתחות השרירים העוברית.
מאמר שיטה
ניתוח גנטי, פנוטיפי וכמותי של היתוך מיובלאסטים בעוברים של Drosophila
במאמר זה
סיכום
תקציר
היתוך של מיובלסטים חד-גרעיניים לסנציטיה רב-גרעינית הוא תהליך בסיסי בהתפתחות השריר השלדי. Drosophila melanogaster היא מודל עוצמתי וניתן לטיפול גנטי להערכה מהירה ויעילה של תפקודם של גנים מועמדים המעורבים בתהליך זה. כאן, אנו מתארים פרוטוקול מקיף עם הוראות שלב-אחר-שלב לניתוח הפנוטיפ של היתוך מיובלסטים בעוברים של Drosophila . שיטה זו כוללת בחירת קו מוטנטי עבור הגן המועמד, איסוף וקיבוע של עוברים, צביעה אימונוהיסטוכימית של דגימות שלמות (whole-mount), קביעת שלבי התפתחות, דימיון קונפוקלי וניתוח פנוטיפי. צביעת שרשראות כבדות של מיוזין (MHC) משמשת להדמיות של מורפולוגיית השריר הכללית ולזיהוי מיובלסטים חד-גרעיניים שאינם מותכים. במקביל, צביעת Even-skipped (Eve) מסמנת גרעינים בתוך סיב שריר ספציפי, מה שמאפשר ניתוח כמותי של מידת ההיתוך על ידי ספירת הגרעינים שנ incorporated לתוך אותו סיב. יחד, פרוטוקול זה מאפשר לקוראים להעריך את הפנוטיפים המוטנטיים של כל גן רלוונטי ולבחון את תפקידם בהיתוך מיובלסטים. גישה זו מספקת מסגרת איתנה לזיהוי ואפיון של רגולטורים חדשים של היתוך מיובלסטים.
מבוא
שריר השלד הוא הרקמה השכיחה ביותר בגוף האדם, והוא מהווה יותר מ-30% מסך משקל הגוף. במהלך ההתפתחות העוברית, סיבי שריר השלד נוצרים באמצעות התמזגות של תאי שריר בעלי גרעין אחד, המכונים מיובלסטים (myoblasts), לכדי סיבי שריר סינציטליים רב-גרעיניים1,2. תהליך זה חיוני להיווצרות תקינה של השריר, לצמיחתו ולתפקודו, ושיבושו קשור להפרעות שריריות רבות3,4. בדומה לשריר השלד של חולייתנים, סיבי השריר רב-הגרעיניים המרכיבים את שרירי דופן הגוף העובריים והלרואליים ב-Drosophila melanogaster נוצרים אף הם באמצעות התמזגות של מיובלסטים בעלי גרעין אחד5,6,7,8. ב-Drosophila, ההיתוך מתרחש בין שני סוגים של תאי שריר, תאי מייסד שריר (muscle founder cells) ומיובלסטים בעלי יכולת התמזגות (FCMs), בסינפסה פוסיגנית אסימטרית9,10,11,12,13. חשוב לציין כי האירועים התאיים והמנגנונים המולקולריים השולטים בהיתוך המיובלסטים שמורים מאוד בין Drosophila לחולייתנים14,15,16, מה שהופך את ה-Drosophila לאורגניזם מודל רב-עוצמה לחקר הבסיס הגנטי והתאי של התמזגות מיובלסטים.
מודל ה- Drosophila מציע גם מספר יתרונות ניסיוניים. ראשית, מחזור החיים הקצר של ה- Drosophila (~10 ימים ב- 25 °C) מאפשר הכלאות גנטיות מהירות ויצירה יעילה של שורות מוטנטים. שנית,ועיים של Drosophila הם קטנים וחדירים בקלות לנוגדנים לאחר קיבוע, מה שמאפשר צביעה אימונוהיסטוכימית של רקמה שלמה (whole-mount immunostaining) ודימוי ברזולוציה גבוהה של התפתחות השרירים ללא צורך בניתוח רקמות. שלישית, התפתחות השרירים העובריים ב- Drosophila עוקבת אחר תבנית סטריאוטYפית מאוד, עם 30 סיבי שריר הנמצאים ברוב חצאי-המקטעים (hemisegments) הבטניים. כל סיב שריר נקבע על ידי תא מייסד יחיד המתמזג עם מספר מוגדר של FCMs (בין 3 ל-30)17, מה שמאפשר ניתוח כמותי וניתן לשחזור של מיזוג מיובלאסטים. לבסוף, אוספים הזמינים לציבור של מוטנטים גנטיים ושורות דפיציאנסיה (deficiency lines) הנושאות מחיקות כרומוזומליות, מאפשרים ניתוחי loss-of-function מהירים של כמעט כל הגנים ללא צורך ביצירה ממושכת של מוטנטים de novo.
מוצג פרוטוקול מפורט להערכת פנוטיפים של היתוך מיובלסטים בעוברים של Drosophila (איור 1). הפרוטוקול כולל אסטרטגיות לבחירת אללים מוטנטיים מתאימים, איסוף וקיבוע של עוברים, צביעה אימונוהיסטוכימית של העובר כולו (whole-mount), דימוג של העוברים וניתוח כמותי של פנוטיפי ההיתוך. יחד, נהלים אלו מספקים זרימת עבודה מהירה ויעילה לניתוח גנטי של גנים מועמדים המעורבים בהיתוך מיובלסטים.
פרוטוקול
1. בחירת מקרי מוטנטים לניתוח גנטי של התמזגות מיובלסטים
- חפשו זני מוטנטים של הגן המבוקש ב-FlyBase. פתחו את דף הדוח של הגן הרלוונטי וסקרו את אללי המוטנט המופיעים תחת הסעיף “Alleles, Insertions, Constructs, and Aberrations”.
- בחרו אללי null או אלליים עם אובדן תפקוד (loss-of-function) חזק על ידי בחינת הנזקים המולקולריים המדווחים עבור כל אלל. תנו עדיפות לאללים המכילים מוטציות nonsense, מוטציות הזזה של מסגרת הקריאה (frameshift), מחיקות (deletions) או הכנסות (insertions) המשבשות את תפקוד הגן.
- מקמו את אלל המוטנט הנבחר מעל כרומוזום מאזן (balancer chromosome) הנושא סמן פלואורסצנטי, כדי להבדיל בין עוברים מוטנטים הומוזיגוטיים לבין אחים הנושאים את המאזן. בחרו מאזן פלואורסצנטי מתאים בהתאם לכרומוזום הנושא את אלל המוטנט (Table 1).
2. איסוף וקיבוע של עוברים של Drosophila
- הכינו כוסות לאיסוף עוברים על ידי יצירת חורי אוורור מרובים בדפנות ובתחתית של כוסות פלסטיק בנקר בנפח 100 mL באמצעות מחט 25 G (איור 1).
- הכינו אגר מיץ ענבים על ידי ערבוב של 15 g אגר עם 400 mL מים מזוקקים (dH₂O) ואוטוקלאב ב-121 °C למשך 21 min. צננו את האגר המומס עד שחומתו תהיה נסבלת למגע יד.
- חממו 100 mL של מיץ ענבים בריכוז 100% עד שחומתו תהיה נסבלת למגע יד וערבבו היטב עם האגר המומס. חלקו כ-10 mL לכל צלחת תרבית של 60 mm, אפשרו לצלחות להת굳ד בטמפרטורת החדר ושמרו אותן ב-4 °C.
- הכינו משחת שמרים טרייה על ידי ערבוב של 10 g שמרים יבשים ב-15 ml dH₂O עד לקבלת מרקם חלק וניתן למריחה. מרחו את המשחה במרכז צלחת אגר מיץ ענבים וחממו מראש את הצלחת ל-25 °C (איור 1).
הערה: שמרו משחת שמרים מוכנה ב-4 °C למשך עד שבועיים. - העבירו זבובים בוגרים בני 3–7 ימים, ההטרוזיגוטים לאלל מוטנטי ולמאזן פלורסצנטי מתאים, אל כוסות האיסוף.
הערה: השתמשו בזבובים מסוג wild-type, כגון w1118, כביקורת. כ-50–80 נקבות ו-40–50 זכרים מספיקים לכוס איסוף אחת. - הניחו צלחת אגר מיץ ענבים שחוממה מראש מעל כוס האיסוף ואבטחו אותה באמצעות גומיות (איור 1). דגרו את כוס האיסוף ב-25 °C למשך 12 h.
- הקישו בעדינות על כוס האיסוף כדי לשחרר את הזבובים והחליפו את הצלחת בצלחת טרייה שחוממה מראש. חזרו על החלפת הצלחת מדי 12 h למשך יומיים כדי להסגיר את הזבובים.
הערה: חממו מראש כל צלחת ל-25 °C לפני השימוש, כיוון שהטלת ביצים פוחתת על צלחות קרות. - החליפו את הצלחת בצלחת טרייה שחוממה מראש לאחר תקופת ההסגירה של יומיים. אפשרו לזבובים להטיל ביצים במהלך הלילה למשך 14–15 h.
- מלאו מבחנה למיקרוצנטריפוגה בנפח 1.5 mL ב-0.1% (v/v) Triton X-100 במים מזוקקים. אספו את העוברים מהצלחת באמצעות מכחול שהושרה מראש ב-0.1% Triton X-100, ולאחר מכן העבירו אותם למבחנה.
- נערה את המבחנה בעוצמה כדי לתלה מחדש את העוברים ולהסיר שאריות של משחת שמרים. אפשרו לעוברים לשקוע, ולאחר מכן שטפו עם 0.1% Triton X-100 לפחות 3 פעמים, או עד שהתמיס הופך שקוף (איור 1).
- הוסיפו 1.5 mL של אקונומיקה ביתית בריכוז של כ-50% כדי להגיע לריכוז סופי של נתרן היפוכ לוריט של 2.85%. בצעו נוטציה (ערבוב איטי) למשך 3 min כדי לבצע דה-כוריונציה (dechorionate) לעוברים.
הערה: הימנעו מחשיפה ממושכת לאקונומיקה, שכן דה-כוריונציה יתר עלולה לפגוע בעוברים ולפגוע בצביעה אימונוהיסטוכימית עוקבת. - אפשרו לעוברים לשקוע, הסירו את האקונומיקה ושטפו 3 פעמים עם 0.1% Triton X-100.
- הסירו את תמיסת השטיפה הנותרת והוסיפו 700 µL של 3.7% פורמאלדהיד בבופר פוספט (PBS) ו-700 µL של הפטן.
זהירות: טפלו בפורמאלדהיד ובהפטן בתוך מופה ובצעו להם סילוק בהתאם לנהלי בטיחות כימיים מתאימים. - סגרו את המבחנה היטב ונערה בעוצמה למשך 30 s. בצעו נוטציה לעוברים למשך 30 min להשלמת הקיבוע.
- אפשרו לעוברים להצטבר בממשק שבין פאזת ההפטן העליונה לפאזה המימית התחתונה (איור 1). הסירו בזהירות את הפאזה המימית מבלי להפריע לעוברים.
- הוסיפו כ-700 µL של מתנול ונערה בעוצמה למשך 30 s כדי לבצע דה-ויטליניזציה (devitellinize) לעוברים.
הערה: עוברים שעברו דה-ויטליניזציה בהצלחה שוקעים לתחתית המבחנה, בעוד שקרומי ויטלין שהסתלקו נשארים בממשק (איור 1).
זהירות: טפלו במתנול בתוך מופה ובצעו לו סילוק בהתאם לנהלי בטיחות כימיים מתאימים. - הסירו את ההפטן והמתנול תוך שמירה על העוברים מכוסים בנפח קטן של מתנול. שטפו את העוברים פעמיים במתנול.
- בצעו רהידרציה לעוברים על ידי שטיפה של שלוש פעמים עם PBST (0.1% Triton X-100 ב-PBS) למשך 5 min לכל שטיפה על נוטטור. הגנו על העוברים מאור במהלך שלב זה ובכל השלבים הבאים.
הערה: השאירו את העוברים מכוסים בתמיסה לאחר הדה-ויטליניזציה כדי למנוע התייבשות ולשמר את מורפולוגיית העובר. מזעו את החשיפה לאור סביבתי כדי לשמר חלבונים פלורסצנטיים ונוגדנים מצומדים לפלואורופור.
3. ביצוע צביעה אימונוהיסטוכימית של דגימה שלמה (whole-mount immunostaining)
- הסיר את ה-PBST והדגר את העובריים ב-1.5 mL PBSBT (0.5% BSA (w/v) ו-5 mM NaN3 ב-PBST) למשך שעה אחת לפחות בטמפרטורת החדר על נוטטור (nutator).
- גזור את קצה טיפ הפפיטה כדי ליצור פתח רחב יותר ולמזער נזק מכני במהלך העברת העובריים.
- העבר את העובריים שעברו חסימה לשפופרת מיקרוצנטריפוגה של 0.5 mL והסר את תמיסת החסימה. הוסף 200−300 µL של PBSBT טרי המכיל נוגדן anti-MHC (בדילול 1:500)18 ו/או נוגדן anti-Eve (בריכוז 0.5 µg/mL).
- הדגר את העובריים עם הנוגדנים הראשוניים למשך הלילה ב-4 °C על נוטטור.
הערה: בצע צביעה משולבת של anti-Eve לצורך ניתוח כמותי לאחר זיהוי פנוטיפ של היתוך מיובלסטים. ניתן להשתמש בנוגדן anti-MHC משפנפן או מחולדה כדי להדגים את מערכת השרירים העוברית של Drosophila. - הסר את תמיסת הנוגדן הראשוני ושטוף את העובריים שלוש פעמים עם PBST למשך 10 דקות לכל שטיפה על נוטטור.
הערה: אחסן את תמיסת הנוגדן הראשוני ב-4 °C לשימוש חוזר במידת הצורך. ניתן בדרך כלל להשתמש בתמיסה עד שלוש פעמים בתוך חודש אחד. - הדגר את העובריים ב-300 µL PBSBT המכיל נוגדנים משניים פלואורסצנטיים מתאימים בדילול של 1:500 למשך שעתיים בטמפרטורת החדר על נוטטור.
- הסר את תמיסת הנוגדן המשני ושטוף את העובריים שלוש פעמים עם PBST למשך 10 דקות לכל שטיפה.
- הסר את שטיפת ה-PBST האחרונה והוסף כ-80 µL של תמיסת קיבוע (mounting medium). העבר את העובריים לזכוכית כיסוי של מיקרוסקופ, הנח בעדינות זכוכית כיסוי מעל הדגימה ואטום את הקצוות (איור 1).
הערה: אחסן את הזכוכיות המוכנות ב-4 °C, מוגנות מאור, ובצע דמגון תמונות בהקדם האפשרי כדי להשיג אות פלואורסצנציה אופטימלי.
4. שלב ודימות של העוברים
- זהו עוברים בשלב 15 מאוחר על פי המורפולוגיה האופיינית בצורת לב של המעי האמצעי19 תחת תאורה בשדה בהיר (brightfield).
הערה: ביטוי חלבון MHC אינו ניתן לגילוי בעוברים בשלב 14 או מוקדם יותר. בעוברים בשלב 16, המעי האמצעי בצורת הלב עובר התהדקות ומחולק לארבעה תאים19. - זהה עוברים מוטנטים הומוזיגוטים על פי היעדר הסמן הפלואורסצנטי.
הערה: עוברים מוטנטים הומוזיגוטים אינם נושאים את הבלננסר (balancer) המסומן פלואורסצנטית; לכן, הם אינם מבטאים את החלבון הפלואורסצנטי. דלג על שלב זה עבור עוברים של ביקורת מסוג בר (wild-type). - בחר עוברים המכוונים לצד (laterally oriented) כדי להדמינ את כל השרירים הסומטיים המסומנים עם נוגדן anti-MHC.
הערה: עוברים המכוונים לגב (dorsally) או לבטן (ventrally) חושפים בעיקר את החלק התואם של מערכת השרירים. השתמש בעוברים המכוונים לצד כדי להעריך באופן מקיף פגמים בהיתוך מיובלאסטים. - כוונן את עוצמת הלייזר ואת הגבר (gain) של הגלאי כדי לקבל פלואורסצנציית MHC ברורה ללא רוויית אות, ושמור על הגדרות אלו עבור כל הדגימות בתוך כל ניסוי. הגדר את הגבול העליון והתחתון של ה-z-stack כך שיקיפו את כל העומק של השרירים הסומטיים.
- הגדר את רזולוציית התמונה ל-1024 × 1024 פיקסלים, את ה-pinhole ל-1 Airy unit, את ממוצע השורות/פריימים (line/frame average) ל-1, ואת מקדם הזוום ל-1, ושמור על הגדרות אלו עבור כל הדגימות בתוך כל ניסוי. רכוש תמונות confocal z-stack במרווחים של 1.0 µm באמצעות עדשת שמן (oil-immersion) של 40×.
- דמיין כ-6−10 עוברים לכל גנוטיפ כדי להעריך את השחזוריות של הפנוטיפ.
הערה: רכוש את ערוץ הסמן של הבלננסר הפלואורסצנטי בו-זמנית עם ערוץ ה-MHC כאשר נדרש אישור של הגנוטיפ המוטנט ההומוזיגוט.
5. דימות של שריר ה-DA1 לצורך כימות איחוי
- בצעו כסמיכה כפולה (co-staining) של MHC ו-Eve לאחר זיהוי פגם בהיתוך מיובלסטים בעוברים בעלי התמצאות צדית.
- בחרו עוברים של מוטנטים וביקורות בשלב 15 בעלי התמצאות גבית לצורך הדמיה.
הערה: Eve (Even-skipped) מבוטא באופן ספציפי בגרעינים של שריר גבי חריף 1 (DA1)20. כמתו את היתוך המיובלסטים על ידי קביעת מספר הגרעינים החיוביים ל-Eve שנ incorporated לשריר ה-DA1. - כוון את פרמטרי ההדמיה כדי לקבל פלואורסצנציית MHC ו-Eve ברורה ללא רוויה של הסיגנל. הגדירו z-stack המקיף את מלוא העומק של שריר ה-DA1 על בסיס סיגנל ה-Eve.
- רכשו תמונות z-stack קונפוקאליות באמצעות פרמטרי ההדמיה שפורטו לעיל. הדמיו כ-6–10 עוברים לכל גנוטיפ לצורך כימות ההיתוך.
6. כימות גרעיני וביצוע ניתוח סטטיסטי
- זהו את חצאי-סגמנטים (hemisegments) בטניים A1−A7 בהתאם לתבניות השרירים הסטריאוטיפיות והחוזרות שלהם.
- זהו גרעינים חיוביים ל-Eve בתוך שריר ה-DA1 המסומן ב-MHC. בחנו את כל ה-z-stack וספרו את כל הגרעינים החיוביים ל-Eve הממוקמים במישורי מוקד שונים בתוך כל שריר DA1.
הערה: כל חצי-סגמנט בטני מכיל שריר DA1 יחיד. לכן, כל הגרעינים החיוביים ל-Eve בתוך חצי-סגמנט נתון נספרים עבור שריר ה-DA1 המתאים לו. - כמתו את הגרעינים של ה-DA1 באותה קבוצה של חצאי-סגמנטים בטניים, כגון A2−A5, עבור כל עובר.
הערה: בעוד ששרירי DA1 מחצאי-סגמנטים בטניים A1−A7 מתאימים לכימות, ניתוח של כל שבעת חצאי-הסגמנטים אינו נחוץ. במקום זאת, כמתו מספר חצאי-סגמנטים לכל עובר, כגון A2−A5, ונתחו את אותה קבוצת חצאי-סגמנטים בכל העוברים כדי לשמור על עקביות. - חשבו את מספר הגרעינים הממוצע לכל שריר DA1 עבור כל עובר, והשתמשו בערך הממוצע כנקודת נתון עצמאית אחת. הזינו את נקודות הנתונים של כל עובר לתוכנה לניתוח סטטיסטי לצורך ניתוח והצגה גרפית.
- השתמשו במבחן t של Student דו-זנבי להשוואה בין שני תנאים. השתמשו ב-ANOVA חד-כיווני ולאחריו במבחן Dunnett להשוואה בין שלושה תנאים או יותר, והגדירו p < 0.05 כמובהק סטטיסטית.
תוצאות
דף הדיווח על הגן spook (spo) ב-FlyBase מוצג כדוגמה להדגמת בחירה של אלל מוטנטי מתאים. spo הוא אחד מגני ה-"Halloween" המקודדים לאנזימים המעורבים בביוסינתזה של הורמונים סטרואידיים21,22, ונמצא כי הוא מקדם היתוך של מיובלסטים23. סעיף ה-"Alleles" בדף הדיווח על הגן spo ב-FlyBase מפרט 12 אללים מוטנטיים של spo שדווחו בספרות, מתוכם ארבעה הופקדו ב-BDSC (איור 2A) והם זמינים להשגה. אם אלל רצוי אינו זמין דרך BDSC, ניתן לבקשו ישירות מקבוצת המחקר שדיווחה במקור על השבט המוטנטי.
מבין ארבעת האללים המוטנטיים הזמינים מ-BDSC, spo1 נושא מוטציית missense (G481E), בעוד ש-spoMI06810 מכיל הכנסת MiMIC בתוך הרצף המקודד הגורמת להסטה של מסגרת הקריאה (frameshift) בחומצת האמינו Y341 (איור 2B,C). מכיוון שחלבון ה-Spo מורכב מ-543 חומצות אמינו, spoMI06810 (Y341fs) צפוי להפיק חלבון קטוע החסר כ-40% מאורכו הכולל, ולכן סביר להניח שהוא מייצג אלל עם אובדן תפקוד (loss-of-function) חמור. לפיכך, spoMI06810 מועדף על פני spo1 לצורך ניתוח פנוטיפי של היתוך מיובליסטים.
היתוך המיובלסטים מתחיל במהלך שלב עוברי 12 (7.3−9.3 שעות לאחר הנחת הביצה [AEL]) ומושלם במידה רבה עד סוף שלב 15 (11.3−13.3 h AEL)24. לכן, פנוטיפים של היתוך נבחנים בדרך כלל בעוברי שלב 15 מאוחר, כאשר תבנית השריר הסומטי כבר נוצרה ומרבית אירועי ההיתוך הושלמו.
ניתן לזהות עוברים בשלב 15 על פי שני מאפיינים מורפולוגיים בולטים: השלמת הסגירה הגבית (dorsal closure) והשגת המורפולוגיה האופיינית בצורת לב של המעי האמצעי (איור 3A–C)19. ניתן להבחין בין עוברים בשלב 14 על פי התכנסות הראש (head involution) הנמשכת (איור 3A), בעוד שעוברים בשלב 15 מראים את המעי האמצעי האופייני בצורת לב (איור 3B). ניתן לזהות עוברים בשלב 16 על פי התכווצות המעי האמצעי והיווצרות ארבעה תאים (gastric caeca; איור 3C)19. בנוסף, ביטוי חלבון MHC אינו ניתן לזיהוי בשלבים מוקדמים יותר, כולל שלב 14, אך הופך למשמעותי בשלב 15 ובשלבים מאוחרים יותר (איור 3A–C).
בשלב עוברי מאוחר 15, מערכת השרירים של דופן הגוף מעוצבת באופן מלא בעוברי פרא (w1118), ורוב חצאי-הסגמנטים הבטניים מראים דפוס שרירים סטריאוטיפי וזהה במבט צדי (איור 3B). ניתן להנחית דפוס שרירים סטריאוטיפי זה באמצעות נוגדני anti-MHC מערבדי שפנים או חולדה (איור 3B,D). בניגוד לכך, סיבי שריר מעטים יותר נראים כאשר העובריים מצולמים במיקום גבי או בטני (איור 3E,F). לפיכך, דימות של עובריים במיקום צדי מאפשרת ויזואליזציה של כל מערכת השרירים של דופן הגוף ומקלה על הערכת פגמים בהיתוך המיובלאסטים.
כדי לבחון פגמים בהיתוך מיובלסטים, מצולמת שרירי דופן הגוף של עוברים מוטנטים הומוזיגוטים באוריינטציה לטראלית. מוטנטים הומוזיגוטים מזוהים על ידי היעדר סמן מאזן (balancer marker) פלואורסצנטי, כגון GFP או YFP. לדוגמה, עוברים מוטנטים הומוזיגוטים של spo שנגזרו מהורים spoMI06810/TM3, twi>UAS-GFP הם שליליים ל-GFP, בעוד שעוברים אחים הנושאים את המאזן מבטאים GFP במזודרם (איור 4B,C). בהשוואה לעוברים מסוג בר (wild-type) ועוברים אחים חיוביים ל-GFP, עוברים מוטנטים של spo מראים פגם בהיתוך מיובלסטים המאופיין בנוכחותם של מיובלסטים רבים בעלי יכולת היתוך (FCMs; איור 4A–C) שאינם מותכים.
ראוי לציין כי נצפו יותר FCMs שאינם מאוחדים בחתכים אופטיים עמוקים יותר (Z3 ו-Z4) מאשר בחתך השטחי (Z1) של עוברי מוטציה של spo (איור 4B). התפלגות זו משקפת את הארגון המרחבי של תאי המייסדים (founder cells) ושל ה-FCMs במהלך איחוד המיובלסטים העוברי. תאי המייסדים ושפורי השריר (myotubes) הגדלים ממוקמים בעיקר בשכבה השטחית של המזודרמה, בעוד שה-FCMs שוהים בשכבות עמוקות יותר לפני נדידתם אל שפורי השריר הגדלים ואיחודם עמם25. כתוצאה מכך, מיובלסטים שאינם מאוחדים נפוצים יותר בחתכים קונפוקאליים עמוקים, במיוחד בעוברי עם פגמי איחוד חלקיים. לפיכך, רכישת z-stacks המכסים את כל עומק השריריות של דופן הגוף היא הכרחית כדי למנוע הערכה חסרה של חומרת הפנוטיפ של האיחוד.
בעוד שהדמיון של מערכת השרירים הכללית של דופן הגוף בכיוון צדי מאפשר הערכה פנוטיפית של פגמים בהיתוך מיובלאסטים, ניתן לבצע ניתוח כמותי על ידי הדמיון של שריר ה-DA1 בכיוון גבי. בעוברים מסוג פרא (wild-type), שריר ה-DA1 גבוש לחלוטין ומכיל 13.03 ± 0.60 גרעינים חיוביים ל-Eve (איור 5A,C). בעוברים מוטנטיים של spo, מספר הגרעינים החיוביים ל-Eve בשריר ה-DA1 פוחת ל-8.16 ± 0.54 (איור 5B,C), מה שמעיד על פגם בהיתוך שבו פחות FCMs מתמזגים עם תא המייסד של ה-DA1. לצורך כימות עקבי וניתן לשחזור, סופרים את הגרעינים החיוביים ל-Eve בשרירי ה-DA1 של אותם חצאי-פסי בטן (A2-A5) ומחשבים את הממוצע לכל עובר, כאשר הממוצע מכל עובר משמש כנקודת נתון אחת לניתוח סטטיסטי (איור 5C).
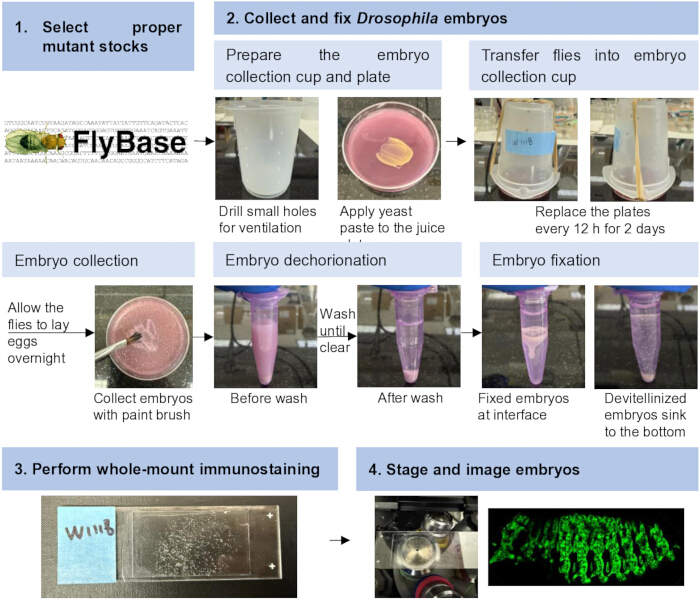
איור 1: זרימת עבודה לאנליזה גנטית, פנוטיפית וכמותית של היתוך מיובלאסטים בעוברי Drosophila. זרימת העבודה כוללת בחירה של מאגרי מוטציות מתאימים, איסוף וקיבוע של עוברי, צביעה אימונוהיסטוכימית של העובר כולו (whole-mount) והרכבה, וכן שלב השוואת גיל העוברים והדמיה. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
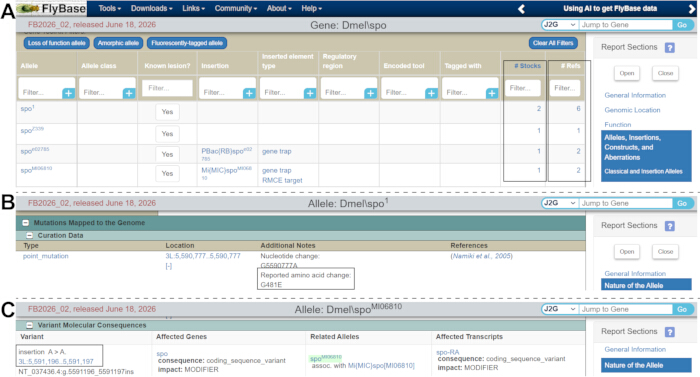
איור 2: בחירת אללים מוטנטיים באמצעות FlyBase. (A) צילום מסך של דף דוח הגן ב-FlyBase עבור spo. אללים מוטנטיים מופיעים בסעיף ה-“Alleles”. עמודת ה-Stocks (במסגרת) מציינת את מספר המאגרים הזמינים, בעוד שעמודת ה-Refs (במסגרת) מציינת את מספר המקורות הקשורים. (B,C) נגעים מולקולריים של שני אללים מוטנטיים מייצגים של spo, spo1 (B) ו-spoMI06810 (C). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
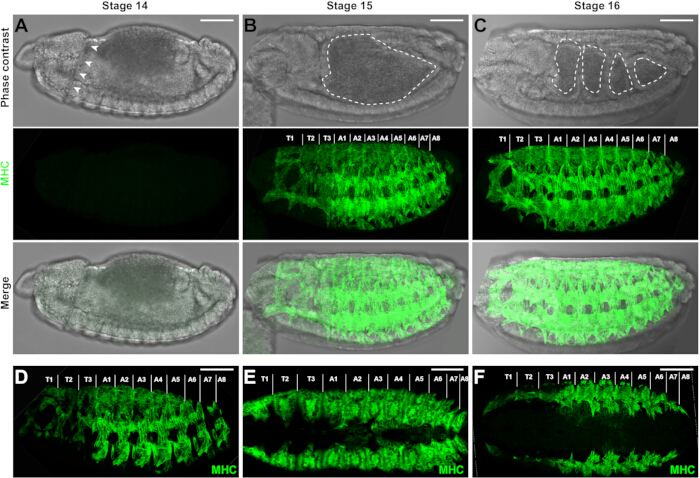
איור 3: מערכת השרירים בעוברים של Drosophila. (A–C) תמונות בניגודיות פאזה (phase-contrast), תמונות קונפוקליות של היטל-Z (z-projection) צבועות MHC, ותמונות ממוזגות של עוברים מסוג פרא (WT) בשלבים 14, 15, 16. התכנסות הראש ניכרת (ראשי חצים) בעובר בשלב 14 (A). מעיกลาง בעל צורה אופיינית של לב (קו מקווקו) נצפה בעובר בשלב 15 (B), בעוד שבשלב 16 (C) המעיกลาง מחולק לארבעה תאים מובחנים (קוים מקווקווים). ביטוי חלבון MHC אינו ניתן לזיהוי בשלב 14 (A) אך הופך למשמעותי בשלבים 15 (B) ו-16 (C). העוברים מוצגים במבט צידי, כאשר החלק הקדמי (anterior) משמאל, האחורי (posterior) מימין, הצד הגבי (dorsal) למעלה והצד הבטני (ventral) למטה. חצאי-פלחים של בית החזה (T1–T3) והבטן (A1–A8) מסומנים. (D) תמונה קונפוקלית של מבט צידי של מערכת השרירים בעובר WT בשלב 15, שהודגשה באמצעות נוגדן anti-MHC מחולדה. נוגדן anti-MHC משפנפנים שימש עבור התמונות בפאנלים האחרים. (E,F) תמונות קונפוקליות של היטל-Z במבט גבי (E) ובמבט בטני (F) של מערכת השרירים בעוברים WT בשלב 15. סיבי שריר מעטים יותר נראים במבט הגבי והבטני מאשר במבט הצידי. סרגל קנה מידה = 50 µm. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
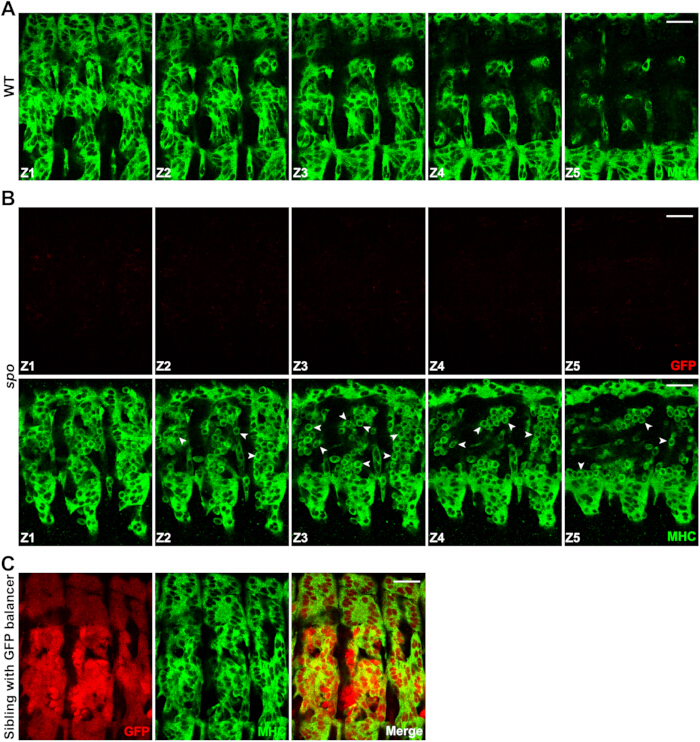
איור 4: השוואה של מערכת השרירים בין עוברים של טיפוס בר (wild-type) לעוברים מוטנטיים של spo. (A) תמונות z-stack קונפוקאליות מייצגות של שרירי דופן הגוף במבט צדי של עובר WT בשלב 15 מאוחר. היתוך המיובלסטים הושלם, ולא נצפו מיובלסטים שאינם מותכים. MHC מוצג בירוק. (B) תמונות z-stack קונפוקאליות מייצגות של שרירי דופן הגוף במבט צדי של עובר מוטנט spo שלילי ל-GFP, שהתקבל מהורים spoMI06810/TM3, twi>UAS-GFP. היעדר פלואורסצנציית GFP (באדום) מעיד כי העובר הומוזיגוט עבור spoMI06810. חצי חצים מצביעים על מיובלסטים מייצגים שאינם מותכים. נצפו יותר מיובלסטים שאינם מותכים בחתכים האופטיים העמוקים יותר (Z3 ו-Z4) מאשר קרוב לפני השטח של העובר (Z1). MHC מוצג בירוק. (C) תמונות קונפוקאליות של המבט הצדי של עובר אח חיובי ל-GFP שהתקבל מאותם הורים spoMI06810/TM3, twi>UAS-GFP. ביטוי GFP מזודרמי (באדום) המונחה על ידי התראנסגן twi>UAS-GFP על הבלנסר TM3 מבחין בין עוברים אחים חיוביים ל-GFP לבין עוברים מוטנטיים הומוזיגוטים של spo שליליים ל-GFP. MHC מוצג בירוק. סרגל קנה מידה = 20 µm. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
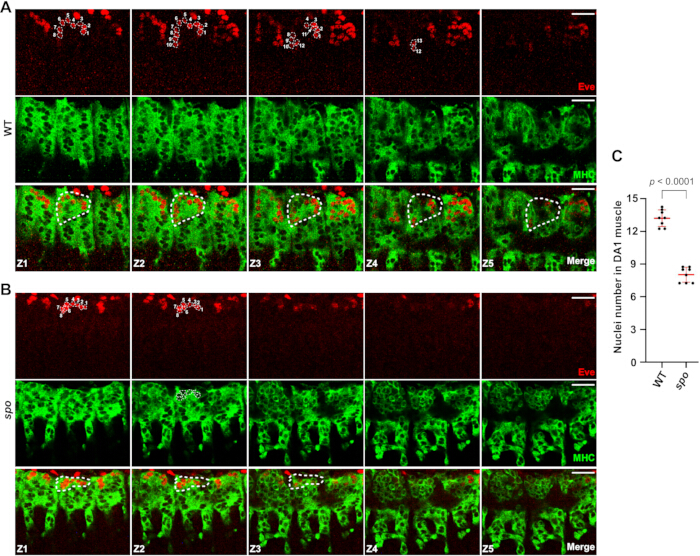
איור 5: תמונות z-stack קונפוקאליות מייצגות וכימות של שרירי DA1. (A,B) תמונות z-stack קונפוקאליות של מבטים גביים של עוברים בשלב 15 מאוחר מסוג WT (A) ומוטציית spo (B), המסומנים עם anti-MHC (ירוק) ו-anti-Eve (אדום). תמונות z-stack קונפוקאליות נרכשו לאורך כל העומק של שריר DA1 חיובי ל-Eve כדי ללכוד את כל הגרעינים בתוך השריר. גרעינים חיוביים ל-Eve מופיעים כאזורים לא צבועים בתוך אות MHC. שריר DA1 מייצג מוקף בקו מקווקו, והגרעינים החיוביים ל-Eve בתוך שריר ה-DA1 ממוספרים. (C) כימות של גרעינים חיוביים ל-Eve בשרירי DA1 של עוברי WT ומוטציית spo. שמונה עוברים כוונתו עבור כל גנוטיפ. כל נקודת נתון מייצגת את מספר הגרעינים הממוצע בשרירי ה-DA1 של המיסגמנטים (hemisegments) A2–A5 מעובר אחד. הנתונים מוצגים כממוצע ± SD (פסים אדומים). מובהקות סטטיסטית נקבעה באמצעות מבחן t של Student דו-זנבי; p < 0.0001. סרגל קנה מידה = 20 µm. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
| מספר קטלוגי של BDSC | גנוטיפ | מטרה |
| 6873 | N1/FM7c, twi>UAS-GFP | ביטוי GFP במזודרמה מאפשר זיהוי של עוברים מוטנטיים הומוזיגוטים שאינם מביעים GFP. |
| 6662 | wgGla-1/CyO, twi>UAS-GFP | |
| 6663 | ד"רמיו/TM3, twi>UAS-GFP | |
| 23229 | בז4/FM7c, Dfd-YFP | ביטוי YFP ספציפי לראש מאפשר זיהוי של עוברים מוטנטים הומוזיגוטים שאינם מבטאים YFP. |
| 23230 | ניתוח רשתות חברתיותסקו/ CyO, Dfd-YFP | |
| 23232 | ד"ר1/TM6B, Dfd-YFP |
טבלה 1: מקרי Drosophila הנושאים גן מסמן פלואורסצנטי על כרומוזומי balancer.
דיון
הפרוטוקול המתואר כאן מספק זרימת עבודה מקיפה לניתוח גנטי, פנוטיפי וכמותי של היתוך מיובלסטים בעוברים של Drosophila. באופן חשוב, תצפית על פגם בהיתוך בשורה מוטנטית מחייבת ניתוחים גנטיים נוספים כדי לתקף כי הגן המדובר הוא האחראי לפנוטיפ שנצפה. מוטציות רקע ספונטניות עשויות להצטבר במהלך תחזוקת המאגרים ולתרום לפנוטיפים מוטנטיים26. גישה אחת היא לבחון עוברים טרנס-הטרוזיגוטים שנוצרו על ידי הכלאה של האלל המוטנטי עם חסר כרומוזומלי שמוחק את הגן המדובר. תצפית על אותו פגם בהיתוך בעוברים אלו תתמוך במסקנה שהפנוטיפ נובע מהפרעה של הגן המועמד ולא ממוטציות רקע שאינן קשורות. ניסויי הצלה גנטית, כגון אלו המשתמשים במערכת GAL4/UAS27, יכולים לספק תיקוף נוסף על ידי קביעה האם ביטוי הגן המדובר משחזר היתוך מיובלסטים תקין בעוברים מוטנטים.
למרות שפרויקט שיבוש הגנים ב- Drosophila יצר אוסף זמין לציבור של שורות מוטנטים המכסות כ-75% מהגנים של Drosophila28, ייתכן שאללים מוטנטיים מתאימים, ובמיוחד אללים חזקים של אובדן תפקוד (loss-of-function), לא יהיו זמינים עבור כל גן רצוי. במקרים כאלו, שורות של חסר כרומוזומלי (chromosomal deficiency) יכולות לשמש כמשאב חלופי להערכה האם גן מועמד מעורב בהיתוך מיובלסטים. אוספי שורות החסר הזמינים כיום מכסים יותר מ-98% מהגנום האוכרומטיני של Drosophila29, ובכך מאפשרים ניתוח של אובדן תפקוד עבור כמעט כל הגנים. ניתן לזהות חסרים כרומוזומליים תחת סעיף ה-“Aberrations” בדוח הגנים של FlyBase. עם זאת, מכיוון שכל שורת חסר מסירה מספר גנים, פגם בהיתוך מיובלסטים שנצפה בעוברים הומוזיגוטיים לחסר אינו יכול להיות מיוחס לגן ספציפי בתוך האזור הכרומוזומלי שנמחק ללא תיקוף נוסף. לכן, כאשר מזוהה פגם בהיתוך באמצעות שורת חסר, יש לייצר ולנתח מוטנט של נוק-אאוט (knockout) לגן בודד כדי לקבוע את התפקיד הספציפי של הגן המועמד בהיתוך מיובלסטים.
אף שפרוטוקול זה מתמקד בניתוח פנוטיפי של מוטנטים עבור גנים בודדים בעלי עניין, ניתן להחיל את זרימת העבודה גם על סריקות חסר (deficiency screens) רחבות היקף לזיהוי רגולטורים חדשים של היתוך מיובלסטים באמצעות אוספי חסר זמינים29. בנוסף, החלפת הנוגדן ל-MHC בנוגדנים נגד רגולטורים ספציפיים של היתוך מיובלסטים מאפשרת להתאים את זרימת העבודה הכללית, כולל איסוף עוברים, קיבוע וצביעה אימונוהיסטוכימית, לבחינת לוקאליזציה של חלבונים ביחס לסינפסה הפוזוגנית. לבסוף, ניתן להתאים את השיטות המתוארות כאן לניתוח פנוטיפי של תהליכי התפתחות עובריים אחרים מעבר להיתוך מיובלסטים, ובכך להרחיב את התועלת של הפרוטוקול למגוון רחב יותר של מחקרי התפתחות.
גילויים
המחברים מצהירים כי אין להם ניגודי אינטרסים. ChatGPT 5 (OpenAI) שימש אך ורק לצורך עריכת דקדוק ושפה. הוא לא שימש ליצירת תוכן מדעי, נתונים, ניתוחים או איורים.
תודות
אנו מודים למרכז המאגרים של בלומינגטון (Bloomington stock center) על אספקת זני הזבובים. עבודה זו נתמכה על ידי מענקי NIH מספר R01AR085116 ו-R35GM136316 עבור E.H.C.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אגר | Fisher | BP1423-500 | אבקת אגר; משמשת להכנת מצע גידול מוצק. |
| אלבומין מסרום בקר (BSA) | Sigma | A7906 | אלבומין מסרום בקר; משמש להכנת תמיסות חסימה במהלך צביעה אימונוהיסטוכימית. |
| מיקרוסקופ קונפוקאלי | Leica | SP8 | מיקרוסקופ קונפוקאלי עם סריקת לייזר המשמש לדימות פלואורסצנציה של דגימות צבועות. |
| מיקרוסקופ קונפוקאלי | Nikon | A1R | מיקרוסקופ קונפוקלי עם סריקת לייזר המשמש להדמיית פלואורסצנציה של דגימות צבועות. |
| זכוכית כיסוי | Fisher | 12-545-CP | זכוכית כיסוי, 40 מ"מ × 22 מ"מ; משמש להרכבת דגימות למיקרוסקופיה. |
| צלחת תרבית | Corning | 430166 | צלחת תרבית 60 מ"מ; משמשת לטיפול, לתרבית או לעיבוד של דגימות ביולוגיות. |
| שמרים יבשים | סיגמא | YSC2 | שמרים יבשים המשמשים כמקור תזונתי לתרבית אורגניזמים. |
| פורמלהיד, 37% | פישר | BP531-500 | תמיסת פורמאלדהיד רכזת המשמשת להכנת מקבע. זהירות: רעיל ונדיף; יש לטפל בחומר תוך שימוש בציוד מגן אישי מתאים ובתוך מנדף כימי. |
| נוגדן עיזים נגד IgG של עכבר 647 | ThermoFisher | A-21236 | נוגדן משני מסוג goat anti-mouse IgG מצומד לפלואורופור לזיהוי פלואורסצנטי של נוגדנים ראשוניים מעכבר. |
| נוגדן עיזים נגד IgG של ארנב 568 | ThermoFisher | A-11036 | נוגדן משני מסוג goat anti-rabbit IgG המשוער לפלואורופור, לזיהוי פלואורסצנטי של נוגדנים ראשוניים משפנפן. |
| הפטאן | פישר | H350 | ממס אורגני המשמש במהלך קיבוע וחדירות (permeabilization) של הדגימה. אזהרה: דליק ומסוכן; יש לטפל במכסה מ புகה כימית עם ציוד מיגון אישי מתאים. |
| אינקובטור | פרסבל | I36LL | אינקובטור עם בקרת טמפרטורה המשמש לתחזוקת תרביות או אורגניזמים ניסיוניים תחת תנאים סביבתיים מוגדרים. |
| מנול | Pharmco | 339000ACSBK01 | מתנול המשמש במהלך קיבוע, התייבשות או חדירה (permeabilization) של דגימות. זהירות: דליק ורעיל; יש לטפל במטחול כימי עם ציוד מגן אישי מתאים. |
| זכוכיות מיקרוסקופ | Fisher | 12-550-15 | שקופיות זכוכית למיקרוסקופ המשמשות לקיבוע דגימות לצורך דימוי. |
| תוכה להרכבה | ThermoFisher | P36980 | תוכנית הרכבה למניעת דהייה (Antifade mounting medium) המשמשת לשימור פלואורסצנציה ולהרכבת דגימות צבועות למיקרוסקופיה. |
| נוגדן עכבר נגד Even skipped (Eve) | DSHB | 2B8 | נוגדן ראשוני מונוקלונלי מעכבר המזהה את חלבון Even skipped; משמש לצביעה אימונופלואורסצנטית. |
| נוטטור (Nutator) | Corning | 6720 | מערבל נוטטי לשולחן המעבדה המשמש לאגיטציה עדינה ורציפה של דגימות במהלך שלבי שטיפה, חסימה או אינקובציה של נוגדנים. |
| ביכר פלסטיק | סיגמא | Z245380 | הכלי הפלסטיקי בנפח 100 מ"ל משמש ליצירת כוס איסוף זבובים. |
| נוגדן ארנב נגד שרשרת כבדה של מיוזין (MHC) | — | — | נוגדן ראשוני משפחץ המזהה שרשרת כבדה של מיוזין ב-Drosophila; מקור הנוגדן תואר על ידי Kiehart and Feghali (1986), Journal of Cell Biology 103, 1517–1525. |
| נוגדן חולדה נגד שרשרת כבדה של מיוזין (MHC) | DSHB | BB7/21.14 | נוגדן ראשוני מונוקלונלי מחולדה המזהה שרשרת כבדה של מיוזין; משמש לצביעה באימונופלואורסצנציה. |
| סודיום אזיד (NaN3) | סיגמא | S8032 | סודיום אזייד המשמש כחומר משמר בתמיסות נוגדנים או בתמיסות בופר. זהירות: רעיל ביותר; יש להימנע מבליעה, שאיפה, מגע עם העור ומגע עם מתכות. |
| Triton X-100 | Fisher | AAA16046AP | חומר דטרגנט לא-יוני המשמש להגשמת ממברנות ולהכנת תמיסות שטיפה או חסימה. |
| 10× סלקסן פוספט מנוי (PBS) | פישר | BP3994 | תמיסת סליין בופר פוספט (PBS) רכז המשמשת להכנת 1× PBS לשטיפה, לדילול ולהכנת תמיסות חוצץ. |
מקורות
- Abmayr SM, Pavlath GK. Myoblast fusion: Lessons from flies and mice. Development. 2012;139(4):641-656.
- Petrany MJ, Millay DP. Cell fusion: Merging membranes and making muscle. Trends Cell Biol. 2019;29(12):964-973.
- Wherley TJ et al. Current topics in developmental biology. Vol. 158. Academic Press; 2024:53-82.
- Millay DP. Regulation of the myoblast fusion reaction for muscle development, regeneration, and adaptations. Exp Cell Res. 2022;415(2):113134.
- Dworak HA, Sink H. Myoblast fusion in Drosophila. Bioessays. 2002;24(7):591-601.
- Schejter ED. Myoblast fusion: Experimental systems and cellular mechanisms. Semin Cell Dev Biol. 2016;60:112-120.
- Deng S, Azevedo M, Baylies M. Acting on identity: Myoblast fusion and the formation of the syncytial muscle fiber. Semin Cell Dev Biol. 2017;72:45-55.
- Lee DM, Chen EH. Drosophila myoblast fusion: Invasion and resistance for the ultimate union. Annu Rev Genet. 2019;53:67-91.
- Bate M. The development of Drosophila melanogaster. CSH Laboratory Press; New York; 1993:1013-1090.
- Baylies MK, Bate M, Ruiz Gomez M. Myogenesis: A view from Drosophila. Cell. 1998;93(6):921-927.
- Chen EH, Olson EN. Towards a molecular pathway for myoblast fusion in Drosophila. Trends Cell Biol. 2004;14(8):452-460.
- Sens KL et al. An invasive podosome-like structure promotes fusion pore formation during myoblast fusion. J Cell Biol. 2010;191(5):1013-1027.
- Kim JH et al. Mechanical tension drives cell membrane fusion. Dev Cell. 2015;32(5):561-573.
- Chen EH. Invasive podosomes and myoblast fusion. Curr Top Membr. 2011;68:235-258.
- Kim JH, Jin P, Duan R, Chen EH. Mechanisms of myoblast fusion during muscle development. Curr Opin Genet Dev. 2015;32:162-170.
- Kim JH, Chen EH. The fusogenic synapse at a glance. J Cell Sci. 2019;132(18).
- Haralalka S, Abmayr SM. Myoblast fusion in Drosophila. Exp Cell Res. 2010;316(18):3007-3013.
- Kiehart DP, Feghali R. Cytoplasmic myosin from Drosophila melanogaster. J Cell Biol. 1986;103(4):1517-1525.
- Campos-Ortega JA, Hartenstein V. The embryonic development of Drosophila melanogaster. 2nd ed. Springer Berlin Heidelberg; Berlin, Heidelberg; 1997:9-102.
- De Joussineau C, Bataille L, Jagla T, Jagla K. Diversification of muscle types in Drosophila: Upstream and downstream of identity genes. Curr Top Dev Biol. 2012;98:277-301.
- Namiki T et al. Cytochrome P450 CYP307A1/Spook: A regulator for ecdysone synthesis in insects. Biochem Biophys Res Commun. 2005;337(1):367-374.
- Niwa R, Niwa YS. Enzymes for ecdysteroid biosynthesis: Their biological functions in insects and beyond. Biosci Biotechnol Biochem. 2014;78(8):1283-1292.
- Ruan ZR, Yu Z, Xing C, Chen EH. Inter-organ steroid hormone signaling promotes myoblast fusion via direct transcriptional regulation of a single key effector gene. Curr Biol. 2024;34(7):1438-1452.e6.
- Beckett K, Baylies MK. 3D analysis of founder cell and fusion competent myoblast arrangements outlines a new model of myoblast fusion. Dev Biol. 2007;309(1):113-125.
- Richardson B, Beckett K, Baylies M. Visualizing new dimensions in Drosophila myoblast fusion. BioEssays. 2008;30(5):423-431.
- Huang W et al. Spontaneous mutations and the origin and maintenance of quantitative genetic variation. eLife. 2016;5.
- McGuire SE, Roman G, Davis RL. Gene expression systems in Drosophila: A synthesis of time and space. Trends Genet. 2004;20(8):384-391.
- Bellen HJ et al. The Drosophila Gene Disruption Project: Progress using transposons with distinctive site specificities. Genetics. 2011;188(3):731-743.
- Cook RK et al. The generation of chromosomal deletions to provide extensive coverage and subdivision of the Drosophila melanogaster genome. Genome Biol. 2012;13(3).
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב