אלקטרו-אקופונקטורה מקלה על אי-ספיקת לב כרונית ועל עיצוב מחדש פתולוגי של הלב על ידי השבת הפעילות העצבית בתוך ה-nucleus tractus solitarius. נוירומודולציה מרכזית טיפולית זו קשורה להסדרת ביטוי (upregulation) של גורם השעתוק YY1, המהווה מטרה ביולוגית פוטנציאלית.
מאמר מחקר
מנגנונים מרכזיים של אלקטרו-אקופונקטורה באי-ספיקת לב כרונית: תובנות מפרוטאומיקה כמותית של הגרעין הבודד (Nucleus Tractus Solitarius)
* These authors contributed equally
במאמר זה
סיכום
תקציר
אי-ספיקת לב כרונית (CHF) היא סיבה מובילה בעולם לתמותה קרדיווסקולרית, המונעת על ידי הפרעה בוויסות האוטונומי והפעלה יתר סימפתטית. בעוד שאלקטרו-אקופונקטורה (EA) מפעילה השפעות קרדיופרוטקטיביות באמצעות נוירומודולציה מרכזית, המטרות המולקולריות הספציפיות שלה בתוך ה-nucleus tractus solitarius (NTS), מרכז אינטגרציה אוטונומי מרכזי, נותרו לא ברורות. כדי לבחון זאת, הוקם מודל חולדות ל-CHF באמצעות קשירה של העורק הכלילי השמאלי היורד (left anterior descending coronary artery). החולדות קיבלו EA בנקודות דיקור HT7 דו-צדדיות במשך שבעה ימים רצופים. תפקוד הלב ופגיעה בשריר הלב הוערכו באמצעות אקו-לב, בדיקות ELISA וצביעה היסטולוגית. פעילות עצבית ב-NTS נבדקה באמצעות אימונופלואורסצנציה של c-Fos ואלקטרופיזיולוגיה in vivo. מנגנונים מולקולריים נחקרו באמצעות פרוטאומיקה כמותית וביואינפורמטיקה, כאשר מטרות ליבה אומתו באמצעות qPCR ו-Western blotting. ה-EA שיפרה את מקדם הפליטה של החדר השמאלי (left ventricular ejection fraction), הפחיתה פיברוזיס של שריר הלב והפחיתה סממנים של אי-ספיקת לב בסרום. במקביל, ה-EA שיחזרה את קצבי הפריקה העצבית הספונטנית, את אנרגיית הפוטנציאל השדה המקומי ואת ביטוי ה-c-Fos בתוך ה-NTS. פרופיל פרוטאומי זיהה 85 חלבוני ליבה עם ביטוי שונה שהושפעו מה-EA. סיווג תפקודי של 58 החלבונים שהביטוי שלהם פחת ו-27 החלבונים שהביטוי שלהם עלה חשף את השתתפותם בהתאظمة המטריקס החוץ-תאי ובשינוי מבנה הכרומטין התלוי-ATP. גישת סינון מדורגת, המשלבת מיפוי רשת טופולוגית, העשרת מסלולים ופרופיל ביטוי ברקמה, זיהתה את גורם השעתוק YY1 כמועמד למטרה בעל תגובתיות גבוהה. תיקוף in vivo אישר כי EA הגבירה את ביטוי ה-YY1. באופן כללי, EA הפחיתה רמודלינג קרדיאלי פתולוגי ושיחזרה את הפעילות העצבית ב-NTS. YY1 זוהה כמטרה מועמדת הקשורה לנוירומודולציה מרכזית זו, ובכך סיפק תובנה מולקולרית לגבי המנגנונים העומדים בבסיס השפעות ה-EA ב-CHF.
מבוא
אי-ספיקת לב כרונית (CHF) מוכרת רחבה כשלב הסופי של פתולוגיות קרדיווסקולריות מגוונות ונשארת סיבה מובילה לתמותה קרדיווסקולרית ברחבי העולם, ובכך מטילה נטל כבד על מערכות הבריאות הגלובליות1. ההתקדמות הפתופיזיולוגית של CHF מונעת בעיקר על ידי הפרעה בויסות מערכת העצבים האוטונומית, המאופיינת בהפעלה סימפתטית מוגברת ומתמשכת ובנסיגה פאראסימפתטית2. לכן, השבתה של הומאוסטזיס אוטונומי נחשבת לאסטרטגיה טיפולית מכרעת להפחתת ר모델ינג לבבי פתולוגי ולשיפור התפקוד הלבבי הגלובלי3.
אלקטרו-אקופונקטורה (EA) מהווה התקדמות מודרנית של האקופונקטורה המסורתית וזכתה להכרה נרחבת בשל יעילותה הקלינית בטיפול במצבים קרדיווסקולריים4. מחקרים נרחבים, כולל מחקרינו הקודמים, הדגישו כי טיפול זה מפעיל השפעות קרדיופרוטקטיביות משמעותיות בעיקר על ידי ויסות מערכת העצבים האוטנומית המרכזית. באופן ספציפי, הראינו כי EA בנקודת הדיקור Shenmen (HT7) יכולה לדכא ביעילות זרימה סימפתטית מוגברת ולהחזיר את האיזון הסימפתו-וגאלי באמצעות מנגנונים עצביים מרכזיים ממוקדים, ובכך לשפר את ההתקדמות הפתולוגית של CHF5,6,7,8.
גרעין המסלול הבודד (NTS), השוכן בבסיס המוח (medulla oblongata), הוא מרכז אינטגרציה חיוני לשמירה על איזון אוטונומי מרכזי. הוא משמש כתחנת ממס ראשית לרפלקסים קרדיווסקולריים ולקלטים תחושתיים פריפריאליים, ומבקר את שיווי המשקל הדינמי בין הטון הסימפתטי לוואגלי9. למרות חשיבותו האנטומית והפונקציונלית, השינויים המולקולריים הספציפיים במרכז קריטי זה של גזע המוח במהלך טיפול ב-EA עבור CHF נותרו במידה רבה לא ידועים. פרוטאומיקה מתקדמת בעלת תפוקה גבוהה, בשילוב עם ניתוח ביואינפורמטי, מציעה כלי רב עוצמה למיפוי לא מוטה של רשתות החלבונים המורכבות ומסלולי השליחויות המעורבים בתהליך נוירוביולוגי מרכזי זה10.
לפיכך, מחקר זה נועד לבחון את ההשפעות של EA בנקודת הדיקור HT7 על תפקוד הלב ועל הפעילות העצבית ב-NTS במצב של CHF, ולאפיין את השינויים המולקולריים בתוך ה-NTS הקשורים לטיפול ב-EA. באמצעות שילוב של אלקטרופיזיולוגיה in vivo עם פרוטאומיקה כמותית, ניתוח ביו-אינפורמטיקה ותיקוף מולקולרי, מחקר זה ביקש לזהות מטרות מולקולריות מועמדות הקשורות לוויסות עצבי מרכזי המתווך על ידי EA במצב של CHF.
פרוטוקול
כל השיטות השמאלות בעלי חיים בעלי חוט שדרה בוצעו בהתאם להנחיות של ועדת האחלה ושימוש בבעלי חיים של Anhui University of Chinese Medicine, תחת מספר אישור AHUCM-rats-2024145. הרכיבים והציוד שנעשה בהם שימוש מפורטים ב- טבלת חומרים.
הכנת בעלי חיים וחלוקה לקבוצות
לכל הניסויים נעשה שימוש בחולדות זכר מגדר Sprague-Dawley בדרגת ניקיון גבוהה (Clean-grade), בגיל 8 שבועות ובמשקל של 200 עד 250 g. בעלי החיים שהו בסביבה מבוקרת ששמרה על טמפרטורה של 24 ± 2 °C ולחות יחסית של 50%–60%, תחת מחזור אור-חושך סטנדרטי של 12 h. לכל החולדות הייתה גישה חופשית (ad libitum) למזון ומים, והן עברו תקופת אקלום של שבוע אחד לפני ביצוע הפרוצדורות הניסוייות.
עבור ניסוי I, שהעריך פעילות עצבית תפקודית ומרכזית, 24 חולקים באופן אקראי לארבע קבוצות של שישה בעלי חיים בכל אחת: קבוצות Sham, CHF, EA ו-Sham EA (איור 1A). עבור ניסוי II, שהעריך מטרות מולקולריות ופרוטאומיקה בשיטת סריקה רחבה (high-throughput), 36 חולקים באופן אקראי לשלוש קבוצות של 12 בכל אחת: Sham, CHF ו-EA. גודל המדגמים נקבע על בסיס שיטת משוואת המשאבים (Resource Equation Method) כדי לעמוד באתיקה של רווחת בעלי חיים ובעיקרון הצמצום, תוך הבטחת תוקף סטטיסטי (E value = 20 עבור ניסוי I; E value = 33 עבור ניסוי II)11. אסטרטגיה זו לגודל המדגם הייתה עקבית עם פרוטוקולים ששימשו במחקרים קודמים על EA למחלות קרדיו-וסקולריות8,12. ניתוחי עוצמה בדיעבד (Post hoc power analyses) הצביעו על כך שעוצמה סטטיסטית העולה על 0.90 תומכת בהלימות הקצאה זו. קבוצת Sham EA הוצאה מניסוי II מכיוון שהערכות תפקודיות ראשוניות הצביעו על היעדר יעילות טיפולית.
הקמת מודל של אי-ספיקת לב כרונית
החולדות צמו במשך 12 h לפני הניתוח והיה להן גישה חופשית למים. ההרדמה הושרה באמצעות 3% isoflurane ונשמרה בריכוז של 1.5%–2% isoflurane במהלך הפרוצדורה. מכיוון ש-isoflurane הוא חומר הרדמה נדיף, נעשה שימוש במערכת שאיבה מתאימה, והפרוצדורה בוצעה באזור מאוורר היטב כדי למנוע חשיפה תעסוקתית.
הוקלטו באופן רציף אלקטרוקרדיוגרמים (ECG) סטנדרטיים של הגפיים. בוצעה תורקוטומיה שמאלית כדי לחשוף את הלב, ועורק LAD (left anterior descending coronary) נקשר באופן קבוע 2 עד 3 mm מתחת לתוספת של העליה השמאלית באמצעות תפר 7-0 שאינו נספג13. איסכמיה מוצלחת אושרה על ידי זיהוי התרוממות של מקטע ST של לפחות 0.2 mV ב-ECG (איור 1B). הזרקות תו-פריטוניאליות של פניצילין (200,000 U/mL) והזרקות תת-עוריות של קרפרופן (5 mg/kg) הנתנו מדי יום במשך שלושה ימים רצופים לאחר הניתוח כדי למנוע זיהום ולהקל על הכאב.
עבור קבוצת הביקורת (sham), בוצע הליך תורקוטומיה זהה, שלאחריו בוצעה החדרת מחט שטחית במיקום האנטומי התואם ללא קשירה של עורק LAD הכלילי. הטיפול והניטור הפוסט-אופרטיביים היו זהים. הערכה אקו-קרדיוגרפית בוצעה 4 שבועות לאחר הניתוח. המודל נחשב למוקם בהצלחה כאשר מקדם הפליטה של החדר השמאלי (LVEF) היה ≤45%8 (איור 1C). בעלי חיים שלא עמדו בקריטריונים אלה, שהראו חריגות ב-ECG בבסיס לפני הניתוח, או שסבלו מתמותה מוקדמת, הוצאו מהמחקר באופן שיטתי. חולדות משלימות הוכפפו לפרוטוקולים כירורגיים זהים כדי להחליף באופן מיידי את בעלי החיים שהוצאו ולשמור על גודל מדגם אחיד.
התערבות באמצעות דיקור חשמלי
בהתאם לפרוטוקולים מקובלים של אנטומיה השוואתית14, נקודות הדיקור HT7 הבילטראליות במסלול הלב (Hand-Shaoyin Heart Meridian) אותרו בצד הכפי של קפל שורש כף היד הרוחבי ליד הגבול האולנרי, ישירות בתוך השקע הרדיאלי של גיד השריר כופף שורש כף היד האולנרי (flexor carpi ulnaris). האזור המקומי חוטר באופן שגרתי. שתי מחטי דיקור סטריליות חד-פעמיות (0.25 x 25 mm) הוכנסו בניצב לכל אזור נקודת דיקור HT7 לעומק יעד של 2 עד 3 mm, ומוקמו במרחק של כ-1 mm זו מזו כדי להישאר אך ורק בתוך אותו אזור של נקודת הדיקור. לצורך תיעוד בווידאו, עומק ההחדרה אומת חזותית באמצעות סימון מוקדם של גוף המחט במיקום של 3 mm לפני ההחדרה.
מחט אחת חוברה להדק הקתודי של מכשיר ה-EA, והמחט הסמוכה חוברה להדק האנודי כדי ליצור מעגל חשמלי מקומי (איור 1D). גל חשמלי רציף הועבר בתדר קבוע של 2 Hz ובעוצמה של 1 mA, אשר כוילה כדי להפיק רעידות שרירים קלות אך נצפות בגפיים התואמות, למשך 30 min מדי יום לאורך שבעה ימים רצופים תחת הרדשת isoflurane.
פרוטוקול דיקור מינימלי הוחל על קבוצת התערבות השם (sham) כדי להוות ביקורת לתגובות סומטוסנסוריות לא ספציפיות15,16. מחטים סטריליות הוכנסו באופן שטחי לעומק של 0.5–1 mm במיקומי HT7 זהים ללא חיבור מוליכים חשמליים או הגשת זרם, בהתאמה למשך ההרדמה של 30 min. קבוצות הביקורת של השם (Sham) ושל CHF בבסיס הנתונים היו נתונות לחשיפה יומית זהה לאיזופלורן (1.5%–2% isoflurane למשך 30 min מדי יום במשך שבעה ימים רצופים) ללא החדרת מחטים או גרייה חשמלית. הליך זה ביצע סטנדרטיזציה של בסיס ההרדמה בכל הקבוצות הניסיוניות וביקר ארטיפקטים פוטנציאליים של דיכוי נוירולוגי או הגנה לבבית המושרים על ידי הרדמה נדיפה חוזרת.
הערכה באמצעות אקו-קרדיוגרפיה והדרה של בעלי חיים
בעקבות ההתערבות, החולדות הורדמו באמצעות 3% isoflurane לשם השראה ו-1% לשם תחזוקה, וקובעו במצב גב על פלטפורמת בעלי החיים. שיער החזה הוסר בזהירות באמצעות חומר להסרת שיער, וחומר צימוד אקוסטי נמרח באופן אחיד על העור החשוף. תפקוד הלב הוערך באמצעות מערכת אולטרסאונד דיגיטלית המצוידת במתמר echo בעוצמה של 18 MHz. נרשמה אקו-קרדיוגרפיה במצב M-mode למדידת LVEF וקיצור שברי של החדר השמאלי (LVFS), והערך הממוצע מ-3 חזרות טכניות חושב לצורך הניתוח הסופי.
דם נשאב מהאאורטה הבטנית בזמן שהחיות נשארו תחת הרדמה כדי למנוע איבוד דם וקרישה עוקבים ולהבטיח את איכות הדגימות עבור בדיקת ELISA (enzyme-linked immunosorbent assay). החולדות הומתו מיד באמצעות השראה רציפה של 5% isoflurane עד להפסקת הדופק והנשימה.
דגימות רקמה הוקצו לאחר מכן בהתאם למערך הניסוי. עבור ניסוי I, נעשה שימוש ב-3 חולדות לכל קבוצה לצורך קצירת הלב לצביעת hematoxylin and eosin (HE)/Masson והמוח לצורך אימונופלורסצנציה של c-Fos. שלוש החולדות הנותרות הוקצו לאלקטרופיזיולוגיה in vivo. עבור ניסוי II, רקמות NTS דו-צדדיות הופקו משיש חולדות לכל קבוצה לצורך פרוטאומיקה. רקמות משש החולדות הנותרות נקצרו לצורך אימות מולקולרי: שלוש שימשו ל-Western blotting ו-qPCR, ושלוש שימשו אך ורק ל-qPCR.
בדיקת ELISA (ספיחה חיסונית מקושרת לאנזים)
דגימות הדם שנאספו הושארו לקרישה טבעית בטמפרטורה של 4 °C למשך 10–20 דקות. הדגימות סובבו בצנטריפוגה במהירות של 1,000 x g למשך 15 דקות בטמפרטורה של 4 °C להפרדת הסרום, והעלמיות נאספו. כאשר הבדיקה לא בוצעה באופן מיידי, דגימות הסרום אוחסנו בטמפרטורה של −80 °C עד למועד הדרישה. ריכוזי N-terminal pro-brain natriuretic peptide (NT-proBNP) ו-cardiac troponin T (cTnT) בסרום נקבעו באמצעות ערכות ELISA ספציפיות בהתאם להוראות הסטנדרטיות. ערכי הבליעה נמדדו, ורמות הביו-מרקרים חושבו על סמך עקומי סטנדרט.
צביעה היסטולוגית ואימונופלורסצנציה
רקמות לב שנקצרו נשטפו בתמיסת נתרן כלוריד 0.9% מקוררת מראש, נחתכו 5 mm מעל apex, ונטמנו בפרפין. חתיכות הרקמה עברו דה-פרפיניזציה והרטבה מחדש. צביעת HE בוצעה על ידי יישום hematoxylin למשך 10 min, ולאחריו צביעת נגד ב-eosin למשך 2.5 min. צביעת Masson בוצעה על ידי יישום hematoxylin למשך 60 s ו-Masson's trichrome למשך 30–60 s. החתיכות עברו דיפרנציאציה בחומצה זריחית 6%–8% וצביעת נגד ב-light green למשך 5 min. שיעור נפח הקולגן (CVF) נקבע כמותית להערכת פיברוזיס של השריר הלבבי.
רקמות מוח שנאספו קובעו ב-4% paraformaldehyde, הושרשו בתמיסות סוכרוז בריכוזים מדורגים, ונחתכו לעובי של 30 µm. מכיוון ש-paraformaldehyde הוא רעיל ונחשד כמסרטן, העבודה איתו בוצעה בתוך מ உடף כימיים תוך לבישת ציוד הגנה אישי מתאים. החתכים נחסמו עם בופר המכיל 0.5% Triton X-100 ו-3% bovine serum albumin, ולאחר מכן דגרו למשך לילה ב-4 °C עם נוגדן ראשוני נגד c-Fos. לאחר מכן, נשטפו החתכים ב-phosphate-buffered saline ודגרו עם נוגדנים משניים תואמים למשך 2 h בטמפרטורת החדר בחשיכה. הפרוסות הותקנו עם תמיסת כיבוי פלואורסצנציה המכילה 4',6-diamidino-2-phenylindole (DAPI), והנוירונים החיוביים ל-c-Fos דוגמו במיקרוסקופ.
אלקטרופיזיולוגיה in vivo
החולדות הורדמו באמצעות איזופלוראן בריכוז של 3% להשראה ו-1% לתחזוקה, וקובעו במכשיר סטריאוטקסי למוח. קרקפתן נגלחה וחוטרה. בוצע חתך בקו האמצע כדי לחשוף את ה-bregma, והקרומי העבה (dura mater) הוסר. נקדח חור גולגולתי מדויק מעל אזור ה-NTS בהתבסס על הקואורדינטות הסטריאוטקסיות הבאות ביחס ל-Bregma: קדמי-אחורי (AP) ±12.6 מ"מ, מדיולטרלי (ML) ±0.9–2.1 מ"מ, וגבי-בטני (DV) ±7.6–8.1 ממ'.
עם השלמת ההקלטות האלקטרופיזיולוגיות, אומת המיקום הסטריאוקסטי המדויק של קצה האלקטרודה. זרם ישיר של 1 mA הופעל לזמן קצר למשך 10 s באלקטרודת ההקלטה כדי ליצור נגע אלקטרוליטי קטן. לאחר הניסוי, גזע המוח נחתך, ונתיב הנגע אומת היסטולוגית כממוקם אנטומית בתוך ה-NTS.
מערך מיקרו-אלקטרודות בעל שמונה ערוצים (2 x 4) הושתל והוזז לאט לעבר אזור המטרה במוח בקצב של 5 µm/s באמצעות מיקרו-מניפולטור ממוטור). לאחר שהושגה פעילות עצבית יציבה, בוצעו הקלטות באופן רציף למשך 400 s. מערכת רכישה רב-ערוצית שימשה ללכידת פריקות של פוטנציאלי פעולה עצביים (סינון ב-150–8,000 Hz, קצב דגימה של 40 kHz) ופוטנציאלי שדה מקומיים (LFP; סינון ב-0.7–400 Hz, קצב דגימה של 1 kHz).
תוכנה למיון ספייקים (Spike-sorting) שימשה להסרת אותות הפרעה וארטפקטים טיפוסיים בעלי אמפליטודה גבוהה באמצעות קורלציה צולבת של צורת הגל. ניתוח אותות עצביים שלאחר מכן בוצע באמצעות תוכנה לניתוח עצבי. נוירונים סווגו כפעילים רק כאשר הראו קצב פריקה ממוצע ספונטני >2 הרץ ושמר על יחס אות לרעש יציב >3:1. סף של 2 הרץ נבחר על בסיס המאפיינים הפיזיולוגיים המקובלים של נוירונים ב-NTS הקשורים למערכת האוטונומית; סף זה שלל ביעילות תאים שהיו שותקים בעיקר ופרצי פעילות קצביים נשימתיים בתדר נמוך, ובכך הבטיח שהניתוח התמקד בנוירונים פעילים טונית המתווכים ויסות קרדיווסקולרי בסיסי.17,18,19,20הופקו תרשימי פיזור (raster plots) של פריקות ספייקים ותדירות פריקה נוירונלית ממוצעת על בסיס קריטריונים אלה. ספקטרוגרמות אנרגיה של ה-LFP הדו-ממדי ותצלומי טופוגרפיה של צפיפות הספק ספקטרלית (PSD) תלת-ממדית הוכנו כדי להעריך מאפייני אנרגיה של תנודות עצביות.
בעקבות ההקלטה, החריץ נתפר, והחולדות נוטרו עד להתאוששות מלאה מההרדמה. פניצילין ניתן בהזרקה תוך-peritoneal, ו-carprofen (5 mg/kg, s.c.) ניתן מדי יום במשך שלושה ימים רצופים.
ניתוח פרוטאומיקה כמותית באמצעות רכישה בלתי תלויה בנתונים (Data-independent acquisition)
חלבון כולל הופק באמצעות בופר ליזיס וכמותו נקבעה בשיטת חומצה ביצ'ינכונינית. החלבונים עברו דנטורציה, אלקיליציה רדוקטיבית ועיכול באמצעות trypsin בטמפרטורה של 37 °C למשך 2 h. הפפטידים שהתקבלו עברו הסמכה בעזרת עמודת C18, ריכזו בטמפרטורה של 45 °C והומסו מחדש לצורך ניתוח מאס-ספקטרומטרי בהמשך.
פפטידים הועמסו על עמודת לכידה (trap column) (5 µm C18, 300 µm x 5 mm) שהוזנה ב-96% בופר A (0.1% חומצה פורמית במים). הפפטידים הופרדו בעזרת עמודה אנליטית של כרומטוגרפיה נוזלית בעוצמה גבוהה מאוד (UHPLC) בעלת תפוקה גבוהה, תוך שימוש במעבר הדרגתי (gradient) שעבר אופטימיזציה קפדנית של בופר A ובופר B (0.1% חומצה פורמית ב-80% אצטוניטריל).
ספקטרומטריית מסות בוצעה במצב רכישת נתונים בלתי תלויה ביונים (DIA) חיוביים, עם מתח ספרספר של 1.9 kV. סריקות מלאות של ספקטרומטר המסות נרכשו בטווח מסות של 380 עד 980 m/z ברזולוציה של 240,000, עם יעד בקרת הגבר אוטומטית (AGC) של 500% וזמן הזרקה מקסימלי של 3 ms. ספקטרא של MS/MS נרכשו ברזולוציה של 80,000 (יעד AGC: 500%; זמן הזרקה מקסימלי: 3 ms; אמפליטודת עדשת RF: 40%). יוני פרוקורסור פירורו באמצעות דיסוציאציה התנגשותית באנרגיה גבוהה יותר עם חלון בידוד של 2 Th ואנרגיית התנגשות מנורמלת של 25% תחת זמן מחזור מוגדר של 0.6 s.
נתוני ספקטרומטריית מסות גולמיים עובדו באמצעות תוכנת DIA-NN. ספריית ספקטרה הופקה באמצעות אלגוריתם למידה עמוקה פנימי, ופונקציית ה-match-between-runs יושמה לצורך כימות אל מול מסד הנתונים של הפרוטאום הייחוס של Rattus norvegicus, עם עיכול בטריפסין ועד 2 שבירות חסרות (missed cleavages). מטריצת החלבונים הכמותית הסופית סוננה באמצעות סף קפדני של 1% לשיעור התגליות השגויות (false discovery rate), הן ברמת יון הפרקורסור והן ברמת החלבון.
ניתוח ביואינפורמטיקה ואיתור גנים מרכזיים (hub genes)
ניתוחים ביו-אינפורמטיים והדמיות נתונים בוצעו בעיקר באמצעות סביבת התכנות R לצד תוכנה ייעודית להדמיית רשתות. כדי להבטיח שקיפות מתודולוגית ויכולת שחזור, כל סקריפטי ה-R המותאמים ששימשו בתהליכים אנליטיים אלו סופקו ב-Supplementary File 1. בקרת איכות ראשונית של הנתונים והערכות התפלגות כלליות בוצעו באמצעות חבילת ropls. נאספו סטטיסטיקות סקירתיות של זיהוי וכמות חלבונים; ניתוח מבחן Discriminant של ריבועים פחותים חלקיים (PLS-DA) בוצע על פני שלוש הקבוצות; ניתוח מבחן Discriminant של ריבועים פחותים חלקיים אורתוגונליים (OPLS-DA) בוצע להשוואות זוגיות; ומפות חום של מתאם דגימות הופקו באמצעות חבילת pheatmap.
חלבונים מרכזיים בעלי ביטוי דיפרנציאלי נסרקו באמצעות ספי שכללו p-value <0.05, fold change >1.2, ומדד חשיבות משתנה בהקרנה (variable importance in projection score) >1.0. תרשימי Volcano כפולים נוצרו באמצעות חבילת ggplot2, חתכים זוהו באמצעות חבילת ggVennDiagram, ומפות חום של קיבוב היררכי שורטטו באמצעות חבילת pheatmap כדי להציג את החלבונים החופפים. ניתוחי העשרה של Gene Ontology (GO) ושל Kyoto Encyclopedia of Genes and Genomes (KEGG) בוצעו בנפרד עבור החלבונים בעלי הביטוי המוגבר והביטוי המופחת באמצעות חבילת enrichR בהתבסס על מאגר הנתונים Enrichr.
כל החלבונים שהובעו באופן דיפרנציאלי מופו למסד הנתונים STRING עם סף ביטחון של 0.4 כדי לבנות את רשת האינטראקציה בין חלבונים. נתוני האינטראקציה יווקאו לתוכנה להדמיית רשתות. תוסף cytoHubba הופעל כדי לחשב ציונים טופולוגיים, ו-18 הגנים בעלי הציונים הגבוהים ביותר הופקו על בסיס עומק צבע הצומת. 18 המועמדים לתפקיד hub עברו אנליזת העשרה של מסלולים, ו-10 החלבונים הבולטים ביותר נבחרו כדי להעריך את רמות הביטוי שלהם ברחבי רקמות אנושיות באמצעות מסד הנתונים Genotype-Tissue Expression (GTEx). הגן המכריע ביותר בתפקיד hub זוהה על בסיס רמות ביטוי במוח אנושי וציונים טופולוגיים של הרשת. דפדפן נתוני Cistrome שימש לניבוי גורמי שעתוק במורד ושינויים בהיסטונים הקשורים לגן ה-hub הספציפי.
תגובה שרשרתית של פולימראז כמותית (qPCR) ו-Western blot
חלבון כולל הוצא מרקמות NTS באמצעות תערובת ליזיס הכוללת באפר ליזיס עם phenylmethanesulfonyl fluoride, PMSF ומעכבי פוספטאז. הדגימות הומוגניזו באמצעות disruptor תאים אולטרסוני וסובבו בצנטריפוגה ב-13,800 x g למשך 20 min ב-4 °C לאיסוף הסופרנאטנטים. ריכוזי החלבון נקבעו באמצעות ערכה למדידת חלבון בשיטת bicinchoninic acid. סך של 20 µg של חלבון מכל דגימה הופרדו באמצעות אלקטרופורזה של ג'ל sodium dodecyl sulfate-polyacrylamide בריכוז של 10% והועברו לאחר מכן לממברנות polyvinylidene fluoride.
את הממברנות חסמו עם 5% חלב דל שומן ב-Tris-buffered saline Tween (TBST) למשך 1 h בטמפרטורת החדר, ודגרו לילה שלם ב-4 °C עם נוגדנים ראשוניים ספציפיים המכוונים ל-Yin Yang 1 (YY1) ול-β-actin כחלבון בית (housekeeping protein). את הממברנות שטפו ב-TBST למשך 5 min שלוש פעמים ודגרו עם נוגדן שני המצומד ל-horseradish peroxidase למשך 1.5 h בטמפרטורת החדר. את פסי המטרה ויזואליזו באמצעות ערכה לכימילומניסנציה משופרת, צילמו באמצעות מערכת דימוי וכממו ביחס ל-β-actin.
RNA כולל הוצץ מרקמות NTS באמצעות ריאגנט להוצאת RNA. ריכוז ה-RNA והטוהר שלו נמדדו באמצעות ספקטרופוטומטר, ו-cDNA של הגדיל הראשון סונתז באמצעות ערכה לתעתוק הפוך. תגובת שרשרת פולימראז בזמן אמת כמותית (PCR) בוצעה באמצעות ערכת SYBR Green PCR במערכת real-time PCR. רצפי הפריימרים הספציפיים ששימשו להגברה, יחד עם מספרי הגישה (accession numbers) המתאימים שלהם ב-NCBI Reference Sequence, היו כדלקמן: YY1 (NM_001002271.1), קדמי 5'-AGCGTTCGTTGAGAGCTCAA-3' ואחורי 5'-AGCCTTCGAATGTGCACTGA-3'; DPF2 (NM_001014264.1), קדמי 5'-TGTGATGACTGTGACCGTGG-3' ואחורי 5'-TCCAAACACAGGTGGCAACT-3'; DMAP1 (NM_001007705.1), קדמי 5'-GGTGTGACATTACGGAGCCA-3' ואחורי 5'-TCCAGCAGCATCTGTTCCAG-3'; ו-glyceraldehyde-3-phosphate dehydrogenase (GAPDH) (NM_017008.4), קדמי 5'-GGCACAGTCAAGGCTGAGAATG-3' ואחורי 5'-ATGGTGGTGAAGACGCCAGTA-3'. רמות ביטוי יחסיות של mRNA חושבו באמצעות שיטת 2-ΔΔCt ונורמלו מול הגן הפנימי GAPDH ששימש כביקורת.
ניתוח סטטיסטי
כל הנתונים הניסיוניים נותחו באמצעות תוכנה סטטיסטית והוצגו כממוצע ± סטיית תקן (SD). הנורמליות נבדקה באמצעות מבחן Shapiro-Wilk, והומוגניות השונות הוערכה באמצעות מבחן Brown-Forsythe.
עבור השוואות בין שתי קבוצות בלתי תלויות, נעשה שימוש במבחן t של Student או במבחן t למדגמים מזווגים עבור נתונים שעמדו בקריטריוני הנורמליות. נתונים שלא עמדו בהנחות הנורמליות נותחו באמצעות מבחן Mann-Whitney U או מבחן Wilcoxon signed-rank. להשוואות בין קבוצות מרובות, נעשה שימוש בניתוח שונות חד-כיווני (one-way ANOVA), ולאחריו מבחן post hoc של Holm-Sidak, כאשר התקיימו הנחות הנורמליות וההומוגניות. כאשר הנחות אלו לא התקיימו, נעשה שימוש במבחן Kruskal-Wallis H, ולאחריו מבחן post hoc של Dunn.
מתאמים הוערכו באמצעות מקדם המתאם של פירסון שחושב באמצעות חבילת Hmisc ב-R. ערכי p תואמים הותאמו באמצעות שיטת Benjamini-Hochberg לבקרת שיעור התגליות השגויות (false discovery rate) באמצעות חבילת stats, כדי לשלוט בעלייה בשיעור השגיאה מסוג I הנובעת מבדיקות מרובות. מובהקות סטטיסטית כללית נקבעה כ-p <0.05.
תוצאות
אלקטרו-אקופונקטורה משפרת את תפקוד הלב ומקלה על פגיעה בשריר הלב בחולדות עם אי-ספיקת לב כרונית
כדי להעריך את ההשפעות של EA על CHF, הוקם מודל חולדה באמצעות ליגציה של העורק הכלילי LAD, ולאחריה התערבויות של EA ספציפי או Sham EA. בוצעו הערכות שיטתיות, כולל אקו-קרדיוגרפיה, בדיקות ביוכימיות וצביעה היסטולוגית (איור 2A). מבחינה תפקודית, קבוצת ה-CHF הראתה התרחבות של החדרים ופגיעה בספיקות. טיפול ב-EA שיפר את הירידה ב-LVEF וב-LVFS שנצפתה בחולדות עם CHF, בעוד שקבוצת ה-Sham EA הראתה רמות תפקוד לבבי דומות לאלו של קבוצת ה-CHF (איור 2B ו-איור 2C).
יתרה מכך, EA הפחיתה את רמות ה-NT-proBNP וה-cTnT בסרום, מה שמעיד על הפחתה בעומס הלבבי והפגתי של פגיעה בשריר הלב. לעומת זאת, קבוצת ה-Sham EA הראתה פרמטרים ביוכימיים הדמים לאלו של קבוצת ה-CHF (איור 2E,F). ניתוח היסטולוגי הראה כי קבוצת ה-CHF הציגה נזק מבני בשריר הלב ופיברוזיס. טיפול ב-EA שיפר את ארכיטקטורת שריר הלב והפחית את ה-CVF, בעוד שקבוצת ה-Sham EA שמרה על שינויים פתולוגיים ורמות CVF דומות לאלו של קבוצת ה-CHF (איור 2D). באופן כללי, EA הפעילה השפעות cardioprotective נגד CHF, בעוד שהתערבות ה-Sham EA לא הניבה תוצאות טיפוליות דומות.
דיקור חשמלי מפעיל נוירונים בגרעין המסלול הבודד (nucleus tractus solitarius) בחולדות עם אי-ספיקת לב כרונית
כדי לקבוע האם ה-NTS מתווך את התגובה המרכזית לטיפול ב-EA, הוערכה האקטיבציה העצבית על ידי צביעה ל-c-Fos, סמן לעירור עצבי. דימוי אימונופלואורסצנציה (איור 3A) וספירה כמותית של תאים (איור 3B) גילו כי מספר הנוירונים החיוביים ל-c-Fos ב-NTS היה נמוך יותר בקבוצת ה-CHF בהשוואה לקבוצת ה-Sham. עם זאת, טיפול ב-EA העלה את ביטוי ה-c-Fos לרמות הדומות לקו הבסיס של קבוצת ה-Sham. במקביל לתוצאות התפקודיות הפריפריות, קבוצת ה-Sham EA הראתה רמות ביטוי דומות של c-Fos בהשוואה לקבוצת ה-CHF.
כדי להעריך את המצב התפקודי של נוירונים אלו ב-NTS, הוקלטו אותות אלקטרופיזיולוגיים in vivo. עקומות פריקת הפולסים (איור 3C) וקצב הירי הממוצע הכמותי (איור 3D) תאמו לממצאי ההיסטולוגיה. תדירות הירי הספונטנית של נוירוני NTS הייתה מופחתת בתנאי CHF. לעומת זאת, התערבות EA העלתה את קצב הירי הנוירונלי, בעוד שפרוצדורת Sham EA לא גרמה לשינויים אלקטרופיזיולוגיים own כאלה.
דפוס זה של הפעלה עצבית נתמך על ידי ניתוח פוטנציאל השדה המקומי (LFP). כפי שמוצג בספקטרוגרמות של סקאלת צבעי LFP בדו-ממד ובמפות צפיפות הספקטרום של ההספק בתלת-ממד (איור 3E), האנרגיה התנודתית העצבית בתוך ה-NTS נחלשה במהלך מצב ה-CHF. בעקבות טיפול ב-EA, חלה עלייה בעוצמת ההספק לאורך ספקטרום התדרים העצבי, מה שמעיד על הפעלת הרשת, דבר שלא נראה בקבוצת ה-Sham EA.
כדי לבחון את הרלוונטיות הפיזיולוגית של הפעלה מרכזית זו, בוצע ניתוח מתאם פירסון, אשר שילב מדריקים לבביים פריפריים עם פעילות נוירונלית מרכזית ב-NTS (איור 3F). הניתוח הדגים כי קצב הפריקה הממוצע והבעת c-Fos בתוך ה-NTS היו במתאם חיובי עם ה-LVEF. לעומת זאת, מדדי פעילות עצבית מרכזית אלה הראו מתאם שלילי עם NT-proBNP, סמן דם לאי-ספיקת לב. מתאמים אלו מעידים כי ההפעלה העצבית של ה-NTS המודולת על ידי EA קשורה ליעילותה במיגון לב פריפרי.
אלקטרו-אקופונקטורה משנה את הפרופיל הפרוטאומי הגלובלי בגרעין המסלול הבודד (nucleus tractus solitarius)
בשל היעדר היעילות הטיפולית שנצפתה בקבוצת ה-Sham EA במהלך ההערכות התפקודיות הקודמות, שלב הפרוטאומיקה כלל רק את קבוצות ה-Sham, ה-CHF וה-EA. לפני איסוף הרקמות, 12 חולדות לכל קבוצה עברו הערכה אקו-קרדיוגרפית לבדיקת ההשפעות הטיפוליות של EA, ותוצאות אלו מוצגות ב- איור משלים 1Aבעקבות הערכה זו, 6 רפליקות ביולוגיות מכל קבוצה הועברו לאנליזה פרוטאומיקה כמותית מבוססת ספקטרומטריית מסות.
בוצעו בקרת איכות ואנליזות רב-משתניות כדי להעריך את המהימנות ואת ההתפלגות הכללית של הנתונים הפרוטאומיים. המספר הכולל של החלבונים שזוהו היה 5,914 בקבוצת ה-Sham, 5,980 בקבוצת ה-CHF ו-5,836 בקבוצת ה-EA, מה שמעיד על זיהוי חלבונים בר השוואה בין שלוש קבוצות הניסוי (איור 4A ו- טבלה משלימה 1ניתוח מבדיל של ריבועי מינימום חלקיים (Partial least squares discriminant analysis) הדגים הפרדה ברורה בין קבוצות ה-Sham, ה-CHF וה-EA, דבר המעיד על פרופילים פרוטאומיים גלובליים מובחנים הקשורים למצב המחלה ולהתערבות ה-EA (איור 4B).
ניתוח אפליבט של ריבועים פחותים חלקיים אורתוגונליים בזוגות (Pairwise orthogonal partial least squares discriminant analysis) הדגים הפרדה נוספת בין קבוצת ה-Sham לקבוצת ה-CHF (איור 4C) ובין קבוצת ה-CHF לקבוצת ה-EA (איור 4D). מבחני פרמוטציה תואמים תמכו באמינות של המודלים הרלוונטיים. בנוסף, מפת חום של מתאם פירסון הראתה מתאמים גבוהים בתוך הקבוצות ודפוסים בין-קבוצתיים מובחנים בין הדגימות הפרוטאומיות, דבר התומך בחזרתיות של השכפולים הביולוגיים (איור 4E). יחד, ניתוחים אלו של בקרת איכות וניתוחים רב-משתנים העידו על כך שסט הדגימות הפרוטאומי היה חסון מספיק לצורך זיהוי וניתוח ביואינפורמטיקה של חלבונים בעלי ביטוי שונה.
אלקטרו-אקופונקטורה מווסתת חלבוני ליבה המבטאים באופן דיפרנציאלי ומסלולי איתות בגרעין המסלול הבודד (nucleus tractus solitarius)
כדי לחקור את המטרות המולקולריות של EA, נותחו השינויים בחלבונים. תרשימי הגעש (volcano plots) הציגו את התפלגות החלבונים בעלי הביטוי המוגבר והמופחת בהשוואות בין Sham ל-CHF ובין CHF ל-EA (איור 5A, טבלה משלימה 2, ו-טבלה משלימה 3). כדי לזהות את המטרות הטיפוליות, בוצע ניתוח חפיפה. כפי שמוצג בדיאגרמות ונ, זוהו 58 חלבונים בעלי ביטוי מוגבר בקבוצת ה-CHF אשר ביטויים פחת בעקבות טיפול EA, לצד 27 חלבונים בעלי ביטוי מופחת בקבוצת ה-CHF שביטוים גבר בעקבות התערבות EA (איור 5B ו-טבלה משלימה 4). סינון זה הניב סך של 85 חלבונים מרכזיים בעלי ביטוי שונה. מפת החום של ההclustering ההיררכי הדגימה כי התערבות ה-EA שינתה את דפוסי הביטוי הבלתי תקינים של 85 חלבונים אלו, והסיטה את הפרופילים שלהם לעבר קו הבסיס של קבוצת ה-Sham (איור 5C).
כדי לקבוע את התפקודים הביולוגיים של יעדים מרכזיים אלו, בוצעו ניתוחי העשרה של GO ו-KEGG בנפרד עבור שתי תתי-הקבוצות הנבדלות של חלבונים. עבור תת-הקבוצה של 58 חלבונים שהביטוי שלהם הופחת על ידי EA, תרשים הבועות של GO הדגים העשרה משמעותית בתהליכים ביולוגיים, כולל ארגון המטריצה החוץ-תאית וארגון מבנה חוץ-תאי, לצד רכיבים תאיים כגון מבנה מעטפת חיצוני וטרימר קולגן, ותפקודים מולקולריים, כולל קישור לקולגן וקישור לקולטן גלוטמט (איור 5D ו-טבלה משלימה 5). ניתוח נתיבי KEGG עוקב, שהוצג באמצעות תרשימי chord ו-Sankey, גילה כי 58 חלבונים אלו משתתפים במסלולים הכוללים עיכול וספיגה של חלבונים, את השלד התאי בתאי שריר, ונתיב האיתות של TGF-β (איור 5E ו-טבלה משלימה 6). ויזואליזציות טופולוגיות אלו הדגישו חלבונים ספציפיים, כולל COL3A1, COL14A1, MYH11, DCN ו-DPF2, כצומת מרכזי המקשר בין מספר נתיבים פתולוגיים.
לעומת זאת, בוצעו אנוטציות פונקציונליות עבור תת-הקבוצה של 27 חלבונים שהביטוי שלהם עלה בעקבות התערבות ה-EA. ניתוח העשרה של GO הצביע על מעורבות בתהליכים ביולוגיים כגון ויסות גדילת תאים וויסות חיובי של הארכת שעתוק מבוססת DNA, וכן בתפקודים מולקולריים הכוללים קישור חלבונים תלוי סידן וקישור טטרה-פירול (איור 5F ו-טבלה נספחת 7). דיאגרמות Chord ו-Sankey תואמות של KEGG מיפו חלבונים אלו למסלולים קריטיים, כולל שינוי מבנה כרומטין תלוי ATP וקומפלקס הדכאה של polycomb (איור 5G ו-טבלה נספחת 8). ראוי לציין כי מיפוי רשת זה בידל חלבונים מרכזיים כגון YY1, E2F2 ו-ENTPD5, המגשרים בין רשתות איתות מרכזיות אלו. סיווג פונקציונלי מקיף זה הניח את התשתית המבנית לאימות המטרות הליבתיות שבוצע בהמשך.
טופולוגיית רשת ופרופיל ביטוי מזהים את YY1 כמטרה מועמדת הקשורה להשפעות של התערבות באלקטרו-אקופונקטורה
כדי לקבוע את הגן המרכזי (hub gene) מבין 85 החלבונים שהביטוי שלהם השתנה באופן מובהק, נבנתה רשת אינטראקציות חלבון-חלבון. ניתוח טופולוגי זיהה 18 צמתים בעלי ציוני קישוריות גבוהים (איור 6A ו-טבלה נספחת 9). לאחר מכן, נערך ניתוח נתיבי KEGG באופן ספציפי עבור 18 חלבוני המפתח הללו. דיאגרמות chord ו-Sankey התואמות מיפו את הקשרים המורכבים בין מוקדי מפתח אלה לבין רשראות אותות מועשרות, כולל שינוי מבני של כרומטין התלוי ב-ATP, קומפלקס הדיכוי polycomb, ונתיב האותות של TGF-β (איור 6A ו-טבלה נספחת 10). על בסיס פרופיל תפקודי זה, נבחרו 10 החלבונים בעלי ההעשרה הבולטת ביותר לסריקה נוספת. מכיוון שהמטרה הטיפולית של EA נמצאת במערכת העצבים המרכזית, 10 המועמדים הללו הוערכו באמצעות מאגר ביטויי הרקמות האנושי GTEx (איור 6B ו-איור נספח 1B–J). התוצאות הצביעו על כך שרק YY1 (איור 6B), DMAP1 (איור נספח 1C) ו-DPF2 (איור נספח 1D) בוטאו ברקמות מוח.
כדי לבודד את המטרה הפוטנציאלית בעלת התגובתיות הגבוהה ביותר ל-EA, בוצעו ניסויים מולקולריים in vivo תוך שימוש ברקמות NTS. qPCR כמותי שימש להערכת התגובתיות השעתוקית של שלושת המועמדים המועשירים את המוח. ביטוי ה-mRNA של YY1 פחת בתנאי CHF ועלה בעקבות טיפול ב-EA, בעוד שרמות ביטוי ה-mRNA של DPF2 ו-DMAP1 לא הראו שינויים מובהקים סטטיסטית בין הקבוצות הניסיוניות (איור 6C). סריקה שעתוקית זו פסלה את DPF2 ו-DMAP1 מוולדידציה נוספת ותמכה ב-YY1 כמועמד התגובתי העיקרי. אנליזת Western blot שלאחר מכן הצביעה על כך שרמות החלבון של YY1 פחתו בקבוצת ה-CHF ביחס לקו הבסיס של ה-Sham, בעוד שההתערבות ב-EA נגדה מגמה זו והגבירה את ביטוי החלבון של YY1 (איור 6D ו-איור 6E). תוצאות ניסיוניות אלו מעידות על כך ש-EA מעלה את ביטוי YY1 בתוך ה-NTS.
כדי לחקור את מנגנוני הבקרה השליליים (upstream) השולטים בביטוי של YY1, נותחו שינויי ההיסטון הקשורים אליו וגורמי שעתוק. חשוב לציין כי ממצאים אלו מבוססים אך ורק על תחזיות ביואינפורמטיות חישוביות שהופקו מ-Cistrome Data Browser ואינם מהווים תיקוף ניסיוני ישיר באמצעות ChIP-seq. התחזית האפיגנטית הדגישה שינויי היסטון, כולל H3K27ac, H3K27me3 ו-H3K4me3, עם ציוני פוטנציאל רגולטורי גבוהים עבור הלוכוס של YY1 (איור 6F). במקביל, דירוג הפוטנציאל הרגולטורי זיהה גורמי שעתוק כגון CDK9, PRDM1 ו-ELL2 כווסתים של YY1 (איור 6G). תחזיות ביואינפורמטיות אלו מתארות את הרשתות האפיגנטיות והשעתוקיות הפוטנציאליות השולטות בביטוי YY1 ב-NTS.
לסיכום, הנתונים המוצגים מדגימים כי התערבות EA משפרת ביעילות את תפקוד הלב המערכתי ומפחיתה פגיעה בשריר הלב בחולדות עם CHF. השפעות קרדיופרוטקטיביות פריפריאליות אלו מלוות באופן מרכזי בהשבה של פעילות פריקה עצבית ואנרגיה תנודתית עצבית בתוך ה-NTS. יתרה מכך, סריקה פרוטאומיקה כמותית זיהתה 85 חלבוני ליבה בעלי ביטוי Differentially Expressed והדגישה את גורם השחלוף YY1 כמועמד למטרה בעל תגובתיות גבוהה. יחד, ממצאים אלו מרמזים כי היעילות הטיפולית של EA נגד CHF קשורה קשורה באופן הדוק להשבה של התפקוד העצבי ב-NTS, וכי עלייה בביטוי של YY1 עשויה להיות מעורבת בתהליך נוירוביולוגי מרכזי זה.
זמינות נתונים
כל הנתונים שהופקו ונותחו כדי לתמוך בממצאי מחקר זה כלולים בכתב היד וב- קובץ משלים 1כדי לעמוד בדרישה לנגישות נתונים ציבורית, כל הנתונים הגולמיים הזמינים העומדים בבסיס מחקר זה הופקדו במאגר הציבורי Zenodo והם נגישים באופן חופשי באמצעות הקישור הבא: https://doi.org/10.5281/zenodo.22030720. נתונים תומכים נוספים זמינים מהכותבים המקשרים על פי בקשה סבירה.
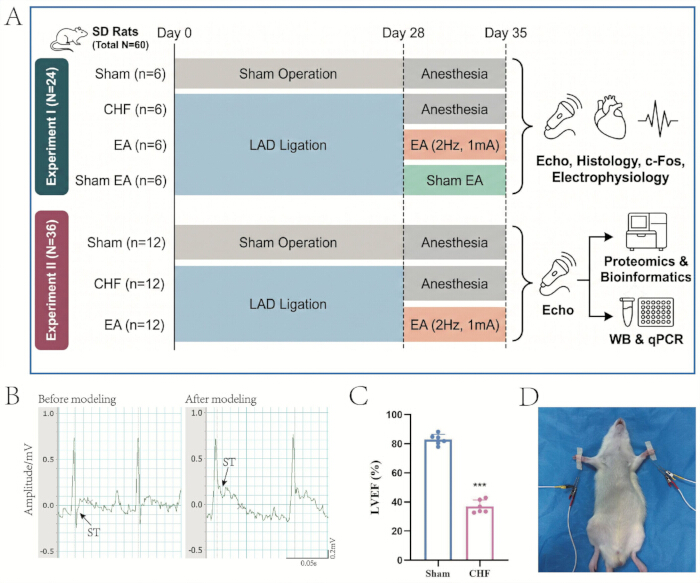
איור 1: מערך הניסוי, הקמת מודל חולדה לאי-ספיקת לב כרונית והתערבות באמצעות אלקטרו-אקופונקטורה. (A) תרשים זרימה כללי של הניסוי, כולל ציר הזמנים והחלוקה לקבוצות עבור שתי סדרות הניסויים העצמאיות. (B) הקלטות מייצגות של אלקטרוקרדיוגרם לפני ואחרי קשירת העורק הכלילי LAD, כאשר החיצים מצביעים על התרוממות של מקטע ST המאשרת איסכמיה של השריר הלבבי. (C) ניתוח כמותי של LVEF ארבעה שבועות לאחר הניתוח לאישור הצלחת המודל (חזרות ביולוגיות n = 6, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham. (D) התערבות EA בנקודות הדיקור HT7 הדו-צדדיות. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
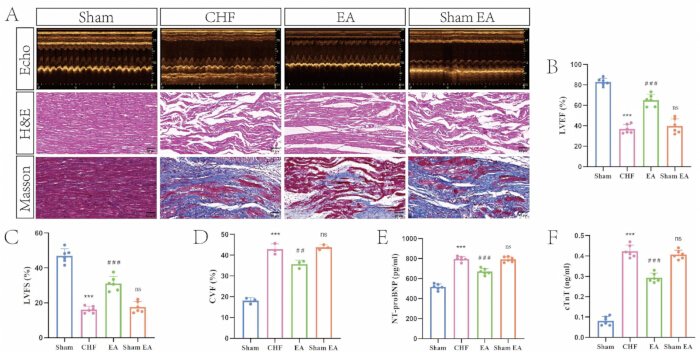
איור 2: דיקור חשמלי (Electroacupuncture) משפר את תפקוד הלב ומפחית פגיעה בשריר הלב בחולדות עם אי-ספיקת לב כרונית. (A) תצלומי אקו-לב במצב M-mode מייצגים לצד תמונות של צביעת hematoxylin and eosin וצביעת Masson trichrome של רקמות שריר הלב בארבע קבוצות הניסוי (סרגל קנה מידה = 50 µm). (B) ניתוח כמותי של LVEF בין הקבוצות (חזרות ביולוגיות n = 6, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham; ###p < 0.001 לעומת קבוצת ה-CHF; ns, ללא מובהקות לעומת קבוצת ה-CHF. (C) ניתוח כמותי של LVFS בין הקבוצות (חזרות ביולוגיות n = 6, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham; ###p < 0.001 לעומת קבוצת ה-CHF; ns, ללא מובהקות לעומת קבוצת ה-CHF. (D) ניתוח כמותי של CVF בין הקבוצות (חזרות ביולוגיות n = 3, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham; ##p < 0.01 לעומת קבוצת ה-CHF; ns, ללא מובהקות לעומת קבוצת ה-CHF. (E) ניתוח כמותי של רמות NT-proBNP בנסיוב בין הקבוצות (חזרות ביולוגיות n = 6, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham; ###p < 0.001 לעומת קבוצת ה-CHF; ns, ללא מובהקות לעומת קבוצת ה-CHF. (F) ניתוח כמותי של רמות cTnT בנסיוב בין הקבוצות (חזרות ביולוגיות n = 6, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham; ###p < 0.001 לעומת קבוצת ה-CHF; ns, ללא מובהקות לעומת קבוצת ה-CHF. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
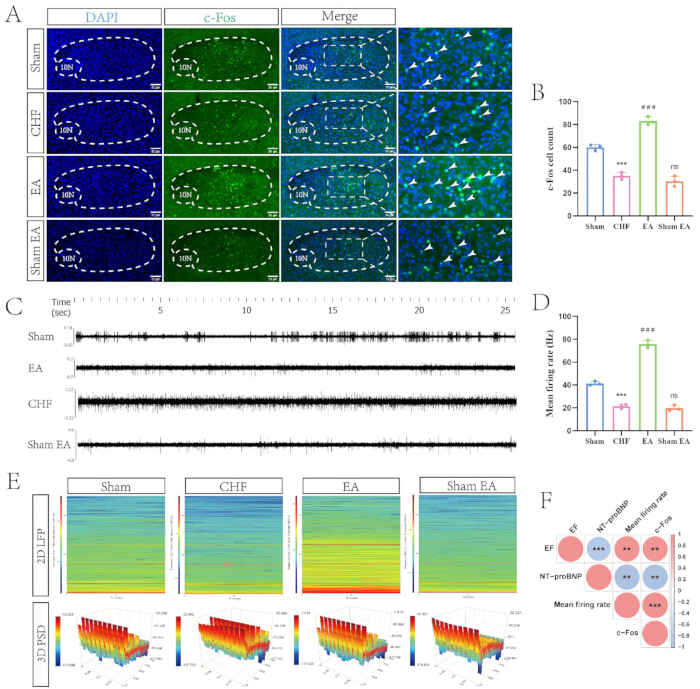
איור 3: אלקטרו-אקופונקטורה משחזרת את הפעילות הנוירונלית ב-nucleus tractus solitarius בחולדות עם אי-ספיקת לב כרונית. (A) תמונות אימונופלורסצנציה מייצגות של ביטוי c-Fos ב-NTS בין הקבוצות. הגרעינים נצבעו ב-DAPI, ותאים חיוביים ל-c-Fos נצבעו בירוק. הקווים המקווקווים מתוחמים את האזור האנטומי, וחצי חצים לבנים מצביעים על נוירונים מייצגים חיוביים ל-c-Fos (סרגל קנה מידה = 30 µm). (B) ניתוח כמותי של ספירת תאים חיוביים ל-c-Fos בין הקבוצות (חזרות ביולוגיות n = 3, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham; ###p < 0.001 לעומת קבוצת ה-CHF; ns, לא מובהק לעומת קבוצת ה-CHF. (C) עקומות פריקה של פוטנציאלי פעולה (spike discharge) אלקטרופיזיולוגיות מייצגות in vivo של ה-NTS בין הקבוצות. (D) ניתוח כמותי של קצב הירי הנוירונלי הממוצע בין הקבוצות (חזרות ביולוגיות n = 3, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham; ###p < 0.001 לעומת קבוצת ה-CHF; ns, לא מובהק לעומת קבוצת ה-CHF. (E) ספקטרוגרמות דו-ממדיות מייצגות של פוטנציאל שדה מקומי (LFP) וטופוגרפיות תלת-ממדיות של צפיפות ספקטרלית של הספק, הממחישות את האנרגיה התנודתית העצבית בתוך ה-NTS. (F) מטריצת קורלציה המעריכה את הקשרים בין פנוטיפים קרדיווסקולריים פריפריים לבין פרמטרים של פעילות עצבית מרכזית. עיגולים אדומים וכחולים מצביעים על קורלציות חיוביות ושליליות, בהתאמה. **p < 0.01; ***p < 0.001. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
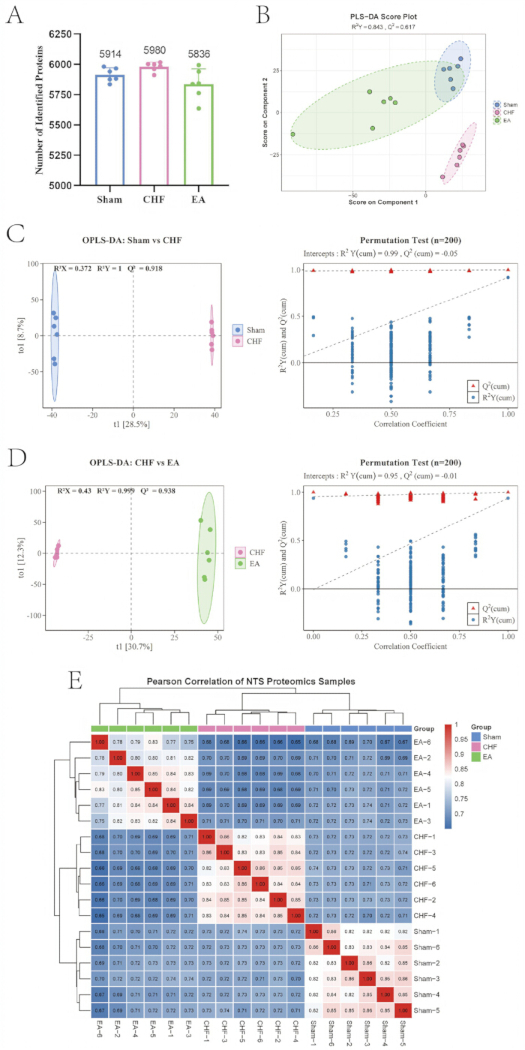
איור 4: בקרת איכות והערכה סטטיסטית רב-משתנית של הפרופילים הפרוטאומיים בגרעין המסלול הבודד (nucleus tractus solitarius). (A) סקירה כמותית של החלבונים שזוהו בשלוש קבוצות הניסוי (חזרות ביולוגיות n = 6). (B) תרשים פיזור של ציוני אנליזת מבחן Discriminant של ריבועים פחותים חלקיים (PLS-DA), הממחיש את ההתפלגות המרחבית הכללית ואת ההפרדה בין הקבוצות. (C) תרשים פיזור של ציוני אנליזת מבחן Discriminant של ריבועים פחותים חלקיים אורתוגונליים (OPLS-DA) ומבחן הפרמוטציה המתאים, המאמתים את מהימנות המודל עבור ההשוואה בין קבוצת ה-Sham לקבוצת ה-CHF (200 פרמוטציות). (D) תרשים פיזור של ציוני אנליזת מבחן Discriminant של ריבועים פחותים חלקיים אורתוגונליים (OPLS-DA) ומבחן הפרמוטציה המתאים, המאמתים את מהימנות המודל עבור ההשוואה בין קבוצת ה-CHF לקבוצת ה-EA (200 פרמוטציות). (E) מפת חום של קיבץ היררכי של מקדמי מתאם פירסון, המעריכה את השחזוריות התוך-קבוצתית ואת השונות בין-קבוצתית בכל הדגימות הפרוטאומיות. אנא לחץ כאן כדי להציג גרסה מוגדלת של איור זה.
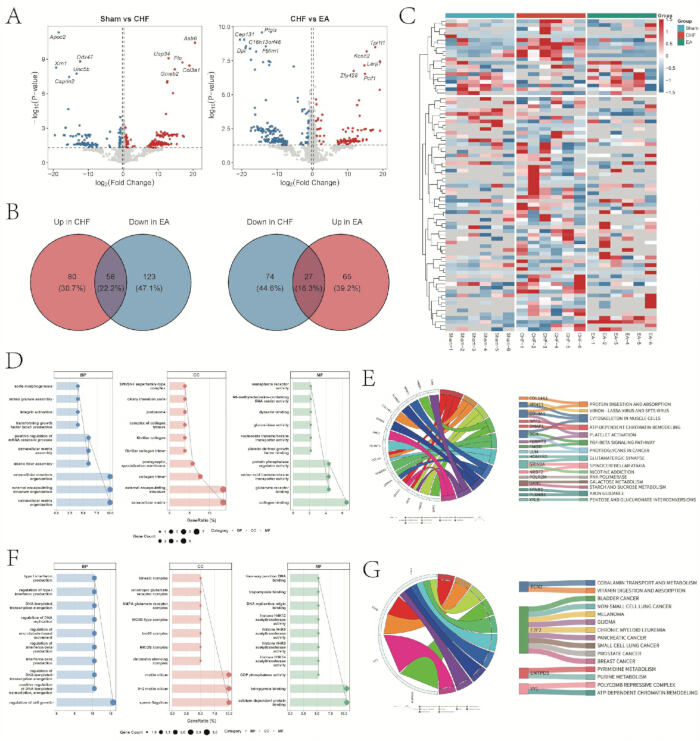
איור 5: זיהוי וניתוח העשרה פונקציונלית של חלבונים מרכזיים המבטאים ביטוי דיפרנציאלי המודולים על ידי אלקטרו-אקופונקטורה בגרעין המסלול הבודד (nucleus tractus solitarius). (A) תרשימי Volcano הממחישים את התפלגות החלבונים עם ביטוי מוגבר (upregulated) וביטוי מופחת (downregulated) בהשוואות בין Sham ל-CHF ובין CHF ל-EA. (B) דיאגרמות ון הממפות את ניתוח החפיפה לזיהוי החלבונים המרכזיים עם ביטוי מופחת וביטוי מוגבר בעקבות התערבות ה-EA. (C) מפת חום של קיבוץ היררכי (Hierarchical clustering heatmap) של פרופילי הביטוי של החלבונים המרכזיים המבטאים ביטוי דיפרנציאלי. (D) תרשימי בועות (bubble plots) של GO המפרטים את התהליכים הביולוגיים, הרכיבים התאיים והפונקציות המולקולריות המועשרות עבור תת-הקבוצה של חלבונים עם ביטוי מופחת. (E) דיאגרמות Chord ו-Sankey של KEGG הממפות את מסלולי השליחויות המועשרים על ידי חלבונים עם ביטוי מופחת. (F) תרשימי בועות של GO המפרטים את התהליכים הביולוגיים, הרכיבים התאיים והפונקציות המולקולריות המועשרות עבור תת-הקבוצה של חלבונים עם ביטוי מוגבר. (G) דיאגרמות Chord ו-Sankey של KEGG הממפות את מסלולי השליחויות המועשרים על ידי חלבונים עם ביטוי מוגבר. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
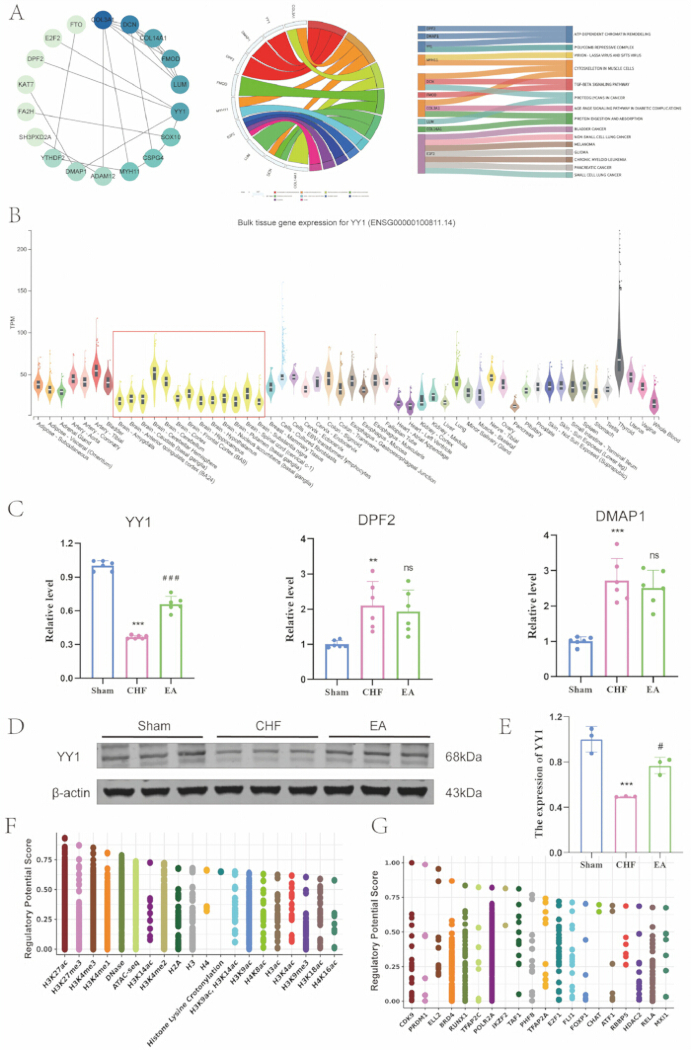
איור 6: טופולוגיית רשת, פרופיל ביטוי ברקמות ותיקוף מולקולרי מזהים את YY1 כמטרה פוטנציאלית הקשורה לאלקטרו-אקופונקטורה. (A) רשת אינטראקציה בין חלבונים, דיאגרמת חבלים (chord diagram) ודיאגרמת סנקי (Sankey diagram) של חלבוני המפתח (hub proteins) שזוהו. (B) פרופיל ביטוי של YY1 ברקמות אנושיות המופק ממאגר ה-GTEx, כאשר המסגרת האדומה מדגישה רקמות מוח. (C) ניתוח כמותי של ביטוי mRNA של YY1, DPF2 ו-DMAP1 ב-NTS בין הקבוצות (חזרות ביולוגיות n = 6, ממוצע ± SD). **p < 0.01, ***p < 0.001 לעומת קבוצת ה-Sham; ###p < 0.001 לעומת קבוצת ה-CHF; ns, לא מובהק לעומת קבוצת ה-CHF. (D) פסי Western blot מייצגים של YY1 ו-β-actin ב-NTS בין הקבוצות. (E) ניתוח כמותי של ביטוי חלבון YY1 בין הקבוצות (חזרות ביולוגיות n = 3, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham; #p < 0.05 לעומת קבוצת ה-CHF. (F) חיזוי ביואינפורמטי של מודיפיקציות אפיגנטיות של היסטונים המווסתות את לוקוס ה-YY1, המבוסס על ציוני פוטנציאל רגולטורי. (G) חיזוי ביואינפורמטי של גורמי שעתוק במעלה הזרם המווסתים את לוקוס ה-YY1, המבוסס על ציוני פוטנציאל רגולטורי. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
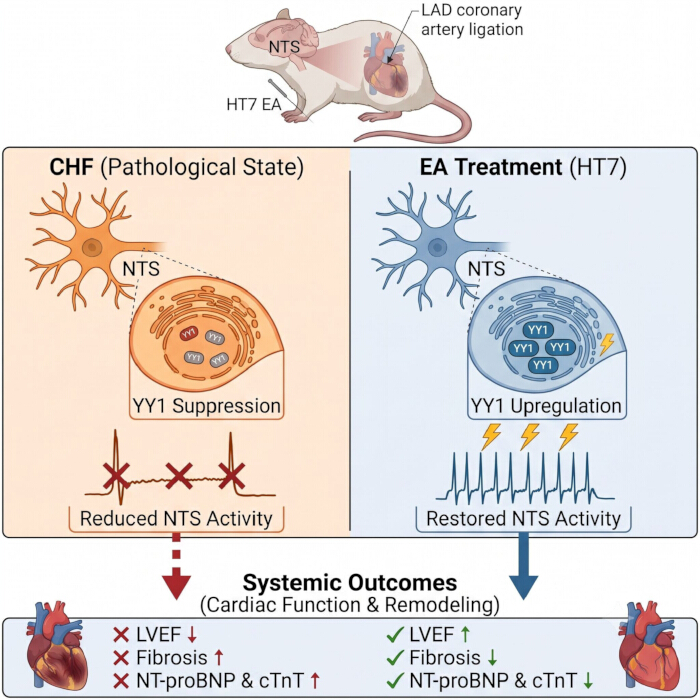
איור 7: מודל מוצע לקשר בין אלקטרו-אקופנקטורה בנקודה HT7, עלייה בביטוי של YY1, השבת הפעילות הנוירונלית בגרעין המסלול הבודד (nucleus tractus solitarius), ושיפור באי-ספיקת לב כרונית. (שמאלה) מצב פתולוגי: במודל של CHF המושרה על ידי ליגטורה של העורק הכלילי LAD, הפעילות הנוירונלית בתוך ה-NTS פחיתה, בליווי דיכוי של גורם השעתוק YY1. עיכוב עצבי מרכזי זה קשור לremodeling לבבי פתולוגי, המתבטא בירידה ב-LVEF, עלייה בפיברוזה של השריר הלבבי ועלייה במדדי סרום של אי-ספיקת לב. (ימינה) טיפול ב-EA: התערבות EA בנקודת הדיקור HT7 מעלה את ביטוי YY1 ב-NTS ומשיבה את הפריקה הנוירונלית. נוירומודולציה מרכזית זו מפעילה השפעות קרדיופרוטקטיביות, הממתנות את ה-remodeling הפתולוגי ומשפרות את תפקודי הלב המערכתיים. אנא לחץ כאן להצגת גרסה גדולה יותר של איור זה.
איור משלים 1: הערכת תפקוד לבבי של קהל המחקר הפרוטאומי ופרופילי ביטוי ברקמות אנושיות של גני צומת (hub genes) מועמדים. (A) ניתוח כמותי של LVEF ו-LVFS בין הקבוצות (חזרות ביולוגיות n = 12, ממוצע ± SD). ***p < 0.001 לעומת קבוצת ה-Sham; ###p < 0.001 לעומת קבוצת ה-CHF. (B-J) פרופילי ביטוי ברקמות אנושיות של גני צומת מועמדים שהופקו ממאגר הנתונים GTEx, כולל COL3A1 (B), DMAP1 (C), DPF2 (D), FMOD (E), MYH11 (F), E2F2 (G), LUM (H), DCN (I), ו-COL14A1 (J).אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה 1: מטריצת זיהוי וכמותיות מקיפה של הפרוטאום הגלובלי בגרעין המסלול הבודד (nucleus tractus solitarius). טבלה זו מציגה את מערך הנתונים הפרוטאומי הכמותי המלא עבור כל הקבוצות הניסוייות. עמודות חשובות כוללות את Protein ID (מספר גישה של UniProt), Gene (סמל הגן), First.Protein.Description (הערה תפקודית), וערכי העוצמה הנורמליזים של החלבון עבור כל שכפול ביולוגי בקבוצות ה-Sham, ה-CHF וה-EA (n = 6 לכל קבוצה).אנא לחצו כאן להורדת הקובץ.
טבלה משלימה 2: מדדי חשיבות משתנים בהקרנה (VIP) של OPLS-DA עבור חלבונים בהשוואה בין קבוצת ה-Sham לקבוצת ה-CHF. טבלה זו מפרטת את המאפיינים המבדילים בין קבוצות ה-Sham וה-CHF על פי מודל OPLS-DA. העמודות המרכזיות כוללות את המאפיין (המייצג את המזהה של החלבון/גן הספציפי) ואת ה-VIP_value (Variable Importance in Projection), המציין את התרומה של כל מאפיין להפרדה בין הקבוצות (סף VIP > 1.0).אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה 3: ציוני חשיבות משתנה בהקרנה (VIP) של OPLS-DA עבור חלבונים בהשוואה בין CHF ל-EA. טבלה זו מפרטת את המאפיינים המבדילים בין קבוצות ה-CHF וה-EA בהתבסס על מודל ה-OPLS-DA. בדומה לטבלה S2, היא כוללת את עמודת המאפיינים ואת ערך ה-VIP המקביל, תוך הדגשת המאפיינים בעלי התגובה הגבוהה ביותר להתערבות ה-EA.אנא לחצו כאן להורדת הקובץ.
טבלה משלימה 4: רשימה מפורטת של 85 חלבוני הליבה בעלי ביטוי דיפרנציאלי שהושפעו מדיקור חשמלי. טבלה זו מציגה את החפיפה של חלבונים ששינויים משמעותיים בהם נגרמו על ידי CHF ובהמשך הוחזרו למצבם המקורי על ידי התערבות EA. עמודות חשובות כוללות את Protein_ID, Gene, log2FC (שינוי קיפול ב-log2 המעיד על שונות בביטוי), P_value למשמעות סטטיסטית (סף p < 0.05), ו-VIP_value המעריך את התרומה למודל.אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה 5: ניתוח העשרה של אונטולוגיית גנים (Gene Ontology) עבור תת-קבוצת חלבוני הליבה שביטויה פחת. טבלה זו מציגה את האנוטציה התפקודית של אונטולוגיית גנים (GO) עבור 58 החלבונים שביטוים פחת כתוצאה מ-EA. עמודות חשובות כוללות את ONTOLOGY (המחולקת לתהליך ביולוגי [BP], רכיב תאי [CC], ותפקוד מולקולרי [MF]), תיאור תפקודי (Description), p.adjust (ערך p מתוקנן לבדיקות מרובות), ו-geneID, המקשר לגנים הספציפיים שהועשרו בכל מונח.אנא לחצו כאן להורדת הקובץ.
טבלה משלימה 6: ניתוח העשרה של מסלולים מתוך ה-Kyoto Encyclopedia of Genes and Genomes עבור תת-הקבוצה של חלבוני הליבה שהפחיתו את ביטוים. טבלה זו ממחישה את רשראשי השיגנלינג המועשרים עבור 58 החלבונים שהפחיתו את ביטוים. העמודות המרכזיות כוללות את שם המסלול (Term), את ערך ה-p-value המתוקנן המעיד על המובהקות הסטטיסטית של ההעשרה, ואת הגנים הספציפיים החופפים המעורבים בכל מסלול.אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה 7: ניתוח העשירה של אונטולוגיית גנים (Gene Ontology) עבור תת-קבוצת חלבוני הליבה בעלי ביטוי מוגבר. טבלה זו מציגה את האנוטציה הפונקציונלית של אונטולוגיית הגנים (GO) עבור 27 החלבונים שהיו בעלי ביטוי מוגבר (upregulated) בעקבות EA. הפורמט והגדרות העמודות (ONTOLOGY [BP, CC, MF], Description, p.adjust, geneID) זהים לאלו המפורטים בטבלה S5.אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה 8: אנליזת העשרה של מסלולים מתוך Kyoto Encyclopedia of Genes and Genomes עבור תת-הקבוצה של חלבוני הליבה בעלי ביטוי מוגבר. טבלה זו ממחישה את מסלולי השיגנל המועשרים עבור 27 החלבונים שהביטוי שלהם עלה (upregulated). הפורמט והגדרות העמודות (מונח, מתואם p-value, גנים) זהים לאלו המפורטים בטבלה S6.אנא לחצו כאן כדי להוריד קובץ זה.
טבלה משלימה 9: ציוני קישוריות טופולוגית של 18 חלבוני ה-hub שהופקו מרשת האינטראקציה בין חלבונים. טבלה זו מסכמת את הפרמטרים הטופולוגיים של הרשת ששימשו לזיהוי גני ה-hub המרכזיים. העמודות המרכזיות כוללות את שם הגן ומדדי רשת מרכזיים כגון Degree, Betweenness Centrality ו-Closeness Centrality, המכמתים את החשיבות היחסית והקישוריות של כל צומת בתוך הרשת הביולוגית.אנא לחצו כאן להורדת קובץ זה.
טבלה נלווית 10: ניתוח העשרה של מסלולים מתוך ה-Kyoto Encyclopedia of Genes and Genomes עבור 18 חלבוני המרכז (hub proteins) של הרשת. טבלה זו מציגה את מסלולי השליחויות הספציפיים שהועשרו באופן בלעדי על ידי 18 חלבוני המרכז שזוהו. העמודות המרכזיות כוללות את שם המסלול (Term), ערך p מתוקנן למשמעות סטטיסטית, והגנים הרלוונטיים המניעים את ההעשרה התפקודית.אנא לחץ כאן להורדת הקובץ.
קובץ משלים 1: סקריפטים של R ששימשו לניתוח נתונים ולהדמיה ותמונות לא חתוכות של Western blot. הקובץ המשלים מכיל את סקריפטים של R ששימשו לניתוח מתאם פירסון, יצירת תרשימי Volcano כפולים וזיהוי חלבונים שהתהפכו ב-EA, ניתוח העשراء של Gene Ontology (GO), יצירת מפת חום של מקבץ היררכי, הדמיה של העשראה מה-Kyoto Encyclopedia of Genes and Genomes (KEGG), ניתוח מבחין של ריבועים פחותים חלקיים אורתוגונליים (OPLS-DA) ובדיקת פרמוטציה, ניתוח מבחין של ריבועים פחותים חלקיים (PLS-DA), יצירת מפת חום של מתאם דגימות פרוטאומיות וניתוח דיאגרמות ון.אנא לחצו כאן כדי להוריד קובץ זה.
דיון
המחקר הנוכחי בחן את המנגנונים המרכזיים של EA בנקודת הדיקור HT7 במודל חולדות של CHF. נתונים פיזיולוגיים והיסטולוגיים הצביעו על כך ש-EA שיפרה את LVEF והפחיתה פיברוזיס של השריר הלבבי. במקביל לשינויים פריפריאליים אלו, הקלטות אלקטרופיזיולוגיות in vivo ומיפוי עצבי תמכו בכך ש-EA השחזרה את קצבי הפעירה העצבית בתוך ה-NTS. באמצעות פרוטאומיקה מבוססת ספקטרומטריית מסות, מופה הנוף המולקולרי של ה-NTS, וזוהו 85 חלבונים בעלי ביטוי דיפרנציאלי שתבניות הביטוי הבלתי תקינות שלהם הושפעו מההתערבות. ניתוח טופולוגי ופרופיל ביטוי רקמתי עוקבים בידלו את גורם השעתוק YY1 כמועמד למטרה ביולוגית. תיקוף מולקולרי הצביע על כך ש-EA מגבירה את ביטוי YY1. ממצאים אלו בונים רשת מולקולרית מרכזית עבור EA ומציעים את YY1 כמטרה נוירוביולוגית פוטנציאלית הקושרת בין בקרה אוטונומית מרכזית לבין שיפור ב-CHF. המנגנונים המרכזיים המקיפים מסוכמים ב-איור 7.
ה-NTS משמש כמרכז האינטגרציה עבור רפלקסים קרדיווסקולריים מרכזיים וויסות אוטונומי21,22. בהקשר של מחלות קרדיווסקולריות, CHF כרוך בחוסר איזון אוטונומי מתמשך המאופיין בהפעלה יתרה של המערכת הסימפתטית ובנסיגה וגאלית23. במהלך ההתקדמות הפתופיזיולוגית של מצב זה, הרגישות של ברו-רצפטורים פריפריאליים פוחתת, מה שמקטין את הקלטים האפרונטיים מעוררים ל-NTS24. כתוצאה מכך, קהות עצבית זו מובילה להפעלה מופחתת של המדולה הוונטרו-לטרלית הקודאלית ולדיס-אינהביציה עוקבת של המדולה הוונטרו-לטרלית הרוסטרלית, המביאה לזרימה סימפתטית מרכזית מופרזת25. במקביל למנגנונים אלו, נתונים אלקטרופיזיולוגיים והיסטולוגיים הצביעו על כך שתדירות הפריקה הספונטנית והביטוי של c-Fos בנוירוני ה-NTS היו מופחתים במצב של CHF. כגישה של נוירומודולציה ממוקדת, מוצע תיאורטית כי אותים אפרונטיים סומטוסנסוריים הנוצרים על ידי EA מועברים דרך עצבים פריפריאליים לקרן הדורסלית של חוט השדרה וממשיכים למבני גזע המוח, כולל ה-NTS26. התוצאות הצביעו על כך שהתערבות EA בנקודת הלחץ HT7 הגבירה את האנרגיה התנודתית העצבית והשיבה את קצב הפריקה הנוירונלית באזור זה של המוח. מבחינה פיזיולוגית, הפעילות הנוירונלית המשוקמת ב-NTS מקלה על הפעלת נוירוני ביניים מעכבים במדולה, ובכך מדכאת נוירונים פרה-מוטוריים סימפתטיים היפראקטיביים ובמקביל מגבירה אותים הפרוניים פאראסימפתטיים27. בקישור מנגנונים עצביים מרכזיים אלו לפנוטיפים קרדיווסקולריים פריפריאליים, ניתוח הקורלציה תמך בכך שהפעלה עצבית מרכזית זו הייתה קשורה באופן חיובי ל-LVEF ובאופן שלילי לסמן הפריפריאלי של איסוף לב NT-proBNP. ממצאים אלו מעידים כי EA עשוי להפעיל השפעות קרדיופרוקטיביות פריפריאליות על ידי הקלה על העיכוב הפתולוגי של נוירוני ה-NTS וקידום הומאוסטזיס אוטונומי מרכזי.
כדי להבהיר את המסלולים המולקולריים העומדים בבסיסה של נוירומודולציה מרכזית זו, נותח הנוף הפרוטאומי של ה-NTS. פרוטאומיקה מבוססת ספקטרומטריית מסות זיהתה 85 חלבונים שדפוסי הביטוי שלהם הושפעו מההתערבות. סיווג תפקודי גילה כי תת-קבוצה של 58 חלבונים שהביטוי שלהם פחת בעקבות EA מעורבת באופן בולט בארגון המטריצה החוץ-תאית ובמסלול האיתות של transforming growth factor β. המטריצה החוץ-תאית במערכת העצבים המרכזית יוצרת סריג מאורגן, הכולל רשתות פרי-נוירונליות העוטפות פיזית מסופי סינפסות ומווסתות הומאוסטזיס יוני מקומי28. תחת דחק פתולוגי כרוני, כגון אי-ספיקת לב, שקיעה חריגה של המטריצה החוץ-תאית יוצרת מיקרו-סביבה מגבילה בתוך גזע המוח29. עיצוב מחדש מבני זה מעכב פיזית פלסטיות מבנית סינפטית ומשמר מעגלים עצביים במצב של היפר-אקטיביות סימפתטית30. על ידי ויסות הביטוי של חלבונים מבניים, כגון COL3A1 ו-COL14A1 לצד DCN, ה-EA מעצב מחדש את המחסום החוץ-תאי פתולוגי זה. במקביל, העשרה של רצפי איתות קשורים — המסווגים תחת מסלול ה-KEGG "cytoskeleton in muscle cells", המצביע על שינויים מבניים כלליים ומתווכי אינטגרין ולא על נוכחות ממשית של מיוציטים בתוך ה-NTS — מרמזת כי שינויים חוץ-תאיים מועברים אל המדור התוך-תאי31. איתות מכנו-טרנסדוקציה זה מחזיר את תחלופתו הדינמית של קוצים דנדריטים ומווסת את התמסורת הסינפטית ואת היעילות שלה בקשת הרפלקס האוטונומית32.
מעבר לארגון מחדש של המבנה החוץ-תאי, אנוטציה פונקציונלית של 27 החלבונים שהביטוי שלהם עלה בעקבות ההתערבות הצביעה על מעורבות של עיצוב מחדש של כרומטין תלוי-ATP. חוסר איזון אוטונומי קרדיו-וסקולרי מתמשך נשמר על ידי הגבלות אפיגנטיות, שבהן כרומטין דחוס מגביל את הנגישות של אזורי פרומוטור עבור גנים המווסתים עיכוב עצבי33. קומפלקסים של עיצוב מחדש של כרומטין תלוי-ATP משתמשים באנרגיה מהידרוליזה של ATP כדי להזיז או להוציא נוקלאוזומים, ובכך פותחים לוקוסים גנומיים עבור תמלול פעיל34. העשירה של מסלול זה, לצד ויסות חיובי של הארכת תמלול מבוסס-DNA, מעידה על כך ש-EA פועל ברמה האפיגנטית כדי לעצב מחדש את הזיכרון התמלולי הקשור למחלה35. ההרפיה המבנית של המיקרו-סביבה החוץ-תאית מתרגמת לשינויים אפיגנטיים גרעיניים, המקלים על תמלול מתואם של רשתות גנים נוירו-פרוטקטיביות המגשריות על ידי חלבונים מרכזיים כגון YY1 ו-E2F236,37. כדי לבודד באופן שיטתי את המטרה הביולוגית המתווכת את היעילות הטיפולית של EA, יושמה אסטרטגיית סריקה מדורגת. 85 החלבונים בעלי הביטוי השונה סוננו באמצעות מיפוי רשת טופולוגי ואנליזת העשרת מסלולים כדי לזהות 10 מועמדים בולטים כצמתים מרכזיים (hub candidates). פרופיל ביטוי רקמתי עוקב אישש שרק YY1 ו-DPF2, לצד DMAP1, מבוטאים ברקמות מוח אנושיות. תיקוף מולקולרי in vivo שלל עוד יותר את DPF2 ו-DMAP1 בשל חוסר בתגובה תמלולית, מה שאישש את YY1 כמועמד למטרה בעלת תגובתיות גבוהה. YY1 הוא פקטור תמלול מסוגzinc-finger המפעיל בקרה על התפתחות מערכת העצבים המרכזית ועל פלסטיות עצבית38. במעגלים עצביים בוגרים, YY1 פועל כווסת נוירו-פרוטקטיבי על ידי שמירה על הומאוסטזיס מיטוכונדריאלי והפחתת סטרס חמצוני39. במהלך ההתקדמות הפתולוגית של CHF, סטרס המודינמי מתמשך ודלקת פריפרית גורמים לתפקוד מטבולי לקוי ולנזק מבני בנוירונים של גזע המוח40. הנתונים הניסויים הצביעו על כך שהביטוי של YY1 מדוכא ב-NTS בתנאי CHF, בעוד שהתערבות EA נגדה דיכוי פתולוגי זה. בהתבסס אך ורק על תחזיות ביו-אינפורמטיקה חישוביות ולא על תיקוף אמפירי, קיימת השערה כי YY1 מקייים אינטראקציה עם מודיפיקציות היסטון פעילות, כגון H3K27ac ו-H3K4me3, כדי לכתב את רשתות הגנים הנוירו-פרוטקטיביות שבמצב זה נמצאות במורד המסלול 41. השחזור של פעילות YY1 עשוי להקל על תיקון מסלולים מטבוליים עצביים ולקדם את השלמות המבנית של קשרי סינפסה. כתוצאה מכך, נוירוני ה-NTS המודולטיביים משפרים את יכולתם לעבד קלטים של ברורפלקס פריפרי ואספקת בקרה עיכובית על מסלולי פרה-מוטור סימפתטיים יורדים, דבר המשפר את ההידרדרות הקרדיו-וסקולרית הקשורה ל-CHF42.
על אף תגליות אלו, מספר מגבלות מתודולוגיות מחייבות בחינה קפדנית. ראשית, מערך הניסוי הנוכחי התבסס על אומיקה קורלטיבית ופרופיל ביטוי ללא ראיות תפקודיות ישירות. מחקרים עתידיים חייבים לשלב מניפולציות גנטיות ממוקדות, כגון knockdown או ביטוי יתר (overexpression) באמצעות וקטורים ויראליים בתוך ה-NTS, לצד ChIP-seq או CUT-seq אמפיריים.&בדיקות תיוג (Tag assays), כדי לבסס באופן חלטי את התפקיד הסיבתי של YY1 ולתקף את הרשתות האפיגנטיות שבמורד זרימה שלו. שנית, החרגת קבוצת ה-Sham EA משלב הפרוטאומיקה מגבילה את יכולתנו לשלול באופן חלטי חתימות מולקולריות המושרות על ידי גרייה סומטוסנסורית לא ספציפית. עם זאת, השוואת קבוצות ה-CHF וה-EA ביחס לקו הבסיס של ה-Sham נחשבת למספקת כדי לבודד שינויים מולקולריים ספציפיים ל-EA בעיצוב הנוכחי. זאת מכיוון שכל הקבוצות ללא התערבות, ובספר שקבוצות ה-Sham וה-CHF, עברו סטנדרטיזציה קפדאית של קו הבסיס לחשיפה יומית להרדמה באיסופלורן (isoflurane), מה שהקטין ביעילות את הגורמים המבלבלים המשמעותיים ביותר של סטרס נוירולוגי לא ספציפי. יתר על כן, נתוני התפקוד הראשוניים שלנו הראו כי Sham EA לא עורר הפעלה קרדיווסקולרית או עצבית משמעותית ביחס לקבוצת ה-CHF, מה שמעיד על כך שגרייה סומטוסנסורית שטחית ללא זרם חשמלי אינה מגיעה לסף הנדרש כדי להניע תכנות מולקולרי מרכזי משמעותי. שלישית, במחקר חסרות קבוצות ביקורת סטנדרטיות של נקודות שאינן נקודות דיקור, דבר המונע אישור חלטי של הספציפיות של נקודת הדיקור HT7. בנוסף, המסלולים העצביים האפרנטיים המוצעים מ-HT7 ל-NTS נותרים השערתיים ללא מעקב עצבי ישיר או תיקוף באמצעות חסימה עצבית. לבסוף, האלקטרופיזיולוגיה in vivo העריכה פעילות גלובלית של ה-NTS בנקודת זמן אחת, ללא הבחנה בין תתי-אוכלוסיות עצביות מעוררות ומעכבות ספציפיות, ולא העריכה פלסטיות עצבית ארוכת טווח. מחקרים עתידיים חייבים להתייחס לפערים קריטיים אלו כדי לדייק את המנגנונים הנוירוביולוגיים המרכזיים.
בסופו של דבר, על ידי שילוב ממצאים אלו תוך הכרה באופיים המתאממים, מחקר זה מספק מסגרת מולקולרית בעלת ערך המצביעה על כך ש-EA מפחיתה רמודלינג לבבי פתולוגי על ידי שיקום תפקוד נוירונלי ב-NTS. נתונים אלה מדגישים את YY1 כמועמד למטרה בעל תגובתיות גבוהה עבור נוירומודולציה קרדיווסקולרית מרכזית, ומספקים תובנות נוירוביולוגיות חדשניות ליישום קליני של טיפול בדיקור לניהול אי-ספיקת לב.
גילויים
כל המחברים מצהירים כי אין להם ניגודי עניינים. המחברים מצהירים בנוסף כי לא נעשה שימוש בכלי בינה מלאכותית בשום שלב בתהליך הכנת כתב היד.
תודות
ברצוננו להביע את תודתנו הכנה לכל החוקרים שתרמו למחקר זה ולהכיר בהערכה בהקרבתם של בעלי החיים המשמשים בניסוי. עבודה זו נתמכה על ידי התוכנית הלאומית למחקר ופיתוח מרכזי של סין (מענקים מס' 2022YFC3500500 ו-2022YFC3500502) ותוכנית תמיכה בכישרונות ברמת האוניברסיטה של Xu Nenggui (מענק מס' DT2400000222). למממנים לא היה תפקיד בתכנון המחקר, באיסוף הנתונים ובניתוחם, בהחלטה על הפרסום או בהכנת כתב היד.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| חולדות Sprague-Dawley זכרים בוגרים | Liaoning Changsheng Biotechnology Co., Ltd. | מס'. SCXK (LIAO) 2025-0001 | RGD_70508 |
| מחטי דיקור | Suzhou Tianxie Acupuncture Instrument Co., Ltd. | — | — |
| תוכנית קיבוע למניעת דהייה עם DAPI | Aibixin Biotechnology Co., Ltd. | abs9235-25ml | — |
| נוגדן ראשוני Anti-YY1 | Proteintech Group, Inc | 66281-1-Ig | AB_2881664 |
| נוגדן ראשוני נגד Beta Actin | 66009-1-Ig | AB_2687938 | |
| אלבומין סרום בקר (BSA) | Sigma Odellie Trading Co., Ltd. | V900933 | — |
| ערכה לבדיקת חלבון BCA | Shanghai Biyuntian Biotechnology Co., Ltd. | P0012S | — |
| c-Fos (9F6) rabbit mAb | Sai Xin Tong Biological Reagents Co., Ltd. | 2250S | AB_2247211 |
| Cytoscape | קונסורציום Cytoscape | גרסה 3.2.1 | SCR_003032 |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q711-02 | — |
| מכשיר אלקטרו-אקופנקטורה | Nanjing Jisheng Medical Technology Co., Ltd. | HANS-200A | — |
| שמונה ערוצים (2 × 4) מערך מיקרו-אלקטרודות | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| ערכת ELISA (NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| ערכה ל-ELISA (cTnT) | MM-0795R2 | — | |
| ערכה לכימילומנסנס מוגבר | Proteintech Group, Inc | PK10001 | — |
| נוגדן עיזים נגד IgG של ארנב | Aimee Technology Co., Ltd. | 111-545-003 | AB_2338046 |
| נוגדן משני Goat Anti-Mouse IgG המשורשר ל-HRP | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | לא רלוונטי |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| תוכנת ImageJ | המכונים הלאומיים לבריאות | גרסה 4.0 | SCR_003070 |
| מערכת דימוי | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| מכשיר הרדמה רב-ערוצי לבעלי חיים קטנים | RWD Life Science Co., Ltd | R510-22-10 | — |
| מיקרוסקופ | Olympus Optical Co., Ltd. | DP72 | — |
| תוכנת NeuroExplorer | Beijing Plexon Technology Co., Ltd. | גרסה 5.0 | SCR_001818 |
| תוכנת Offline Sorter | Beijing Plexon Technology Co., Ltd. | גרסה 4.7.2 | SCR_000012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| כבל Limb II סטנדרטי של Powerlab מערכת | AD Instruments International Trading Co., Ltd. | ML118 | — |
| עמודת לכידה PepMap Neo | Thermo Fisher Scientific | — | — |
| מעכבי פוספטאז | Shanghai Biyuntian Biotechnology Co., Ltd. | P1081 | — |
| תוכנת R | — | גרסה 4.5.2 | SCR_001905 |
| בופר ליזיס RIPA | Yeasen Biotechnology Co., Ltd. | 20115ES60 | — |
| RNAiso Plus | TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| מערכת אולטרסאונד דיגיטלית לבעלי חיים קטנים | Feiyino Technology Co., Ltd. | מעבדה VINNO6 | — |
| תוכנה סטטיסטית | תוכנת GraphPad | גרסה 8.0 | SCR_002798 |
| רכישת אות רב-ערוצית ב-OmniPlex מערכת | Beijing Plexon Technology Co., Ltd. | גרסה 1.20.0 | — |
| Triton X-100 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| מערכת Vanquish Neo UHPLC | Thermo Fisher Scientific | — | — |
| µPAC עמודת Neo High Throughput | Thermo Fisher Scientific | — | — |
מקורות
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.