ניתוחים טרנסקריפטומיים משולבים של תאי מאס (bulk) ותאים בודדים זיהו שישה סמנים ביולוגיים אבחנתיים הקשורים למטבוליזם של ההם עבור קלואידים. תיקוף ניסויי תמך בבקיעת הוויסות (dysregulation) של הקולטן 1 של תת-קבוצה C של נגיף הלוקמיה של חתולים (FLVCR1) בפיברובלסטים של קלואיד, בעוד שעגינה מולקולרית (molecular docking) זיהתה את (+)-gallocatechin כתרכובת פוטנציאלית המקיימת אינטראקציה עם FLVCR1, דבר המצדיק חקירה תפקודית נוספת.
מאמר מחקר
זיהוי ביומארקרים הקשורים למטבוליזם של ההם בקלואידים באמצעות ניתוח טרנסקריפטומי ופיברובלסטים אנושיים בתרבית
במאמר זה
סיכום
תקציר
קלואיד (Keloid) הוא הפרעה פיברו-פרוליפרטיבית עם שיעור רצידיס (חזרה) גבוה ופתוגנזה לא ברורה, וחסר יעדים טיפוליים יעילים. ראיות אחרונות מצביעות על כך שתכנות מחדש מטבולי, ובמיוחד במטבוליזם של ההם, עשוי להניע פיברוזיס. מחקר זה בוחן את תפקידו של מטבוליזם ההם, תוך התמקדות ברצפטור 1 של תת-קבוצה C של נגיף הלוקמיה של חתולים (FLVCR1), בפתוגנזה של קלואיד ובודק את הפוטנציאל האבחנתי והטיפולי שלו. ניתחנו מאגרי נתוני bulk RNA-seq ונתוני RNA-seq של תא בודד (scRNA-seq). ביטוי דיפרנציאלי, מודלים של LASSO (least absolute shrinkage and selection operator) ויער אקראי (RF) זיהו סממנים ביולוגיים אבחנתיים הקשורים למטבוליזם של ההם. בוצעו ניתוחים של חדירה חיסונית, מיפוי של תאים בודדים, בניית רשת microRNA (miRNA) ועגינה מולקולרית (molecular docking) עם תרכובות של רפואה סינית מסורתית. שש biomarkers הקשורים למטבוליזם של ההם זוהו, ויצרו נומוגרמה אבחנתית בעלת דיוק גבוה. FLVCR1, המועשר בתאי אנדותל ובמלנוציטים, נמצא במתאם שלילי עם תאי T follicular helper, מה שמרמז על קשר אימונו-מטבולי. ניתוח רשת רגולטורית של miRNA חשף חמישה miRNAs המטרגים במשותף את כל ששת הסממנים הביולוגיים. עגינה מולקולרית זיהתה את (+)-gallocatechin כליגנד בעל זיקה גבוהה ל-FLVCR1. ממצאים אלה מצביעים על קשר בין מטבוליזם ההם הקשור ל-FLVCR1 לבין שינויים חיסוניים בפתוגנזה של קלואיד. פאנל הסממנים הביולוגיים הראה פוטנציאל אבחנתי חקרני, ו-(+)-gallocatechin זוהה כתרכובת מועמדת לאינטראקציה עם FLVCR1 הדורשת תיקוף נוסף. מחקר זה ממסגר מחדש את הקלואיד בתוך הספקטרום המטבולי-פיברוטי ומציע התערבות מטבולית-חיסונית כאסטרטגיה טיפולית חדשנית.
מבוא
קלואיד (Keloid), הפרעה פיברו-פרוליפרטיבית המתאפיינת בהשקעה מוגברת של מטריקס חוץ-תאיה החורגת מגבולות הפגיעה המקורית בעור, פוגעת ב-4–16% מהאוכלוסייה העולמית, עם שכיחות גבוהה באופן ניכר בקרב אנשים ממוצא אפריקאי, אסייתי והיספני1,2. למרות אופיו ההיסטולוגי השפיר, הקלואיד גורם לנטל פיזי ופסיכו-סוציאלי משמעותי עקב גרד מתמשך, כאב, קונטרקטורה תפקודית ופגיעה קוסמטית. שיטות הטיפול הנוכחיות, הכוללות קורטיקוסטרואידים תוך-נגעיים, כריתה כירורגית, רדיו-תראפיה וטיפול בלייזר, נותרות לא אופטימליות, עם שיעורי רצידיס העולים על 50% לאחר מונו-תראפיה3,4,5. מבוי טיפולי זה מדגיש פער יסודי בהבנתנו את הפתוגנזה של הקלואיד, ובמיוחד את הגורמים המפעילים השליליים שיוזמים ומשמרים את הקסקדה הפיברוטית מעבר לאיתות פרו-פיברוטי קנוני.
מחקרים עכשוויים התמקדו בעיקר במסלולים קנוניים כגון סיגנלינג של TGF-β/Smad והפעלה חריגה של פיברובלסטים6,7,8. על אף שחדירת תאי מערכת החיסון — ובמיוחד מקרופאגים בעלי קיטוב M2, תאי T רגולטוריים ותאים דנדריטיים שאינם מתפקדים כסדרם — תועדה ברקמות קלואיד9,10, חקירות אלו מתייחסות במידה רבה לשינויים חיסוניים כתוצאות משניות של תפקוד לקוי של פיברובלסטים, ולא כגורמים מניעים. באופן קריטי, התוכניות המטבוליות שעשויות לעצב באופן פעיל את האינטראקציה האימונו-פיברוטית הזו נותרו ללא חקירה כלל בפתוגנזה של קלואיד11,12,13. פער ידע זה הוא בולט, בהתחשב בפרדיגמות עולות בהפרעות פיברוטיות שבהן חיווט מטבולי מחדש משמש כרגולטור מרכזי של עיצוב מחדש של הרקמה.
תכנון מחדש של המטבוליזם (Metabolic reprogramming) הגיש לאחרונה כצומת מרכזית בתהליכי פיברוגנזה במערכות איברים מרובות. בפיברוזיס ריאתי וכבדי, הפרעה בהומאוסטזיס של ההם — באמצעות ביטוי משתנה של נשאים, ס清除ים (scavengers) או אנזימים ביוסינתטיים — מעוררת סטרס חמצוני, פרופטוזיס ודלקת סטרילית המקדמים באופן ישיר שקיעת קולגן14. הצטברות של הם מפעילה את האינפלמסום NLRP3 להנעת שפעול פיברובלסטים, בעוד שחסר בקולטן 1 של תת-קבוצה C של נגיף הלוקמיה של חתולים (FLVCR1) מחמיר את פיברוזיס הרקמה עקב רעילות של הם שאינה נפתרת. ממצאים אלו ממצבים את מטבוליזם ההם לא רק כתהליך תחזוקתי, אלא כמרכז סיגנלי דינמי המסוגל להניע רצפים פיברוטיים — פרדיגמה שטרם נבחנה בהפרעות פיברו-פרוליפרטיביות של העור.
הסבירות של אימונומודולציה המתווכת על ידי ההם נתמכת עוד יותר על ידי ראיות מכניסטיות ממודלים של סרטן ודלקת כרונית. ההם פועל כמולקולת איתות המווסתת ישירות את גורל תאי החיסון: הוא מקדם קיטוב של מקרופאגים מ-M1 ל-M2 באמצעות איתות TLR4/NF-κB15, משפיע על בידול של תאי T באמצעות דיכוי תעתוק המתווך על ידי Bach216, ומווסת באופן קריטי את הבשלת תאי דנדריטיים באמצעות ייצוא המם התלוי ב-FLVCR117,18. בייחוד, FLVCR1, מייצא המם מקרום הפלסמה החיוני להומיאוסטזיס תאי של ההם, נקשר לאחרונה להתפתחות תאי חיסון ולדיספונקציה אנדותל berühm19. קווי ראיות מתכנסים אלו מציבים את FLVCR1 כצומת מולקולרי סביר המקשר בין הפרעה מטבולית של ההם לבין עיצוב מחדש פתולוגי של מערכת החיסון — היפותזה בעלת השלכות עמוקות על הפתוגנזה של קלואיד, בהתחשב במיקרו-סביבה העשירה בתאי חיסון האופיינית לו.
על אף התקדמות משמעותית בהבנת השילוב בין המ (heme) למערכת החיסון בהקשרים מחלה אחרים, טרם נבדק אם חילוף חומרים משובש של המ משמש כמניע שורה-עליונה המאתחל או מעצים את הנוף החיסוני הפתולוגי בקלואידים. פער ידע קריטי זה מצדיק חקירה דחופה ממספר סיבות השזורות זו בזו: קלואידים חולקים מאפיינים פתולוגיים בולטים — כולל דלקת מתמשכת ועקה חמצונית — עם הפרעות פיברוטיות המונעות מטבולית, כגון פיברוזיס ריאתי וכבדי, מה שמרמז על שמיניות פוטנציאלית במנגנוני הבקרה הבסיסיים. מנגנון ייצוא ההמ הממוקד ב-FLVCR1 תוקף מבחינה מכניסטית ברקמות שאינן עור כדי לשלוט ישירות בפונקציות חיסוניות מרכזיות, כגון קיטוב מקרופאגים והבשלת תאי דנדריטיים, ובכך מספק בסיס תיאורטי מוצק להכללתו על אימונופתולוגיה של קלואידים20. חשוב מכך, התמקדות בציר המטבולי-חיסוני זה מציעה הזדמנות לשינוי פרדיגמה, מעבר לטיפולים סימפטומטיים נוכחיים המדכים אך ורק השפעות פיברוטיות בשלב מאוחר, ובכך עשויה לאפשר התערבות בשורה-עליונה במקור המטבולי של התקדמות המחלה21.
בהתבסס על רציונל זה, השבנו השערה כי שיבוש במטבוליזם של ההם הממוקד ב-FLVCR1 מעצב באופן פעיל את המיקרו-סביבה החיסונית כדי להניע את הפתוגנזה של קלואיד. כדי לתקף השערה זו באופן שיטתי, שילבנו ניתוחים טרנסקריפטומיים של תאים בודדים (single-cell) ושל מרבית התאים (bulk) בגישה רב-שכבתית: ראשית, זיהינו ותקפנו ביומרקרים אבחנתיים הקשורים למטבוליזם של ההם ברקמות קלואיד באמצעות אלגוריתמים של למידת מכונה ואימות בקוהורט עצמאי; לאחר מכן, מיפינו את דפוסי הביטוי המרחביים של ביומרקרים אלו במדורג cellular נפרדים — כולל תאי אנדותל, פיברובלסטים, מלנוציטים ותתי-אוכלוסיות חיסוניות — באמצעות מיפוי ברזולוציה של תא בודד; בהמשך, הגדרנו את המתאמים הכמותיים שלהם עם אוכלוסיות ספציפיות של תאי מערכת החיסון כדי לבסס קשרים פונקציונליים בין המטבוליזם למערכת החיסון; ולבסוף, בנינו רשת ויסות של microRNA (miRNA) הממוקדת ב-FLVCR1 וביצענו סימולציות של עגינה מולקולרית (molecular docking) עם תרכובות מרפואה סינית מסורתית כדי לזהות נקודות התערבות תרופתיות. חקירה מקיפה זו לא רק חושפת ציר של מטבוליזם-הם ומערכת חיסון שלא זוהה בעבר בפתוגנזה של קלואיד, אלא גם מספקת פאנל ביומרקרים בעל רלוונטיות תרגומית עם פוטנציאל אבחנתי וטיפולי כפול עבור הפרעה פיברו-פרוליפרטיבית עקשנית זו.
פרוטוקול
אישור אתי והסכמה מדעת לא היו רלוונטיים למחקר זה מכיוון שכל הנתונים הושגו ממאגרי מידע הזמינים לציבור, כולל ה-Gene Expression Omnibus (GEO), ולא היו מעורבים באופן ישיר משתתפים אנושיים שניתן לזהותם או נבדקי חיות.
רכישת נתונים ועיבוד מקדמי
הגנים הקשורים למטבוליזם של הם (heme) התקבלו ממאגר החתימות המולקולריות (MSigDB; ראו את טבלת החומרים ו-טבלה נלווית S1), כולל קבוצות גנים מ-REACTOME_Heme_Biosynthesis, REACTOME_Heme_Degradation, Wikipathway_Heme_Biosynthesis, REACTOME_Scavenging_Heme_from_Plasma, ו-HALLMARK_Heme_Metabolism. כל מערכי הנתונים שנותחו במחקר זה התקבלו ממקורות הזמינים לציבור. שני מערכי נתוני מיקרו-מערכים (microarray) של ביטוי גנים ב-bulk נשלפו ממאגר ה-Gene Expression Omnibus (GEO): GSE44270, הכולל 18 דגימות קלואיד ו-14 דגימות עור נורמלי, ו-GSE7890, הכולל 10 דגימות קלואיד ו-9 דגימות עור נורמלי. GSE44270 ו-GSE7890 הופקו בפלטפורמות GPL6244 ו-GPL570, בהתאמה. קבצי ה-series matrix והמידע התואם על הדגימות הורדו ויובאו לסביבת R. מכיוון שערכי הביטוי בקבצי ה-series matrix כבר עברו עיבוד מקדים ונורמליזציה על ידי מגישי הנתונים המקוריים, לא בוצעו טרנספורמציית log2 נוספת או נורמליזציה בין דגימות. שני מערכי הנתונים עובדו באופן עצמאי ולא מוזגו מכיוון שהופקו בפלטפורמות מיקרו-מערכים שונות. מערכי הנתונים עובדו מראש כפי שמתואר להלן (ראו את טבלת החומרים). גששים (probes) של גנים מופו לסמלי הגנים התואמים להם, וגששים שהיו חסרי אנוטציות של גנים או התאימו למספר גנים הוצאו מהניתוח. עבור גנים עם מספר קבוצות גששים, ערך הביטוי נקבע על בסיס רמת הביטוי הגבוהה ביותר שהזוהתה. בנוסף, נתונים של ריצוף RNA של תאים בודדים (scRNA-seq) מ-GSE163973, הכילים שלוש דגימות קלואיד, הורדו ועובדו בהתאם לתקני בקרת האיכות שהוגדרו במחקר המקורי.
סריקה ותיקוף של סממנים אבחנתיים הקשורים למטבוליזם של ההם בקלואיד
על מנת לזהות גנים הקשורים למטבוליזם של ההם המבטאים ביטוי דיפרנציאלי בקלואיד, הוחל מבחן הדירוג של וילקוקסון (Wilcoxon rank-sum test) על GSE44270 באמצעות הפונקציה wilcox.test ב-R, עם סף מובהקות של P < 0.05. כדי לזהות סממנים אבחנתיים פוטנציאליים לקלואיד (keloid), נעשה שימוש בשני מודלים של למידת מכונה: יער אקראי (random forest - RF) ורגרסיה לוגיסטית מסוג LASSO (least absolute shrinkage and selection operator). ניתוח יער אקראי בוצע עם גרעין אקראי (random seed) של 1 כדי להבטיח הדירות (ראו את ה- טבלת חומריםהמודל נבנה באמצעות 500 עצים (ntree = 500), וחשיבות הגנים הוערכה על סמך הירידה הממוצעת בטומאת הצמתים (IncNodePurity). גנים עם ערכי חשיבות הגבוהים מ-0.3 נבחרו כסממנים ביולוגיים מועמדים שהופקו בשיטת Random Forest. רגרסיה לוגיסטית מסוג LASSO בוצעה עם α = 1, ונבחנו 50 ערכי lambda במהלך אימון המודל (ראו את ה טבלת חומרים. פרמטר הענישה האופטימלי נקבע באמצעות תיקוף צולב של 5 קיפולים (5-fold cross-validation) באמצעות הפונקציה cv.glmnet, עם תגובה בינומית. גנים עם מקדמי רגרסיה שאינם אפס נשמרו כמועמדים שנבחרו בשיטת LASSO. לבסוף, חיתוך הגנים שזוהו על ידי Random Forest ורגרסיית LASSO נחשב כחתימת הגנים האבחנתית הסופית. חתימת הגנים האבחנתית הסופית הוערכה באמצעות מודל מבוסס נומוגרמה. כל בחירת המאפיינים והערכת פרמטרי המודל בוצעו באופן בלעדי בקוהורט הגילוי (GSE44270), והחתימה שנקבעה של שישה גנים הוערכה בהמשך בקוהורט תיקוף עצמאי (GSE7890). הביצועים האבחנתיים של הנומוגרמה הוערכו על ידי חישוב השטח תחת עקומת מאפייני התפעול של מקלט (AUC). כדי לבחון את יציבות המודל, הניתוח כלל תיקוף צולב של חמישה קיפולים ו-1,000 חזרות של דגימה חוזרת בשיטת bootstrap, שמהן נגזר AUC מתוקנן לאופטימיות (optimism-corrected AUC). לאחר מכן, נעשה שימוש בניתוח עקומת החלטה (DCA) כדי להעריך את התועלת נטו הפוטנציאלית של הנומוגרמה; עם זאת, תוצאה זו פורשה בזהירות בשל גודל המדגם הקטן.
חדירה של תאי מערכת החיסון וניתוח מתאמים
העשרה של תאי מערכת החיסון הוערכה באמצעות ניתוח העשרת קבוצות גנים לדגם בודד (ssGSEA) (ראו את ה- טבלת חומרים). מטריצת חתימת תאי החיסון הושגה ממחקר שפורסם בעבר על ידי Charoentong et al.22וכללה 782 גנים מסמנים המייצגים 28 אוכלוסיות של תאי מערכת חיסון סתגלנית ומולדת. הניתוח בוצע באמצעות גרעין גאוסיאני על ערכי ביטוי רציפים ונורמליים של מערכי מיקרו-מערך (microarray). נדרש גודל מינימלי של 10 גנים בסט לאחר התאמת הגנים המסמנים למטריצת הביטוי, וציוני ה-ssGSEA שהתקבלו נורמלו. כל שאר ההגדרות נשמרו בערכי ברירת המחדל שלהן. לאחר מכן חושבו מקדמי מתאם של פירסון כדי להעריך את הקשרים בין ציוני העשרה של תאי מערכת החיסון לבין ביטוי גנים אבחנאי. מטריצת המתאם שהתקבלה הוצגה ויזואלית כתרשים מתאם, וקשרים נבחרים הוצגו בהמשך כתרשימי סוכרייה על מקל (lollipop plots) (ראו את ה- טבלת חומרים).
עיבוד וניתוח נתוני רצף RNA של תא בודד
נתוני ריצוף RNA מתא בודד (Single-cell RNA sequencing) התקבלו מ-GSE163973, ורק שלוש דגימות הקלואיד, KF1, KF2 ו-KF3, נכללו בניתוח הנוכחי. נתוני הביטוי יובאו ועובדו כמתואר להלן (ראה את ה- טבלת חומריםתאים עם פחות מ-200 או יותר מ-6,000 ספירות כוללות של מזהים מולקולריים ייחודיים (UMI) הוצאו מהניתוח, וכפילויות (doublets) חזויות הוסרו. ספירות ביטוי גנים עבור כל תא נורמלו לפי הביטוי התאי הכולל, הוכפלו במקדם קנה מידה של 10,000, ועברו טרנספורמציה לוגריתמית. שונות הקשורה לאפקט של סדרות (batch-associated variation) הוסרה באמצעות רגרסיה במהלך נרמול הנתונים (scaling), והשאריות המנורמלות שהתקבלו שימשו לניתוחים המשכיים. 2,000 הגנים בעלי השונות הגבוהה ביותר נבחרו על בסיס הביטוי הממוצע והפיזור שלהם, ועבורם בוצע ניתוח רכיבים ראשיים (PCA). 15 הרכיבים הראשיים הראשונים שימשו לבניית גרף של k-שכנים קרובים ביותר (k-nearest-neighbor graph) על בסיס מרחקים אוקלידיים, אשר הומר לאחר מכן לגרף שכנים קרובים משותפים (shared nearest-neighbor graph). התאים קובצו באמצעות אלגוריתם Louvain ברזולוציה של 0.8, ובוצעה הפרויקציה והקירוב של רבנים אחידים (UMAP) באמצעות אותם 15 רכיבים ראשיים. סוגי התאים סווגו בהתאם להגדרות סוגי התאים שדווחו במחקר המקורי, והסיווגים שהתקבלו נרשמו בשדה המטא-דאטה. סיווגי סוגי התאים והקצבות לצבירים הוצגו ויזואלית על קואורדינטות ה-UMAP, וביטוי גנים אבחנאי הוצג על פני אוכלוסיות התאים המסווגות.
בניית רשת הבקרה של miRNA–mRNA
רשת הבקרה של miRNA–mRNA נבנתה כפי שמתואר להלן (ראה טבלת החומרים). האורגניזם שנבחר היה Homo sapiens, ומזהי הגנים סופקו כסמלי גנים רשמיים (Official Gene Symbols). הגנים המועמדים הוכנסו למודול אינטראקציות בין גנים ל-miRNA, ומסד הנתונים TarBase v9.0 נבחר כבסיס נתוני האינטראקציות. TarBase מכיל אינטראקציות רגולטוריות של miRNA–גנים שהוכחו ניסיונית. לצורך בניית הרשת, נשמרו רק אינטראקציות miRNA–mRNA שנ supported ניסיונית ואשר כללו את הגנים המועמדים שהוזנו, בעוד שאינטראקציות שנחזו ללא ראיות ניסיוניות הוצאו מהניתוח. לא הוטל סף נוסף של מדד ביטחון (confidence-score).
סינון וירטואלי מבוסס מבנה ואנליזת דוקינג מולקולרי
בוצע סינון וירטואלי (Virtual screening) במטרה לתעדף ליגנדים מועמדים מספריית תרכובות כנגד FLVCR1 אנושי (feline leukemia virus subgroup C receptor-related protein 1; ראו את ה- טבלת חומריםבאמצעות תהליך עבודה של סינון וירטואלי מבוסס-מבנה (SBVS). המבנה התלת-ממדי של FLVCR1 אנושי השג ממאגר נתוני החלבונים (PDB ID: 8UBZ). מבנה זה מייצג FLVCR1 אנושי קשור לקולין, שנקבע באמצעות מיקרוסקופיה אלקטרונית קריוגנית של חלקיק בודד ברזולוציה גלובלית של 3.02 Å (מספר זיהוי ב-EMDB: EMD-42110). המבנה שנקבע בניסוי נבחר מכיוון שהוא מכיל את הקונפורמציה של FLVCR1 כאשר התסביב קשור, ובכך הוא מספק מידע מבני להגדרת חלל קישור הליגנד הרלוונטי פיזיולוגית. במהלך הכנת הרצפטור, מולקולות הכולין (CHT) והכולסטרול המי-סוצינאט (Y01) שהתגלו במבנה נשמרו כדי לשמר את הסביבה המבנית המקיפה את אזור כניסת התסביב וקישור הליגנד. מרחב החיפוש לעגון (docking) הוגדר סביב חלל קישור התסביב/הליגנד של FLVCR1, כולל אזור קישור הכולין שהתגלה במבנה. מרכז תיבת הרשת (grid box) נקבע ב-x = 160.587 Å, y = 160.613 Å, ו-z = 160.484 Åמימדי תיבת העגינה (docking box) נקבעו ל-[X × Y × ז' Åכדי להבטיח כיסוי נאות של חלל קישור התסביס (substrate-binding cavity) ושל השאריות שסביבו. תרכובות מועמדות עוגנו לאחר מכן באזור קישור מוגדר מראש זה. תנוחות העגינה דורגו על פי זיקות הקישור החזויות שלהן, כאשר ציוני עגינה שליליים יותר העידו על אינטראקציות חזויות נוחות יותר בין הליגנד ל-FLVCR1. התרכובות בעלות הדירוג הגבוה ביותר נבחרו לניתוחים המשכיים של מצב הקישור (binding-mode) ושל אינטראקציות חלבון–ליגנד.
סימולציית דינמיקה מולקולרית וחישוב אנרגיה חופשית של קישור בשיטת MM/GBSA
סימולציית דינמיקה מולקולרית (MD) שימשה לבחינה מעמיקה יותר של קומפלקס החלבון–ליגנד החזוי (ראה את ה- טבלת חומריםהטופולוגיה של הליגנד הוכנה על ידי הקצאת פרמטרים של General Amber Force Field (GAFF) ושילוב מטעני restrained electrostatic potential (RESP). לאחר מכן, הקומפלקס תואר באמצעות שדה הכוחות Amber99SB-ILDN, הוצב בתוך פוטנציאל בין-מולקולרי ניתן להעברה עם מודל מים בעל 3 נקודות, ונוטרל באמצעות שלושה יוני Na.⁺ יונים. לאחר מינימום אנרגיה בשיטת הירידה התלולה ביותר (steepest-descent), המערכת הועברה לשיווי משקל למשך 100 ps תחת אנסמבל של מספר חלקיקים, נפח וטמפרטורה קבועים (NVT), ולמשך 100 ps נוספים תחת אנסמבל של מספר חלקיקים, לחץ וטמפרטורה קבועים (NPT), עם 100,000 צעדים בכל שלב. לאחר מכן בוצעה הרצת ייצור (production run) של 100 ns בטמפרטורה של 300 K ובלחץ של 1 bar, תוך שימוש בצעד זמן של 2 fs. המסלול (trajectory) שהתקבל נותח לבחינת סטיית השורש הממוצעת של הריבועים (RMSD), תנודה של שורש ממוצע הריבועים (RMSF), רדיוס הגירציה (Rg), שטח פנים נגיש לממס (SASA), עמידות קשרי מימן, ואנרגיית קישור חופשית בשיטת מכניקה מולקולרית/שטח פנים של Born מוכלל (MM/GBSA).
תרבית תאים
את שורת התאים NHDF (פיברובלאסטים עוריים אנושיים נורמליים) ואת שורת התאים PKF (פיברובלאסטים ראשוניים מקלואיד) גידלו במצע גידול לפיברובלאסטים המועשר ב-2% fetal calf serum, גורם גדילה בסיסי של פיברובלאסטים אנושי רקומביננטי (1 ng/mL), ואינסולין (5 µg/mL). שתי שורות התאים הוחזקו באינקובטור לח בטמפרטורה של 37 °C עם 5% CO₂, ועברו מעבר (passaged) עם הגעתן ל-80–90% התמזגות (confluence).
ניתוח Western blot
חלבון כולל בודד מתאי NHDF ו-PKF באמצעות בופר ליזיס המורכב מ-radioimmunoprecipitation assay, phenylmethylsulfonyl fluoride, תערובת מעכבי פרוטאז ומעכבי פוספטאז. ריכוז החלבון נקבע באמצעות בדיקת bicinchoninic acid, ולאחר מכן כמויות שוות של חלבון הופרדו בשיטת sodium dodecyl sulfate–polyacrylamide gel electrophoresis והועברו לממברנת polyvinylidene fluoride. הממברנה נחסמה למשך 90 דקות בטמפרטורת החדר עם 5% חלב רזה ללא שומן שהוכן ב-Tween/Tris-buffered saline, ולאחר מכן עובדה למשך לילה ב-4 °C עם נוגדנים ראשוניים נגד FLVCR1 (rabbit polyclonal, 1:1,000) ו-GAPDH (mouse monoclonal, 1:20,000). למחרת, בוצעה אינקובציה עם הנוגדן המשני למשך 90 דקות בטמפרטורת החדר. עוצמות הפסים נמדדו באמצעות ImageJ, ורמות החלבון היחסיות נורמלו לבקרת הפנים GAPDH. לפחות שלוש חזרות ביולוגיות בלתי תלויות שימשו עבור כל בדיקת western blot.
ניתוח PCR כמותי עם שעתוק הפוך ופלואורסצנציה בזמן אמת (qRT-PCR)
RNA כולל הופק מתאי NHDF ו-PKF באמצעות הערכה המוזכרת. לאחר מכן יוצר cDNA באמצעות תערובת cDNA Synthesis Mix ל-qPCR (עם dsDNase) המוזכרת. qRT-PCR בוצע במערכת PCR בזמן אמת, וביטוי של FLVCR1 נמדד באמצעות SYBR Green Fast Mix המוזכר. mRNA של GAPDH שימש כביסוף פנימי לנורמליזציה. כל תגובת qRT-PCR בוצעה בשלוש חזרות טכניות, ורמות mRNA יחסיות חושבו בשיטת 2−ΔΔCt. כל ניסוי בוצע באופן עצמאי לפחות שלוש פעמים, ורצפי הפריימרים מופיעים ב-טבלה משלימה S2.
ניתוח סטטיסטי
הבדלים בין קבוצות נבחנו באמצעות מבחן Wilcoxon rank-sum, והערכים מדווחים כממוצע ± סטיית תקן (SD). קשרים בין משתנים רציפים נבחנו באמצעות מקדם המתאם של Pearson. תוצאות עם P < 0.05 נחשבו למשמעותיות סטטיסטית. רמות המשמעות סומנו כ-ns, P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; ו-****, P < 0.0001.
תוצאות
סריקת סממנים ביולוגיים אבחנתיים מועמדים לקלואיד באמצעות אלגוריתם למידת מכונה
סך כולל של 283 גנים הקשורים למטבוליזם של ההם נכללו במחקר זה. ניתוח ביטוי דיפרנציאלי של מערך הנתונים GSE44270, המשווה בין רקמות עור של קלואיד לרקמות עור נורמליות, זיהה 25 גנים בעלי ביטוי דיפרנציאלי מובהק (איור 1A ו-טבלה משלימה S3). כדי לסנן אותם סממנים ביולוגיים הקשורים למחלה, רגרסיית LASSO זיהתה 9 גנים מועמדים (איור 1B,C ו-טבלה משלימה S3), בעוד שאלגוריתם היער האקראי (RF) בחר 11 גנים בעלי חשיבות ניבויית גבוהה (איור 1D ו-טבלה משלימה S3). החפיפה בין תוצאות ה-LASSO ל-RF הוצגה באמצעות תרשים ונ, שהניב שישה סממנים ביולוגיים מרכזיים, שהם FLVCR1, TMCC2, EIF2AK1, XK, HPX ו-KEL (איור 1E ו-טבלה משלימה S3). ניתוח עקומת מאפיינים של מקלט (ROC) בקוהורט GSE44270 הדגים ביצועים אבחנאיים חיוביים עבור כל ששת הסממנים הביולוגיים, עם ערכי AUC של 0.8016 עבור FLVCR1, 0.7063 עבור TMCC2, 0.7817 עבור EIF2AK1, 0.7460 עבור XK, 0.7500 עבור HPX ו-0.7857 עבור KEL (איור 1F). על בסיס שישה סממנים ביולוגיים אלה, נבנה לאחר מכן נומוגרמה אבחנאית לקלואיד באמצעות חבילת rms ב-R (איור 1G).
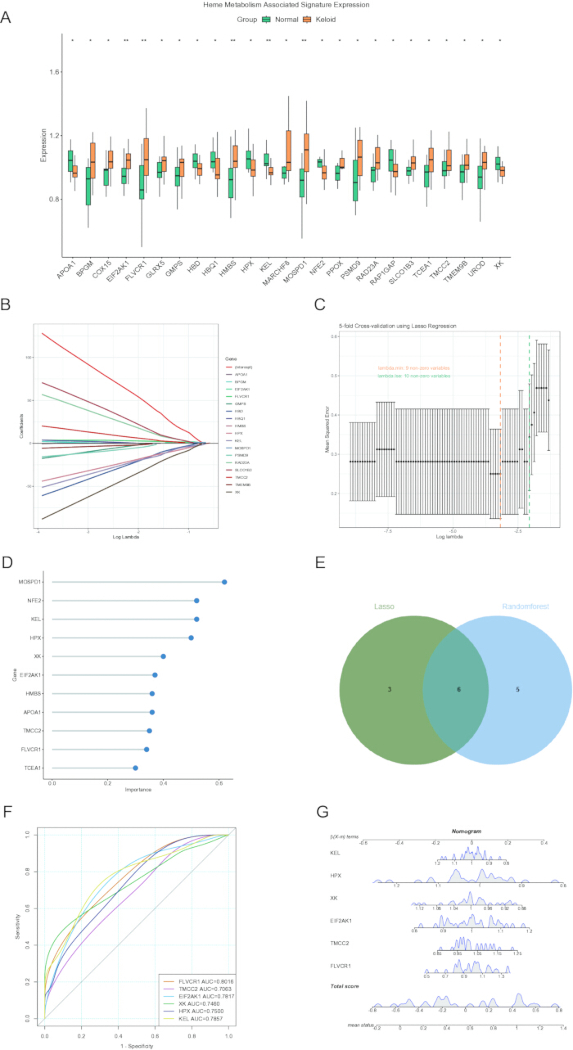
איור 1: זיהוי גנים מועמדים הקשורים למטבוליזם של ההם (heme) הקשורים לקלואיד באמצעות אלגוריתמים של למידת מכונה. (A) תרשים קופסה (Box plot) הממחיש את הביטוי הדיפרנציאלי של גנים הקשורים למטבוליזם של ההם בין רקמות קלואיד לרקמות נורמליות. (ב,גניתוח רגרסיה לוגיסטית מסוג LASSO לסריקת סממנים אבחנתיים פוטנציאליים.ד') סממנים ביולוגיים מועמדים שנבחרו על ידי אלגוריתם ה-RF. (ה) דיאגרמת ון המציגה את הגנים החופפים שזוהו על ידי שני אלגוריתמי למידת המכונה. (Fניתוח עקומת ROC להערכת הביצועים האבחנתיים של הביומרקרים המועמדים.G) נומוגרמה לניבוי קלוייד המבוססת על חתימה של שישה גנים. קיצורים: LASSO, מפעיל הבחירה והכיווץ המינימלי המוחלט; RF, יער אקראי; ROC, מאפייני הפעלה של מקלט. מובהקות סטטיסטית: ns, P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; ו-****, P < 0.0001. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
ביצועי הניבוי של הנומוגרמה האבחנתית הוערכו הן בקבוצת האימון (GSE44270) והן בקבוצת התיקוף (GSE7890). המודל הפגין דיוק אבחנתי מצוין, עם ערכי AUC של 0.984 (95% CI: 0.950–1.000) ו-0.922 (95% CI: 0.806–1.000), בהתאמה (איור 2A,D). כדי להעריך עוד יותר את החוסן ואת פוטנציאל ההתאמת-היתר (overfitting) של החתימה האבחנתית בעלת ששת הגנים, בוצעו ניתוחי תיקוף פנימיים נוספים בקבוצת הגילוי (GSE44270). תיקוף צולב חמיש-מי-כל (Fivefold cross-validation) הדגים ביצועי הבחנה עקביים בין תתי-הקבוצות, עם AUC ממוצע של 0.925, מה שמעיד כי המודל שמר על ביצועי סיווג יציבים למרות שינויים בדגימות האימון. יתרה מכך, תיקוף bootstrap עם 1,000 חזרות של דגימה מחדש הניב AUC ממוצע של 0.930 (95% CI: 0.794–1.000). לאחר התאמה עבור אופטימיות פוטנציאלית שנגרמה מגודל מדגם מוגבל, ה-AUC המתוקנן לאופטימיות נשאר 0.930, מה שמרמז כי הביצועים האבחנתיים של החתימה בעלת ששת הגנים היו יציבים יחסית לאחר התיקוף הפנימי. בנוסף, ניתוח עקומת החלטה (DCA) העלה כי לנומוגרמה פוטנציאל לתועלת נטו גבוהה יותר מאסטרטגיות אבחנתיות חלופיות במגוון של הסתברויות סף, אם כי יש לפרש ממצאים אלו בזהירות בהתחשב בגודל המדגם המוגבל (איור 2B,E). בנוסף, דגימות קלואיד הפגינו ציוני סיכון גבוהים משמעותית מאשר בישControls בריאים הן בקבוצת האימון והן בקבוצת התיקוף (איור 2C,F), מה שמוכיח באופן נוסף את היציבות והמהימנות של המודל האבחנתי.
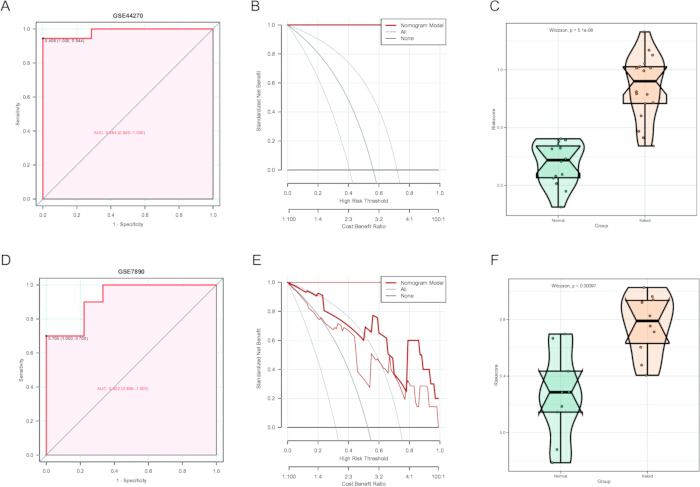
איור 2: תיקוף של הנומוגרמה לניבוי קלוייד. (A) עקומת ROC המעריכה את ביצועי הניבוי של הנומוגרמה במערך הנתונים GSE44270. (B) DCA המעריכה את התועלת הקלינית של הנומוגרמה ב-GSE44270. (C) התפלגות מדד הסיכון בהשוואה בין דגימות קלוייד לדגימות בריאות ב-GSE44270. (D) עקומת ROC המעריכה את ביצועי הניבוי של הנומוגרמה במערך הנתונים העצמאי GSE7890. (E) DCA המעריכה את התועלת הקלינית של הנומוגרמה ב-GSE7890. (F) התפלגות מדד הסיכון בהשוואה בין דגימות קלוייד לדגימות בריאות ב-GSE7890. קיצורים: ROC = receiver operating characteristic; DCA = decision curve analysis. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
סמנים ביולוגיים אבחנאיים קשורים למאפיינים החיסוניים של קלואיד
על מנת לחקור את הקשר בין ששת הסמנים הביולוגיים האבחנאיים לבין המיקרו-סביבה החיסונית, בוצע ניתוח קורלציה כדי להעריך את הקשרים בין ביטוי הסמנים הביולוגיים לבין חדירת תאי מערכת החיסון. התוצאות גילו כי כל ששת הסמנים הביולוגיים היו קשורים באופן מובהק למספר אוכלוסיות של תאי חיסון חודרים (איור 3A). באופן ספציפי, ביטוי של FLVCR1 נמצא בקשר שלילי עם תאי T follicular helper (איור 3B). TMCC2 הראה קורלציות חיוביות עם תאי NK (natural killer) ותאי דנדריטיים מופעלים, בעוד שהוא נמצא בקורלציה שלילית עם תאי דנדריטיים לא בשלים ותאי B לא בשלים (איור 3C–F). בנוסף, ביטוי של EIF2AK1 נמצא בקשר שלילי עם תאי NK מסוג CD56dim (איור 3G), בעוד ש-XK נמצא בקשר שלילי עםאוזינופילים (איור 3H).
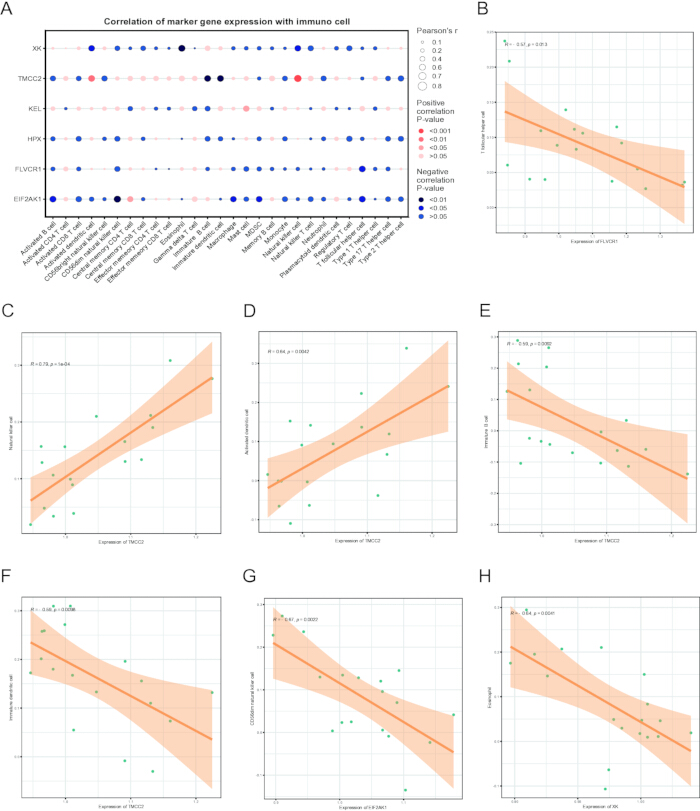
איור 3מתאם בין גנים מועמדים הקשורים למטבוליזם של ההם לבין חדירה של תאי מערכת החיסון. (A) מפת חום (Heatmap) המציגה מתאמים בין גנים מועמדים לאוכלוסיות של תאי חיסון. צבע אדום מעיד על מתאמים חיוביים, בעוד שצבע כחול מעיד על מתאמים שליליים. (B). מתאם בין FLVCR1 ביטוי ותאי T מסייעי זקיקים (T follicular helper cells). (C-Fמתאמים בין TMCC2 ביטוי ותאי NK (תאים קטילים טבעיים), תאים דנדריטיים מופעלים, תאים דנדריטיים לא בשלים ותאי B לא בשלים, בהתאמה. (ג'מתאם בין EIF2AK1 ביטוי ותאי נטוראל קילר (Natural Killer) מסוג CD56dim. (ה). מתאם בין XK ביטוי ואאוזינופילים. קיצורים: FLVCR1 = קולטן 1 לוירס הלוקמיה של חתולים תת-קבוצה C; TMCC2 = דומיינים טרנס-ממברנליים וסליליים 2; EIF2AK1 = קינאז 1 של גורם התחלת תרגום אוקריוטי 2 אלפא; CD56עמום = ביטוי חלש של cluster of differentiation 56. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
ניתוח נתוני טרנסקריפטום של תא בודד
כדי לאפיין את דפוסי הביטוי של הסמנים הביולוגיים האבחנאיים שזוהו בתוך המיקרו-סביבה של הקלואיד, ניתחנו את מערך נתוני ריצוף ה-RNA של תא בודד GSE163973. לאחר בקרת איכות ואינטגרציית נתונים, נשמרו 21,488 תאים באיכות גבוהה לניתוחים המשכיים. תאים עם פחות מ-200 או יותר מ-6,000 ספירות כוללות של מזהה מולקולרי ייחודי (UMI) הוצאו מהניתוח, ודאבלטים פוטנציאליים זוהו והוסרו באמצעות חבילת DoubletDetection. נבחרו 2,000 הגנים שהפגינו את שונות הביטוי הגבוהה ביותר, ולאחריהם בוצעו הפחתת ממדים וויזואליזציה באמצעות Uniform Manifold Approximation and Projection (UMAP). זוהו בסך הכל 10 אוכלוסיות תאים עיקריות, הכוללות תאי אנדותל, פיברובלסטים, סיבי שריר, קרטינוציטים, תאי חיסון, תאי אנדותל לימפטיים, תאים בלוטיים, תאי עצב, מלנוציטים ואוכלוסיית תאים לא מסווגת (איור 4A,B). פרופיל הביטוי חשף דפוסי התפלגות מובחנים של הסמנים הביולוגיים האבחנאיים באופן ספציפי לסוג התא. FLVCR1 בוטה בעיקר בתאי אנדותל ובמלנוציטים, בעוד ש-EIF2AK1 הראה ביטוי גבוה יחסית בתאי עצב, תאים בלוטיים ובפיברובלסטים. HPX היה מועשר בעיקר במלנוציטים, בעוד ש-KEL הפגין ביטוי דומיננטי בתאים בלוטיים (איור 4C,D).
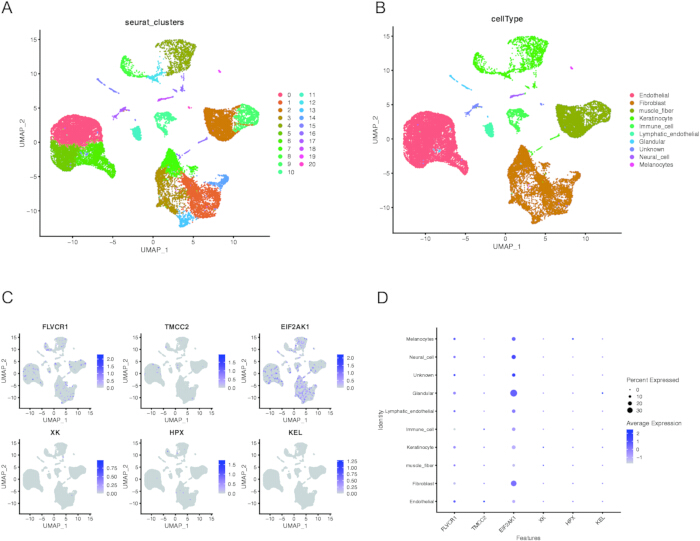
איור 4: פיזור של סממנים ביולוגיים אבחנאיים הקשורים למטבוליזם של ההם בטרנסקריפטום של תאי בודדים מקלואיד. (A) תרשים UMAP המציג 21 אשכולי תאים הכוללים 21,488 תאים מדגימות קלואיד. (B) השראות של סוגי תאים המבוססות על ההשראות שדווחו במחקר המקורי. (C) תרשימי מאפיינים המראים את הביטוי של סממנים ביולוגיים אבחנאיים הקשורים למטבוליזם של ההם בסוגי תאים שונים. (D) תרשים בועות המראה את רמות הביטוי הממוצעות ואת אחוזי התאים המבטאים את הסממנים הביולוגיים האבחנאיים הקשורים למטבוליזם של ההם בסוגי תאים שונים. קיצור: UMAP = uniform manifold approximation and projection. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
זיהוי וניתוח רשת אינטראקציות של סמנים ביולוגיים אבחנאיים מועמדים
כדי לבחון את מנגנוני הבקרה העומדים בבסיס הביומארקרים האבחנאיים הפוטנציאליים, נבנתה רשת בקרה של miRNA–mRNA. כדי לשפר את מהימנות האינטראקציות שנחזו, זוהו miRNA שחופפים במיקודם אל הביומארקרים הפוטנציאליים. בסך הכל התקבלו 282 miRNA המקיימים אינטראקציה עם ששת הביומארקרים האבחנאיים, ורשת הבקרה שהתקבלה מוצגת ב-איור 5. ראוי לציין כי hsa-miR-34a-5p, hsa-let-7a-5p, hsa-let-7d-5p, hsa-let-7e-5p ו-hsa-miR-26b-5p נחזו ככאלה המווסתים בו-זמנית את כל ששת הביומארקרים הפוטנציאליים.
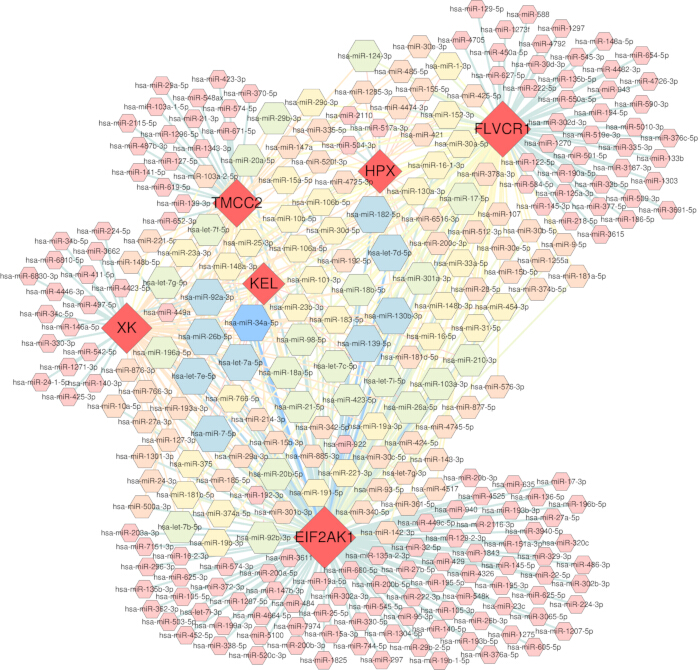
איור 5: רשת רגולטורית של miRNA עבור סמנים ביולוגיים אבחנאיים הקשורים למטבוליזם של ההם. הרשת ממחישה את קשרי הרגולציה בין ששת הגנים של הסמנים הביולוגיים האבחנאיים (FLVCR1, HPX, TMCC2, KEL, XK, ו-EIF2AK1) ובין ה-miRNAs הקשורים אליהם. צומתי הגנים מייצגים את הסמנים הביולוגיים האבחנאיים, בעוד שהצמתים שמסביב מייצגים miRNAs. הקווים (Edges) מצביעים על אינטראקציות miRNA–mRNA המגובות ניסיונית. קיצורים: FLVCR1 = feline leukemia virus subgroup C receptor 1; HPX = hemopexin; TMCC2 = transmembrane and coiled-coil domains 2; KEL = Kell metallo-endopeptidase; XK = X-linked Kx blood group; EIF2AK1 = eukaryotic translation initiation factor 2 alpha kinase 1; miRNA = microRNA; mRNA = messenger RNA. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
תיקוף ניסויי של ביטוי FLVCR1 ואנליזת עגינה מולקולרית של תרכובות טיפוליות פוטנציאליות
כדי לתקף את הממצאים הביו-אינפורמטיים ולאשר את הרלוונטיות התפקודית של הגן המרכזי (hub gene) שזוהה, הערכנו באופן ניסיוני את ביטוי FLVCR1 ב-PKF וב-NHDF. ניתוחי qRT-PCR ו-Western blot הראו בעקביות כי FLVCR1 היה בעל ביטוי מוגבר (upregulated) באופן מובהק בפיברובלסטים של קלואיד בהשוואה לבקרה נורמלית (איור 6A–C, איור משלים S1, וטבלה משלימה S4ביטוי תאי מוגבר זה תומך במעורבות פוטנציאלית של הפרעה במטבוליזם של ההם הקשורה ל-FLVCR1 בפתוגנזה של קלואיד.
בהינתן המעורבות הפוטנציאלית של FLVCR1 בשינויים חיסוניים הקשורים למטבוליזם של ההם, ביקשנו בשלב הבא לזהות תרכובות טיפוליות פוטנציאליות שיוכלו להתמקד ישירות ב-FLVCR1 כדי להקטע ציר פתוגני זה. סינון וירטואלי בסבירה גבוהה בוצע באמצעות ספריית תרכובות של רפואה סינית מסורתית (TCM) ומבנה החלבון שהוכן. 20 התרכובות בעלות ציוני העגינה (docking) המיטביים ביותר נבחרו להערכה נוספת (Supplemental Table S5). באופן כללי, אנרגיית קשירה נמוכה יותר מעידה על זיקה חזקה יותר, ואנרגיות עגינה נמוכות מ-−5 kcal/mol נחשבות כאינדיקטור לאינטראקציות יציבות בין ליגנד לחלבון. בין התרכובות שנסרקו, (+)-Gallocatechin, (−)-Epicatechin, (−)-Gallocatechin ו-Cyanidin (chloride) הראו זיקות קשירה מיטביות כלפי FLVCR1. באופן בולט, (+)-Gallocatechin הראה את האינטראקציה החזקה ביותר עם FLVCR1 על ידי יצירת ארבעה קשרי מימן עם GLU214, ASN245, GLN246 ו-GLN471, מה שמרמז על מצב קשירה יציב של ליגנד-חלבון (Figure 6D–G). ממצאים אלו מדגישים את (+)-gallocatechin כמועמד מבטיח להתערבות טיפולית מבוססת-מנגנון המכוונת ל-FLVCR1.
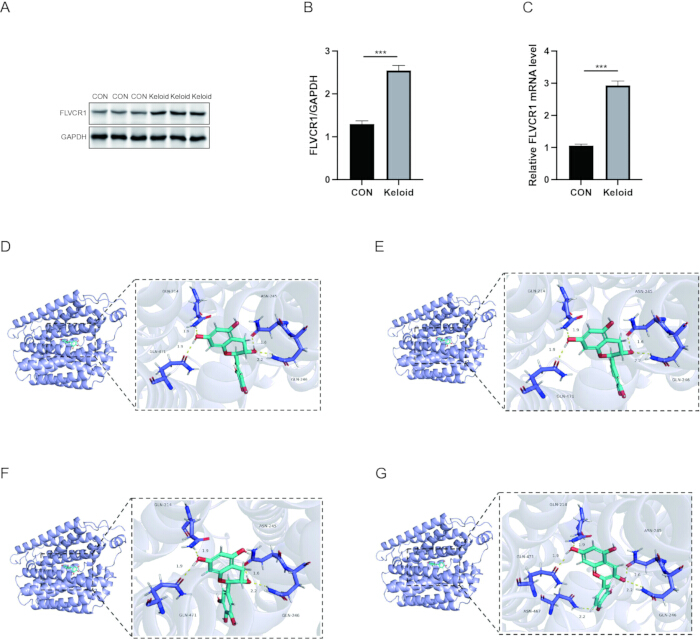
איור 6: תיקוף ניסויי של ביטוי FLVCR1 ועגינה מולקולרית (molecular docking) של תרכובות פוטנציאליות המכוונות ל-FLVCR1. (A) תמונות מייצגות של western blot המראות ביטוי של חלבון FLVCR1 ב-CON ובקלואיד. GAPDH שימש כבקרת טעינה. (B) כימות של רמות חלבון FLVCR1 לאחר נורמליזציה ל-GAPDH. (C) רמות ביטוי יחסיות של mRNA של FLVCR1 בפיברובלסטים של CON וקלואיד נקבעו באמצעות qRT-PCR. GAPDH שימש כייחוס פנימי. (D–G) ייצוגים תלת-ממדיים של מצבי קישור חזויים בין FLVCR1 לתרכובות מולקולות קטנות נבחרות: (D) (+)-Gallocatechin. (E) (-)-Epicatechin. (F) (-)-Gallocatechin. (G) Cyanidin (Chloride). קיצורים: FLVCR1 = feline leukemia virus subgroup C receptor 1; CON, ביקורת; GAPDH, glyceraldehyde-3-phosphate dehydrogenase; qRT-PCR, quantitative reverse transcription polymerase chain reaction; SD, סטיית תקנית. הנתונים מוצגים כממוצע ± SD. מובהקות סטטיסטית: ns, P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; ו-****, P < 0.0001. אנא לחץ כאן כדי לצפות בגרסה מוגדלת של איור זה.
אישור היציבות של קומפלקס FLVCR1–(+)-Gallocatechin באמצעות סימולציית דינמיקה מולקולרית
כדי לבחון את מהימנותו של מצב קישור הליגנד-חלבון החזוי, בוצעה סימולציית דינמיקה מולקולרית (MD) עבור קומפלקס ה-FLVCR1–(+)-gallocatechin. הניתוח התמקד בשאלה האם הקומפלקס נותר יציב מבנית לאורך זמן והאם קישור הליגנד שינה את ההתנהגות הקונפורמציונית של החלבון, זאת באמצעות RMSD, RMSF, רדיוס ג'ירואציה (Rg), SASA, ניתוח קשרי מימן וחישובי MM/GBSA. ניתוח RMSD (איור 7A) הראה כי הן החלבון החופשי (apo protein) והן הקומפלקס הקשור לליגנד עברו תנודות ראשוניות ב-20 ns הראשונים, ולאחריהן התייצבות הדרגתית, מה שמעיד על כך שהמערכות הגיעו לשיווי משקל במהלך הסימולציה. לאחר השיווי משקל, ערך ה-RMSD של קומפלקס ה-FLVCR1–(+)-Gallocatechin נותר נמוך מ-0.2 nm, מה שמרמז שקישור הליגנד תרם לשמירה על היציבות המבנית של FLVCR1. ניתוח RMSF (איור 7B) הדגים כי רוב השאריות הראו תנודות מוגבלות לאורך כל הסימולציה, דבר המעיד על שימור השלמות הכללית של החלבון, בעוד שמספר אזורים גמישים עשויים לייצג אזורי לולאה (loop regions) המעורבים בקליטת הליגנד. יתרה מכך, פרופילי Rg ו-SASA יציבים (איור 7C,D) הצביעו על כך שהקומפלקס שמר על קונפורמציה דחוסה, ללא התרחבות מבנית ניכרת או שינויים בחשיפה לממס. ניתוח קשרי מימן (איור 7E) גילה כי קומפלקס ה-FLVCR1–(+)-Gallocatechin שמר על אינטראקציות בין-מולקולריות עקביות, כאשר נוצרו כ-3–4 קשרי מימן במהלך הסימולציה, מה שתומך ביציבות הקישור בין הליגנד לחלבון. ניתוח MM/GBSA הראה עוד כי קומפלקס ה-FLVCR1–(+)-Gallocatechin הפגין אנרגיית קישור חופשית נוחה (ΔGtotal = −34.87 ± 4.13 kcal/mol) (טבלה נספחת S6). ניתוח פירוק אנרגיה הצביע על כך שאינטראקציות ואן-דר-ואלס (ΔVDWAALS = −46.34 ± 2.16 kcal/mol) ואינטראקציות אלקטרוסטטיות (ΔEelec = −14.09 ± 3.45 kcal/mol) היו התורמים המרכזיים והחיוביים לקישור, למרות התרומה השלילית של אנרגיית סולבציה פולרית (ΔGsolvation = 25.55 ± 0.74 kcal/mol) (טבלה נספחת S6). יחד, תוצאות סימולציית ה-MD הללו הדגימו כי (+)-Gallocatechin יצר קומפלקס יציב עם FLVCR1 ותמכו עוד יותר במהימנותו של מצב הקישור שנחזה בסימולציית העגינה (docking).
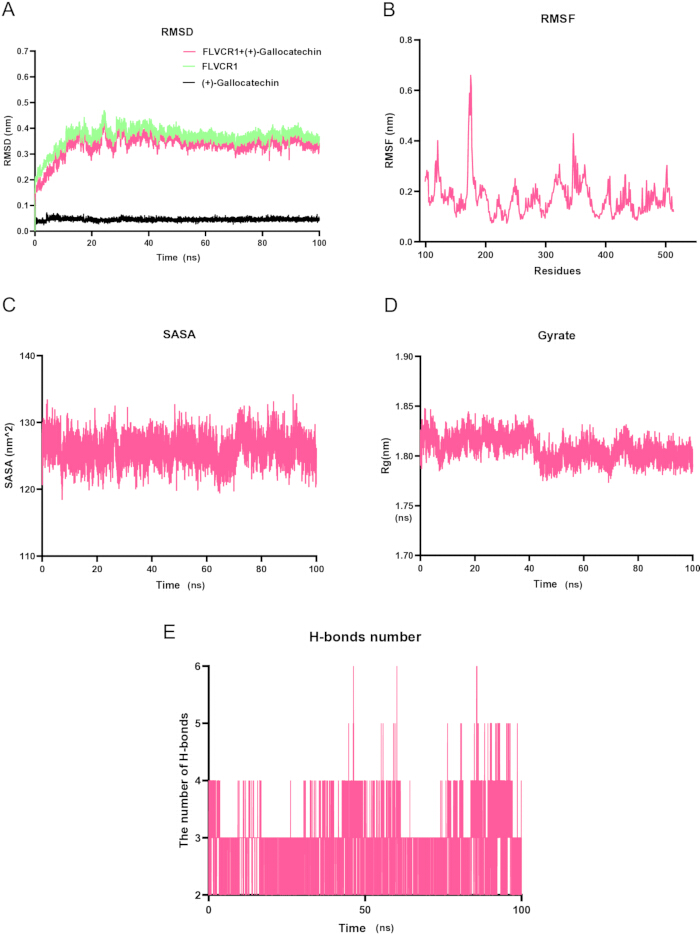
איור 7: ניתוח סימולציית דינמיקה מולקולרית של קומפלקס FLVCR1–(+)-Gallocatechin. (A) פרופילי RMSD של apo FLVCR1 ושל קומפלקס FLVCR1–(+)-Gallocatechin במהלך סימולציית דינמיקה מולקולרית של 100 ns. (B) פרופיל RMSF המראה תנודתיות ברמת השאריות של FLVCR1 במהלך הסימולציה. (C) פרופיל SASA המראה שינויים בשטח הפנים הנגיש לממס של קומפלקס FLVCR1–(+)-Gallocatechin. (D) פרופיל Rg המעריך את הדחיסות של קומפלקס FLVCR1–(+)-Gallocatechin במהלך הסימולציה. (E) ניתוח קשרי מימן המראה אינטראקציות בין-מולקולריות דינמיות בין FLVCR1 לבין (+)-Gallocatechin לאורך הסימולציה. קיצורים: FLVCR1 = feline leukemia virus subgroup C receptor 1; RMSD = root mean square deviation; RMSF = root mean square fluctuation; SASA = solvent-accessible surface area; Rg = radius of gyration. נא ללחוץ כאן כדי להציג גרסה מוגדלת של איור זה.
זמינות נתונים:
ניתן לגשת למערכי הנתונים הטרנסקריפטומיים הזמינים לציבור שנותחו במחקר זה דרך מאגר ה-Gene Expression Omnibus (GEO) תחת מספרי הגישה GSE44270, GSE7890, ו-GSE163973. נתוני המקור שהופקו במחקר זה והיוו את הבסיס לאימות הניסיוני, כולל מדידות qRT-PCR, תמונות מקוריות של western blot ונתוני כימות של western blot, מסופקים כ-איור משלים S1, טבלה משלימה S1, טבלה משלימה S2, טבלה משלימה S3, ו-טבלה משלימה S4. תוצאות ה-molecular docking ונתוני אנרגיית קשירה חופשית מסוג MM/GBSA מסופקים גם ב-טבלה משלימה S5 וב-טבלה משלימה S6.
איור משלים S1: נתונים מקוריים של western blotting.אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה S1: גנים הקשורים למטבוליזם של ההם.אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה S2: רצפי פריימרים של גנים נבחרים. אנא לחצו כאן כדי להוריד קובץ זה.
טבלה משלימה S3: גישות של למידה חישובית (Machine-learning) לזיהוי סממנים ביולוגיים אבחנתיים פוטנציאליים בקלואיד.אנא לחץ כאן כדי להוריד קובץ זה.
טבלה משלימה S4: נתונים גולמיים התומכים בתיקוף ניסיוני של ביטוי FLVCR1.אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה S5: 20 תרכובות המועמדות המובילות שזוהו באמצעות עגינה מולקולרית עם FLVCR1.אנא לחץ כאן להורדת קובץ זה.
טבלה משלימה S6: ניתוח אנרגיה חופשית של קישור בשיטת MM/GBSA עבור קומפלקס FLVCR1–(+)-Gallocatechin.אנא לחצו כאן כדי להוריד קובץ זה.
דיון
מחקר זה מזהה קשר פוטנציאלי בין חילוף חומרים משובש של הם (heme), ביטוי של FLVCR1 ושינויים במיקרו-סביבה החיסונית בהיווצרות קלואיד. באמצעות שילוב של טרנסקריפטומיקה של תאים מרובים (bulk) ושל תאים בודדים, ביססנו את FLVCR1 כצומת מולקולרית הקושרת בין ליקוי בייצוא של הם לבין תכנות חיסוני פתולוגי, ובכך מיקמנו את הקלואיד בתוך הספקטרום המתהווה של הפרעות "מטבוליות-פיברוטיות" (metabo-fibrotic)23,24,25. החשיבות הפוטנציאלית של FLVCR1 נתמכת על ידי ראיות מתכנסות על פני מספר רמות ניתוח. טרנסקריפטומיקה של תאים מרובים חשפה את העלייה המשמעותית בביטויו ברקמות קלואיד עם יכולת אבחנתית חזקה, בעוד שמיפוי ברזולוציית תאים בודדים מקם את ביטויו בעיקר בתאי אנדותל ובמלנוציטים — שני סוגי תאים המעורבים באופן קריטי בפתוגנזה של קלואיד באמצעות אנגיוגנזה שגויה והיפר-פיגמנטציה, בהתאמה26,27. באופן המשכנע ביותר, ביטוי FLVCR1 הראה מתאם שלילי חזק עם תאי T follicular helper (Tfh), תת-אוכלוסייה של לימפוציטים המוכרת יותר ויותר כמעודדת חסינות מוטה Th2 והשקעת קולגן במיקרו-סביבות פיברוטיות28. מחקרים קודמים הדגימו כי ייצוא הם המתווך על ידי FLVCR1 מעורב בהבשלת תאים דנדריטיים ובהצגת אנטיגן29, מה שמרמז על קשר פוטנציאלי בין הומאוסטזיס של הם הקשור ל-FLVCR1 לבין ויסות חיסוני. העלייה שנצפתה בביטוי FLVCR1 והמתאם השלילי שלו עם חדירת תאי Tfh עשויים לפיכך לשקף שינויים בהומאוסטזיס החיסוני, אשר עשויים לערב ציטוקינים פרו-פיברוטיים הקשורים ל-Tfh כגון IL-4 ו-IL-1329,30,31.
יתרה מכך, הצטברות תוך-תאית של heme כתוצאה מליקוי בתפקוד של FLVCR1 מפעילה ככל הנראה את האינפלאסוזום NLRP3 — מנגנון המתועד היטב בפיברוזיס של הכבד, שבו heme משמש כתבנית מולקולרית הקשורה לנזק (DAMP) המעוררת דלקת סטרילית32,33,34. הפעלה כזו של האינפלאסוזום תעודד שחרור של IL-1β/IL-18, ותניע פולריזציה של מקרופאגים לסוג M2 באמצעות סיגנל TLR4/NF-κB, ובכך תיצור לולאה של מאמץ חמצוני והפעלת פיברובלסטים המזינה את עצמה35,36. במכלול, נתונים אלו תומכים ב-FLVCR1 כביומארקר פוטנציאלי וכגורם אפשרי לאינטראקציות בין מטבוליזם של heme לבין מערכת החיסון בקלואיד; עם זאת, הרצף המכניסטי המוצע דורש תיקוף תפקודי ישיר. שימור תוך-תאי של heme גורם תחילה לנזק חמצוני ומפעיל את האינפלאסוזום, דבר המוביל בהמשך לליקוי בתפקוד של תאי דנדריטיים, ובכך מעודד סטייה לעבר תאי T מסייעים פוליקולריים (Tfh) ותגובות חיסוניות מסוג Th2; סטייה חיסונית זו מניעה עוד יותר פולריזציה של מקרופאגים לעבר פנוטיפ M2, מה שמוביל בסופו של דבר להפעלת פיברובלסטים ולהתקדמות של פיברוגנזה.
מעבר לפעולתו של FLVCR1 לבדו, הדיסרגולציה הסינרגית של כל ששת הסמנים הביולוגיים חושפת קריסה מתואמת של ההומיאוסטזיס של ההם על פני מספר צמתים רגולטוריים. TMCC2, המראה מתאם חיובי עם תאי דנדריטיים מופעלים אך קשור באופן שלילי לתתי-אוכלוסיות לא בשלות, עשוי לייצג מנגנון פיצוי המנסה לשחזר את הכשירות החיסונית בתוך עקה של הם37,38. EIF2AK1, המובטא במידה רבה בפיברובלסטים של קלואיד ובתאי בלוטות, משמש כחיישן מולקולרי ישיר לעודף הם, המבצע פוספורילציה של eIF2α כדי לדכא באופן גלובלי את סינתזת החלבונים תוךempre הגברה סלקטיבית של גנים למענה לעקה39,40,41. דבר זה ממצב את EIF2AK1 כגשר קריטי המתרגם הצטברות של הם למעבר פנוטיפי של הפיברובלסטים — מה שעשוי להסביר מדוע פיברובלסטים של קלואיד מראים עמידות מוגברת לאפופטוזיס וייצור קולגן מוגבר42,43,44. HPX, סורק ההם העיקרי בפלסמה, הראה ביטוי מוגבל במלנוציטים, מה שמרמז על ניסיון אוטונומי של התא למסנן רעילות של הם בתוך תאים עשירים בפיגמנט45,46,47. הדיסרגולציה בו-זמנית של XK ו-KEL מעשירה את המעורבות של מנגנוני הטיפול בהם משוייך לשושרה האריתרואידית בפתוגנזה של קלואידים — ממצא בעל השלכות מרתקות להבנת הסיבה לכך שקלואידים נוצרים לעיתים קרובות באתרי טראומה עם מיקרו-דימומים. במקום להתבונן בשש הגנים הללו כסמנים עצמאיים, אנו מפרשים את הדיסרגולציה הקולקטיבית שלהם כראיה לכשל מערכתי במדור ההם, שבו פגיעה בייצוא (FLVCR1), בחשישה (EIF2AK1), בסריקה (HPX) ובתעבורה ממברנלית (XK, KEL) מתנקזות ליצירת מיקרו-סביבה פרו-פיברוטית עשירה בהם.
מודל מטבולי-חיסוני זה מחוזק עוד יותר על ידי שכבה אפיגנטית משכנעת: זיהינו רשת ceRNA שבה ביטוי נמוך (downregulation) של miRNAs ספציפיים (למשל, משפחת let-7 ו-miR-34a-5p) עשוי להסיר בו-זמנית את העכבה (derepress) של מסלולים קשורי פיברוזיס ומטבוליזם של ההם, אם כי מודל רגולטורי זה דורש תיקוף נוסף23. הרזולוציה המרחבית המאפשרת ניתוח של תא בודד שופכת אור על הכוריאוגרפיה התאית העומדת בבסיס תהליך זה, ומדגימה כיצד תפקוד מטבולי לקוי בתאים מבניים זורע באופן פעיל את המיקרו-סביבה העשירה בתאי חיסון באמצעות סיגנלינג פראקריני של ההם, ובכך משנה את הבנתנו מפרספקטיבה של "רקמה כוללת" (bulk tissue) למודל של אקו-סיסטם תאי דינמי48,49,50. הצטברות של ההם באנדותל עשויה לקדם דליפה וסולרית ומעבר של לוקוציטים אל מחוץ לכלי הדם (extravasation) באמצעות השראת heme oxygenase-1 ועלייה בביטוי של מולקולות הדבקה, ובכך לזרוע את המיקרו-סביבה העשירה בתאי חיסון שנצפתה בקלואיד51,52,53. במקביל, ביטוי של FLVCR1 במלנוציטים תואם לתצפיות קליניות של היפר-פיגמנטציה בקלואיד ומצביע על פגיעויות מטבוליות משותפות בין מסלולים פיגמנטריים לפיברוטיים — ייתכן שבאמצעות תגובות לעקה חמצונית54,55. מיפוי מרחבי זה משנה את הבנתנו מפרספקטיבה של "רקמה כוללת" למודל של אקו-סיסטם תאי שבו תפקוד מטבולי לקוי בתאים מבניים (אנדותל, מלנוציטים) מעצב באופן פעיל את התנהגות תאי החיסון באמצעות סיגנלינג פראקריני של ההם.
מנקודת מבט תרגומית, הנומוגרמה שלנו, המשלבת את כל ששת הביומארקרים, השיגה דיוק אבחנתי כמעט מושלם, עלתה באופן משמעותי על כל מרקר בודד והפגינה תועלת קלינית נטו ברורה באמצעות ניתוח עקומת החלטה. באופן מעורר עניין יותר, סימולציית עגינה מולקולרית זיהתה את (+)-gallocatechin — פוליפנול ביו-אקטיבי הנמצא בשפע בתה חציר ובצמחי מרפא סיניים מסורתיים — כליגנד בעל זיקה גבוהה ל-FLVCR1, היוצר קשרי מימן יציבים עם GLU-214, ASN-245, GLN-246 ו-GLN-471. ממצא זה משכנע במיוחד בהינתן ראיות קודמות לכך שקטכינים מדכאים סינתזת קולגן, מעכבים הפרשה של transforming growth factor-beta 1 ומפחיתים עקה חמצונית בפיברובלסטים של קלואיד56,57,58. אנו משערים כי (+)-gallocatechin עשוי לייצב את הקונפורמציה של FLVCR1 כדי להגביר את קיבולת ייצוא ההם, ובכך לקטוע את הטריגר המטבולי של הפיברוזיס במקורו — אסטרטגיה השונה מהותית מהטיפולים הנוכחיים המדכאים בלבד את ייצור הקולגן במורד המסלול. השאלה האם התערבות מטבולית מסוג זה עשויה להשפיע על הישנות של קלואיד דורשת תיקוף ניסויי וקליני נוסף.
כמובן, למחקר זה ישנן גם מגבלות. ראשית, הניתוחים שלנו נותרו במידה רבה חישוביים, והקשר שנצפה בין ביטוי FLVCR1 לבין חדירה של תאי T follicular helper (Tfh) אינו מבסס קשר סיבתי ישיר. נדרשים תיקוף באמצעות ציטומטריה זורמת של תאי Tfh ומחקרים פונקציונליים הכוללים knockdown או ביטוי יתר של FLVCR1 בפיברובלסטים של קלואיד, יחד עם בדיקות של אינטראקציה בין פיברובלסטים לתאי מערכת החיסון או בדיקות מצע גידול (conditioned-media assays), כדי להבהיר את תפקידו הפוטנציאלי של FLVCR1 בבקרת מערכת החיסון. שנית, גודל המדגם הקטן יחסית עשוי להוביל לאי-ודאות ולאופטימיות בהערכת הביצועים של חתימת ששת הגנים. על אף שבוצע תיקוף פנימי, הערכה מהימנה של הביצועים האבחנתיים והכיול נותרה מוגבלת. לפיכך, יש לראות בפאנל ששת הגנים כחתימה מולקולרית גששית הדורשת תיקוף נוסף בקוהורטים עצמאיים וגדולים יותר. שלישית, נדרש להרחיב את מערך הנתונים של התא הבודד (single-cell dataset) כדי ללכוד טוב יותר את ההטרוגניות הבין-חולי ואוכלוסיות של תאים נדירים. רביעית, תיקוף ברמת החלבון של ביטוי הסמנים הביולוגיים ומיקום מרחבי באמצעות אימונוהיסטוכימיה יחזקו את הרלוונטיות הקלינית של ממצאינו. לבסוף, בעוד שסימולציית עגינה מולקולרית (molecular docking) מצביעה על קישור פוטנציאלי בין (+)-gallocatechin ל-FLVCR1, נדרשים בדיקות קישור in vitro ומחקרי יעילות in vivo לפני יישום קליני. למרות מגבלות אלו, ממצאינו מספקים מסגרת רב-ממדית הקושרת בין מטבוליזם של הם הקשור ל-FLVCR1 לבין שינויים חיסוניים בקלואיד, ומזהים סמנים ביולוגיים מולקולריים פוטנציאליים ומועמדים טיפוליים להמשך חקירה.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תרומות המחברים
Qiuyan Yang תרמה לתכנון המחקר. Jianping Zhang תרמה לאיסוף הנתונים. Qiuyan Yang ו-Xiaofang Sun תרמו לניתוח הסטטיסטי. Qiuyan Yang ו-Jing Wang תרמו להכנת הדיאגרמות ולהשלמת כתב היד. כל המחברים קראו את הגרסה הסופית של כתב היד ואישרו אותה.
תודות
אנו מודים לחוקרים שיצרו ושיתפו באופן פומבי את מערכי הנתונים GSE44270, GSE7890, ו-GSE163973 באמצעות מאגר הנתונים Gene Expression Omnibus (GEO).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| AmberTools | פרויקט ענבר (Amber Project) | https://ambermd.org/AmberTools.php | גרסה 22; יצירת פרמטרים לליגנדים באמצעות שדה הכוחות GAFF |
| Anti-FLVCR1 | Proteintech | 26841-1-AP | |
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| AutoDock Vina | The Scripps Research Institute | https://vina.scripps.edu/ | גרסה 1.2.3; עגינה מולקולרית וחיזוי זיקה של קישור ליגנד |
| AutoDockTools | The Scripps Research Institute | https://ccsb.scripps.edu/autodocksuite/adt/ | גרסה 1.5.6; הכנת ליגנד ורספטור לעגינה מולקולרית (molecular docking) |
| ערכה לבדיקת חלבון BCA | Servicebio | G2026 | |
| תערובת סינתזת cDNA עבור qPCR עם dsDNase | UnionScript | שעתוק הפוך עבור qRT-PCR | |
| ChemBio3D | PerkinElmer | https://revvitysignals.com/products/research/chemdraw | גרסה 14.0; אופטימיזציה קונפורמציונית בתלת-ממד והקטנת אנרגיה של ליגנדים |
| מערכת דימיון כימילומננסציה | ויזואליזציה של פסי Western blot | ||
| חבילת DoubletDetection | GitHub / JonathanShor | https://github.com/JonathanShor/DoubletDetection | זיהוי והסרה של דבליטים (doublets) חזויים בניתוח scRNA-seq |
| סובסטרט כימולומינסנטי ECL | גילוי אות ב-Western blot | ||
| סרום עגל עוברי | ריכוז סופי של 2%; תוסף למצע גידול לפיברובלסטים | ||
| תווך גידול לפיברובלסטים 2 | PromoCell | C-23020 | |
| פריימרים ל-FLVCR1 ו-GAPDH | טבלה נלווית S2 | הגברה של גנים מטרת וגני ייחוס באמצעות qRT-PCR | |
| גאוסיאני | Gaussian, Inc. | https://gaussian.com/ | Gaussian 16W; חישוב מטענים אטומיים מסוג RESP עבור פרמטריזציה של ליגנדים |
| מכשיר לאלקטרופורזה של ג'ל | הפרדת חלבונים ב-SDS-PAGE | ||
| חבילת GEOquery | Bioconductor | https://bioconductor.org/packages/GEOquery/ | גרסה 2.68.0; שליפת ביטוי גנים ומטא-דאטה ממאגר ה-GEO |
| חבילת ggplot2 | CRAN | https://cran.r-project.org/package=ggplot2 | גרסה 4.0.2; ויזואליזציה של נתונים |
| חבילת glmnet | CRAN | https://cran.r-project.org/package=glmnet | גרסה 4.1.10; בחירת מאפיינים באמצעות LASSO |
| GROMACS | צוות הפיתוח של GROMACS | https://www.gromacs.org/ | גרסה 2022.3; סימולציות דינמיקה מולקולרית וניתוח מסלולים |
| GS AntiQ qPCR SYBR Green Fast Mix (Universal) | גניםוואנד | SQ410 | |
| GSE163973 | מאגר הנתונים GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE163973 | 3 דגימות קלואיד; ניתוח ביטוי ברמה של תא בודד |
| GSE44270 | מאגר הנתונים GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE44270 | 18 דגימות קלואיד ו-14 דגימות נורמליות; ביטוי דיפרנציאלי וסריקת סמנים ביולוגיים |
| GSE7890 | מאגר הנתונים GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE7890 | 10 דגימות קלוייד ו-9 דגימות נורמליות; תיקוף עצמאי של סמנים ביולוגיים אבחנתיים |
| חבילת GSVA | Bioconductor | https://bioconductor.org/packages/GSVA/ | גרסה 1.48.3; ניתוח חדירת תאי מערכת החיסון מבוסס ssGSEA |
| goat anti-mouse IgG המשורשר ל-HRP | Abcam | ab97040 | |
| goat anti-rabbit IgG המשויך ל-HRP | Abcam | ab97051 | |
| CO2 מלחלח2 אינקובטור | 37 °C, 5% CO22תחזוקה של תאי NHDF ותאי PKF | ||
| ImageJ | המכונים הלאומיים לבריאות | https://imagej.nih.gov/ij/ | כימות עצימות פסי ווסטרן בלוט (western blot) |
| אינסולין | 5 μg/mL ריכוז סופי; תוסף למצע גידול עבור פיברובלסטים | ||
| מאגר חתימות מולקולריות (MSigDB) | Broad Institute | https://www.gsea-msigdb.org/gsea/msigdb | גרסה 2024.1.Hs; מקור למערכי גנים הקשורים למטבוליזם של ההם |
| NetworkAnalyst | NetworkAnalyst | https://www.networkanalyst.ca/ | גרסה 3.0; בניית רשת האינטראקציה miRNA-mRNA |
| NHDF | Procell | CP-H106 | |
| חלב רזהבסיס אבקה | תמיסה בריכוז 5%; חסימת ממברנה לניתוח Western blot | ||
| סרט איטום אופטי או פקקים | איטום תגובות qRT-PCR | ||
| PBS | Procell | PB180327 | |
| מזהה PDB: 8UBZ | RCSB PDB | https://www.rcsb.org/structure/8UBZ | מבנה FLVCR1 אנושי; מקור מבנה חלבון FLVCR1 לסריקה וירטואלית מבוססת מבנה |
| מעכבי פוספטאז | תוסף לתמיסת ליזיס של חלבונים | ||
| PKF | Procell | GCP-H235 | |
| PMSF | Servicebio | G2008-1ML | |
| חבילת pROC | CRAN | https://cran.r-project.org/package=pROC | גרסה 1.19.0.1; עקומת ROC וניתוח AUC |
| תערובת מעכבי פרוטאז (Protease inhibitor cocktail) | Roche | 4693124001 | |
| מנגנון העברה של חלבונים | העברה של חלבונים לממברנת PVDF | ||
| ממברנת PVDF | Millipore | IPVH08100 | |
| PyMOL | שְׁרָא (Schr)ödinger, LLC | https://pymol.org/ | גרסה 2.6.1; ויזואליזציה ואנליזה של תנוחות דוקינג של חלבון-ליגנד ואינטראקציות מולקולריות |
| פלטות או מבחנות ל-qRT-PCR | הכנת תגובת qRT-PCR | ||
| R | R Foundation for Statistical Computing | https://www.r-project.org/ | גרסה 4.3.1; ניתוחים סטטיסטיים וביואינפורמטיים |
| חבילת randomForest | CRAN | https://cran.r-project.org/package=randomForest | גרסה 4.7.1.2; בחירת מאפיינים באמצעות יער אקראי (Random forest) |
| REACTOME_HEME_BIOSYNTHESIS; REACTOME_HEME_DEGRADATION; WIKIPATHWAYS_HEME_BIOSYNTHESIS; REACTOME_SCAVENGING_HEME_FROM_PLASMA; HALLMARK_HEME_METABOLISM | מאגר חתימות מולקולריות (MSigDB) | https://www.gsea-msigdb.org/gsea/msigdb | גרסה 2024.1.Hs; 283 גנים ייחודיים לאחר מיזוג; הגדרה של גנים הקשורים למטבוליזם של ההם |
| מערכת PCR בזמן אמת | הגברה וגילוי באמצעות qRT-PCR | ||
| גורם גדילה בסיסי של פיברובלסט אנושי רקומביננטי | ריכוז סופי של 1 ng/mL; תוסף למצע גידול של פיברובלסטים | ||
| בופר RIPA | Servicebio | G2002 | |
| חבילת rms | CRAN | https://cran.r-project.org/package=rms | גרסה 6.7.1; בניית נומוגרמה |
| ריאגנטים ל-SDS-PAGE או ג'לים מוכנים (precast gels) | הפרדת חלבונים באמצעות SDS-PAGE | ||
| חבילת Seurat | CRAN | https://satijalab.org/seurat/ | גרסה 5.4.0; עיבוד מקדם, מקבץ (clustering) וויזואליזציה של scRNA-seq |
| TarBase | כלי DIANA | https://carolina.imis.athena-innovation.gr/diana_tools/ | גרסה 9.0; מקור לאינטראקציות miRNA-mRNA נתמכות ניסויית |
| ערכה לבידוד RNA כולל II | אומגה | R6934-01 | |
| ספריית תרכובות פעילות מרפואה סינית מסורתית | מקור תרכובות מועמדות לסריקה וירטואלית | ||
| תמיסת סלין עם חוצץ Tris ו-Tween | הכנת תמיסת חסימה ושטיפת ממברנה | ||
| תערובת UnionScript לסנתזת cDNA של הגדיל הראשון עבור qPCR (עם dsDNase) | גנים וחול | SR511 |
מקורות
- Dirand Z, et al. Macrophage phenotype is determinant for fibrosis development in keloid disease. Matrix Biol. 2024;128:79-92.
- Fang X, et al. Hypertrophic scarring and keloids: epidemiology, molecular pathogenesis, and therapeutic interventions. MedComm (2020). 2025;6(10):e70381.
- Adler R, et al. Pentoxifylline and long-term risk of keloid formation: a real-world 10-year outcomes study using TriNetX. J Am Acad Dermatol. 2026;94(5):1561-3.
- Banerjee P, et al. Anti-fibrotic properties of a decellularized extracellular matrix scaffold from porcine small intestinal submucosa in normal human and keloid fibroblasts. Int J Mol Sci. 2025;26(24):11764.
- Chang YH, McGrath JA, Hsu CK. Regression of extensive keloids during imatinib therapy for gastrointestinal stromal tumor. JAMA Dermatol. 2025;161(12):1293-4.
- Wang QR, et al. CCL17 drives fibroblast activation in the progression of pulmonary fibrosis by enhancing the TGF-β/Smad signaling. Biochem Pharmacol. 2023;210:115475.
- Higuchi Y, et al. Cavin-2 promotes fibroblast-to-myofibroblast trans-differentiation and aggravates cardiac fibrosis. ESC Heart Fail. 2024;11(1):167-78.
- Zhang H, et al. Plasma apolipoprotein E protein attenuates pulmonary fibrosis through LRP1 and PLAU dual receptor-mediated TGF-β/Smad inhibition. J Adv Res. 2025. doi:10.1016/j.jare.2025.12.045.
- Chen Q, et al. Immune imbalance drives keloid pathogenesis: emerging targets for precision immunotherapy. Adv Wound Care (New Rochelle). 2026:21621918261417702.
- Deng CC, et al. Single-cell RNA-seq reveals immune cell heterogeneity and increased Th17 cells in human fibrotic skin diseases. Front Immunol. 2024;15:1522076.
- Wang Q, et al. Weighted gene co-expression network analysis and machine learning identified the lipid metabolism-related gene LGMN as a novel biomarker for keloid. Exp Dermatol. 2024;33(1):e14974.
- Zhang W, et al. New insights into keloid pathogenesis: biomarker potential for CDK7 and DDB2. Front Cell Dev Biol. 2025;13:1718189.
- Li W, et al. Altered arginine metabolism affects proliferation and radiosensitivity of keloids. Exp Dermatol. 2025;34(3):e70077.
- Jiang J, et al. Ambient fine particulate matter induces cardiac fibrosis through triggering ferroptosis by heme degradation induced-iron overload. Ecotoxicol Environ Saf. 2025;297:118227.
- Lin W, et al. Heme oxygenase-1 overexpression activates the IRF1/DRP1 signaling pathway to promote M2-type polarization of spinal cord microglia. Drug Dev Res. 2024;85(8):e70033.
- Knez J, Kovačič B, Goropevšek A. The role of regulatory T-cells in the development of endometriosis. Hum Reprod. 2024;39(7):1367-80.
- Voltarelli VA, et al. Heme: the lord of the iron ring. Antioxidants (Basel). 2023;12(5):1074.
- Wilks A, Egoshi R. Heme trafficking and the importance of handling nature's most versatile cofactor. Chem Rev. 2025;125(23):11358-78.
- Bertino F, et al. Dysregulation of FLVCR1a-dependent mitochondrial calcium handling in neural progenitors causes congenital hydrocephalus. Cell Rep Med. 2024;5(7):101647.
- Kumar A, et al. Iron regulates the quiescence of naive CD4 T cells by controlling mitochondria and cellular metabolism. Proc Natl Acad Sci U S A. 2024;121(17):e2318420121.
- Jiang H, et al. Gut microbiota dysbiosis in diabetic nephropathy: mechanisms and therapeutic targeting via the gut-kidney axis. Front Endocrinol (Lausanne). 2025;16:1661037.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-62.
- Chen Y, et al. 5-ALA photodynamic metabolite-powered zero-waste ferroptosis amplifier for enhanced hypertrophic scar therapy. Nat Commun. 2025;16(1):8321.
- Li X, et al. Hypericin-mediated photodynamic therapy promotes apoptosis and inhibits fibrosis by inducing HMOX1-mediated ferroptosis in hypertrophic scar fibroblasts. J Photochem Photobiol B. 2025;273:113303.
- Chen Y, et al. Functional transdermal nanoethosomes enhance photodynamic therapy of hypertrophic scars via self-generating oxygen. ACS Appl Mater Interfaces. 2021;13(7):7955-65.
- Oh S, et al. Revealing the pathogenesis of keloids based on the status: active vs inactive. Exp Dermatol. 2024;33(5):e15088.
- Zhao S, et al. New anti-fibrotic strategies for keloids: insights from single-cell multi-omics. Cell Prolif. 2025;58(6):e13818.
- Yasujima T, et al. The role of FLVCR1 and FLVCR2 in choline transport in the Caco-2 intestinal epithelial cell model and rat small intestine. Biochim Biophys Acta Mol Basis Dis. 2025;1871(6):167883.
- Zhang M, Chen H, Qian H, Wang C. Characterization of the skin keloid microenvironment. Cell Commun Signal. 2023;21(1):207.
- Wang Y, et al. FoxC1 activates Notch3 signaling to promote the inflammatory phenotype of keloid fibroblasts and aggravates keloid. Exp Cell Res. 2025;444(2):114402.
- Zhang J, et al. ERG transcriptionally activates SFRP1 to promote apoptosis of keloid fibroblasts and inhibit epithelial-mesenchymal transition and fibrosis through the Wnt3a/β-catenin pathway. Arch Dermatol Res. 2025;317(1):467.
- Ramos-Tovar E, Muriel P. NLRP3 inflammasome in hepatic diseases: a pharmacological target. Biochem Pharmacol. 2023;217:115861.
- Brahadeeswaran S, et al. NLRP3: a new therapeutic target in alcoholic liver disease. Front Immunol. 2023;14:1215333.
- Xiao Y, et al. STING mediates hepatocyte pyroptosis in liver fibrosis by epigenetically activating the NLRP3 inflammasome. Redox Biol. 2023;62:102691.
- Paolucci T, et al. Quantum molecular resonance inhibits NLRP3 inflammasome/nitrosative stress and promotes M1 to M2 macrophage polarization: potential therapeutic effect in osteoarthritis model in vitro. Antioxidants (Basel). 2023;12(7):1358.
- Wei J, et al. FERM domain containing kindlin 1 knockdown attenuates inflammation induced by intracerebral hemorrhage in rats via NLR family pyrin domain containing 3/nuclear factor kappa B pathway. Exp Anim. 2023;72(3):324-35.
- Tao L, Zhou Y, Wu L, Liu J. Comprehensive analysis of sialylation-related genes and construct the prognostic model in sepsis. Sci Rep. 2024;14(1):18110.
- Sun Q, et al. Identification of hub genes and key pathways associated with sepsis progression using weighted gene co-expression network analysis and machine learning. Int J Mol Sci. 2025;26(9):4433.
- Chen JJ. HRI protein kinase in cytoplasmic heme sensing and mitochondrial stress response: relevance to hematological and mitochondrial diseases. J Biol Chem. 2025;301(5):108494.
- Chakrabarty Y, Yang Z, Chen H, Chan DC. The HRI branch of the integrated stress response selectively triggers mitophagy. Mol Cell. 2024;84(6):1090-100.e6.
- Bora P, et al. Drug repurposing screen identifies an HRI activating compound that promotes adaptive mitochondrial remodeling in MFN2-deficient cells. Proc Natl Acad Sci U S A. 2025;122(48):e2517552122.
- Zhang C, et al. CaMKII suppresses proteotoxicity by phosphorylating BAG3 in response to proteasomal dysfunction. EMBO Rep. 2024;25(10):4488-514.
- Chaabani H, et al. Trifloxystrobin induces oxidative stress-dependent activation of the OMA1-DELE1-HRI integrated stress response leading to apoptosis in human neuroblastoma cells. Environ Pollut. 2026;390:127562.
- Das R, et al. CMT2A-linked MFN2 mutation, T206I promotes mitochondrial hyperfusion and predisposes cells towards mitophagy. Mitochondrion. 2024;74:101825.
- De Simone G, et al. Heme scavenging and delivery: the role of human serum albumin. Biomolecules. 2023;13(3):575.
- Turilli-Ghisolfi ES, Lualdi M, Fasano M. Ligand-based regulation of dynamics and reactivity of hemoproteins. Biomolecules. 2023;13(4):683.
- Zhang P, et al. Risk factors and prediction models for cardiotoxicity induced by anthracyclines in malignant chemotherapy. Cancer Chemother Pharmacol. 2025;95(1):73.
- Petrillo S, et al. Endothelial cells require functional FLVCR1a during developmental and adult angiogenesis. Angiogenesis. 2023;26(3):365-84.
- Fiorito V, Tolosano E. Unearthing FLVCR1a: tracing the path to a vital cellular transporter. Cell Mol Life Sci. 2024;81(1):166.
- Manco M, et al. FLVCR1a controls cellular cholesterol levels through the regulation of heme biosynthesis and tricarboxylic acid cycle flux in endothelial cells. Biomolecules. 2024;14(2):149.
- Shi X, et al. Increased melanin induces aberrant keratinocyte-melanocyte-basal-fibroblast cell communication and fibrogenesis by inducing iron overload and ferroptosis resistance in keloids. Cell Commun Signal. 2025;23(1):141.
- Khunger N, Dash A. Impact of air pollution on skin pigmentation: mechanisms and protective strategies. Int J Dermatol. 2025;64(10):1788-801.
- Ahuja K, Raju S, Dahiya S, Motiani RK. ROS and calcium signaling are critical determinant of skin pigmentation. Cell Calcium. 2025;125:102987.
- Dutta A, Chakraborty S, Roy A, Mittal A, et al. Tissue fibrosis in cardiorenal syndrome: crosstalk between heart and kidneys. Nephrol Dial Transplant. 2025;40(7):1273-83.
- Noah AA, et al. Reversal of fibrosis and portal hypertension by empagliflozin treatment of CCl4-induced liver fibrosis: emphasis on gal-1/NRP-1/TGF-β and gal-1/NRP-1/VEGFR2 pathways. Eur J Pharmacol. 2023;959:176066.
- Murakami T, Shigeki S. Pharmacotherapy for keloids and hypertrophic scars. Int J Mol Sci. 2024;25(9):4674.
- Jin J, Zheng Z. Gut microbiota-derived metabolites in keloid and hypertrophic scarring. Front Microbiol. 2025;16:1644758.
- Aubert A, et al. Potential implications of granzyme B in keloids and hypertrophic scars through extracellular matrix remodeling and latent TGF-β activation. Front Immunol. 2024;15:1484462.