מחקר זה מתאר פרוטוקול לכימותו של מינים של אמינים ביוגניים במוחות של Drosophila באמצעות כרומטוגרפיה נוזלית בעתקת ביצועים גבוהים המשולבת עם גילוי אלקטרוכימי (HPLC-ECD). תוך ניצול הגמישות הגנטית של Drosophila והיתרונות של HPLC-ECD, גישה זו יכולה לסייע לחוקרים לה 규יר את המכניזמים המולקולריים והגנטיים העומדים בבסיס שינויים באמינים ביוגניים בהפרעות מוחיות.
מאמר שיטה
שימוש בכרומטוגרפיה נוזלית בעוצמה גבוהה (HPLC) לחקר שינויים באמינים ביוגניים במודלים של Drosophila להפרעות מוחיות
* These authors contributed equally
במאמר זה
סיכום
תקציר
הפרעות נוירופסיכיאטריות ונוירודגנרטיביות רבות מאופיינות בשיבושים במוליכים העצביים במוח, כולל שינויים ברמותיהם של האמינים הביוגניים (BAs) דופמין (DA) וסרוטונין (5-hydroxytryptamine; 5-HT), כמו גם בשחרורם או בספיגה החוזרת שלהם. שינויים נוירוכימיים אלו נמצאים במתאם עם פנוטיפים התנהגותיים מרכזיים מובחנים, כגון ליקויים לוקומוטוריים, פרגמנטציה של השינה ותגובות מאוזנות למצבי לחץ, בין היתר. מכיוון שמערכות ה-BA העיקריות מקיימות אינטראקציה, מודלים של מחלות מראים לעיתים קרובות תזוזות מתואמות של מספר אמינים, ולא שינויים מבודדים במוליך עצבי בודד. לפיכך, כימות מדויק וסימולטני של מספר BAs הוא חיוני לצורך פירוש ממצאים התנהגותיים וגנטיים. Drosophila melanogaster מציעה מערכת ניתנת לטיפול גנטי למודל של הפרעות כאלה ושינויים במוליכים עצביים, אך BAs מופיעים ברקמת המוח של הזבוב בריכוזים נמוכים מאוד, בטווח שבין ננומולרי לפמטומולרי, וגודלה הקטן של מערכת העצבים המרכזית של ה-Drosophila הופך את זיהויהם למאתגר מבחינה טכנית. מחקר זה מתאר פרוטוקול לזיהוי וכימות של DA, 5-HT ואוקטופמין במוחות של זבובים באמצעות כרומטוגרפיה נוזלית בעתירה גבוהה המשולבת עם גילוי אלקטרוכימי (HPLC-ECD). HPLC-ECD יושם כדי לזהות שינויים ב-DA וב-5-HT במוח במודל זבובים למחלת פרקינסון המבוסס על ביטוי יתר דופמינרגי של אלפא-סינוקלאין אנושי. יישום פרוטוקול זה על מודל מחלת פרקינסון של אלפא-סינוקלאין חושף רמות דופמין גבוהות משמעותית, אך רמות סרוטונין ללא שינוי, ביחס לקבוצות הביקורת, ממצא התואם מנגנונים דופמינרגיים מפצים מוקדמים. גישה זו מספקת שיטה רגישה, זולה ונגישה לכימות מולטיפלקסי של BAs מרקמת Drosophila מוגבלת. היא מאפשרת גם סריקה שיטתית של מודיפיקטורים גנטיים ומועמדים לטיפולים תרופיתיים המכוונים למסלולים מונואמינרגיים הרלוונטיים להפרעות במוח האנושי.
מבוא
מוליכי עצב מונואמיניים, הידועים גם כמינים ביוגניים (BAs), ידועים כמיסנכרנים מספר מאפיינים נוירולוגיים והתנהגותיים מרכזיים בקרב טקסונים של בעלי חיים, כולל אך לא רק מצבים מוטיבציוניים, שינה, למידה, זיכרון וויסות מצב רוח1,2,3,4. הפרה של ה-BAs, כגון דופמין (DA) וסרוטונין (5-hydroxytryptamine; 5-HT), היא מאפיין קריטי של הפרעות נוירודגנרטיביות כגון מחלת הפרקינסון וכן הפרעות פסיכיאטריות כמו סכיזופרניה3,5. עם זאת, הקשר בין התקדמות המחלה לבין שינויים נוירוכימיים ספציפיים באזורי מוח ובתתי-סוגים של נוירונים טרם מופה במלואו. מענה לשאלות אלו דורש מערכת מודל שאינה רק ניתנת לטיפול גנטי, אלא גם מסוגלת לשחזר פנוטיפים פיזיולוגיים והתנהגותיים רלוונטיים למחלה. Drosophila melanogaster התגלתה כמערכת מודל עוצמתית למטרה זו6,7. זבוב הפירות מחזיק באוכלוסיות מובחנות ומאופיינות היטב של נוירונים דופמינרגיים וסרוטונינרגיים7,8, ומסלולי הביוסינתזה, הנשאים ומשפחות הקולטנים השולטים במערכות אלו הם שמורים פונקציונלית ביחס למקביליהם ביממיה9. שימור זה מספק בסיס מכניסטי לתרגום ממצאים נוירוכימיים בזבוב להקשר הרחב יותר של מחלות אנושיות.
התועלת שבשימוש בזבובים למידול הפרעות נוירולוגיות ופסיכיאטריות חורגת הרבה מעבר להומולוגיה גנטית. כמערכת ניתנת למניפולציה גנטית, כלים בזבובים מאפשרים סריקה של גנים ומסלולים באופן ספציפי לתאים, ובכך חושפים גורמים המחמירים או הופכים תסמינים רלוונטיים למחלה, מה שמקל על גילוי מטרות טיפוליות חדשות10. יתרה מכך, מערכות ביטוי בינאריות יכולות להתמקד לא רק בסוגי תת-נוירונים מונואמינרגיים ספציפיים, אלא גם בחלונות התפתחותיים מסוימים11, ובכך מספקות דיוק מרחבי וזמני יוצא דופן. מערכת המודל של זבוב הפרי מספקת גם רפרטואר של התנהגויות מדידות שניתן להשתמש בהן כדי להעריך את השחזור של תסמינים רלוונטיים למחלה, כמו גם כדי לבחון אסטרטגיות התערבות להחלמתם7. לדוגמה, מודלים גנטיים מבוססים של מחלת פרקינסון בזבובים כוללים בעלי מוטציות של אובדן תפקוד ב- Pink1 ו- parkin, כמו גם זבובים המבטאים ביתר (overexpressing) גרסאות מסוג wild-type או גרסאות עם מוטציות נקודתיות של α-synuclein (α-syn) אנושי, SNCA12,13,14. כל מודלים אלו של זבובים מראים כמה מהסימנים הבולטים ביותר של המחלה, כולל ליקויים במוטוריקה, ניוון של נוירונים דופמינרגיים, תפקוד מיטוכונדריאלי לקוי ואגרגציה של α-syn בזבובים הנושאים את הרצף האנושי15,16,17,18,19. מאידך, הפרעות בהתפתחות העצבית ואיתות דופמין חריג נחשבים גם הם לאחת הסיבות הבסיסיות להפרעות כמו סכיזופרניה20. בהתאם לכך, Drosophila שימשה למידול תסמינים דמויי-סכיזופרניה, כולל היפראקטיביות, תגובתיות חושית משתנה וירידה בעירור בזבובים בוגרים21,22,23,24,25. יחד, מודלים אלו מדגימים ש- Drosophila יכולה לשקף הן את התקדמותן של הפרעות ניונוגנרטיביות והן את המקורות ההתפתחותיים של הפרעות פסיכיאטריות.
קישור בין שינויים התנהגותיים במודלים גנטיים לבין שינויים נוירוכימיים מחייב מדידות כמותיות מדויקות וניתנות לשחזור של BAs. כמו כן, במספר מחלות, הפרעה בוויסות מונואמינים אינה מוגבלת למערכת מוליכים עצביים אחת. בזבובים מוטנטים של Pink1B9, תכולת הסרוטונין מופחתת ופעילות נשא הסרוטונין פגומה לפני הופעת ליקוי תנועתי26. הצלה פרמקולוגית מוקדמת של איתות סרוטונירגי מונעת את האובדן העוקב של נוירונים דופמינרגיים פגועים בזבובים מוטנטים של Pink1B9. לפיכך, שינויים סרוטונירגיים יכולים להקדימה ולהתרם באופן סיבתי לפתולוגיה דופמינרגית, קשר שיהיה בלתי נראה בניתוח של מדדי התנהגות או במדידות של אנליט בודד. באופן דומה, שינויים במערכת הסרוטונירגית נצפים במודלים של סכיזופרניה22,27,28. יתרה מכך, האמינים הביוגניים העיקריים ב-Drosophila מקיימים אינטראקציה בדרכים שהן בחלקן סתמיות ובחלקן אנטגוניסטיות, כך שמצבה של מערכת אחת אינו מהווה מדד מהימן עבור האחרות29. לפיכך, כימות של BAs בודדים במודלים אלה הוא בעל חשיבות עליונה.
אמינים ביוגניים הם מונואמינים פעילים אלקטרוכימית (למשל, קטכולאמינים, אינדולאמינים) הנמצאים בריכוזים נמוכים של ננו-מולרי עד פמטו-מולרי ברקמות ביולוגיות, מה שהופך את הגילוי הסימולטני שלהם למאתגר מבחינה טכנית30,31. לפיכך, מענה על שאלות הנוגעות לבסיס הגנטי והמולקולרי של שינויים ב-BA במחלה דורש שיטה אנליטית המסוגלת להפריד בין מספר אמינים בעלי מבנה דומה. שיטה זו חייבת גם לזהות ריכוזים בעלי רלוונטיות ביולוגית בנפחי רקמה קטנים הזמינים מהכנות של מערכת העצבים המרכזית של Drosophila. כרומטוגרפיית נוזלים בעוצמה גבוהה (HPLC) בשילוב עם גילוי אלקטרוכימי (ECD) עונה על דרישות אלה. HPLC היא טכניקה אנליטית המאפשרת הפרדה של מולקולות שונות בתוך דגימה על בסיס המאפיינים הפיזיקו-כימיים שלהן. חיבור המערכת הכרומטוגרפית לגלאי אלקטרוכימי מאפשר ניתוח מהיר ובעל רגישות גבוהה של אנליטים פעילים אלקטרוכימית, כגון אמינים ביוגניים. גלאים אלקטרוכימיים פועלים על ידי השראה של חמצון כאשר האנליטים יוצאים מהעמודה, ובכך ממירים אינטראקציות על פני השטח של האלקטרודה לאות חשמלי שניתן למדידה כמותית. טכניקות אחרות, כגון ספקטרומטריית מסות, עשויות להציע סלקטיביות ורגישות דומות32,33. עם זאת, העלות הנמוכה לדגימה והאמינות של HPLC-ECD הופכות אותה לאידיאלית לגילוי שגרתי ונגיש של אמינים ביוגניים במעבדות למחקר ביולוגי. שילוב טכניקה זו עם העוצמה של הגנטיקה של Drosophila מאפשר ניתוח מהיר ופשוט של הבסיס הגנטי והמולקולרי לשינויים במערכות אמינרגיות.
מחקר זה משתמש במודל גנטי של מחלת הפרקינסון המבוסס על ביטוי יתר של α-syn כדי להציג פרוטוקול לקביעת הבדלים בתכולת BA בדגימות מוח של Drosophila. המאמר מתאר גם כיצד ניתן להשתמש בגישה זו כדי לחקור את הבסיס המולקולרי של הפרעות במוח.
פרוטוקול
הנתונים הגולמיים המוצגים בעבודה זו זמינים בכתובת https://doi.org/10.6084/m9.figshare.33868519.
הריאגנטים והציוד שנעשה בהם שימוש מפורטים בטבלת החומרים.
1. הסתגלות ואיסוף זבובים
- בצעו סנכרון (Entrainment) לזבובים הנבדקים תחת מחזורים קבועים של 12 שעות אור ו-12 שעות חושך, בטמפרטורה קבועה של 25 °C, למשך 3 ימים לפני האיסוף. כדי להבטיח הכנה של מספיק זבובים לכל גנוטיפ/תנאי, סנכרו 3–9 חזרות ביולוגיות של 5 זבובים בכל אחת.
- ביום האיסוף, הניחו מבחנות של 1.5 mL על קרח יבש. השתמשו במבחנה אחת לכל גנוטיפ/תנאי של זבוב. באמצעות משפך, שפכו את הזבובים ישירות לתוך המבחנות כדי לבצע הקפאה מהירה (flash-freeze).
הערה: איסוף ישירות על קרח יבש מאפשר איסוף בזמנים שונים של היממה ללא ההשפעות המזיקות הפוטנציאליות של הרדמה. בשלב זה, ניתן לאחסן את הדגימות בטמפרטורה של -80 °C למשך זמן בלתי מוגבל או לעבדן באופן מיידי. אספו את קבוצות הניסוי והביקורת באותו זמן כדי למנוע השפעות מתערבות של שינויים בשעות היממה. בתוצאות המייצגות הנוכחיות, הזבובים נאספו 3 שעות לאחר המעבר להדלקת האורות.
2. ניתוח המוח והכנת הדגימות
- להכנה לה disection של הרקמה, השתמשו במיכל בעל פרופיל נמוך, כגון מכסה של קופסת טיפים לפיפט, ומלאו אותו בקרח. הניחו מעליו צלחת פטרי 30 mm שתשמש כמשטח הדיסקציה. ביצוע הדיסקציה על קרח, במיוחד כאשר משתמשים בסטראיאוסקופ עם תאורה חמה, מונע התכלות של הרקמה.
- הניחו טיפה של 200 µL של 1x Phosphate-Buffered Saline (PBS) קר מאוד על הצלחת, ותחת סטראיאוסקופ, בצעו דיסקציה לכל זבוב באמצעות פינצטה עדינה וחדה.
- כדי לבצע דיסקציה של המוח, אחזו בזבוב אחד מהבטן באמצעות זוג פינצטות והטביעו אותו בטיפת ה-PBS. מבלי לשחרר את הזבוב, הסירו את הראש על ידי תפיסת החיבור בין הראש לגוף.
- הגוף והראש יצופו על ה-PBS. הסירו את הגוף מהטיפה והשליכו אותו. באמצעות זוג פינצטות, אחזו בראש מהחרטום (proboscis) כדי לדחוף אותו חזרה לתוך טיפת ה-PBS.
- בעזרת זוג הפינצטות הפנוי, אחזו בקצה העין כדי לקבע את הראש והסירו את החרטום.
- אחזו ברקמה מסביב לפתח שנוצר מהסרת החרטום ומשכו. המוח אמור להיות חשוף.
- נקו את המוח בעדינות כדי להסיר שאריות מהראש, שכן רקמה שתישאר עלולה להשפיע על הכימות. כמו כן, הוציאו זבוב אחד בכל פעם מהמבחנה שנמצאת על קרח יבש כדי למנוע התכלות של הדגימה.
- בעזרת טיפ פיפט, העבירו נפח קטן המכיל את המוח המבודד ישירות למבחנה עם 1x PBS קר מאוד. חזרו על שלב זה עד להגעה לסך של חמישה מוחות לכל שחזור ביולוגי. כדי למנוע מהמוח להידבק לטיפ הפיפט, התנו אותו תחילה עם התמיסה מצלחת הדיסקציה על ידי שאיבה ופליטה (pipetting) מספר פעמים.
- עם סיום הדיסקציה, בצעו סנטריפוגה קצרה של 10 s במהירות 2,000 x g כדי לרכז את המוחות בתחתית המבחנה.
- החליפו בזהירות את ה-1x PBS ב-50 µL של 0.2 N Perchloric Acid (PCA) על קרח.
אזהרה: PCA הוא חומר מאכל חזק. הכינו את המכסות (aliquots) תחת מנדף לפני כן והשתמשו בציוד מיגון אישי מתאים בעת הטיפול. זה כולל משקפי מגן עמידים לכימיקלים, כפפות ניאופרן עמידות וכסורת גומי.
הערה: לחילופין, ניתן לאסוף את המוחות באופן מיידי לתוך 50 µL של 0.2 N PCA. במקרה זה, השתמשו במחט להעברת המוחות כדי למנוע העברה לא רצויה של PBS. - השתמשו בהומוגניזטור אולטרסוני כדי להומוגנז את הרקמה. בקר את האמפליטודה כדי למנוע יצירת חום. כאן אנו משתמשים ב-10 kHz עם מחזורים של פולסים קצרים של 3 s ולאחריהם 3 s על קרח.
- סנטריפוגו את הדגימה למשך 15 min במהירות 15,000 x g ובטמפרטורה של 4 °C. אספו 40 µL מהעלייה (supernatant) למבחנה חדשה הנשמרת על קרח. שמירת הדגימות ב-PCA מונעת חמצון של BA. הימנעו מאיסוף רקמה בשלב זה, שכן היא עלולה לסתום את המערכת. אם נאספה רקמה, ניתן להשתמש במסנני מזרק, אך הדבר ישפיע לרעה על התשואה של הדגימה.
- ממש לפני הרצת הדגימות, הוסיפו 8 µL של 1 M Sodium Acetate. פעולה זו מקרבת את ה-pH של הדגימה ל-pH של הפאזה הניידת שהוא 3.5, ובכך שומרת על צורת השיא (peak shape) בעת מעבר הדגימה דרך הגלאי. הדגימות מוכנות להזרקה.
3. הכנת הפאזה הניידת
- הכינו 1 L של פאזה ניידת של ציטראט-אצטט על ידי הוספת 870 mL של מים ultrapure לבקבוקר זכוכית.
- הוסיפו לכלי הזכוכית 5.61 g של sodium acetate trihydrate ו-8.79 g של citric acid anhydrous וערבבו עד להמסה. ודאו שה-pH הוא 3.5; אם לא, התאימו אותו בהתאם.
- בתוך מ 빠르게 (fume hood), הוסיפו 130 mL של methanol בדרגת HPLC.
- הוסיפו 130 mg של sodium 1-octanesulfonate hydrate וערבבו היטב.
- סננו את התמיסה בסינון ואקום באמצעות מסנן 0.2 µm תוך כדי ערבוב למשך 1 h. הערבוב מאפשר לגז כלוא לצאת מהתמיסה, והואקום מסייע לכך ולסינון.
- בצעו סוניקציה לתמיסה באמבט אולטרסוני (42 kHz) למשך 30 min כדי להסיר בועות אוויר.
- עטפו את המיכל בנייר אלומיניום וסמנו אותו בהתאם.
הערה: איכות הרכיבים משפיעה רבות על זמני השהייה (retention times). שימוש ברכיבים בדרגת HPLC מסייע לשמור על עקביות בין הרצות. שימוש באותם רכיבים בעת הכנה מחדש של הפאזה הניידת שומר גם הוא על עקביות בתוצאות.
4. הכנת סטנדרטים
- להכנת התמיסות הסטנדרטיות, שקלו בנפרד 10 mg של OA, DA ו-5-HT על נייר שקילה.
- העבירו את הכמות שנשקלה לבקבוקי זכוכית נפרדים בנפח 125 mL כדי להכין תמיסות מלאי (stock solutions) נפרדות. שקלו שוב את הנייר הריק כדי לחשב את הכמות המדויקת של OA, DA או 5-HT שהועברה לבקבוקים.
- חשבו את כמות הממס שיש להוסיף כדי להגיע לריכוז של 100 ng/µL של האנליט. אם כל ה-10 mg הועברו, השתמשו ב-100 mL ממס. עבור OA ו-DA, השתמשו בחומצה הידרוכלורית 0.1 M כממס. עבור 5-HT, השתמשו במקום זאת בחומצה אצטית 0.1 M.
- הוסיפו לסטנדרטים 2Na-EDTA עד לריכוז סופי של 1 mg/mL. ערבבו היטב עד להמסה מלאה. עטפו את הבקבוק בנייר אלומיניום להגנה מאור ואחסנו בטמפרטורה של 4 °C.
הערה: ניתן לאחסן את הסטנדרטים עד 3 חודשים בתנאים אלו.
5. הכנת תמיסות כיול
הערה: כדי ליצור עקום כיול, הכינו שלושה תמיסות סטנדרט עם תערובת של BAs בריכוזים שונים. בדוגמה זו, אנו משתמשים בתמיסות עבודה בריכוזים של 0.03 ng/µL, 0.01 ng/µL ו-0.001 ng/µL. הזרקה של 10 µL תניב כמויות סטנדרטיות של 0.3 ng, 0.1 ng ו-0.01 ng, בהתאמה.
- התחילו בהכנת תערובת מלאי בריכוז 1 ng/µL על ידי הוספת 1 µL מכל מלאי BA בריכוז 100 ng/µL ל-97 µL של 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. ערבבבב היטב.
- קחו 2 µL ממלאי ה-1 ng/µL והוסיפו אותם ל-64.6 µL של 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. ערבבבב היטב. זוהי תמיסת העבודה בריכוז 0.03 ng/µL.
- קחו 2 µL ממלאי ה-1 ng/µL והוסיפו אותם ל-18 µL של 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. ערבבבב היטב. זוהי תמיסת העבודה בריכוז 0.1 ng/µL. תמיסה זו אינה מוזרקת בפרוטוקול זה; תפקידה הוא לשמש למ 희ש dilutions סדרתי בלבד.
- קחו 4 µL ממלאי ה-0.1 ng/µL והוסיפו אותם ל-36 µL של 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. ערבבבב היטב. זוהי תמיסת העבודה בריכוז 0.01 ng/µL.
- לבסוף, קחו 4 µL ממלאי ה-0.01 ng/µL והוסיפו אותם ל-36 µL של 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. ערבבבב היטב. זוהי תמיסת העבודה בריכוז 0.001 ng/µL.
הערה: יש להניח סטנדרטים אלו בקופסה המוגנת מאור. יש להכין את כל סטנדרטים של תמיסות העבודה באופן טרי.
6. הגדרת ההזרקה והפעלה
הערה: כל מערכות ה-HPLC פועלות על פי אותם עקרונות. עם זאת, הבדלים בחומרה עלולים להשפיע משמעותית על זמן השריון (retention time) ועל משך הריצה. יתרה מכך, הרגישות של ה-ECD תניב גבולי גילוי שונים. אלו יהיו צריכים להיקבע באופן אמפירי. במחקר זה נעשה שימוש במערכת כרומטוגרפיה נוזלית בעתקת ביצועים (HPLC) המצוידת בעמודת reverse-phase C18.
- הפעילו את ציוד ה-HPLC, כולל המשאבה והגלאי האלקטרוכימי. הגדירו את קצב הזרימה ל-100 µL/min והמתינו עד שהגלאי האלקטרוכימי יגיע לקו בסיס (baseline) יציב. תהליך זה אמור להימשך בין 10 min ל-30 min.
- כאשר הדגימות מוכנות להזרקה, הגדירו את קצב הזרימה ל-500 µL/min. המתינו 5 min להתייצבות המערכת. בינתיים, שטפו מזרק Hamilton של 20 µL שלוש פעמים עם מים אולטרה-טהורים.
- שאבו 10–20 µL של דגימה אל תוך המזרק. הנפח יהיה תלוי בקיבולת לולאת הדגימה (sample loop). עיינו במדריך למשתמש של לולאת הדגימה למידע נוסף.
- ודאו שאין בועות במזרק בעת ההזרקה. כל גז שייכלה יפריע לשאיבה תקינה של הפאזה הניידת או למדידות ה-ECD. אם קיימות בועות, החזירו את הדגימה ונסו להטעין את המזרק שוב.
- החדירו את המחט לחלוטין לשקע ההזרקה. העמידו את המנוף במצב טעינה (load) והזריקו את הדגימה על ידי לחיצה על בוכנת המזרק עד שכל הנוזל יצא ממנו. הורידו את מנוף המזרק למצב "הזרקה" (inject). הריצה התחילה, ובתנאים אלה, היא אמורה להסתיים תוך 30–35 min.
- אם ישנן דגימות נוספות להרצה, המתינו 10–15 min בריצת המערכת ב-500 µL/min לפני הזרקת הדגימה הבאה.
הערה: אם קיימות תנודות עקביות באות ה-ECD, בדקו אם חל שינוי בלחץ המערכת. גז כלוא במערכת עלול לגרום לזרימה לא אחידה ולרקע גבוה מהרגיל. כדי לפתור בעיה זו, בצעו שטיפה (purge) למערכת עם תמיסה טרייה במהירות גבוהה, תוך עקיפת ה-ECD.
7. שליפת נתונים וניתוחם
הערה: קיימים מספר ממירים מאנלוגי לדיגיטלי ותוכנות זמינות לאיסוף וניתוח של סוג זה של נתונים. ייתכן שהם נבדלים באופן עיבוד הנתונים; עם זאת, הם חולקים עקרונות כלליים. במחקר זה נעשה שימוש בתוכנה להמרת נתונים ובתוכנה לרכישה וניתוח נתוני כרומטוגרפיה, בהתאמה.
- שינויים בזרם/מתח הנובעים מחמצון ה-BAs, הנלכדים על ידי ה-ECD, יומרים על ידי ממיר האנלוגי-לדיגיטלי. ריכוז ה-BA פרופורציונלי לשינוי בזרם/מתח.
- השתמשו בשטח תחת העקומה שהתקבל מגרפים של זרם מול זמן מהרצות הסטנדרט של BAs כדי להעריך עקומת כיול. הערכים יוצגו באמצעות רגרסיה ליניארית בגרף של זרם/מתח (nA או mV) מול כמות (ng).
- באמצעות המשוואה הליניארית, חשבו את ריכוז ה-BAs בדוגמה שלכם.
תוצאות
תרכובות ביולוגיות עוברות חמצון במתחים שונים. במטריצה מורכבת, כגון רקמות מוח, בחירת פוטנציאל ECD מתאים תאפשר כימות נקי ומדויק יותר. כאן, בחרנו שני מתחים שונים כדי להדגים את השפעת גורם זה על הזיהוי והכימות של OA, DA ו-5-HT בדגימות מוח של Drosophila. בשימוש ב-950 mV, ניתן לזהות בקלות את 3 האמינים הללו בתערובת (איור 1A), בעוד שרק דופמין וסרוטונין נצפים ב-650 mV (איור 1B). תוצאה זו עקבית עם מתחי החמצון של תרכובות אלו: 900–1000 mV עבור OA, ו-600–700 mV עבור DA ו-5-HT. זמני השהייה עבור OA, DA ו-5-HT הם 6 דקות, 11 דקות ו-29 דקות, בהתאמה. כימות של שלוש כמויות שונות, 0.01 ng, 0.1 ng ו-0.3 ng, מניב עקומות כיול דומות עבור 950 mV או 650 mV (איור 1C,D, בהתאמה). עקומות אלו מדגימות את הליניאריות והרגישות של הבדיקה עבור כל אנליט בטווח הריכוזים שנבדק בכל פוטנציאל גילוי.
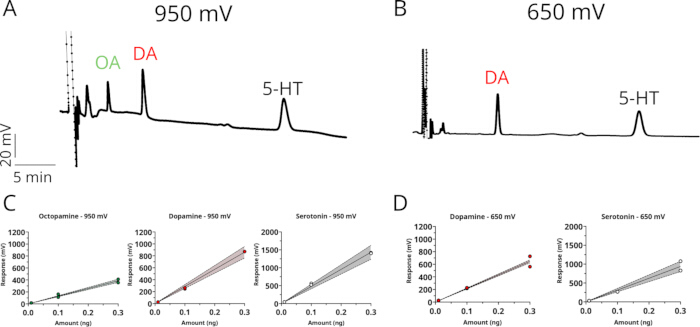
איור 1: זיהוי וכימות שלומינים ביוגניים באמצעות HPLC-ECD בשני פוטנציאלים של חמצון. (A,B) כרומטוגרמות מייצגות המראות הפרדה של סטנדרטים של אוקטופמין (OA), דופמין (DA) וסרוטונין (5-HT) שזוהו בפוטנציאל של (A) 950 mV או (B) 650 mV. ציר אנכי: תגובה (mV); ציר אופקי: זמן שהייה (5 min לכל סימון, כפי שמוצג בסרט הדרג). (C,D) עקומות כיול עבור כל אנליט ב- (C) 950 mV ו- (D) 650 mV, המציגות את תגובת השיא (mV) מול כמויות סטנדרט (ng; 0.01–0.3 ng). קווים רציפים מייצגים התאמות רגרסיה לינארית, רצועות מוצלות מציינות רווחי סמך של 95%, ועיגולים מלאים/פתוחים מייצגים 2 הזרקות סטנדרט בודדות לכל ריכוז. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
דגימות מורכבות, כגון אלו המופקות מחילוצי מוח, אחראיות בדרך כלל לרקע ביולוגי משמעותי. בהתאם לפרוטוקול המתואר כאן, ביקשנו לקבוע את השפעת מתח האלקטרודה על הגילוי והכימות של BAs בדגימות מוח. זבובים זכרים בוגרים נאספו עם הדלקת האורות לאחר יומיים מלאים של סנכרון (entrainment), ומוחוחות הופרדו ב-PBS קר מאוד ואז הונחו ב-0.2 N PCA על קרח. לאחר פירוק הרקמה וצנטריפוגה, הנוזל העליון הגיע לשיווי משקל עם sodium acetate 1 M, ו-10 µL הוזרקו. קביעת פוטנציאל האלקטרודה על 950 mV מניבה שיאים עבור אוקטופמין, דופמין וסרוטונין בזמני השהייה המתאימים (איור 2A, עקבה שחורה). זהותם אושרה בהמשך על ידי ניתוח דגימה שהועשירה בכמויות ידועות (0.01 ng של כל אחד) מכל BA (איור 2A, עקבה אדומה). עם זאת, נצפים מספר שיאים נוספים סביב האנליטים המבוקשים, מה שעלול לסבך את הכימות. קביעת פוטנציאל האלקטרודה על 650 mV פותרת בעיה זו על חשבון הגילוי של אוקטופמין (איור 2B). כפי שמוצג ב-איור 1, OA אינו מופרד ב-650 mV, דבר העולה בקנה אחד עם פוטנציאל החמצון הגבוה שלו.
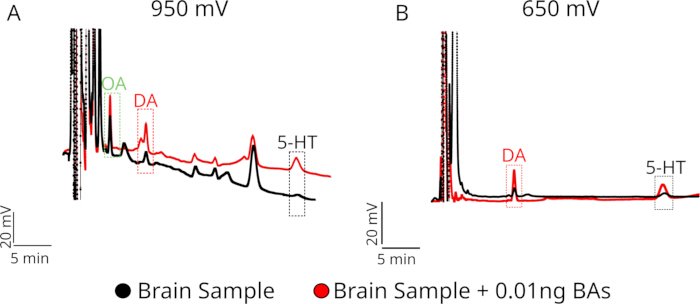
איור 2: זיהוי שלושיים ביוגניים אנדוגניים בדגימות מוח באמצעות הגברת שיאים (spike-in) בשני פוטנציאלי חמצון. (A,B) כרומטוגרמות מייצגות של תמצית רקמת מוח שנותחה ב-HPLC-ECD תחת פוטנציאל מופעל של (A) 950 mV או (B) 650 mV, המוצגות לפני (קו שחור, "דגימת מוח") ואחרי (קו אדום, "דגימת מוח + 0.01 ng BAs") הוספה של כמות ידועה (0.01 ng) של סטנדרטים של octopamine (OA), dopamine (DA) ו-serotonin (5-HT). מלבנים מקווקווים מציינים את חלונות זמן השהייה עבור כל אנליט. ציר אנכי: תגובה (20 mV, מצוין על ידי קנה מידה); ציר אופקי: זמן שהייה (5 min, מצוין על ידי סרגל קנה מידה). אנא לחצו כאן לצפייה בגרסה מוגדלת של איור זה.
בהתאם לאותו פרוטוקול, השתמשנו ב-HPLC-ECD כדי לזהות הבדלים בתכולת האמינים הביוגניים במוחות של זבובים המבטאים α-synuclein בנוירונים דופמינרגיים (TH-T2A-GAL4 > UAS-SNCA.J34), מודל זבוב למחלת הפרקינסון. מחקרים קודמים שהשתמשו במודל PD המבוסס על מוטציות בגן Pink1 הראו הבדלים ברמות הדופמין בזבובים צעירים כבר בגיל 0-3 ימים35. כאן, נעשה שימוש בזבובים בני 3–6 ימים כדי להשוות את רמות הדופמין והסרוטונין. רמות הדופמין היו גבוהות באופן משמעותי בזבובים עם PD, בהשוואה לזבובים של קבוצת הביקורת (איור 3A), בעוד שרמות הסרוטונין לא השתנו (איור 3B). רמות דופמין גבוהות בשלבים המוקדמים עשויות לשקף מנגנוני פיצוי לפני הופעת תסמיני ה-PD במודל זה (נסקר ב-Blesa J et al.36).
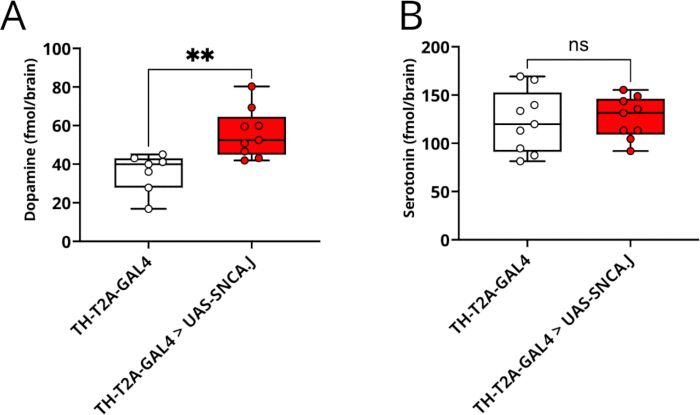
איור 3: כימות רמות דופמין וסרוטונין במודל Drosophila למחלת פרקינסון באמצעות HPLC-ECD. רמות דופמין (A) וסרוטונין (B) ברקמת המוח השלם, מבוטאות כ-fmol/brain, בזבובים של קבוצת הביקורת (TH-T2A-GAL4, n = 7 ב-A ו-n = 9 ב-B) ובמודל למחלת פרקינסון (TH-T2A-GAL4 > UAS-SNCA.J, n = 9). במודל זה, רצף ה-α-synuclein האנושי שעבר אופטימיזציה של קודונים (SNCA.J) מובטא באופן יתר סלקטיבי בנוירונים דופמינרגיים תחת בקרת הדרייבר TH-T2A-GAL4. הנתונים מוצגים כתרשימי קופסה ופשמים (חציון, טווח בין-רבעוני, ומינימום–מקסימום) עם נקודות נתונים בודדות עליהם, כאשר כל נקודה מייצגת רפליקה ביולוגית אחת (n) המורכבת מ-5 מוחות מאוחדים. מובהקות סטטיסטית נקבעה באמצעות t-test לא מזווג (**p < 0.01, ns, לא מובהק). אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
דיון
HPLC היא טכניקת הפרדה בעלת יכולת התאמה אישית גבוהה. ככזו, ניתן לשנות שלבים רבים בפרוטוקול זה. השגת תוצאות מהימנות תלויה בתשומת לב קפדנית ובעקביות בביצוע שינויים אלו. הפולריות היחסית של הפאזה הנייחת והפאזה הניידת מגדירה את מצב ההפרדה: בפאזה נורמלית (normal phase) משלבים פאזה נייחת פולרית עם פאזה ניידת לא פולרית, בעוד שבפאזה הפוכה (reverse phase) משלבים פאזה נייחת לא פולרית עם פאזה ניידת פולרית. ניתוח של אמינים ביוגניים ברקמה ביולוגית משתמש בדרך כלל בתנאי פאזה הפוכה. במחקר זה נעשה שימוש בפאזה ניידת של ציטראט-אצטט עם מתנול כממס העיקרי; עם זאת, מדידות דומות בוצעו בהצלחה עם בופר פוספט עם אצטוניטריל כממס22,26,35. לפיכך, הרכב הבופר יכול להשתנות בהתאם לרזולוציה ולצורה הרצויות של הפיסגות. שינוי בהרכב הפאזה הניידת עשוי להוביל לשינוי בזמני האלוציה37. הדבר עלול לגרום לחפיפה בין פיסגות, מה שיהפוך את הכימות לקשה או לבלתי אפשרי. לצורך פתרון בעיות, שינויים ב-pH הם הפתרון היעיל ביותר, כיוון שהאינטראקציה של האנליט עם העמודה תלויה במידה רבה ב-pKa שלו38.
אמינים עלולים לעבור דגרדציה חמצונית, ולכן איסוף הרקמות והטיפול בהן הם נקודות חשובות בפרוטוקול. איסוף דגימות על קרח יבש ושמירתן ב-80 °C- עד לעיבוד הוא שלב חשוב. לאחר הדיסקציה, יש להומוגניז את הדגימות במהירות בתנאים חומציים. דבר זה מונע את פירוק ה-BAs30,39,40. בהקשר זה, חומצות אחרות עשויות להועיל אם הגישה ל-PCA מוגבלת. ניתן להשתמש גם בשילוב של חומצה פורמית, חלופה מחמצנת שאינה נפיצה ל-PCA, ומתנול לצורך מיצוי; עם זאת, לא בחנו זאת בדגימות מוח של Drosophila41.
בחירת הגלאי קובעת מה ניתן למדוד ובאיזו רגישות; אפשרויות נפוצות כוללות גלאי UV/visible, פלואורסצנציה וספקטרומטריית מסות, כאשר כל אחד מהם מתאים למאפייני אנליט ודרישות רגישות שונות. גילוי אלקטרוכימי מתאים במיוחד לקטכולאמינים ואינדולאמינים כגון DA ו-5-HT, אשר עוברים חמצון ישירות באלקטרודת העבודה כדי לייצר זרם הפרופורציונלי לריכוזם. ECD צוין כטכניקה פשוטה ומדויקת יותר בהשוואה לשיטות גילוי חלופיות כגון גילוי פלואורסצנציה וגילוי ultraviolet, ששתיהן דורשות לעיתים קרובות שלבים נוספים לפני שניתן לנתח את הדגימות, מה שהופך אותן למורכבות יותר או גוזלות זמן רב יותר42,43. HPLC-ECD מציע רגישות יוצאת דופן, שכן הוא יכול לזהות אנליטים בדגימות ביולוגיות בריכוזים פמטומולריים44. בהתחשב בכך שמוח בודד של Drosophila מספק כמות קטנה מאוד של רקמה, רמת רגישות זו היא חיונית. באופן קריטי, HPLC-ECD מאפשר גם כימות סימולטני של מספר אמינים ביוגניים מדגימה אחת, מה שאומר שניתן ללכוד את פרופיל המונואמינים המלא של הדגם של מערכת העצבים המרכזית של Drosophila בריצה אנליטית אחת.
לשיטה יש מגבלות מובנות המגדירות את היקפה. בעוד ששיטה זו היא רגישה ביותר, כימות של BAs מדגימות של Drosophila מחייב איסוף של מספר מוחות למכל (pooling). לכן, לא דווח על גילוי במוח בודד, בדומה לגישות אחרות45. חיסרון נוסף הוא זיהום האלקטרודה (electrode fouling). זיהום האלקטרודה עלול להתרחש עם הזמן כאשר תוצרי לוואי חמצוניים יוצרים שכבה מבודדת דקה על פני השטח, דבר המשפיע על הרגישות וגורם לסחף באות46. הדבר בולט במיוחד בתוצאותינו בעת שימוש במתח חמצון גבוה יותר (איור 2). כדי להתחשב בשינויים כאלה, ביצוע הזרקות סטנדרטיות חוזרות לאחר מספר הרצות עשוי להועיל. יש לחזור על הזרקות סטנדרטיות גם בכל פעם שנעשה שינוי בפאזה הניידת או בפוטנציאל הגילוי, כדי להתחשב בסטייה כלשהי בפיקים שנצפו. ניקוי תקופתי של האלקטרודה יכול לסייע בבעיה זו. חיסרון נוסף הוא ש-HPLC-ECD מספק מדידה סטטית כוללת של תכולת האמינים המשולבת על פני הרקמה שהוגשה לאנליזה. הוא אינו מספק מידע על המיקום של אמינים אלו במוח, וגם לא על התרומה היחסית של אוכלוסיות נוירונליות ספציפיות. תרכובות שאינן אלקטרו-אקטיביות, כגון GABA וגלוטמט, אינן ניתנות לגילוי בתנאי ECD סטנדרטיים ודורשות בדיקות נפרדות. אולי החשוב מכל הוא ש-HPLC-ECD היא שיטה ממוקדת. לא ניתן להשתמש בה כדי לזהות מולקולות לא ידועות שעשויות להיות קשורות לפנוטיפ התנהגותי, מכיוון שהיא מסתמכת לחלוטין על השוואת זמני שימור עם סטנדרטים ידועים ומאופיינים היטב. לגילוי לא ממוקד של מתאמים נוירוכימיים להתנהגות, טכניקות כמו LC-MS/MS יהיו מתאימות יותר, אם כי בעלות גבוהה יותר.
במסגרת גבולות אלו, שיטת HPLC-ECD נותנת מענה לקבוצה מוגדרת ובעלת משמעות ביולוגית של שאלות במודלים של הפרעות ב- Drosophila . היא יכולה לקבוע האם גנוטיפ או טיפול מסוים משנים את רמות האמינים במצב יציב (steady-state) והאם שינויים אלו סלקטיביים למערכת מוליכים עצביים אחת או משפיעים על פרופיל המונואמינים הרחב יותר. היא יכולה לעקוב אחר שינויים נוירוכימיים לאורך שלבי התפתחות או התקדמות מחלה, ובכך לספק ראיות למצבים ביוכימיים טרום-סימפטומטיים הקודמים לפנוטיפים התנהגותיים שניתן לזהות47. כמו כן, היא מתאימה מאוד להערכה האם התערבות פרמקולוגית או גנטית מנרמלת, גורמת לחריגה (overshoot), או נכשלת בהשגת הצלה של חסרים באמינים במודל נתון26. מענה על שאלות כגון ובאיזה שלב כל אמין משתנה, האם תיקון של מערכת אחת משבש מערכת אחרת, והאם הפרעה התפתחותית מותירה עקבה נוירוכימית מתמשכת, הוא בדיוק המטרה של שיטה רגישה, רב-אמינית ובמסה (bulk). כאשר היא משמשת לצד בדיקות התנהגותיות וכלים גנטיים הזמינים ב- Drosophila, מספקת HPLC-ECD רובד ביוכימי כמותי המרחיב באופן משמעותי את היכולת הפרשנית של מודלים אלו להפרעות.
גילויים
המחברים מצהירים כי אין ניגודי עניינים.
תודות
עבודה זו נתמכה על ידי מענק R00NS133470 של National Institutes of Health (S.H.). התוכן הוא באחריותם הבלעדית של המחברים ואינו מייצג בהכרח את עמדותיהם הרשמיות של National Institutes of Health. R.V.Z נתמך על ידי Subvención a la Instalación en la Academia (SIA) N°85250142, ו-J.M.C. נתמך על ידי FONDECYT 1231556, Agencia Nacional de Investigación y Desarrollo, צ'ילה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| (+-) Octopamine Hydrochloride | Sigma Aldrich | 770-05-8 | |
| יחידת סינון של 500 מ"ל | Thermo Scientific | FB12566504 | ממברנת aPES בנקבוביות של 0.2 מיקרון, קוטר 75 מ"מ |
| חומצה אצטית, גלציאלית | Fisher Scientific | 64-19-7 | |
| חומצה ציטרית אנידרית | USB | 77-92-9 | |
| תוכנת כרומטוגרפיה Clarity | דאטה אפקס (Data Apex) | גרסה 10.1 | |
| ממיר נתונים של Colibrick | Data Apex | ממיר אנלוגי-דיגיטלי | |
| דופמין הידרוכלוריד | Sigma Aldrich | 62-31-7 | |
| פינצטה Dumont #5 (Dumoxel Biology) | Fine Science Tools | 11252-30 | פינצטות נתיחה |
| EDTA, מלח דיסודיום, דיהידרט, קריסטל (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | אייקום (Eicom) | 680.060.00 | עמודת הפרדה פאזה הפוכה |
| מים טהורים במיוחד (סוג 1) מדגם Synergy UV-R של EMD Millipore | Millipore | ||
| מזרק Hamilton בנפח 25ul (22s/2)"/3) | Hamilton | 80465 | |
| HTEC-600 | אייקום | מכשיר HPLC | |
| חומצה כלורית | Sigma Aldrich | 7647-01-0 | |
| מגבוני רקמה לשימוש קל | VWR | 82003-820 | |
| מתנול בדרגת HPLC | Fisher Scientific | 67-56-1 | סונן דרך פילטר של 0.2 מיקרון |
| חומצה פרכלורית, 70% במים | Fisher Scientific | AC424032500 | השתמש עבור PCA בריכוז 0.2 N |
| סרוטונין הידרוכלוריד 98% | Fisher Scientific | 153-98-0 | |
| סודיום 1-אוקטנסולפונט הידרט, דרגת HPLC, +99% | Thermo Scientific | 5324-84-5 | |
| נתרן אצטט, טריהידראט, גבישים | J.T Baker | 6131-90-4 | |
| מנקה אולטרסוני Sonicator 1510 Bransonic | Branson | מספר דגם: 1510R-MT | סוניקטור (Sonicator) |
| מעבד אולטרסוני סוניקטור | Fisherbrand | דגם FB50 | עם גשושית CL18 |
מקורות
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב