פרוטוקול זה מספק מדריך לדימיג קונפוקאלי חי של דינמיקת מיקרוטובולי באמצעות סמני מיקרוטובולי פלואורסצנטיים בנוירונים תחושתיים של זחלי Drosophila.
מאמר שיטה
דימות דינמיקת מיקרוטובולי In Vivo בדנדריטים תחושתיים של Drosophila
* These authors contributed equally
במאמר זה
סיכום
תקציר
Drosophila נוירונים תחושתיים מסוג class IV בזריקים מאופיינים בעצי דנדריטים בענפים רבים המתרחבים באופן איזוטרופי בשני ממדים ככל שהזריקים מתפתחים, והם ממוקמים ממש מתחת לקוטיקולה. הצמיחה של עצים אלו מונעת מתהליכים סטוכסטיים הכוללים צמיחה, התכווצות ועצירה של קצות הדנדריטים. כדי לבחון את ההשערה כי הדינמיקה של הקצוות מונעת על ידי דינמיקה של מיקרוטובוליים, פותחו פרוטוקולים לדימיון של מיקרוטובוליים המסומנים פלואורסצנטית בתוך הדנדריטים. השיטה מאפשרת ויזואליזציה של דינמיקת מיקרוטובוליים בדנדריטים טרמינליים עדינים של נוירונים תחושתיים מסוג class IV באמצעות מיקרוסקופיה קונפוקלית. היא תוכננה כך שתשמר את מורפולוגיית עץ הדנדריטים במהלך הדימיון, תוך שהיא מאפשרת ויזואליזציה של המיקרוטובוליים יחד עם סמן ממברנה. כתב יד זה מתאר את ההליכים המשמשים להכנת זריקי Drosophila לדימיון חי (live imaging) ולויזואליזציה של מיקרוטובוליים המסומנים פלואורסצנטית בדנדריטים. לפיכך, הפרוטוקול מספק גישה לבחינת התנהגות מיקרוטובוליים בדנדריטים טרמינליים עדינים, תוך שהיא נותרת תואמת לסימון משותף (co-labeling) של הממברנה.
מבוא
נוירונים הם תאים מקוטבים מאוד ששלד התא שלהם מגדיר את הארכיטקטורה שלהם. מיקרוטובולים, מרכיב אחד של שלד התא הנוירונלי, מספקים תמיכה מבנית ומשמשים כמסלולים להובלת מטען למרחקים ארוכים1,2. שלד המיקרוטובולים חיוני להתפתחות הדנדריטים3. דנדריטים גדלים באופן סטוכסטי בתהליך של התבססות, התארכות והתכווצות4. נוירונים של arborization dendritic (da) בזחלי Drosophila הם מערכת מודל in vivo עוצמתית לחקר מורפוגנזה דנדריטית. נוירונים תחושתיים אלו מקובצים לארבע מחלקות (I–IV) על בסיס מורכבות דנדריטית גוברת3,5. לנוירוני da ממחלקה IV יש דנדריטים מורכבים ומסועפים מאוד, והם מתפקדים כנוספטורים מולטי-מודאליים6,7,8. הדנדריטים של נוירונים אלו יוצרים שדות רצפטיביים סטריאוטיפיים לאורך פלחי הבטן ונמצאים ממש מתחת לקוטיקולה השקופה9,10. אנטומיה זו, יחד עם היכולת המניפולטיבית הגנטית של Drosophila, הופכת את נוירוני da ממחלקה IV למערכת מתאימה להדמיית התפתחות דנדריטים in vivo ברזולוציה מרחבית וזמנית גבוהה. ככל שהדנדריטים גדלים במהלך ההתפתחות, קצותיהם עוברים באופן סטוכסטי בין מצבים של צמיחה, התכווצות ועצירה11. לצמיחה ולהתכווצות של הקצוות יש דמיון קינטי רב לצמיחה והתכווצות של מיקרוטובולים12. לכן, להדמיית הדינמיקה של מיקרוטובולים בתאים אלו יש עניין רב.
גישה נפוצה להדמיית דינמיקה של מיקרוטובוליים בתאים חיים, כולל כאלו ב लार्בות Drosophila, היא דימוי של חלבונים נקשרי-קצה (end-binding proteins) מסומנים פלואורסצנטית כגון EB1 ו-EB313,14,15,16,17,18. עם זאת, פרשנות של אותות EB-GFP עלולה להיות מעומעמת. לדוגמה, נקודת (punctum) EB-GFP הנעה באופן דיסטלי, הרחק מגוף התא, עשויה לייצג קצה פלוס של מיקרוטובולה הגדלה כלפי חוץ, או קצה פלוס של מיקרוטובולה הגדלה כלפי פנים אשר מחליקה בכיוון הדיסטלי. למרות ש-EB-GFP מסמן בעיקר את קצוות הפלוס של מיקרוטובולים הגדלים, הוא יכול לסמן גם קצוות מינוס הגדלים19, מה שמוביל לעמימות נוספת. הדמיה ישירה של מיקרוטובולים יכולה להפחית עמימויות אלו.
גישה חלופית ל-EB-GFP היא סימון ישיר של מיקרוטובוליים באמצעות GFP-tubulin20,21. עם זאת, בעוד ש-tubulin פלואורסצנטי מסמן באופן חזק דנדריטים פרוקסימליים22, הוא אינו מצליח לסמן דנדריטים דיסטליים23. קושי נוסף בשימוש ב-tubulin פלואורסצנטי הוא שהריכוז הגבוה של tubulin מסיס מקשה על ההבחנה בין מיקרוטובוליים בודדים בתהליכים צרים, כגון דנדריטים טרמינליים. לפיכך, דימוי של דינמיקת מיקרוטובוליים בנוירונים שלמים תחת תנאים פיזיולוגיים נורמליים נותר מאתגר.
ה דרוזופילה חלבון Jupiter המשויך למיקרוטובולי (MAP), הומולוג מבני של Tau, MAP2 ו-MAP4 של יונקים, הוכח כ- משמש לסימון מיקרוטובולים ב- דרוזופילה רקמות, כולל השחלה ועובריו24בדנדריטים מסוג IV, נעשה שימוש ב-mCherry-Jupiter וב-sfGFP-Jupiter כדי לכמת מיקרוטובולים בענפים פרוקסימליים.22,25,26פרוטוקול זה מתאר שיטת דימוי חי המאפשרת תצפית ברזולוציה גבוהה ובמרווחי זמן (time-lapse) של התנהגות מיקרוטובוליים נוירונליים בדנדריטים מרוחקים של דרוזופילה נוירונים מסוג class IV באמצעות זני זבובים המבטאים את הדומיין הקושר טובולין המסומן פלואורסצנטית של Jupiter.
פרוטוקול
במחקר זה נעשה שימוש ב- Drosophila melanogaster, מודל של בעל חולקים שבעבורו לא נדרש אישור של ועדת אתיקה מוסדית לניסויים בבעלי חיים. הכלים ששימשו לפרוטוקול מפורטים ב- טבלת חומרים.
1. יצירת קווי זבובים ניסיוניים
- בצעו הכלאה כדי לקבל את קו ההורים הרצוי. השתמשו במערכת הבינארית GAL4/UAS כדי להביא לביטוי של mNeonGreen (mNG)-Jupiter בנוירוני הסתעפות דנדריטית (da) מסוג class IV המבטאים GAL4 תחת מקדם ppk.
- הכליאו נקבות בתוליים מקו UAS-mNG-Jupiter הומוזיגוטי עם זכרים מקו ppk-GAL4; CD4tdTomato הומוזיגוטי. השגיו צאצאי F1 הנושאים הן את ppk-GAL4; CD4tdTomato והן את UAS-mNG-Jupiter.
הערה: צאצאי F1 הנושאים הן את ppk-GAL4; CD4tdTomato והן את UAS-mNG-Jupiter מבטאים mNG ו-CD4tdTomato בעוצמה גבוהה בנוירוני da מסוג class IV. בצעו הדמיה באמצעות זחלים שהופקו לפחות משלוש הכלאות גנטיות עצמאיות, עם מינימום של שישה זחלים שהודמם לכל הכלאה. - שמרו את ההכלאה בבקבוק תחזוקה לצורך הזיווג, כאשר מעט משחת שמרים נמרחה על הדופן. דגרו בטמפרטורה של 25 °C למשך 2–3 ימים.
הערה: האכלת שמרים מעלה את קצב השמת הביצים וההטלה. - הכינו את משחת השמרים על ידי הנחת כף שמרים בכלי זכוכית קטן והוספת מספר טיפות של מים. ערבבו היטב בעזרת שפכטל עד שהמשחה תגיע לעקביות חצי-מוצקה, תוך הוספת מים בטיפות לפי הצורך.
- העבירו את הזבובים לבקבוק תחזוקה חדש המכיל משחת שמרים טריה מדי יום.
הערה: ודאו שמשחת השמרים אינה רכה מדי ואינה מימית מדי. אם היא תהיה רכה מדי, הזבובים עלולים להיתקע. לפרטים מתודולוגיים נוספים, ראו Hales et al.27 ו-Roote and Prokop28.
2. הנחת ביצים על צלחות אגר-ענבים, איסוף ביצים וסיווג שלבי הזחלים
- הכינו כ-0.5 L של מצע ענבים-אגר על ידי ערבוב של 376 mL מים מזוקקים, 126 mL מיץ ענבים, 15 g אגר ו-6 g סוכרוז בתוך כלי זכוכית בנפח 1 L המתאים למיקרוגל.
- חממו במיקרוגל למשך 3–5 min, תוך ערבוב סיבובי כל 1 min עד להמסה מלאה של האגר. המתינו שמיxture יתקרר מעט, ולאחר מכן הוסיפו 10 mL אתנול ו-5 mL חומצה אצטית.
- ערבבו היטב ויצקו את המצע לתוך צלחות פטרי בקוטר 60 mm להכנת צלחות ענבים-אגר. הכינו את הצלחות מראש, אחסנו אותן בטמפרטורה של 4 °C על ידי ערימה הפוכה ועטיפה בשרוולי צלחות פטרי, והשתמשו בהן בתוך שבועיים. חממו מראש את הצלחות לטמפרטורת החדר לפני השימוש.
- העבירו כ-150 זבובים, הכוללים 50 זכרים ו-100 נקבות, מבקבוק התחזוקה לכלוב הטלת ביצים.
- כסו את כלוב הטלת הביצים בצלחת ענבים-אגר של 60 mm המכילה מעט משחת שמרים.
- אפשרו לזבובים להטיל ביצים בטמפרטורה של 25 °C למשך 2 h על צלחת הענבים-אגר המכילה משחת שמרים. החליפו את הצלחת בצלחת ענבים-אגר טרייה המכילה משחת שמרים ואפשרו הטלת ביצים למשך 2 h נוספות.
- ספקו צלחת ענבים-אגר שלישית של 60 mm המכילה משחת שמרים ואפשרו לזבובים להטיל ביצים למשך 2 h.
- השתמשו בצלחת השלישית כצלחת הניסוי והשליכו את שתי הצלחות הראשונות כדי לצמצם את ההטרוגניות בגיל העוברים.
הערה: איסוף הביצים הראשוני מכיל לעיתים קרובות עוברים בשלבי התפתחות שונים, מכיוון שנקבות Drosophila יכולות להחזיק ביצים מופריות בדרכי הרבייה למשך מספר שעות לפני הטלתן. השלכת הצלחות הראשונות מסייעת בהשגת ביצים מסונכרנות יותר. - עבור דימוי מבוסס שלבים לאחר הטלת הביצים (AEL), אפשרו לעוברים בצלחות הניסוי להתבגר בטמפרטורה של 25 °C עד להגעה לשלב הרצוי: שלב 1, 24 h; שלב 2, 48 h; שלב 3, 72 h; ושלב 4, 96–120 h.
3. ניקוי הזחלים
- שטפו את הזחלים ב-5 mL של תמיסת סוכרוז 5%, ולאחר מכן ב-5 mL של dH₂O, כדי להסיר שאריות שמרים מהשטח ולמנוע התייבשות.
- העבירו את הזחלים, בדרך כלל שלושה או ארבעה, למכסה של צלחת תרבית תאים בנפח 35 mm באמצעות מברשת צבע 3/0. ייבשו את הזחלים בעזרת נייר סופג למעבדה כדי להסיר עודפי מים.
4. הרדמה
- נקה ויבש את הזחלים לפני ההרדמה.
- הכן מראש את מערך ההרדמה (איור 1). הנח את צלחת תרבית התאים בתוך מארז קרטון כדי להפחית את תנועת האוויר מעל הצלחת ולמזער את הפרעת ההרדמה באיסופלורן.
זהירות: איסופלורן הוא חומר הרדמה נדיף. טפל באיסופלורן והשתמש בו עם אוורור מעבדתי מתאים ובהתאם לנהלי הבטיחות הכימית של המוסד. שבית את הזחלים על ידי הוספת הנפח הנמדד של איסופלורן לתוך שרביט ההרדמה המודבק בסרט דביק בתוך צלחת תרבית תאים של 35 mm המשמשת כמאגר אידוי. - הנח את מכסה צלחת תרבית התאים המכיל את הזחלים הנקיים והיבשים על גבי צלחת תרבית התאים.
- הרדם את הזחלים למשך 2–3 דקות.
הערה: נפח האיסופלורן ומשך ההרדמה תלויים בשלב התפתחות הזחלים ובמספרם. קבע את הכמות באופן אמפירי. לדוגמה, השתמש ב-10–20 µL של איסופלורן למשך 2 דקות כדי להרדים שלושה זחלים בני 72 h למשך כ-30 דקות. השתמש ב-5 µL של איסופלורן לזחל לדקה כמינון התחלתי לשביתה, ללא קשר לשלב התפתחות הזחל.
5. הרכבה
- צרו תגחור מלבני או מעגלי באמצעות וסלין על זכוכית נקייה של שקופית מיקרוסקופ, והשאירו מרווח קטן באחת הפינות (איור 1C). השתמשו במפזר חנה כדי לצייר את התגחור על השקופית.
- העבירו את הזחליים המורדמים אל התגחור באמצעות מכחול. מקמו את הזחליים כאשר הצד הגבי פונה מעלה בטיפה של Halocarbon Oil 700.
- הניחו כיסוי זכוכית (coverslip) מסוג No. 1.5 מעל הזחל. הפעילו לחץ עדין עד שהווסלין אוטם את הרווח שבין כיסוי הזכוכית לשקופית והזחל נמעך קלות כנגד שקופית המיקרוסקופ.
- בצעו דימוג של הדגימה באופן מיידי, למשך עד 30–45 min משלב ההעברה שמתואר בשלב 5.2. הפסיקו את הדימוג אם נצפו בועיות (blebbing) או נזק עצבי, כולל שבירה של דנדריטים, בערוץ הממברנה; השתמשו במינון נמוך יותר של חומר ההרדמה.
הערה: וודאו שאין בועות ב-Halocarbon Oil לאחר הנחת כיסוי הזכוכית. הימנעות מבועות נדרשת לקבלת סרטוני דינמיקה באיכות גבוהה ולצמצום הסחיפה (drift). כדי למזער את היווצרותן של בועות אוויר, השאירו מרווח קטן באחת הפינות של תגחור הווסלין כדי לאפשר לאוויר לברוח במהלך הנחת כיסוי הזכוכית. אטמו את המרווח באמצעות מכחול עדין במידת הצורך.
6. מיקרוסקופיה ורכישת תמונות
- בצעו דימות חיה של דגימות הזחלים באמצעות מיקרוסקופ קונפוקאלי עם דיסק מסתובב (spinning-disk confocal microscope), המצויד בפינול (pinhole) של 50 µm ובמערכת מיקוד אוטומטית (perfect-focus system).
- הגדירו את קווי הלייזר של 488 nm ו-561 nm ל-30% מההספק המקסימלי (בהנחה שמדובר בלייזרים של 100 mW), כדי להדמות את הסמן של המיקרוטובולי, כגון mNG-Jupiter, ואת סמן הממברנה, CD4tdTomato.
- הגדירו את זמן החשיפה ל-200 ms. צלמו את התמונות באמצעות מצלמת sCMOS עם חיישנים של 6.5 µm ובתוספת תוכנת רכישת התמונות המתאימה.
- רכשו את כל התמונות באמצעות עדשת שיקוע במים (water-immersion objective) של 40× עם מפתח מספרי (numerical aperture) של 1.25 וגודל פיקסל של 0.1614 µm.
- בצעו מיקוד ידני של הדגימה כדי לאתר את חצאי-הפלחים (hemisegments) השני, השלישי והרביעי של הבטן בפני השטח הגביים, שם נוירונים מסוג class IV נגישים בקלות דרך הקוטיקולה השקופה.
- עבור כל הקלטה, רכשו סט של z-stacks המקיפים עומק של עד 10 µm בצעדים של 1 µm. רכשו את ה-stacks במרווחי זמן של 10 s למשך 10 או 15 min.
הערה: אלא אם צוין אחרת, השתמשו בזחלים בגיל 72 h AEL לצורך הדימות.
7. עיבוד ואנליזה של תמונות
- ייבאו את סרטי ה-time-lapse שהושגו בפורמט .ND2 לתוכנת FIJI (Fiji Is Just ImageJ) באמצעות מייבא ה-Bio-Formats. המירו את הסרטים לפורמט TIFF לצורך ניתוחים המשכיים.
- בצעו ייצוב של הסרטים כדי לתקן עבור סחף של הדגימה (sample drift) באמצעות תוסף ייצוב התמונה (image stabilization) עם הגדרות טרנספורמציה אפינית (affine transformation) ב-FIJI.
- השמיעו סרטים מהניתוח אם התנועה מוגברת. הגדירו תנועה הגדולה מ-1 µm/min כיתר והשמיעו סרטים אלה מהניתוח. כמו כן, השמיעו סרטים שבהם נצפתה התווספות של שלפוחיות (blebbing) בערוץ של סמן הממברנה (CD4tdTomato).
- הפכו את ה-z-stacks לסדרות זמן דו-ממדיות על ידי יצירת היטלי עוצמה מקסימלית (maximum-intensity projections) לאורך ציר ה-z ב-FIJI.
- שרטטו באזורי עניין (ROIs) לינאריים ב-FIJI לאורך המאפיין הנבדק כדי לכמת את התכונות הדינמיות של הקצוות והמיקרוטובוליים. השתמשו בתוסף Multi Kymograph ב-FIJI כדי לייצר קימוגרפים. צרו את הקימוגרף באמצעות סריקת קו ברוחב 3 פיקסלים לאורך ה-ROI ועבדו אותו באמצעות תוסף Multi Kymograph ב-FIJI.
- הפיקו פרופילי עוצמה באמצעות כלי ה-Plot Profile עם רוחב קו של 3 פיקסלים. צרו קובץ CSV רב-עמודות שבו עמודות לסירוגין מקודדות כמיקום ועוצמה לאורך כל סריקת קו.
- השמיגו את עוצמת הרקע מ-ROI תואם באזור ריק של השדה. החסירה את עוצמת הרקע מכל פריים.
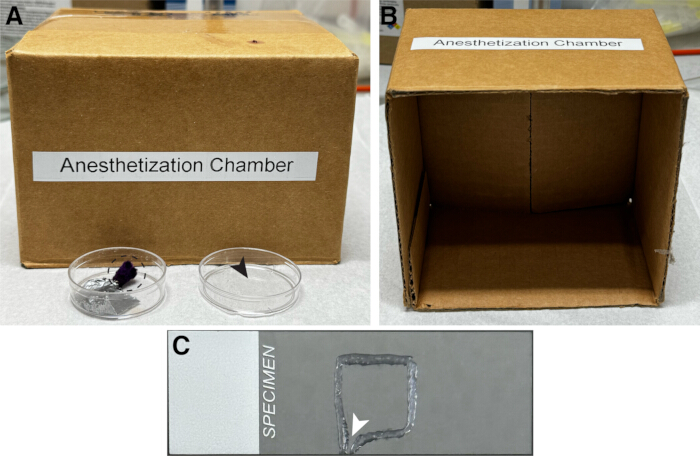
איור 1: רכיבי מערך ההרדמה. (A) קופסת קרטון קטנה המכסה צלחת תרבית תאים בנפח 35 mm המכילה מקלונית הרדמה באידוי המקובעת באמצעות סרט הדבקה (מעגל מקווקו שחור). מכסה צלחת התרבית שימש להחזקת זחלים נקיים ויבשים לפני ובמהלך ההרדמה (חץ שחור). (B) מבט פנימי של הקופסה. (C) זכוכית מיקרוסקופ עם תחום וזלין מרובע שהוכן באמצעות מדפיק henna להחזקת דגימת הזחלים במהלך ההדמיה. מרווח קטן (חץ לבן) מקל על הוצאת האוויר בעת הנחת זכוכית הכיסוי. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
תוצאות
בהתאם לפרוטוקול המתואר לעיל, מיקרוטובוליים הוצגו בהצלחה בנוירונים מסוג dendritic arborization (da) class IV באמצעות mNG-Jupiter בשילוב עם סמן הממברנה CD4tdTomato (איור 2A–C). סמן הממברנה תיאר את המורפולוגיה הכללית של העץ הדנדריטי, בעוד ש-mNG-Jupiter סימן את האזורים המכילים מיקרוטובוליים בתוך הדנדריטים. בקצוות הדיסטליים של דנדריטים טרמינליים, הפלואורסצנציה של mNG-Jupiter הייתה חלשה או נעדרה ליד קצות הדנדריטים, בעוד שהפלואורסצנציה של CD4tdTomato נותרה חזקה בטרמינלים התואמים (איור 2D–F).
הענפים הדנדריטיים לא הראו הבדלים מורפולוגיים ברורים בהשוואה לזחלים שדווגרו עם סמן ממברנה בלבד במחקרים קודמים11. כדי להעריך כמותית האם ביטוי mNG-Jupiter גרם להפרעות מורפולוגיות, נספר מספר הקצוות הדנדריטיים בענפים המבטאים mNG-Jupiter ובענפי ביקורת ב-72 h AEL. בשמונה תאים משמונה זחלי mNG-Jupiter, מספר הקצוות ברבע אחד מהענף היה 153 ± 25 (ממוצע ± SD), בהשוואה ל-144 ± 27 (ממוצע ± SD) בזחלי ביקורת (איור 2G). לא זוהה הבדל מובהק באמצעות מבחן Welch’s t-test (ראה מקרא איור 2). לפיכך, ביטוי mNG-Jupiter לא שינה באופן מובחן את מספר הענפים הדנדריטיים.
דימות במרווחי זמן (Time-lapse imaging) הדגים את ההתנהגות הדינמית של אות ה-mNG-Jupiter בתוך דנדריטים טרמינליים. ברצף המייצג המוצג ב-איור 3A, מיקומו של קצה המיקרוטובול המסומן ב-mNG-Jupiter השתנה עם הזמן. סריקות קווים עוקבות של אות ה-mNG-Jupiter סודרו לאורך זמן כדי להמחיש שינויים במיקום ובאורך של המיקרוטובולים. הקימוגרף שהתקבל ב-איור 3B מראה שלבים{(-}מתחלפים של התארכות ונסיגה של האות הפלואורסצנטי, התואמים לצמיחה ולהתכווצות שנצפו של המיקרוטובול המסומן בדנדריטים טרמינליים (סרטונים 1 ו-2). בדנדריטים עבים יותר הקרובים לסומה, מספרם הרב יותר של המיקרוטובולים מנע את הדימוי של הדינמיקה של מיקרוטובולים בודדים.
יחד, התמונות המייצגות וההקלטות בשיטת time-lapse מראות כי הפרוטוקול מאפשר ויזואליזציה הן של המורפולוגיה הדנדריטית והן של שינויים דינמיים בفلורסצנציה המשויכת למיקרוטובוליים בנוירונים תחושתיים שלוות של זחלי Drosophila. הסמן לממברנה מספק נקודת ייחוס למבנה הדנדריטי, בעוד ש-mNG-Jupiter מאפשר לעקוב אחר התנהגות המיקרוטובוליים בתוך הדנדריט לאורך זמן (איורים 2 ו-3).
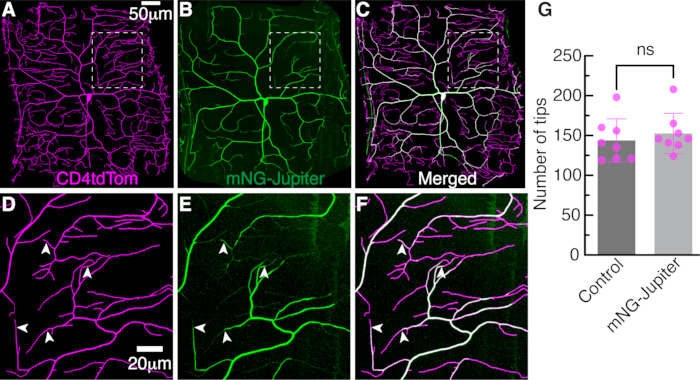
איור 2: דנדריטים בנוירונים מסוג IV. העץ הדנדריטי של נוירון מסוג class IV dendritic arborization (da) שצולם במיקרוסקופ קונפוקלי מסוג spinning-disk ב-72 שעות לאחר הנחת הביצים (AEL). מיקרוטובולים הוויזואליים באמצעות מערכת הביטוי הבינארית GAL4/UAS. הדרייבר הספציפי לתאי סוג IV בשם ppk-GAL4 (pickpocket) מקל על ביטוי של Jupiter המסומן ב-mNG (UAS-mNG-Jupiter). ממברנות דנדריטיות מסומנות על ידי ביטוי מתווך ישירות על ידי פרומוטרה של ppk של tdTomato המחובר לסמן הממברנה CD4 (ppk-CD4tdTomato). (A) סמן ממברנה, CD4tdTomato. (B) סמן מיקרוטובול, mNG-Jupiter. (C) תמונה ממוזגת. (D–F) תצפיות מוגדלות של האזורים המסומנים בריבועים מקווקווים לבנים ב-A–C, בהתאמה, המדגימות את התפלגות סמני המיקרוטובולים והממברנה. חצי חצים לבנים מצביעים על התפלגות mNG-Jupiter בדנדריטים טרמינליים. (G) כימות של מספר קצות הדנדריטים בנוירוני בקרה ובנוירונים המבטאים mNG-Jupiter ב-72 שעות AEL. כל נקודה מייצגת את מספר הקצות שנספרו ברבע אחד של נוירון בודד מזחלי שונים. סך של שמונה נוירונים משמונה זחלים בלתי תלויים נותחו לכל קבוצה. פסי השגיאה מייצגים mean ± SD. הקבוצות הושוו באמצעות מבחן t של Welch הדו-צדדי והבלתי מזווג; ns, לא מובהק (P > 0.05). אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
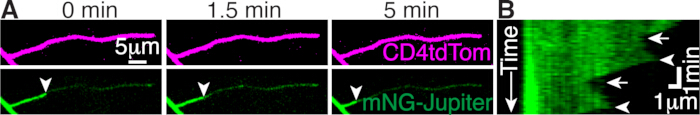
איור 3דינמיקת מיקרוטובולים בדנדריט טרמינלי. (Aשלוש תמונות של דנדריט טרמינלי המבטא CD4tdTomato (למעלה) ו-mNG-Jupiter (למטה) בנקודות הזמן המצוינות. חצי חצים מצביעים על קצה המיקרוטובולה. אות mNG חלש נראה מעבר ל- אות מיקרוטובולי. (ב) קימוגר המראה גדילה והתכמכות של מיקרוטובוליים. ראשי חצים מצביעים על שלבי גדילה, וחצים מצביעים על שלבי התכמכות. סריקות קווים רצופות של אות mNG, ברוחב של 3 פיקסלים, מסודרות אחת מתחת לשנייה, כאשר הזמן עולה לכיוון מטה. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
סרטון 1: דימוי Time-lapse של mNG-Jupiter בנוירוני עץ דנדריטי מסוג class IV. רצף Time-lapse המראה פלואורסצנציית mNG-Jupiter בדנדריטים מסוג class IV בזחלי Drosophila. הרצף ממחיש שינויים בפלואורסצנציה הקשורה למיקרוטובולי לאורך זמן בתוך העץ הדנדריטי. התמונות נרכשו תחת תנאי הדימוי החי המתוארים בפרוטוקול. סרגל קנה מידה, 20 µm. אנא לחץ כאן להורדת הקובץ.
סרטון 2: דימות Time-lapse של סמן הממברנה CD4tdTomato בנוירונים של עץ דנדריטי מסוג class IV. רצף Time-lapse המראה פלואורסצנציה של CD4tdTomato בעץ דנדריטי class IV תואם של זחל Drosophila. סמן הממברנה מספק נקודת ייחוס למורפולוגיה הדנדריטית במהלך תקופת הדימות. התמונות נרכשו בתנאי דימות חיים כמתואר בפרוטוקול. סרגל קנה מידה, 20 µm. אנא לחץ כאן להורדת הקובץ.
דיון
פרוטוקול זה מדגים את השימוש בקווי זבובים טרנסגניים של Jupiter לצורך דימוי חי של דינמיקת מיקרוטובוליים בנוירונים חושיים של Drosophila באמצעות מיקרוסקופיה קונפוקלית. השיטה מאפשרת ויזואליזציה של פלואורסצנציה הקשורה למיקרוטובוליים בזחלים שלמים תוך שימור המורפולוגיה הדנדריטית, כפי שהוערך באמצעות סמן ממברנה11,29. גישה דומה שימשה גם לדימוי דינמיקת אקטין באמצעות GFP-actin ו-LifeAct-GFP בנוירונים מסוג class IV22,30,31,32. באופן עקרוני, ניתן להחיל את אותה גישה כללית גם לדימוי של חלבוני קישור למיקרוטובוליים אחרים בתאי class IV ובסוגים אחרים של נוירונים בעלי הסתעפות דנדריטית (classes I, II, and III). בפרט, שילוב של סימון פלואורסצנטי של מיקרוטובוליים עם סימון EB עשוי להפחית את העמימות בפירוש של צמיחת המיקרוטובוליים. לדוגמה, היעדר של "שביט" EB עלול להעיד הן על היעדר מיקרוטובוליים והן על נוכחות של מיקרוטובוליים שאינם צומחים באופן פעיל; ויזואליזציה ישירה של המיקרוטובוליים יכולה לסייע בהבחנה בין אפשרויות אלו. לפיכך, סימון משותף של mNG-Jupiter עם EB1 פלואורסצנטי עשוי לאפשר פירוש של דינמיקת צמיחת המיקרוטובוליים בתוך ההקשר המקומי של ארגון המיקרוטובוליים, שפעם והכיוון המושמע שלהם.
מספר שלבים הם קריטיים להשגת נתוני דימיון חי (live-imaging) מתאימים. הפרוטוקול משתמש בחומר ההרדמה נדיף isoflurane לצורך משטר קיבוע קצר ומוגדר. יש לבקר בקפידה את מנת ה-isoflurane במהלך הקיבוע, שכן הרדמה לא מספקת מאפשרת תנועת זחלים, בעוד שהרדמה מופרזת עלולה להוביל לניוון עצבי. יש להימנע גם מבועות אוויר במהלך ההרכבה, שכן הן עלולות להפריע לאיכות התמונה ולתרום לסחיפת הדגימה. בנוסף, יש להימנע מלחץ מופרז של כיסוי הזריקה (coverslip), מכיוון שהוא עלול לגרום להיווצרות שלבבים (blebbing) דנדריטיים ולנזק עצבי בעקבותיהם. שלבים אלו חשובים לשמירה על יציבות הדגימה ועל המורפולוגיה הדנדריטית לאורך כל תהליך הדימיון.
מגבלה חשובה של פרוטוקול זה היא ששיטת הקיבוע וההדמיה, הכוללת שילוב של חשיפה לחומר הרדמה ואילוץ פיזי על ידי לבישת הזכוכית (coverslip), עשויה להשפיע על דינמיקת המיקרוטובוליים. כדי לקבוע האם המיקרוטובוליים מופרעים בתנאים אלה, ניתן להשתמש בשיטות קיבוע חלופיות בנפרד או בשילוב עם פרוטוקול זה. גישות כאלה כוללות הדמיה שלווים ושימוש במוטציות רגישות לטמפרטורה, כגון Shibirets 33, ולאחר מכן השוואה של פרמטרים קינטיים כגון קצבי גדילה ותדירות קטסטרופה.
במסגרת הגבלה זו, הפרוטוקול הנוכחי מאפשר לצלם זחלים למשך כ-30 דקות לאחר הקיבוע ללא היווצרות של בלבביות (blebbing) דנדריטיות, התדרדרות מורפולוגית או אובדן של דינמיקת המיקרוטובוליים והקצוות הניתנים לזיהוי. השיטה מאפשרת רכישת נתוני time-lapse ברזולוציה גבוהה מזחלים שלמים וויזואליזציה של התנהגות דינמית של מיקרוטובוליים בדנדריטים טרמינליים.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
המחברים מודים לכל חברי מעבדת Howard, ובמיוחד לחברה לשעבר במעבדה, ד"ר Maijia Liao, על ייזום פרויקט סימון המיקרוטובוליים, ולד"ר Sonal Shree על פיתוח הפרוטוקול להדמיות של דינמיקה דנדריטית ב-Drosophila במסגרת מעבדת Howard. המחקר המדווח בפרסום זה נתמך על ידי המכונים הלאומיים לבריאות (National Institutes of Health) תחת מספר מענק R35 GM161634 (המכון הלאומי למדעי הרפואה הכלליים) ומספר מענק R01 NS118884 (המכון הלאומי להפרעות נוירולוגיות ושבץ) עבור J.H. התוכן הוא באחריותם הבלעדית של המחברים ואינו מייצג בהכרח את העמדות הרשמיות של המכונים הלאומיים לבריאות. עבודה זו נתמכה גם על ידי מענק NSF מספר PHY-2210464 ומענק PEW Charitable Trusts מספר 38044 עבור J.H.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| חומצה אצטית (גלציאלית, רהיט ACS, ≥99.7%) | Sigma-Aldrich | 695092 | משמש להכנת מצע אגר-ענבים; 5 מ"ל לכל הכנה של כ-0.5 ליטר |
| אגר (bactoagar) | Becton Dickinson | 214010 | משמש להכנת מצע אגר-ענבים; 15 גרם לכל הכנה של כ-0.5 ליטר |
| מכשיר הרדמה ידני (Anesthetic wand) | Carolina Biological Supply Co. | 173010 | משמש להחזקת איסופלורן (isoflurane) בתוך מאגר האידוי במהלך הרדמת הזחלים |
| ביקר, 1 ליטר, עמיד במיקרוגל | Corning Inc. | 1000-1L | משמש להכנה של כ-0.5 ליטר של מצע אגר-ענבים |
| beaker, 100 מ"ל | Corning Inc. | 1000-100 | משמש להכנת משחת שמרים |
| ייבואן Bio-Formats | פרויקט סביבת מיקרוסקופיה פתוחה (Open Microscopy Environment Project) | לא רלוונטי | תוסף FIJI המשמש לייבוא קבצי צילום רצף (time-lapse) בפורמט .ND2 |
| מצלמה (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | 6.5 µm חיישן; משמש לרכישת תמונה |
| ארגז קרטון (5 × 5 × 3 אינץ'") | Uline | S-4579 | משמש לכיסוי מערך ההרדמה ולהפחתת תנועת האוויר מעל צלחת תרבית התאים |
| צלחת לתרבית תאים | Corning Incorporated | 430165 | 35 × 10 מ"מ; משמש לטיפול בזחלים וכמאגר לאידוי איסופלורן (isoflurane) |
| זכוכית כיסוי | Globe Scientific Inc. | 1404-15 | 22 × 22 מ"מ, מספר 1.5; הונח מעל הזחל המקובע |
| תא דרווין (Darwin chamber) | תאי דרווין (Darwin Chambers) | IN030-AA-LT-DA-MP | משמש לשמירה על הכלאות של זבובים, להטלת ביצים ולהגדרת שלבי התפתחות של זחלים ב- 25 °C |
| מים מזוקקים, בדרגת ריאגנט למעבדה | Research Products International (RPI) | לא רלוונטי | משמש להכנת ג'ל-ענבים, להכנת משחת שמרים ולשטיפת זחליים |
| סרט דבק רב-תכליתי | Uline | S-6519 | משמש לקיבוע מוט ההרדמה בתוך צלחת תרבית התאים |
| כלוב להטלת ביצים/כלוב לאיסוף עוברים | Genesee Scientific | 59-100 | גודל קטן; מתאים ל-60 × צלחת פטרי 15 מ"מ; משמשת לאסוף ביצים באופן מבוקר |
| אתנול (אל-מים, 200 proof) | Decon Labs Inc. | V1001G | משמש להכנת מצע ענבים-אגר; 10 מ"ל לכל הכנה של כ-0.5 ליטר |
| FIJI (Fiji Is Just ImageJ) | NIH | גרסה 2.16.0/1.54p | משמש לייבוא תמונות, ייצוב, הקרנת עוצמה מרבית (maximum-intensity projection), ניתוח ROI, יצירת קימוגרף והפקת פרופיל עוצמה |
| קווי זבובים: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | מרכז מאגרי הדרוזופילה של בלומינגטון (Bloomington Drosophila Stock Center) (1); מעבדת הווארד (Howard Lab) (2) | BDSC# 32078, BDSC# 35845 | בשימוש לביטוי של CD4tdTomato ו-mNG-Jupiter בנוירוני dendritic arborization מסוג class IV |
| מיץ ענבים, 100% ענבי קונקורד | של וולש (Welch's) | לא רלוונטי | משמש להכנת מצע ענבים-אגר; 126 מ"ל לכל הכנה של כ-0.5 ליטר |
| Halocarbon oil 700 | Sigma-Aldrich | H8898 | משמש לקיבוע פגיתים לצורך דימות חי |
| מתפעל חנה | ZEYER | ZEYER-1005 | משמש ליצירת מעטפת הוזלין על תבנית המיקרוסקופ |
| מייצב תמונה | פותח על ידי Kang Li | לא רלוונטי | תוסף FIJI המשמש עם הגדרות טרנספורמציה אפינית (affine transformation) לתיקון סחף של הדגימה |
| איזופלורן | Santa Cruz Biotechnology, Inc. | sc-470926 | משמש לקיבוע פגית לפני הרכבה ודימיון |
| נייר סופג למעבדה (Kimwipes) | Kimberly-Clark Professional | 34120 | משמש להסרת עודפי מים מזחלים שטופים לפני הרדמה |
| בקבוק תחזוקה | Lab Express Inc. | 7001-PBT | בקבוק פוליפרופילן בעל תחתית מרובעת, 6 oz; מכיל מזון לזבובים B (מתכון בלומינגטון) ומשמש לתחזוקת מקוני זבובים והכלאות |
| מיקרוגל | Panasonic | NN-SN686S | משמש להמסת אגר במהלך הכנת מצע אגר-ענבים |
| מיקרוסקופ הפוך | Nikon Instruments Inc. | 736228 | מיקרוסקופ הפוך Ti Eclipse המצויד במערכת מיקוד מושלם (perfect-focus) לדימוי חי |
| זכוכית מיקרוסקופ | Fisherbrand | 12550143 | זכוכית Superfrost; משמשת להרכבת זחלים לצורך דימוי |
| קימוגרף רב-ערוצי | פותח על ידי Jens Rietdorf, Arne Seitz ו-Johannes Schindelin | לא רלוונטי | תוסף FIJI ששימש ליצירת קימוגרפים (kymographs) של דינמיקת מיקרוטובוליים |
| תוכנת Nikon Elements | Nikon Instruments Inc. | גרסה 5.21.03 | משמש לרכישת תמונות מיקרוסקופיות בשיטת time-lapse וליצירת קבצי .ND2 |
| עדשה, טבילה במים | Nikon Instruments Inc. | MRD77400 | 40×, 1.25 NA; משמש לדימות של תאים חיים |
| מכחול | שושלת | 2157r | גדלים 0 ו-3/0; משמשים להעברת זחלים ולאטימה של תא הוואזלין |
| צלחית פטרי | Falcon | 351007 | 60 × 15 מ"מ; משמש לצלחות אגר-ענבים |
| שפכטול | VWR | 82027-532 | 22.9 ס"מ (9 אינץ'); משמש לערבוב שמרים ומים במהלך הכנת משחת השמרים |
| יחידת מיקרוסקופ קונפוקאלי עם דיסק מסתובב | Yokogawa CSU-W1 | SBW001 | 50 µm חור סיכה (pinhole); משמש לדימיג קונפוקאלי של תאים חיים |
| סוכרוז | Sigma-Aldrich | 57-50-1 | בשימוש במצע אגר-ענבים וכפתרון בריכוז של 5% לשטיפת זחלים |
| וזלין | Unilever | לא רלוונטי | משמש ליצירת המחיצה בין זכוכית העצם לכיסוי הזכוכית |
| שמרים (Red Star Active Dry Yeast) | Lesaffre Corporation | לא רלוונטי | משמש להכנת משחת שמרים ולתמיכה בהטלת ביצים |
מקורות
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב