Un nuovo metodo che utilizza l'analisi quantitativa di FRET (Förster Resonance Energy Transfer) segnali è descritto per lo studio di cinetica enzimatica. K M E K Cat Sono stati ottenuti per l'idrolisi del dominio catalitico di SENP1 (SUMO / Sentrin specifica proteasi 1) di controllare la validità SUMO1 (Small ubiquitina-like Modifier). I principi generali della presente quantitativa-FRET-based studio cinetico proteasi può essere applicato ad altre proteasi.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Quantitativa FRET (Förster Resonance Energy Transfer) analisi per la determinazione della proteasi SENP1 Cinetica
In questo articolo
Sommario
Abstract
Reversibili modificazioni post-traduzionali di proteine con proteine ubiquitina o ubiquitina-like (Ubls) sono ampiamente utilizzati per regolare in modo dinamico l'attività della proteina e hanno ruoli diversi in molti processi biologici. Ad esempio, SUMO modifica covalentemente un numero grande o proteine con un ruolo importante in molti processi cellulari, tra cui cellule-regolazione del ciclo, la sopravvivenza cellulare e la morte, danno la risposta del DNA e risposta allo stress 1-5. SENP, come SUMO-specifiche proteasi, funziona come un endopeptidasi nella maturazione dei precursori SUMO o come isopeptidase per rimuovere SUMO dalle sue proteine bersaglio e aggiornare il ciclo sumoilazione 1,3,6,7.
L'efficienza catalitica o specificità di un enzima è meglio caratterizzato dal rapporto delle costanti cinetiche, k cat / K M. In diversi studi, i parametri cinetici di SUMO-SENP coppie sono state determinate con vari metodi, tra cui gel di poliacrilammide-based western blot, radIOActive-marcato substrato, composto fluorescente o proteina marcata substrato 8-13. Tuttavia, le poliacrilammide-gel a base di tecniche, che hanno utilizzato i "nativi", ma le proteine sono laboriosi e tecnicamente impegnativo, che non si prestano ad una dettagliata analisi quantitativa. Il ottenuta k cat / K M da studi usando tetrapeptidi o proteine con ACC (7-ammino-4-carbamoylmetylcoumarin) o AMC (7-ammino-4-metil) fluoroforo erano o fino a due ordini di grandezza inferiore ai substrati naturali o non può chiaramente distinguere le iso-e attività di endopeptidasi SENPs.
Saggi della proteasi Recentemente, FRET-based sono stati utilizzati per studiare gli enzimi deubiquitinating (Dubs) o SENPs con il FRET coppia di proteina fluorescente ciano (PCP) e giallo proteina fluorescente (YFP) 9,10,14,15. Il rapporto di emissione dell'accettore di emissione del donatore è stato utilizzato come parametro quantitativo per FRET segnale monitor per proteasi acproduttività determinazione. Tuttavia, questo metodo ignorato segnale contaminazioni crociate al accettore e lunghezze d'onda di emissione del donatore e accettore da donatore auto-fluorescenza e quindi non era accurata.
Abbiamo sviluppato un nuovo altamente sensibile e quantitativa FRET saggio basato proteasi per determinare i parametri cinetici di pre-SUMO1 maturazione da SENP1. Un multistrato FRET CyPet coppia e YPet con significativamente migliorato FRET efficienza e resa quantica di fluorescenza, sono stati utilizzati per generare il CyPet-(pre-SUMO1)-YPet substrato 16. Abbiamo differenziato e quantificato assoluti segnali di fluorescenza fornite dal donatore e accettore FRET e alle lunghezze d'onda di emissione e accettori, rispettivamente. Il valore di k cat / K M è stato ottenuto come (3,2 ± 0,55) x10 7 M -1 s -1 SENP1 verso di pre-SUMO1, che è in accordo con i parametri generali cinetica enzimatica. Pertanto, questo metodo è valido e può essere utilizzato unsa generale approccio per caratterizzare proteasi anche altri.
Protocollo
1. Costrutti plasmidici
- Amplificare le fasi di lettura aperte dei geni mediante PCR, e clonare i prodotti di PCR in pCRII-TOPO vettore.
- Confermare i prodotti dal sequenziamento, e clonare il cDNA codificante CyPet-(pre-SUMO1)-YPet, CyPet-SUMO1, YPet e domini catalitici di SENP1 nella (b) pET28 vettore con un N-terminale tag hexahistidine.
2. Espressione e purificazione di proteine
- Trasformare cellule di Escherichia coli ceppo BL21 (DE3) con pET28 (b) vettori codificanti CyPet-(pre-SUMO1)-YPet, CyPet-SUMO1, YPet ed i domini catalitici di SENP1.
- Coltivato i batteri trasformati in mezzo 2xYT per 3 ore a 37 ° C (agitando a 250 rpm) per raggiungere una densità ottica di 0,5 a 600 nm.
- Aggiungere 100 mM isopropil-β-D-tiogalattoside (IPTG) (concentrazione finale) per indurre l'espressione di proteine e agitare per 16 ore a 25 ° C a 200 rpm.
- Raccogliere i batteri da centrifugzione a 10.000 rpm a 4 ° C per 5 minuti e risospendere in un tampone di 20 mM Tris-HCl (pH 7,4), 50 mM NaCl, 5 mM e imidazolo.
- Sonicare le cellule per 10 min a 5-sec intervalli in un livello di potenza di 25 W utilizzando MiSonics 4000 sonicatore e alla loro raccolta per centrifugazione a 35.000 xg a 4 ° C per 30 min.
- Impostare la colonna con 500 ml Ni-NTA perline per 1 L cultura e trasferire il sopranatante in colonna.
- Lavare la resina con tampone di 20 mM Tris-HCl (pH 7,4), 500 mM NaCl, 10 mM imidazolo e due volte.
- Proteine eluire con tampone di 20 mM Tris-HCl (pH 7,4), NaCl 500 mM, e 500 mM imidazolo e dialisi in un tampone di 20 mM Tris-HCl (pH 7,4), 50 mM NaCl, 1 mM ditiotreitolo (DTT) a 4 ° C per una notte.
- Determinare le concentrazioni delle proteine purificate dal saggio Bradford. Metodo alternativo per la misura della concentrazione di proteine sarà SDS-PAGE elettroforesi su gel e quindi colorato con Coomassie blue seguita con imagingquantitativa.
3. Quantitativa FRET Analisi dello spettro
- La strategia generale per il saggio è basato su FRET segnalazione (Figura 1). La coppia FRET, CyPet e YPet, è stato etichettato per la N-e C-termini, rispettivamente, di pre-SUMO1. SENP1 scinde la proteina di fusione CyPet-(pre-SUMO1)-YPet al Gly-Gly del sito in SUMO1 del C-terminale e, quindi, rilascia la coda SUMO con YPet. Il segnale di FRET è interrotto, con conseguente aumento delle emissioni da CyPet e una drastica riduzione delle emissioni di YPet alla lunghezza d'onda di eccitazione CyPet.
- Quando eccitato dalla luce di lunghezza d'onda 414 nm, l'emissione totale di fluorescenza di CyPet-(pre-SUMO1)-YPet a 530 nm può essere derivato da tre fonti: emissione assoluto FRET indotta YPet, il CyPet emissione diretta e YPet emissione diretta (Figura 2).
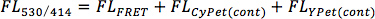
dove FL 530/414 </ Sub> è l'emissione totale di fluorescenza a 530 nm quando viene eccitato a 414 nm, FL FRET è l'assoluto segnale di FRET, FL CyPet (continua) è l'emissione CyPet diretta quando viene eccitato a 414 nm, e FL YPet (continua) è la YPet emissione diretta quando viene eccitato a 414 nm. L'indice di (continua) sta per contributo.
- L'emissione diretta di CyPet a 530 nm è proporzionale alla sua emissione a 475 nm quando viene eccitato a 414 nm con un rapporto costante di α. CyPet-SUMO1 è stato preparato a concentrazioni di 50, 100, 200, 500, e 750 nm e 1 mm , e le emissioni a 475 e 530 nm sono stati misurati dopo eccitazione a 414 nm per determinare α (Figura 3-1).
- L'emissione diretta di YPet a 530 nm in eccitazione a 414 nm è proporzionale alla sua emissione a 530 nm quando viene eccitato a 475 nm con un rapporto costante di β. YPet è stato preparato a concentrazioni di 50, 100, 200, 500, 750 And 1.000 nm e l'emissione a 530 nm è stata misurata quando i campioni sono stati eccitati da lunghezze d'onda di 414 e 475 nm per determinare β (Figura 3-2).
- Quando CyPet-(pre-SUMO1)-YPet è stato digerito dal SENP1, la scissione rilasciato CyPet-SUMO1 e la coda SUMO1 con YPet. Quando il composto è stato eccitato a 414 nm, l'emissione di fluorescenza a 530 nm (FL '530/414) è diminuita ma può ancora essere divisa in tre parti come:
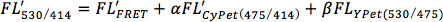
dove FL '530/414 è il totale delle emissioni di fluorescenza a 530 nm dopo la digestione quando eccitato a 414 nm, FL' FRET è il restante assoluto segnale di FRET, FL 'CyPet (475/414) è l'emissione CyPet a 475 nm dopo la digestione quando eccitato a 414 nm (in questo caso l'emissione CyPet è da due parti: non digerito CyPet-(pre-SUMO1)-YPet e digerito CyPet-SUMO1), e FL YPet(530/475) è l'emissione YPet quando eccitato a 475 nm, che è costante se CyPet-(pre-SUMO1)-YPet viene digerito o meno.
- Dopo digestione SENP1, il restante FRET emissione (FL 'FRET) è:
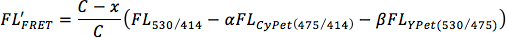
dove C è la concentrazione totale di CyPet-(pre-SUMO1)-YPet ed x è la concentrazione di digerito CyPet-(pre-SUMO1)-YPet.
- Combinando tutti gli elementi, l'emissione di fluorescenza rilevata a 530 nm in eccitazione di 414 nm (FL '530/414) è:

4. FRET saggio basato Proteasi per Enzyme studio cinetico
- CyPet-(pre-SUMO1)-YPet stato incubato con il dominio catalitico di SENP1 a 37 ° C in un tampone di 20 mM Tris-HCl (pH 7,4), 50 mM NaCl, 0,1% (v /v) Tween-20 e DTT 1 mM in un volume totale di 80 ml e trasferita in piastra a 384 pozzetti.
- Piste stati condotti misurando l'emissione di fluorescenza a 475 e 530 nm dopo eccitazione a 414 nm in un lettore di piastra multipozzetto fluorescenza per 5 minuti con intervalli di 15 sec.
- La velocità di reazione (v) è stata correlata con la variazione della quantità di substrato (S), come:
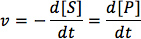
- La concentrazione di prodotto aumentato esponenzialmente da 0 a [S] 0 (concentrazione del substrato originale) quando t = 0:
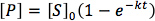
- Quando t = 0, la velocità iniziale (V 0) è:
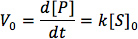
- Il concentration di SENP1 è stato fissato, e la concentrazione di CyPet-(pre-SUMO1)-YPet stata aumentata da 100 volte superiore alla concentrazione di enzima, che è richiesta da Michaelis-Menten.
- Tutte le letture di fluorescenza sono stati analizzati con il metodo di analisi quantitativa FRET e tracciata in Software GraphPad Prism V per adattarsi alla Michaelis-Menten. La regressione non lineare può essere eseguita anche con l'ausilio di pacchetti software più comuni, come i programmi di fogli di calcolo (ad esempio Microsoft Excel).
5. Risultati rappresentativi
Maturazione di pre-SUMO1 da SENP1 può essere determinata monitorando i cambiamenti nel segnale di fluorescenza a 475 e 530 nm durante il processo. Il risultato ha mostrato che la velocità di pre-SUMO1 digestione SENP1 in un modo dipendente dalla dose-substrato (Figura 4). Questo suggerisce che il dominio catalitico di SENP1 mostra un'attività eccellente per la maturazione di pre-SUMO1. La reazione inizialevelocità zione sono stati calcolati dalla precedente analisi con diverse concentrazioni di substrato (Tabella 1).
Il cat / K k rapporto M è generalmente utilizzato per confrontare le efficienze di differenti enzimi con un substrato o un particolare enzima con substrati diversi. K M e V max può essere ottenuta dalla equazione di Michaelis-Menten tracciando le velocità iniziali diverse, corrispondenti per le diverse concentrazioni di CyPet-(pre-SUMO1)-YPet (Figura 5) cat k è stato ottenuto come.:

Secondo l'analisi di cui sopra, il valore calcolato per K M è stato 0,21 ± 0,04 mM, il gatto k era 6,90 ± 0,28 s-1, e il gatto / K M k rapporto era (3,2 ± 0,55) x10 7 M -1 > S -1.
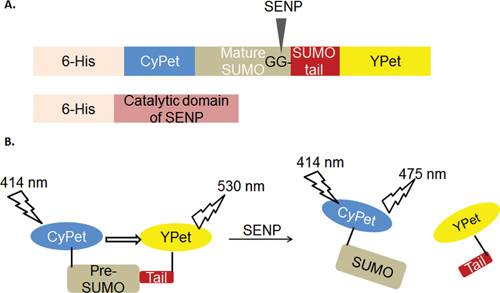
Figura 1. Grafico di FRET saggio basato proteasi per SENP pre-Sumos maturazione.
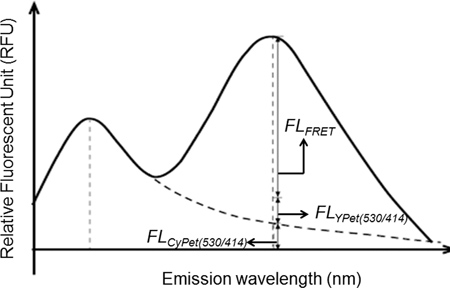
Figura 2. L'analisi quantitativa del segnale fluorescente, come contributi del donatore accettore, e FRET. Dissezione di spettri di emissione da CyPet-(pre-SUMO1)-YPet sotto eccitazione a 414 nm. FL CyPet (530/414) è emissione CyPet di a 530 nm in eccitazione di 414 nm, FL FRET è il FRET indotta emissioni YPet a 530 nm in eccitazione di 414 nm, e FL YPet (530/414) è l'emissione YPet di a 530 nm in eccitazione di 414 nm.
load/4430/4430fig3.jpg "/>
Figura 3. Calcolo del fattore di emissione α direzione e β.
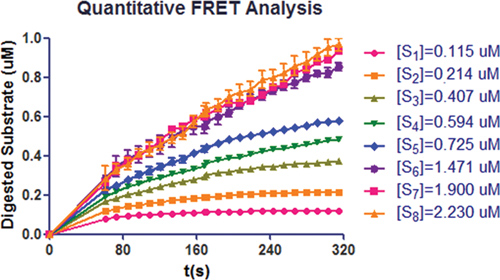
Figura 4. Analisi quantitativa di CyPet-(pre-SUMO1)-YPet digerito dai rapporti diversi del dominio catalitico di SENP1. Le reazioni sono state monitorate entro i primi 5 min.
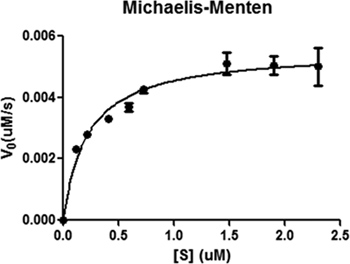
Figura 5. Michaelis-Menten analisi grafica di digestione CyPet-(pre-SUMO1)-YPet da parte SENP1. I dati sono stati riportati e analizzati da GraphPad Prism V e la regressione non lineare.
| [S] (pM) | V 0 (pM / s) |
| 0,115 | 0,0023 ± 0,00005 |
| 0,214 | 0,0028 ± 0,00004 |
| 0,407 | 0,0033 ± 0,00007 |
| 0,594 | 0,0037 ± 0,00013 |
| 0,725 | 0,0043 ± 0,00012 |
| 1,471 | 0,0051 ± 0,00036 |
| 1,899 | 0,0050 ± 0,00031 |
| 2,300 | 0,0050 ± 0,00062 |
Tabella 1. Iniziale determinazione velocità di maturazione pre-SUMO1 da parte SENP1. In ogni concentrazione del substrato, quattro campioni sono stati utilizzati per misurare la digestione. La deviazione standard è venuto dalle variazioni di questi quattro campioni.
| K M (pM) | k cat (s-1) | k cat / K M (M -1 • s-1) |
| 0,21 ± 0,04 | 6,90 ± 0,28 | 3,2 ± 0,55 × 10 7 |
Tabella 2. Parametri cinetici di maturazione pre-SUMO1 da parte SENP1 da quantitativa FRET analisi. La deviazione standard è venuto dai quattro campioni per ogni concentrazione del substrato.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
FRET tecnologia è stata usata per studiare la maturazione pre-SUMO1 da parte SENP1 9. CFP-YFP è stato usato come FRET coppia e analisi raziometrico, che è il rapporto tra accettore di emissioni donatori, è stato utilizzato per caratterizzare le proprietà cinetiche. Tuttavia, non vi è alcuna considerazione di donatore e accettore auto-fluorescenza nella raziometrica tradizionale analisi FRET. Il rapporto non è direttamente correlata con la quantità di substrato digerito.
Qui riport...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Nessun conflitto di interessi dichiarati.
Ringraziamenti
Siamo molto grati a Victor GJ Rodgers per preziosi consigli. Ringraziamo tutti i membri del gruppo di Liao per molto stretto lavoro di collaborazione e di aiuto con questo studio. Questo studio è stato sostenuto dal National Institutes of Health (Grant AI076504 a JL).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Nome del reagente | Azienda | Numero di catalogo | |
| PCR II TOPO Kit | Invitrogen | K466040 | |
| 2xYT | Ricerca Prodotti Internationa.l Corp. | X15600 | |
| Ni-NTA Agrose | Thermo Scientific | 88222 | |
| Coomassie più (Bradford) Regent Assay | Thermo Scientific | 23238 | |
| Piastra a 384 pozzetti (inferiore di vetro) | Greiner | 781892 | |
| FlexStation II 384 lettore di piastre | Dispositivo molecolare |
Riferimenti
- Johnson, E. S. Protein modification By SUMO. Annual Review of Biochemistry. 73, 355-382 (2004).
- Gill, G. SUMO and ubiquitin in the nucleus: different functions, similar mechanisms. Genes & Development. 18, 2046-2059 (2004).
- Hay, R. T. SUMO: a history of modification. Molecular Cell. 18, 1-12 (2005).
- Müller, S., Hoege, C., Pyrowolakis, G., Jentsch, S. SUMO, ubiquitin's mysterious cousin. Nature. , 202-210 (2001).
- Hochstrasser, M. SP-RING for SUMO: new functions bloom for a ubiquitin-like protein. Cell. , 5-8 (2001).
- Drag, M., Salvesen, G. S. DeSUMOylating enzymes-SENPs. IUBMB Life. 60, 734-742 (2008).
- Mukhopadhyay, D., Dasso, M. Modification in reverse: the SUMO proteases. Trends in Biochemical Sciences. 32, 286-295 (2007).
- Reverter, D., Lima, C. D. Structural basis for SENP2 protease interactions with SUMO precursors and conjugated substrates. Nature Structural & Molecular Biology. 13, 1060-1068 (2006).
- Shen, L., et al. SUMO protease SENP1 induces isomerization of the scissile peptide bond. Nature Structural & Molecular Biology. 13, 1069-1077 (2006).
- Horton, R., Strachan, E., Vogel, K., Riddle, S. A substrate for deubiquitinating enzymes based on time-resolved fluorescence resonance energy transfer between terbium and yellow fluorescent protein. Analytical Biochemistry. 360, 138-143 (2007).
- Mikolajczyk, J., et al. Small Ubiquitin-related Modifier (SUMO)-specific Proteases: PROFILING THE SPECIFICITIES AND ACTIVITIES OF HUMAN SENPs. Journal of Biological Chemistry. 282, 26217-26224 (2007).
- Kolli, N., Mikolajczyk, J., Drag, M., Mukhopadhyay, D., Moffatt, N., Dasso, M., Salvesen, G., Wilkinson, K. D. Distrubition and paralogue specificity of mammalian deSUMOylating enzymes. Biochem. J. , 335-344 (2010).
- Drag, M., Mikolajczyk, J., Krishnakumar, I. M., Huang, Z., Salvesen, G. S. Activity profiling of human deSUMOylating enzymes (SENPs) with synthetic substrates suggests an unexpected specificity of two newly characterized members of the family. Biochemical Journal. 409, 461(2008).
- Engels, I. H., et al. A time-resolved fluorescence resonance energy transfer-based assay for DEN1 peptidase activity. Analytical Biochemistry. 390, 85-87 (2009).
- Martin, S., Hattersley, N., Samuel, I., Hay, R., Tatham, M. A fluorescence-resonance-energy-transfer-based protease activity assay and its use to monitor paralog-specific small ubiquitin-like modifier processing. Analytical Biochemistry. 363, 83-90 (2007).
- Nguyen, A. W., Daugherty, P. S. Evolutionary optimization of fluorescent proteins for intracellular FRET. Nature Biotechnology. 23, 355-360 (2005).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
