Lo Stentor coeruleus ciliato gigante è un sistema classico per lo studio della rigenerazione e della guarigione delle ferite in singole cellule. Eseguendo l'imaging simultaneo delle cellule Stentor a basso e alto ingrandimento è possibile misurare i flussi citoplasmatici prima, durante e dopo la ferita.
Articolo metodologico
Visualizzazione del flusso citoplasmatico durante la guarigione delle ferite a singola cellula nello stentor coeruleus
In questo articolo
Sommario
Abstract
Sebbene la guarigione delle ferite sia spesso affrontata a livello di interi tessuti, in molti casi le singole cellule sono in grado di guarire le ferite al loro interno, riparando la membrana cellulare rotta prima che il contenuto cellulare fuoriesca. L'organismo unicellulare gigante Stentor coeruleus, in cui le cellule possono avere dimensioni superiori a un millimetro, è stato un classico organismo modello per lo studio della guarigione delle ferite in singole cellule. Le cellule dello stentor possono essere tagliate a metà senza perdita di vitalità e possono anche essere tagliate e innestate insieme. Ma questa elevata tolleranza al taglio solleva la questione del perché il citoplasma non fuoriesca semplicemente dalle dimensioni del taglio. Qui presentiamo un metodo per tagliare le cellule dello stentor e contemporaneamente visualizzare il movimento del citoplasma in prossimità del taglio ad alta risoluzione spaziale e temporale. La chiave del nostro metodo è l'utilizzo di una configurazione di microscopio "a due piani" in cui l'intervento chirurgico viene eseguito sotto un microscopio da dissezione focalizzato su una camera che viene visualizzata simultaneamente dal basso ad alta risoluzione utilizzando un microscopio invertito con una lente ad alta NA. Questa configurazione consente un elevato livello di controllo sulla procedura chirurgica, pur consentendo il tracciamento ad alta risoluzione del citoplasma.
Introduzione
La rigenerazione e la guarigione delle ferite sono processi biologici importanti i cui meccanismi rimangono aree di indagine attiva. In effetti, la capacità di guarire le ferite e rigenerare le parti danneggiate è una delle caratteristiche che distingue gli esseri viventi dagli oggetti inanimati. Normalmente, si pensa che la rigenerazione sia mediata dalla differenziazione delle cellule staminali in vari tipi di cellule necessarie per ricostruire una parte animale danneggiata o recisa, mentre la guarigione della ferita è vista in termini di nuove cellule che invadono una ferita per ricostruire un epitelio intatto. Così entrambi i processi sembrano essere mediati da collettivi di singole cellule, e sembrano quindi essere processi multicellulari per eccellenza. È quindi potenzialmente sorprendente che le singole cellule siano, in alcuni casi, in grado di riparare le ferite e rigenerare i componenti persi1. La guarigione delle ferite all'interno di singole cellule può coinvolgere più percorsi, tra cui actina-miosina, contrazione del cordino della borsa attorno alla ferita e rattoppamento della membrana mediante rapida fusione delle vescicole esocitotiche1-3. Sebbene molti tipi di cellule siano in grado di guarire le ferite4-6, forse l'esempio più drammatico è il ciliato gigante Stentor coeruelus7, mostrato nella Figura 1. Le singole celle dello Stentor sono lunghe 1 mm e sono ricoperte da file di ciglia. Le cellule dello stentor sono a forma di cono con un apparato orale, costituito da migliaia di ciglia, a un'estremità, e da una stretta struttura di tenuta all'altra estremità. Lo stentor era un classico organismo modello per lo studio della rigenerazione perché se una qualsiasi parte della cellula veniva tagliata, poteva rigenerarsi7. Ad esempio, in una serie classica di esperimenti, Thomas Hunt Morgan8 dimostrò che una cellula di Stentor poteva essere tagliata a metà e ogni metà rigenerava una cellula normalmente proporzionata nel giro dipoche ore. Le vie molecolari responsabili della rigenerazione in Stentor rimangono completamente sconosciute.
La capacità delle cellule Stentor di fungere da sistema modello di rigenerazione si basa sulla straordinaria capacità di queste cellule di guarire se stesse dopo essere state tagliate. Perché il citoplasma di una cellula Stentor non fuoriesce quando la cellula viene tagliata? La guarigione delle ferite non è dovuta alla contrazione immediata della corteccia cellulare, perché è possibile prendere due cellule di Stentor, tagliarle e poi unire le due cellule tagliate insieme in varie configurazioni7. Durante tali esperimenti di innesto, il citoplasma delle due cellule deve rimanere esposto poiché si fonde quando le cellule vengono spinte insieme. In qualche modo, il citoplasma è esposto abbastanza al terreno circostante da consentire l'innesto, ma non fuoriesce dalla cellula. Il citoplasma di Stentor è sufficientemente elastico da non poter semplicemente defluire anche quando viene praticato un grande foro nella membrana plasmatica? Le cellule aumentano la viscosità del citoplasma localmente attorno a una ferita per impedire al citoplasma di fuoriuscire? Il citoplasma è un materiale attivo altamente complesso9-11 e la risposta di guarigione delle ferite Stentor rappresenta un'opportunità unica per studiare i flussi citoplasmatici e la meccanica durante la guarigione delle ferite a singola cellula. Tuttavia, l'uso di metodi chirurgici per indurre ferite nello Stentor rappresenta una sfida tecnica. Per tagliare una cella lunga 1 mm utilizzando aghi di vetro, il paradigma chirurgico convenzionale, è necessario operare a basso ingrandimento con lunga distanza di lavoro. In queste condizioni di imaging, non è possibile tracciare il flusso del citoplasma e tutto ciò che si può determinare è se il citoplasma rimane all'interno della cellula o meno. La vera domanda che vorremmo porre è come il movimento e la viscosità del citoplasma possano cambiare durante il taglio e la guarigione. Ciò richiede immagini ad alta risoluzione. Qui presentiamo un adattamento del protocollo di Tartar per il taglio dello Stentor7 che consente di eseguire il taglio con un'ottica di ingrandimento inferiore per vedere l'intera cellula e contemporaneamente osservare il flusso del citoplasma ad alta risoluzione, consentendo a questo sistema di essere utilizzato come piattaforma per esplorare i meccanismi di guarigione delle ferite a singola cellula.
Protocollo
1. Coltura cellulare e raccolta
- Procurarsi le cellule di Stentor coeruleus da stagni naturali, come descritto da Tartar7, oppure da un fornitore commerciale (vedi Reagenti).
- Mantenere le colture crescendo al buio a 20 ºC in Modified Stentor Medium (MSM), che è adattato dalle ricette descritte da Tartar7 e De Terra12 contenenti 0,75 mM Na2CO3, 0,15 mM KHCO3, 0,15 mM NaNO3, 0,15 mM KH2PO4, 0,15 mM MgSO4, 0,5 mM CaCl2, e 1,47 mM di NaCl.
- Integra il terreno MSM con una fonte di carbonio aggiungendo prede viventi al terreno. Coltivare colture di Chlamydomonas reinhardtii TAP medium utilizzando metodi di coltura standard13. Prima dell'alimentazione, lavare le cellule di Chlamydomonas in MSM. Somministrare 300 ml di colture di Stentor ~3 x 10⁷ cellule di Chlamidomomas 2-3 volte a settimana.
- Raccogliere le cellule dello stentor per la chirurgia utilizzando una pipetta. Gli stentor tendono ad ancorarsi al fondo e ai lati della piastra di coltura e quindi, per raccogliere le cellule, agitare la coltura facendo gorgogliare aria attraverso la punta di una pipetta fino a quando le cellule iniziano a staccarsi e a nuotare liberamente.
- Catturare le cellule natatorie utilizzando una pipetta dotata di una punta a foro largo per evitare di tranciare le cellule.
- Lavare le cellule raccolte in MSM fresco.
2. Preparazione degli strumenti per la microchirurgia
- Tenere due aste di vetro su un bruciatore Bunsen o un'altra fiamma finché le estremità non iniziano a sciogliersi.
- Toccare le estremità delle due aste in modo che il vetro fuso si fonda.
- Dopo aver creato una piccola goccia di vetro fuso tra le due bacchette, toglietele dal fuoco, lasciatele raffreddare per 1-2 secondi, quindi separatele per fare una rottura netta. Idealmente, il vetro si estrarrà in fili sottili e si romperà dolcemente mentre il vetro si raffredda, risultando in un ago lungo circa 1-2 cm con una punta sottile all'estremità (Figura 2).
- Se l'ago risultante non è ottimale, le punte possono essere frantumate in rifiuti di vetro e le aste possono essere riutilizzate.
3. Montaggio di cellule per microchirurgia e osservazione (chirurgia normale)
- Preparare una camera quadrata con pareti di vaselina utilizzando un timbro di gomma quadrato rivestito di vaselina e premuto su un vetrino coprioggetti.
- Aggiungi MSM contenente il 2% di metilcellulosa al quadrato di vaselina.
- Posizionare il vetrino coprioggetti in un adattatore di plastica, che consente di posizionare il vetrino coprioggetti su un microscopio con un supporto per vetrini standard (Figura 3).
- Aggiungere le cellule lavate dal passaggio 1.6 all'MSM più metilcellulosa per ostacolare la motilità delle cellule dello Stentor in modo che rimangano in posizione durante l'intervento chirurgico.
- Disporre le cellule nella metilcellulosa in modo che siano uniformemente distanziate e siano spinte abbastanza vicino alla superficie del vetrino coprioggetti per essere a fuoco durante l'imaging.
4. Imaging ad alta risoluzione della guarigione delle ferite in Live Stentor
Per visualizzare simultaneamente una cellula di Stentor ad alta risoluzione mentre la si taglia chirurgicamente a basso ingrandimento, costruisci un microscopio "a due piani" con un cannocchiale da dissezione attaccato alla testa dell'oculare del cannocchiale invertito in modo che sia focalizzato sulla parte superiore del vetrino mentre il cannocchiale invertito è focalizzato da sotto il vetrino.
- Metti una diapositiva sul cannocchiale invertito (usa uno Zeiss Axiovert 200M o un Olympus IX80).
- Rimuovere il corpo del microscopio da dissezione dal suo supporto e determinare la posizione approssimativa sopra l'oculare del microscopio invertito per posizionare il cannocchiale da dissezione per consentire la visualizzazione del vetrino a basso ingrandimento.
- Modificare una scatola di cartone in modo che abbia lo stesso spessore della spaziatura desiderata tra la testa dell'oculare del cannocchiale invertito e il cannocchiale da dissezione, quindi fissarla con del nastro adesivo da laboratorio che può essere facilmente rimosso al termine dell'esperimento. Regolare lo spessore della scatola in base all'esatta configurazione della testa dell'oculare del microscopio invertito e alle dimensioni del microscopio da dissezione in modo che il campione si trovi nel campo visivo senza dover spostare il cannocchiale da dissezione dopo averlo collegato.
- Tenendo il cannocchiale da dissezione contro la scatola, spostarlo fino a quando il vetrino non è a fuoco, quindi fissare nuovamente la scatola con del nastro adesivo da laboratorio. La configurazione finale è illustrata nella Figura 4.
- Celle dell'immagine attraverso l'oscilloscopio invertito che utilizza l'ottica DIC e una lente dell'obiettivo ad aria 20X. Utilizzare un condensatore DIC a lunga distanza di lavoro per fornire spazio sufficiente per eseguire la microchirurgia dall'alto.
- Acquisizione di immagini a una frequenza fotogrammi di 2 immagini/sec utilizzando una telecamera CCD 512 x 512.
- Iniziare l'acquisizione prima di iniziare a tagliare le cellule in modo da catturare il modello di flusso citoplasmatico iniziale e osservare tutte le fasi del processo di ferita e guarigione della ferita.
- Terminare l'acquisizione quando la cellula ha ripreso l'aspetto normale e/o la motilità attiva, al fine di visualizzare e misurare i movimenti citoplasmatici durante il processo di rigenerazione.
5. Analisi del flusso citoplasmatico durante la guarigione delle ferite
Misura il flusso citoplasmatico utilizzando la velocimetria a immagine di particelle (PIV). Questa tecnica è di routine nello studio della fluidodinamica e può generare campi di flusso in assenza di particelle tracciabili individualmente nel fluido. La PIV è stata utilizzata per misurare i flussi di citoplasma sulla base dell'imaging delle vescicole subcellulari e di altre caratteristiche visibili nel citoplasma mediante microscopia a luce trasmessa14.
- Scarica PIVLab, un pacchetto MATLAB per PIV, dal sito web http://pivlab.blogspot.com/.
- Carica lo stack di immagini tiff per ogni sequenza video nel programma PIV all'interno di MATLAB.
- Genera manualmente una maschera per ogni pila di immagini per mascherare le regioni dei dati grezzi al di fuori del corpo di Stentor.
- Impostare PIVLab in modo che utilizzi l'impostazione della trasformata di Fourier veloce e una dimensione del contenitore di 64 x 64 pixel, che suddividerà i pixel in ogni fotogramma in pixel quadrati più grandi.
- Eseguire PIVLab per calcolare le correlazioni incrociate tra i pixel in ogni fotogramma con i pixel vicini nel fotogramma successivo per produrre un vettore di flusso dipendente dal tempo centrato in ogni pixel in contenitori, che ha la stessa risoluzione temporale dei dati grezzi.
- Calcola le medie temporali dell'output del campo vettoriale risultante per generare linee di flusso per il confronto tra i dati acquisiti con lo Stentor prima del taglio e durante la guarigione delle ferite e calcola gli istogrammi delle velocità del flusso (per studiare l'intensità del flusso) e la variazione della velocità in un dato pixel nel tempo (per studiare le fluttuazioni del flusso).
- Per le sequenze di immagini con lo stentor tagliato a metà e il citoplasma che fuoriesce visibilmente nel tampone circostante, calcolare il flusso totale del citoplasma nel corpo cellulare vero e proprio moltiplicando la velocità media del flusso per l'area della sezione trasversale della base della bolla extracellulare del citoplasma.
Risultati
Utilizzando i protocolli descritti in precedenza, si è scoperto che il citoplasma di Stentor è notevolmente dinamico, sia prima che dopo il taglio. Video 1 mostra il notevole flusso citoplasmatico presente nelle cellule non tagliate. Contrariamente alla nostra ipotesi iniziale, secondo cui la capacità di Stentor di sopravvivere al taglio avrebbe comportato un indurimento o un gelificazione del citoplasma, in realtà quando le cellule di Stentor vengono tagliate con sufficiente violenza da far fuoriuscire il citoplasma, quest'ultimo rimane altamente dinamico e riesce a rientrare nella cellula in modo altamente diretto (Video 2).
Oltre a dimostrare un grado precedentemente inaspettato di movimento citoplasmatico durante la guarigione delle ferite, l'elevata risoluzione dell'imaging nel saggio può essere utilizzata per quantificare le velocità di flusso mediante la velocimetria basata su immagini di particelle. La possibilità di effettuare tali misurazioni permetterà di testare rigorosamente l'effetto di inibitori chimici.
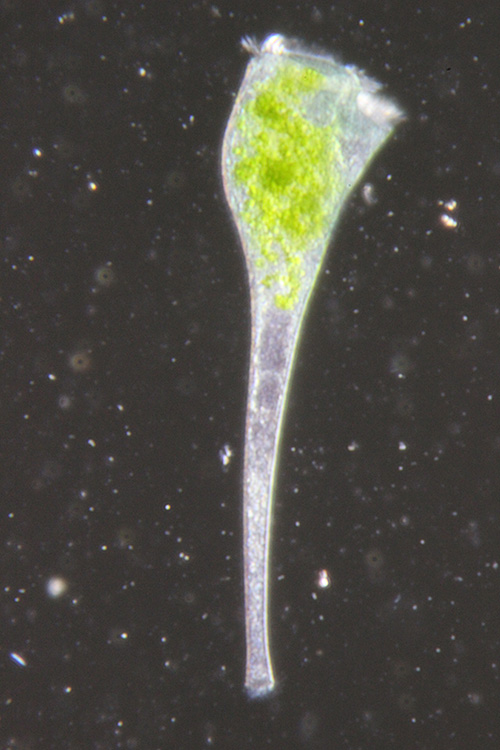
Figura 1. Morfologia di una cellula vivente di Stentor. Immagine in campo scuro di una cellula vivente di Stentor nutrita con Chlamydomonas come descritto nella Procedura 1.3, visibile come materiale verde all'interno delle vacuole alimentari. L'apparato orale attraverso cui la cellula si nutre è visibile come un anello di ciglia nella parte superiore dell'immagine.
Clicca qui per visualizzare l'immagine ingrandita.

Figura 2. Preparazione dell'ago di vetro per interventi chirurgici. (A) L'ago viene estratto dall'estremità di un'asta di vetro solida. (B) Vista ad alta ingrandimento della punta dell'ago che indica la lunghezza e la punta necessarie per l'intervento chirurgico.
Clicca qui per visualizzare l'immagine ingrandita.
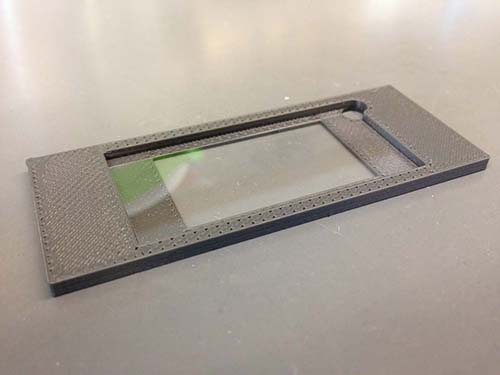
Figura 3. Supporto personalizzato per coprioggetti per microchirurgia. Per consentire un accesso aperto alla chirurgia pur mantenendo condizioni ottimali di imaging, le cellule vengono montate su un coprioggetti piuttosto che su un vetrino spesso. Per permettere al coprioggetti di adattarsi al piatto del microscopio, un supporto in plastica può essere realizzato utilizzando una stampante 3D. Il supporto ha le stesse dimensioni di un vetrino microscopico standard, mentre la depressione centrale corrisponde alle dimensioni del coprioggetti. Un foro in un angolo permette di estrarre facilmente il coprioggetti dal supporto.
Clicca qui per visualizzare l'immagine ingrandita.
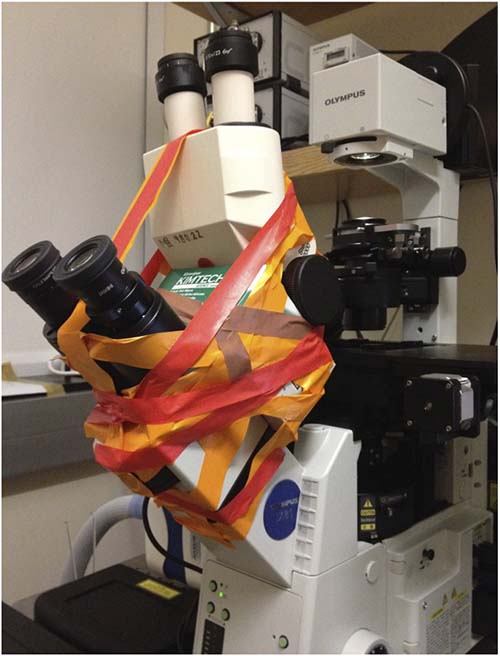
Figura 4. Configurazione del microscopio a doppio piano. Una testa di microscopio stereoscopico è montata sopra la testa degli oculari di un microscopio invertito. Del nastro da laboratorio permette di assemblare e smontare rapidamente l'apparato al termine dell'esperimento.
Clicca qui per visualizzare l'immagine ingrandita.
Video 1. Esempio di flusso citoplasmatico osservato in una cellula viva di Stentor. Cellula acquisita con obiettivo 10X mediante ottica in campo scuro a una velocità di 2 fotogrammi/sec.
Video 2. Acquisizione di immagini di una cellula di Stentor mentre viene tagliata e danneggiata con un ago di vetro. Dopo il taglio, una notevole quantità di citoplasma è stata estratta dal corpo cellulare principale, ma rientra rapidamente nella cellula.
Discussione
L'applicazione più importante di questo metodo sarà quella di utilizzarlo per determinare le vie molecolari che regolano il flusso citoplasmatico durante la guarigione delle ferite in Stentor. È disponibile un'ampia gamma di inibitori chimici che hanno come bersaglio le proteine motrici e i componenti del citoscheletro. Anche gli inibitori della segnalazione del calcio sarebbero probabili candidati. Sarebbe anche interessante rimuovere o ridurre i granuli di pigmento (estrusomi) contenenti il pigmento blu Stentorina, il cui rilascio dalla cellula viene innescato sotto stress, e chiedersi come il rilascio esocitotico di Stentorina possa influenzare il flusso del citoplasma vicino. Il pigmento può essere esaurito utilizzando un semplice trattamento di sbiancamento15 che potrebbe essere eseguito appena prima del taglio. Non sembra esserci un modo semplice per eseguire il test di guarigione delle ferite in modo parallelo, poiché le cellule devono essere tagliate e visualizzate una alla volta. Pertanto, utilizzando un singolo microscopio, sarebbe possibile operare e misurare le cellule a una velocità di circa 1 per 0,5 ore, in modo che durante un singolo giorno di lavoro dovrebbe essere possibile ottenere punti dati sufficienti per un singolo composto per determinare se ha un effetto statisticamente significativo sul processo. Sebbene il metodo non sia quindi in alcun senso ad alto rendimento, sarà assolutamente possibile selezionare un insieme selezionato di composti candidati specifici per alcuni percorsi target accuratamente scelti.
Uno dei principali limiti dell'approccio attuale è il metodo relativamente grezzo per assemblare il microscopio a due piani. Supponendo che il microscopio invertito utilizzato per l'imaging sia uno strumento di uso generale che altri lavoratori devono utilizzare per altri scopi, una considerazione importante è la facilità con cui l'apparecchio può essere smontato e rimontato. Sebbene l'attuale metodo che utilizza il nastro da laboratorio sia effettivamente rapido e facilmente smontabile, richiede ogni volta un attento allineamento da parte dell'utente durante l'assemblaggio. Una modifica importante sarebbe quindi quella di costruire un supporto rimovibile personalizzato con fessure per la testa dell'oculare del cannocchiale invertito e il corpo del cannocchiale da dissezione. Questo dovrebbe essere facile da fabbricare utilizzando la moderna tecnologia della stampante 3D.
Una seconda limitazione dell'approccio è la dipendenza dall'imaging DIC degli organelli intracellulari come marcatori di flusso. Poiché l'identità di questi organelli osservati al microscopio non è attualmente nota, non è possibile conoscere le loro dimensioni o le potenziali interazioni con altri componenti cellulari. Potrebbe quindi essere vantaggioso iniettare traccianti estrinseci come le perle fluorescenti e utilizzarli per tracciare il flusso. Tuttavia, ciò richiederebbe un passaggio aggiuntivo - la microiniezione - prima che l'esperimento possa essere eseguito, rallentando così ulteriormente il test.
L'ultima limitazione chiave è la dipendenza da un singolo piano dell'immagine per l'acquisizione dei dati. L'importanza principale di questo test è che va oltre la semplice domanda se una ferita guarisce o meno e consente di ottenere un'analisi dettagliata del modello di flusso. A questo proposito, sarà estremamente importante estendere l'imaging all'imaging tridimensionale. Il metodo attuale visualizza un singolo piano focale e quindi, quando viene eseguita l'analisi PIV, il risultato è una fetta attraverso l'intero campo di flusso tridimensionale. Questo è informativo ma incompleto. Acquisendo immagini 3D ad ogni passo temporale, dovrebbe essere possibile ottenere un campo di flusso completamente tridimensionale. Ciò sarà particolarmente critico per osservare esattamente come si muove il citoplasma nelle immediate vicinanze del sito della ferita.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari concorrenti.
Ringraziamenti
Questo lavoro è stato supportato dalla sovvenzione NIH R01 GM090305 (WFM). La procedura qui descritta è stata sviluppata durante il Corso di Fisiologia del Laboratorio di Biologia Marina durante l'estate del 2012, e ringraziamo gli studenti, gli istruttori e i direttori dei corsi per le molte discussioni utili e stimolanti.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Stentor coeruleus coltura viva | Carolina Biological | 131598 | |
| Methyl Cellulosa, 1,500 cP | Sigma | M0387 | |
EQUIPMENT: | |||
| Materiale Nome | Azienda | Numero | |
| Asta di agitazione in vetro morbido 5 pollici di lunghezza | Fisher | Scientific 11-380A | |
| Piatto di coltura 4,5 in 250 ml vetro | Carolina Biological | 741004 | |
| IX81 microscopio invertito | Olympus | ||
| Axiovert 200M microscopio invertito | Zeiss | ||
| Stemi 2000 Stereomicroscopio | Zeiss | ||
| Evolve 512 x 512 EMCCD | Fotometria | ||
| Piano Apo 20X obiettivo | Olympus | UPLSAPO |
Riferimenti
- Sonnemann, K. J., Bement, W. M. Wound repair: toward understanding and integration of single-cell and multicellular wound responses. Annu. Rev. Cell Dev. Biol. 27, 237-264 (2011).
- Idone, V., Tam, C., Andrews, N. W. Two-way traffic on the road to plasma membrane repair. Trends Cell Biol. 18 (11), 552-559 (2008).
- Reddy, A., Caler, E. V., Andrews, N. W. Plasma membrane repair is mediated by Ca2+-regulated exocytosis of lysosomes. Cell. 106 (2), 157-169 (2001).
- Foissner, I., Wastenays, G. O. The characean internodal cell as a model system for studying wound healing. J. Microsc. 247 (1), 10-12 (2012).
- Bement, W. M., Mandato, C. A., Kirsch, M. N. Wound-induced assembly and closure of an actomyosin purse string in Xenopus oocytes. Curr. Biol. 9 (11), 579-587 (1999).
- Kim, H. G., Klotchkova, T. A., Kang, Y. M. Life without a cell membrane: regeneration of protoplasts from disintegrated cells of the marine green alga Bryopsis plumosa. J. Cell Sci. 114 (11), 2009-2014 (2001).
- Tartar, V. The Biology of Stentor. , Pergamon Press. 434 (1961).
- Morgan, T. H. Regeneration of proportionate structures in Stentor. Biol. Bull. 2 (6), 311-328 (1901).
- Heidemann, S. R., Wirtz, D. Towards a regional approach to cell mechanics. Trends Cell Biol. 14 (4), 160-166 (2004).
- Kasza, K. E., Rowat, A. C., Liu, J., Angelini, T. E., Brangwynne, C. P., Koenderinck, G. H., Weitz, D. A. The cell as a material. Curr. Opin. Cell Biol. 19 (1), 101-107 (2007).
- Mitchison, T. J., Charras, G. T., Mahadevan, L. Implications of a poroelastic cytoplasm for the dynamics of animal cell shape. Sem. Cell Dev. Biol. 19 (3), 215-223 (2008).
- De Terra, N. Culture of Stentor coeruleus on Colpidium campylum. J. Eukar. Microbiol. 13 (3), 491-492 (1966).
- Harris, E. H. The Chlamydomonas Sourcebok. 1, (2009).
- Vallotton, P., Ponti, A., Waterman-Storer, C. M., Salmon, E. D., Danuser, G. Recovery, visualization, and analysis of actin and tubulin polymer flow in live cells: a fluorescent speckle microscopy study. Biophys. J. 85 (2), 1289-1306 (2003).
- Miyake, A., Harumoto, T., Iio, H. Defence function of pigment granules in Stentor coeruleus. Eur. J. Protistol. 37 (1), 7-88 (2001).
Ristampe e permessi
