I livelli della molecola infiammatoria di segnalazione cellulare ossido nitrico (NO) sono comunemente dosati utilizzando il reagente Griess. In questo protocollo, abbiamo creato un test di Griess modificato utilizzando tessuto cerebrale vivo di Drosophila al fine di rilevare la secrezione di NO in un metodo semplice, quantificabile e altamente ripetibile.
Articolo metodologico
Nuovo test quantitativo dell'intero tessuto dei livelli di ossido nitrico nella risposta neuroinfiammatoria della Drosophila
In questo articolo
Sommario
Abstract
La neuroinfiammazione è una complessa risposta immunitaria innata vitale per la sana funzione del sistema nervoso centrale (SNC). In condizioni normali, un'intricata rete di induttori, rilevatori e attivatori risponde rapidamente a danni neuronali, infezioni o altre infrazioni immunitarie. Questa infiammazione delle cellule immunitarie è intimamente associata alla patologia di malattie neurodegenerative, come il morbo di Parkinson (PD), il morbo di Alzheimer e la SLA. In stati di malattia compromessi, l'infiammazione cronica, intesa a ridurre al minimo il danno neuronale, può portare a una sovraeccitazione delle cellule immunitarie, con conseguente esacerbazione della progressione della malattia. Ad esempio, la perdita di neuroni dopaminergici nel mesencefalo, un segno distintivo del PD, è accelerata dall'eccessiva attivazione della risposta infiammatoria. Sebbene la causa del Parkinson sia in gran parte sconosciuta, l'esposizione a tossine ambientali è stata implicata nell'insorgenza di casi sporadici. L'erbicida paraquat, ad esempio, ha dimostrato di indurre una patologia simile al parkinsoneria in diversi modelli animali, tra cui la Drosophila melanogaster. Qui, abbiamo utilizzato la risposta immunitaria innata conservata in Drosophila per sviluppare un test in grado di rilevare livelli variabili di ossido nitrico, una molecola di segnalazione cellulare fondamentale per l'attivazione della cascata di risposta infiammatoria e la morte neuronale mirata. Utilizzando il danno neuronale indotto dal paraquat, valutiamo l'impatto di questi insulti immunitari sulla stimolazione neuroinfiammatoria attraverso l'uso di un nuovo test quantitativo. L'intero cervello viene completamente estratto da moscerini esposti a neurotossine o da genotipi che aumentano la suscettibilità alla neurodegenerazione, quindi incubati in terreni di coltura cellulare. Quindi, utilizzando i principi della reazione del reagente di Griess, siamo in grado di rilevare piccoli cambiamenti nella secrezione di ossido nitrico nei terreni di coltura cellulare, creando essenzialmente un modello primario di tessuto vivo in una semplice procedura. L'utilità di questo modello è amplificata dalla robusta complessità genetica e molecolare di Drosophila melanogaster, e questo test può essere modificato per essere applicabile ad altri tessuti di Drosophila o anche ad altri piccoli modelli di infiammazione dell'intero organismo.
Introduzione
La neuroinfiammazione è una risposta immunitaria complessa che ha dimostrato di essere intimamente associata alla patologia di una vasta gamma di malattie, la maggior parte delle quali sono disturbi neurodegenerativi. In condizioni basali, questa rete multiforme di cellule immunitarie peripatetiche mantiene la salute dei tessuti attraverso la sua rapida risposta a infezioni, placche o lesioni1,2. Una risposta neuroinfiammatoria da parte del sistema nervoso centrale dei mammiferi può essere innescata a causa di insulti minori, come lo stress ossidativo cellulare associato al normale invecchiamento, o di aggressioni maggiori, come il danno neuronale che si verifica a causa dell'esposizione acuta a una tossina chimica. Quando si verifica questa induzione, le cellule di sorveglianza fagocitaria note come microglia vengono attivate e migrano verso il sito del danno cellulare neuronale. Queste cellule immunitarie simili a spazzini, che sono simili alle cellule macrofagiche che esistono nella periferia, iniziano quindi una sofisticata cascata di segnalazione con il neurone danneggiato, così come con gli astrociti, supportando le cellule gliali che agiscono insieme alla microglia per la risposta microgliale tipicamente robusta3-7. Una volta attivate, le microglia iniziano un processo di infiammazione per stimolare il sistema immunitario e promuovere la riparazione dei tessuti1,8.
In condizioni di insulto prolungato, come nelle malattie neurodegenerative come il morbo di Parkinson (PD), il morbo di Alzheimer e la sclerosi laterale amiotrofica, l'infiammazione cronica provoca danni significativi anche ai tessuti sani. Studi recenti hanno dimostrato che questa risposta persistente e aggressiva da parte del sistema immunitario può in realtà portare a una reazione ipereccitatoria che esacerba lo stato della malattia piuttosto che migliorare la condizione9-11.
In Drosophila melanogaster, la risposta immunitaria innata è geneticamente ben conservata. Sebbene manchi di una vera rete immunitaria adattativa, la Drosophila mantiene un sofisticato sistema immunitario innato contenente una classe di fagociti noti come emociti. Queste cellule immunitarie sono state precedentemente identificate come cellule simili ai macrofagi che migrano verso il sito della lesione12,13 e subiscono fagocitosi durante lo shock settico14, l'introduzione di un parassita15 o l'infezione virale16.
È importante sottolineare che, come i macrofagi dei mammiferi, gli emociti fagocitici esprimono l'ossido nitrico sintasi (NOS) e producono ossido nitrico (NO), un componente critico della segnalazione dell'immunità della Drosophila 15,16. Tutti questi studi, tuttavia, sono stati in grado di dimostrare solo le risposte degli emociti durante lo sviluppo embrionale e nella larva.
Il nostro laboratorio ha osservato una robusta neuroinfiammazione mediata da emociti nel cervello adulto di Drosophila, un fenomeno precedentemente sconosciuto17. Questa risposta è stata indotta attraverso l'esposizione al paraquat tossico. Studi epidemiologici del National Institutes of Health hanno identificato l'erbicida ampiamente utilizzato come un potenziale fattore di rischio nell'insorgenza del Parkinson nell'uomo18. La ricerca che studiava il trattamento con paraquat in modelli di mammiferi aveva già convalidato le sue proprietà neurotossiche e aveva dimostrato che l'erbicida provoca sintomi parkinsoniani come anomalie motorie e perdita selettiva di neuroni19-21. Nella Drosophila, il trattamento con paraquat porta a un'ampia gamma di fenotipi comportamentali parkinsoniani e alla morte dei neuroni dopaminergici coerenti con la patologia PD22. Sebbene i meccanismi e i fattori genetici associati a questa risposta neuroinfiammatoria non siano ancora stati completamente chiariti in Drosophila, abbiamo osservato un'induzione conservata di NOS durante la neurodegenerazione.
Utilizzando questo metodo, abbiamo inoltre rilevato una risposta neuroinfiammatoria simile, anche se meno drammatica, utilizzando genotipi mutanti con sensibilità neurotossica nota. Codificata dal gene Punch, la GTP cicloidrolasi è la prima proteina limitante nella biosintesi di BH4, che agisce quindi come cofattore necessario per NOS23,24. La mutazione Pu Z22 con perdita di funzione provoca un calo della risposta infiammatoria e una maggiore suscettibilità al paraquat25. Con questo protocollo, siamo stati in grado di quantificare modifiche relativamente sottili dei livelli di ossido nitrico indotte da questa variazione genetica.
Per rilevare l'NO nei nostri campioni utilizziamo il reagente Griess, un metodo colorimetrico ampiamente accettato per misurare i livelli di NO. Questo reagente misura indirettamente l'abbondanza relativa di NO rilevando la presenza di nitriti, uno dei due prodotti finali della produzione di ossido nitrico. Gli attuali protocolli di rilevamento dei nitriti con il reagente Griess sono stati applicati principalmente per analisi in vitro o in colture cellulari, dove l'NO si diffonde nel terreno di coltura. Inizialmente abbiamo sviluppato un metodo basato su reagenti Griess per rilevare NOS negli omogeneizzati grezzi della testa di Drosophila 25. Tuttavia, abbiamo riscontrato che questo metodo è alquanto variabile con condizioni alterate, presumibilmente a causa dell'instabilità, dell'elevata reattività e della bassa concentrazione relativa di NO in tutti i tessuti della testa. Pertanto, abbiamo cercato di sviluppare un metodo basato su protocolli di coltura cellulare che consentisse una maggiore sensibilità e affidabilità nella quantificazione dell'attività NOS. Qui descriviamo un metodo concettualmente simile a quello precedentemente impiegato per rilevare la NOS nei tubuli larvali malpighiani26 di Drosophila. In questa procedura, utilizziamo interi cervelli che sono stati sezionati immediatamente dopo un trattamento con tossine per indurre la risposta infiammatoria. Quindi, abbiamo incubato questi campioni in un terreno di coltura per insetti per preservare l'integrità del tessuto e per migliorare la sensibilità e l'affidabilità di un test basato su reagenti di Griess.
Prevediamo che, con l'uso dei sofisticati strumenti genetici disponibili, questo modello abbia la capacità di fungere da promettente utilità per studiare la rete dinamica infiammazione/neurodegenerazione. Con la capacità di quantificare con precisione l'attivazione e l'intensità relativa della risposta neuroinfiammatoria, questo nuovo test crea una coltura tissutale primaria in grado di rilevare i marcatori neuroinfiammatori secreti. Questo metodo offre modelli di infiammazione di piccoli organismi, una tecnica economica e altamente sensibile per analizzare rapidamente campioni di intero organismo o di tessuto vivo dove precedentemente mancavano.
Protocollo
1. Esposizione al paraquat
- Mantenere le colture delle mosche di prova su un terreno di coltura standard per Drosophila a 25 °C a densità di coltura equivalenti composte da circa 35 femmine e 15 maschi.
- Per preparare le camere di alimentazione, posizionare una piccola quantità di cotone assorbente sul fondo di una fiala vuota con carta da filtro direttamente sopra il cotone.
- Anestetizzare i moscerini maschi adulti 3-5 giorni dopo la loclosazione utilizzando coma freddo o CO2. Per gli esperimenti qui descritti, utilizzare maschi di genotipo y w1118.
- Per la separazione del coma freddo, picchiettare le fiale di alimentazione contenenti mosche, quindi rimuovere rapidamente il tappo e trasferire le mosche direttamente in una fiala pulita e vuota, assicurandosi di etichettare correttamente.
- Una volta che le mosche sono state trasferite con successo nelle fiale di cibo vuote, picchiettare le fiale e metterle immediatamente nel secchiello del ghiaccio per 5 minuti o fino a quando le mosche non vengono messe fuori combattimento><.
nota: Non immergere completamente la fiala nel ghiaccio. Ciò può causare l'ingresso di acqua o umidità nella fiala e annegare le mosche. Come altra precauzione, usa ghiaccio fresco piuttosto che ghiaccio sciolto nei secchielli del ghiaccio.
nota: Prestare molta attenzione al numero di mosche necessarie per ogni test e, quando possibile, aggiungere altre mosche a ciascun gruppo come precauzione in caso di errore umano, ad esempio mosche che fuoriescono durante l'alimentazione o il trasferimento. Il test di rilevamento dell'ossido nitrico, ad esempio, richiede 20 cervelli di mosca per set di campioni, quindi tieni conto del livello di abilità di dissezione e dell'efficienza durante l'alimentazione (ad esempio, i principianti dovrebbero impostare più di 20 mosche in caso di errori di trasferimento o dissezione).
- Una volta che le mosche sono state anestetizzate, trasferire ciascun gruppo nella fiala di alimentazione corrispondente come preparato sopra.
- Dopo che le mosche sono completamente sveglie nelle fiale di alimentazione, farle morire di fame per 1,5 ore e nel frattempo, preparare le soluzioni descritte di seguito:
- Preparare una soluzione madre di saccarosio al 5% (soluzione di controllo) aggiungendo 5 g di saccarosio in 100 ml di acqua bidistillata. Mescolare fino a completo scioglimento e conservare a 4 °C.
nota: Utilizzare una soluzione madre di saccarosio al 5% come solvente per tutte le soluzioni di alimentazione successive. - Preparare la soluzione madre di paraquat da 10 mM utilizzando il saccarosio al 5% come diluente e conservarla a 4 °C. Preparare tutte le altre concentrazioni utilizzando diluizioni seriali secondo necessità.
ATTENZIONE: IL PARAQUAT È ESTREMAMENTE TOSSICO. FARE RIFERIMENTO ALLE SCHEDE DI SICUREZZA PER LE LINEE GUIDA SULLA SICUREZZA E LA CORRETTA MANIPOLAZIONE/SMALTIMENTO. - Preparare 10 mM di N-nitro-L-arginina metil estere cloridrato (L-NAME), N-nitro-D-arginina metil estere cloridrato (D-NAME) utilizzando il 5% di saccarosio come diluente e conservare a 4 °C. Per le cocubazioni di L-NAME o D-NAME con il paraquat, somministrare ciascun composto in rapporto 1:1 con la concentrazione di paraquat. Preparare tutte le altre concentrazioni utilizzando diluizioni seriali secondo necessità.
nota: Filtrare tutte le soluzioni direttamente dopo la preparazione. I materiali di filtrazione, D-NAME e L-NAME devono essere utilizzati entro una settimana dalla preparazione per garantire la coerenza degli esperimenti. - Pipettare 150 μl al giorno (o meno a seconda della durata dell'alimentazione) della soluzione di alimentazione sulla carta da filtro, facendo attenzione a non affogare le mosche o a non lasciarle fuoriuscire.
- Preparare una soluzione madre di saccarosio al 5% (soluzione di controllo) aggiungendo 5 g di saccarosio in 100 ml di acqua bidistillata. Mescolare fino a completo scioglimento e conservare a 4 °C.
2. Saggio di sopravvivenza/mortalità
- Impostare le camere di alimentazione come descritto in precedenza.
nota: Utilizzare almeno 3 strati di carta da filtro per fiala per evitare l'essiccazione. - Metti 10 mosche maschi 3-5 giorni dopo la posa in ogni fiala e somministra come indicato sopra, facendo attenzione a non lasciare che la carta da filtro si asciughi durante la notte.
nota: Mantenere le fiale a temperatura ambiente, lontano dalla luce solare diretta per evitare di accelerare l'evaporazione delle soluzioni. - A partire dal giorno successivo (designato "Giorno 1"), registrare il numero di mosche morte per fiala due volte al giorno per 10 giorni consecutivi.
nota: Regola sia il punteggio che l'alimentazione in orari specifici ogni giorno per ridurre la variazione e fornire una maggiore consistenza. - Calcolare la sopravvivenza media utilizzando almeno tre repliche indipendenti di tutti i gruppi.
3. Sezionamento di cervelli di mosca adulti e incubazione
- Prima delle dissezioni, pipettare 50 μl di Grace's Insect Medium nel numero appropriato di pozzetti (un pozzetto per ogni set di campioni + uno per il "bianco"/controllo) in una piastra per microtitolazione da 96 pozzetti ed etichettare adeguatamente. Coprire con il coperchio della piastra fino all'uso.
nota: In alternativa, se si preferisce, si possono utilizzare anche provette da centrifuga sterili. - Anestetizzare i moscerini di un campione utilizzando il coma freddo come descritto nei passaggi 1.3.1-1.3.2.
- Una volta che le mosche sono completamente anestetizzate, posizionare diverse mosche su un vetrino da microscopio
nota: Inizia con un piccolo sottogruppo di mosche se non hai esperienza con le dissezioni. - Decapitare le teste delle mosche al microscopio da dissezione utilizzando una pinza e una lama chirurgica o due pinze, scartando i corpi delle mosche al termine.
- Utilizzare una piccola quantità di PBS come tampone di dissezione; l'essiccazione deve essere evitata.
- Estrarre l'intero cervello seguendo il metodo di Williamson & Hiesinger (2010)27, rimuovendo accuratamente le particelle della cuticola e qualsiasi tessuto non cerebrale (ad esempio il tessuto pigmentato degli occhi) (vedi Figura 1).
- Trasferire il cervello sezionato nel pozzetto opportunamente etichettato e ripetere fino a raggiungere un minimo di 20 cervelli per pozzetto.
- Tenere le piastre sul ghiaccio durante il periodo di dissezione e non superare il tempo totale di 20-30 minuti tra l'inizio della dissezione e l'inizio del saggio.
nota: Possono essere utilizzati più di 20 cervelli, purché ogni gruppo abbia lo stesso numero in ogni pozzetto. Il numero minimo di cervelli per ottenere una lettura accurata può variare (fare riferimento alla sezione Discussione per maggiori dettagli). - Una volta completato il set di lavoro, lasciare incubare il cervello per 6 ore a 25 °C agitando leggermente.
- Seguire i passaggi 1.2-1.6 per tutti i gruppi rimanenti.
nota: Registrare e regolare l'ora di fine dell'incubazione in base ai differenziali tra il completamento di ciascun set di campioni.
4. Preparazione durante il periodo di incubazione
- Preparare il reagente Griess modificato come indicato dal produttore (vedi tabella) e tenerlo al buio fino al momento dell'uso. La quantità di reagente necessaria dipende dalla quantità di campioni. Ad esempio, il reagente Griess verrà aggiunto in un rapporto 1:1 al Grace's Medium (passaggio 5.5). Pertanto, devono essere preparati 50 μl per set di campioni + 50 μl per il controllo in bianco.
- Costruire una curva standard di nitrito utilizzando nitrito di sodio in una diluizione seriale compresa tra 0,78125 e 100 mM di nitrito per un totale di 8 concentrazioni.
nota: Questo dovrebbe essere fatto per ogni esperimento per garantire la coerenza e l'accuratezza nella concentrazione del campione e nell'attività del reagente Griess. - Inoltre, preparare ed etichettare provette da centrifuga sterili da 0,5 ml, due provette per ogni gruppo di trattamento e due per il controllo.
5. Rilevamento dei livelli di nitriti
- Una volta terminato il periodo di incubazione, trasferire il Grace's Medium (almeno 45 μl) dai pozzetti di microtitolazione nella prima serie di provette da centrifuga corrispondenti a ciascun gruppo.
nota: Come notato in precedenza, assicurati di tenere conto delle differenze nei periodi di incubazione dovute al tempo impiegato tra ogni serie di dissezioni. - Passaggio facoltativo: aggiungere nitrato reduttasi e NADPH in questo passaggio per convertire i nitrati in nitriti. (Questo passaggio non è stato eseguito in base ai risultati mostrati)
nota: Se lo si desidera, è possibile eseguire un test di nitrati/nitriti con un'aliquota di surnatante del campione, come descritto nei kit di analisi. - Centrifugare delicatamente (circa 8.175 x g) per 2 minuti per eliminare eventuali particelle cerebrali o tissutali che potrebbero essere state aspirate dai pozzetti.
- Pipettare 30 μl di surnatante dal primo set di provette da centrifuga nel secondo set di provette corrispondenti, facendo attenzione a non rompere il pellet dopo la centrifuga dei campioni.
- Aggiungere il reagente Griess in rapporto 1:1, incubare per 5-10 minuti e dosare con lo spettrofotometro NanoDrop ad un'assorbanza di 548 nm entro 30 min.
Nota: i campioni possono anche essere analizzati utilizzando un lettore di micropiastre a una lunghezza d'onda di assorbanza di 540 nm con lunghezza d'onda di riferimento di 620 nm. - Ripetere ogni lettura almeno tre volte e fare la media delle letture.
nota: Assicurati di "svuotare" la macchina tra ogni 6-10 letture e prima del completamento, esegui il controllo in bianco (Grace's Medium più reagente Griess senza cervello) come campione da utilizzare come deviazione standard. - Utilizzare la curva standard dei nitriti generata al punto 4.2 per calcolare i livelli relativi di nitriti di ciascun campione.
- Per calcolare le concentrazioni sconosciute, tracciare prima i valori delle concentrazioni note dalla curva standard utilizzando l'assorbanza (cioè la densità ottica) sull'asse y e la concentrazione sull'asse x.
- Una volta che tutti i valori standard della curva sono stati rappresentati graficamente, trova la pendenza della linea di adattamento migliore e risolvi l'equazione per x.
nota: Se le diluizioni seriali vengono eseguite correttamente, la linea di adattamento migliore dovrebbe essere lineare o molto vicina ad essa. In caso contrario, ricostruire la curva standard. Se i problemi persistono, controllare la scadenza di tutte le soluzioni, i terreni e i reagenti e assicurarsi che l'apparecchiatura funzioni correttamente e rientri nel suo raggio di rilevamento. - Successivamente, sostituisci semplicemente i valori di assorbanza con y e risolvi con x, che rappresenta la concentrazione.
Per ulteriori informazioni riguardanti l'uso dell'attrezzatura NanoDrop, fare riferimento a Desjardins et al. 2009 e Desjardins & Conklin, 201028,29.
6. Macchia occidentale
- Nutrire 30 mosche per condizione come descritto sopra e decapitare le teste, preferibilmente utilizzando azoto liquido e vortex.
- Omogeneizzare le teste intere su ghiaccio in 60 μl di tampone RIPA con 2 mM di ditiotreitolo (DTT) e 1x cocktail di inibitori della proteasi aggiunti appena prima dell'uso.
- Centrifugare i campioni per 5 minuti a 8.175 x g a 4 °C.
- Trasferire il surnatante in nuove provette da centrifuga.
- Miscelare delicatamente i campioni e pipettare 17 μl di surnatante in provette da centrifuga contenenti 6,5 μl di tampone per campioni LDS 4x e 2,5 μl di DTT.
nota: Campione rimanente congelato in azoto liquido e conservato a -20 °C fino al momento dell'uso. - Mescolare bene i campioni e scaldare a 70 °C per 10 minuti, mescolando una volta a metà incubazione.
- Durante il riscaldamento, assemblare l'apparecchio di corsa per elettroforesi su gel di poliacrilammide (PAGE) utilizzando il minigel prefabbricato al 4-12% di NuPage Bis-Tris, il tampone di corsa MOPS SDS con 500 μl di antiossidante nella camera interna.
- Centrifugare rapidamente i campioni e lasciarli raffreddare.
- Caricare 25 μl in ciascuna corsia.
- Eseguire l'elettroforesi su gel a 200 V su ghiaccio o a 4 °C per 45 minuti o fino al completamento del gel.
- Una volta completata l'elettroforesi, trasferire le proteine separate dal gel alle membrane di nitrocellulosa utilizzando iBlot Transfer Stacks e rilevare il segnale utilizzando il Western Blot Detection Kit.
nota: Gli anticorpi utilizzati sono i seguenti: anticorpi primari di α-nNOS di topo (1:250), α-sintassina di topo (1:200); anticorpi secondari (1:250) forniti nel kit di rilevamento Western Blot (topo). - Rileva il segnale chemiluminescente utilizzando il sistema di imaging western blot o la pellicola a raggi X.
Nota: Per l'analisi del blot è possibile utilizzare qualsiasi metodo standard di rilevamento e quantificazione dell'immunoblot.
Risultati
È stato dimostrato in numerosi modelli animali, come topi19, ratti20 e moscerini della frutta22, che il paraquat induce una degenerazione neurologica compatibile con una patologia simile al morbo di Parkinson. In precedenza abbiamo riportato che l'antibiotico antinfiammatorio minociclina, somministrato contemporaneamente al paraquat, determina un prolungamento della sopravvivenza, una ridotta produzione di specie reattive dell'ossigeno e la salvaguardia dei neuroni dopaminergici dalla morte cellulare25. Poiché la minociclina agisce sopprimendo l'infiammazione, abbiamo iniziato a studiare la NOS, una proteina chiave nell'attivazione della risposta infiammatoria, e il suo ruolo nella modulazione della tossicità indotta dal paraquat.
È stata eseguita una curva di tossicità del paraquat per stabilire una dose letale efficace e un intervallo di trattamento tossico, utilizzando concentrazioni di paraquat comprese tra 1,25 e 10 mM (Figura 2A). Abbiamo inoltre analizzato gli effetti di concentrazioni di paraquat pari a 20 mM e 40 mM, ma abbiamo riscontrato che la tossicità a queste concentrazioni più elevate era troppo acuta per valutare con precisione le risposte cellulari a questo agente ossidativo; pertanto, i risultati relativi a queste concentrazioni non sono inclusi nel presente rapporto. Utilizzando L-NAME, un inibitore competitivo della NOS, e D-NAME, l'isomero inattivo di NAME, abbiamo effettuato un trattamento concomitante di moscerini adulti maschi con paraquat e uno degli isomeri di NAME. Il trattamento concomitante dei moscerini con paraquat e L-NAME ha determinato un significativo recupero dell'accorciamento della durata della vita causato dall'ingestione di paraquat, mentre i moscerini trattati con paraquat e D-NAME non hanno mostrato alcun miglioramento della sopravvivenza (Figura 2B), sostenendo l'ipotesi secondo cui la soppressione dell'infiammazione mediante l'inibizione della NOS migliora la sopravvivenza dei moscerini trattati con paraquat.
Come ulteriore conferma di una risposta al paraquat mediata da NOS, abbiamo rilevato variazioni nei livelli proteici di NOS immediatamente dopo l'esposizione al paraquat. I livelli proteici di NOS sono aumentati in modo dipendente dalla concentrazione di paraquat (Figura 3A). Trattando le mosche con paraquat 10 mM per durate di esposizione comprese tra 6 e 30 ore, abbiamo osservato un incremento iniziale, seguito da una diminuzione all'aumentare del tempo di esposizione (Figura 3B), in linea con gli andamenti dei livelli di nitrito osservati nel nostro protocollo dell'assay di Griess (Figura 5B). Questi risultati sono in accordo con le nostre segnalazioni secondo cui il trattamento con paraquat induce l'espressione di NOS e che l'inibizione di NOS o il trattamento con L-NAME o minociclina conferiscono una protezione parziale17,25.
Figura 4A dimostra una relazione lineare tra l'aumento della concentrazione di paraquat e l'intensità della risposta infiammatoria definita dalla secrezione e rilevazione di NO. A livelli basali, i mutanti eterozigoti Punch secernono livelli leggermente inferiori di NO, una variazione troppo lieve per essere determinata mediante metodi di rilevamento precedenti. Quando alimentati con paraquat, nei mutanti Punch si osserva un marcato aumento dei livelli di NO, tuttavia significativamente inferiore rispetto a quello nei moscerini di tipo selvaggio trattati (Figura 4B). I valori relativi dei moscerini di tipo selvaggio e di Punch possono essere quantificati in modo accurato e riproducibile, anche se la variazione a livelli non trattati è straordinariamente sottile.
Quando si lavora con tossine o sostanze chimiche, è fondamentale stabilire sia una curva di esposizione nel tempo che una curva di tossicità basata sulla concentrazione, poiché queste condizioni possono alterare notevolmente la sensibilità del saggio. Ad esempio, il trattamento con 5 mM di paraquat determina la massima rilevazione di NO dopo 24 ore di esposizione (Figura 5A), mentre l'esposizione a 10 mM di paraquat induce una risposta più rapida (livelli massimi a 12 ore), ma anche un decadimento più veloce dell'attività durante esposizioni prolungate (Figura 5B). Sebbene una concentrazione più elevata con induzione rapida possa sembrare preferibile, una risposta massimizzata accelera la morte sia dei neuroni che possibilmente degli emiociti, al punto da rendere difficile la riproducibilità.
Le molecole di NO sono instabili e altamente reattive. Un saggio efficace deve quindi includere condizioni di incubazione che garantiscano un equilibrio ottimale tra l'induzione continua della NOS e il rapido turnover del NO. Per definire le condizioni di incubazione ottimali, abbiamo valutato l'effetto del tempo di incubazione dei cervelli dissezionati nel mezzo di coltura prima dell'aggiunta del reagente di Griess. Abbiamo osservato che un'incubazione di 6 ore a temperatura ambiente produce livelli massimi di nitrito nella successiva reazione di Griess (Figura 5C). Prevediamo che possano essere necessarie variazioni della durata dell'incubazione per ottimizzare il rilevamento in diversi modelli di infiammazione. Una definizione accurata di tutti i parametri ottimali per l'organismo, il genotipo e il tessuto specifico in esame sarà essenziale per ottenere risultati affidabili e precisi, poiché il processo è altamente dinamico. In particolare, si prevede che varianti genetiche e modelli di espressione di transgeni richiedano un'ottimizzazione sostanziale, soprattutto in relazione allo stadio di sviluppo o all'età degli adulti.
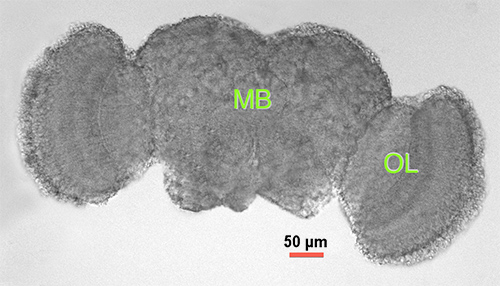
Figura 1. Cervello adulto di Drosophila. Microscopia ottica del cervello di maschio adulto dissezionato, 2-3 giorni dopo l'eclosione. MB = mesencefalo (corteccia centrale), OL = lobo ottico.
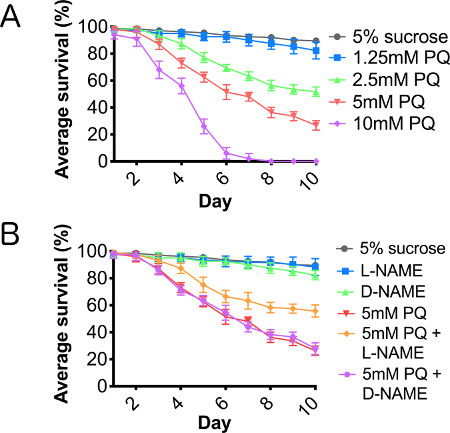
Figura 2. Il paraquat provoca una riduzione della durata della vita dipendente dalla dose, mediata dalla sintasi dell'ossido nitrico. Drosofile maschi di tipo selvatico alimentate con (A) saccarosio al 5% (controllo) e diluizioni seriali di paraquat in saccarosio al 5%, con concentrazioni comprese tra 1,25 e 10 mM, e (B) paraquat somministrato contemporaneamente a L-NAME o D-NAME per 10 giorni consecutivi. N = 3 gruppi di 10. Le barre di errore corrispondono all'ERL.
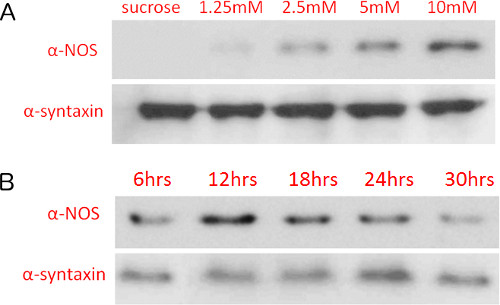
Figura 3. I livelli proteici della nitric ossido sintetasi aumentano con la concentrazione di paraquat e la durata dell'esposizione. Rilevamento mediante immunoblot dei livelli di nitric ossido sintetasi in moscerini trattati con diverse (A) concentrazioni di paraquat (esposizione di 12 ore) e (B) paraquat 10 mM con diverse durate di esposizione. I livelli proteici sono stati rilevati su membrane di nitrocellulosa mediante chemiluminescenza ed esposizione su pellicola radiografica.
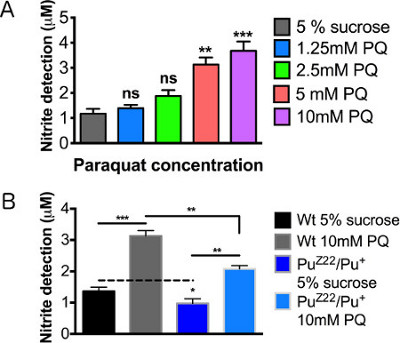
Figura 4. Livelli di rilevamento dell'ossido nitrico dopo esposizione al paraquat. Drosofile maschio di tipo selvatico (WT) di 2-3 giorni dalla schiusa sono state analizzate dopo 12 ore di alimentazione. (A) Curva di concentrazione delle concentrazioni di paraquat. (B) Mutanti eterozigoti maschi per Punch nutriti con soluzione di saccarosio come controllo e con paraquat 10 mM. N = 20 cervelli/gruppo. I risultati rappresentano 3 ripetizioni per gruppo. Le barre di errore corrispondono all'errore standard della media (SEM). Le analisi statistiche sono state effettuate mediante ANOVA ad un fattore con test post-hoc di Dunnett per confronti multipli (*, p < 0,05; **, p < 0,01; ***, p < 0,001).

Figura 5. Ottimizzazione del rilevamento della produzione di ossido nitrico modificando la durata dell'esposizione al paraquat e il tempo di incubazione del tessuto. Livelli relativi di ossido nitrico nei cervelli maschili 2-3 giorni dopo l'eclosione, a seguito di un trattamento di 12 ore con (A) paraquat 5 mM e (B) paraquat 10 mM. (C) Curva dell'NO con diversi periodi di incubazione del tessuto dopo somministrazione orale di paraquat 10 mM per 12 ore. I valori di significatività sono stati calcolati rispetto ai seguenti controlli: (A, B) controlli con saccarosio al 5% per ciascun tempo di esposizione (non mostrati nel grafico), (C) controlli con saccarosio al 5% per ciascun tempo di incubazione (non mostrati nel grafico). N = 20 cervelli/gruppo. I risultati rappresentano 3 ripetizioni per gruppo. Le barre di errore corrispondono all'errore standard della media (SEM). Le analisi statistiche sono state eseguite mediante ANOVA ad un fattore con test post-hoc di Dunnett per confronti multipli (*, p<0.05, **, p<0.01, ***, p<0.001).
Discussione
Questo metodo, sebbene semplice nell'approccio, fornisce un metodo economico, altamente ripetibile ed estremamente sensibile per quantificare i livelli di neuroinfiammazione mediata da NOS. Come mostrato nella sezione Risultati, ci sono molte variabili che possono essere regolate per migliorare o ottimizzare la risposta in diversi modelli o organismi di induzione. Poiché si tratta di un sistema altamente sensibile, tuttavia, queste variabili possono anche portare a risultati altamente variabili se tutti gli aspetti del protocollo non vengono gestiti con attenzione. Quando si esegue il primo test utilizzando qualsiasi modello, si consiglia di impostare i parametri testando le variabili, che includono la concentrazione chimica (Figura 4A), la durata dell'esposizione (Figure 5A e 5B) e la durata dell'incubazione (Figura 5C). Prestare attenzione ad altre variabili, come il numero di cervelli/campioni di tessuto necessari per raggiungere la soglia di rilevamento e la coerenza, anche quando si applica questo metodo a modelli simili di Drosophila . Inoltre, nei modelli genetici di infiammazione dipendenti dall'età, sarà necessaria un'ottimizzazione prolungata dei punti temporali.
Come accennato in precedenza, a causa della natura sensibile del test, le incongruenze nel protocollo possono produrre risultati inaffidabili. Con questo in mente, tutte le attrezzature e i materiali sono stati sterilizzati prima dell'uso. A causa del breve tempo di incubazione, in questi esperimenti non sono stati aggiunti antibiotici ai terreni di coltura. Tuttavia, se il protocollo viene adattato per tempi di incubazione più lunghi o se si osserva una crescita batterica in colture o terreni, è necessario aggiungere antibiotici tipici della coltura come la penicillina-streptomicina e risterilizzare l'apparecchiatura. Come in qualsiasi esperimento di trattamento chimico, è necessario prestare attenzione per garantire che tutti i gruppi siano allevati in condizioni ben controllate, sesso ed età abbinati e che tutti i gruppi ricevano esattamente le stesse condizioni di alimentazione. Alcune condizioni di alimentazione di esempio da considerare includono variazioni nelle concentrazioni, disponibilità e accesso alla fonte di alimentazione, durata dell'alimentazione e l'ora del giorno in cui viene somministrata l'alimentazione. Registrazioni dettagliate per tutte le condizioni sperimentali e un'attenzione particolare ai modelli di alimentazione naturale del modello contribuiranno a ridurre al minimo la variabilità. Se vengono impiegati ceppi mutanti o transgenici che influenzano i circuiti neurali o i modelli comportamentali, un controllo importante includerebbe il monitoraggio del comportamento alimentare.
Ancora una volta, mentre protocolli simili sono disponibili nelle colture cellulari e nei lisati, uno dei principali vantaggi di questo metodo è che l'integrità del tessuto viene mantenuta, consentendo quindi praticamente a tutte le relazioni cellulari all'interno del cervello di rimanere intatte. Questo sistema rappresenta uno stato relativamente naturale, in vivo , di segnalazione neuroinfiammatoria e secrezione cellulare. Stabilita in Drosophila, questa tecnica può essere facilmente adattata ad altri piccoli organismi modello e non è limitata al sistema nervoso centrale, come dimostrato da un'applicazione simile per la segnalazione NO in un modello di tubulo Malpighiano per la funzione renale26. Il vantaggio di gran lunga più significativo di questo protocollo è la capacità di manipolare e adattare questo test per soddisfare le esigenze e gli interessi del ricercatore o del sistema modello.
Attraverso l'uso di approcci chimico-genetici combinati, questo test ha il potenziale per migliorare significativamente la capacità di piccoli sistemi modello di studiare i meccanismi, le componenti genetiche e i modulatori chimici dell'infiammazione.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari concorrenti.
Ringraziamenti
Ringraziamo il Dr. Guy e il Dr. Kim Caldwell per l'uso del loro spettrofotometro NanoDrop durante lo sviluppo di questo test e J. Gavin Daigle per i suoi commenti critici e suggerimenti. Lo sviluppo di questo metodo è stato finanziato da una sovvenzione del National Institutes of Health (NS-078728) a J.M.O.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Feeding Chambers | |||
| Empty Drosophila fiala | Genesee Scientific | #32-116 | |
| Cotone | Qualsiasi prodotto standard può essere utilizzato. | ||
| Carta da filtro | Fisher | #09-802-1B | |
| Esposizione al paraquat | |||
| Saccarosio | Sigma-Aldrich | #S0389 | |
| Paraquat (idrato di dicloruro di viologeno metilico) | Sigma-Aldrich | #856177 | Tossico. Maneggiare con cura e nel rispetto delle linee guida MSDS |
| L-NAME (N-Nitro-L-arginina metil estere cloridrato) | Sigma-Aldrich | #N5751 | |
| D-NAME (N-Nitro-D-arginina metil estere cloridrato) | Sigma-Aldrich | #N4770 | |
| Dissezione di cervelli di mosca adulti e incubazione | |||
| Grace's Insect Medium | Invitrogen | #11605-094 | Grace's Medium può anche essere sostituito con Sf-900 II SFM o Sf-900 III SFM Medium per una maggiore coerenza da lotto a lotto. |
| Piastra a 96 pozzetti | Corning | #3596 | È possibile utilizzare qualsiasi prodotto standard. |
| Vetrino per | È possibile utilizzare qualsiasi prodotto standard. | ||
| Lama chirurgica | Feather | #0197 | È possibile utilizzare qualsiasi prodotto standard. |
| Pinzetta medica 5 | Dumont | EMS #72877-D | È possibile utilizzare qualsiasi prodotto standard. |
| 10x tampone PBS | OmniPur | #6508 | |
| Rilevamento dei livelli di nitriti | |||
| Reagente Griess modificato | Sigma-Aldrich | #4410 | |
| Nitrito di sodio | Sigma-Aldrich | #S2252 o #237213 | |
| Kit per il dosaggio delle proteine | Bio-Rad | 500-0001 | |
| Cuvette | È possibile utilizzare qualsiasi prodotto standard. | ||
| Nitrato reduttasi | opzionale | ||
| NADPH | opzionale | ||
| Western Blot Analysis | |||
| RIPA tampone di lisi | Amresco | 97063-270 | |
| ditiotreitolo (DTT)- Agente riducente | Novex | B0009 | |
| Cocktail di inibitori della proteasi | Amresco | 97063-082 | |
| 4x tampone per campioni LDS | Novex | B0007 | |
| Precast 4-12% Bis-Tris minigel | Novex | BG04125BOX | |
| MOPS SDS tampone di corsa | Novex | B0001 | |
| Antiossidante | NuPage | NP0005 | |
| iBlot Pile di trasferimento (nitrocellulosa) | Invitrogen | IB301002 | |
| Western blot kit di rilevamento | Invitrogen | IB711002 | |
| Topo &alfa;-nNOS | BD Biosciences | 611853 | |
| Topo &alfa;-sintassina | DSHB | 8C3 |
Riferimenti
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
Ristampe e permessi
