Il presente protocollo descrive come Western Blotting e immunocitochimica combinata con l'inibizione di enzimi lisosomiali può essere utilizzato per dimostrare la down-regulation di neurotrofico ciliare Factor Receptor-α (CNTFRα), che viene convogliato dall'interazione tra citochine come il fattore-1 (CLF-1 ) e il recettore endocitico sorLA.
Articolo metodologico
SorLA e CLC: Downregulation CLF-1-dipendente di CNTFRα come dimostrato dalla Western Blotting, inibizione di enzimi lisosomiali, e Immunocitochimica
In questo articolo
Sommario
Abstract
La citochina heterodimeric Cardiotrophin come citochine: citochine come il fattore-1 (CLC: CLF-1) bersaglia il glicosilfosfatidilinositolo (GPI) -anchored CNTFRα per formare un complesso trimeric che successivamente reclute glicoproteina 130 / leucemia inibitorio Factor Receptor-β (gp130 / LIFRβ) per la segnalazione. Sia CLC e CNTFRα sono necessari per la segnalazione ma finora CLF-1 è stato conosciuto solo come un facilitatore putativo della secrezione CLC. Tuttavia, è stato recentemente dimostrato che CLF-1 contiene tre siti di legame: uno per CLC; uno per CNTFRα (che possono causare assemblaggio del complesso trimeric); e uno per il recettore endocitico sorLA. Quest'ultimo sito fornisce alta affinità di legame di CLF-1, CLC: CLF-1, così come il trimeric (CLC: CLF-1: CNTFRα) complesso sorLA, in sorLA cellule che esprimono i ligandi solubili CLF-1 e CLC : CLF-1 stanno rapidamente ripreso e interiorizzato. Nelle cellule co-esprimono CNTFRα e sorLA, CNTFRα prima lega CLC: CLF-1 per formareun complesso trimeric associata alla membrana, ma si collega anche al sorLA attraverso il sito sorLA vincolante libera in CLF-1. Di conseguenza, CNTFRα, che non ha capacità di endocitosi da sola, si tirò avanti e interiorizzato dal endocitosi sorLA mediata di CLC: CLF-1.
Il presente protocollo descrive le procedure sperimentali utilizzate per dimostrare i) la sorLA-mediata e CLC: downregulation CLF-1-dipendente dell'espressione CNTFRα superficie della membrana; ii) endocitosi e lisosomiale mira di CNTFRα sorLA-mediata; e iii) la risposta cellulare abbassato a CLC: CLF-1-stimolazione su downregulation sorLA-mediata di CNTFRα.
Introduzione
La CLC e CLF-1 costituiscono le due subunità della CLC citochina heterodimeric: CLF-1 1-3. Per l'induzione del segnale cellulare, CLC: CLF-1 primi obiettivi della CNTFRα, suo recettore primario e GPI-ancorata, per formare un complesso trimeric legato alla membrana. La CLC: CLF-1: complesso CNTFRα recluta successivamente gp130 / LIFRβ che media transmembrana segnalazione tramite i Janus chinasi / trasduttori di segnale e attivatori della trascrizione 3 (JAK / STAT3) percorso 4. Mice carente in qualsiasi delle tre subunità visualizzare uno stesso fenotipo e muoiono entro 24 ore dopo la nascita a causa di un ridotto numero di neuroni facciali e insufficiente suzione 5-8. I risultati negli esseri umani allo stesso modo sottolineano la coerenza funzionale delle tre subunità. Così, mutazioni umane (omozigoti o composti) causando una disfunzione di CLC: CLF-1 o CNTFRα, tutto risultato nella cosiddetta sindrome sudorazione indotta fredda / Crisponi, una condizione caratterizzata da sintomi quali impaisuzione e deglutizione rosso, vari dismorfismi, sbalzi di temperatura, e paradossale e profumato sudorazione alle basse temperature 9-11.
In vitro, la combinazione di CLC e CNTFRα è necessario e sufficiente per l'interazione con gp130 / LIFRβ e l'induzione di segnalazione nelle cellule 12. Il ruolo di CLF-1 invece è meno chiaro. E non è direttamente coinvolto nella segnalazione, ed è stato a lungo considerato come un'appendice che serve principalmente per facilitare la secrezione cellulare di CLC 1. Tuttavia, i recenti risultati mostrano che CLF-1 dispone di funzioni aggiuntive e più importanti che implicano sia la segnalazione e il fatturato di CLC e CNTFRα. Così, sembra che CLF-1 contiene tre siti di legame indipendenti: uno per la sua ben nota vincolante per CLC; uno che media legame diretto al CNTFRα; e un terzo sito (alta affinità) per l'interazione con il recettore endocitico sorLA. Per quanto sia CLC e CLF-1 sembrano & #160; per indirizzare CNTFRα con una notevole affinità inferiore al CLC: complesso CLF-1, è concepibile che CLF-1 (tramite il suo sito di legame CNTFRα) promuove l'unificazione della CLC e CNTFRα e quindi facilita la segnalazione 13.
l'interazione di CLF-1 con sorLA, la questione principale della presentazione presente, svolge un ruolo completamente diverso. SorLA è uno dei cinque recettori di tipo 1, che costituiscono il recettore famiglia Vps10p-dominio 14. Essa è espressa in una varietà di tessuti, ma soprattutto in cervello e tessuti neuronali 15. Simile agli altri membri della famiglia sorLA porta un ligando N-terminale di legame Vps10p-dominio, ma in aggiunta, che comprende anche altri tipi di dominio compresi elementi ligando vincolante trovati in membri della bassa densità del recettore della lipoproteina famiglia 15. La coda citoplasmatica interagisce con diverse proteine adattatore, ad esempio, l'adattatore proteina-1 e -2, e sorLA trasmette endocytos efficientiè così come smistamento intracellulare e il trasporto di proteine legate 16-18. Il Vps10p-dominio composto da un ampio dieci pale β-elica 19,20, che lega una serie di ligandi non correlati tra cui CLF-1 (ma in particolare, non CLC) 13. Il sito di legame di CLF-1 è accessibile anche dopo la formazione del complesso con CLC e CNTFRα il che significa che sorLA si lega non solo libera CLF-1, ma anche CLC: CLF-1 e la trimeric CLC complesso: CLF-1: CNTFRα 13. SorLA trasmette rapida endocitosi di CLF-1 e CLC: CLF-1, ma questi sono proteine solubili che CNTFRα è fissato alla superficie della membrana da un GPI-anchor. La questione è quindi se vincolante di CLC: CLF-1: CNTFRα permette sorLA di internalizzare l'intero complesso e, quindi, di alterare l'espressione di superficie membrana di CNTFRα (e la conseguente predisposizione cellulare per CLC: CLF-1 di induzione del segnale), e / o il fatturato delle CNTFRα.
Gli esperimenti descritti nel presenterapporto sono stati progettati per chiarire le seguenti domande:
Ha sorLA mediare CLC: downregulation CLF-1-dipendente della superficie della membrana CNTFRα? Per chiarire questo, è stato inizialmente cercato di determinare il turnover di CNTFRα (in assenza e presenza di sorLA) mediante esperimenti di etichettatura e pulse-chase metaboliche come descritto in 21. Tuttavia, i tentativi di etichettare CNTFRα utilizzando una miscela di [S 35] cisteina e [S 35] metionina mostrato scarsa incorporazione di radioattività. Questo ha suggerito un bassissimo grado di nuova sintesi, che con ogni probabilità sarebbe in grado di compensare una improvvisa e significativa perdita di recettori. Per determinare se CNTFRα era downregulated quando interconnessi tramite CLC: CLF-1 a sorLA, si è pertanto deciso semplicemente di misurare (tramite Western blotting) il pool totale cellulare di CNTFRα prima e dopo l'esposizione a CLC: CLF-1 - e per confrontare i risultati in cellule trasfettate o meno trasfettate consorLA.
Ha sorLA bersaglio CNTFRα ai lisosomi? Per rispondere a questa domanda, la localizzazione di CNTFRα - interiorizzata attraverso il suo CLC: CLF-1-mediata legame sorLA - è stato esaminato con immunocitochimica, e l'etichettatura con anticorpi diretti verso CNTFRα e tardo-endosome / lisosomi marcatore lisosomiale associata proteine di membrana 1 (LAMP-1). L'esperimento è stato condotto su cellule trattate e non trattate con inibitori di enzimi lisosomiali. L'idea era, naturalmente, che se CNTFRα stata degradata nei lisosomi, le cellule trattate con enzimi inibitori sarebbero presentare CNTFRα macchia accumulando in LAMP-1 vescicole positive, mentre le cellule non trattate avrebbero mostrato poca o nessuna colorazione per CNTFRα.
Ha CNTFRα downregulation abbassare la risposta cellulare al CLC: CLF-1 stimolazione? Il complesso trimeric composto da CLC, CLF-1, e segnali CNTFRα tramite la gp130 / LIFRβ eterodimero utilizzando il JAK / STAT3via. Di conseguenza, la capacità delle cellule di rispondere a CLC: CLF-1 segnalazione su sottoregolazione di CNTFRα è stato esplorato dal rilevamento Western Blot e la quantificazione del / livello di STAT3 totale fosfo-STAT3 (pSTAT3) in trasfettanti sorLA.
Protocollo
1. Western Blotting di CNTFRα Lisati
- Esprimono full-length sorLA e Myc-tag CNTFRα costruisce nel rene embrionali umane 293 (HEK293), le cellule utilizzando pcDNA3.1 / zeo (-) e pcDNA3.1 / HYG (-), rispettivamente. Trasfezione le cellule HEK293 con i costrutti con un reagente di trasfezione commerciale secondo il protocollo del produttore di. Selezionare cloni stabili in mezzo contenente 150 mg / ml Zeocin e / o 500 mg / ml Hygromycin B Oro 13.
- Seed numero uguale di HEK293 transfettanti che ha espresso CNTFRα-Myc o co-esprimono CNTFRα-Myc / sorLA in due piastre 4 e mostrato in Figura 1. Coltivare le cellule in Dulbecco Modified Eagle's Medium (DMEM) supplementato con 10% del feto siero bovino (FBS), 100 U / mL di penicillina, e 100 mg / ml di streptomicina (mezzo completo) in un incubatore anidride carbonica 5% a 37 ° C.
- Attendere fino a quando le cellule sono 50 - 80% confluenti.
- Rimuovere il supporto dalpozzi, lavare una volta con Dulbecco tampone fosfato (DPBS), e aggiungere mezzo pieno fresca con o senza (controllo) 10 nM CLC: CLF-1, come indicato nella figura 1. Incubare le cellule a 37 ° C.
- Dopo 0 e 5 ore di incubazione, il recupero medio e conservarlo a 4 ° C in provette da 1,5 ml. Poi aggiungere 1% tampone Triton X-100 di lisi (20 mM Tris-HCl, 10 mM EDTA, pH 8,0) integrato con un cocktail inibitore proteinasi a ciascun pozzetto (1 min, 4 C). Successivamente, trasferire i lisati cellulari per provette da 1,5 ml (4 C).
- Spin le provette contenenti il medio e del lisato (3.000 x g, 3 min, 4 C) e trasferire il surnatante per provette da 1,5 ml (4 C). Eliminare il pellet. Trasferire 5 ml di ciascun surnatante lisato cellulare di nuovi tubi da 1,5 ml - li usa per misurare il contenuto di proteine tardi (passo 1,7). Immediatamente, aggiungere nonreducing tampone campione LDS a tutti il surnatante e vortice dei campioni.
- Utilizzare i 5 ml aliquote per misurare la protcontenuti Ein nei surnatanti lisato cellulare usando un test di proteine commerciale secondo il protocollo del produttore.
- Riscaldare i campioni a 95 C per 5 min.
- Sottoporre una pari quantità di proteine di ogni campione per ridurre SDS-PAGE 13 e Western blotting 13 e visualizzare il contenuto di sorLA, β-actina, e CNTFRα-Myc nel mezzo e nei lisati cellulari usando coniglio anti-sorLA 16 (5 ug / mL), topo anti-β-actina (0,4 mcg / ml), e topo anti-Myc (/ mL) anticorpi 1 ug e appropriati anticorpi secondari HRP-linked (1: 2.000).
- Quantificare le bande da densitometria secondo il protocollo del produttore.
2. Immunocitochimica in combinazione con inibitori lisosomiale
- Seme HEK293 cellule stabilmente trasfettate con CNTFRα-Myc / sorLA su vetrini di copertura in una piastra 4 e come illustrato nella figura 2. Cultura le cellule in pieno mezzo come sopra.
- Attendere che confluenza cellulare è 20 - 40%.
- Rimuovere il mezzo dai pozzetti e aggiungere pieno mezzo con o senza 50 ug / ml di leupeptina e di pepstatina A (leu / pep) (inibisce idrolasi lisosomiali) alle cellule, come indicato in figura 2. Incubare le cellule a 37 ° C. Il mezzo deve essere sostituito ogni 6 h durante le successive 24 ore di incubazione.
- Dopo 24 h di incubazione, una volta sostituire il mezzo (con o senza leu / pep) e questa volta aggiungere 10 nM CLC: CLF-1. Incubare le cellule a 37 ° C per 5 ore.
- Lavare le cellule una volta in PBS e fissarli in 4% paraformaldeide, pH 7 per 15 minuti a RT.
Attenzione: Paraformaldeide è altamente tossico, evitare il contatto con la pelle, gli occhi e le mucose. Guanti e occhiali di sicurezza devono essere indossati e soluzioni realizzati all'interno di una cappa aspirante. - Lavare le cellule una volta in PBS e permeabilize le cellule per 5 min a temperatura ambiente in saponina diluito in PBS (0,5% saponina).
- Diluire capra anti-CNTFRα (1 mg / ml) (in particolarenon il topo anti-Myc utilizzato per Western blotting) e mouse anticorpi anti-LAMP-1 (15 mg / ml) in 0,5% saponina e incubare le cellule con anticorpi per 2 ore a RT.
- Lavare le cellule 4x (5 min) in 0,5% saponina e incubare le cellule con asino anti-capra Alexa 488- e asino anti-topo Alexa anticorpi secondari 568-coniugati (6 mg / ml) per 2 ore a temperatura ambiente.
- Lavare le cellule 4x (5 min) in 0,5% saponina, due volte in acqua deionizzata (1 min), e montare le diapositive di copertura su vetrini da microscopio utilizzo di supporti di montaggio.
- Analizzare l'anticorpo-colorazione delle cellule mediante microscopia confocale utilizzando un microscopio confocale a scansione laser con un obiettivo 63X immersione in acqua C-apocromatico, NA 1.2.
3. Western Blot-rilevamento del livello pSTAT3
- Cellule HEK293-sorLA seme (che esprimono livelli endogeni di CNTFRα) in una piastra 4 e come mostrato in figura 3. Cultura le cellule in pieno mezzo come sopra.
- Attendere che lacellule sono 50 - 80% confluenti.
- Rimuovere il mezzo dai pozzetti, lavare una volta in PBS e aggiungere mezzo fresco full con o senza 10 nM CLC: CLF-1 alle cellule, come indicato nella figura 3. Incubare le cellule a 37 ° C per 5 ore.
- Rimuovere il supporto, lavare le cellule due volte in DMEM senza supplementi (media vuoto, senza FBS e antibiotici), e poi incubare le cellule per 90 minuti (37 ° C) a mezzo di vuoto.
- Ancora una volta, rimuovere il terreno e aggiungere mezzo vuoto fresca con o senza 5 nM CLC: CLF-1 (per avviare STAT3 fosforilazione) come indicato in figura 3. Incubare per 15 minuti a 37 ° C.
- Rimuovere rapidamente medio e lisare le cellule (1 min, 4 C) aggiungendo 1% tampone di lisi Triton X-100 (20 mM Tris-HCl, 10 mM EDTA, pH 8,0) integrato con un cocktail di inibitori delle proteasi e un inibitore di fosfatasi cocktail di ogni bene. Successivamente, trasferire i lisati cellulari per provette da 1,5 ml (4 C).
- Trasferire 5 ml of ogni surnatante in nuovi tubi da 1,5 ml - li usa per misurare il contenuto di proteine tardi (passo 3,8). Immediatamente, aggiungere nonreducing tampone campione LDS a tutti il surnatante e vortice dei campioni.
- Misurare il contenuto proteico dei 5 aliquote microlitri utilizzando un saggio di proteine commerciale secondo il protocollo del produttore.
- Sonicare ciascun campione a temperatura ambiente fino a quando non è più viscoso (circa 1 min) e successivamente sono loro calore a 95 C per 5 min.
- Sottoporre una pari quantità di proteina da ciascun campione SDS-PAGE 13 e Western blotting 13 e visualizzare il contenuto di pSTAT3 e STAT3 totale nei lisati cellulari usando coniglio anti-pSTAT3 (1: 2000) e topo anti-STAT3 (1: 1.000 ) anticorpi e il mouse e coniglio HRP-linked appropriati anticorpi secondari (1: 2.000).
- Quantificare le bande da densitometria secondo il protocollo del produttore.
Risultati
La figura 1 mostra una rappresentazione schematica della cella-semina e CLC: CLF-1 incubazione in protocollo 1. La Figura 2 mostra una rappresentazione schematica della cella-semina e leu / pep e CLC: CLF-1 incubazione in protocollo 2. Figura 3 mostra una rappresentazione schematica della cella-semina e CLC: CLF-1 incubazione e stimolazione protocollo 3. Figura 4 mostra il CLC sorLA-mediata: downregulation CLF-1-dipendente di CNTFRα. La Figura 5 mostra il sorLA mediata endocitosi e lisosomiale mira di CNTFRα. La figura 6 mostra la risposta inferiore a CLC: CLF-1 stimolazione dopo CNTFRα downregulation.
Si noti che le bande significanti CNTFRα-Myc hanno densità simile al tempo zero, mentre sottoregolazione di CNTFRα-Myc è dimostrata dalla band più debole in trasfettanti sorLA after 5 h (Figura 4). La Figura 5 mostra che CNTFRα-Myc ha accumulato in LAMP-1 vescicole positivi di cellule / PEP trattati Leu. Al contrario, nessun accumulo di CNTFRα-Myc è visto in cellule non sottoposti a trattamento leu / pep. Ciò dimostra che CNTFRα-Myc è ordinato di lisosomi e degradato. Come si vede in figura 6, il livello di pSTAT3 è significativamente ridotta in cellule pre-stimolate rispetto al livello in cellule che non è stato esposto a CLC: CLF-1. Ciò è in accordo con la osservata downregulation sorLA-mediata CNTFRα nelle cellule pre-stimolate (Figura 4).
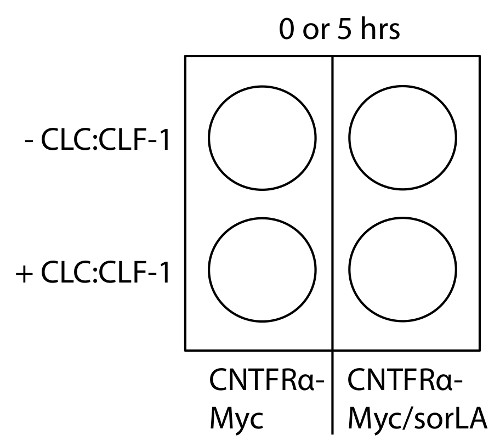
Figura 1: Rappresentazione schematica di cellule-semina e CLC: CLF-1 incubazione nel protocollo 1. Seed cellule HEK293-CNTFRα-Myc e HEK293-CNTFRα-Myc / sorLA in due 4-pozzetti (0 e 5 h) e incubare cellule con CLC: CLF-1 come indicato. Clicca qui per vedere una versione più grande di questa figura.
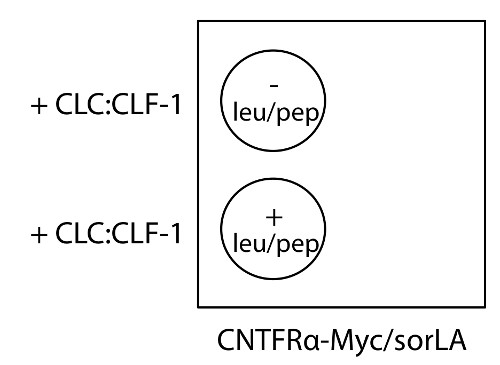
Figura 2: Rappresentazione schematica di cellule-semina e leu / pep e CLC: CLF-1 incubazione nel protocollo 2. Le sementi di cellule HEK293-CNTFRα-Myc / sorLA su slitte copertine in un piatto 4-bene e incubare cellule con o senza leu / pep e CLC: CLF-1 come indicato. Clicca qui per vedere una versione più grande di questa figura.
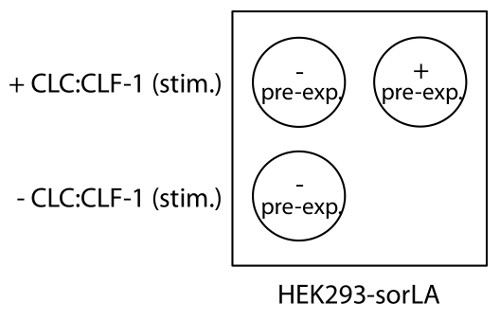
Figura 3: Rappresentazione schematica di cellule-semina e CLC: incubazione CLF e di stimolo nel protocollo 3. Seed cellule HEK293-sorLA in un piatto 4-bene e incubare cellule con o senza CLC: (. pre-exp) CLF-1 per il downregulate CNTFRα seguito da CLC: CLF-1 stimolazione (. STIM) di avviare STAT3 fosforilazione come indicato. Clicca qui per vedere una versione più grande di questa figura.
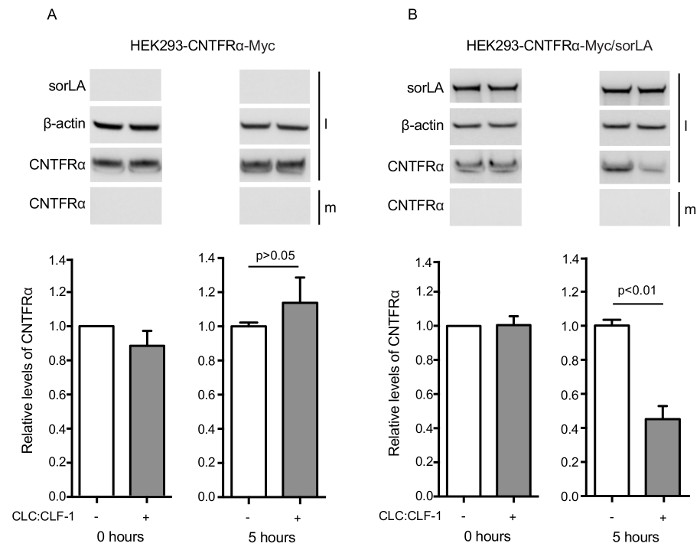
Figura 4: I risultati mostrano che SorLA media CLC: downregulation CLF-1-dipendente di CNTFRα. (A) cellule (B) HEK293-CNTFRα-Myc / sorLA HEK293-CNTFRα-Myc e sono state incubate in assenza (colonne bianche) o di presenza (colonne grigie) di 10 Nm CLC: CLF-1. Dopo 0 e5 h, l'incubazione è stato fermato e il contenuto di CNTFRα-Myc nel mezzo (m) e nei lisati cellulari (l) è stato rilevato mediante Western blotting e quantificati mediante densitometria. I pannelli superiori mostrano risultati Western Blot da esperimenti rappresentativi ei pannelli inferiori mostrano i livelli rilevati di CNTFRα-Myc trovati nelle lisati cellulari. I livelli sono mostrati rispetto al livello CNTFRα-Myc nelle trasfettanti singole e doppie a 0 h. Ciascuna colonna rappresenta media ± SEM (n = 3). p-value calcolati utilizzando t-test. Riprodotto dopo la figura originale 13. Clicca qui per vedere una versione più grande di questa figura.
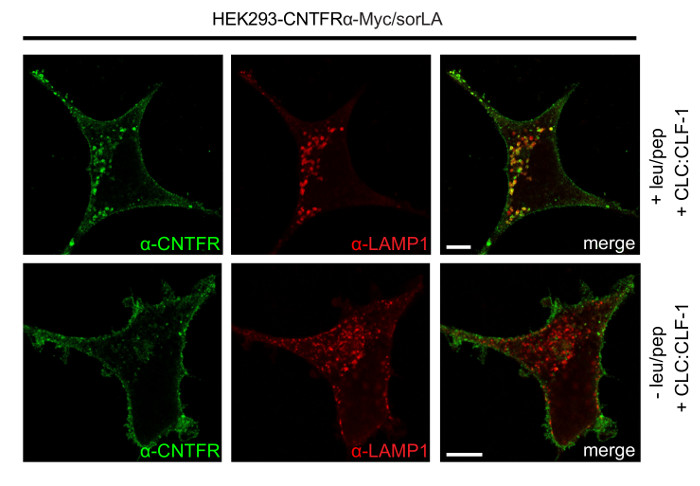
Figura 5:I risultati mostrano che SorLA media endocitosi e lisosomiale mira di CNTFRα. cellule HEK293-CNTFRα-Myc / sorLA sono stati trattati con o senza leu / pep, incubate con 10 nM CLC: CLF-1 per 5 ore, fissa, e, infine, macchiato con anti-CNTFRα e anti-LAMP-1-anticorpi, come descritto nel protocollo 2. barre di scala: 5 micron. Riprodotto dopo la figura originale 13. Clicca qui per vedere una versione più grande di questa figura.
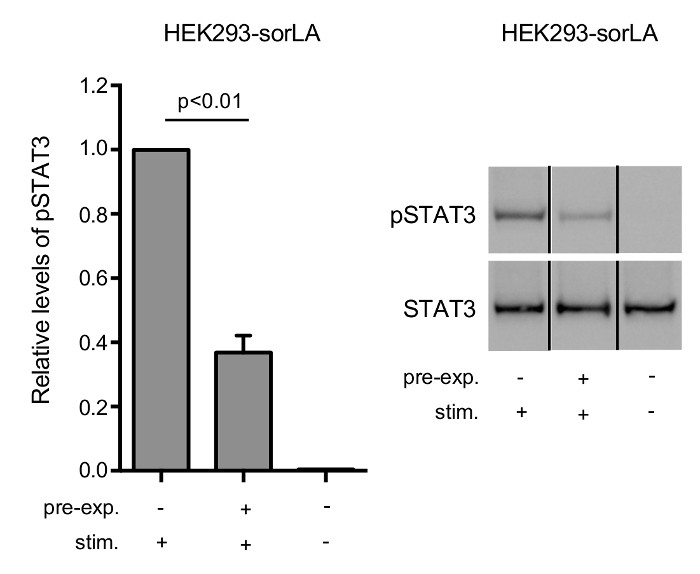
Figura 6: downregulation SorLA-mediata CNTFRα è accompagnata da una risposta cellulare abbassata a CLC: CLF-1 stimolazione.
cellule HEK293-sorLA sono stati pre-incubate in assenza o presenza di 10 Nm CLC: (. pre-exp) CLF-1 per 5 h, morto di fame in Blanmedia k per 90 min, e stimolati con 5 nM CLC: (. STIM) CLF-1 per 15 min. (A sinistra) Le colonne mostrano i relativi livelli di pSTAT3 nelle cellule. Ciascuna colonna rappresenta media ± SEM (n = 3) rispetto al livello pSTAT3 in cellule preincubate in assenza di CLC: CLF-1 ma stimolate con CLC: CLF-1. p-value calcolato con t-test. (Destra) Il Western blot mostra la risposta di pSTAT3 e STAT3 ottenuti in un esperimento rappresentativo. Riprodotto dopo la figura originale 13. Clicca qui per vedere una versione più grande di questa figura.
Discussione
Il protocollo qui descritto può essere utilizzato specificamente per dimostrare la CLC sorLA-mediata: downregulation CLF-1-dipendente e il targeting lisosomiale di CNTFRα, nonché l'accompagnamento risposta indebolita a CLC: CLF-1 stimolazione.
La linea cellulare HEK293 è particolarmente adatto per questo protocollo, come hanno solo un minore espressione endogena di CNTFRα e sorLA, sono facili da trasfezione, espresso gp130 / LIFRβ, e hanno un corpo a grandi cellule, che è adatto per immunocitochimica. Tuttavia, in teoria qualsiasi linea cellulare con proprietà simili dovrebbe funzionare pure.
Il protocollo ha due passaggi critici. Il primo riguarda passo 2.3, in cui il / medio pep leu deve essere sostituito almeno ogni 6 h per 24 h. In caso contrario, può provocare enzimi lisosomiali attivi e meno o nessun accumulo rilevabili di proteine nei lisosomi. Il secondo passo fondamentale (3.4) preoccupazioni di lavaggio su di pre-incubazione con CLC: CLF-1. È important di rimuovere qualsiasi ligando non legato, e per consentire il tempo per recuperare le cellule (evitando continua stimolazione) in DMEM senza supplementi (media vuoto). Ciò garantirà un basso livello di fondo del pSTAT3 durante la successiva ri-stimolazione con CLC: CLF-1 (passo 3,5).
In particolare, la figura 6 mostra che la risposta cellulare (pSTAT3) diminuisce in parallelo con la sottoregolazione sorLA mediata CNTFRα. Va sottolineato tuttavia che, anche se una ridotta risposta è conforme (e prevedibile su) una riduzione della piscina CNTFRα, non dimostra che la bassa espressione CNTFRα solo rappresenta la risposta cellulare ridotta. Quindi, variazioni - derivanti da pre-stimolazione o transfezione - in alcuno degli elementi funzionali del percorso di segnalazione a monte pSTAT3 possono aver contribuito alla risposta alterata.
Il concetto di base del protocollo non è limitata a questo particosistema recettoriale lar. (. Es un'altra linea cellulare, altri anticorpi, altri ligandi, etc) Modificando il protocollo può essere utilizzato per determinare la sottoregolazione ligando-indotta di altri recettori, come pure - indipendentemente coinvolgimento sorLA's. Tuttavia, va notato che l'analisi dei recettori downregulation mediante Western blotting è adatto principalmente per i recettori, per esempio, recettori GPI, che presentano una lenta rotazione e un basso grado di nuova sintesi in cellule non stimolate. Così, in recettori mostrano un alto livello di nuova sintesi, downregulation ligando-indotta può essere compensata da sintesi di nuovi recettori. In queste circostanze, la downregulation della piscina recettore può invece essere determinata mediante esperimenti di etichettatura e pulse-chase metaboliche come descritto in 21. In alternativa, gli anticorpi iodati (preferibilmente FC-frammenti) che non interferiscono con il legame al recettore può essere utilizzato per "tag" il ectodomain della recepto, e la downregulation atteso può essere determinata mediante conteggio radioattiva di pellet cellulare e medie.
Per motivi logistici abbiamo trasfettato nostre cellule con un CNTFRα costruire portando una Myc-tag, e nel presente protocollo un topo anti-Myc anticorpo è stato utilizzato per Western Blot-rilevamento del recettore. Al contrario, una capra anti-CNTFRα anticorpo è stato usato per immunocitochimica e doppia etichettatura LAMP-1 è stato rilevato da un anticorpo mouse - e ovviamente uso di due anticorpi di topo primari comporterebbe aspecifica (sovrapposizione) colorazione con anticorpi secondari. Si noti che, poiché la capra anti-CNTFRα funziona anche in Western blotting (non mostrato), il protocollo potrebbe essere facilmente modificato e applicato alle cellule trasfettate con untagged CNTFRα.
Infine, è stato recentemente dimostrato che anche il recettore sortilin endocitico lega CLC: CLF-1 con alta affinità 22. Così, è ipotizzabile che sortilin, comesorLA, interconnessioni a CLC: CNTFRα via CLF-1 ed è in grado di mediare endocitosi e lisosomiale mira di CNTFRα pure. Utilizzando sortilin invece di sorLA, del presente protocollo può essere utilizzato per chiarire la questione.
Dichiarazioni
Gli autori non hanno nulla da rivelare.
Ringraziamenti
Gli autori non hanno riconoscimenti.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Zeocin | InvivoGen | ant-zn-1 | |
| Igromicina B Oro | InvivoGen | ant-hg-1 | |
| FuGENE 6 Reagente di trasfezione | Roche | 11 815 091 001 | |
| Piastre a 4 pozzetti (Nunclon Delta Surface) | Thermo Scientific | 176740 | |
| Provette Safe-Lock | Eppendorf | 0030 120.086 | |
| Dulbecco Modified Eagle´ s Medium (DMEM) | Lonza | BE12-604F/U1 | |
| Siero fetale bovino (FBS) | Thermo Scientific | 10270106 | |
| Penicillina/Streptomicina | Thermo Scientific | 15140122 | |
| Dulbecco Phosphate Buffered Saline (DPBS) | HyClone | SH30028.02 | |
| CLC:CLF-1 | R& D Systems | 1151-CL/CF | |
| Mouse anti-LAMP-1 | DSHP | H4A3 | |
| Coniglio anti-sorLA | Riferimento 16 | ||
| Topo anti-b-actina | Sigma | A2228 | |
| Topo anti-Myc | Genscript | A00704 | |
| Capra anti-CNTFRa | R& D Systems | AF-303 | |
| Coniglio anti-pSTAT3 | Tecnologia di segnalazione cellulare | 9145s | |
| Mouse anti-STAT3 | Tecnologia di segnalazione cellulare | 9139s | |
| Anticorpo anti-topo legato a HRP | Tecnologia di segnalazione cellulare | 7076s | |
| Anticorpo anti-coniglio legato a HRP | Tecnologia di segnalazione cellulare | 7074s | |
| Anticorpo anti-capra legato a HRP | Dako | P0160 | |
| Anticorpo secondario anti-capra d'asino, Alexa Fluor 488 coniugato | Invitrogen | A11055 | |
| Anticorpo secondario anti-topo asino, Alexa Fluor 568 coniugato | Invitrogen | A10037 | |
| Leupeptin | Sigma | L8511-5MG | |
| Pepstatin A | Sigma | P4265-5MG | |
| Triton X-100 | AppliChem | A1388 | |
| Tris-HCl | Merck | 1.082.191.000 | |
| EDTA:Titriplex III | Merck | 1.084.180.250 | |
| cOmplete mini EDTA-free | Roche | 11836170001 | |
| PhosSTOP | Roche | 04 906 837 001 | |
| LDS sample Buffer (4x) | Novex | NP0007 | |
| Bio-Rad Protein Assay | Bio-Rad | 500-0006 | |
| 4% paraformaldeide (PFA) | VWR | 97,135,000 | |
| Saponina | Sigma | S7900-100G | |
| Supporti di montaggio | Dako | S3023 |
Riferimenti
- Elson, G. C., et al. CLF associates with CLC to form a functional heteromeric ligand for the CNTF receptor complex. Nat Neurosci. 3 (9), 867-872 (2000).
- Senaldi, G., et al. Novel neurotrophin-1/B cell-stimulating factor-3: a cytokine of the IL-6 family. Proc Natl Acad Sci U S A. 96 (20), 11458-11463 (1999).
- Elson, G. C., et al. Cytokine-like factor-1, a novel soluble protein, shares homology with members of the cytokine type I receptor family. J Immunol. 161 (3), 1371-1379 (1998).
- Lelievre, E., et al. Signaling pathways recruited by the cardiotrophin-like cytokine/cytokine-like factor-1 composite cytokine: specific requirement of the membrane-bound form of ciliary neurotrophic factor receptor alpha component. J Biol Chem. 276 (25), 22476-22484 (2001).
- Zou, X., et al. Neonatal Death in Mice Lacking Cardiotrophin-Like Cytokine (CLC) is Associated with Multifocal Neuronal Hypoplasia. Vet Pathol. 46 (3), 514-519 (2008).
- Forger, N. G., et al. Cardiotrophin-like cytokine/cytokine-like factor 1 is an essential trophic factor for lumbar and facial motoneurons in vivo. J Neurosci. 23 (26), 8854-8858 (2003).
- Alexander, W. S., et al. Suckling defect in mice lacking the soluble haemopoietin receptor NR6. Curr Biol. 9 (11), 605-608 (1999).
- DeChiara, T. M., et al. Mice lacking the CNTF receptor, unlike mice lacking CNTF, exhibit profound motor neuron deficits at birth. Cell. 83 (2), 313-322 (1995).
- Crisponi, L., et al. Crisponi syndrome is caused by mutations in the CRLF1 gene and is allelic to cold-induced sweating syndrome type 1. Am J Hum Genet. 80 (5), 971-981 (2007).
- Crisponi, G. Autosomal recessive disorder with muscle contractions resembling neonatal tetanus, characteristic face, camptodactyly, hyperthermia, and sudden death: a new syndrome. Am J Med Genet. 62 (4), 365-371 (1996).
- Sohar, E., Shoenfeld, Y., Udassin, R., Magazanik, A., Revach, M. Cold-induced profuse sweating on back and chest. A new genetic entity. Lancet. 2 (8099), 1073-1074 (1978).
- Guillet, C., et al. Functionally active fusion protein of the novel composite cytokine CLC/soluble CNTF receptor. Eur J Biochem. 269 (7), 1932-1941 (2002).
- Larsen, J. V., et al. Cytokine-Like Factor 1, an Essential Facilitator of Cardiotrophin-Like Cytokine:Ciliary Neurotrophic Factor Receptor alpha Signaling and sorLA-Mediated Turnover. Mol Cell Biol. 36 (8), 1272-1286 (2016).
- Willnow, T. E., Petersen, C. M., Nykjaer, A. VPS10P-domain receptors - regulators of neuronal viability and function. Nat Rev Neurosci. 9 (12), 899-909 (2008).
- Jacobsen, L., et al. Molecular characterization of a novel human hybrid-type receptor that binds the alpha2-macroglobulin receptor-associated protein. J Biol Chem. 271 (49), 31379-31383 (1996).
- Nielsen, M. S., et al. Sorting by the cytoplasmic domain of the amyloid precursor protein binding receptor SorLA. Mol Cell Biol. 27 (19), 6842-6851 (2007).
- Jacobsen, L., et al. The sorLA cytoplasmic domain interacts with GGA1 and -2 and defines minimum requirements for GGA binding. FEBS Lett. 511 (1-3), 155-158 (2002).
- Klinger, S. C., et al. SorLA regulates the activity of lipoprotein lipase by intracellular trafficking. J Cell Sci. 124 (7), 1095-1105 (2011).
- Kitago, Y., et al. Structural basis for amyloidogenic peptide recognition by sorLA. Nat Struct Mol Biol. 22 (3), 199-206 (2015).
- Quistgaard, E. M., et al. Ligands bind to Sortilin in the tunnel of a ten-bladed beta-propeller domain. Nat Struct Mol Biol. 16 (1), 96-98 (2009).
- Larsen, J. V., et al. Human sorCS1 binds sortilin and hampers its cellular functions. Biochem J. 457 (2), 277-288 (2014).
- Larsen, J. V., et al. Sortilin facilitates signaling of ciliary neurotrophic factor and related helical type 1 cytokines targeting the gp130/leukemia inhibitory factor receptor beta heterodimer. Mol Cell Biol. 30 (17), 4175-4187 (2010).
Ristampe e permessi
