Sono mostrati i dettagli su come mappare QTL con una mappa genetica basata su una sequenza intero di genoma può essere utilizzata per identificare un gene di resistenza alla droga in Toxoplasma gondii e come questo può essere verificato con il sistema CRISPR / Cas9 che modifica in modo efficiente un obiettivo genomico, in questo caso il Gene di resistenza alla droga.
Articolo metodologico
Mapping QTL e modifica CRISPR / Cas9 per identificare un gene di resistenza alla droga in
In questo articolo
Sommario
Abstract
La conoscenza scientifica è intrinsecamente legata alle tecnologie e ai metodi disponibili. Questo articolo presenta due metodi che consentiranno l'identificazione e la verifica di un gene di resistenza al farmaco nel parassita Apicomplexan Toxoplasma gondii , il metodo del mapping quantitativo trait locus (QTL) utilizzando una mappa genetica a base di sequenza intero genoma (WGS) e il metodo Di ripetizioni palindromiche brevi regolarmente clusterizzate (CRISPR) / editing genico basato su Cas9. L'approccio della mappatura QTL consente di verificare se esiste una correlazione tra una regione genomica e un fenotipo. Sono necessari due set di dati per eseguire una scansione QTL, una mappa genetica basata sulla progenie di una croce ricombinante e un fenotipo quantificabile valutato in ciascuna delle prole di quella croce. Questi set di dati vengono quindi formattati per essere compatibili con il software R / qtl che genera una scansione QTL per identificare significativi loci correlati con il fenotipo. Anche se questo può molto restringere la ricerca wIndice di possibili candidati, QTL span regioni contenenti un certo numero di geni da cui il gene causale deve essere identificato. Avere WGS della progenie era critico per identificare la mutazione causale della resistenza al farmaco a livello del gene. Una volta identificata, la mutazione del candidato può essere verificata mediante manipolazione genetica di parassiti sensibili alla droga. Il metodo più facile ed efficace per modificare geneticamente T. gondii è il sistema CRISPR / Cas9. Questo sistema è costituito da soli 2 componenti sia codificati su un singolo plasmide, un singolo RNA guida (gRNA) contenente una sequenza di 20 bp complementari al target genomico e l'endonucleasi Cas9 che genera un doppio filamento DNA break (DSB) al bersaglio, La cui riparazione consente l'inserimento o la cancellazione di sequenze intorno al sito di rottura. Questo articolo fornisce protocolli dettagliati per utilizzare strumenti di editing del genoma CRISPR / Cas9 per verificare il gene responsabile della resistenza sinfungina e per costruire parassiti transgenici.
Introduzione
La gamma host determina l'estensione della prevalenza dei parassiti. Alcuni parassiti hanno requisiti specifici per l'host che limitano l'area da cui sono trovati, altri sono generalisti. Un tale generalista è Toxoplasma gondii ( T. gondii) . Questo parassita si trova in tutto il mondo in quanto può infettare tutti i mammiferi e molti uccelli. Gli esseri umani sono anche suscettibili e si stima che circa un terzo della popolazione mondiale sia stato infettato. Fortunatamente, una solida risposta immunitaria controlla normalmente la crescita del parassita, ma in situazioni in cui il sistema immunitario è compromesso il parassita può crescere non controllato e causare malattie, spesso encefaliche. Inoltre, questo parassita può causare malattie congenite se in precedenza le donne non infette sono infettate durante la gravidanza in quanto non hanno memoria immune per limitare rapidamente la diffusione del parassita. Inoltre, c'è un onere della tosoplasmosi oculare che può causare la perdita della vista 1 . Per questi reasoIl T. gondii è diventato un centro di studio e, a causa dei molti metodi molecolari sviluppati per il suo studio, un modello per i parassiti Apicomplexan. Due metodi che verranno discussi qui sono il mapping Quantitativo Trait Locus (QTL) e Ripetizioni palindromiche brevi intervallate regolarmente (CRISPR) / Cas9 gene edit. La mappatura QTL e l'editing CRISPR / Cas9 sono, rispettivamente, avanti e invertire gli approcci genetici utilizzati negli studi precedenti per identificare e / o caratterizzare i geni di T. gondii virulenza. Qui, questi metodi sono combinati per identificare e confermare la funzione di una resistenza di sinefungina (SNF r ), TgME49_290860, ei suoi ortologhi (annotato come SNR1 ) 2 .
Anche se T. gondii può infettare un'ampia varietà di host medi, deve passare e infettare le cellule epiteliali intestinali di un felid per completare il ciclo di vita. I gatti sono gli ospiti definitivi del parassita dove i sSi producono stadi esuali e si verifica la ricombinazione genetica attraverso la meiosi. Per condurre uno studio QTL bisogna creare una croce genetica e nel caso del toxoplasma si intende passare due ceppi di parassita diversi che differiscono in un tratto fenotipico, le macchie genitali, attraverso un gatto per produrre la progenie ricombinante 3 . Prima di essere alimentato ai gatti, i ceppi genitori sono resi resistenti a farmaci separati per consentire un'identificazione più efficace dei ricombinanti mediante la selezione doppia della droga della progenie 4 . A tal fine sono stati utilizzati tre farmaci in T. gondii ; Fluorodioxibosio (FUDR) per il quale la proteina dell'urina fosforibosilico ( UPRT ) è il gene di resistenza 5 , adenosina arabinoside (ARA) per la quale l'adenosina-chinasi ( AK ) è il gene di resistenza 6 e sinefungina (SNF) per la quale il gene di resistenza è sconosciuto 7 . Sono state diverse croci geneticheCreato per T. gondii , ma solo i 24 segmenti del cross ME49-FUDR r X VAND-SNF sono stati genotipizzati usando il sequenziamento intero del genoma (WGS) 8 . Questo ha aperto la possibilità di mappare e identificare il gene di resistenza SNF usando questa croce come il genitore VAND è stato reso resistente alla sinefungina dalla mutagenesi chimica del ceppo VAND (SNF s ) sensibile alla droga e il genoma di riferimento VAND è stato sequenziato utilizzando il VAND- SNF s che permettono l'identificazione di tutti i polimorfismi tra il gene WGS e il genoma di riferimento VAND-SNF, inclusa la mutazione parentale VAND-SNF r ereditata che rese alcune delle proteine del sinefungina del progenie.
Per identificare il polimorfismo nucleotidico singolo causale (SNP) nelle progenie di SNF, possono essere utilizzate diverse risorse open source basate su calcolo per analizzare i dati. Per creare la mappa genetica per il ME49-FUDR r X VAND-SNF r attraversa la suite software REDHORSE 9 che utilizza l'allineamento WGS dei genitori e della progenie per rilevare accuratamente le posizioni genomiche dei crossover genetici. Queste informazioni di mappatura possono essere combinate con i dati fenotipici (SNF r nella progenie) per formattare un set di dati compatibile con il pacchetto 'qtl' 10 nel software di programmazione statistica R dove una scansione QTL può essere eseguita per rivelare significativi loci correlati con il fenotipo. Per identificare il SNP causale localizzato all'interno del loco QTL, le letture WGS della progenie possono essere allineate individualmente al genoma VAND genetico sensibile allo sinefungine utilizzando il programma di allineamento Bowtie 2 11 da cui possono essere chiamati SNP utilizzando il programma di chiamata variante Variper mpileup2snp 12 . Usando questi SNP, il loco QTL può essere scansionato per i polimorfismi presenti nel SNF r, ma nonNella progenie di SNF. Con il SNP causale identificato nella regione di codifica di un gene, la modifica genetica del gene SNF r del candidato può essere eseguita in un ceppo SNF s per verificare la funzione di resistenza al farmaco.
Il sistema di editing del genoma CRISPR / Cas9 è stato recentemente fondato in Toxoplasma 13 , che ha aggiunto importanti strumenti per l'esplorazione della complessa biologia di questo parassita, in particolare per gli studi genetici in ceppi adattati non in laboratorio. A causa dell'attività altamente attiva di adesione a non end omologo (NHEJ) nelle cellule di Toxoplasma WT, è difficile ottenere una modifica genomica mirata dal momento che il DNA introdotto esogeno è integrato casualmente nel genoma ad altissima frequenza 14 . Per aumentare il tasso di successo della modifica specifica del locus, sono stati impiegati approcci diversi per aumentare l'efficienza della ricombinazione omologa e / o diminuireE Attività NHEJ 15 , 16 . Uno di questi approcci è il sistema CRISPR / Cas9. Rispetto ad altri metodi, il sistema CRISPR / Cas9 è efficiente per introdurre modifiche specifiche del sito e è facile da progettare 13 , 17 , 18 . Inoltre, può essere utilizzato in qualsiasi ceppo di Toxoplasma senza ulteriori modifiche al parassita 13 , 19 .
Il sistema CRISPR / Cas9 nasce dal sistema immunitario adattativo di Streptococcus pyogenes , che lo usa per difendere l'invasione di elementi genetici mobili come i fagi 20 , 21 , 22 . Questo sistema utilizza l'enzima Cas9 per l'endonucleasi del DNA guidato dall'RNA per introdurre la rottura del DNA a doppio filamento (DSB) nel bersaglio,Iris o dal NHEJ errato per inattivare i geni bersaglio attraverso corti mutazioni indel, o da una ricombinazione diretta da omologia per alterare il locus di destinazione esattamente come progettato 23 , 24 . La specificità di bersaglio è determinata da una piccola molecola di RNA denominata singola RNA guida (gRNA), che contiene una sequenza di 20 nt progettata individualmente che ha 100% omologia al DNA di destinazione 22 . La molecola del gRNA contiene anche delle firme riconosciute da Cas9 che guidano la nuclease al sito di destinazione, che include un particolare motivo adiacente Protospacer (PAM, la sequenza è 'NGG') 25 , 26 . Pertanto, la molecola di gRNA e la sequenza PAM lavorano insieme per determinare il sito di scissione Cas9 nel genoma. Si può facilmente cambiare la sequenza gRNA per individuare siti diversi per la scissione.
Quando il sistema CRISPR / Cas9 è stato sviluppato per la prima volta in ToxopLasma, è stato utilizzato un singolo plasmide che esprime la nuclease Cas9 e la molecola di gRNA per introdurre DSB nel punto di destinazione 13 , 17 . È stato dimostrato che il sistema CRISPR / Cas9 aumenta drasticamente l'efficienza della modificazione genomica del sito, non solo mediante ricombinazione omologa, ma anche integrazione non omologa del DNA esogeno 13 . Lo fa in ceppi di wildtype che contengono attività NHEJ. Pertanto, questo sistema può essere utilizzato in sostanzialmente qualsiasi ceppo di Toxoplasma per un efficiente editing del genoma. In un esperimento tipico, il plasmide specifico target CRISPR e il frammento DNA utilizzato per modificare l'obiettivo vengono co-trasfettati in parassiti. Se il frammento di DNA utilizzato per modificare il bersaglio contiene sequenze omologhe al luogo di destinazione, la ricombinazione omologa può essere utilizzata per riparare il DSB introdotto da CRISPR / Cas9 per consentire una precisa modifica del bersaglio. D'altra parte, se l'intFrammento di DNA generato non contiene sequenze omologhe, può ancora essere integrato nel sito di targeting CRISPR / Cas9. Questi ultimi sono spesso utilizzati per interrompere i geni mediante l'inserimento di marcatori selezionabili o per completare mutanti a loci che consentono la selezione negativa 13 . Qui il loco SNR1 serve come esempio per mostrare come CRISPR / Cas9 può essere utilizzato per la rottura genica e la generazione di parassiti transgenici.
Protocollo
1. Valutare SNF r nella progenie del cross ME49-FUDR r x VAND-SNF
NOTA: T. gondii è un parassita intracellulare obbligatorio e lo stadio di tachiozito cresce rapidamente nella coltura del tessuto.
- Per coltivare il parassita T. gondii , conservarli in coltura monolayer con fibroblasti umani confezionati a fiale T25 con supporti medi di Dulbecco's Modified Eagle's Medium (DMEM) integrati con 10% di FBS (D10 media) a 37 ° C e 5% CO 2 .
NOTA: vedere il protocollo 1.1 Nota nel file aggiuntivo 1 . - Per testare i cloni di progenie individuali per la resistenza ai sinefungini, far crescere ogni clone ad un'elevata densità di parassiti in una tazza di coltura T25 HFF per 2-3 d, finché la maggioranza dei parassiti inizia a lire le cellule ospite.
- Raschiare il monostrato con un raschiatore di celle e passare la soluzione parassita attraverso una siringa da 10 mL / 22 G ago a punta 2-3x tO lesse le cellule ospite che rilasciano i parassiti. La soluzione può essere tirata indietro nella siringa per passaggi multipli dell'ago.
- Filtrare la soluzione parassita in un nuovo tubo conico attraverso una membrana con dimensione dei pori di 3 μm per rimuovere le cellule HFF e detriti cellulari.
- Conta i parassiti su un emocitometro e determinare il numero di parassiti per ml.
- Usando un pipetta, passare i parassiti di 2,5 x 10 5 ad una nuova torre di coltura T25 HFF contenente il supporto D10 con concentrazione di lavoro di 0,3 μM del farmaco sinfunginico.
- Crescere i parassiti a 37 ° C e 5% di CO 2 per 7-10 d.
- Puntare la progenie per il fenotipo di crescita nel farmaco di sinefungina. Osservare il monostrato sotto un microscopio a contrasto di fase invertito e segnare 0 per nessuna crescita (sinefungina sensibile), punteggio 1 per la crescita e la lisi del monostrato (resistente allo sinefungina).
NOTA: vedere il protocollo 1.8 Nota nel file aggiuntivo 1 .
2. RUn a QTL Scansione del SNF r Fenotipo in R / qtl
NOTA: vedere il protocollo 2 Nota nel file aggiuntivo 1 .
- Installare il software di programmazione R in un computer locale. Vedi 27 .
- Eseguire R e installare il pacchetto 'qtl'. Esegui l'operazione dall'opzione "Pacchetti-> Installa pacchetti" dell'interfaccia R GUI oppure eseguire il seguente comando dalla riga di comando R (il primo simbolo ">" in ogni esempio indica l'inizio di un comando, per non essere copiato):
> install.packages ( "QTL")
NOTA: Una volta installati R e il pacchetto 'qtl', esistono due modi per eseguire R / qtl dalla riga di comando R o utilizzando un programma grafico GUI chiamato J / qtl 28 : vedere 29 per scaricare J / QTL. Questo protocollo fornirà la sintassi della riga di comando R / qtl con riferimento occasionale alla funzione equivalente in J / qtl. - Caricare il pacchetto 'qtl':
> Biblioteca (qtl)
NOTA: vedere il protocollo 2.3 Nota nel file aggiuntivo 1 per il formato dei dataset e per i download. - Caricare il file dataset in R / qtl.
- Per il formato "csv" (vedere: File di dati 1):
> SNFR <- read.cross (format = "csv", file = "$ PATH / Rqtl-SNFR.csv", genotypes = c ("0", "1"), na.strings = c , ConvertXdata = FALSE) - Oppure per il formato "gary" (vedere: File di dati 2):
> SNFR <- read.cross (formato = "gary", dir = "$ PATH", chridfile = "chrid.txt", mnamesfile = "mname.txt", mapfile = "markerpos.txt", genfile = "genotipo. Txt ", phefile =" phenos.txt ", pnamesfile =" fenonames.txt ", convertXdata = FALSE)
Dove $ PATH è il percorso della directory ai file che contengono il set di dati qtl. Ad esempio: / Users / HotDiggityDog / QTLfiles
NOTA: È anche possibile caricare i fileEd in J / qtl con i comandi precedenti usando l'opzione 'Inserisci Commento o Comando' o caricate i dati con l'opzione File-> Load Cross Data del GUI.
- Per il formato "csv" (vedere: File di dati 1):
- Calcola probabilità per la mappa:
> SNFR <- calc.genoprob (SNFR, passo = 2.0, off.end = 0.0, error.prob = 1.0E-4, map.function = "haldane", passwidth = "fisso") - Eseguire una singola scansione utilizzando una distribuzione binaria del fenotipo di resistenza sinefungina in tutti i cromosomi:
> SNFR.scan <- scanone (cross = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa" "X" "," X "", "XII"), pheno.col = c (1), modello = "binario", metodo = "em"
NOTA: se si esegue il phenotype VIR utilizza l'opzione di distribuzione "model =" normale ". - Esegui 1000 permute per calcolare le soglie di significatività e poi attrIbute le permutazioni alla variabile SNFR.scan:
> SNFR.scan.permutations <- scanone (cross = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI" = "Binary", = = "em", n.perm = "b", "b", "b", "VIIb", "VIII", "IX", "X", "XI" 1000, perm.Xsp = FALSE, verbose = FALSE)
> Attr (SNFR.scan, "pheno.col") <- c (1)
NOTA: i passaggi da 2.5 a 2.7 possono essere eseguiti in J / qtl con l'opzione 'Analysis-> Main Scan-> Run One QTL Genome Scan'. - Tracciare i risultati della scansione:
> Trama (SNFR.scan, gap = 0, bandcol = "grigio")
NOTA: la trama prodotta in J / qtl è interattiva.- Tracciare i risultati della scansione per il solo cromosoma IX, il cromosoma con il picco più alto:
> Plot (SNFR.scan, chr = c ("IX"), gap = 0, bandcol = "grigio", show.marker.names = TRUE)
- Tracciare i risultati della scansione per il solo cromosoma IX, il cromosoma con il picco più alto:
- Mostra tutte le posizioni dei marcatori ei punteggi LOD dalla singola scansione:
> SNFR.scan - Mostrare i risultati della soglia del test di permutazione:
> sintesi (SNFR.scan.permutations) - Mostra solo quei marcatori più alti del valore di soglia alpha = .05 (prelevato dall'output precedente):
> SNFR.scan [SNFR.scan $ lod> 2,68,] - Mostrare i marcatori con il punteggio LOD più alto su ciascun cromosoma:
> Sintesi (SNFR.scan) - Mostra quei marcatori che hanno il valore massimo del punteggio LOD (prelevato dall'output precedente):
> SNFR.scan [SNFR.scan $ lod> = 6,57,]
NOTA: vedere il protocollo 2.13 Nota nel file aggiuntivo 1 .
3. Identificare la mutazione causale di SNF utilizzando WGS Read from the Progeny
NOTA: vedere il protocollo 3 Nota nel file aggiuntivo 1 .
- Allineare le istruzioni WGS della progenie individuale al VAND sensibile al senofungina(VAND-SNF s ) genoma genitale.
NOTA: Scaricare il genoma di riferimento VAND (SNF) dall'Agenzia NCBI AEYJ00000000.2 e il WGS leggere (file .sra) per i 24 segmenti di NCBI SRA PRJNA258152. Inoltre scaricare i seguenti programmi: Bowtie2 11 , NCBI SRA Toolkit, SAMtools 30 , VarScan 12 e MUMmer 31 .- Creare un indice compatibile Bowtie 2 dal file FASTA del genoma di riferimento VAND utilizzando il programma bowtie2-build, qui denominato l'indice "VAND":
> Bowtie2-build GCA_000224845.2_TGVAND_v2_genomic.fna VAND - Convertire i file di lettura WGS formattati SRA in file FASTQ usando fastq-dump con l'opzione -split-files per letture associate (esempio SRR1555372.sra per la progenie P1_14VB):
> Fastq-dump --split-files SRR1555372.sra
NOTA: eseguire questo e tutti i seguenti comandi nel protocollo 3.1 per tutti i 24progenie. - Allineare le letture WGS al genoma di riferimento usando bowtie2 con l'output a un file SAM (.sam) e l'opzione end-to-end:
> Bowtie2 -x VAND -1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam - fine-to-end - Convertire il file .sam in un file BAM (.bam):
> Vista di samtools -bS SRR155372.sam> SRR155372.bam - Ordinare il file .bam:
> Samtools sort SRR155372.bam SRR155372.sort - Indice il file .bam ordinato:
> Indice samtools SRR155372.sort.bam
- Creare un indice compatibile Bowtie 2 dal file FASTA del genoma di riferimento VAND utilizzando il programma bowtie2-build, qui denominato l'indice "VAND":
- Chiamare SNP per la progenie utilizzando VarScan
NOTA: vedere il protocollo 3.2 Nota nel file aggiuntivo 1 .- Convertire tutti i file BAM (.sort.bam) indicizzati in un file formattato pileup utilizzando samtools mpileup con il file di riferimento del genoma VAND, tutti i file .sort.bam dei file e l'output in un file denominato AllProgeny-mpileup.txt:
> Samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599.Sort.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556200. Sort.bam SRR1556202.sort.bam SRR1556203.sort.bam SRR1556274.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556395.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556399. Sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - Chiamate tutti i SNP usando il programma VarPcan mpileup2snp usando il file AllProgeny-mpileup.txt, copertura minima di lettura di 5, frequenza minima variabile in letture di .8, valore p di .01 e output a nomi di file AllProgeny-SNPs. testo:
> Java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt - min-copertura 5 --min-var-freq .8 --p-valore .01> AllProgeny-SNPs.txt
NOTA: il file AllProgeny-SNPs.txt è un file di testo delimitato da tabulazioni che verrà utilizzato nel protocollo 3.4 per individuareIl SNP causale.
- Convertire tutti i file BAM (.sort.bam) indicizzati in un file formattato pileup utilizzando samtools mpileup con il file di riferimento del genoma VAND, tutti i file .sort.bam dei file e l'output in un file denominato AllProgeny-mpileup.txt:
- Trova le coordinate del genoma VAND che corrispondono alle coordinate del loco QTL basato su ME49
NOTA: vedere il protocollo 3.3 Nota nel file supplementare 1 .- Utilizzare il programma MUMmer nucmer per allineare il genoma ME49 (disponibile per il download da ToxoDB.org 32 ) e il file genoma di riferimento VAND (output va al file out.delta):
> Nucmer ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - Utilizzare il programma MUMmer show-coords per ottenere le coordinate dei due allineamenti genomici, in uscita su un file denominato ME49vsVAND-coords.txt:
> Show-coords out.delta> ME49vsVAND-coords.txt
NOTA: il file ME49vsVAND-coords.txt può essere utilizzato per trovare i Contig e le posizioni VAND corrispondenti al loco QTL; Marcatori MV359 a MV366 localizzati sul cromosoma IX ME49 tra 3.187.537 e 4.202.258 bp. Ci sono due contatti VAND che span la correspIn loco QTL; KN044604.1: 657,441-1 bp e KN042501.1: 430,910-41,870 bp (entrambi i contigamenti si allineano al contrario al cromosoma ME49).
- Utilizzare il programma MUMmer nucmer per allineare il genoma ME49 (disponibile per il download da ToxoDB.org 32 ) e il file genoma di riferimento VAND (output va al file out.delta):
- Valutare i SNP di progenie situati all'interno del locus QTL per SNP ereditati solo nel segmento r SNF
NOTA: vedere il protocollo 3.4 Nota nel file supplementare 1 .- Revisione del file di dati 3 per identificare la mutazione causale situata nel loco QTL. Eseguire la scansione dei dati per un modello in cui la progettazione di SNF r ha un SNP e le SNF s non (fattibile perché i SNP di progenie sono stati ottenuti in confronto al genoma di riferimento di VAND-SNF). Questo dovrebbe avere solo una posizione con questo modello, posizione 348130 su VAND contig KN042501.1.
- Vedere la riga 6604 nel file di dati 3 ( Figura 3 ).
NOTA: Vedere Protocollo 3.4.2 Nota nel file supplementare 1 .
4. Verifica dei colpi identificati da CRISPR / Cas9-Inattivazione genica mediata.
NOTA: per confermare il SNP causale identificato da mapping QTL e analisi SNP WGS, le corrispondenti modifiche genetiche devono essere effettuate in uno sfondo WT SNF e il fenotipo risultante esaminato. Nel caso della resistenza sinefungina, la mutazione responsabile provoca l'inattivazione del gene SNR1 mediante la terminazione precoce 2 . Pertanto, la confusione di SNR1 può essere utilizzata per la conferma. Qui viene fornito un protocollo dettagliato per l'utilizzo di mutazioni indel indotte da CRISPR / Cas9 per disturbare SNR1 , per dimostrare il suo coinvolgimento nella resistenza sinefungina ( Figura 4 ).
- SNR1 specifico costruzione di plasmide CRISPR
NOTA: Vedere il Protocollo 4.1 Nota nel File Supplementare 1 per ottenere plasmidi e mappe.- Ottenere la sequenza genomica per il gene target ( SNR1 , TGME49_290860) da ToxoDB 32 .
- Utilizza strumenti online come E-CRISP 33 per progettare i target gRNA specifici. Non includere la sequenza PAM (NGG) nel gRNA.
NOTA: vedere il protocollo 4.1.2 Nota nel file aggiuntivo 1 . - Sintetizzare i primers per costruire il plasmide specifico target CRISPR.
- Secondo il disegno di cui al punto 4.1.2, sintetizzare due primer per modificare il gRNA di targeting UPRT nel plasmide originale CRISPR alla sequenza gRNA selezionata per mutagenesi localizzata.
NOTA: Le sequenze di questi due primer sono le seguenti: gRNA-Fw: NNNNNNNNNNNNNNNNNNNNGTTTTAGAGCTAGAAATAGC (N20 è la sequenza gRNA specifica target) e gRNA-Rv: AACTTGACATCCCCATTTAC 2 .
- Secondo il disegno di cui al punto 4.1.2, sintetizzare due primer per modificare il gRNA di targeting UPRT nel plasmide originale CRISPR alla sequenza gRNA selezionata per mutagenesi localizzata.
- Eseguire le reazioni di mutagenesi dirette dal sito.
- Utilizzando il plasmide CRISPR di targeting UPRT (pSAG1 :: CAS9-U6 :: sgUPRT) come template ei due primer elencati in precedenza, eseguire reazioni di mutagenesi dirette al sitoSecondo le istruzioni del produttore.
NOTA: Utilizzare le seguenti condizioni di ciclo per PCR: 98 ° C per 1 min, seguita da 25 cicli di 98 ° C per 10 s, 55 ° C per 30 s e 72 ° C per 5 minuti, seguita da estensione finale per 2 min A 72 ° C.
- Utilizzando il plasmide CRISPR di targeting UPRT (pSAG1 :: CAS9-U6 :: sgUPRT) come template ei due primer elencati in precedenza, eseguire reazioni di mutagenesi dirette al sitoSecondo le istruzioni del produttore.
- Trasformare i prodotti di mutagenesi contenenti i plasmidi CRISPR specifici GOI a cellule competenti di E. coli mediante trasformazione chimica secondo il protocollo del fornitore (vedere tabelle dei materiali ). Crescere i trasformanti su piastri di lisinogenesi (LB) contenenti ampicillina (100 μg / mL) a 37 ° C. Successivamente, scelgono i cloni da 2 a 4 e li crescano individualmente in 5 ml di mezzo LB integrato con 100 μg / ml di ampicillina per 12-16 h.
- Estrarre i plasmidi dalle colture usando un kit di isolamento del DNA e analizzarli mediante elettroforesi del DNA per controllare la dimensione dei plasmidi (la dimensione del plasmide prevista è 9674 bp, utilizzare il plasmide originale CRISPR come control). Utilizzare il primer M13-Rev (5'-CAGGAAACAGCTATGACC) per sequenziare i plasmidi per confermare la sequenza gRNA specifica del bersaglio.
- Una volta identificati cloni positivi, memorizzare sia il DNA del plasmide a -20 ° C e la corrispondente cultura batterica a -80 ° C per un futuro impiego.
NOTA: Il plasmide CRISPR da utilizzare per la trasfezione deve essere sciolto in acqua deionizzata e la concentrazione determinata mediante spettrofotometria o un metodo alternativo.
- Una volta identificati cloni positivi, memorizzare sia il DNA del plasmide a -20 ° C e la corrispondente cultura batterica a -80 ° C per un futuro impiego.
- Estrarre i plasmidi dalle colture usando un kit di isolamento del DNA e analizzarli mediante elettroforesi del DNA per controllare la dimensione dei plasmidi (la dimensione del plasmide prevista è 9674 bp, utilizzare il plasmide originale CRISPR come control). Utilizzare il primer M13-Rev (5'-CAGGAAACAGCTATGACC) per sequenziare i plasmidi per confermare la sequenza gRNA specifica del bersaglio.
- Trasfezione del parassita.
NOTA: I metodi generali per la coltura di T. gondii nelle cellule HFF nel mezzo D10 sono stati descritti in precedenza 34 .- Due o tre giorni prima della trasfezione, aggiungere parassiti sufficienti a una tazza di T25 contenente un monolayer di cellule HFF confluenti (0,5-1 x 10 6 per ceppi di tipo 1, 1-2 x 10 6 per altri ceppi) per ottenere una percentuale di HFF da 70-80% Lisi entro 2-3 d.
- ExamiNe la cultura sotto un microscopio di contrasto a fase invertito, quando il monostrato HFF è 70-80% lisizzato dai parassiti. Rimuovere delicatamente il mezzo con una pipetta e lavare le cellule dalla superficie del pallone con 5 ml di citochimico buffer (120 mM KCl, 0,15 mM CaCl2, 10 mM K2HP04 / KH2 PO4 pH = 7,6, 25 mM HEPES, 2 MM EDTA, 5 mM MgCl2, pH = 7,6). Successivamente, trasferire la soluzione parassita in un tubo conico da 15 ml.
NOTA: vedere il protocollo 4.2.2 Nota nel file supplementare 1 . - Passare la soluzione parassita attraverso una siringa da 10 ml / 22 g ago sbarrato 2-3 volte.
- Filtrare la soluzione parassita in un nuovo tubo conico attraverso una membrana con dimensione dei pori di 3 μm per rimuovere le cellule HFF e detriti cellulari.
- Pellet i parassiti filtrati mediante centrifugazione a 400 xg per 10 min.
- Versare il supernatante e risospendere i parassiti pelletati con 10 mi di tampone citomico, prendere una aliquota da 10 μL aErmina la concentrazione di parassiti con un emocytometro e pellet il resto con centrifugazione a 400 g per 10 min.
- Rimuovere il surnatante e risospendere il pellet nel tampone citomico per ottenere una densità di 4 x 10 7 parassiti / mL.
- In una cuvetta di 4 mm, mescolare 250-300 μL di parassita (1-1,3 x 10 7 parassiti) con 7.5 μg di plasmide CRISPR, 6 μl di ATP (100 mM) e di 6 μl di glutatione (GSH) (250 mM).
- Elettroporare i parassiti 35 . Includere un'elettroporazione separata come un controllo negativo in cui un plasmide CRISPR si rivolge altrove, come ad esempio il targeting UPRT del plasmide CRIPSR.
NOTA: le impostazioni di elettroporazione dipendono dal dispositivo. Per l'elettropompa elencata nei Materiali utilizzare le cuvette a 4 mm. Si consiglia il seguente protocollo: 1.700 V, 176 μs di lunghezza dell'impulso, 2 impulsi con intervallo di 100 ms.
- Determinare la frequenza della resista sinefunginaNce dopo il targeting CRISPR.
- Le cellule HFF di Seed ai coperchi inseriti in piastre a 24 pozzetti 3-4 giorni prima dell'elettroporazione affinché siano confluenti entro il tempo per eseguire la trasfezione in 4.2.
- Trypsinizzare le cellule HFF da una fiala confluente T25 e successivamente aggiungere 12 ml di media D10 e mescolare bene.
- Aggiungere un coperchio a ciascun pozzetto di una piastra a 24 pozzetti e una aliquota di 500 μl di cellula HFF a ciascun pozzetto. Incubare la piastra a 37 ° C per 3 4 d per far crescere le cellule fino a confluire.
NOTA: le celle da una tampone T25 sono sufficienti a seminare una piastra a 24 pozzetti. - Aggiungere 50 μL di soluzione di parassiti elettroporata dalla fase 4.2.9 in un pozzetto di una piastra a 24 pozzetti contenente una copertura coperta da cellule HFF confluenti. Trasferire il resto della soluzione di parassita elettroporata in una tazza di T25 seminata con cellule HFF confluenti.
- Valutare l'efficienza della trasfezione.
- Crescere le cellule nel vassoio da 24 pozzetti per 24 oreE successivamente fissare le cellule (cellule ospite e parassiti) con 500 μl 4% di formaldeide per controllare l'espressione di Cas9-GFP mediante test immunofluorescenti (IFA).
- Sonda le cellule con un anticorpo anti-GFP e un anticorpo specifico Toxoplasma (come ad esempio anti-TgALD) per etichettare i parassiti totali. Vedere la scheda prodotto anticorpale per la diluizione consigliata (di solito, 1: 1,000 è sufficiente per IFAs). Se gli anticorpi non sono coniugati, utilizzare due diversi anticorpi secondari coniugati con coloranti fluorescenti per etichettare gli anticorpi primari.
- Osservare le celle etichettate su un microscopio fluorescente con filtri appropriati per i coloranti fluorescenti secondari. Ottenere l'efficienza della trasfusione dividendo il numero di parassiti positivi di GFP per il numero di parassiti totali.
NOTA: I due anticorpi utilizzati per IFA dovrebbero provenire da due diverse specie ospitanti, ad esempio utilizzando la combinazione di anti-GFP e anti-TgALD coniglio.
- Determinare la fResistenza della resina sinefungina nei parassiti transfettati.
- Per i parassiti trasfettati coltivati in tazze T25, li sviluppano per 2-3 d fino all'uscita naturale. Quindi raccogliere i parassiti, le cellule ospitanti lente lisce per rilasciare i parassiti intracellulari e purificarli per filtrazione attraverso membrane con dimensioni del pino di 3 μm. Conti i parassiti con un emocitometro per stimare la densità.
- Aggiungere parassiti purificati in piastre a 6 pozzetti seminate con cellule HFF confluenti: per la prima fila (3 pozzetti), aggiungere 200 parassiti / pozzetto e svilupparli in un normale mezzo D10 (2 mL / pozzetto); Per la seconda riga, aggiungere 5000 parassiti / pozzetto e svilupparli in mezzo D10 contenente sinefungina 0,3 μM.
- Mettere le piastre in un incubatore di CO 2 a 5% e sviluppare i parassiti a 37 ° C 8-10 d senza disturbi per consentire la formazione di placche. Fissare i campioni con etanolo al 70% (2 mL / pozzetto) e macchiare il monostrato con 0,1% di violetta di cristallo (2 mL / pozzetto). Lavare i pozzetti con acqua per visualizzareLe placche (zone chiare) formate dalla crescita dei parassiti.
NOTA: il controllo negativo deve essere elaborato nello stesso modo fianco a fianco.
- Calcolare la velocità della resistenza sinefungina indotta da CRISPR.
- Ottieni il numero medio (X) delle placche dai pozzetti che non contengono alcuna droga e calcolano la vitalità dei parassiti come X / 200. Ottieni il numero medio (Y) delle placche dai pozzetti contenenti sinefungina per calcolare la velocità della resistenza sinefungina indotta da CRISPR come segue:
Tasso di resistenza indotta da CRISPR = 200 × Y / (5000 × X × efficienza di trasfezione)
NOTA: L'efficienza di trasfezione è ottenuta in 4.3.2.
- Ottieni il numero medio (X) delle placche dai pozzetti che non contengono alcuna droga e calcolano la vitalità dei parassiti come X / 200. Ottieni il numero medio (Y) delle placche dai pozzetti contenenti sinefungina per calcolare la velocità della resistenza sinefungina indotta da CRISPR come segue:
- Le cellule HFF di Seed ai coperchi inseriti in piastre a 24 pozzetti 3-4 giorni prima dell'elettroporazione affinché siano confluenti entro il tempo per eseguire la trasfezione in 4.2.
- Esaminare le mutazioni indel indotte da CRISPR / Cas9
- Crescere i parassiti elettroporati dalla sezione 4.2.9 in una fiala T25 seminata con le cellule HFF per 2 giorni a 37 ° C. Quindi, sostituire il mezzo con 5 ml di media D10 contenente 0,3 μM sinefungina (mezzo di selezione).
- Mantenere i parassiti in mezzo di selezione per almeno 3 passaggi fino a che la piscina resistente diventa stabile (indicata dall'assenza di crescita di parassiti nel gruppo di controllo negativo ma robusta crescita del parassita nel gruppo sperimentale).
- Subclone la piscina resistente allo sinefungina per ottenere ceppi clonali.
- Raccogli i parassiti appena sfuggiti, purificare con filtrazione a membrana da 3 μm e subclone in piatti a 96 pozzetti seminati da cellule HFF confluenti in 150 μl di D10. Crescere le colture di subcloning in un incubatore di CO 2 a 37 ° C per 7-10 giorni senza disturbare le piastre.
NOTA: Vedere il protocollo 4.4.2.1 Nota nel file S upplementary 1 .
- Raccogli i parassiti appena sfuggiti, purificare con filtrazione a membrana da 3 μm e subclone in piatti a 96 pozzetti seminati da cellule HFF confluenti in 150 μl di D10. Crescere le colture di subcloning in un incubatore di CO 2 a 37 ° C per 7-10 giorni senza disturbare le piastre.
- Controllare le piastre a 96 pozzetti sotto un microscopio di contrasto di fase invertito per cercare i pozzetti che contengono una sola targa. Segnalare tali pozzetti e successivamente trasferire le cellule da ciascun pozzetto a piatti a 24 pozzetti seminati con le cellule HFF utilizzando una pipetta.
- Quando 80-90% delle cellule HFF in un pozzo vengono lisate, raccolgono i parassiti (circa 500 μL) e superano 50 μL di soluzione parassitaria a un nuovo pozzetto per mantenere il ceppo. Utilizzare il resto (≈450 μL) per estrarre il DNA genomico per l'amplificazione PCR.
- Per l'isolamento genomico del DNA dal clone SNF r , pelletare i parassiti (piccole quantità di contaminazione delle cellule HFF sono tollerabili) a 1000 xg per 10 min. Lavare i parassiti pelletati con soluzione salina fosfatica (PBS) una volta e ricoprire il pellet. Isolare il DNA genomico dalle cellule pelletate usando un kit commerciale o bollendo. Resuspendere i parassiti in 50-100 μL di PBS.
NOTA: eseguire il PCR per ottenere un frammento del gene SNR1 per il sequenziamento. Utilizzare i seguenti primer per amplificare il SNR1 locus 2 : SNR1-Amp-Fw: 5 'CCGACCACAA CAATTTTC e SNR1-Amp-Rv: 5'GACGTGATTCACTTTTTTACAGACAGAC. Utilizzare DNA polimerasi ad alta fedeltà. Amplificare il locus WT per scopi di controllo.
- Per l'isolamento genomico del DNA dal clone SNF r , pelletare i parassiti (piccole quantità di contaminazione delle cellule HFF sono tollerabili) a 1000 xg per 10 min. Lavare i parassiti pelletati con soluzione salina fosfatica (PBS) una volta e ricoprire il pellet. Isolare il DNA genomico dalle cellule pelletate usando un kit commerciale o bollendo. Resuspendere i parassiti in 50-100 μL di PBS.
- Eseguire tEgli PCR con volume di reazione di 20 μL e correggerlo con il seguente programma: 98 ° C per 1 min, seguito da 30 cicli di 98 ° C per 10 s, 55 ° C per 30 s e 72 ° C per 2,5 minuti, seguiti da Estensione finale per 2 min a 72 ° C.
NOTA: Sequenza dei prodotti PCR utilizzando i seguenti primer: SNR1-Seq1: 5 'GCC ACA TGC TTT AGC GTG, SNR1-Seq2: 5' TCC TCC CCA TCG CGG GTT GG, SNR1-SEQ3: 5 'GCA AGA GCC GCG TGA CG , SNR1-Seq4: 5 'CTC TCC CGC GGT CGA G, SNR1-Seq5: 5' GCA CCG TCC GCA AGC e SNR1-Seq6: 5 'CCG GAA GGT GAA TCG TTC TTC. - Confrontare le sequenze del gene SNR1 da mutanti resistenti a sinefungina a quella del ceppo WT utilizzando un attrezzo di allineamento delle sequenze.
NOTA: Vedere Protocollo Supplementare File 2 5 per i dettagli sull'utilizzo della selezione negativa al loco SNR1 per la complementazione genetica o la costruzione di strain transgenici.
- Crescere i parassiti elettroporati dalla sezione 4.2.9 in una fiala T25 seminata con le cellule HFF per 2 giorni a 37 ° C. Quindi, sostituire il mezzo con 5 ml di media D10 contenente 0,3 μM sinefungina (mezzo di selezione).
Risultati
Questo articolo descrive in dettaglio diversi metodi che possono essere usati in successione per identificare un gene responsabile della resistenza ai farmaci ( Figura 1 ). I 24 segmenti del cross ME49-FUDR r X VAND-SNF sono stati valutati per resistenza alla sinefungina farmacologica come descritto nel protocollo 1. Utilizzando la mappa genetica e il fenotipo SNF r della progenie, una scansione QTL è stata eseguita in R / Qtl - Protocollo 2 ( Figura 2 ). Ciò ha portato ad un picco significativo sul cromosoma IX che copre circa 1 Mbp. È in questa regione che si trova la mutazione causale.
Per identificare la mutazione causale, le istruzioni WGS dalla progenie sono state allineate al genoma di riferimento di VAND-SNF utilizzando Bowtie2 - Protocollo 3.1, SNP sono stati chiamati utilizzando VarScan mpileup2snp - Protocollo 3.2 e il loco QTL nel genoma VAND è stato identificato utilizzando MUMmer - ProtoCOl 3.3. Le SNP di progenie all'interno del loco QTL sono state estratte e scansionate per un modello in cui la progenie di SNF ha un SNP e le SNF s non, che è fattibile perché i SNP di progenie sono stati ottenuti in confronto al genoma di riferimento di VAND-SNF ( Figura 3 ) . Solo un SNP corrisponde a questo modello che produce un codone di arresto precoce in un gene trasportatore aminoacidico presunto denominato SNR1 .
La conferma che SNR1 è il gene di resistenza SNF r è stata eseguita usando il sistema CRISPR / Cas9. È stato fatto un nuovo plasmide CRISPR / Cas9 progettato per la modifica del gene T. gondii contenente un gRNA destinato al gene SNR1 vicino alla mutazione di SNF r identificata nella progenie - Protocollo 4 ( Figura 4A ). Il SNR1 targeting CRISPR / Cas9 è stato elettroporato in un ceppo di parete WT di SNF e mutanti resistenti sono stati ottenuti quando il cultoUfficio in 0,3 μM sinefungina. Nessun parassiti SNF r sono stati ottenuti quando sono stati electroporati con il targeting UPRT CRISPR / Cas9. Diversi mutanti SNF r CRISPR sono stati clonati e la regione intorno all'obiettivo SNR1 gRNA è stata sequenziata. Ogni mutante ha avuto un indel che ha interrotto la sequenza di codifica del gene SNR1 ( Figura 4B ). Questo metodo può anche essere utilizzato per inserire un costrutto di targeting nel loco SNR1 tramite NHEJ ( Figura 5), o da HR ( Figura 6 ) - Supplemento File 2 .
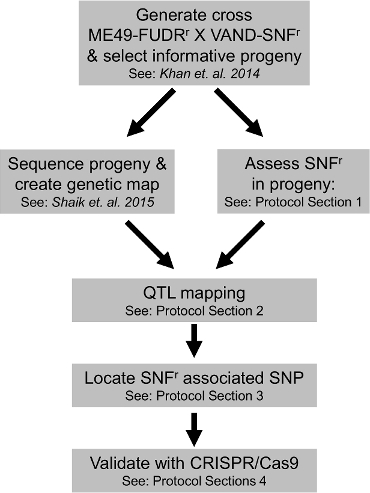
Figura 1: flusso di lavoro schema per gli esperimenti descritti nei protocolli. Le fasi principali per identificare e confermare il gene SNF r utilizzando il cross ME49-FUDR r X VAND-SNF sono mostrate con riferimento ai protocolli appropriati delineati inIl suo articolo. Clicca qui per visualizzare una versione più grande di questa figura.
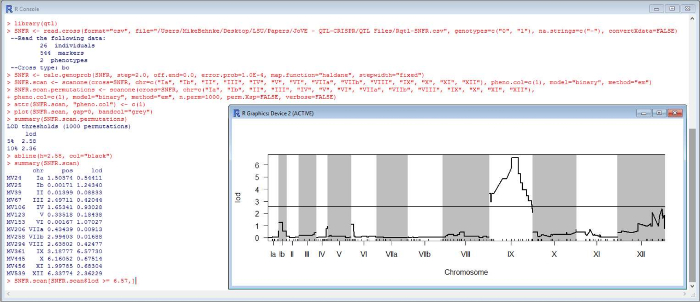
Figura 2: Comandi R / qtl per eseguire la scansione QTL sul fenotipo SNF. I comandi descritti nel protocollo 2 sono stati eseguiti in R utilizzando il pacchetto qtl. Sono mostrati i comandi e la trama rappresentativi. Clicca qui per visualizzare una versione più grande di questa figura.
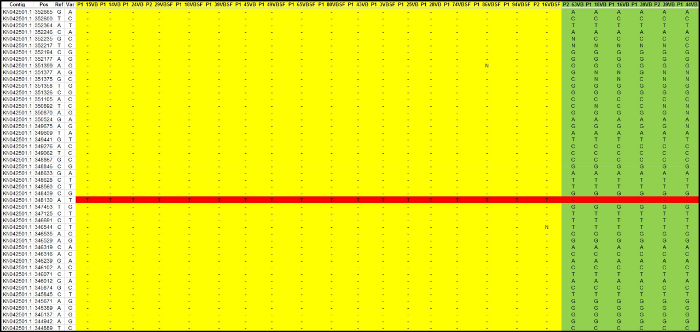
Figura 3: Posizione del SNP causale. Le letture WGS di progenie sono state allineate al genoma di riferimento di VAND-SNF con Bowtie 2, le SNP sono state chiamate con VarScan e il corrispondente Locus VAND QTL identificato con MUMmer. I SNP situati all'interno del loco QTL sono stati importati in un foglio di calcolo e il SNP causale è stato identificato. La progenie di SNF (giallo), la progenie di SNF (verde), SNF r SNP (rosso) (vedere il file di dati 3 ). Clicca qui per visualizzare una versione più grande di questa figura.
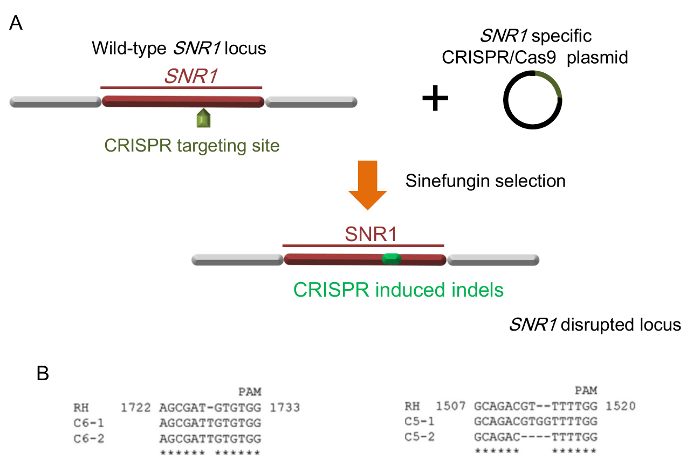
Figura 4: Confermare SNR1 come SNF r Gene utilizzando CRISPR / Cas9. ( A ) CRISPR / Cas9 indotto mutazioni indel (verde) nel SNR1 locus. ( B ) Indel rappresentativi in SNR1 causati da due diversi plasmidi SNR1 specifici CRISPR (rispettivamente C5 e C6). RH è il ceppo WT e C5 e C6 sono mutanti SNF r . (B è preso dal riferimentoS = "xref"> 2). Clicca qui per visualizzare una versione più grande di questa figura.
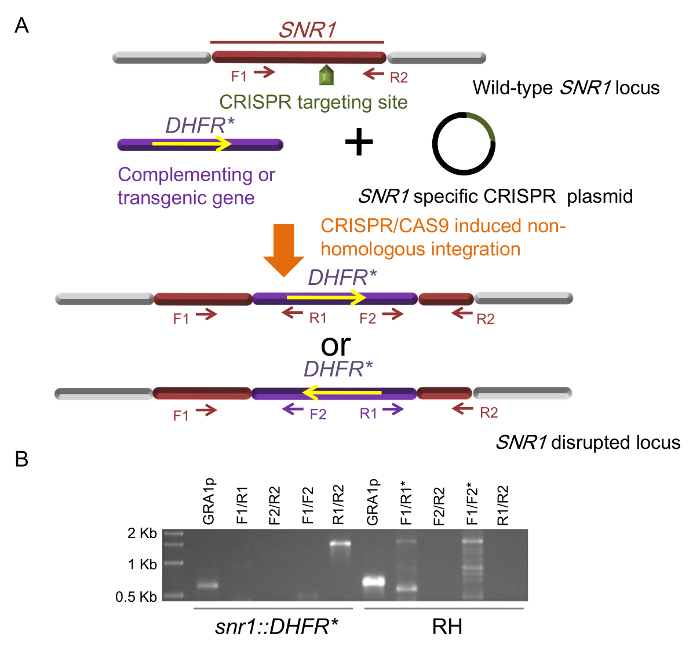
Figura 5. Mutagenesi inserita utilizzando CRISPR / Cas9. ( A ) Inserimento di geni complementari o transgenici nel loco SNR1 mediante l'integrazione specifica del sito mediata da CRISPR / Cas9. Due possibili orientamenti del gene DHFR * mini inserito ei primer utilizzati per l'identificazione, F1 / 2 e R1 / 2 rappresentano i siti di priming di oligos utilizzati in PCR diagnostici. ( B ) PCR diagnostici di un clone snr1 :: DHFR * , RH viene utilizzato come controllo WT. PCR del GRA1p è incluso come controllo che controlla la qualità del DNA genomico come template. Gli asterischi indicano corsie con bande non specifiche (la figura 5B è presa dal riferimentoCe 2 ). Clicca qui per visualizzare una versione più grande di questa figura.
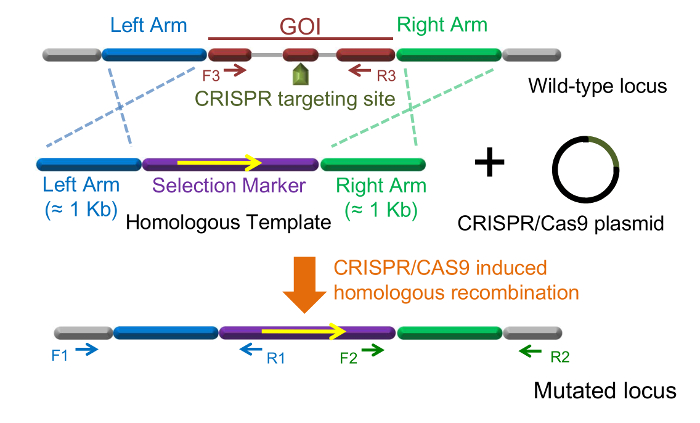
Figura 6: Knockout di geni utilizzando CRISPR / Cas9. Un design classico per la sostituzione del gene homologo mediato da CRISPR / Cas9 in T. gondii . In questo caso l'orientamento del transgene inserito è fisso. F1 / R1, F2 / R2 e F3 / R3 rappresentano i siti di priming di oligos utilizzati in PCR diagnostici. Clicca qui per visualizzare una versione più grande di questa figura.
File di dati 1: ME49-FUDR r X VAND-SNF r File traccia fO utilizzare in formato R / qtl, "csv". Un file .csv che può essere caricato in R / qtl con l'opzione format = "csv". Clicca qui per scaricare questo file.
File di dati 2: (testi chrid, genotype txt, markerpos.txt, mname.txt, phenonames.txt e phenos.txt). ME49-FUDR r X VAND-SNF r File Cross per l'uso in formato R / qtl, "gary". Sei file txt che possono essere caricati in R / qtl con l'opzione format = "gary". Clicca qui per scaricare questo file.
File di dati 3. Foglio di calcolo con SNP di progenie su SNF r QTL Locus. Contiene un foglio di lavoro con i SNP di progenie e un secondo foglio di lavoro con i dati fenotipici dei genitori e della progenie della croce. Clicca qui per scaricare questo file.
Supplementare File 1: Ulteriori dettagli del protocollo. Clicca qui per scaricare questo file.
Supplemento File 2: Protocollo 5 - Utilizzo della selezione negativa presso il SNR1 Locus per la compilazione genetica o la costruzione di tensione transgenica. Clicca qui per scaricare questo file.
Discussione
Questi protocolli presentano diversi metodi che quando combinati permettono l'identificazione di un gene di resistenza alla droga in T. gondii . Due in particolare erano parte integrante del progetto, il metodo relativamente stagionato della mappatura QTL e il metodo recentemente sviluppato di CRISPR / Cas9 gene edit. Lander e Botstein hanno pubblicato nel 1989 la loro carta influente che dimostra la mappatura QTL che correla loci genetici con i fenotipi 36 . Più recentemente nel 2012, Dounda e Charpentier descrivono il sistema di editing CRISPR / Cas9 in Streptococcus pyogenes 22, che è stato rapidamente adattato come strumento genetico in molti modelli diversi, tra cui T. gondii 13 , 17 . Entrambi i metodi sono stati utili qui, dove il mapping QTL ha definito il locus contenente la mutazione della resistenza al farmaco che è stato ultimamente identificato utilizzando il rilevamento SNP basato su WGS e la modifica CRISPR / Cas9 mi ha fornito Ans per confermare SNR1 è il gene di resistenza alla droga di sinefungin.
Il cross ME49-FUDR r X VAND-SNF r è stato sviluppato originariamente per interrogare un fenotipo di virulenza 19 , ma anche i ceppi genitori avevano una differenza fenotipica aggiuntiva per la quale il gene causale non era noto, resistenza sinefungina nel genitore VAND. Ciò evidenzia un vantaggio delle croci in quanto possono essere ripristinate quando si osservano ulteriori differenze fenotipiche nei genitori. Questo è stato il caso di un'altra croce di Toxoplasma , tipo 2 x tipo 3, in cui diversi geni coinvolti nella virulenza sono stati trovati mappando più fenotipi 37 , 38 , 39 , 40 . Ad oggi, quattro diverse croci T. gondii sono state descritte e utilizzate per mappare i geni responsabili dei fenotipiSs = "xref"> 8 , 37 , 41 , 42 , che hanno il potenziale per essere riutilizzati per mappare nuovi fenotipi per i quali la base genetica è sconosciuta. Al di là di queste linee, sono stati sequenziati i genomi per 62 ceppi T. gondii che rappresentano la diversità genetica globale nota 43 . Nuove croci potrebbero essere fatte da questa piscina per ceppi che si differenziano in fenotipi interessanti. Avendo esaltato i vantaggi della mappatura QTL, bisogna dire che generare una croce non è un'impresa minore. Esistono altri metodi che possono essere usati per identificare i geni causali. Una tecnica potente usa la mutagenesi chimica per creare mutanti che possono essere sottoposti a screening per fenotipi. Per trovare il gene causale, i mutanti possono essere completati con librerie cosmid 44 o metodi di resequencing del genoma possono essere utilizzati per trovare la mutazione causale 45 . Per moSu questo, vedi due articoli di JoVE di Coleman et al. E Walwyn et al. Che contraddistinguono questi approcci 46 , 47 .
Molti dei passaggi che conducono all'identificazione della mutazione causale SNF r (Protocolli 2 e 3) si basano su metodi computazionali condotti con software che è liberamente disponibile per uso accademico. Comandi dettagliati per ogni passaggio sono forniti e quando eseguiti con i file corretti consentiranno all'utente di ricreare i set di dati necessari per trovare il SNF causale SNP. Tieni presente che alcune delle sintassi nei comandi si riferiscono a nomi di file o struttura di directory ($ PATH) che possono essere modificati alla preferenza dell'utente. Sebbene i comandi qui riportati certamente non esauriscano le modalità di analisi di una croce con l'analisi QTL e l'identificazione SNP basata su WGS, sono abbastanza complesse per ripetere l'esperimento descritto in questo articolo e permettere all'utente di diventare m Conoscere come questi approcci vengono utilizzati in modo passato.
Sebbene la mappatura QTL e la rilevazione SNP basata sulla sequenza WGS fossero sufficienti per identificare un gene SNF r , ulteriori esperimenti sono necessari per confermare il suo ruolo nella resistenza ai farmaci. Ciò può essere dimostrato in modo convincente attraverso le tecniche di rottura o eliminazione del gene, entrambe che possono essere ottenute usando il montaggio di gene CRISPR / Cas9. I metodi dettagliati per utilizzare CRISPR / Cas9 per generare mutazioni indel o inserire i costrutti transgenici in un gene bersaglio in T. gondii sono dati. La specificità di targeting che CRISPR / Cas9 fornisce aumenta l'efficienza dell'editing genico rispetto ai metodi tradizionali. Inoltre, questo aumento efficacemente ha permesso di utilizzare ceppi non adattati a laboratorio per studi genetici precedentemente difficili da modificare 13 . Anche se nella sua infanzia, CRISPR / Cas9 è già stato usato per causare interruzioni genicheI geni del 17 , 18 , 48 , 49 , tag 17 , 18 , 48 , 49 e taggono i geni 16 , 19 , 50 , 51 , 52 , 53 , 54 in T. gondii , promettendo di essere uno strumento utile Per molti altri studi in futuro.
La scoperta che l' inattivazione SNR1 porta alla resistenza allo sinefungina rende il loco SNR1 un luogo promettente per l'inserimento di transgene o il complementamento genetico. Per massimizzare il successo dell'utilizzo di target genico mediato da CRISPR / Cas9 per dirigere l'integrazione del transgene nel SNR1 , occorre considerare i seguenti aspettiRosso durante la progettazione sperimentale. Innanzitutto, è consigliabile utilizzare un marker di selezione per essere incluso nel costrutto transgenico per aumentare l'efficienza della costruzione del ceppo. Se è incluso un marker di selezione, è possibile utilizzare sia la selezione positiva che negativa, con il risultato che quasi il 100% dei parassiti doppiamente selezionati è transgenico con il GOI integrato al loco SNR1 . Al contrario, se il costrutto transgenico non contiene ulteriori caratteristiche selezionabili e si basa sulla selezione negativa al SNR1 locus, l'efficienza di una transgenesi riuscita dipende in larga misura dall'efficienza della cotransfezione del plasmide CRISPR e del costrutto transgenico.
In secondo luogo, sebbene l'integrazione specifica del sito di un frammento di DNA non omologo mediata da CRISPR / Cas9 è spesso utilizzata per il complementamento e la trasgenesia, si deve notare che l'orientamento dell'inserzione non può essere garantito in casi come la direzione è possibile. Questo può causare problemiMs ad alcune applicazioni. Ad esempio, per completare un mutante con diversi alleli del gene, è difficile garantire che tutti gli alleli siano inseriti nello stesso orientamento e le discrepanze nell'orientamento possono causare differenze di espressione. Per questo tipo di applicazione, sono consigliati i costrutti di DNA con sequenze omologhe al loco SNR1 , che guidano l'orientamento adeguato dell'integrazione ( Figura 6 ).
In terzo luogo, durante la trasfezione, il rapporto tra il plasmide CRISPR e la molecola del DNA transgenico è fondamentale per una buona costruzione di ceppi transgenici. Questo rapporto deve essere regolato in base alle strategie di selezione. Sono consigliate le seguenti linee guida: 1) Se il costrutto transgenico contiene un marcatore resistente alla droga e il farmaco corrispondente è l'unica selezione utilizzata per generare parassiti transgenici, vale a dire la sinefungina non viene utilizzata, il rapporto molare suggerito tra il trapianto transgenico e il plasma CRISPRId è 1: 5. Utilizzando più plasmide CRISPR in questo caso aumenta la probabilità che i parassiti riceventi del costrutto transgenico riceveranno anche il plasmide CRISPR, quindi i parassiti resistenti al farmaco hanno maggiori probabilità di avere il marker inserito nel sito di targeting CRISPR. Se il rapporto è invertito, la maggior parte dei parassiti che ricevono il costrutto transgenico non otterrà il plasmide CRISPR. Di conseguenza, la stragrande maggioranza dei parassiti resistenti alla droga ottengono il costrutto transgenico attraverso l'integrazione casuale non associata all'inserimento specifico del sito mediato da CRISPR / CAS9. 2) Se il costrutto transgenico contiene un marker resistente alla droga e il farmaco corrispondente viene utilizzato insieme a sinefungina per la selezione dei parassiti transgenici, il rapporto molare suggerito tra il trapianto transgenico e il plasmide CRISPR è 1: 1. Questa strategia fornisce la massima efficienza della costruzione di ceppi transgenici. 3) Se il costrutto transgenico non contiene un creatore selezionabile, basandosi su selezione negativaDa sinefungina da solo per ottenere parassiti transgenici, il rapporto molare suggerito tra il trapianto transgenico e il plasmide CRISPR è di 5: 1. La logica di questo progetto è la stessa che nella prima linea guida sopra riportata. Poiché sia la pirimetamina sia la sinefungina sono state utilizzate per la selezione nel protocollo 5, il rapporto tra il gene DHFR * mini e il SNR1 targeting CRISPR è stato impostato come 1: 1.
Considerati insieme, i metodi illustrati qui presentano un livello di dettaglio che non è stato possibile trasmettere nella pubblicazione originale che ha identificato SNR1 2 . Questi protocolli; In particolare, la sintassi della riga di comando, il layout sequenziale dei programmi utilizzati e l'uso di CRISPR / Cas9 dovrebbero aiutare gli sforzi futuri per identificare nuovi geni responsabili dei fenotipi.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari concorrenti.
Ringraziamenti
Vorremmo ringraziare L. David Sibley e Asis Khan per il loro contributo alla pubblicazione originale su cui si basano questi protocolli. Questo lavoro è stato finanziato dal National Institutes of Health AI108721.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Fiasche T25 | Corning | 430639 | |
| Fibroblasti del prepuzio umano (HFF) | ATCC SCRC-1041 | ||
| T. gondii ME49 ceppo | ATCC | 50840 | |
| T. gondiiVAND ceppo | ATCC | PRA-344 | |
| DMEM (senza bicarbonato di sodio) | 12800017 | ||
| Bicarbonato di sodio | Sigma Aldrich | S5761 | |
| HEPES | Sigma Aldrich | H3375 | |
| Siero fetale bovino (FBS) Grado premium | VWR International | 97068-085 | |
| L-Glutammina 200 mM | Sigma Aldrich | G7513 | |
| Gentamicina (10 mg/mL) | Life Technologies | ||
| Raschietto cellulare 15710064 per fiaschi | VWR International | 10062-904 | |
| Siringa 10 mL | BD | 309604 | |
| aghi smussati 22 G x 1" | BRICO Products | BN2210 | |
| Filtro nucleporo 3.0 &; m, 25 mm | GE Healthcare | 110612 | |
| Portafiltro Swin-Lok 25 mm | GE Healthcare | 420200 | |
| Ematocitometro | Propper MFG | 90001 | |
| Sinefungin | Enzo Life Sciences | 380-070-M001 | |
| R | La Fondazione R | https://www.r-project.org/ | |
| J/qtl | Il Gruppo Churchill | http://churchill.jax.org/software/jqtl.shtml | |
| Bowtie2 | John Hopkins University | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI SRA Toolkit | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | Wellcome Trust Sanger Institute | http://www.htslib.org/ | |
| VarScan | Washington University, St Louis | http://varscan.sourceforge.net/ | |
| MUMmer | JCVI & Univ Hamburg | http://mummer.sourceforge.net/ | |
| pSAG1::CAS9-U6::sgUPRT | Addgene | Plasmid #54467 | T. gondii Plasmide CRISPR per tagliare il gene UPRT |
| pSAG1::CAS9-U6::sg290860-6 | Addgene | Plasmid #59855 | T. gondii Plasmide CRISPR per tagliare il gene TG*_290860 SNR1 |
| pUPRT::D HFR-D | Addgene | Plasmid #58528 | Modello per DHFR* mini gene |
| Q5 Kit di mutagenesi sito-specifica. | New England Biolabs | E0552S | |
| QIAprep Spin Miniprep Kit | QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LB Brodo | Fisher Scientific | DF0446-07-5 | |
| Cloruro di potassio | Sigma Aldrich | P9541 | |
| Cloruro di calcio | Sigma Aldrich | 746495 | |
| Fosfato di potassio monobasico | Sigma Aldrich | P9791 | |
| Fosfato di potassio bibasico | Sigma Aldrich | P5504 | |
| EDTA | Sigma | Aldrich E5134 | |
| Cloruro di magnesio | Sigma Aldrich | M1028 | |
| Adenosina triposhpate (ATP) | Sigma Aldrich | A6419 | |
| L-glutatione (GSH) | Sigma Aldrich | G4251 | |
| ECM 830 Sistema di elettroporazione | BTX | 45-0002 | |
| Cuvetta per elettroporazione da 4 mm | Apparato Harvard | 45-0126 | |
| Crytal Violet | Alfa Aesar | B21932-14 | |
| Piastra TC a 6 pozzetti | Corning | 353046 | |
| Piastra TC a 24 pozzetti | Corning | 353935 | |
| Vetro di copertura 12 mm rotondo | VWR International | 89015-724 | |
| piastra TC a 96 pozzetti | Corning | 353075 | |
| Gibson Assembly Cloning Kit (multiframmento) | New England Biolabs | E5510S | |
| Q5 Polimerasi ad alta fedeltà | New England Biolabs | M0491S | |
| Pirimetamina | TCI AMERICA | P2037-1G | Utilizzare cuation quando si utilizzano parassiti resistenti alla pirimetamina - vedi protocollo |
Riferimenti
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
Ristampe e permessi
