L'architettura dei complessi della proteina è essenziale per la loro funzione. Combinando varie tecniche di spettrometrihe di massa ha dimostrato potente per studiare il loro assemblaggio. Forniamo i protocolli per reticolazione chimica e spettrometria di massa nativa e mostrare come queste tecniche complementari consentono a delucidare l'architettura delle assemblee multi-unità secondaria della proteina.
Articolo metodologico
Che unisce la reticolazione chimica e spettrometria di massa dei complessi della proteina intatta per studiare l'architettura delle assemblee multi-unità secondaria della proteina
* These authors contributed equally
In questo articolo
Sommario
Abstract
Le proteine interagiscono con i loro ligandi agli assembly attiva e dinamica della forma che svolgono varie funzioni cellulari. Delucidamento queste interazioni è quindi fondamentale per la comprensione dei processi cellulari. Tuttavia, molti complessi proteici sono assembly dinamici e non sono accessibili mediante tecniche strutturali convenzionali. Spettrometria di massa contribuisce all'indagine strutturale di queste assemblee, e in particolare la combinazione di varie tecniche di spettrometrihe di massa fornisce informazioni preziose nella loro disposizione strutturale.
In questo articolo, descriviamo l'applicazione e la combinazione di due tecniche complementari di spettrometrihe di massa, vale a dire reticolazione chimica accoppiato con spettrometria di massa e spettrometria di massa nativa. Cross-linking chimico coinvolge il legame covalente di aminoacidi nelle immediate vicinanze utilizzando reagenti chimici. Dopo digestione con le proteasi, reticolato di-peptidi sono identificati mediante spettrometria di massa e siti di interazioni di proteine sono scoperti. Spettrometria di massa nativa è d'altra parte l'analisi degli assiemi di proteine intatte in fase gassosa di uno spettrometro di massa. Esso rivela stoichiometries proteina così come interazioni proteina e ligando. Entrambe le tecniche pertanto forniscono informazioni complementari sulla struttura della proteina-ligando assembly e loro combinazione si è rivelata potente negli studi precedenti.
Introduzione
L'indagine strutturale degli assembly di proteina è diventato particolarmente importante per la comprensione dei processi cellulari. Di conseguenza, molti, tecniche sviluppate e migliorate in biologia strutturale1. Tuttavia, queste tecniche a volte sono limitate nella loro applicazione a causa della dimensione, flessibilità o eterogeneità dei complessi della proteina in esame. Spettrometria di massa può affrontare queste sfide e, di conseguenza, è emerso come un potente strumento in biologia strutturale2,3,4,5. Il grande vantaggio di spettrometria di massa, tuttavia, è la capacità di identificare inequivocabilmente proteine anche in miscele complesse ed eterogenee6. A tal fine, proteine solitamente vengono digerite con endoproteinases e la miscela peptidica risultante è separata mediante cromatografia liquida ed eluita direttamente nello spettrometro di massa. Le masse del peptide sono successivamente determinate e ioni precursori sono stati selezionati per ulteriore frammentazione dei peptidi. Le proteine sono quindi identificate di ricerca peptide e corrispondente frammento masse contro un database conosciuto. Questa procedura consente non solo l'identificazione di peptidi e proteine, ma anche loro modificazioni post-traduzionali che causano uno spostamento di massa di peptidi precursori e gli ioni frammento che trasportano la modifica7. Alcune delle molte tecniche di spettrometria di massa strutturale si basano su questo principio4,8. Per esempio, etichettatura tecniche quali idrogeno deuterio cambio9,10, chimica d'etichettatura strategie11,12, o radicale ossidrile piede stampa13,14 , dare spunti l'accessibilità superficiale delle proteine in determinate condizioni.
Un'altra tecnica è (chimica), cross-linking che coinvolge il legame covalente di aminoacidi in prossimità attraverso loro gruppi funzionali. Per questo, reagenti chimici, UV-activatable reagenti o gli aminoacidi sono impiegati15,16. Dopo cross-linking, le proteine sono solitamente idrolizzate con le proteasi e reticolato di-peptidi sono analizzati mediante spettrometria di massa accoppiata di cromatografia liquida. L'identificazione dei prodotti cross-linking di database di ricerca, tuttavia, richiede l'uso di software specializzato che concatenare sequenze peptidiche di varie proteine e regioni più disparate17,18,19. L'uso di linkers chimica ha il vantaggio che può essere impiegato per quasi ogni complesso di proteine di interesse e non richiede l'incorporazione di UV-activatable amino acidi, che può essere raggiunto solo quando esprimenti la proteina di interesse in cellule ospiti. Come tale, cross-linking è uno strumento versatile ed è stato impiegato con successo in molti studi strutturali di proteine anche grandi assemblee20.
Spettrometria di massa di complessi di proteine intatte (a volte chiamato "nativa" spettrometria di massa), d'altra parte, comporta l'analisi di proteine intatte e complessi proteici senza idrolisi in peptidi. Esso rivela la composizione, eterogeneità, stechiometria, topologia e interazioni di subunità della proteina complessi21,22. In combinazione con mobilità dello ione, spettrometria di massa nativa ulteriormente consente la determinazione del loro conformazione23,24. Questo lo rende un potente strumento per l'indagine strutturale dei complessi della proteina che sono difficili da valutare mediante tecniche strutturali convenzionali. Tuttavia, spettrometria di massa nativa richiede buffer di analisi che mantenere interazioni non-covalenti proteina durante la ionizzazione electrospray. Normalmente ciò viene ottenuto utilizzando tamponi acquosi, volatili come ammonio acetato25. Inoltre, strumento modifiche sono necessarie per impedire la dissociazione durante la trasmissione in fase gassosa di spettrometro di massa26. Applicato in questo modo, molti complessi proteici (grande) sono stati analizzati. Gli esempi impressionanti sono gli studi di ribosomi intatto27, ATP sintasi28o virus29.
La combinazione di spettrometria di massa nativa e cross-linking si è rivelata particolarmente riuscita negli studi precedenti. Per esempio, il stoichiometries dei complessi di chaperone, tra cui un dimero di Hsp70 imprevisto, potrebbe essere ottenuta da esperimenti di spettrometria di massa dei complessi della proteina intatta, mentre la reticolazione chimica ha rivelato il regime delle proteine nella gli assembly30,31. In uno studio differente, sono stati studiati gli effetti delle modificazioni post-traduzionali su un intatto trifosfato di adenosina synthase complesso. Spettrometria di massa nativa fornito le comprensioni nella stabilità del complesso della proteina in presenza o assenza di fosforilazione o acetilazione32,33. Un comparativo cross-linking strategia34 poi rivelato cambiamenti conformazionali della proteina complessa nelle diverse condizioni.
Qui, forniamo i protocolli per l'identificazione di proteine di spettrometria di massa, cross-linking (chimica) e spettrometria di massa nativa, tra cui l'analisi dei dati e interpretazione (Figura 1). La combinazione di risultati complementari ottenuti da questi metodi con l'aiuto di due complessi di proteine ben caratterizzati è dimostrata35. Il nostro protocollo può essere applicato a qualsiasi assembly di proteina che può essere purificato a certa purezza e concentrazione. L'approccio è in alcuni casi limitati dalla analisi dei dati di cross-linking dei dati, vale a dire, la dimensione del database impiegato, che determina la necessaria ricerca spazio e nel tempo. Inoltre, convalida manuale di legami incrociati identificati è richiesto spesso e riduce ulteriormente l'output. Spettrometria di massa nativa è limitata principalmente dalla qualità del campione, per esempio, buffer e addotti utilizzato durante la purificazione e la possibilità di scambiarli da tamponi acquosi e volatili. Tuttavia, complessi proteici purificati per l'analisi strutturale di solito hanno la qualità richiesta per l'analisi di successo con i nostri protocolli.
Protocollo
1. purificazione di complessi proteici
- Preparare proteina complessa secondo protocolli standard ottimizzati.
Nota: Il protocollo è dimostrato qui con il complesso RvB1/B2 da Chaetomium Chloracidobacterium e il carbamoil fosfato sintetasi (CPS) da Escherichia coli. RvB1/B2 e CPS sono state purificate come descritto36,37. Ogni proteina complessa richiede un protocollo di purificazione individuali. Regolare di conseguenza il protocollo. Privo di ammina buffer come tampone fosfato salino (PBS) o l'acido 2-[4-(2-hydroxyethyl)piperazin-1-yl]ethanesulfonic (HEPES) deve essere utilizzato per la reticolazione chimica. Se possibile, sostituire il buffer durante la purificazione.
Attenzione: Non applicare i metodi o i reagenti che disturbano l'assembly nativo del complesso proteico.
2. identificazione delle proteine basati sulla spettrometria di massa
-
Elettroforesi del gel
Nota: Sono disponibili sistemi di gel diversi e ogni laboratorio utilizza il proprio programma di installazione. Regolare le condizioni secondo il sistema gel. Indossare guanti e camice da laboratorio in tutto il protocollo come le cheratine sono tra i contaminanti più comuni nell'analisi di spettrometria di massa.- Applicare 20 µ l di campione di proteina 7,5 µ l 4 x sample buffer e 3 µ l 10x riducente (concentrazione finale 50 mM dithiothreitol (DTT)). Utilizzare 10 µM CPS o 2,5 µM RvB1/B2. Rotazione verso il basso per 1 min a 16.200 × g e calore per 10 min a 70 ° C.
Nota: Quando diversi gel un sistema regolare i volumi richiesti e la temperatura di riscaldamento. - Preparare un gel di pendenza di 4-12% per l'elettroforesi. Diluire il tampone di corsa 20 volte con acqua e riempire la camera di elettroforesi. Uso 2-(N-morfolino) ethanesulfonic acido (MES) tampone per le proteine di peso molecolare più piccola (2-200 kDa) e 3-(N-morfolino) acido propansulfonico (MOPS) del buffer per le proteine più grandi (14-200 kDa). Aggiungere antiossidanti 0,5 mL alla camera interna.
Nota: Utilizzando un sistema di diversi gel quando preparare buffer in esecuzione e il gel secondo i protocolli del produttore. - Un marcatore adatto della proteina (pre-macchiati, senza macchiate, diverse dimensioni molecolari) nella cavità prima di caricare e caricare i campioni della proteina nelle cavità rimanenti.
- Proteine separate per 35 min (MES) o 50 min (MOPS) a 200 V.
Nota: Regolare i tempi di elettroforesi e tensione per sistemi diversi gel. - Per macchiare le bande proteiche, trasferire il gel in un gel che macchia casella e coprire il gel con un Coomassie acquosa soluzione di colorazione. Incubi durante la notte e a temperatura ambiente in un agitatore orizzontale gel.
- Decolorare il gel sostituendo la soluzione colorante con acqua. Ripetere questo passaggio più volte (circa 3 - 5 volte) fino a quando lo sfondo di gel appare chiaro.
- Applicare 20 µ l di campione di proteina 7,5 µ l 4 x sample buffer e 3 µ l 10x riducente (concentrazione finale 50 mM dithiothreitol (DTT)). Utilizzare 10 µM CPS o 2,5 µM RvB1/B2. Rotazione verso il basso per 1 min a 16.200 × g e calore per 10 min a 70 ° C.
-
Digestione in-gel
Nota: Per evitare contaminazioni, utilizzare solventi di grado HPLC in tutto il protocollo di digestione e per tutte le fasi successive (cioè, analisi di spettrometria di massa). Preparare tutte le soluzioni prima dell'uso e acqua filtrata e bicarbonato d'ammonio.- Taglio le bande proteiche che sono visualizzate di Coomassie blu macchia dal gel usando un bisturi. Tagliare con cura le bande proteiche a pezzetti di circa 1 mm × 1 mm. Sciacquare il bisturi con acqua tra bande proteiche diverse. Lavare le bande di gel con acqua e acetonitrile (ACN).
- Ridurre i legami disolfuro con DTT, alchilata residui di cisteina con iodoacetamide e digerire proteine con tripsina come descritto in precedenza38; solitamente viene utilizzato un rapporto enzima: proteina di 01:20 fino a 1: 100. Usare bicarbonato di ammonio 100 mM durante il protocollo di digestione.
- Estratto di peptidi in due passaggi.
- In primo luogo Incubare i pezzi gel con bicarbonato d'ammonio e ACN e raccogliere il surnatante del peptide-contenente. In secondo luogo, incubare i pezzi gel con 5% (v/v) di acido formico e ACN. Incubare per 15 minuti ad ogni passo. Combinare entrambi i surnatanti. Asciugare i peptidi estratti facendo evaporare i solventi in una centrifuga vuoto.
Nota: Peptidi secchi possono essere memorizzati a-20 ° C per diversi mesi.
- In primo luogo Incubare i pezzi gel con bicarbonato d'ammonio e ACN e raccogliere il surnatante del peptide-contenente. In secondo luogo, incubare i pezzi gel con 5% (v/v) di acido formico e ACN. Incubare per 15 minuti ad ogni passo. Combinare entrambi i surnatanti. Asciugare i peptidi estratti facendo evaporare i solventi in una centrifuga vuoto.
-
Spettrometria di massa accoppiata di cromatografia a fase mobile liquida
- Sciogliere i peptidi secchi in 2% ACN/0.1% acido formico. Sciogliere i peptidi in un bagno di sonicazione per 2-3 min e spin giù in una centrifuga a 16.200 x g per 30 min. trasferimento dei campioni in fiale autocampionatore.
Nota: Regolare il volume in base alla quantità di proteina. Per ben colorate bande di Coomassie usiamo 20 µ l. - Iniettare 5 µ l di campione per il sistema di nano-LC-MS/MS utilizzando l'autocampionatore. Caricare la miscela peptidica su una pre-colonna in fase inversa C18 (C18, 150 µm I.D., 2 cm, la dimensione dei pori di 5 µm) per dissalare e concentrare i peptidi online.
- Utilizzare acido formico 0.1% (v/v) come fase mobile A e 80% (v/v) ACN/0.1% acido formico come mobile fase B. Separate i peptidi su una colonna in fase inversa C18 analitica (C18, 75 µm I.D., 50 cm, formato del poro 3 µm) utilizzando un gradiente di B 4-80% (contenente acido formico 0.1%) a 300 nL / min oltre 65 min.
Nota: Una sorgente di ioni nanospray viene utilizzata per trasferire peptidi eluiti nello spettrometro di massa. - Utilizzare le condizioni di MS (tipiche): spruzzare tensione di 1.6 kV; capillare temperatura di 250 ° C; energia di collisione normalizzato di 30. Azionare lo spettrometro di massa in modalità dati-dipendente.
- Acquisire gli spettri MS nell'analizzatore di massa (ad es., orbitrap) (m/z 350−1, 600) con una risoluzione di 70.000 e una destinazione di controllo automatico del guadagno di 3 x 10⁶. Selezionare 20 degli ioni più intensi per frammentazione HCD a una destinazione di controllo automatico del guadagno di 1 x 10⁵. Dinamicamente Escludi selezionati in precedenza ioni per 30 s. escludere singolarmente addebitato ioni così come gli ioni con carica non riconosciuto.
Nota: Calibrazione interna degli spettri totali è stata effettuata usando il blocco opzione massa39.
- Sciogliere i peptidi secchi in 2% ACN/0.1% acido formico. Sciogliere i peptidi in un bagno di sonicazione per 2-3 min e spin giù in una centrifuga a 16.200 x g per 30 min. trasferimento dei campioni in fiale autocampionatore.
-
Ricerca database
Nota: È disponibile per la ricerca database software diversi. MaxQuant40, ad esempio, è liberamente disponibile.- Convertire file RAW in .mgf file utilizzando uno strumento di conversione di pXtract (http://pfind.ict.ac.cn/downloads.html).
- Eseguire la ricerca nel database utilizzando i parametri di ricerca tipico: Database, swissprot; tolleranza di massa del peptide, 10 ppm; tolleranza di massa frammento, Da 0,5; enzima, tripsina; siti di fenditura perse, 2; modifiche variabile, carbamidomethylation (cisteina) e ossidazione (metionina).
Nota: Modificare i parametri di ricerca in base alle impostazioni sperimentali. - Controllare il risultato di ricerca del database. Valutare il Punteggio di proteina, numero dei peptidi identificati, gol di peptide e accuratezza di massa; la copertura di sequenza restituisce la copertura di proteine identificata.
Nota: Ogni motore di ricerca dispone di un algoritmo di Punteggio individuo. Valutare il sistema di punteggio per la qualità degli spettri di massa tandem osservato di peptide. I principali segnali di un buon spettro dovrebbero mostrare serie dello ione (completo) per verificare il peptide identificato. Di solito il punteggio del peptide è probabilistico, cioè, il punteggio del peptide è una misura per quanto probabilmente la sequenza del peptide identificato corrisponde lo spettro ottenuto. Il Punteggio di proteina è derivato solitamente da punteggi di peptide e viene utilizzato per classificare una proteina in un elenco di proteine identificate.
3. spettrometria totale dei complessi della proteina intatta (spettrometria di massa nativo)
- Preparazione degli emettitori rivestito in oro per ionizzazione electrospray
- Utilizzare un estrattore micropipetta per preparare gli emettitori di nanoflow di tubi capillari in vetro come descritto in precedenza25,41. Utilizzare i capillari borosilicato con un diametro interno di 0.78 mm.
Nota: Modificando i parametri per la trazione dell'ago, la forma della punta e la dimensione può essere modificati e regolati per il campione. Capillari con diversi interna diametro e spessore sono disponibili. - Rivestire i capillari di vetro con materiale conduttivo (ad esempio, oro o palladio); l'uso di una macchina a Polverizzi generando un plasma oro è comune. Seguire le istruzioni del produttore per ottenere rivestimento di buona qualità.
Nota: Il rivestimento deve essere sufficiente per ottenere uno spruzzo stabile quando l'applicazione di tensioni capillare comuni (Vedi sotto).
- Utilizzare un estrattore micropipetta per preparare gli emettitori di nanoflow di tubi capillari in vetro come descritto in precedenza25,41. Utilizzare i capillari borosilicato con un diametro interno di 0.78 mm.
- Preparazione del campione per la spettrometria di massa nativa
Nota: Sali, detergenti o grandi quantità di glicerolo non sono compatibili con ionizzazione electrospray. Di conseguenza, il buffer di purificazione viene scambiato da un buffer di volatile, acquoso. 200 millimetri di acetato di ammonio sono comunemente usato. Utilizzare colonne di dimensioni esclusione centrifuga o dispositivi di ultrafiltrazione per lo scambio di buffer. In alcuni casi, stabilità del complesso o attività potrebbe essere influenzato da cambio buffer. Valutare attentamente gli spettri di massa e controllare l'attività del complesso. Aggiungere cofattori o additivi per il buffer di analisi, se necessario.- Utilizzare colonne di dimensioni esclusione centrifuga per cambio veloce buffer. Rimuovere il buffer di archiviazione mediante centrifugazione a 1.000 x g e 4 ° C per 1 min. scartare il flusso attraverso. Lavare tre volte con l'aggiunta di 500 µ l 200 mM di acetato di ammonio, seguita da centrifugazione. Carico 20 µ l del campione della proteina nella colonna e centrifugare a 1.000 x g e a 4 ° C per 4 min.
Nota: La concentrazione del complesso proteico deve essere 1-10 µM. La procedura può essere ripetuta se i componenti non volatili disturbano ancora l'analisi. - Per concentrare il campione proteico e scambiare il buffer nello stesso esperimento utilizzare filtro centrifugo. Utilizzare una membrana di filtrazione del poro dimensione 50% inferiori rispetto alle dimensioni delle proteine analizzate.
- Trasferire il campione di proteina nel dispositivo di filtrazione e aggiungere 200 millimetri di acetato di ammonio. Rotazione verso il basso a 15.000 x g e scartare il flusso attraverso. Aggiungere 200 millimetri di acetato di ammonio e ripetere la centrifugazione. Ripetere questa operazione più volte. Seguire le istruzioni del produttore per velocità di centrifugazione. Eseguire la centrifugazione a 4 ° C.
Attenzione: Proteine di membrana tendono a precipitare sulla membrana del dispositivo filtro.
- Trasferire il campione di proteina nel dispositivo di filtrazione e aggiungere 200 millimetri di acetato di ammonio. Rotazione verso il basso a 15.000 x g e scartare il flusso attraverso. Aggiungere 200 millimetri di acetato di ammonio e ripetere la centrifugazione. Ripetere questa operazione più volte. Seguire le istruzioni del produttore per velocità di centrifugazione. Eseguire la centrifugazione a 4 ° C.
- Utilizzare colonne di dimensioni esclusione centrifuga per cambio veloce buffer. Rimuovere il buffer di archiviazione mediante centrifugazione a 1.000 x g e 4 ° C per 1 min. scartare il flusso attraverso. Lavare tre volte con l'aggiunta di 500 µ l 200 mM di acetato di ammonio, seguita da centrifugazione. Carico 20 µ l del campione della proteina nella colonna e centrifugare a 1.000 x g e a 4 ° C per 4 min.
- Analisi spettrometria totale dei complessi della proteina intatta
Nota: Ci sono diversi tipi di spettrometri di massa di produttori diversi che possono essere modificati per spettrometria di massa nativa, ad esempio, spettrometri di massa quadrupolare time-of-flight (Q-ToF) o orbitrap spettrometri di massa. Il protocollo descritto di seguito è stato eseguito su uno strumento di Q-ToF.- Posizionare un capillare rivestito in oro nel supporto capillare e riempire il vaso capillare con 1-4 µ l di campione della proteina. Aprire la punta dell'ago con una pinzetta.
- Collegare il supporto capillare con la sorgente nano-electrospray e regolare la posizione capillare. Posizionare la punta del capillare 0,5-1,5 cm all'orifizio di cono. Utilizzare gas nanoflow 80-150 L/h per iniziare lo spray e regolare il flusso di gas per mantenere un spruzzo stabile.
- Regolare i parametri nella melodia-pagina dello strumento Q-ToF. Condizioni tipiche di partenza sono: tensione capillare, 1.50 kV; tensione di cono, 80 V; Energia di RF obiettivo 1, 80 V; energia di collisione, 20 V; Aperture 3, 13,6 V. modificare questi parametri per ottenere spettri di massa buoni. Avviare l'acquisizione facendo clic sul pulsante "acquisire" e combinare scansioni come molti come possibile per ottenere un buon spettro di massa.
Nota: Si consiglia di combinare almeno 100 scansioni.
- Spettrometria di massa tandem dei complessi della proteina intatta
- Acquisire lo spettro di massa come descritto sopra (protocollo sezione 3.3). Scegliere un ione precursore di un complesso proteico.
- Cambiare da MS in modalità MS/MS nel file di acquisizione. Impostare la selezione di MS/MS per il precursore massa.
- Avviare l'acquisizione all'energia di collisione basso. Combinare diverse scansioni (circa 20 scansioni) per verificare la selezione del precursore corretto massa. Aumentare le energie di collisione fino a quando non si dissocia il complesso proteico. Per ottenere uno spettro di massa buono combinare almeno 500 scansioni.
Nota: Stripped complessi hanno a volte bassa intensità. Combinando le scansioni come molti come possibile potrebbe aumentare il rapporto segnale-rumore e di risoluzione.
- Dissociazione in soluzione dei complessi della proteina intatta
Nota: Per comprendere ulteriori di interazioni della proteina all'interno di complessi della proteina, dissociazione in soluzione può essere eseguita.- Preparare il campione della proteina come descritto sopra (sezione 3.2). Aggiungere solventi per il campione della proteina o modificare il pH per dissociare intatti complessi in Sub-complessi. I solventi tipici sono metanolo, isopropanolo e ACN; modificare il pH di acetato di ammonio con l'aggiunta di acido acetico o ammoniaca in soluzione. Acquisire spettri di massa come descritto in precedenza (paragrafi 3.3 e 3.4).
- Variare la quantità di solvente o l'intervallo di pH per generare vari sub-complessi. In genere, la quantità di solvente è 5-50% (concentrazione finale) e un intervallo di pH tipici è 4-9. Iniziare con una bassa concentrazione di solvente (5%) o lievi variazioni di pH e di acquisire uno spettro di massa (Vedi sezione 3.3).
- Aumentare la quantità di solvente o modificare il pH graduale fino a Sub-complessi vengono generati in soluzione. Acquisire spettri di massa per analizzare Sub-complessi.
- Calibrare i dati
Nota: Spettri di massa acquisiti sono calibrati esternamente utilizzando soluzione di cesio ioduro (CsI).- Sciogliere 100 mg CsI in 1 mL di acqua.
- Acquisire uno spettro di massa di CsI. Variare l'energia di collisione per ottenere grappoli CsI, sopra la stessa gamma di m/z come il complesso proteico, analizzate sopra.
Attenzione: CsI rapidamente precipita sulla punta di emettitore e contamina il cono. Acquisire solo come molte scansioni come richiesto per ottenere uno spettro sufficiente. Rimuovere l'emettitore dall'origine al termine. - Rendere un file di calibrazione utilizzando lo spettro di massa acquisito e un file di riferimento di CsI.
- Applicare calibrazione a spettri di massa acquisiti.
Attenzione: Calibrazione di spettri di massa potrebbe essere un cambiamento permanente dei dati grezzi. Se sono necessari gli spettri non calibrato, fare una copia di backup del file.
- Elaborazione dei dati e analisi
Nota: Ci sono molti strumenti di software liberamente disponibile per l'analisi di dati di spettri di massa nativi; per esempio, Massign42 o UniDec43. Il protocollo qui sotto descrive l'analisi manuale dei dati con l'aiuto di strumento software, nonché l'uso di Massign per campioni complessi. Questo software è particolarmente adatto per l'analisi di spettri di massa complessi. Seguire le istruzioni fornite online per l'utilizzo del programma (http://massign.chem.ox.ac.uk/).- Per l'analisi dei dati, liscio spettri regolando i parametri leviganti. Spettri di centroide regolando i parametri. Calcolare le masse complesse da due picchi adiacenti del complesso proteico ' busta picco utilizzando strumenti software dello strumento.
Attenzione: Troppo intensivo levigante potrebbe causare perdita di dati (ad es., perdita di ligandi associati). - Per l'analisi con Massign42, generare un elenco di picco per lo spettro di massa. Linearizzare punti dati dello spettro e liscia. Utilizzare i vari strumenti software per assegnare complessi proteici, calcolare la composizione complessa o simulare buste complesso picco.
- Per l'analisi dei dati, liscio spettri regolando i parametri leviganti. Spettri di centroide regolando i parametri. Calcolare le masse complesse da due picchi adiacenti del complesso proteico ' busta picco utilizzando strumenti software dello strumento.
4. chimica reticolazione ad accoppiamento con spettrometria di massa
Nota: Sono disponibili numerose strategie di cross-linking. Qui, descriviamo l'uso di Bis (Sulfosuccinimidil) suberato (BS3), un cross-linker ammina-reattivo che è comunemente usato per studiare le interazioni proteina-proteina.
- Sciogliere mg 1,43 BS3 in 100 µ l di acqua per preparare una soluzione stock di 25 mM.
Nota: Altri reagenti come Disuccinimidil suberato (DSS) non sono solubili in acqua e sono solitamente disciolti in dimetilsolfossido (DMSO). Alcuni linkers è anche disponbilie nelle forme pesanti isotopicamente etichettato. Incorporazione di isotopi stabili pesanti genera coppie di picco del reticolato di-peptidi negli spettri MS, che aiuta durante la valutazione dei dati. Quando utilizzando differenzialmente etichettato linkers, soluzioni di riserva di entrambe le varianti sono preparati e misto 1:1.
Attenzione: Per evitare la dissociazione dei complessi proteici di DMSO, una soluzione altamente concentrata di stock è preparata e diluita con acqua o buffer prima della reazione di reticolazione. - Aggiungere BS3 il complesso proteico. Utilizzare gli importi variabili di BS3 che vanno da 0,5-5 mM per identificare la concentrazione ottimale cross-linker. Incubare le miscele di reazione a 25 ° C per 1 h a un thermomixer. Utilizzare gel gradiente 4-12% ed eseguire SDS-PAGE per valutare i risultati di cross-linking (per un esempio, vedere Figura 2 ).
Nota: La concentrazione ottimale di BS3 viene raggiunta quando bande alte di proteina di peso molecolare, che non sono visibili nel controllo non-cross-linked, sono ottenuti durante SDS-PAGE, mentre le singole subunità sono ancora visibili (Figura 2). - Ripetere la reazione di reticolazione con la concentrazione ottimale di BS3. Incubare le miscele di reazione a 25 ° C per 1 h a un thermomixer.
Nota: Alcuni complessi di proteine non sono stabili a temperatura ambiente. La reazione di reticolazione può essere eseguita anche su ghiaccio; Tuttavia, il tempo di reazione deve essere regolata. -
Placare la reazione di reticolazione con l'aggiunta di buffer di ammina (ad es., 50-100 mM tampone Tris, pH 7.5, concentrazione finale) o eseguire la precipitazione dell'etanolo per rimuovere qualsiasi residuo reagente di cross-linking.
- Aggiungete dell'acqua o buffer per la miscela di reazione per raggiungere un volume finale di 200 µ l. aggiungere 600 µ l etanolo ghiacciata e 20 µ l 3M acetato di sodio pH 5.3. Mescolare accuratamente e incubare a-20 ° C per 2 h o durante la notte.
Nota: In alternativa, le proteine possono essere precipitate a 80 ° C per 30 min o in azoto liquido. - Rotazione verso il basso a 16.200 x g e 4 ° C per 30 min. rimuovere con attenzione il sovranatante.
- Lavare la pallina con 1 mL di etanolo di 80% (v/v) ghiacciata. Rotazione verso il basso a 16.200 x g e 4 ° C per 30 min. rimuovere con attenzione il sovranatante. Asciugare il pellet in una centrifuga vuoto.
- Aggiungete dell'acqua o buffer per la miscela di reazione per raggiungere un volume finale di 200 µ l. aggiungere 600 µ l etanolo ghiacciata e 20 µ l 3M acetato di sodio pH 5.3. Mescolare accuratamente e incubare a-20 ° C per 2 h o durante la notte.
- Eseguire SDS-PAGE delle proteine cross-linked. Tagliare le bande di gel e digerire le proteine in gel, come descritto in precedenza (punti 2.1 e 2.2).
Nota: Può essere eseguita anche la digestione In soluzione, tuttavia, di solito richiede passaggi di separazione ulteriori (ad es., cromatografia di esclusione di dimensione dei peptidi digeriti). -
Eseguire, spettrometria di massa accoppiata di cromatografia a fase mobile liquida come descritto sopra (sezione 2.3). Come peptidi reticolati sono di solito bassa abbondante, si applicano le seguenti variazioni per l'analisi di spettrometria di massa per aumentare la profondità analitica del campione con collegamenti incrociato.
- Utilizzare i gradienti più a lungo durante la separazione cromatografia liquida (ad es., 90 min invece di 65 min, vedi sopra).
- Escludere i peptidi doppiamente caricati dalla frammentazione di HCD.
Nota: Doppiamente caricate peptidi sono peptidi solitamente intra-traversa-collegato ("loop peptides" o "tipo 1" legami incrociati). - Quando si utilizza differenzialmente etichettato reagenti cross-linking, utilizzare l'opzione "picco picking" durante l'analisi, cioè, frammentazione HCD è innescato dalla presenza di coppie di picco di massa definita differenza negli spettri di massa.
Nota: Il "picco picking" opzione potrebbe non essere disponibile su ogni spettrometro di massa.
- Uso pLink software18 per l'identificazione del reticolato di-peptidi. Utilizzare database ridotto a icona per l'identificazione. Parametri di ricerca tipiche sono: strumento di spettri, HCD; enzima, tripsina; max. siti di fenditura perse, 3; modifiche variabile, ossidazione (metionina) e carbamidomethylation (cisteina); Cross-linker, BS3; lunghezza minima del peptide, 4; max. lunghezza del peptide, 100; massa del peptide di min., 400 Da; max. massa del peptide, Da 10.000; FDR, 1%.
Nota: Quando usando differenzialmente etichettato linkers, l'aumento di massa causata dal linker deve essere configurato. C'è anche altro software comunemente utilizzato per l'identificazione di cross-link, ad esempio, xQuest17, MassMatrix19o XlinkX15. - Valutare i risultati di ricerca del database dalla qualità degli spettri di frammentazione. Spettri accettabili di legami incrociati dovrebbero mostrare serie dello ione di entrambi i peptidi (almeno 4 ioni adiacenti) ad un ragionevole rapporto segnale-rumore.
Nota: Quando usando differenzialmente etichettato reagenti cross-linking, coppie di picco negli spettri MS utilizzabile come un ulteriore controllo di qualità. - Se necessario, visualizzare i risultati del cross-linking in reti di interazione della proteina utilizzando strumenti software (ad es., XVis, XiNET). Uso bar trame o circolare trame per la visualizzazione delle interazioni della proteina.
Nota: Entrambi gli strumenti software sono liberamente disponibili su un server web. Seguire le istruzioni dettagliate sui rispettivi siti Web (https://xvis.genzentrum.lmu.de/ e http://crosslinkviewer.org/).
Risultati
L'analisi strutturale di proteine e complessi che formano è fondamentale per capire la loro funzione. Spettrometria di massa contribuisce notevolmente all'indagine strutturale in quanto può essere applicato a quasi ogni complesso di interesse indipendentemente dalle dimensioni o eterogeneità di esempio. Abbiamo esemplificano il protocollo utilizzando due complessi della proteina ben caratterizzati; in primo luogo, l'etero-dodecamer RvB1/B2 da c. Chloracidobacterium e secondo, il CPS di etero-octamerici complesso da e. coli.
In primo luogo, abbiamo identificato le componenti proteiche dei due complessi. Per questo, le proteine sono state separate da SDS-PAGE (Figura 2) e bande di gel sono stati tagliati dal gel. Dopo digestione in-gel delle proteine, la miscela peptidica è stata analizzata tramite spettrometria di massa accoppiata di cromatografia a fase mobile liquida e masse di frammento e del peptide sono stati sottoposti a ricerca database. Seguendo questo flusso di lavoro, abbiamo identificato tutte le subunità proteiche dei due complessi con confidenza elevata, vale a dire, un numero elevato di peptidi con punteggi di peptide ragionevole è stato osservato producendo copertura alta sequenza per tutte le unità secondarie della proteina (tabella 1 ).
Quindi abbiamo analizzato l'intatta RvB1/B2 complesso mediante spettrometria di massa nativa (Figura 3A). Lo spettro di massa ha rivelato due specie, uno di circa 8.000 m/z e un'altra specie a circa 11.000-12.000 m/z. Le masse calcolate per queste specie corrispondono all'anello di3 di3(RvB2) di esamerica (RvB1) (circa 310 kDa) e il dodecameric del doppio-anello (RvB1)6(RvB2)6 (circa 620 kDa). Entrambe le serie di picco Visualizza due popolazioni; questi provengono da una miscela di His-tag e senza tag subunità RvB2 nei complessi. Una struttura di cristallo per il complesso RvB1/B2 è stata ottenuta in precedenza36 e Mostra la disposizione del doppio-anello (Figura 3B). Lo spettro di massa nativo conferma dunque la stechiometria della dodecamer intatto e rivela inoltre un sub complesso stabile. Inoltre, co-esistenti popolazioni sono identificati.
Per identificare i siti di interazione di proteine nel complesso RvB1/B2, abbiamo reticolato chimicamente il complesso purificato con cross-linker BS3. Abbiamo titolato in primo luogo la quantità di BS3 durante la reazione di reticolazione per determinare la concentrazione ottima. BS3 è ammina specifico e covalentemente catene laterali di collegamenti lisina così come la N-termini di proteine. La reazione di reticolazione è stata seguita da SDS-PAGE (Figura 2A). Il complesso non-cross-linked ha mostrato subunità sia RvB1 e RvB2. Aggiunta di BS3 alla miscela di reazione causata covalente di proteine con conseguente fasce della proteina con peso molecolare più elevato. Il gel di SDS dimostra che una quantità crescente di BS3 produrre una maggiore quantità di specie con collegamenti incrociati mentre subunità proteiche non-cross-linked sono ridotti. Abbiamo quindi tagliare le bande di proteine dal gel e seguito il protocollo fornito sopra per identificare i siti di interazione della proteina. Un esempio di spettro di un reticolato di-peptide è mostrato (Figura 3). Lo spettro Mostra serie y-ione di entrambi i peptidi confermando questa interazione di proteine. In totale, abbiamo ottenuto 14 interazioni di proteine, tra cui quattro legami incrociati tra subunità RvB1 e RvB2 e due legami incrociati tra due copie di RvB2 (tabella 2). I risultati da BS3 cross-linking sono visualizzati in una rete di interazione (Figura 3D) che mostrano interazioni intra-molecolari come interazioni tra differenti subunità proteiche. Legami incrociati intra-molecolari suggeriscono che sia RvB1 che RvB2 subunità piegare in modo che i domini N - e C-terminale sono nelle immediate vicinanze. Nota, che interazioni intra-molecolari non sono distinguibili dalle interazioni inter-molecolari della stessa subunità in questo caso. Inter-molecolari legami incrociati tra le due subunità sono stati anche osservati. Di questi, due inter-molecolari legami incrociati fra RvB1 e RvB2 potrebbero essere visualizzate nella struttura convalida l'approccio cross-linking. L'altri legami inter-molecolari incrociati si trovano nei cicli flessibili che non sono inclusi nella struttura di cristallo. Inoltre abbiamo identificato due legami incrociati in RvB2 contenente le stesse sequenze di peptide. Questi legami incrociati senza ambiguità possono essere classificati come inter-molecolari come essi devono provenire da due copie della stessa proteina (Figura 3D). I nostri esperimenti di cross-linking rivelano siti di interazione di proteine all'interno del complesso, ma anche all'interno la subunità proteiche fornendo intuizioni nella loro disposizione strutturale che potrebbe essere confermata anche con la struttura esistente di cristallo (Figura 3B).
Il secondo complesso di proteine che abbiamo studiato è stato CPS. Lo spettro di massa nativo (Figura 4A) ha rivelato tre complessi proteici tra 6.000 e 12.000 m/z. Il più grande complesso di 640 kDa corrisponde all'etero-istonico intatto. I più piccoli complessi rappresentano due sub-complessi; il dimero delle piccole e grandi unità secondarie CPS (160 kDa) e un etero-tetramero contenente due copie di ogni subunità (320 kDa). Questi sub-complessi forniscono intuizioni prime Assemblea della proteina; cioè, le subunità di grandi e piccole sono in contatto diretto (come rivelato da etero-dimero) e il tetramero potrebbe essere un prodotto di due dimeri. Per ottenere ulteriori informazioni sulla disposizione strutturale nella CPS intatti complessi, abbiamo effettuato la spettrometria di massa tandem (MS/MS) di etero-istonico ed etero-tetramero. In entrambi i casi, la piccola unità secondaria dissociato dal precursore, suggerendo che la piccola unità secondaria si trova nella periferia dell'Assemblea (Figura 4B). Infatti, la piccola unità secondaria è periferica in cristallo disponibile struttura (Figura 4)44.
Cross-linking chimico utilizzando il reticolante BS3 inoltre è stata effettuata. Utilizzando quantità crescenti, il legame covalente delle subunità CPS è stato migliorato. Dopo la digestione delle proteine e l'analisi dei peptidi come descritto in precedenza, molte interazioni della proteina all'interno la grande unità secondaria e un legame incrociato la subunità sono stati ottenuti (tabella 2). Inoltre, simili alla RvB1/B2 complesso, abbiamo trovato due inter-molecolari legami incrociati tra due copie della subunità grande CPS. Questi legami incrociati posizionare le due subunità grande vicenda di fronte ai loro lati C-terminale. In uno studio precedente, che unisce la spettrometria di massa strutturale e modellazione computazionale35, abbiamo identificato tre ulteriori interazioni nella grande unità secondaria che molto probabilmente provengono dall'interfaccia di due copie della subunità grande convalidato da la struttura di cristallo e il modello ottenuto (Figura 4 e tabella 2). Queste interazioni consentono la disposizione del nucleo CPS complesso composto da quattro subunità grande. Tuttavia, nessun Inter-subunità legami incrociati tra le piccole e le grandi unità secondarie sono stati osservati. Esaminando la struttura di cristallo disponibile (Figura 4), diventa evidente che la superficie di interazione tra il nucleo tetramerica del complesso, costituito dalla grande unità secondaria e le subunità piccole periferiche è molto piccola, che potrebbe spiegare l'assenza di interazioni inter-unità secondaria. Ciò è confermato dalla nativa spettrometria di massa che ha mostrato che la piccola unità secondaria si dissocia prontamente dai complessi intatti molto probabilmente a causa di un'interfaccia di piccola associazione. Comunque, interazioni della proteina nella CPS complesso combinata da cross-linking chimico e nativa spettrometria di massa permettono di dedurre la loro disposizione strutturale (Figura 4).
Presi insieme, la combinazione di spettrometria di massa nativa e cross-linking chimico accoppiato con spettrometria di massa identificazione di peptidi con collegamenti incrociati, permette la ricostituzione della disposizione strutturale degli entrambi i complessi di esempio. Mentre reticolazione chimica rivelato disposizione delle subunità della proteina, per esempio le interazioni tra RvB1 e RvB2 o all'interno del nucleo tetramerica della CPS, spettrometria di massa nativa consegnato stoichiometries proteina dei complessi intatti e subcomplexes prevalente. Nel caso di CPS, per i quali ha potuto essere osservati nessun interazioni intermolecolari tra le due subunità di reticolazione chimica, spettrometria di massa nativa suggerisce che ogni subunità interagisce con una subunità piccola (Figura 4). Spettrometria di massa tandem proposto la posizione periferica della subunità piccola nel complesso e una piccola interfaccia tra entrambe le subunità.
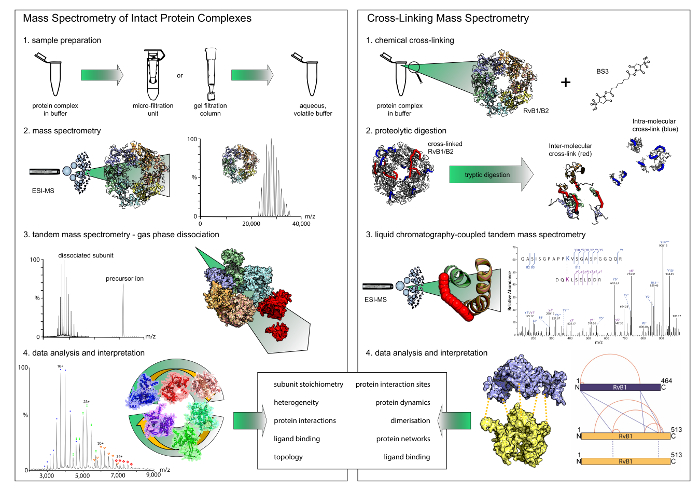
Figura 1: flusso di lavoro di spettrometria di massa nativa e cross-linking. Entrambe le tecniche offrono risultati complementari. Mentre stoichiometries e moduli di interazione rivela nativa spettrometria di massa, cross-linking fornisce i siti di interazione della proteina all'interno di complessi. Si noti che solo la reticolazione chimica rivela interazioni binarie. (A) il primo passo nella spettrometria di massa nativo è scambio di buffer a un buffer di volatile e acquoso utilizzando unità di filtraggio o gel filtrazione colonne. Spettrometria di massa dei complessi proteici intatto poi rivela loro stechiometria. Negli esperimenti di spettrometria di massa tandem, subunità periferiche sono dissociate. (B) per la reticolazione chimica, il complesso proteico viene incubato con un reagente di cross-linking. Le proteine cross-linked sono poi digerite in peptidi che sono successivamente analizzati mediante spettrometria di massa liquida cromatografia accoppiata. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 2: SDS-PAGE di reticolato complessi RvB1/B2 (A) e CPS (B). (A) 2,5 µM RvB1/B2 sono stati caricati per gel di corsia. La concentrazione di BS3 era varia. Non-cross-linked RvB1/B2 Mostra le due subunità a circa 50 kDa. Aggiunta di BS3 causato covalente delle subunità della proteina risultante in fasce della proteina con peso molecolare più elevato. La quantità di specie reticolato è aumentata con le più alte concentrazioni BS3. Condizioni ottimali di cross-linking sono evidenziate (in rosso). (B), 10 µM CPS sono stati caricati per gel di corsia. Il grande (90 kDa) e piccolo (40 kDa) subunità CPS sono ottenute. Aggiunta di BS3 causato covalente delle subunità della proteina risultante in fasce della proteina con peso molecolare più elevato. Condizioni ottimali di cross-linking sono evidenziate (in rosso). Clicca qui per visualizzare una versione più grande di questa figura.

Figura 3: spettrometria di massa nativa e reticolazione chimica di RvB1/B2 complesso. (A), lo spettro di massa nativo rivela due specie di RvB1/B2; il dodecamer intatto (cioè, (RvB1)6(RvB2)6) a circa 11.000 a 12.000 m/z e l'esamerica anello (RvB1)3(RvB2)3 a circa 8.000 m/z. Entrambe le specie mostrano due popolazioni derivanti dalla sua etichetta e senza tag RvB2. Lo spettro è stato modificato da35. Struttura (B), il cristallo di RvB1/B2 è mostrata (PDB ID 4WVY). RvB1 e RvB2 alternati subunità formano due anelli di esamerica. (C) spettro di frammentazione di un reticolato di-peptide. N-terminale di RvB1 era reticolato con K23 di RvB1. serie y-dello ione sono stati ottenuti per entrambi i peptidi (rosso e ciano). (D) Intra - e inter - protein interazioni ottenute nel complesso RvB1/B2. Intra-cross-link sono mostrati in rosso, inter-cross-links sono mostrati in blu. L'inserto mostra due inter-molecolari legami incrociati tra subunità RvB1 e RvB2, che potrebbe essere visualizzata nella struttura di cristallo (verde, inserto). Interazioni che provengono da due copie di RvB2 vengono visualizzati come linee tratteggiate blu. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 4: nativa spettrometria di massa e la reticolazione chimica di CPS. (A), lo spettro di massa nativo di CPS spettacoli tre complessi. L'etero-dimero (160 kDa), etero-tetramero (320 kDa) e l'etero-istonico (640 kDa). Lo spettro è stato modificato da35. (B) spettrometria totale in Tandem della tetramerica e octamerici CPS complesso rivelata dissociazione della subunità piccola CPS. (C), il cristallo struttura del CPS è mostrata (PDB ID 1BXR). Le subunità grande formano un nucleo tetramerica e le subunità piccole si trovano nella periferia del complesso. Legami inter-molecolari incrociati tra due copie della subunità grande sono mostrati (verde). (D) interazioni delle grandi e piccole subunità CPS. Spettrometria di massa nativa ha rivelato subcomplexes e suggerisce una posizione periferica della subunità piccola. Legami incrociati chimici indicano nel nucleo tetramerica di CPS. Clicca qui per visualizzare una versione più grande di questa figura.
Tabella 1: Risultati ricerca Database. Le proteine sono state identificate dalla spettrometria di massa accoppiata di cromatografia a fase mobile liquida e ricerca database. I nomi di proteina, descrizione e numero, nonché di proteine di adesione massa sono date. Il Punteggio di proteina, numero degli spettri osservati per proteina e il numero di sequenze peptidiche osservati sono elencati. I cinque peptidi con punteggi più alti di peptidi mascotte sono elencati per ogni unità secondaria della proteina. Per favore clicca qui per scaricare questo file.
Tabella 2: legami incrociati osservati nel RvB1/B2 e CPS. Le subunità dei complessi e i residui di reticolato sono date. Il tipo di legame incrociato (intra - o inter-molecolari) è stato rivelato da sequenze peptidiche sovrapposte o un precedente studio35. Per favore clicca qui per scaricare questo file.
Discussione
Sono disponibili protocolli per l'analisi strutturale basati sulla spettrometria di massa dei complessi multi-subunità della proteina. Le due tecniche, descritte nel protocollo, per lo più fornire risultati complementari e sono particolarmente adatte per acquisire conoscenze in dispositivi strutturali all'interno della proteina (-ligando) complessi che sono difficili da studiare mediante tecniche strutturali convenzionali. Spettrometria di massa nativa offre intuizioni stoichiometries proteina così come interazioni proteina analizzando subcomplexes e moduli di interazione stabile. Cross-linking, d'altra parte, produce informazioni sui siti di contatto diretti. A seconda il reticolante utilizzato, una certa flessibilità possa o deve essere inclusi nell'analisi.
I protocolli forniti sono in generale facile da eseguire e non richiede molto tempo. L'intero protocollo può essere eseguito entro una settimana e può essere applicato a quasi tutti i complessi della proteina, anche se una certa quantità di complesso proteico è necessaria per l'analisi di successo. Preparazione del campione è semplice e non richiede specificamente complessi della proteina purificata. Tuttavia, un problema comune è contaminazione del campione durante la preparazione dei campioni per l'identificazione di proteine basati sulla spettrometria di massa. Queste contaminazioni nella maggior parte dei casi includono le cheratine che provengono dalla polvere, dalla pelle o capelli. Di conseguenza, come ad esempio indossare guanti e camici da laboratorio, filtrazione amplificatori acquosi e l'utilizzo di solventi ad alta purezza dovrebbe prestare durante la preparazione dei campioni per l'identificazione di proteine basati sulla spettrometria di massa. Altre proteine contaminanti come chaperoni solitamente vengono introdotti durante la purificazione della proteina, per esempio, quando si utilizzano tag di affinità. In questi casi, purificazione della proteina dovrebbe essere migliorata, ad esempio aumentando i passaggi del lavaggio. In ogni caso, contaminazioni di proteina nel campione sono facilmente identificabili durante la ricerca nel database omettendo il filtro tassonomia (cioè, ricerca contro proteine da tutte le specie). Se solo si osservano alcuni peptidi (cioè, una copertura povera in proteine poteva essere ottenuta), anche se campione sufficiente è disponibile, potrebbe essere necessario utilizzare una proteinasi differente durante la digestione. In generale la tripsina produce un numero sufficiente di peptidi; Tuttavia, in alcuni casi ad esempio proteine di membrana o domini di membrana di proteine, viene ridotto il numero di siti di fenditura triptica e altri enzimi aminoacidi idrofobici di targeting sono una scelta migliore.
In termini di strumentazione, uno strumento particolarmente modificato è richiesto per spettrometria di massa nativa che mantiene le interazioni non-covalenti durante il trasferimento in fase gassosa. Sono stati introdotti diversi tipi di strumenti, compresi gli strumenti Q-ToF e orbitrap. Mentre modificati spettrometri di massa Q-ToF sono commercialmente disponibili per spettrometria di massa nativa da diversi anni, quest'ultimo solo di recente sono stati introdotti e nella maggior parte dei casi richiede modifiche specializzato45. Tuttavia, l'applicazione di strumenti ad alta definizione ha permesso di studiare il legame di ligandi più e loro quantificazione46,47 ed è promettente per applicazioni future.
Per identificare reticolato di-peptidi tramite spettrometria di massa ad accoppiamento cromatografia liquida, possono essere applicate le procedure standard con alcune modifiche. Tuttavia, la ricerca del database è il fattore limitante come software specializzato può raramente a che fare con database di grandi dimensioni e ridotto i database contenenti la subunità proteiche dei complessi sono obbligatori. Gli studi recenti usato massa spettrometria-spaccabili linkers targeting interazioni proteina intera cella lisati48,49. L'uso di linkers chimica che frammentano in esperimenti di spettrometria di massa tandem principalmente produce peptidi lineari (modificati dal reticolante), che possono essere identificati da un'ulteriore frammentazione e ricerca database di peptidi lineari e questo riduce tempo di ricerca e spazio di ricerca computazionale. Tuttavia, per eseguire questi esperimenti, un analizzatore di massa a trappola ionica o uno spettrometro di massa ibrido con una trappola ionica è necessario. In generale, come falsi positivi sono una questione importante, spettri di massa dei peptidi reticolati spesso vengono convalidati manualmente dalla qualità dei loro spettri di frammento che estende enormemente il tempo di analisi di dati. Lo sviluppo di robusti sistemi di punteggio che possono essere applicati senza ulteriori passaggi di convalida sono pertanto possibili applicazioni future. Un modo per migliorare l'analisi dei dati e per ridurre il numero di falsi positivi è stata l'introduzione di calcoli di tasso di falsi scoperta e la loro applicazione al cross-linking di insiemi di dati50.
In generale, le tecniche qui descritte possono essere integrate con ulteriori tecniche di spettrometria di massa (ad es., etichettatura covalente) per aumentare l'output di analisi. Altre modifiche e miglioramenti dei protocolli possono essere facilmente implementati. Come tale comparativo cross-linking34 si dipana cambiamenti conformazionali nell'assembly della proteina. Ulteriori sviluppi nella spettrometria di massa nativo oggi permettono l'analisi delle proteine della membrana51,52 e loro interazioni con i lipidi28,52,53,54 . Nuovi sviluppi di spettrometri di massa ad alta risoluzione per nativo spettrometria di massa hanno esteso l'applicazione e grippaggio del ligand, ad es., associazione dei lipidi alle proteine della membrana, ora possono essere inclusi nella analisi45, 46. in combinazione con approcci di modellazione computazionale, queste tecniche possono fornire modelli strutturali di diversa risoluzione55. Se nessuna struttura di cristallo è disponibile per le subunità di complesse o singole intatte, spettrometria di massa è in grado di fornire approfondimenti prime di interazioni della proteina e la topologia del complesso sconosciuto. A seconda delle tecniche utilizzate e i risultati ottenuti, modelli a bassa risoluzione del complesso sconosciuto possono essere ottenuti56,57,58. Se sono disponibili strutture cristalline o modelli di omologia, le informazioni strutturali ricevute dalla spettrometria di massa possono produrre anche quasi nativa modelli59.
Rispetto ad altre tecniche strutturali, spettrometria di massa ha il vantaggio che esso richiede una quantità di campione basso, si può trattare con campioni eterogenei ed è applicabile ai complessi della proteina di dimensioni illimitate. Inoltre, spettrometria di massa permette l'indagine di sistemi proteici dinamico. Diverse popolazioni della proteina o proteina complessa che esistono in soluzione solitamente vengono analizzati insieme e di conseguenza, a differenza con altre tecniche strutturali che richiedono la selezione di alcune popolazioni, tutte le conformazioni vengono mantenute durante analisi e sono valutabile in un esperimento. Approcci quantitativi di cross-linking sono stati recentemente introdotti34,60,61 e sono promettenti per applicazioni future che descrivono cambiamenti conformazionali in condizioni diverse.
Dichiarazioni
Gli autori non hanno nulla a rivelare.
Ringraziamenti
Ringraziamo i colleghi per utili discussioni. Ringraziamo anche Ilme Schlichting e Karl-Peter Hopfner per la fornitura di complessi proteici. Riconosciamo che il finanziamento dal Ministero federale per formazione e ricerca (BMBF, ZIK programma, 03Z22HN22), il Fondo europeo di sviluppo regionale (EFRE, ZS/2016/04/78115) e il MLU Halle-Wittenberg per C.S. e finanziamenti dal Wellcome Trust (109854/658 Z/15/Z) per A.P.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Sostanze chimiche, Reagenti, Materiali di consumo | |||
| 2-[4-(2-idrossietil)piperazin-1-il]etanosolfonico acido (HEPES) | Tampone Sigma Aldrich | H4034 | |
| Acido acetico | Sigma Aldrich | 695092 | pH |
| Acetonitrile Optima LC/MS | Fisher Chemicals | A955-1 | solvente |
| Amicon Ultra centrifugo dispositivi (MWCO diversi) | Millipore | cioè scambio di | tampone UFC500396, concentrazione |
| Soluzione di acetato di ammonio | Sigma Aldrich | A2706 | nativo MS |
| Bicarbonato di ammonio | Sigma Aldrich | 9830 | digestione in gel |
| Soluzione di ammonio | Sigma Aldrich | 9859 | pH |
| Bis(Sulfosuccinimidyl)suberato-d0 (BS3-d0) | Thermo Scientific | 21590 | reticolante |
| Bis(Sulfosuccinimidyl)suberato-d4 (BS3-d4) | Thermo Scientific | 21595 | reticolante |
| Ioduro di cesio | Sigma Aldrich | 203033 calibrazione | |
| Cloruro di calcio | Sigma Aldrich | C5670 | digestione in-gel |
| Capillari (1,0 OD &volte; 0,78 ID &volte; 100 L mm) | Harvard Apparatus | 30-0038 | nativo MS |
| Disuccinimidil suberato (DSS) | Thermo Scientific | 21655 | reticolante |
| DL-Ditiotreitolo | Sigma Aldrich | D5545 | digestione in-gel |
| DMSO (dimetilsolfossido) | Sigma Aldrich | D8418 | solvente |
| Etanolo | Fisher Chemicals | BP2818 | solvente |
| Acido formico Optima LC/MS | Fisher Chemicals | A117-50 | integratore di solventi |
| Instant Blue Coomassie soluzione colorante | expedeon | ISB1L | soluzione colorante per elettroforesi su gel |
| Invitrogen NuPAGE 4-12% Bis-Tris gel (1 mm, 10 pozzetti) | life technologies | NP0323BOX | elettroforesi su gel |
| Iodoacetamide | Sigma Aldrich | I1149 | Digestione in gel |
| Alcool isopropilico, grado HPLC | Fisher Chemicals | P750717 | solvente |
| Metanolo | Fisher Chemicals | A456-212 | solvente |
| Micro BioSpin 6 colonne | BioRad | 732-6222 | scambio di tampone |
| NuPAGE Antiossidante | invitrogeno | NP0005 | tampone di corsa, elettroforesi su gel |
| NuPAGE LDS Sample Buffer (4 ×) | invitrogen | NP0007 | tampone di caricamento del campione (non riducente) per elettroforesi su gel |
| NuPAGE MES SDS Tecnologie di durata del tampone in esecuzione | NP0001 | elettroforesi su gel | |
| NuPAGE MOPS SDS Tecnologie di durata del tampone in esecuzione | NP0001 | Elettroforesi su gel | |
| NuPAGE Agente riducente del campione (10 ×) | invitrogen | NP0004 | Agente riducente per elettroforesi su gel |
| PBS - soluzione salina tamponata con fosfato | Sigma Aldrich | P4417 | tampone |
| SeeBlue Plus2 Prestained Standard Protein Marker | invitrogen | LC5925 | prestained Protein Marker per elettroforesi su gel |
| Acetato di sodio | Sigma Aldrich | S2889 | precipitazione di etanolo |
| Tris(idrossimetil)aminometano (Tris) | Sigma Aldrich | tampone 252859 | |
| Tripsina | Sigma Aldrich | TRYPSEQ-RO (11418475001) | digestione in gel |
| Dispositivi centrifughi Vivaspin (diversi MWCO) | Sartorius | i.e. VS0101 | scambio tampone, concentrazione |
| Acqua per HPLC | Sigma Aldrich | 270733-2.5L-M | solvente |
| Nome | Azienda | Numero di catalogo | Comments |
| Instruments | |||
| Centrifuga Heraeus Fresco 21, centrifuga da banco | Thermo Scientific | 75002425 | |
| Flaming / Brown Micropipette estrattore Modello P-1000 | Sutter Instruments | P-1000 | |
| Camera per gelelettroforesi Xcell SureLock MiniCell | Invitrogen | EI0001 | |
| Gold Coater Quorum Q150R S | Quorum Technologies Ltd. | Q150RS | |
| Agitatore per gel orizzontale Rotamax 120 T | Heidolph Instruments | 544-41200-00 | |
| Q-TOF Spettrometro di massa Ultima, MS Vision Colonna | Waters (Micromass) | ||
| Acclaim PepMap (C18, diametro interno 75 mm, 50 cm, dimensione dei pori 3 mm) | Thermo Scientific | 164570 | |
| pre-colonna C18 a fase inversa (C18, diametro interno 150 mm, 2 cm, dimensione dei pori 5 mm) | Thermo Scientific | ||
| Fisher Scientifc | 10463989 | ||
| Centrifuga sottovuoto SpeedVac SPD121P | Thermo Scientific | SPD121DP-230 | |
| Thermomixer C | Eppendorf | 5382000015 | |
| Pinzette AA | Sigma Aldrich | Z680184-1EA | |
| Pulitore ad ultrasuoni USC-TH, bagno di sonicazione | VWR | 142-0084 | |
| Sistema nano-LC UltiMate Dionex 3000, accoppiato allo spettrometro di massa ibrido Q-Exactive plus (sorgente nano-ESI) | Thermo Scientific | 0726030+ | |
| Name | Company | Numero di catalogo | Comments |
| Software, Strumenti software, Ricerca nel database | |||
| Mascotte | www.matrixscience.com | ||
| Massign | http://massign.chem.ox.ac.uk | ||
| MassLynx | Micromass | ||
| MassMatrix | Xu, H. J Proteome Res. 9 (2010) | ||
| MaxQuant | Cox, J. Nat. Biotechn. 26 (2008) | ||
| pLink | Yang, B. Nat Methods 9 (2012) | ||
| pXtract strumento di conversione | http://pfind.ict.ac.cn/downloads.html | ||
| UniDec | Marty, M.T. Anal. Chem. 87 (2015) | ||
| XCalibur | Thermo Scientific | ||
| XiNET | http://crosslinkviewer.org | ||
| XLinkX | Liu, F. Curr Op Struct Biol 35 (2015) | ||
| xQuest | Rinner, O. Nat Methods 5 (2008) | ||
| Xvis | https://xvis.genzentrum.lmu.de |
Riferimenti
- Campbell, I. D. Timeline: the march of structural biology. Nat Rev Mol Cell Biol. 3 (5), 377-381 (2002).
- Liko, I., Allison, T. M., Hopper, J. T., Robinson, C. V. Mass spectrometry guided structural biology. Curr Opin Struct Biol. 40, 136-144 (2016).
- Robinson, C. V. From molecular chaperones to membrane motors: through the lens of a mass spectrometrist. Biochem Soc Trans. 45 (1), 251-260 (2017).
- Lossl, P., van de Waterbeemd, M., Heck, A. J. The diverse and expanding role of mass spectrometry in structural and molecular biology. EMBO J. 35 (24), 2634-2657 (2016).
- Wang, L., Chance, M. R. Protein Footprinting Comes of Age: Mass Spectrometry for Biophysical Structure Assessment. Mol Cell Proteomics. 16 (5), 706-716 (2017).
- Steen, H., Mann, M. The ABC's (and XYZ's) of peptide sequencing. Nat Rev Mol Cell Biol. 5 (9), 699-711 (2004).
- Olsen, J. V., Mann, M. Status of large-scale analysis of post-translational modifications by mass spectrometry. Mol Cell Proteomics. 12 (12), 3444-3452 (2013).
- Schmidt, C., Robinson, C. V. Dynamic protein ligand interactions--insights from MS. FEBS J. 281 (8), 1950-1964 (2014).
- Marcsisin, S. R., Engen, J. R. Hydrogen exchange mass spectrometry: what is it and what can it tell us? Anal Bioanal Chem. 397 (3), 967-972 (2010).
- Zhang, Z., Smith, D. L. Determination of amide hydrogen exchange by mass spectrometry: a new tool for protein structure elucidation. Protein Sci. 2 (4), 522-531 (1993).
- Leitner, A., Lindner, W. Current chemical tagging strategies for proteome analysis by mass spectrometry. J Chromatogr B Analyt Technol Biomed Life Sci. 813 (1-2), 1-26 (2004).
- Leitner, A., Lindner, W. Chemistry meets proteomics: the use of chemical tagging reactions for MS-based proteomics. Proteomics. 6 (20), 5418-5434 (2006).
- Kiselar, J. G., Chance, M. R. Future directions of structural mass spectrometry using hydroxyl radical footprinting. J Mass Spectrom. 45 (12), 1373-1382 (2010).
- Xu, G., Chance, M. R. Hydroxyl radical-mediated modification of proteins as probes for structural proteomics. Chem Rev. 107 (8), 3514-3543 (2007).
- Liu, F., Heck, A. J. Interrogating the architecture of protein assemblies and protein interaction networks by cross-linking mass spectrometry. Curr Opin Struct Biol. 35, 100-108 (2015).
- Rappsilber, J. The beginning of a beautiful friendship: cross-linking/mass spectrometry and modelling of proteins and multi-protein complexes. J Struct Biol. 173 (3), 530-540 (2011).
- Rinner, O., et al. Identification of cross-linked peptides from large sequence databases. Nat Methods. 5 (4), 315-318 (2008).
- Yang, B., et al. Identification of cross-linked peptides from complex samples. Nat Methods. 9 (9), 904-906 (2012).
- Xu, H., Hsu, P. H., Zhang, L., Tsai, M. D., Freitas, M. A. Database search algorithm for identification of intact cross-links in proteins and peptides using tandem mass spectrometry. J Proteome Res. 9 (7), 3384-3393 (2010).
- Leitner, A., Faini, M., Stengel, F., Aebersold, R. Crosslinking and Mass Spectrometry: An Integrated Technology to Understand the Structure and Function of Molecular Machines. Trends Biochem Sci. 41 (1), 20-32 (2016).
- Heck, A. J. Native mass spectrometry: a bridge between interactomics and structural biology. Nat Methods. 5 (11), 927-933 (2008).
- Sharon, M., Robinson, C. V. The role of mass spectrometry in structure elucidation of dynamic protein complexes. Annu Rev Biochem. 76, 167-193 (2007).
- Goth, M., Pagel, K. Ion mobility-mass spectrometry as a tool to investigate protein-ligand interactions. Anal Bioanal Chem. , (2017).
- Uetrecht, C., Rose, R. J., van Duijn, E., Lorenzen, K., Heck, A. J. Ion mobility mass spectrometry of proteins and protein assemblies. Chem Soc Rev. 39 (5), 1633-1655 (2010).
- Hernandez, H., Robinson, C. V. Determining the stoichiometry and interactions of macromolecular assemblies from mass spectrometry. Nat Protoc. 2 (3), 715-726 (2007).
- Sobott, F., Hernandez, H., McCammon, M. G., Tito, M. A., Robinson, C. V. A tandem mass spectrometer for improved transmission and analysis of large macromolecular assemblies. Anal Chem. 74 (6), 1402-1407 (2002).
- Rostom, A. A., et al. Detection and selective dissociation of intact ribosomes in a mass spectrometer. Proc Natl Acad Sci U S A. 97 (10), 5185-5190 (2000).
- Zhou, M., et al. Mass spectrometry of intact V-type ATPases reveals bound lipids and the effects of nucleotide binding. Science. 334 (6054), 380-385 (2011).
- Uetrecht, C., et al. High-resolution mass spectrometry of viral assemblies: molecular composition and stability of dimorphic hepatitis B virus capsids. Proc Natl Acad Sci U S A. 105 (27), 9216-9220 (2008).
- Morgner, N., et al. Hsp70 forms antiparallel dimers stabilized by post-translational modifications to position clients for transfer to Hsp90. Cell Rep. 11 (5), 759-769 (2015).
- Schmidt, C., Beilsten-Edmands, V., Robinson, C. V. The joining of the Hsp90 and Hsp70 chaperone cycles yields transient interactions and stable intermediates: insights from mass spectrometry. Oncotarget. 6 (21), 18276-18281 (2015).
- Schmidt, C., Beilsten-Edmands, V., Mohammed, S., Robinson, C. V. Acetylation and phosphorylation control both local and global stability of the chloroplast F1 ATP synthase. Sci Rep. 7, 44068(2017).
- Schmidt, C., et al. Comparative cross-linking and mass spectrometry of an intact F-type ATPase suggest a role for phosphorylation. Nat Commun. 4, 1985(2013).
- Schmidt, C., Robinson, C. V. A comparative cross-linking strategy to probe conformational changes in protein complexes. Nat Protoc. 9 (9), 2224-2236 (2014).
- Schmidt, C., et al. Surface Accessibility and Dynamics of Macromolecular Assemblies Probed by Covalent Labeling Mass Spectrometry and Integrative Modeling. Anal Chem. 89 (3), 1459-1468 (2017).
- Lakomek, K., Stoehr, G., Tosi, A., Schmailzl, M., Hopfner, K. P. Structural basis for dodecameric assembly states and conformational plasticity of the full-length AAA+ ATPases Rvb1 · Rvb2. Structure. 23 (3), 483-495 (2015).
- Mareya, S. M., Raushel, F. M. A molecular wedge for triggering the amidotransferase activity of carbamoyl phosphate synthetase. Biochemistry. 33 (10), 2945-2950 (1994).
- Shevchenko, A., Wilm, M., Vorm, O., Mann, M. Mass spectrometric sequencing of proteins silver-stained polyacrylamide gels. Anal Chem. 68 (5), 850-858 (1996).
- Olsen, J. V., et al. Parts per million mass accuracy on an Orbitrap mass spectrometer via lock mass injection into a C-trap. Mol Cell Proteomics. 4 (12), 2010-2021 (2005).
- Cox, J., Mann, M. MaxQuant enables high peptide identification rates, individualized p.p.b.-range mass accuracies and proteome-wide protein quantification. Nat Biotechnol. 26 (12), 1367-1372 (2008).
- Kirshenbaum, N., Michaelevski, I., Sharon, M. Analyzing large protein complexes by structural mass spectrometry. J Vis Exp. (40), (2010).
- Morgner, N., Robinson, C. V. Massign: an assignment strategy for maximizing information from the mass spectra of heterogeneous protein assemblies. Anal Chem. 84 (6), 2939-2948 (2012).
- Marty, M. T., et al. Bayesian deconvolution of mass and ion mobility spectra: from binary interactions to polydisperse ensembles. Anal Chem. 87 (8), 4370-4376 (2015).
- Thoden, J. B., Wesenberg, G., Raushel, F. M., Holden, H. M. Carbamoyl phosphate synthetase: closure of the B-domain as a result of nucleotide binding. Biochemistry. 38 (8), 2347-2357 (1999).
- Rose, R. J., Damoc, E., Denisov, E., Makarov, A., Heck, A. J. High-sensitivity Orbitrap mass analysis of intact macromolecular assemblies. Nat Methods. 9 (11), 1084-1086 (2012).
- Gault, J., et al. High-resolution mass spectrometry of small molecules bound to membrane proteins. Nat Methods. 13 (4), 333-336 (2016).
- Mehmood, S., et al. Mass spectrometry captures off-target drug binding and provides mechanistic insights into the human metalloprotease ZMPSTE24. Nat Chem. 8 (12), 1152-1158 (2016).
- Kaake, R. M., et al. A new in vivo cross-linking mass spectrometry platform to define protein-protein interactions in living cells. Mol Cell Proteomics. 13 (12), 3533-3543 (2014).
- Liu, F., Rijkers, D. T., Post, H., Heck, A. J. Proteome-wide profiling of protein assemblies by cross-linking mass spectrometry. Nat Methods. 12 (12), 1179-1184 (2015).
- Walzthoeni, T., et al. False discovery rate estimation for cross-linked peptides identified by mass spectrometry. Nat Methods. 9 (9), 901-903 (2012).
- Barrera, N. P., Di Bartolo, N., Booth, P. J., Robinson, C. V. Micelles protect membrane complexes from solution to vacuum. Science. 321 (5886), 243-246 (2008).
- Barrera, N. P., et al. Mass spectrometry of membrane transporters reveals subunit stoichiometry and interactions. Nat Methods. 6 (8), 585-587 (2009).
- Laganowsky, A., et al. Membrane proteins bind lipids selectively to modulate their structure and function. Nature. 510 (7503), 172-175 (2014).
- Marcoux, J., et al. Mass spectrometry reveals synergistic effects of nucleotides, lipids, and drugs binding to a multidrug resistance efflux pump. Proc Natl Acad Sci U S A. 110 (24), 9704-9709 (2013).
- Politis, A., Schmidt, C. Structural characterisation of medically relevant protein assemblies by integrating mass spectrometry with computational modelling. J Proteomics. , (2017).
- Hall, Z., Politis, A., Robinson, C. V. Structural modeling of heteromeric protein complexes from disassembly pathways and ion mobility-mass spectrometry. Structure. 20 (9), 1596-1609 (2012).
- Pukala, T. L., et al. Subunit architecture of multiprotein assemblies determined using restraints from gas-phase measurements. Structure. 17 (9), 1235-1243 (2009).
- Politis, A., et al. Topological models of heteromeric protein assemblies from mass spectrometry: application to the yeast eIF3:eIF5 complex. Chem Biol. 22 (1), 117-128 (2015).
- Politis, A., et al. A mass spectrometry-based hybrid method for structural modeling of protein complexes. Nat Methods. 11 (4), 403-406 (2014).
- Fischer, L., Chen, Z. A., Rappsilber, J. Quantitative cross-linking/mass spectrometry using isotope-labelled cross-linkers. J Proteomics. 88, 120-128 (2013).
- Yu, C., et al. Developing a Multiplexed Quantitative Cross-Linking Mass Spectrometry Platform for Comparative Structural Analysis of Protein Complexes. Anal Chem. 88 (20), 10301-10308 (2016).
Ristampe e permessi
