Questo manoscritto descrive l'uso di reporters fluorogenic geneticamente codificati in un'applicazione di imaging di cellule vive per l'esame dello stress ossidativo indotto da xenobiotici. Questo approccio sperimentale offre ineguagliabile risoluzione spazio-temporale, sensibilità e specificità, evitando molte delle lacune dei metodi convenzionali utilizzati per la rilevazione dello sforzo ossidativo tossicologico.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Approcci alla valutazione dello Stress ossidativo tossicologici utilizzando geneticamente codificato Fluorogenic sensori di imaging
In questo articolo
Sommario
Abstract
Mentre lo sforzo ossidativo è un meccanismo tossicologico comunemente citato, i metodi convenzionali di studiarlo soffrono di una serie di difetti, tra cui la distruzione del campione, introduzione di potenziali artefatti e una mancanza di specificità per il reattivo specie in questione. Così, c'è un bisogno attuale nel campo della tossicologia per i metodi non distruttivi, sensibili e specifici che può essere utilizzato per osservare e quantificare perturbazioni redox intracellulare, più comunemente indicati come stress ossidativo. Qui, presentiamo un metodo per l'utilizzo di due sensori fluorogenic geneticamente codificati, roGFP2 e HyPer, di essere usato negli studi di formazione immagine di cellule vive per osservare risposte ossidativa indotto da xenobiotici. roGFP2 equilibra con il potenziale redox del glutatione (GSHdi E), mentre HyPer rileva direttamente il perossido di idrogeno (H2O2). Entrambi i sensori possono essere espressi in vari tipi cellulari tramite transfezione o trasduzione e possono essere mirati a specifici compartimenti cellulari. La cosa più importante, microscopia di vivere-cella utilizzando questi sensori offre alta risoluzione spaziale e temporale che non è possibile utilizzare i metodi convenzionali. Cambiamenti dell'intensità di fluorescenza monitorati a 510 nm serve come la lettura per entrambi i sensori fluorogenic geneticamente codificato quando eccitato in sequenza da 404 nm e 488 nm luce. Questa proprietà rende entrambi sensori raziometrici, eliminando gli elementi comuni di microscopia e la correzione per le differenze nell'espressione di sensore tra le celle. Questa metodologia può essere applicata attraverso una varietà di piattaforme fluorometriche capace di emozionante e raccolta delle emissioni alle lunghezze d'onda prescritte, che lo rende adatto per l'utilizzo con sistemi di imaging confocale microscopia convenzionale grandangolari e piastra lettori. Entrambi i sensori fluorogenic codificato geneticamente sono stati utilizzati in una varietà di tipi cellulari e studi tossicologici per monitorare cellulare EGSH e H2O2 generazione in tempo reale. Qui delineato è un metodo standard che è ampiamente adattabile su tipi cellulari e fluorometriche piattaforme per l'applicazione di roGFP2 e HyPer nelle cellule vive valutazioni tossicologiche dello sforzo ossidativo.
Introduzione
Il termine "stress ossidativo" è spesso citato come un meccanismo in tossicologia, eppure è raramente questo termine descritto in particolare. Lo stress ossidativo può riferirsi a diversi processi intracellulari, inclusa la generazione di specie reattive dell'ossigeno, danni causati dai radicali liberi, l'ossidazione di molecole antiossidanti, e anche l'attivazione di specifiche di segnalazione a cascata. Un'ampia gamma di contaminanti ambientali1,2 e3,di agenti farmaceutici4 sono stati documentati per indurre stress ossidativo sia agendo direttamente il composto xenobiotici in sé5 ,6 o secondariamente dalla produzione di specie ossidanti come parte di una risposta cellulare7,8,9,10. È quindi di grande interesse in tossicologia accuratamente osservare e caratterizzare i processi ossidativi che portano a risultati negativi. I metodi convenzionali di misurazione dello stress ossidativo coinvolgono identificazione di biomolecole ossidato11,12,13,14,15 o antiossidanti16 ,17,18,19,20, o la misura diretta delle specie reattive stessi21,22,23, 24. Tuttavia, questi metodi richiedono in genere la rottura cellulare, che spesso consuma il campione, Elimina la risoluzione spaziale e potenzialmente introduce artefatti25. Lo sviluppo di metodi più sensibili e specifici per la rilevazione di specie ossidanti e indicatori dello sforzo ossidativo è ampiamente applicabile per l'indagine degli effetti avversi dell'esposizione degli xenobiotici.
Microscopia di vivere-cella utilizzando una nuova generazione di sensori fluorogenic geneticamente codificato è emerso come un potente strumento per monitorare lo stato redox intracellulare delle cellule viventi. Questi sensori sono in genere espressi utilizzando un vettore sotto il controllo di un promotore virale che viene introdotto attraverso metodologie di transfezione o trasduzione. L'efficienza alta espressione non è necessario, poiché le cellule che esprimono il sensore fluorescente possono essere facilmente identificate visivamente. Per le valutazioni tossicologiche, le cellule che esprimono questi sensori possono essere osservate mediante microscopia a fluorescenza come sono esposti a composti xenobiotici in tempo reale. Questo disegno sperimentale consente misurazioni ripetute nella stessa cella, consentendo di riferimento di ogni cella di agire come il suo controllo. L'alta risoluzione temporale offerta da formazione immagine della vivere-cella è particolarmente adatta per la rilevazione di eventi ossidativi, specialmente quelli che sono modesti in grandezza o transitori in natura. Oltre ad essere sia sensibile e specifico per loro molecole bersaglio, la fluorescenza di alcuni di questi sensori possa essere eccitata utilizzando due lunghezze d'onda della luce. Questo fenomeno permette l'emissione fluorescente essere espresso come rapporto, che permette il discernimento dei cambiamenti del segnale associati a risposte sensore autentici da quelli causati da manufatti come variazioni di espressione di sensore, spessore della cella, lampada intensità, photobleaching e la sensibilità del rivelatore di fluorescenza26. Un altro vantaggio dell'uso di sensori fluorogenic è che essi possono essere mirate a specifici compartimenti cellulari, creando un livello di risoluzione spaziale che è ineguagliata da metodi convenzionali25,26,27.
Una grande famiglia di sensori geneticamente codificati basati sulla proteina fluorescente verde (GFP) sono stati sviluppati e caratterizzati al rapporto su un'ampia varietà di indicatori fisiologici, compreso il pH, la temperatura, le concentrazioni nel calcio e il rapporto ATP/ADP25 ,28,29,30,31. Sono inclusi fra questi sensori del potenziale redox del glutatione (EGSH) e perossido di idrogeno (H2O2). Mentre questi sensori sono stati sviluppati per applicazioni in redox biologia e fisiologia, sono stati anche adattati per studiare lo sforzo ossidativo indotto da xenobiotici. In particolare, il protocollo descritto qui descrive l'uso del roGFP2 di sensore EGSH e il sensore di H2O2 HyPer.
roGFP2 segnala il potenziale redox del glutatione intracellulare ridotto e ossidato (GSH/GSSG) attraverso un relè redox che coinvolgono il glutatione perossidasi (GPx), glutaredossina (Grx) e glutatione reduttasi (GR) (Figura 1)25, 32 , 33. il glutatione è la molecola antiossidante cellulare predominante ed è presente principalmente nella sua forma ridotta (GSH) in concentrazioni millimolar nel cytosol25,34. Mentre EGSH non è stato collegato a qualsiasi risultato funzionale, è riconosciuto come un importante indicatore di stato ossidativo intracellulare34. Un relativamente piccolo aumento nella concentrazione di GSSG si traduce in un aumento in EGSH che è rilevabile da roGFP2. Altrettanto importante, monitoraggio di EGSH utilizzando roGFP2 durante le esposizioni xenobiotici può potenzialmente rivelare molto circa il meccanismo di azione in diversi punti nel relè redox e vie associate, quali il pentosio fosfato dello shunt (Figura 1 )35. Il secondo sensore discusso qui, HyPer, è un'intracellulare sonda del2 H2O derivata dall'inserimento di proteina fluorescente gialla (YFP) nel dominio normativo batterica H2O2-trascrizione sensibili fattore OxyR136. Anche se si è precedentemente ritenuto una dannosa reattive dell'ossigeno intermedio, H2O2 è sempre più riconosciuto come un'importante molecola di segnalazione intracellulare sotto condizioni fisiologiche37, 38, suggerendo che in tossicologia pure esistono ruoli non riconosciuti per H2O2 . Per esempio, in eccesso H2O2 indotti da esposizione a xenobiotici potrebbe essere un precursore di disregolazione nella segnalazione cellulare o uno spostamento in bioenergetica.
Entrambi i sensori fluorogenic geneticamente codificati sono state espresse in diverse linee cellulari stabilizzate, tra cui la linea cellulare di carcinoma epidermoide umano A431 e la linea di cellule epiteliali bronchiali umane BEAS-2B, per osservare i cambiamenti EGSH e H2 O2 in risposta a una serie di esposizioni tossicologiche. Questi includono gli inquinanti gassosi (ozono35), componenti solubili del particolato (1,2 naftochinone39,40 e zinco41) e nanoparticelle di nichel (dati non pubblicati). Questi studi rappresentano solo un piccolo sottoinsieme delle possibili applicazioni di questi due sensori. Teoricamente, qualsiasi tipo di cellula che è in grado di ricevere ed esprimere il DNA di questi sensori attraverso tecniche di biologia molecolare convenzionali possa essere utilizzata per valutare gli effetti degli xenobiotici sospettate di alterare lo stato ossidativo cellulare. Ad oggi, uno o più di questi sensori è stato espresso in varie procarioti e negli eucarioti, tra cui diversi mammiferi, pianta, batterica e lievito cella tipi25,26,36,42. La lettura per entrambi EGSH e H2O2 sensori è un cambiamento nell'intensità di fluorescenza emessa a 510 nm eccitazione con 488 e 404 nm luce. Questo metodo è ampiamente adattabile fluorometrica tipi di piattaforme, tra cui vari tipi di microscopia (confocale e grandangolari) e i lettori di micropiastre. Il metodo qui presentato consente per osservazione sensibile e specifico di intracellulare EGSH e H2O2 in sistemi in vitro tossicologici.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
1. preparazione delle celle
Nota: Questa procedura descrive la trasduzione lentivirale di una linea di cellule immortalizzate (BEAS-2B; ATCC, Manassas, VA) per esprimere il reporter desiderato (roGFP2 o HyPer). Altre linee/tipi di cellule e/o metodi di trasferimento di geni, tra cui transfezione, possono essere utilizzati, purché si traducono in un livello di reporter espressione adeguata per visualizzare un numero sufficiente di cellule esprimenti sensore per campo visivo (in genere 5-10 celle). Se si utilizza metodi di transfezione, la procedura deve essere eseguita nel piatto che alla fine verrà utilizzato per il metodo di analisi (ad es., transfect le cellule nello stesso piatto che sarà presentato al microscopio). La procedura descritta di seguito fornisce dettagli per preparazione trasduzioni di cella da eseguirsi in una piastra di coltura delle cellule 6 pozzetti. Se questo formato non è una dimensione appropriata per l'applicazione desiderata, possono essere sostituiti altre navi.
- Crescere le cellule per circa 40-60% confluenza nei media di crescita normale.
Nota: Questo studio ha utilizzato la linea di cellule epiteliali bronchiali umane, BEAS-2B, coltivata in un terreno di crescita dei cheratinociti (KGM). - Appena prima di trasduzione, sostituire il supporto di crescita sulle cellule con 500 µ l di supporto privo di siero contenente la quantità appropriata di virus, calcolato mediante la formula:
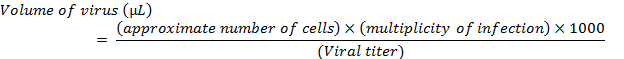
- Per la trasduzione delle cellule BEAS-2B, è necessario utilizzare sostanza basale del keratinocyte privo di siero (KBM) per sostituire i media di crescita KGM durante le incubazioni virale.
Nota: Il calcolo di cui sopra è per un singolo trasduzione del una bene delle celle in un formato di 6 pozzetti. Se necessario, eseguire trasduzioni di parecchi pozzi possono essere eseguite modificando la formula con una moltiplicazione per il numero di pozzetti essere transduced. Per trasduzioni lentivirali, usano una molteplicità di infezione (MOI) compreso tra 5 e 20. Per adenoviral trasduzioni, utilizzare un MOI tra 100 e 500.
- Per la trasduzione delle cellule BEAS-2B, è necessario utilizzare sostanza basale del keratinocyte privo di siero (KBM) per sostituire i media di crescita KGM durante le incubazioni virale.
- Incubare le cellule con la miscela virale a 37 ° C per 4 h, ridistribuendo le particelle virali nel piatto ogni 30-60 minuti con un breve a dondolo o vorticoso movimento.
- Aggiungere 1 mL di coltura completa al piatto e incubare a 37 ° C per 4-16 h.
- Rimuovere tutti i supporti e sostituire con mezzi freschi di sviluppo completo.
- Continuare a crescere e le cellule del passaggio, espandere, se necessario.
Nota: Le celle dovrebbero iniziare esprimendo sensibilmente il sensore entro 12-48 h. Se un vettore lentivirale è stato utilizzato per la trasduzione, espressione stabile del sensore desiderato dovrebbe proseguire attraverso passaggi. - Per valutazioni basate su microscopia, cellule di seme in vetro con fondo piatti di microscopio e crescono per confluenza desiderata (≥ 70 - 80%) prima di formazione immagine.
Nota: Densità di semina dipende la dimensione del piatto, tasso di crescita della linea cellulare-utilizzata e il tempo della valutazione dopo la semina. Ad esempio, seme 300.000 BEAS-2B cellule in un piatto di 35 mm per produrre circa 70-80% confluenza dopo 1 giorno di crescita.
2. microscopia set-up
Nota: Il protocollo descritto di seguito viene eseguito utilizzando un microscopio confocale equipaggiato con linee laser a 404 e 488 nm. Altri mezzi di valutazione fluorometriche dei sensori descritti all'interno di questo protocollo alle loro eccitazioni/emissione previsti di debbono anche produrre dati vitali. D'importanza, le impostazioni di attrezzatura possono variare notevolmente a seconda del tipo, età e condizione dello strumento utilizzato; così, qualsiasi valori di strumento cui potrebbero non essere specifici per le attrezzature utilizzate in altri laboratori.
- Eseguire tutte le analisi di imaging utilizzando i controlli ambientali per mantenere una temperatura adeguata (ad es., 37 ° C), umidità (in genere > 95% di umidità relativa), e/o gas di concentrazione (per esempio, 5% CO2) adatto per le cellule in tutto il durata dell'esperimento.
- Se utilizza elevati valori di umidità relativa, mantenere le superfici che possono venire a contatto con l'atmosfera umidificata (ad es., l'obiettivo del microscopio) o leggermente superiore la temperatura alla quale l'umidità viene generato al fine di evitare la condensazione. Questo può essere realizzato con l'uso di un riscaldatore oggettivo e/o riscaldamento nastro e un controllo appropriato riscaldatore.
- Accendere tutti i componenti del microscopio e impostare tutte le apparecchiature necessarie per l'eccitazione sequenziale a 488 e 404 nm con emissione a 510 nm. Garantire a tutti i componenti della configurazione ottica sono impostati in modo appropriato per acquisizione in tempo reale.
- Istituire una camera ambientale di palcoscenico-top per mantenere la temperatura costante a 37 ° C, 5% CO2 ambiente, e > 95% di umidità. Prima di iniziare l'acquisizione di immagini, equilibrare la camera ambientale per almeno 10 minuti dopo la configurazione iniziale di tutti i controlli ambientali.
Nota: Condizioni ambientali possono essere eliminate o regolate a seconda della lunghezza di esperimento, tipo di cella ed esposizione utilizzato. - Posizionare il piatto di cellule (passaggio 1.7) sul palco-top all'interno della camera ambientale.
- Con la lente dell'obiettivo desiderata, trovare il piano focale delle cellule usando l'oculare e la luce bianca e garantire la morfologia normale.
Nota: Un 1.4 NA 60 X viola-rettificato, olio dell'obiettivo è comunemente usato, che consenta l'identificazione dei compartimenti intracellulari massimizzando al contempo la risoluzione ottica del sistema confocale. - Verificare che l'espressione di fluorescenza delle cellule nel campo visivo. Farlo mentre visualizzando le cellule nell'ambito dell'illuminazione di fluorescenza grandangolari con un filtro appropriato, ad esempio isotiocianato di fluorescina (FITC). A questo punto, usando l'illuminazione grandangolari mentre guardando attraverso l'oculare è più conveniente perché è più facile spostare il piatto per selezionare un campo di cellule per studiare. In generale, scegliere un campo di vista che contiene almeno 5 a 10 celle che stanno esprimendo il sensore, come indicato dalla fluorescenza verde.
- In alternativa, eseguire questa valutazione utilizzando confocally eccitazione laser alla lunghezza d'onda che è più compatibile con il sensore viene espresso (488 nm in genere funziona meglio).
Nota: A causa di loro proprietà intrinseche, fluorescente, sarà più difficile da visualizzare cellule esprimenti HyPer rispetto a quelli che esprimono roGFP2 utilizzando entrambi FITC o a 488 nm. Tuttavia, dovrebbe essere ancora possibile vedere le cellule deboli.
- In alternativa, eseguire questa valutazione utilizzando confocally eccitazione laser alla lunghezza d'onda che è più compatibile con il sensore viene espresso (488 nm in genere funziona meglio).
- Una volta che viene trovato un campo di vista desiderato, chiudere la camera ambientale.
Nota: Utilizzare la funzionalità di messa a fuoco-mantenendo, spesso disponibile su supporti di microscopio avanzato, per facilitare la manutenzione di un piano focale stabile in tutto lo studio. - Impostare i parametri di acquisizione per garantire una valutazione ottima del sensore di interesse in tutto il periodo di esposizione desiderata. Di seguito sono consigli e approcci per l'imaging confocale di risposte del sensore:
- Regolare la potenza del laser per eccitazione a 488 nm ed emissione a 510 nm. Scegliere un livello di potenza del laser che permette la visualizzazione delle cellule e mantenere questo costante tra i campioni o replicare piatti.
Nota: Per questo studio, 12% e 1,5% laser potenza sono stati usati per le linee di laser nm 488 e 404, rispettivamente. - Utilizzare i controlli confocale del software acquisizione per garantire che il piano focale selezionato è stato ottimizzato per intensità di emissione di fluorescenza massima al centro delle cellule (asse z) mediante la scansione a 488 nm regolando il piano z. Questo è reso più facile utilizzando un'impostazione ad alto guadagno durante la ricerca per il z-plane che provoca le cellule più sovra-esposte. Una volta che il piano focale appropriato è stato trovato, restituire il guadagno di un'impostazione che è ottimale per la fluorescenza del reporter viene utilizzato senza oversaturating i pixel osservati.
Nota: Le impostazioni di guadagno e laser che sono appropriate per la ricerca e osservando le cellule durante la sperimentazione è completamente dipendente sul sistema confocale utilizzato. In generale, una volta che le cellule sono state trovate nel campo di vista, è consigliabile che una quantità minima di potenza laser essere utilizzato (in genere ≤ 20%), come scansione eccessiva delle cellule usando la luce laser ad alta potenza possono indurre cambiamenti ossidativi rilevabile dal sensore. - Utilizzare il guadagno per ottimizzare la fluorescenza della linea di base. Con roGFP2, è necessario stabilire la linea di base vicino al limite superiore (intensità relativa del 90% ≈) dello strumento senza sovra-saturazione, come queste cellule perderà 510 fluorescenza nm indotto di eccitazione di 488 nm quando EGSH aumenta. Al contrario, dovrebbe essere l'intensità di fluorescenza con eccitazione di 488 nm bassa (intensità relativa di ≈ 10%) alla linea di base per HyPer che esprimono le cellule, come queste cellule guadagnerà l'intensità di fluorescenza 510 nm quando viene rilevato un H2O2 .
- Ripetere i passaggi 2.9.2 e 2.9.3 con eccitazione a 404 nm ed emissione a 510 nm. Impostazioni di guadagno per lunghezza d'onda di eccitazione di nm 404 sono opposte a quelle utilizzate con l'eccitazione di 488 nm per ciascun sensore (cioè, fluorescenza di basso della linea di base (intensità relativa del 10% ≈) 404 nm per roGFP2, fluorescenza basale alta (intensità relativa del 90% ≈) per H2 O2 sensore).
Nota: In generale, la fluorescenza (510 emissione) a 404 eccitazione nm sarà notevolmente inferiore che ottenibile con eccitazione a 488 nanometro in cellule che esprimono sia roGFP2 e HyPer, come la 404 nm picco è una relativamente minore eccitazione massima per entrambi questi sensori.
- Regolare la potenza del laser per eccitazione a 488 nm ed emissione a 510 nm. Scegliere un livello di potenza del laser che permette la visualizzazione delle cellule e mantenere questo costante tra i campioni o replicare piatti.
3. acquisizione dati
- Installare il software di acquisizione per eccitare in sequenza le due lunghezze d'onda di eccitazione (primo 488 nm e quindi 404 nm) e raccogliere le emissioni per entrambi a 510 nm in un intervallo di tempo predeterminato per tutta la lunghezza desiderata dell'esperimento (ad esempio catturare immagini ogni 60 s per 60 min).
- In alternativa, acquisire immagini manualmente prima e dopo le esposizioni se la tempistica approssimativa delle modifiche EGSH o H2O2 è noti per il xenobiotici in fase di test. Tuttavia, questo può portare a perdita di risoluzione temporale.
- Per la valutazione in tempo reale dei parametri sperimentali, scegliere almeno 5-10 sensore-esprimendo le cellule nel campo e stabilire come regioni di interesse ("ROIs") per monitorare i loro cambiamenti di fluorescenza durante l'esperimento.
Nota: Questo passaggio è facoltativo e può essere eseguito dopo l'esperimento se osservazione diretta in tempo reale è indesiderabile o limitazioni del software impediscono un monitoraggio continuo. A seconda della popolazione delle cellule, la selezione del sensore che esprimono le cellule come ROIs potrebbe rappresentare una gamma di livelli di espressione in cellule.- Per questi studi, aggiungere il tossico ambientale 9,10-phenanthrenequinone (9,10-PQ) o perossido di idrogeno (H2O2) dopo un periodo basale di 5 min.
- Preparare tutti i reagenti per un uso successivo in questo protocollo. Sciogliere 9,10-PQ in dimetilsolfossido (DMSO) a una concentrazione di 15 mM e diluire in media delle cellule basali per produrre una soluzione di lavoro 250 µM. Inoltre, preparare una soluzione di perossido di idrogeno in acqua che consentiranno di ottenere una concentrazione finale di 1mM su iniezione.
- Dopo aver definiti i parametri sperimentali, iniziare l'acquisizione di corso di tempo. Stabilire un periodo basale di almeno 5 minuti (o 5 punti dati) prima di iniziare le esposizioni degli xenobiotici.
- Esporre le cellule per la sostanza tossica indagato utilizzando gli approcci convenzionali per il dosaggio di in vitro . Preparare i composti solubili in acqua o altro solvente appropriato e inserire direttamente nel supporto.
- Se solventi organici (ad es. solfossido dimetilico o etanolo) sono necessari, mantenere la concentrazione di solventi finale pari o inferiore allo 0,1%. Verificare che il solvente non produce un effetto su EGSH o H2O2 produzione con un controllo del veicolo in un piatto separato delle cellule.
- Per i composti con bassa solubilità, aggiungere un passaggio di miscelazione utilizzando una micropipetta al protocollo dopo l'iniezione è fatta. Pompa gassose esposizioni direttamente nella camera di ambientale mediante la miscela di gas vettore adatto.
- Monitorare i cambiamenti in fluorescenza durante il periodo di esposizione. Eseguire le iniezioni successive come necessario. Prendere molta cura di non spostare il piatto durante le iniezioni, in modo che le stesse cellule sono seguite durante tutto il corso di tutto il tempo mentre imaged sullo stesso piano focale.
- Alla fine dell'esperimento, esporre le cellule per controlli appropriati. Per entrambi i sensori fluorogenic geneticamente codificato, aggiungere specifiche concentrazioni di composti noti per ossidare e ridurre questi sensori in una dimostrazione aguzzo della loro reattività raziometrici. H2O2 e ditiotreitolo (DTT) fungere da controlli adeguati per ossidare e ridurre entrambi i sensori. In genere, una concentrazione finale di 100-1.000 µM H2O2, seguita da 1-5 mM dithiothreitol (DTT), consente all'utente di completamente ossidare e ridurre questi sensori.
- Per questi studi, utilizzare 1 mM H2O2 seguito da 5 mM DTT per determinare la risposta del sensore massima.
- Attendere almeno 5 minuti per consentire al sensore di rispondere e poi iniettare un agente riducente, come DTT, per ridurre il senor e restituirlo ad un livello di fluorescenza in o vicino alla propria linea di base stabilito.
Nota: L'utilizzo di controlli in questo passaggio è fondamentale per la normalizzazione e deve essere eseguita alla fine di ogni esperimento per determinare la gamma dinamica del sensore in ogni cella. Per roGFP2, aldrithiol può anche essere aggiunto alla fine dell'esperimento. Aldrithiol ignora il relè redox roGFP2 per ossidare il sensore direttamente. Questo è utile per valutare la funzione del sensore dopo esposizione xenobiotici.
4. analisi dei dati
- Se non è già stabilita, disegnare ROIs intorno alle cellule per essere analizzati. Utilizzare il software appropriato per misurare l'intensità della fluorescenza di ogni ROI a ogni lunghezza d'onda durante tutto il corso del tempo. Assicurarsi che le celle non si muove o la piastra non ha spostato durante l'esecuzione.
Nota: L'istituzione di ROIs è più facilmente realizzabile disegnando un'area chiusa che segue il modello di espressione fluorescente di ciascuna cella. Per ulteriore assistenza con questo processo, un'immagine trasmessa di luce (o campo chiaro) le celle all'interno del campo visivo stabilito può essere sovrapposta sull'immagine fluorescente negli sforzi per definire i bordi della cella. Tuttavia, l'uso di un'immagine di luce trasmessa richiede all'utente di catturare un canale aggiuntivo (set di immagini) durante tutto il corso dell'esperimento. In alternativa, alcuni produttori incorporano algoritmi nel loro software di imaging che utilizza parametri specifici quali soglie di intensità per stabilire ROIs in un metodo meno soggettivo, più quantitativo. - Esportare i dati al software di analisi desiderati (ad es., foglio elettronico).
- Calcolare la risposta del sensore raziometrici per ogni ROI in ogni momento utilizzando le formule:
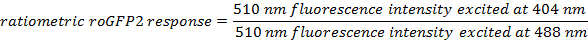
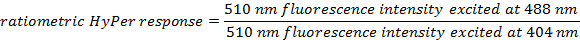
- Per ogni punto di tempo, media dei valori calcolati raziometrici di ROIs tutti.
- Calcolare il valore di base, che verrà utilizzato per normalizzare i dati, calcolando i valori raziometrici calcolato in precedenza (punto 4.4) raccolti prima dell'aggiunta di xenobiotici (ad es., i primi punti di cinque volte).
- Normalizzare i valori di raziometrici dal passaggio 4.4 dividendo ogni valore per il valore di base calcolato in 4.5. Rapporti normalizzati avrà al centro intorno ad un valore di 1 al basale, mentre aumenta in EGSH o H2O2 iniezioni seguenti causerà il rapporto aumentare. Le valutazioni di xenobiotici che inducono cambiamenti ossidativi tendono a produrre valori in un intervallo di 3 - 6 volte il valore basale.
- Per facilitare il confronto tra le risposte all'interno e attraverso esperimenti, esprimere i dati normalizzati come una percentuale di risposta del sensore massima definendo la risposta per l'ossidante di controllo (ad es., 1 mM H2O2) come 100%.
Nota: Se esprimere i dati come una percentuale di risposta del sensore massima, è fondamentale per garantire che la stessa concentrazione dell'ossidante di controllo viene utilizzata costantemente attraverso esperimenti. Tutti i dati derivati dall'analisi di imaging di cellule vive è favorevole alla convenzionale pairwise e group-wise di analisi statistica per essere scelto a discrezione del ricercatore.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
L'uso di roGFP2 e HyPer nel rilevamento di modifiche EGSH e intracellulare H2O2 è stato ben descritto in precedenza25,36,42,43 ed è dimostrato qui. Immagini confocal di cellule che esprimono roGFP2 al basale e seguente aggiunta di H2O2 e DTT sono mostrati nella Figura 2. Dati da...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
L'uso di roGFP2 e HyPer nel rilevare cambiamenti intracellulari EGSH e H2O2, rispettivamente, è stata ben descritta in precedenti studi fisiologici e tossicologici 25,35,36 ,39,40,41,42,43. Il protocollo descritto qui segna...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
La ricerca descritta in questo articolo è stata recensita da the National Health e laboratorio di ricerca di effetti ambientali, U.S. Environmental Protection Agency e approvata per la pubblicazione. Il contenuto di questo articolo non deve essere interpretato per rappresentare la politica dell'Agenzia, né fa menzione di marchi o prodotti commerciali costituisce approvazione o raccomandazione per l'uso.
Ringraziamenti
Gli autori vorrei ringraziare Katelyn Lavrich per assistenza con disegno sperimentale e manoscritto modifiche.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| roGFP2 Plasmide | Università dell'Oregon | N/A | Generoso dono di S.J. Remington |
| HyPer Plasmid | Evrogen | FP941 | |
| Perossido di idrogeno | Sigma Aldrich | H1009 | |
| Ditiotreitolo | Sigma Aldrich | 10708984001 | |
| 9,10-Phenanthrenequinone | Sigma Aldrich | 156507 | |
| Nero Piatti con fondo in vetro da parete | Ted Pella | 14029-20 | |
| Linea cellulare BEAS-2B | Collezione di colture di tipo americano | CRL-9609 | |
| Cheratinocita Lonza media basale | 192151 | ||
| Crescita dei cheratinociti Medium BulletKit | Lonza 192060 | ||
| Excel | Microsoft Office Suite | N/A | |
| NIS-Elements AR Imaging Software | Nikon | N/A | |
| Nikon C1si Sistema di imaging confocale | Nikon | N/A |
Riferimenti
- Cross, C. E., et al. Environmental oxidant pollutant effects on biologic systems: a focus on micronutrient antioxidant-oxidant interactions. Am J Respir Crit Care Med. 166, 44-50 (2002).
- Kobzik, L. Environmental particulate-mediated cytokine production in lung epithelial cells (A549): role of preexisting inflammation and oxidant stress. J Toxicol Environ Health. 55, 31-44 (1998).
- Jaeschke, H., McGill, M. R., Ramachandran, A. Oxidant stress, mitochondria, and cell death mechanisms in drug-induced liver injury: lessons learned from acetaminophen hepatotoxicity. Drug Metab Reviews. 44, 88-106 (2012).
- Wolf, M. B., Baynes, J. W. The anti-cancer drug, doxorubicin, causes oxidant stress-induced endothelial dysfunction. Biochim Biophys Acta. 1760, 267-271 (2006).
- Kumagai, Y., Shinkai, Y., Miura, T., Cho, A. K. The chemical biology of naphthoquinones and its environmental implications. Annu Rev Pharmacol Toxicol. 52, 221-247 (2012).
- Pham, H. T., Maccarone, A. T., Campbell, J. L., Mitchell, T. W., Blanksby, S. J. Ozone-induced dissociation of conjugated lipids reveals significant reaction rate enhancements and characteristic odd-electron product ions. J Am Soc Mass Spectrom. 24, 286-296 (2013).
- Abdel-Malek, Z. A., Kadekaro, A. L., Swope, V. B. Stepping up melanocytes to the challenge of UV exposure. Pigment Cell Melanoma Res. 23, 171-186 (2010).
- Berisha, H., Pakbaz, H., Absood, A., Foda, H., Said, S. Nitric oxide mediates oxidant tissue injury caused by paraquat and xanthine oxidase. Ann N Y Acad Sci. 723, 422-425 (1994).
- Gao, X., et al. Mitochondrial dysfunction may explain the cardiomyopathy of chronic iron overload. Free Radic Bio Med. 49, 401-407 (2010).
- Shukla, A., et al. Asbestos induces mitochondrial DNA damage and dysfunction linked to the development of apoptosis. Am J Physiol Lung Cell Mol Physiol. 285, 1018-1025 (2003).
- Charles, R., Jayawardhana, T., Eaton, P. Gel-based methods in redox proteomics. Biochim Biophys Acta. 1840, 830-837 (2014).
- Thornalley, P. J., Rabbani, N. Detection of oxidized and glycated proteins in clinical samples using mass spectrometry-a user's perspective. Biochim Biophys Acta. 1840, 818-829 (2014).
- Arato, S., Ito, H., Miyashita, K., Hayakawa, K., Itabashi, Y. A facile method for the detection of aldehydes in oxidized lipids using solid-phase microextraction fiber and gas chromatograph equipped with a septum-free injector. J Oleo Sci. 58, 17-22 (2009).
- Collins, A. R. Measuring oxidative damage to DNA and its repair with the comet assay. Biochim Biophys Acta. 1840, 794-800 (2014).
- Churg, A., Keeling, B., Gilks, B., Porter, S., Olive, P. Rat mesothelial and tracheal epithelial cells show equal DNA sensitivity to hydrogen peroxide-induced oxidant injury. Am J Physiol Lung Cell Mol Physiol. 268, 832-838 (1995).
- Fraga, C. G., Oteiza, P. I., Galleano, M. In vitro measurements and interpretation of total antioxidant capacity. Biochim Biophys Acta. 1840, 931-934 (2014).
- Niki, E., Noguchi, N. Evaluation of antioxidant capacity: what capacity is being measured by which method. IUBMB Life. 50, 323-329 (2000).
- Pharikal, K., Das, P., Dey, C., Dasgupta, S. Tissue ascorbate as a metabolic marker in cadmium toxicity. Int J Vitam Nut Res. 58, 306-311 (1987).
- Tabata, M., Totani, M., Murachi, T. A chemiluminometric method for NADPH and NADH using a two-enzyme bioreactor and its application to the determination of magnesium in serum. Biomed Chrom. 4, 123-127 (1990).
- Ballatori, N., et al. Glutathione dysregulation and the etiology and progression of human diseases. Biol Chem. 390, 191-214 (2009).
- Nauseef, W. M. Detection of superoxide anion and hydrogen peroxide production by cellular NADPH oxidases. Biochim Biophys Acta. 1840, 757-767 (2014).
- Hawkins, C. L., Davies, M. J. Detection and characterisation of radicals in biological materials using EPR methodology. Biochim Biophys Acta. 1840, 708-721 (2014).
- Kettle, A. J., et al. Measuring chlorine bleach in biology and medicine. Biochim Biophys Acta. 1840, 781-793 (2014).
- Carballal, S., Bartesaghi, S., Radi, R. Kinetic and mechanistic considerations to assess the biological fate of peroxynitrite. Biochim Biophys Acta. 1840, 768-780 (2014).
- Meyer, A. J., Dick, T. P. Fluorescent protein-based redox probes. Antioxid Redox Signal. 13, 621-650 (2010).
- Dooley, C. T., et al. Imaging dynamic redox changes in mammalian cells with green fluorescent protein indicators. J Biol Chem. 279, 22284-22293 (2004).
- Malinouski, M., Zhou, Y., Belousov, V. V., Hatfield, D. L., Gladyshev, V. N. Hydrogen peroxide probes directed to different cellular compartments. PloS One. 6, 14564(2011).
- Guzman, J. N., et al. Oxidant stress evoked by pacemaking in dopaminergic neurons is attenuated by DJ-1. Nature. 468, 696-700 (2010).
- Breckwoldt, M. O., et al. Multiparametric optical analysis of mitochondrial redox signals during neuronal physiology and pathology in vivo. Nat Med. 20, 555-560 (2014).
- Wolf, A. M., Nishimaki, K., Kamimura, N., Ohta, S. Real-time monitoring of oxidative stress in live mouse skin. J Invest Dermatol. 134, 1701-1709 (2014).
- Mishina, N. M., et al. Does cellular hydrogen peroxide diffuse or act locally. Antioxid Redox Signal. , (2011).
- Gutscher, M., et al. Real-time imaging of the intracellular glutathione redox potential. Nat Methods. 5, 553-559 (2008).
- Lohman, J. R., Remington, S. J. Development of a family of redox-sensitive green fluorescent protein indicators for use in relatively oxidizing subcellular environments. Biochem. 47, 8678-8688 (2008).
- Schafer, F. Q., Buettner, G. R. Redox environment of the cell as viewed through the redox state of the glutathione disulfide/glutathione couple. Free Radic Bio Med. 30, 1191-1212 (2001).
- Gibbs-Flournoy, E. A., Simmons, S. O., Bromberg, P. A., Dick, T. P., Samet, J. M. Monitoring intracellular redox changes in ozone-exposed airway epithelial cells. Environ Health Perspect. 121, 312(2013).
- Belousov, V. V., et al. Genetically encoded fluorescent indicator for intracellular hydrogen peroxide. Nat Methods. 3, 281-286 (2006).
- Wood, Z. A., Poole, L. B., Karplus, P. A. Peroxiredoxin evolution and the regulation of hydrogen peroxide signaling. Science. 300, 650-653 (2003).
- Sies, H. Role of Metabolic H2O2 Generation REDOX SIGNALING AND OXIDATIVE STRESS. J Biol Chem. 289, 8735-8741 (2014).
- Cheng, W. -Y., et al. Linking oxidative events to inflammatory and adaptive gene expression induced by exposure to an organic particulate matter component. Environ Health Perspect. 120, 267(2012).
- Cheng, W. -Y., et al. An integrated imaging approach to the study of oxidative stress generation by mitochondrial dysfunction in living cells. Environ Health Perspect. , 902-908 (2010).
- Wages, P. A., et al. Role of H 2 O 2 in the oxidative effects of zinc exposure in human airway epithelial cells. Redox Biol. 3, 47-55 (2014).
- Morgan, B., Sobotta, M. C., Dick, T. P. Measuring E GSH and H2O2 with roGFP2-based redox probes. Free Radic Bio Med. 51, 1943-1951 (2011).
- Schwarzländer, M., Dick, T. P., Meyer, A. J., Morgan, B. Dissecting redox biology using fluorescent protein sensors. Antiox Redox Signal. 24, 680-712 (2016).
- Wang, L., Atkinson, R., Arey, J. Formation of 9, 10-phenanthrenequinone by atmospheric gas-phase reactions of phenanthrene. Atmos Environ. 41, 2025-2035 (2007).
- Tantama, M., Hung, Y. P., Yellen, G. Imaging intracellular pH in live cells with a genetically encoded red fluorescent protein sensor. J Am Chem Soc. 133, 10034-10037 (2011).
- Matlashov, M. E., et al. Fluorescent ratiometric pH indicator SypHer2: applications in neuroscience and regenerative biology. Biochim Biophys Acta. 1850, 2318-2328 (2015).
- Hou, J. -T., et al. A highly selective water-soluble optical probe for endogenous peroxynitrite. Chem Commun. 50, 9947-9950 (2014).
- Kojima, H., et al. Detection and imaging of nitric oxide with novel fluorescent indicators: diaminofluoresceins. Anal Chem. 70, 2446-2453 (1998).
- Gabe, Y., Ueno, T., Urano, Y., Kojima, H., Nagano, T. Tunable design strategy for fluorescence probes based on 4-substituted BODIPY chromophore: improvement of highly sensitive fluorescence probe for nitric oxide. Anal Bioanal Chem. 386, 621-626 (2006).
- Garner, A. L., et al. Specific fluorogenic probes for ozone in biological and atmospheric samples. Nat Chem. 1, 316-321 (2009).
- Cheng, W. -Y., Larson, J. M., Samet, J. M. Monitoring intracellular oxidative events using dynamic spectral unmixing microscopy. Methods. 66, 345-352 (2014).
- Wages, P. A., Cheng, W. -Y., Gibbs-Flournoy, E., Samet, J. M. Live-cell imaging approaches for the investigation of xenobiotic-induced oxidant stress. Biochim Biophys Acta. 1860, 2802-2815 (2016).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
