Un protocollo per lo studio di eventi guidati da FcγRIIIa da anticorpi terapeutici in cellule natural killer umane è descritto qui. Questa piattaforma di stimolazione artificiale consente l'interrogazione delle funzioni emozionali a valle come la degranulazione, la produzione di chemochine / citochine e le vie di segnalazione mediate dalle porzioni FcγRIIIa e Fc degli anticorpi coinvolti nel legame.
Articolo metodologico
Valutazione degli eventi delle cellule natural killer umane guidati dall'impegno di FcγRIIIa nella presenza di anticorpi terapeutici
In questo articolo
Sommario
Abstract
Un meccanismo d'azione per l'efficacia clinica degli anticorpi terapeutici è la promozione di funzioni immuno-correlate, come la secrezione di citochine e la citotossicità, guidate da FcγRIIIa (CD16) espressa su cellule natural killer (NK). Queste osservazioni hanno portato a ricerche incentrate su metodi per aumentare gli eventi mediati dal recettore Fc, che includono la rimozione di una porzione di fucosa trovata sulla porzione Fc dell'anticorpo. Ulteriori studi hanno chiarito i cambiamenti meccanicistici nella segnalazione, nei processi cellulari e nelle caratteristiche citotossiche che aumentano l'attività dell'ADCC con anticorpi afucosilati. Inoltre, altri studi hanno dimostrato i potenziali benefici di questi anticorpi in combinazione con inibitori di piccole molecole. Questi esperimenti hanno dimostrato i meccanismi molecolari e cellulari alla base dei benefici dell'uso di anticorpi afucosilati in contesti combinati. Molte di queste osservazioni erano basate su un test di attivazione artificiale in vitro in cui la FcγRIIIa su cellule NK umane è stata attivata da anticorpi terapeutici. Questo test ha fornito la flessibilità necessaria per studiare le funzioni delle cellule NK emotrici a valle, come la produzione di citochine e la degranulazione. Inoltre, questo test è stato utilizzato per interrogare le vie di segnalazione e identificare molecole che possono essere modulate o utilizzate come biomarcatori. Infine, altre molecole terapeutiche (cioè inibitori di piccole molecole) sono state aggiunte al sistema per fornire informazioni sulla combinazione di queste terapie con anticorpi terapeutici, che è essenziale nell'attuale spazio clinico. Questo manoscritto mira a fornire una base tecnica per l'esecuzione di questo test di attivazione artificiale delle cellule NK umane. Il protocollo dimostra i passaggi chiave per l'attivazione cellulare e le potenziali applicazioni a valle che vanno dalle lettura funzionali alle osservazioni più meccanicistiche.
Introduzione
Negli ultimi decenni, c'è stata un'enorme attenzione allo sviluppo di terapie mirate contro il cancro utilizzando anticorpi. Gli anticorpi terapeutici, come trastuzumab e rituximab, operano attraverso molteplici meccanismi, tra cui la prevenzione della dimerizzazione delle molecole di segnalazione e la mobilizzazione del sistema immunitario1,2. Quest'ultimo è realizzato attraverso la citotossicità cellulare anticorpo-dipendente (ADCC), in cui i linfociti chiamati cellule natural killer (NK) vengono portati a una cellula bersaglio dall'anticorpo1,2. Posizionando le cellule in prossimità l'una con l'altra, la cellula NK viene attivata e può lisi di una cellula tumorale / bersaglio attraverso la secrezione di molecole emotrici3.
A livello molecolare, la porzione Fab dell'anticorpo lega il suo antigene affine espresso sulle cellule tumorali, mentre la sua porzione Fc impegna la FcγRIIIa espressa sulle cellule NK per riunire le due cellule1,2. Dopo l'impegno della FcγRIIIa, le vie di segnalazione (cioè le vie MAPK e PI3K) guidano il riarrangiamento citoscheletrico, la produzione di citochine e la citotossicità4,5,6,7,8,9. Pertanto, l'ADCC è un evento guidato da FcγRIIIa mediato da cellule NK e anticorpi.
Poiché si pensava che l'ADCC fosse un meccanismo d'azione per questi anticorpi terapeutici, i ricercatori hanno cercato metodi per aumentare l'ADCC modificando l'anticorpo. Una modifica è stata la rimozione del fucoso sulla catena oligosaccaridica attaccata all'asparagina 297, che aumenta l'affinità di legame della porzione Fc dell'anticorpo alla FcγRIIIa10,11,12. Negli studi sugli animali, i topi che ricevevano anticorpi afucosilati hanno mostrato una crescita tumorale più lenta rispetto ai topi trattati con la sua controparte fucosilata13. Ancora più importante, obinutuzumab (ad esempio, Gazyva, un anticorpo afucosilato approvato) ha mostrato una migliore efficacia rispetto a rituximab (ad esempio, Rituxan, la sua controparte fucosilata) in pazienti con diagnosi di leucemia linfocitica cronica o linfoma follicolare14,15.
Fino a poco tempo fa, i meccanismi alla base dell'aumento dell'ADCC tramite anticorpi afucosilati erano sconosciuti. In combinazione con il fatto che ci sono numerosi programmi di ricerca che sviluppano anticorpi terapeutici per utilizzare i meccanismi guidati da FcγRIIIa per colpire le cellule tumorali, è imperativo sviluppare saggi in vitro che esaminino gli aspetti molecolari e cellulari promossi da questi anticorpi. Ciò fornisce una comprensione fondamentale dei meccanismi d'azione e del potenziale per scoprire biomarcatori. Come tale, è stato sviluppato un test di attivazione artificiale per studiare le funzioni mediate da FcγRIIIa anticorpo-dipendenti oltre alla segnalazione e alle caratteristiche cellulari8. Attraverso questi studi, sono stati chiariti i meccanismi alla base dell'aumentata efficacia degli anticorpi afucosilati in cui una maggiore affinità di legame aumenta la segnalazione per promuovere le proprietà cellulari e le caratteristiche citotossiche8.
La tendenza attuale negli studi clinici è l'uso di una combinazione di molecole terapeutiche16. Una delle vie più comunemente mutate è la via PI3K, che ha richiesto un enorme sforzo nello sviluppo di inibitori di piccole molecole che colpiscono i componenti di questa via17,18,19,20. Tuttavia, il modo in cui queste molecole agiscono in combinazione con anticorpi terapeutici è relativamente sconosciuto, specialmente nelle combinazioni in cui l'inibitore può influenzare molecole che richiedono la via PI3K per funzionare, come quelle guidate da anticorpi terapeutici.
A tal fine, il test in vitro impiegato per gli studi sugli anticorpi afucosilati è stato utilizzato anche per studiare la combinazione di inibitori PI3K e anticorpi terapeutici. Questi studi hanno definito le caratteristiche molecolari dell'inibizione di PI3K su eventi terapeutici guidati da anticorpi PI3K e hanno descritto come gli anticorpi afucosilati possono compensare questa perdita di segnalazione9. Questi risultati sono rilevanti in quanto forniscono una potenziale guida per la progettazione di studi clinici. Inoltre, questa serie di esperimenti ha anche portato alle prime osservazioni descritte per la regolazione cinetica della via di segnalazione PI3K per modulare la trascrizione e la produzione di chemochine / citochine, che possono servire come potenziali biomarcatori9.
Il test di attivazione artificiale in vitro utilizzato per definire la segnalazione e le caratteristiche cellulari sopra descritte è stato progettato per studiare gli eventi guidati da FcγRIIIa nelle cellule NK mediati da anticorpi in assenza di cellule bersaglio. Senza cellule bersaglio nel sistema, tutti gli eventi e le funzioni di segnalazione osservati possono essere attribuiti direttamente alle cellule NK. Nel test presentato, l'anticorpo viene aggiunto alle cellule NK purificate, a quel punto la porzione Fc lega la FcγRIIIa. Questo è seguito da reticolazione dell'anticorpo utilizzando un anticorpo anti-umano κ a catena leggera per stimolare artificialmente le cellule. La reticolazione dell'anticorpo imita il legame dell'antigene bersaglio per generare una piattaforma di segnalazione che suscita eventi a valle. A seconda della durata della stimolazione, i ricercatori possono valutare la segnalazione, i processi cellulari, le caratteristiche citotossiche e le funzioni emotrici8,9. Allo stesso modo, questo test fornisce anche flessibilità nello studio di questi eventi quando gli anticorpi sono combinati con altre molecole9.
Insieme, questo è un test in vitro ideale per studiare gli anticorpi terapeutici che suscitano risposte delle cellule NK attraverso la loro FcγRIIIa come parte del meccanismo d'azione. Questo protocollo descrive le prestazioni di questo test di attivazione in vitro e fornisce informazioni sulle varie analisi che possono essere eseguite.
Protocollo
Il seguente protocollo è conforme alle linee guida del comitato etico per la ricerca umana di iQ Bioscience.
1. Isolamento dei PBMC e arricchimento/purificazione delle cellule NK
NOTA: Possono essere eseguiti anche altri metodi per l'isolamento delle cellule mononucleate del sangue periferico (PBMC) e l'arricchimento/purificazione.
- Prelevare 200 ml di sangue in condizioni regolate in un tubo contenente eparina.
- Aggiungere 15 mL del gradiente di densità medio in un tubo da 50 mL con una barriera porosa incorporata. Ruotare il tubo a 1000 x g per 30 s.
- Aggiungere 12,5 ml di sangue nel tubo seguito da altri 12,5 ml di PBS e invertire delicatamente 3x. Ruotare il tubo a 800 x g per 15 minuti a temperatura ambiente (RT) senza interruzioni.
- Preparare un tubo conico da 50 ml con 40 mL di PBS per ogni tubo con una barriera porosa mentre le cellule girano.
- Rimuovere con attenzione i tubi e ispezionare dopo la centrifugazione. Verificare la disponibilità di uno strato sottile e visibilmente bianco di PBMC sopra la barriera porosa, tra le demarcazioni da 20 mL e 25 mL sul tubo da 50 mL.
- Rimuovere con cura più liquido possibile dalla parte superiore utilizzando una pipetta senza disturbare il sottile strato bianco di PBMC.
- Con una pipetta sierologica pulita da 10 ml, rimuovere delicatamente lo strato PBMC oltre allo strato liquido limpido e giallastro fino al filtro del tubo.
- Espellere i PBMC e il liquido nel PBS conico contenente 50 ml preparato nella fase 1.4. Centrifuga tubi a RT e 300 x g per 5 min.
- Aspirare il lavaggio PBS e aggiungere altri 40 ml di PBS. Centrifuga tubi a RT e 300 x g per 5 min.
- Dopo il lavaggio, contare le cellule e risospenderle in 40 μL di BSA/PBS al 2% per 1 x 10⁷ cellule.
- Procedere all'isolamento delle cellule NK utilizzando il metodo di scelta. Le scelte includono lo smistamento manuale o automatizzato basato su peri magnetiche9,21. Lo smistamento cellulare attivato dalla fluorescenza può anche essere eseguito22.
- Rimuovere una piccola aliquota di cellule per determinare la purezza delle cellule NK mediante citometria a flusso. La strategia di Gating include quanto segue: gate su cellule vive basate sul profilo di dispersione in avanti rispetto a quello laterale, quindi valutare la purezza in base ai marcatori NK (ad esempio, CD3, CD56) nella specifica popolazione viva. La purezza tipica è >95%.
- Una volta completato l'isolamento, ruotare le celle a RT e 300 x g per 5 minuti per pellet e aspirare.
- Spese di sospensione del pellet cellulare a 1 x 10⁷ celle/mL in RPMI 1640 con sostanze nutritive, FBS inattivato termicamente al 10%, 1 mM piruvato di sodio, 55 mM 2-ME e 10 mM HEPES (pH = 7,2).
2. Attivazione mediata da anticorpi delle cellule NK tramite FcγRIIIa
- Impostare una microcentrifuga refrigerata a 4 °C.
- Erogare 1 x 10⁶ (100 μL di) celle NK riaspense in tubi da 1,5 mL e metterli su ghiaccio.
NOTA: le celle possono essere erogate in una piastra a U a 96 pozzetti se ci sono numerosi campioni. - Preparare 1 μL di 100 μg/mL di rituximab (o anticorpo di interesse) per campione e aggiungere 1 μL alle cellule per una concentrazione finale di 1 μg/mL di anticorpo.
NOTA: Altre molecole possono essere aggiunte alle cellule a questo punto o prima per la valutazione degli effetti di combinazione. Qui, ritixumab è stato usato per la stimolazione. In studi precedenti, inibitori di piccole molecole sono stati aggiunti alle stimolazioni9. - Incubare il campione sul ghiaccio per 30 minuti. Durante l'incubazione, preparare 50 μL di anticorpo anti-umano κ a catena leggera da 50 μg/mL per campione in mezzo e riscaldare a 37 °C su un blocco di calore o a bagnomaria.
- Dopo l'incubazione delle cellule sul ghiaccio, aggiungere 1 mL di mezzo ghiacciato e ruotare a 135 x g per 5 minuti a 4 °C. Lavare di nuovo con 1 mL di ghiaccio freddo.
- Aspirare il surnatante dopo l'ultimo lavaggio e aggiungere 50 μL della miscela a catena leggera anti-umana κ preparata al punto 2.5.
- Incubare immediatamente campioni per i timepoint determinati dall'utente finale a 37 °C su un blocco di calore o a bagnomaria.
- Interrompere la stimolazione aggiungendo 1 mL di fluido ghiacciato e far girare immediatamente i campioni in una centrifuga refrigerata a 135 x g per 5 minuti. Lavare ancora una volta con 1 mL di mezzo ghiacciato.
3. Applicazioni a valle e lettura
- Interrogazione di molecole di segnalazione in cellule NK stimolate da FcγRIIIa mediante analisi western blot
NOTA: possono essere utilizzati diversi apparecchi di separazione proteica e di trasferimento a membrana.- Dopo l'ultimo lavaggio con mezzo ghiacciato (fase 2.8), le cellule di lisi con 20 μL di tampone RIPA contenente fosfatasi e inibitori della proteasi si mescolano per 30 minuti su ghiaccio.
- Centrifuga tubi a 2100 x g per 15 min a 4 °C. Trasferire il lisiato in un tubo pulito da 1,5 ml e aggiungere i reagenti necessari per la separazione delle proteine.
- Separare le proteine su gel SDS-PAGE e trasferirle su una membrana di nitrocellulosa o PVDF seguendo protocolli standard.
- Bloccare e sondare la membrana in base alla scheda tecnica del produttore per l'anticorpo di rilevamento primario (qui sono stati utilizzati pAKT, pPRAS 40 e pERK1/2).
- Aggiungere l'anticorpo secondario coniugato HRP e il reagente di chemiluminescenza secondo le raccomandazioni del produttore sulla membrana PVDF. Utilizzare la pellicola a raggi X o lo strumento di rilevamento per visualizzare (qui, pAKT è stato rilevato a 60 kDa, pPRAS40 a 40 kDa e pERK1/2 a 42 kDa e 44 kDa).
- Isolamento dell'mRNA e preparazione per l'analisi dell'espressione genica di cellule NK stimolate da FcγRIIIa (Tabella dei materiali)
- Dopo aver raggiunto il punto temporale per la stimolazione (passo 2.7), posizionare il tubo sul ghiaccio e ruotare immediatamente in una centrifuga refrigerata a 135 x g per 5 minuti (simile al passaggio 2.8).
- Rimuovere il surnatante e lavare 2 volte con 1 mL di PBS ghiacciato.
- Cellule di lida utilizzando l'estrazione dell'RNA di isotiocianato di guanidio (Tabella dei materiali). Utilizzare 1 μg di mRNA per eseguire la trascrizione inversa utilizzando esaamatori casuali con un kit commerciale (Tabella dei materiali).
NOTA: Qualsiasi metodo di estrazione dell'RNA o sintesi del cDNA può essere utilizzato9,23,24. - Congelare il cDNA a -20 °C fino all'analisi dell'espressione genica.
- Valutazione del riarrangiamento citoscheletrico in cellule NK stimolate da FcγRIIIa
- Dopo l'ultimo lavaggio con mezzo ghiacciato (fase 2.8), rifuscire il pellet cellulare con 50 μL di paraformaldeide al 3,7% per 10 minuti a RT.
- Aggiungere 1 mL di PBS e girare a 135 x g per 5 minuti a RT. Ripetere il lavaggio ancora una volta.
- Aggiungere 100 μL di 0,1% Triton X-100 / PBS per 5 minuti per permeabilizzare le cellule e ruotare le celle a 135 x g per 5 minuti a RT a pellet.
- Aggiungere 100 μL di 5 unità/mL di falloidina etichettata con AF488 diluita in BSA/PBS all'1% e incubare per 20 minuti a RT.
- Aggiungere 1 mL di PBS e girare a 135 x g per 5 minuti a RT per lavare. Risuscindi il pellet cellulare nel volume desiderato per l'analisi citometrica a flusso.
- Valutazione della degranulazione delle cellule NK stimolate da FcγRIIIa utilizzando la colorazione superficiale CD107a
- Incubare le cellule con l'anticorpo di interesse sul ghiaccio come descritto nei passaggi 2.1-2.4. Durante l'incubazione, preparare 50 μL di miscela di anticorpi per campione. Preparare la miscela in mezzi cellulari con una concentrazione finale di 50 μg/mL di anticorpi anti-umani a catena leggera κ e 1 μg/mL di CD107a marcato con fluorocromo.
- Dopo l'incubazione delle cellule sul ghiaccio, aggiungere 1 mL di mezzo ghiacciato. Girare a 135 x g per 5 minuti a 4 °C, quindi lavare di nuovo con 1 mL di ghiaccio freddo.
- Aspirare il surnatante dopo l'ultimo lavaggio, quindi aggiungere 50 μL della miscela anti-umana a catena leggera κ e incubare a 37 °C per i timepoint desiderati.
- Nei timepoint desiderati, aggiungere 1 mL di PBS e ruotare a 135 x g per 5 minuti a RT. Aspirare surnatante e aggiungere 100 μL di paraformaldeide al 4%. Incubare a RT per 10 min.
- Aggiungere 1 mL di PBS e girare a 135 x g per 5 minuti a RT per lavare. Risuscindi il pellet cellulare nel volume desiderato per l'analisi citometrica a flusso.
- Valutazione della produzione di chemochine/citochine da cellule NK stimolate da FcγRIIIa
NOTA: diversi metodi e/o kit possono essere utilizzati per la valutazione della produzione di chemochine e citochine.- Una volta raggiunto il punto temporale per la stimolazione (punto 2.7), posizionare immediatamente il tubo sul ghiaccio e ruotare in una centrifuga refrigerata a 135 x g per 5 minuti a 4 °C.
- Trasferire il surnatante in una nave pulita. Congelare il surnatante fino alla valutazione delle chemochine o delle citochine utilizzando il test desiderato.
NOTA: i pellet cellulari possono ora essere lavati con PBS ghiacciato ed elaborati per la segnalazione, l'espressione genica e gli studi di riarrangiamento citoscheletrico.
Risultati
È essenziale che la purezza delle cellule NK sia elevata perché la porzione Fc degli anticorpi può legare la FcγRIIIa espressa su altri tipi di cellule, come i monociti. Con elevata purezza, le osservazioni effettuate possono essere attribuite direttamente agli eventi guidati da FcγRIIIa nelle cellule NK. Qui, le cellule NK avevano una purezza superiore al 90% in base alle macchie CD56 e CD3 (Figura 1). Inoltre, la redditività era >95%. Bisogna fare attenzione quando si usano isolamenti con minore vitalità. Per garantire che gli eventi fossero guidati da FcγRIIIa, sono stati eseguiti blot occidentali per fosfo-AKT (pAKT), fosfo-PRAS40 (pPRAS40) e fosfo-ERK1/2 (pERK1/2), in cui le cellule NK sono state attivate per 1-5 minuti. Come mostrato, è stato osservato un accumulo di queste molecole (Figura 2). Allo stesso modo, le cellule NK attivate espressero MIP-1α, MIP-1β, IFN-γ e TNF-α, come mostrato dall'analisi dell'espressionegenica( Figura 3 ).
Inoltre, è stato osservato riarrangiamento citoscheletrico nelle cellule attivate (Figura 4). Una percentuale di cellule NK stimolate per 4 ore ha espresso CD107a sulla superficie cellulare (Figura 5). Inoltre, IFN-γ, TNF-α, MIP-1α, MIP-1β e RANTES sono stati rilevati nel surnatante dopo 3 ore di stimolazione (Figura 6). Queste correzioni sono attese sulla base di studi pubblicati in quanto le cellule NK attivate avranno queste proteine fosforilate, così come l'espressione genica e la produzione delle chemochine e delle citochinemenzionate 8,9. In tutti gli esperimenti, le condizioni di stimolazione dovrebbero includere un controllo anti-umano κ light chain only e anticorpi senza controllo anti-umano κ light crosslinking control. Queste cellule NK non devono mostrare alcuna segnalazione fosfo, degranulazione, produzione di chemochine/citochine o espressione genica di chemochine/citochine.
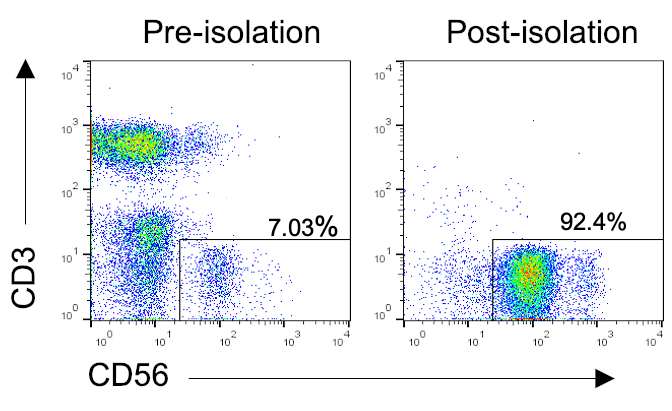
Figura 1: Profili di flusso rappresentativi della purezza delle cellule NK dopo l'isolamento dai PBMC. Le PBMC sono state isolate dal sangue di un donatore sano, seguite dall'arricchimento delle cellule NK utilizzando un metodo di selezione negativo per l'isolamento delle cellule NK umane (Tabella dei materiali). Le cellule sono state colorate con CD56 e CD3 prima e dopo l'arricchimento per determinare la purezza. Dot plot rappresentativi di CD56 vs CD3 prima e dopo l'isolamento. Fare clic qui per visualizzare una versione più grande di questa figura.
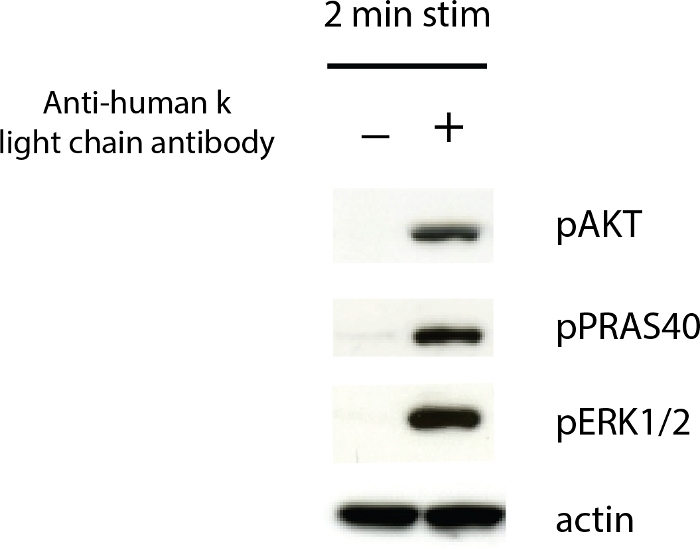
Figura 2: Le cellule NK attivate da FcγRIIIa mostrano molecole di segnalazione fosforilate. Le cellule sono state stimolate con rituximab per 2 minuti e i lasati cellulari sono stati realizzati secondo il protocollo. I lasati sono stati separati su un gel del 4%-12%, seguito dal trasferimento su una membrana PVDF. La membrana è stata sonde con anticorpi contro pAKT, pPRAS40, pERK1/2 e actina. Fare clic qui per visualizzare una versione più grande di questa figura.
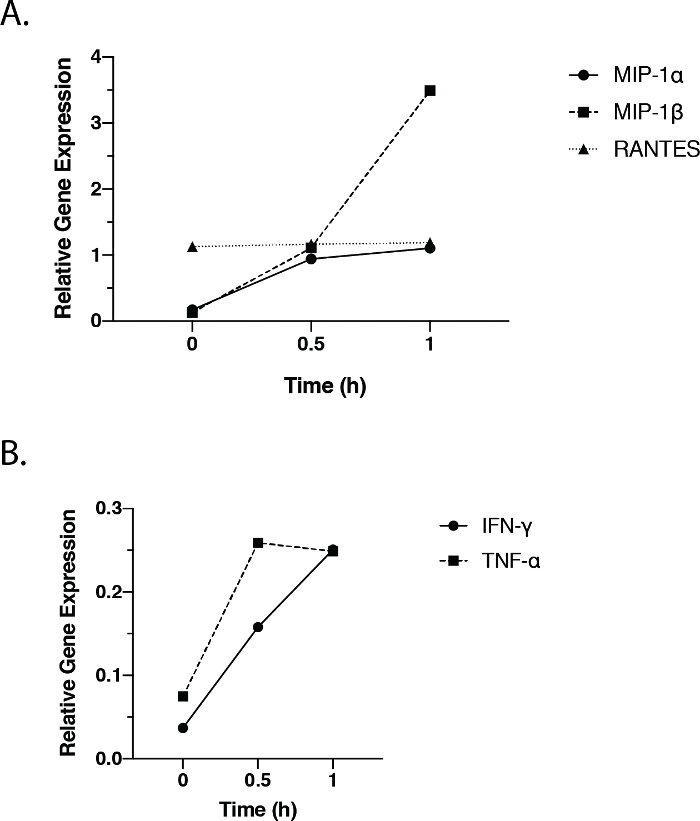
Figura 3: Le cellule NK attivate da FcγRIIIa esprimono geni chemochine e citochine. Le cellule NK sono state stimolate con rituximab per 0 h, 0,5 h e 1 h. mRNA è stato raccolto, trascritto inversamente e sottoposto all'analisi qPCR per MIP-1α, MIP-1β, RANTES, IFN-γ e TNF-α (Tabella dei materiali). (A) Espressione relativa di MIP-1α, MIP-1β e RANTES in ciascun punto temporale. (B) Espressione relativa di IFN-γ e TNF-α in ciascun punto temporale. I valori sono stati normalizzati al gene dell'actina. Fare clic qui per visualizzare una versione più grande di questa figura.
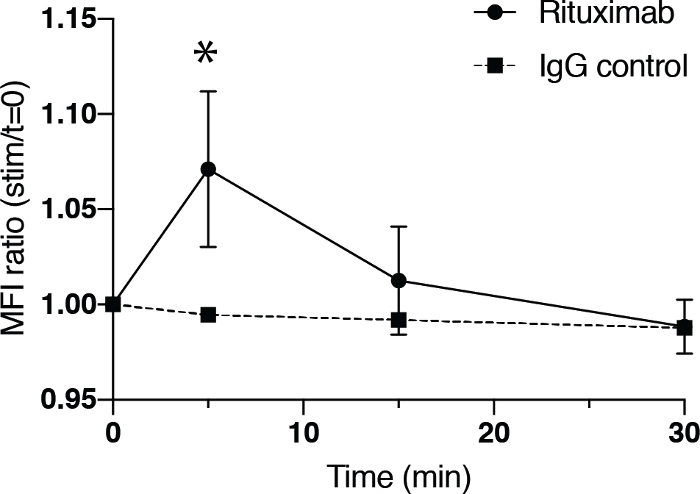
Figura 4: Le cellule NK attivate da FcγRIIIa mostrano riarrangiamento citoscheletrico. Le cellule NK sono state stimolate con rituximab per 0 min, 5 min, 15 min e 30 min, seguite dalla valutazione per il riarrangiamento citoscheletrico mediante colorazione con falloidina e citometria a flusso. Il rapporto tra MFI al timepoint sperimentale e MFI al tempo 0 delle cellule NK stimolate con rituximab (cerchio, linea solida) o anticorpo secondario da solo (quadrato, linea tratteggiata). Le barre rappresentano la SD di quattro repliche. Gli asterischi rappresentano la significatività statistica basata su un t-test di uno studente spaiato a due code (*p < 0,05). Fare clic qui per visualizzare una versione più grande di questa figura.
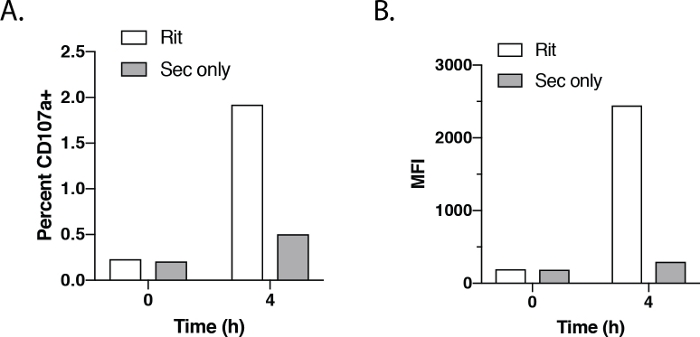
Figura 5: Le cellule NK attivate da FcγRIIIa esprimono CD107a. Le cellule NK sono state stimolate con rituximab per 4 ore seguite dalla valutazione per la degranulazione mediante CD107a e citometria a flusso. (A) Percentuale di cellule NK che esprimono CD107a dopo stimolazione con rituximab (barre bianche) o anticorpo anti-umano κ a catena leggera (barre grigie) per 0 h e 4 h. (B) CD107a MFI di cellule NK stimolate con rituximab (barre bianche) o anticorpo anti-umano κ a catena leggera (barre grigie) dopo 0 h e 4 h di trattamento. Fare clic qui per visualizzare una versione più grande di questa figura.
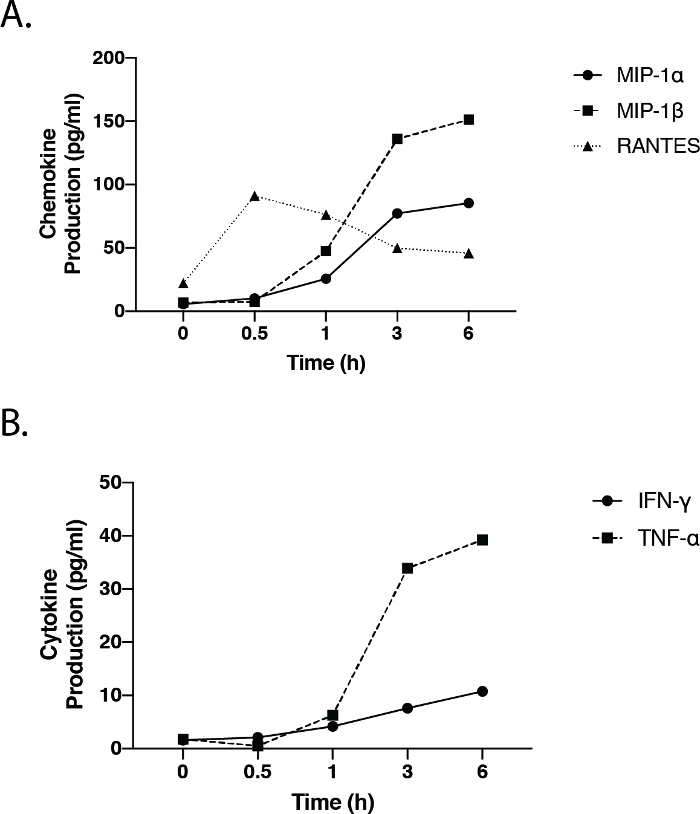
Figura 6: Le cellule NK attivate da FcγRIIIa secernono chemochine e citochine. Le cellule NK sono state stimolate per 0, 0,5, 1, 3 e 6 ore con rituximab. Il surnatante è stato raccolto per misurare il rilascio di MIP-1α, MIP-1β, RANTES, IFN-γ e TNF-α con un metodo di valutazione delle citochine basato sul flusso e sulle perle (Tabella dei materiali). (A) produzione di MIP-1α, MIP-1β e RANTES in ogni punto temporale. B)la produzione di γ IFN e TNF-α in ogni momento. Fare clic qui per visualizzare una versione più grande di questa figura.
Discussione
Questo protocollo descrive i metodi per lo studio degli eventi guidati da FcγRIIIa nelle cellule NK mediati da anticorpi. Queste tecniche consentono la valutazione dei potenziali meccanismi d'azione degli anticorpi terapeutici, che si suggerisce essere ADCC1,2. In particolare, questi metodi forniscono flessibilità nello studio delle vie di segnalazione molecolare sottostanti e dei processi cellulari responsabili dell'ADCC. Consentono anche l'osservazione di altre funzioni emozionali, come la produzione di chemochine e citochine. Inoltre, questi metodi consentono l'identificazione di potenziali biomarcatori e molecole che possono essere mirati a modulare l'ADCC.
La base di questo protocollo è la stimolazione artificiale delle cellule NK attraverso la FcγRIIIa con anticorpi in assenza di cellule bersaglio. Le cellule bersaglio legate agli anticorpi in genere servono a promuovere la reticolazione dei recettori Fc per formare una piattaforma che guida la segnalazione e gli effetti a valle. Invece, la reticolazione viene effettuata utilizzando un anticorpo anti-umano κ a catena leggera in questo test, bypassando la necessità per le cellule bersaglio di stimolare le cellule NK. Senza cellule bersaglio, i risultati e le osservazioni possono essere attribuiti direttamente alle cellule NK, supponendo che il processo di purificazione abbia successo.
È importante sottolineare che l'uso di anticorpi anti-umani a catena leggera κ per reticolare l'anticorpo non interferisce con l'affinità di legame della porzione Fc per la FcγRIIIa, un'interazione che determina la forza della risposta10,11,12,13. Infatti, gli studi hanno dimostrato che gli anticorpi afucosilati aumentano l'ADCC a causa della loro maggiore affinità per la FcγRIIIa10,11,12,13. Studi successivi hanno dimostrato che questa maggiore affinità non è influenzata dal sostituto anticorpale secondario anti-umano κ a catena leggera e può essere utilizzato per studiare le basi per l'aumento dell'ADCC8. Per garantire che la cellula NK sia stimolata attraverso la reticolazione dell'anticorpo, dovrebbero essere inclusi due controlli negativi: 1) solo anticorpo terapeutico senza l'anticorpo secondario anti-umano κ a catena leggera e 2) solo l'anticorpo secondario anti-umano κ a catena leggera. In entrambi i casi, non dovrebbe essere generata alcuna funzione di segnalazione o effettore.
Questo metodo fornisce anche flessibilità per studiare gli effetti degli anticorpi terapeutici sugli inibitori di piccole molecole. L'inibitore può essere aggiunto prima della reticolazione con l'anticorpo secondario in modo che l'inibitore abbia il tempo di impegnare il suo bersaglio. Tuttavia, devono essere eseguiti studi per determinare il momento ottimale del pretrattamento degli inibitori; quindi, l'inibitore ha un effetto massimo sulla stimolazione. Detto questo, i ricercatori possono anche scegliere di studiare gli effetti di un inibitore dopo la stimolazione. In questo caso, l'inibitore può essere aggiunto dopo la reticolazione per studiare come influenza i segnali e i processi già generati. Insieme, il metodo qui descritto fornisce la massima flessibilità nello studio degli effetti combinatori di diversi inibitori di piccole molecole con anticorpi terapeutici.
Come accennato in precedenza, una varietà di lettura può essere eseguita dopo la stimolazione. Il western blotting può essere eseguito per studiare la segnalazione utilizzando SDS-PAGE e sistemi di trasferimento a membrana di vari fornitori. Allo stesso modo, l'espressione genica può anche essere valutata utilizzando vari metodi di estrazione dell'RNA, reagenti di trascrizione inversa e strumenti di espressione genica. Infine, è possibile eseguire anche la colorazione per proteine intracellulari o extracellulari in cui i campioni possono essere analizzati utilizzando diversi citometri a flusso. Per la colorazione intracellulare di citochine e CD107a (fase 3.4, che può essere valutata contemporaneamente), devono essere aggiunte monensina e/o brefeldina A per massimizzare i segnali. Abbiamo utilizzato piattaforme diverse per ogni obiettivo sperimentale e abbiamo ancora osservato risultati simili. Pertanto, il metodo può essere integrato con vari reagenti, piattaforme e strumenti, a seconda dello studio.
Il tempo di reticolazione per la stimolazione dipenderà dall'obiettivo dello studio. Se si desiderano studi di segnalazione, il tempo tipico di stimolazione della reticolazione è compreso tra 2 min e 10 min. pAKT, pPRAS40 e pERK1/2 picchi di accumulo a 2 min e scompare dopo 10 min8,9. Per gli studi funzionali (cioè quelli che coinvolgono la produzione di chemochine / citochine), le cellule devono essere stimolate per almeno 30 minuti, a seconda dell'analita9. L'analisi dell'espressione genica richiede anche in genere 30 minuti di stimolazione9. Si deve usare cautela quando si utilizza l'espressione genica rantes come lettura, poiché la produzione di mRNA RANTES è indipendente dall'attivazione trascrizionale poiché è già immagazzinata nelle cellule per la traduzione tempestiva e il rilascio di proteine dopo la stimolazione25. La degranulazione, al contrario, richiede almeno 3 ore di stimolazione. Nonostante queste osservazioni generali, i ricercatori dovrebbero eseguire studi cinetici per determinare il tempo di stimolazione ottimale per le particolari molecole di interesse.
Allo stesso modo, i ricercatori dovrebbero titolare l'anticorpo di interesse per determinare la concentrazione ottimale perché gli anticorpi con diverse specificità si legano a FcγRIIIa con affinità diverse, anche se sono dello stesso isotipo. Ad esempio, rituximab e trastuzumab sono entrambi un isotipo IgG1 ma trastuzumab si lega più fortemente al polimorfismo valino di FcγRIIIa rispetto a rituximab26,27. Questa differenza di affinità può portare a differenze funzionali, come la degranulazione, come osservato negli studi pubblicati8.
Determinare la concentrazione ottimale è importante anche a causa della bassa affinità che la porzione Fc dell'anticorpo ha per la FcγRIIIa. Ciò può comportare il lavaggio dell'anticorpo poiché il protocollo include passaggi di lavaggio dopo il legame dell'anticorpo al recettore Fc. Ciò può quindi portare a una mancanza di sensibilità nei saggi come suggerito dalla bassa percentuale di cellule CD107a positive dopo la stimolazione (Figura 5). Tuttavia, la determinazione della concentrazione ottimale dovrebbe fornire la certezza che i risultati non siano dovuti a una mancanza di sensibilità. Inoltre, le cellule sono chiaramente attivate nei saggi biochimici e funzionali che utilizzano le cellule di massa rispetto alle singole lettura cellulari (Figura 2, Figura 3, Figura 6).
Anche il protocollo è limitato poiché non imita completamente ciò che accade fisiologicamente. L'anticorpo K anti-umano secondario utilizzato è quello di imitare la reticolazione generata dall'antigene bersaglio espresso sulle cellule. Qui, viene aggiunta una quantità saturante di anticorpi secondari per generare la massima risposta. Tuttavia, cellule bersaglio distinte esprimeranno diversi livelli di antigene, che influenzeranno la reticolazione e la risposta. Attualmente, questa piattaforma non è ottimizzata per imitare gli effetti dei diversi livelli di espressione dell'antigene.
Un altro fattore da considerare quando si eseguono questi esperimenti è la variabilità da donatore a donatore a causa di diversi background genetici e storie immunologiche tra gli individui. Pertanto, è necessario prestare attenzione quando si confrontano le risposte delle cellule NK di diversi donatori attraverso gli stessi test. Allo stesso modo, solo le conclusioni generali dovrebbero essere fatte quando vengono utilizzati donatori diversi.
Complessivamente, il metodo descritto è una piattaforma di stimolazione semplice e flessibile per studiare eventi mediati da FcγRIIIa guidati da anticorpi nelle cellule NK. È stato utilizzato per comprendere meglio le basi per l'aumento dell'ADCC e dell'efficacia osservata con gli anticorpi afucosilati8. Questo metodo è stato impiegato anche in uno studio che combina anticorpi terapeutici e inibitori di piccole molecole PI3K9. Inoltre, è stato identificato un meccanismo precedentemente sconosciuto per la produzione di chemochine e citochine regolato da pS69. Pertanto, studi futuri che utilizzano questa piattaforma di segnalazione artificiale possono chiarire ulteriormente i meccanismi di regolazione per le funzioni emozionali guidate dal FcγRIIIa. Può anche potenzialmente identificare nuove molecole importanti per questi meccanismi, nonché nuovi ruoli per molecole conosciute.
Dichiarazioni
Tutti gli autori sono o sono stati dipendenti o consulenti per iQ Biosciences.
Ringraziamenti
Gli autori ringraziano James Lee e Christopher Ng per i commenti e la modifica di questo manoscritto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 16% paraformaldeide | Thermo Fisher Scientific | 50-980-487 | |
| Alexa Fluor 488 falloidina | Thermo Fisher Scientific | A12379 | |
| anticorpo HRP anti-topo | Cell Signaling Technologies | 7076 | |
| Strumento AutoMACS | Miltenyi | NK; può essere utilizzato | |
| un altro strumento di isolamentoB-mercaptoetanolo | Thermo Fisher Scientific | 21985023 | |
| Frazione di albumina sierica bovina V, senza acidi grassi | Millipore Sigma | 10775835001 | |
| CD107a APC anticorpo | Biolegend | 328620 | |
| Cytokine 30-Plex Human Panel | Thermo Fisher Scientific | LHC6003M | metodo chemochina/citochina; può essere utilizzato un altro metodo di analisi chemochina/citochina |
| FBS | Hyclone | SH30071.01 | |
| Anticorpo a catena leggera &kappa | Millipore Sigma | AP502 | |
| Cocktail di inibitori della proteasi e della fosfatasi | Thermo Fisher Scientific | 78440 | |
| HEPES | Thermo Fisher Scientific | 15630080 | |
| Kit di trascrizione inversa del cDNA ad alta capacità | Thermo Fisher Scientific | 4368814 | metodo di trascrizione del cDNA; utilizzato secondo il protocollo del produttore |
| IFN-? primer Thermo | Fisher Scientific | Hs00989291_m1 | |
| Leukosep (50 ml conico con barriera porosa) | Greiner | 227290 | |
| Lymphoprep (mezzo gradiente di densità) | Stemcell | 7851 | |
| MIP-1? primer | Thermo Fisher Scientific | Hs00234142_m1 | |
| Thermo Fisher Scientific | Hs99999148_m1 | ||
| Kit di isolamento cellulare NK | Miltenyi | 130-092-657 | Kit di isolamento cellulare NK; può essere utilizzato un altro kit di isolamento |
| NuPAGE 4-12% Bis-Tris Protein Gels | Thermo Fisher Scientific può | essere utilizzato un altro sistema di separazione delle proteine | |
| pAKT (S473) anticorpo | Cell Signaling Technologies | 4060 | |
| pERK1/2 anticorpo | Cell Signaling Technologies | 4370 | |
| pPRAS40 anticorpo | Cell Signaling Technologies | 13175 | |
| Membrana PVDF | Thermo Fisher Scientific | può essere utilizzata la nitrocellulosa | |
| RANTES Primer RANTES | Thermo Fisher Scientific | Hs00982282_m1 | |
| tampone RIPA | Millipore Sigma | R0278 | |
| RPMI con glutamax | Thermo Fisher Scientific | 61870 | |
| Piruvato di sodio | Thermo Fisher Scientific | 11360070 | |
| TNF-? primer | Thermo Fisher Scientific | Hs00174128_m1 | |
| Triton X-100 | Thermo Fisher Scientific | 85111 | |
| TRIzol | Thermo Fisher Scientific | 15596018 | Metodo di isolamento dell'RNA; utilizzato secondo il protocollo del produttore |
| Xcell Blot II Transfer Module | Thermo Fisher Scientific | può essere utilizzato un altro sistema di separazione delle proteine | |
| Xcell SureLock Protein Gel Electrophoresis Chamber System | Thermo Fisher Scientific | un altro sistema di separazione delle proteine | |
| β-actina HRP anticorpo | Abcam | ab6721 | |
| β-actina primer | Thermo Fisher Scientific | Hs00982282_m1 |
Riferimenti
- Hudis, C. A. Trastuzumab - Mechanism of Action and Use in Clinical Practice. New England Journal of Medicine. 357 (1), 39-51 (2007).
- Weiner, G. J. Rituximab: mechanism of action. Seminars inHhematology. 47 (2), 115-123 (2010).
- Orange, J. S. Formation and function of the lytic NK-cell immunological synapse. Nature Reviews Immunology. 8 (9), 713-725 (2008).
- Bonnema, J. D., Karnitz, L. M., Schoon, R. A., Abraham, R. T., Leibson, P. J. Fc receptor stimulation of phosphatidylinositol 3-kinase in natural killer cells is associated with protein kinase C-independent granule release and cell-mediated cytotoxicity. The Journal of Experimental Medicine. 180 (4), 1427-1435 (1994).
- Jiang, K., et al. Pivotal role of phosphoinositide-3 kinase in regulation of cytotoxicity in natural killer cells. Nature Immunology. 1 (5), 419-425 (2000).
- Kanakaraj, P., et al. Phosphatidylinositol-3 kinase activation induced upon Fc gamma RIIIA-ligand interaction. The Journal of Experimental Medicine. 179 (2), 551-558 (1994).
- Orange, J. S., Harris, K. E., Andzelm, M. M., Valter, M. M., Geha, R. S., Strominger, J. L. The mature activating natural killer cell immunologic synapse is formed in distinct stages. Proceedings of the National Academy of Sciences. 100 (24), 14151-14156 (2003).
- Liu, S. D., et al. Afucosylated Antibodies Increase Activation of FcγRIIIa-Dependent Signaling Components to Intensify Processes Promoting ADCC. Cancer Immunology Research. 3 (2), 173-183 (2015).
- Romeo, V., Gierke, S., Edgar, K. A., Liu, S. D. Effects of PI3K Inhibition on Afucosylated Antibody-Driven FcγRIIIa Events and Phospho-S6 Activity in NK Cells. The Journal of Immunology. 203 (1), 137-147 (2019).
- Mössner, E., et al. Increasing the efficacy of CD20 antibody therapy through the engineering of a new type II anti-CD20 antibody with enhanced direct and immune effector cell-mediated B-cell cytotoxicity. Blood. 115 (22), 4393-4402 (2010).
- Shields, R. L., et al. Lack of fucose on human IgG1 N-linked oligosaccharide improves binding to human Fcgamma RIII and antibody-dependent cellular toxicity. The Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. The absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. The Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Junttila, T. T., et al. Superior In vivo Efficacy of Afucosylated Trastuzumab in the Treatment of HER2-Amplified Breast Cancer. Cancer Research. 70 (11), 4481-4489 (2010).
- Goede, V., et al. Obinutuzumab (GA101) plus chlorambucil (Clb) or rituximab (R) plus Clb versus Clb alone in patients with chronic lymphocytic leukemia (CLL) and preexisting medical conditions (comorbidities): Final stage 1 results of the CLL11 (BO21004) phase III trial. Journal of Clinical Oncology. 31, 15_suppl 7004(2013).
- Sehn, L. H., et al. Randomized Phase II Trial Comparing Obinutuzumab (GA101) With Rituximab in Patients with Relapsed CD20+ Indolent B-Cell Non-Hodgkin Lymphoma: Final Analysis of the GAUSS Study. Journal of Clinical Oncology. 33 (30), 3467-3474 (2015).
- Pons-Tostivint, E., Thibault, B., Guillermet-Guibert, J. Targeting PI3K Signaling in Combination Cancer Therapy. Trends in Cancer. 3 (6), 454-469 (2017).
- Engelman, J. A. Targeting PI3K signalling in cancer: opportunities, challenges and limitations. Nature Reviews. Cancer. 9 (8), 550-562 (2009).
- Fruman, D. A., Rommel, C. PI3K and cancer: lessons, challenges and opportunities. Nature Reviews. Drug Discovery. 13 (2), 140-156 (2014).
- Janku, F., Yap, T. A., Meric-Bernstam, F. Targeting the PI3K pathway in cancer: are we making headway. Nature Reviews. Clinical Oncology. 15 (5), 273-291 (2018).
- Samuels, Y., et al. High frequency of mutations of the PIK3CA gene in human cancers. Science. 304 (5670), New York, N.Y. 554(2004).
- Kanevskiy, L. M., Telford, W. G., Sapozhnikov, A. M., Kovalenko, E. I. Lipopolysaccharide induces IFN-γ production in human NK cells. Frontiers in Immunology. 4, (2013).
- Romagnani, C., et al. Activation of human NK cells by plasmacytoid dendritic cells and its modulation by CD4+ T helper cells and CD4+ CD25hi T regulatory cells. European Journal of Immunology. 35 (8), 2452-2458 (2005).
- Sivori, S., et al. CpG and double-stranded RNA trigger human NK cells by Toll-like receptors: Induction of cytokine release and cytotoxicity against tumors and dendritic cells. Proceedings of the National Academy of Sciences. 101 (27), 10116-10121 (2004).
- Hanna, J., et al. Novel Insights on Human NK Cells' Immunological Modalities Revealed by Gene Expression Profiling. The Journal of Immunology. 173 (11), 6547-6563 (2004).
- Swanson, B. J., Murakami, M., Mitchell, T. C., Kappler, J., Marrack, P. RANTES production by memory phenotype T cells is controlled by a posttranscriptional, TCR-dependent process. Immunity. 17 (5), 605-615 (2002).
- Jo, M., Kwon, H. S., Lee, K. H., Lee, J. C., Jung, S. T. Engineered aglycosylated full-length IgG Fc variants exhibiting improved FcγRIIIa binding and tumor cell clearance. mAbs. 10 (2), 278-289 (2018).
- Isoda, Y., et al. Importance of the Side Chain at Position 296 of Antibody Fc in Interactions with FcγRIIIa and Other Fcγ Receptors. PLoS ONE. 10 (10), 0140120(2015).
Ristampe e permessi
