Questo protocollo dimostra un nuovo metodo per applicare terapie geniche a sottopopolazioni di cellule in ratti neonatali in età postnatale 5-10 giorni iniettando un modificatore chemiogenetico anterogrado nella corteccia somatomotoria e una Cre ricombinasi retrogradamente trasportabile nel midollo spinale cervicale.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Targeting del tratto corticospinale nei ratti neonatali con un vettore doppio virale utilizzando la chirurgia combinata del cervello e della colonna vertebrale
In questo articolo
Sommario
Abstract
Affrontare con successo gli ostacoli che limitano la ricerca sui ratti neonatali è importante per studiare le differenze nei risultati osservati nelle lesioni del midollo spinale pediatrico (SCI) rispetto alle SCI adulte. Inoltre, l'introduzione affidabile di terapie nelle cellule bersaglio del sistema nervoso centrale (SNC) può essere difficile e le imprecisioni possono compromettere l'efficacia dello studio o della terapia. Questo protocollo combina la tecnologia dei vettori virali con una nuova tecnica chirurgica per introdurre accuratamente le terapie geniche nei ratti neonatali al giorno 5 postnatale. Qui, un virus progettato per il trasporto retrogrado (retroAAV2) di Cre viene introdotto ai terminali assoni dei neuroni corticospinali nel midollo spinale, dove viene successivamente trasportato ai corpi cellulari. Un recettore designer a doppio floxed orientamento-invertito (DIO) attivato esclusivamente dal virus dei farmaci designer (DREADD) viene quindi iniettato nella corteccia somatomotoria del cervello. Questa tecnica di doppia infezione promuove l'espressione dei DREADD solo nei neuroni del tratto corticospinale co-infetti (CST). Pertanto, la co-iniezione simultanea della corteccia somatomotoria e dei terminali CST cervicali è un metodo valido per studiare la modulazione chemiogenetica del recupero seguendo modelli di SCI cervicale nei ratti neonatali.
Introduzione
Mentre la SCI è un evento relativamente raro nella popolazione pediatrica, è particolarmente traumatica e causa una disabilità permanente che richiede un'immensa lungimiranza logistica. Inoltre, una percentuale maggiore di SCI pediatrici è classificata come cervicale e completa rispetto alla popolazione adulta 1,2. Un segno distintivo tra le specie di mammiferi è che i neonati guariscono notevolmente meglio dalla SCI rispetto agli adulti, e questo offre l'opportunità di valutare i meccanismi trainanti per il recupero nelle popolazioni più giovani 3,4,5. Nonostante ciò, ci sono meno studi multimodali che affrontano la ricerca sui neonati e sui roditori infantili, in parte a causa della difficoltà aggiuntiva di indirizzare con precisione popolazioni selezionate di neuroni nei punti di riferimento anatomici molto più stretti degli animali più giovani6. Questo articolo si concentra sull'iniezione diretta di vettori adeno-associati anterogradi e retrogradi altamente efficienti nel midollo spinale del ratto per modulare le principali vie motorie con l'applicazione di Cre-dipendenti-DREADD, espandendo la portata degli studi di rigenerazione multimodale.
I vettori virali sono importanti strumenti biologici con un'ampia gamma di applicazioni, tra cui l'introduzione di materiale genetico per sostituire i geni bersaglio, sovraregolare le proteine della crescita e tracciare il paesaggio anatomico del SNC 7,8,9. Molti dei dettagli anatomici delle vie motorie spinali sono stati studiati utilizzando traccianti classici, cioè ammina destrana biotinilata. Mentre i traccianti tradizionali sono stati determinanti nel portare alla luce la neuroanatomia, non sono privi di svantaggi: etichettano indiscriminatamente i percorsi anche se iniettati correttamente, e gli studi hanno scoperto che sono assorbiti dagli assoni danneggiati10,11,12. Di conseguenza, ciò potrebbe portare a interpretazioni errate negli studi di rigenerazione in cui gli assoni recisi potrebbero essere scambiati per fibre rigeneranti.
Il seguente metodo utilizza il sistema di vettori bivirali recentemente reso popolare negli studi di modulazione, con due diversi vettori virali in due aree separate dello stesso neurone13,14. Il primo è un vettore che infetta localmente i corpi cellulari dei neuroni di proiezione. L'altro è un vettore retrogrado trasportato dai terminali assoni dei neuroni di proiezione (Figura 1). Il vettore retrogrado porta Cre ricombinasi, e il vettore locale incorpora la sequenza "Cre-On" a doppio floxed in cui è codificata una proteina fluorescente (mCherry). Il transgene nativo che esprime sia hM3Dq che mCherry è invertito rispetto al promotore ed è affiancato da due siti LoxP (Figura 2). Pertanto, mCherry è espresso solo nei neuroni di proiezione doppiamente trasdotti in cui Cre ricombinasi induce un evento di ricombinazione tra i siti LoxP, capovolgendo l'orientamento del transgene nel frame di lettura appropriato e consentendo l'espressione sia del DREADD che della proteina fluorescente. Una volta che il transgene virale è nell'orientamento corretto, e quando applicabile, i DREADD possono indurre transitoriamente la neuromodulazione attraverso un ligando iniettato separatamente, cioè clozapina-N-ossido. Il protocollo è stato progettato per autenticare la ricerca sulla neuromodulazione inducibile nei neonati, in cui DREADDS viene iniettato per modulare selettivamente i CST. Il sistema a due virali funge da polizza assicurativa, garantendo che ogni cellula positiva al DREADD sia tracciabile sotto fluorescenza con alta fedeltà per convalidare le iniezioni.
Questo metodo aiuta anche a colmare il divario nella ricerca neonatale. La SCI pediatrica presenta le sue sfide e la ricerca che analizza la rigenerazione, la germinazione o la plasticità dovrebbe enfatizzare le differenze tra neonati e adulti 3,15,16,17. Ottimizzando la procedura chirurgica ed eseguendo studi anatomici precedenti con colorazione Nissl, sono state convalidate le coordinate per entrambe le iniezioni craniche e spinali. L'obiettivo era quello di fornire un metodo per doppie iniezioni in un ratto neonatale con maggiore fedeltà e capacità di sopravvivenza.
Per il modello attuale, il vettore anterogrado è stato iniettato nei corpi cellulari della corteccia somatomotoria utilizzando il bregma come riferimento18,19. In termini di iniezioni spinali, il vettore retrogrado è stato iniettato nelle lamine V-VII, dove i terminali assoni CST risiedono20,21. Ci sono molte domande fondamentali alla base di come alcuni modelli di lesione influenzano gli animali più giovani in modo diverso e come il successivo recupero diverge da un animale più anziano. Questo studio dimostra un robusto mezzo per studiare le lesioni cervicali e la recuperabilità della funzione degli arti anteriori nei roditori neonatali. Al contrario, la maggior parte degli studi precedenti ha affrontato il recupero della locomozione a seguito di lesioni lombari o toraciche 5,22,23,24. Accoppiando il vettore a doppio virus con la nuova tecnica di iniezione qui descritta, questo protocollo aiuta a mitigare alcuni problemi (cioè la sopravvivenza) che possono affliggere le indagini sui roditori neonatali. Questo metodo è robusto, pratico e versatile: lievi variazioni nella tecnica consentiranno di indirizzare diversi percorsi, ad esempio CST ventrale, CST dorsale e percorsi dorsali ascendenti.
Per questo sistema, un virus ad azione locale (ad esempio, AAV2) viene iniettato nella regione dei corpi cellulari neuronali di interesse. Un secondo virus trasportato retrogradamente che controlla l'espressione del virus locale viene iniettato ai terminali assoni per quella popolazione neuronale. Quindi, per definizione, solo i neuroni corticospinali sono etichettati. Il virus retroAAV-Cre è stato scelto con un promotore CMV costitutivamente attivo in quanto il plasmide shuttle viene utilizzato per generare diversi sierotipi AAV per l'espressione Cre-dipendente in diversi tipi cellulari. Per le iniezioni corticali, AAV2 è stato scelto con il transgene guidato dal promotore sinapsina-1 per limitare qualsiasi espressione ai neuroni. Poiché il sistema 2-virale si basa maggiormente sull'origine e sulla cessazione della popolazione neuronale di interesse, potrebbero essere utilizzati diversi promotori, se possono guidare l'espressione dei geni di interesse all'interno della popolazione neuronale di interesse. Ad esempio, il promotore neuronale eccitatorio, CamKII, potrebbe essere sostituito per la sinapsina-1. Oltre all'uso di questi sierotipi AAV, il trasporto retrogrado nei motoneuroni corticospinali adulti può anche essere ottenuto utilizzando l'alto lentivirus trasportabile retrogrado (HiRet)25. I lentivirus HiRet utilizzano una glicoproteina chimerica di rabbia / VSV per indirizzare l'assorbimento alla sinapsi per il trasporto retrogrado. In combinazione con un promotore Tet-On, questo sistema 2-virale supporta l'espressione inducibile in modo retrogrado-dipendente26,27.
I virus retrogradi inseriscono vettori nello spazio sinaptico di un neurone bersaglio, permettendogli di essere assorbito dall'assone di quella cellula e trasportato al corpo cellulare. Mentre i vettori lentivirali hanno avuto in precedenza un enorme successo, fornendo espressione a lungo termine negli studi di terapia genica, questo metodo ha ruotato verso i vettori virali adeno-associati per alcune semplici ragioni26,28: AAV è più economico, altrettanto efficace e presenta meno di un onere logistico, dato che ha una designazione di livello di biosicurezza inferiore 29,30,31,32 . Mentre AAV2, il sierotipo più utilizzato, dimostra una robusta trasfezione degli assoni CST, i futuri ricercatori potrebbero notare che AAV1 offre una certa versatilità in quanto etichetta transynapticamente, mettendo così diverse possibili iterazioni in studi futuri33. L'adattamento finale consiste nel codificare il virus retrogrado con Cre-ricombinasi in modo che più vettori anterogradi possano essere introdotti contemporaneamente, riducendo così gli sprechi di virus interni non necessari e massimizzando la probabilità che i DREADD si esprimano nell'orientamento corretto.
In definitiva, questo protocollo dimostra l'iniezione simultanea nella corteccia e nella colonna cervicale, mirando in particolare ai corpi cellulari e ai terminali assoni del tratto corticospinale, rispettivamente. La trasfezione ad alta fedeltà è visibile nella corteccia cerebrale e nel midollo spinale. Mentre il protocollo descritto è stato perfezionato per ratti Sprague Dawley di 5 giorni di età, è adatto per i giorni postnatali 4-10 con piccoli aggiustamenti all'anestesia e alle coordinate stereotassiche.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
Tutte le seguenti procedure chirurgiche e di cura degli animali sono state approvate dal Comitato per la cura e l'uso degli animali della Temple University. Il protocollo descritto è un intervento chirurgico di sopravvivenza e gli animali sono stati infine eutanasizzati, mediante iniezione intraperitoneale di 100 mg/kg di pentobarbital di sodio al completamento dei loro punti temporali.
1. Preparazione pre-chirurgica
- Preparare almeno due aghi di vetro tirati per l'iniezione virale utilizzando pipette capillari di vetro da 3,5 nL; un ago per il DREADD e un ago per il rCre. Come misura precauzionale, preparare 4-5 aghi nel caso in cui si rompano intraoperatoriamente.
- Usando le microforbici, tagliare 1-2 mm di vetro in eccesso dall'ago.
- Per ogni ago, posizionarlo a 30°, utilizzare una smussatrice per micropipette per creare una punta con un'apertura di 30-40 μm e un angolo smussato di 45°.
- Conservare gli aghi in una capsula di Petri coperta e quindi sterilizzarli posizionando la capsula di Petri in una cappa di biosicurezza sotto la luce UV per 15 minuti.
- Preparare i virus necessari rimuovendo un volume adeguato dal congelatore a -80 °C prima della procedura, tenendo presente che ogni animale richiederà 3 μL di ciascun virus.
NOTA: trasportare e conservare il virus sul ghiaccio quando non è in uso. Questo protocollo è stato sviluppato utilizzando AAV2-hM3Dq-mCherry e AAV2-retroCre per iniettare 3 μL di ciascun virus per animale. Il plasmide DREADD, pAAV-hSyn-DIO-hM3Dq-mCherry (vedere la Tabella dei Materiali), è stato utilizzato per produrre l'AAV2 anterogrado con un titolo virale di 1,54 × 10¹² copie del genoma (GC)/ml. Il plasmide Cre, pAAV-CMV-scCre, è stato utilizzato per produrre l'AAV2 retrogrado con un titolo virale di 4,27 × 10¹² GC/ml. - Collegare l'iniettore alla micropompa e posizionarlo in un micromanipolatore con una scala di Vernier.
- Per aiutare a confermare visivamente la presenza o l'assenza di virus nell'ago, caricare colorante colorato, cioè olio rosso, nell'ago. Evitare bolle nell'ago.
- Inserire l'ago di vetro nell'iniettore, assicurandosi che l'ago si adatti correttamente.
- Se disponibile, ripetere l'intero processo con una pompa di iniezione separata per ciascun virus. Se è disponibile una sola pompa per iniezione, preparare due aghi separati e sostituire l'ago usato quando è il momento di sostituire i virus.
2. Anestesia e preparazione del sito chirurgico
- Pesa l'animale su una bilancia digitale. Registrare il peso preoperatorio per determinare il volume di anestetico richiesto.
NOTA: Questo protocollo ha rilevato che la tecnica anestetica più affidabile per garantire un piano anestetico soddisfacente per tutto il tempo operatorio è una combinazione di ketamina e ipotermia. La ketamina è insufficiente per garantire l'anestesia da sola e integrarla con xilazina ha una soglia ristretta prima di aumentare la mortalità intraoperatoria. L'ipotermia da sola non è sufficiente per interventi chirurgici prolungati (la doppia chirurgia della colonna vertebrale e del cervello richiede probabilmente >1 ora di anestesia costante). - Anestetizzare il cucciolo iniettando ketamina diluita (10 mg/ml) per via sottocutanea tra le scapole in modo che l'animale riceva una dose di 100 mg/kg di ketamina; attendere 5 min.
NOTA: Ad esempio, al giorno 5 postnatale, un cucciolo di ratto pesa 10 g e riceve 0,1 ml di soluzione diluita di ketamina (10 mg / ml). - Metti il cucciolo sul ghiaccio tritato per 6-8 minuti. Proteggerlo dal congelamento mettendo l'animale in un guanto di lattice o parafilm per evitare il contatto diretto con il ghiaccio.
- Pizzicare saldamente il piede usando una pinza per confermare un piano anestetico appropriato. Se si verifica un ritiro riflessivo, lasciare per altri 2 minuti sul ghiaccio prima di procedere.
- Applicare ampiamente l'antisettico sulla testa e sulla schiena dell'animale usando una garza sterile imbevuta di una soluzione di iodio al 5%. Quindi, sterilizzare con una garza imbevuta di etanolo al 70%. Applicare le salviette antisettiche tre volte ciascuna, alternando iodio ed etanolo per immergere la garza.
NOTA: Non c'è bisogno di cure oculistiche poiché i giovani cuccioli aprono gli occhi solo a 14 giorni di età. - Se un animale deve ricevere un doppio intervento chirurgico (cervello + colonna vertebrale), fornire un normale bolo salino prima dell'intervento chirurgico (0,02 ml / g) per via sottocutanea tra le scapole.
NOTA: se l'animale diventa reattivo durante l'intervento chirurgico ed è necessaria un'ulteriore anestesia, sostituire l'animale sul ghiaccio per 5 minuti.
3. Campo chirurgico e preparazione dello strumento
- Autoclave gli strumenti chirurgici che includono un portabisturi, rongeurs, emostatici, pinze curve di medio punto e divaricatori
- Preparare il microscopio e installare l'adattatore stereotassico neonatale per ratto per posizionarlo saldamente all'interno del supporto stereotassico adulto.
- Condurre l'intervento chirurgico utilizzando guanti sterilizzati. Aprire un pacchetto di guanti chirurgici sterili preconfezionati e posizionare l'involucro sterile del guanto sul tavolo, utilizzando l'involucro come area aggiuntiva per posizionare gli strumenti usati.
NOTA: È importante seguire una buona pratica chirurgica e mantenere la sterilità durante tutta la procedura. - Fissare una lama 11 nel supporto del bisturi. Posizionare soluzione salina sterile, sutura catgut cromica 4.0, sutura seta 4.0 e materiali per controllare il sanguinamento, ad esempio garze sterili, applicatori sterili con punta di cotone e triangoli.
- Impostare due campi chirurgici come descritto sopra, con un sito assegnato per craniotomia e l'altro sito assegnato per laminectomia cervicale.
- Recuperate l'animale e assicuratelo nell'adattatore stereotassico: poiché i neonati sono molto cartilaginei fissateli delicatamente dirigendo ampiamente le barre auricolari verso le articolazioni mandibolari. Una volta stabilizzato orizzontalmente, introdurre delicatamente il boccaglio anteriore.
NOTA: Una regola non vincolante utilizzata per fornire un'area chirurgica "piatta" è quella di fissare le barre auricolari alla stessa altezza e il boccaglio a circa 2-3 livelli più in basso.
4. Esecuzione della craniotomia ed esposizione della corteccia somatomotoria
- Identificare l'area in cui verrà eseguita l'incisione premendo la pinza nella linea mediana sulla parte superiore del cuoio capelluto, sentendo la sutura sagittale. Fare un'incisione di 1 cm lungo il piano di sutura sagittale, iniziando immediatamente sopra la linea degli occhi. Tenere la pelle tesa per garantire un'incisione pulita, dritta e precisa.
- Identificare il bregma (la convergenza delle suture coronale e sagittale) sondando delicatamente le pinze lungo la superficie del cranio e prestando molta attenzione alle linee di sutura e a qualsiasi rientranza causata dal forcipe che corre lungo le ossa parietali e frontali.
- Mantenere l'apertura con l'applicazione di ganci ponderati sul lato di interesse. Si noti che l'iniezione spinale viene effettuata sul lato destro, l'iniezione cranica è sul lato sinistro.
- Eliminare l'aponeurosi con una combinazione di punte di cotone e microforbici per massimizzare l'esposizione del bregma per una maggiore precisione. Assicurarsi che la sutura coronale sia in chiara vista abbastanza lontano lateralmente da fornire un modello approssimativo per le iniezioni successive.
- Usando le microforbici, ritagliare circa una sezione di 3 x 2 mm dell'osso frontale sinistro del cranio immediatamente adiacente al bregma.
NOTA: Una volta che il lembo osseo è stato accuratamente rimosso, dovrebbe esserci una finestra libera con materia cerebrale esposta pronta per l'iniezione. Le restanti linee di sutura sul lato controlaterale del cervello fungeranno da guida visiva per mantenere la precisione lungo l'asse antero-posteriore (AP). - Eliminare eventuali detriti, liquido cerebrospinale (CSF) e sangue con punte di cotone.
NOTA: È normale che il sangue o il liquido cerebrospinale oscurino leggermente la linea visiva, quindi è consigliabile liberare regolarmente l'area con punte di cotone.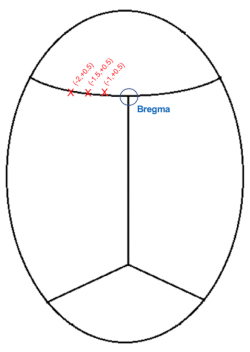
Figura 3: Un'illustrazione schematica delle coordinate dell'iniezione cranica (mm) rispetto al bregma. Fare clic qui per visualizzare una versione più grande di questa figura.
5. Caricamento del virus e posizionamento dell'iniettore
- Caricare il virus nell'iniettore pipettando ~5 μL su un pezzo di parafilm e posizionare l'ago in modo che la punta sia appoggiata sopra la goccia del virus.
- Assicurarsi che il virus supplementare sia caricato nell'iniettore per garantire un'iniezione regolare. Ad esempio, quando si inietta un totale di 3 μL (1 μL per ciascun sito di iniezione), prelevare 4 μL del virus ad una velocità di 250 nL/s utilizzando la micropompa.
- Rimuovere il virus in eccesso con una salvietta di laboratorio.
- Posizionare il micromanipolatore in modo che la scala di Vernier sia visibile e posizionare l'ago sopra la sutura sagittale.
- Abbassare l'ago appena sopra l'area che rappresenta il bregma (Figura 3) e annotare le coordinate AP e mediale-laterale (ML).
- Dato che le iniezioni saranno sul lato sinistro, generare le coordinate target sottraendo 1, 1,5 e 2,0 mm (ML: -1,0, -1,5, -2,0) dalle coordinate ML per bregma.
NOTA: La posizione AP sarà +0,5 mm da bregma per tutte e tre le iniezioni. - Spostare l'ago in posizione per la prima iniezione. AP: +0,5, ML: -1,0
- Abbassare l'ago al cervello esposto fino a quando non sta indentando la corteccia esterna. Annotare l'altezza dell'ago e portare l'ago in posizione sottraendo 0,6 mm dall'altezza della superficie del cervello. Profondità di iniezione: superficie corticale -0,6 mm.
NOTA: È importante notare la profondità della superficie per ogni iniezione poiché possono verificarsi lievi interruzioni nel posizionamento del ratto.
6. Iniezione di virus nella corteccia somatomotoria
- Una volta che l'ago è in posizione, programmare l'iniettore per iniettare 1 μL ad una velocità di 250 nL/min.
- Una volta completata l'iniezione, lasciare riposare l'ago nella corteccia per 3 minuti.
- Ripetere le iniezioni per le altre coordinate: un totale di 3 iniezioni lungo la corteccia in relazione al bregma, tutte ad una profondità di -0,6 mm: 1) AP: +0,5 mm, ML: -1,0 mm 2) AP: +0,5 mm, ML: -1,5 mm 3) AP: +0,5 mm, ML: -2,0 mm.
- Dopo il completamento delle iniezioni, fare riferimento al paragrafo 9 per la sutura e trasferire l'animale sull'altro tavolo operatorio per la laminectomia cervicale.
7. Creazione di una finestra spinale per iniezioni precise del midollo spinale
- Identificare il sito di incisione usando le dita per palpare la base del cranio. Sulla linea mediana, iniziare l'incisione 1-2 mm posteriormente alla base del cranio usando una lama #11 ed estendere l'incisione 1 cm posteriormente per esporre il muscolo superficiale. Tenere la pelle tesa applicando tensione con il pollice e l'indice per garantire un'incisione pulita.
- Usando la punta affilata della lama, effettuare delicatamente una serie di tagli lungo la linea mediana del muscolo superficiale per esporre la cavità spinale e i muscoli spinali profondi. Utilizzare un paio di pinze per aprire il muscolo e visualizzare la finestra chirurgica.
NOTA: Il muscolo superficiale apparirà rosa chiaro, mentre i muscoli spinali profondi appariranno di un grigio biancastro chiaro. - Una volta che i muscoli spinali profondi sono stati esposti, inserire i divaricatori nella finestra chirurgica. Se necessario, utilizzare una pinza per afferrare la pelle laterale e i muscoli per allungarli intorno ai denti dei divaricatori. Ritrarre la finestra chirurgica a 7-8 mm di larghezza, consentendo una visione libera della colonna vertebrale.
- Identificare la seconda vertebra cervicale (C2 o asse) dal suo processo spinoso prominente che proietta dorsalmente e incapsulamento in un grande muscolo a forma di cupola. Usa una pinza o una sonda smussata per sentire e identificare questo processo, poiché questo sarà il punto di riferimento guida.
NOTA: La vertebra C3 adiacente è spesso leggermente occlusa dal grande muscolo C2; pertanto, una delicata dissezione del muscolo a C3 con una pinza o un raschietto osseo aiuta a definire la vertebra e aiuta nel conteggio vertebrale. - Utilizzando il bordo piatto di un raschietto osseo, esporre le vertebre C3-C7 raschiando delicatamente via il muscolo spinale profondo ai lati. Inizia mediale e raschia lateralmente lungo la direzione parallela alle lamine vertebrali per garantire una corretta esposizione, che consentirà una chiara distinzione delle lamine vertebrali. Controlla qualsiasi sanguinamento con punte di cotone.
- Utilizzando un paio di microforbici, tagliare con cura i bordi laterali delle lamine cartilaginee a C6 e C7. Utilizzare C2 come guida quando si contano i livelli vertebrali.
- Utilizzando un paio di pinze sottili, rimuovere con attenzione la porzione sezionata della lamina per esporre il midollo spinale. Assicurarsi che la finestra spinale sia abbastanza grande da ospitare il sito di iniezione desiderato. Rimuovere eventuali parti taglienti o frastagliate dell'osso che possono perforare il midollo spinale con microforbici e pinze come descritto sopra.
- Sistemare l'animale nel supporto cranico stereotassico come descritto nel paragrafo 3.6. Inoltre, posizionare un pezzo di garza arrotolato sotto il tronco dell'animale per sollevare i quarti posteriori.
NOTA: L'elevazione dei quarti posteriori dell'animale solleva efficacemente il torace dalla superficie del supporto per evitare che i movimenti respiratori influenzino la posizione dell'ago durante l'iniezione. - Prima di iniziare le iniezioni, liberare la finestra spinale da qualsiasi sangue o liquido cerebrospinale applicando delicatamente punte di cotone e triangoli Sugi sulla zona senza insultare il midollo spinale. Inoltre, creare una barriera attorno al perimetro della finestra per prevenire l'occlusione del sito di iniezione da sanguinamento continuo o perdite di liquido cerebrospinale. Per fare questo, posizionare un piccolo pezzo di cotone assorbibile nelle parti laterali della finestra spinale.
8. Iniezioni dirette nel midollo spinale che prendono di mira i terminali degli assoni
- Utilizzando la punta dell'ago per iniezione di vetro, approssimare la linea mediana del midollo spinale identificando l'arteria spinale. Tuttavia, se l'arteria spinale è notevolmente decentrata o devia in qualche modo, approssimare la linea mediana utilizzando la posizione del processo spinoso C2 ed estrapolarlo lungo la lunghezza della colonna vertebrale.
NOTA: Fare riferimento al paragrafo 5.1 per istruzioni sul caricamento del virus. - Una volta identificato, posizionare l'ago appena posteriormente alla lamina C5 sulla linea mediana approssimativa e utilizzarlo come punto di riferimento. Quindi, utilizzando il micromanipolatore, spostare l'ago lateralmente verso destra di 0,3 mm. Abbassare l'ago fino a quando non tocca solo la superficie del midollo spinale; Da questa profondità, immergere l'ago di 0,6 mm nel midollo spinale. Se necessario, continuare a immergere l'ago fino a quando non perfora il midollo spinale; Quindi, ritrarre o abbassare l'ago alla profondità appropriata.
- Iniettare 1 μL di retroAAV2-scCre a 250 nL/min. Al termine dell'iniezione, attendere 2 minuti affinché il virus si diffonda nel midollo spinale prima di ritirare lentamente l'ago. Ripetere le iniezioni utilizzando le stesse coordinate laterali e di profondità in altri due siti all'interno della finestra spinale, uno nel punto medio e l'ultimo appena anteriore alla lamina T1.
9. Chiusura della ferita e cure postoperatorie
- Rimuovere l'animale dal supporto stereotassico ed estrarre i divaricatori o i ganci. Eliminare l'area della ferita con alcune gocce di soluzione salina normale sterile.
- Sutura del cuoio capelluto con sutura di seta 4.0, due o 3 suture in totale.
- Quando si sutura l'apertura cervicale, utilizzare l'intestino cromico 4.0 per riattaccare saldamente gli strati muscolari (2 punti di sutura dovrebbero essere sufficienti). Suturare l'apertura della pelle cervicale con seta 4.0 (4 suture previste).
- Una volta che l'animale è chiuso, applicare giudiziosamente una benda liquida attraverso le suture.
- Posizionare l'animale sotto una lampada riscaldante e monitorarlo attentamente fino al completo risveglio. Una volta che l'animale è sveglio, in movimento e asciutto, pulire delicatamente le ferite con una garza sterile. Non lasciare l'animale incustodito fino a quando non ha riacquistato sufficiente coscienza per mantenere la recumenza sternale.
- Riporta l'animale nella gabbia di casa con sua madre. Fare attenzione a prevenire l'abbandono e la cannibalizzazione infantile da parte della madre nei confronti dei cuccioli:
- Familiarizzare i ricercatori con la madre in previsione dell'intervento chirurgico attraverso una manipolazione delicata (5-10 minuti) due volte al giorno, iniziando una settimana prima dell'intervento.
- Riportare i cuccioli nella gabbia di casa insieme per limitare i disagi alla madre.
- Iniettare alla madre acepromazina 1,5 mg/kg q12 h per via sottocutanea il giorno dell'intervento.
NOTA: La gestione del dolore ha il duplice scopo di fornire analgesia ai cuccioli e incoraggiare il ritorno precoce all'attività, promuovendo così il reinserimento con la madre. - Iniettare buprenorfina 0,05 mg/kg per via sottocutanea q8 h a partire dall'intervento chirurgico per un totale di 3 giorni (giorni postoperatori 0, 1, 2).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Il successo dell'iniezione e del trasporto del vettore virale dovrebbe comportare la trasduzione dei neuroni unilaterali nel midollo spinale e nella corteccia motoria. La Figura 4 mostra l'etichettatura dei neuroni CST di strato V nella corteccia motoria di una sezione coronale cerebrale che esprime Cre-dipendente-DREADDs-mCherry co-iniettato con un'iniezione controlaterale della colonna vertebrale di rCre. Le sezioni erano colorate con l'anticorpo dsRed.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
La modulazione genetica inducibile dell'attività cerebrale con modificatori chemiogenetici iniettabili è un potente strumento per studiare i vari meccanismi che sono alla base del recupero dalla SCI. L'accuratezza del targeting per i recettori inducibili accoppiati a proteine G (DREADD) è ulteriormente aumentata se si considera che il tracciamento della fluorescenza convalida la precisione anatomica in istologia. Questo articolo discute un metodo affidabile per esplorare se l'inibizione o la stimolazione di percorsi neur...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori non hanno nulla da rivelare.
Ringraziamenti
Questo lavoro è stato finanziato da una borsa di studio di Shriners Hospitals for Children SHC-84706.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Lame per bisturi #11 | Roboz | RS-9801-11 | Da utilizzare con il bisturi. |
| #10 Lame per bisturi | Roboz | RS-9801-10 | Da utilizzare con il bisturi. |
| Siringhe da 1 ml Becton | , Dickinson and Company | Per l'iniezione di anestesia SC e il bolo fluido | |
| Sutura in seta 4.0 | Ethicon | 771-683G | Per la chiusura della pelle |
| Sutura cromica in catgut 4.0 | DemeTECH | NN374-16 | Per rilegare il muscolo durante la chiusura. |
| 48000 Smussatrice per micropipette | World Precision Instruments | 32416 | Utilizzato per smussare le punte dei tubi capillari di vetro tirati per formare aghi di vetro funzionali. |
| Soluzione di iodio al 5% | Purdue Products L.P. | L01020-08 | Per l'uso nella sterilizzazione del sito chirurgico. |
| 70% Etanolo | N/A | N/A | Per la sterilizzazione di aghi di vetro appena preparati, modelli animali durante la preparazione chirurgica |
| Ketamina (Ketaset) | Zoetis | 240048 | Per mantenere l'animale nel corretto piano di coscienza durante l'intervento chirurgico. |
| Sterilizzatore di perline | CellPoint | 5-1450 | Per sterilizzare a caldo gli strumenti chirurgici. |
| Bilancia digitale | Okaus | REV.005 | Per pesare l'animale durante la preparazione chirurgica. |
| Attacco flessibile dell'ago | World Precision Instruments | MF34G-5 | Per la pulizia degli aghi di vetro e il caricamento di olio rosso negli aghi di vetro. |
| Tubi capillari in vetro | World Precision Instruments | 4878 | Per aghi in vetro tirati - dovrebbe essere progettato per iniettori di nanolitri. |
| Emostatici | Roboz | RS-7231 | Per uso generale in chirurgia. |
| Pinze curve a punta media | Roboz | RS-5136 | Per uso generale in chirurgia. |
| Micromanipolatore con scala a corsoio | Kanetec | N/A | Per un puntamento preciso durante l'intervento chirurgico. |
| Microforbici | Roboz | RS-5621 | Per tagliare i fili di vetro dai tubi capillari di vetro appena tirati. |
| Strumento stereotassico standard da laboratorio | Stoelting | 51600 | Per tenere in posizione il supporto sterotassico neonatale |
| da laboratorio con mouse e Adattatore per neonati | 51615 | Per la fissazione del cranio neonatale durante la chirurgia cranica e le | |
| Microscopio con luce e scala a corsoio Oculare | Leitz Wetzlar | N/A | Utilizzato per visualizzare e misurare la smussatura dei tubi capillari di vetro tirati in aghi di vetro funzionali. |
| Controller per pompe a microsiringa | World Precision Instruments | 62403 | Per controllare la velocità di iniezione. |
| Iniettore della testa della pompa Nanoliter 2000 | World Precision Instruments | 500150 | Per caricare e iniettare virus in modo controllato. |
| Estrattore per aghi | Narishige | PC-100 | Per riscaldare e separare i tubi capillari di vetro per formare aghi di vetro. |
| pAAV-CMV-scCre | Wu lab | Cre | |
| plasmide pAAV-hSyn-DIO-hM3Dq-mCherry (plasmide #44361) | Bryan Roth' s laboratorio attraverso Addgene | DREADD plasmide | |
| Parafilm | Bemis | PM-996 | Per assistere con il caricamento del virus nel nanoiniettore. |
| Aghi PrecisionGlide (25G x 5/8) | Becton, Dickinson and Company | 305122 | Da utilizzare con le siringhe da 1 ml e 10 ml per consentire l'iniezione del modello animale. |
| Pinze per denti di ratto | Roboz | RS-5152 | Per la presa di processi spinosi. |
| Red Oil | N/A | N/A | Per fornire un fronte per la visualizzazione del virus che entra nel tessuto durante l'iniezione. |
| Divaricatori | Roboz | RS-6510 | Per tenere aperta la ferita chirurgica. |
| Rongeurs | Roboz | RS-8300 | Per rimuovere il muscolo dalla colonna vertebrale durante l'intervento chirurgico. |
| Manico a lama di bisturi | Roboz | RS-9843 | Per affettare la pelle aperta e il cuscinetto adiposo di un modello animale durante l'intervento chirurgico. |
| Forbici | Roboz | RS-5980 | Per uso generale in chirurgia. |
| Pinze per la rimozione delle graffette | Kent Scientific | INS750347 | Per rimuovere le graffette, se applicate in modo errato. |
| Panno sterile | Phenix Research Products | BP-989 | Per fornire una superficie sterile per l'operazione. |
| Applicatori sterili con punta in cotone | Puritan | 806-WC | Per assorbire il sangue nella ferita chirurgica mantenendo la sterilità. |
| Garza Sterile | Covidien | 2146 | Per pulire l'area chirurgica e gli strumenti chirurgici mantenendo la sterilità. |
| Soluzione salina sterile | Baxter Healthcare Corporation | 281324 | Per l'uso nella pulizia del sangue e per la sostituzione dei liquidi dopo l'intervento chirurgico. |
| Guanti chirurgici | N/A | N/A | Per l'uso da parte del chirurgo per mantenere il campo sterile durante l'intervento chirurgico. |
| Cuscinetto riscaldante chirurgico | N/A | N/A | Per mantenere la temperatura corporea del modello animale durante l'intervento chirurgico. |
| Microscopio operatorio | N/A | N/A | Per una migliore visualizzazione della ferita chirurgica. |
| Suturatrice chirurgica | Kent Scientific | INS750546 | Per applicare le graffette. |
| Cuscinetto riscaldante a convezione d'acqua | Baxter Healthcare Corporation | L1K018 | Per l'uso nell'area di recupero post-operatoria per mantenere la temperatura corporea dell'animale incosciente. |
| Ganci ponderati | N/A | N/A | Per tenere aperta la ferita chirurgica. |
| Bendaggio liquido | NewSkin | 985838 | Da applicare lungo le suture dopo l'intervento chirurgico e favorire la guarigione delle ferite |
| Lampada a gabbia metallica | ZooMed | LF10EC | Per aiutare gli animali a riprendersi dall'anestesia e a mantenere la temperatura corporea calda in modo naturale |
Riferimenti
- Parent, S., Mac-Thiong, J., Roy-Beaudry, M., Sosa, J. F., Labelle, H. Spinal cord injury in the pediatric population: A systematic review of the literature. Journal of Neurotrauma. 28 (8), 1515-1524 (2011).
- Vitale, M. G., Goss, J. M., Matsumoto, H., Roye, D. P. Epidemiology of pediatric spinal cord injury in the united states: Years 1997 and 2000. Journal of Pediatric Orthopedics. 26 (6), 745-749 (2006).
- Bregman, B. S., Goldberger, M. E. Anatomical plasticity and sparing of function after spinal cord damage in neonatal cats. Science. 217 (4559), 553-555 (1982).
- Castro, A. J. Ipsilateral corticospinal projections after large lesions of the cerebral hemisphere in neonatal rats. Experimental Neurology. 46 (1), 1-8 (1975).
- Commissiong, J. W., Toffano, G. Complete spinal cord transection at different postnatal ages: Recovery of motor coordination correlated with spinal cord catecholamines. Experimental Brain Research. 78 (3), 597-603 (1989).
- Yuan, Q., Su, H., Chiu, K., Wu, W., Lin, Z. Contrasting neuropathology and functional recovery after spinal cord injury in developing and adult rats. Neuroscience Bulletin. 29 (4), 509-516 (2013).
- Kim, J., et al. Viral transduction of the neonatal brain delivers controllable genetic mosaicism for visualizing and manipulating neuronal circuits in vivo. The European Journal of Neuroscience. 37 (8), 1203-1220 (2013).
- Pawliuk, R., et al. Correction of sickle cell disease in transgenic mouse models by gene therapy. Science. 294 (5550), 2368-2371 (2001).
- Atasoy, D., Sternson, S. M. Chemogenetic tools for causal cellular and neuronal biology. Physiological Reviews. 98 (1), 391-418 (2018).
- Brandt, H. M., Apkarian, A. V. Biotin-dextran: A sensitive anterograde tracer for neuroanatomic studies in rat and monkey. Journal of Neuroscience Methods. 45 (1-2), 35-40 (1992).
- Veenman, C. L., Reiner, A., Honig, M. G. Biotinylated dextran amine as an anterograde tracer for single- and double-labeling studies. Journal of Neuroscience Methods. 41 (3), 239-254 (1992).
- Reiner, A., et al. Pathway tracing using biotinylated dextran amines. Journal of Neuroscience Methods. 103 (1), 23-37 (2000).
- Oguchi, M., et al. Double virus vector infection to the prefrontal network of the macaque brain. PloS One. 10 (7), 0132825(2015).
- Kinoshita, M., et al. Genetic dissection of the circuit for hand dexterity in primates. Nature. 487 (7406), 235-238 (2012).
- Bernstein, D. R., Stelzner, D. J. Plasticity of the corticospinal tract following midthoracic spinal injury in the postnatal rat. The Journal of Comparative Neurology. 221 (4), 382-400 (1983).
- Brown, K., Wolfe, B., Wrathall, J. Rapid functional recovery after spinal cord injury in young rats. Journal of Neurotrauma. 22, 559-574 (2005).
- Tillakaratne, N. J. K., et al. Functional recovery of stepping in rats after a complete neonatal spinal cord transection is not due to regrowth across the lesion site. Neuroscience. 166 (1), 23-33 (2010).
- Kartje-Tillotson, G., Neafsey, E. J., Castro, A. J. Electrophysiological analysis of motor cortical plasticity after cortical lesions in newborn rats. Brain Research. 332 (1), 103-111 (1985).
- Gennaro, M., et al. Focal stroke in the developing rat motor cortex induces age- and experience-dependent maladaptive plasticity of corticospinal system. Frontiers in Neural Circuits. 11, 47(2017).
- Brichta, A. M., Grant, G. Cytoarchitectural organization of the spinal cord. The rat nervous system. Paxinos, G. 2, Academic Press. New York. 294-309 (1985).
- Kjell, J., Olson, L. Rat models of spinal cord injury: From pathology to potential therapies. Disease Models & Mechanisms. 9 (10), 1125-1137 (2016).
- Takeoka, A., Arber, S. Functional local proprioceptive feedback circuits initiate and maintain locomotor recovery after spinal cord injury. Cell Reports. 27 (1), 71-85 (2019).
- Flynn, J. R., Graham, B. A., Galea, M. P., Callister, R. J. The role of propriospinal interneurons in recovery from spinal cord injury. Neuropharmacology. 60 (5), 809-822 (2011).
- Ohne, H., et al. Mechanism of forelimb motor function restoration in rats with cervical spinal cord hemisection-neuroanatomical validation. IBRO Reports. 7, 10-25 (2019).
- Wang, X., et al. Deconstruction of corticospinal circuits for goal-directed motor skills. Cell. 171 (2), 440-455 (2017).
- Sheikh, I. S., et al. Retrogradely transportable lentivirus tracers for mapping spinal cord locomotor circuits. Frontiers in Neural Circuits. 12, 60(2018).
- Kinoshita, M., et al. Genetic dissection of the circuit for hand dexterity in primates. Nature. 487, 235-238 (2012).
- Keefe, K. M., Junker, I. P., Sheikh, I. S., Campion, T. J., Smith, G. M. Direct injection of a lentiviral vector highlights multiple motor pathways in the rat spinal cord. Journal of Visualized Experiments: JoVE. (145), e59160(2019).
- Hutson, T. H., Verhaagen, J., Yáñez-Muñoz, R. J., Moon, L. D. F. Corticospinal tract transduction: A comparison of seven adeno-associated viral vector serotypes and a non-integrating lentiviral vector. Gene Therapy. 19 (1), 49-60 (2012).
- Liu, Y., Keefe, K., Tang, X., Lin, S., Smith, G. M. Use of self-complementary adeno-associated virus serotype 2 as a tracer for labeling axons: Implications for axon regeneration. Plos One. 9 (2), 87447(2014).
- Tervo, D. G. R., et al. A designer AAV variant permits efficient retrograde access to projection neurons. Neuron. 92 (2), 372-382 (2016).
- Abdellatif, A. A., et al. delivery to the spinal cord: Comparison between lentiviral, adenoviral, and retroviral vector delivery systems. Journal of Neuroscience Research. 84 (3), 553-567 (2006).
- Zingg, B., Peng, B., Huang, J., Tao, H. W., Zhang, L. I. Synaptic specificity and application of anterograde transsynaptic AAV for probing neural circuitry. The Journal of Neuroscience. 40 (16), 3250-3267 (2020).
- Armbruster, B. N., Li, X., Pausch, M. H., Herlitze, S., Roth, B. L. Evolving the lock to fit the key to create a family of G protein-coupled receptors potently activated by an inert ligand. Proceedings of the National Academy of Sciences of the United States of America. 104 (12), 5163-5168 (2007).
- Roth, B. L. DREADDs for neuroscientists. Neuron. 89 (4), 683-694 (2016).
- Hasegawa, A., et al. Mechanism of forelimb motor function restoration after cervical spinal cord hemisection in rats: A comparison of juveniles and adults. Behavioural Neurology. 2016, 1035473(2016).
- Alstermark, B., Isa, T. Circuits for skilled reaching and grasping. Annual Review of Neuroscience. 35, 559-578 (2012).
- García-Alías, G., Truong, K., Shah, P. K., Roy, R. R., Edgerton, V. R. Plasticity of subcortical pathways promote recovery of skilled hand function in rats after corticospinal and rubrospinal tract injuries. Experimental Neurology. 266, 112-119 (2015).
- Tohyama, T., et al. Contribution of propriospinal neurons to recovery of hand dexterity after corticospinal tract lesions in monkeys. Proceedings of the National Academy of Sciences of the United States of America. 114 (3), 604-609 (2017).
- Z'Graggen, W. J., et al. Compensatory sprouting and impulse rerouting after unilateral pyramidal tract lesion. Journal of Neuroscience. 20 (17), 6561-6569 (2000).
- Ueno, M., et al. Corticospinal circuits from the sensory and motor cortices differentially regulate skilled movements through distinct spinal interneurons. Cell Reports. 23 (5), 1286-1300 (2018).
- Kim, J., Grunke, S. D., Levites, Y., Golde, T. E., Jankowsky, J. L. Intracerebroventricular viral injection of the neonatal mouse brain for persistent and widespread neuronal transduction. Journal of Visualized Experiments: JoVE. (91), e51863(2014).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
