Qui, presentiamo un metodo quantitativo poco costoso che utilizza l'ossido di deuterio e la spettrometria di massa gascromatografica (GCMS) per l'analisi della lipogenesi de novo degli acidi grassi totali nel tessuto adiposo bruno in vivo.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Determinazione quantitativa della sintesi de novo degli acidi grassi nel tessuto adiposo bruno utilizzando l'ossido di deuterio
* These authors contributed equally
In questo articolo
Sommario
Abstract
La sintesi degli acidi grassi è una via metabolica complessa e altamente energivora con importanti ruoli funzionali nel controllo dell'omeostasi metabolica di tutto il corpo e di altri processi fisiologici e patologici. Contrariamente ad altre vie metaboliche chiave, come lo smaltimento del glucosio, la sintesi degli acidi grassi non viene valutata funzionalmente di routine, portando a interpretazioni incomplete dello stato metabolico. Inoltre, mancano protocolli dettagliati disponibili al pubblico adatti ai nuovi arrivati nel settore. Qui, descriviamo un metodo quantitativo economico che utilizza l'ossido di deuterio e la spettrometria di massa gascromatografica (GCMS) per l'analisi della sintesi de novo di acidi grassi totali nel tessuto adiposo bruno in vivo. Questo metodo misura la sintesi dei prodotti dell'acido grasso sintasi indipendentemente da una fonte di carbonio ed è potenzialmente utile praticamente per qualsiasi tessuto, in qualsiasi modello murino e sotto qualsiasi perturbazione esterna. Vengono forniti dettagli sulla preparazione del campione per GCMS e sui calcoli a valle. Ci concentriamo sull'analisi del grasso bruno a causa dei suoi alti livelli di sintesi di acidi grassi de novo e dei ruoli critici nel mantenimento dell'omeostasi metabolica.
Introduzione
L'obesità e le malattie metaboliche associate sono una pandemia che mette in pericolo le generazioni presenti e future 1,2. Comunemente semplificata come conseguenza dello squilibrio tra apporto e dispendio energetico, la disregolazione metabolica associata all'obesità interessa un gran numero di vie metaboliche controllate da fattori ambientali ed endogeni3. Tuttavia, solo poche vie sono testate di routine in modelli animali di disregolazione metabolica.
Ad esempio, lo smaltimento del glucosio viene misurato di routine mediante test di tolleranza al glucosio e all'insulina, probabilmente a causa della semplicità dell'utilizzo di monitor portatili del glucosio4. Anche i tassi relativi di glucosio e ossidazione dei lipidi nell'intero corpo sono regolarmente stimati sulla base del rapporto di scambio respiratorio dei saggi di calorimetria indiretta 5,6. Tuttavia, la maggior parte di tutti gli altri aspetti del metabolismo non sono valutati funzionalmente di routine. Ciò porta a interpretazioni incomplete dello stato metabolico e a opzioni terapeutiche mancate. Uno dei principali percorsi di questo tipo è la lipogenesi de novo.
La lipogenesi de novo (DNL) è il processo mediante il quale vengono generati nuovi acidi grassi dai precursori. Il glucosio è considerato il principale precursore che contribuisce al DNL7 per tutto il corpo, tuttavia altri precursori, come l'acetato, il fruttosio, il lattato e gli aminoacidi a catena ramificata, hanno dimostrato di essere fonti di carbonio rilevanti in modo spaziale e dipendente dalle condizioni 8,9,10,11,12. Il DNL è un fattore chiave che contribuisce all'omeostasi metabolica ed è essenziale per il normale sviluppo13. Inoltre, le alterazioni del DNL sono state associate al cancro 14,15 e al metabolismo 16,17,18 e alle malattie cardiovascolari 19,20.
La via DNL è composta dai componenti enzimatici principali ATP citrato liasi (ACLY), acetil-CoA carbossilasi (ACC1/2) e acido grasso sintasi (FAS) che producono principalmente palmitato, un acido grasso saturo a 16 atomi di carbonio. Tuttavia, gli acidi grassi a catena dispari e a catena ramificata possono essere prodotti anche a tassi inferiori9. Le elongasi e le desaturasi modificano ulteriormente questi acidi grassi, creando una vasta gamma di specie di acidi grassi utili per una varietà di funzioni (ad esempio, l'immagazzinamento di energia a lungo termine e la manipolazione della fluidità della membrana).
L'espressione del meccanismo enzimatico DNL è controllata da un breve numero di fattori di trascrizione. I più ben descritti fino ad oggi includono la famiglia della proteina legante gli elementi regolatori degli steroli (SREBP), la proteina legante l'elemento di risposta ai carboidrati (ChREBP) e il recettore X del fegato (LXR)21,22,23,24,25,26. Nonostante un'apparente sovrapposizione nelle loro funzioni, sono state riportate regolazioni individuali basate sulla dominanza del tipo di cellula e su condizioni fisiologiche o patologiche21,22,27,28.
Sorprendentemente, un certo numero di inibitori per fasi selezionate della via DNL sono stati approvati per uso clinico o sono in fase di sviluppo preclinico o clinico per una serie di malattie, tra cui l'obesità, la steatosi epatica non alcolica/steatoepatite non alcolica (NAFLD/NASH) e le malattie cardiovascolari29. Questi sforzi evidenziano l'importanza della DNL nella salute e nella malattia.
Negli ultimi anni, l'impiego di metodi per valutare quantitativamente la sintesi de novo degli acidi grassi è aumentato30. Il metodo più comune per valutare questo fenomeno è l'uso di acqua marcata pesante (D2O), in cui l'idrogeno marcato pesante viene incorporato nelle catene aciliche durante la sintesi sia direttamente che indirettamente, tramite lo scambio di deuterio con gli idrogeni dei substrati DNL NAPDH, acetil-CoA e malonil-CoA. Sebbene questo approccio stia guadagnando popolarità, mancano protocolli dettagliati disponibili al pubblico adatti ai nuovi arrivati nel campo. Qui, delineiamo un metodo per valutare quantitativamente la sintesi de novo di prodotti di FAS utilizzando D2O e spettrometria di massa gascromatografica (GCMS), con calcoli precedentemente sviluppati da Lee et al.31. Questo metodo misura la sintesi de novo degli acidi grassi indipendentemente da una fonte di carbonio ed è potenzialmente utile praticamente per qualsiasi tessuto, in qualsiasi modello murino e sotto qualsiasi perturbazione esterna. Qui, ci concentriamo sull'analisi del tessuto adiposo bruno (BAT) a causa dei suoi alti livelli di DNL e dei ruoli critici nel mantenimento dell'omeostasi metabolica.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
Tutti gli esperimenti sono stati approvati dall'Institutional Animal Care and Use Committee presso il Cincinnati Children's Hospital Medical Center.
1. Preparazione di D2O
NOTA: Per evitare variazioni sperimentali, preparare una quantità sufficiente di soluzione/acqua potabile per tutti i topi per tutta la durata dell'esperimento.
- Per l'iniezione intraperitoneale: generare soluzione salina D 2 O allo 0,9% p/v sciogliendo 9 g di NaCl per litro di D 2O. Filtrare attraverso un filtro apirogeno da0,2μm per sterilizzare.
- Per acqua potabileD 2 O: generare acqua arricchita D 2 O all'8% v/v da utilizzare come acqua potabile mescolando 80 mL di D2O per 920 mL di acqua potabile normale. L'acqua potabile regolare può essere ottenuta dalla struttura del topo. Filtrare attraverso un filtro apirogeno da 0,2 μm per sterilizzare.
2. Modulazione dell'attività delle BAT mediante acclimatazione alla temperatura
- Separare i topi in modo che ci siano due topi per gabbia 2 settimane prima dell'inizio dell'acclimatazione della temperatura. Sostituire l'alimentazione dell'acqua con bottiglie d'acqua in modo che i topi si adattino e mantengano tutte le gabbie a 22 °C.
- Preparare le camere ambientali per topi 1 settimana prima di iniziare l'acclimatazione alla temperatura impostando le temperature appropriate: 30 °C per la termoneutralità, 22 °C per la temperatura ambiente e 18 °C per l'esposizione al freddo.
- All'inizio dell'acclimatazione alla temperatura, sostituire le gabbie con altre nuove senza arricchimento ambientale (per evitare nidi). Spostare le gabbie alle rispettive temperature.
NOTA: Le gabbie assegnate alla termoneutralità rimarranno a 30 °C per 4 settimane. Le gabbie assegnate a temperatura ambiente rimarranno a 22 °C per 4 settimane. Le gabbie destinate all'esposizione al freddo diventeranno progressivamente più fredde su base settimanale: 18 °C per la prima settimana, 14 °C per la seconda settimana, 10 °C per la terza settimana e 6 °C per la quarta settimana. - Cambiare settimanalmente le gabbie sporche per tutte le condizioni. Inoltre, sostituisci le bottiglie di cibo e acqua con altre nuove preadattate alla temperatura appropriata per almeno 24 ore.
NOTA: Fai attenzione alle quantità di cibo aggiunte ogni settimana, soprattutto per i topi al freddo, poiché consumeranno una quantità significativamente maggiore di cibo rispetto alle condizioni normali. Fornire cibo ad libitum.
3. Somministrazione di D2O
- Iniettare in ciascun animale soluzione fisiologica D2O allo 0,9% p/v a 35 μL/g di peso corporeo, 12 h-3 giorni prima del prelievo di tessuto, tramite iniezione intraperitoneale utilizzando una siringa da 1 mL e un ago da 26 G.
NOTA: Si prega di consultare la sezione di discussione per ulteriori informazioni sulla selezione di un orario di etichettatura appropriato. - Sostituire le bottiglie d'acqua con bottiglie contenenti l'8% v/v D2di acqua potabile arricchita con O.
4. Raccolta, lavorazione e conservazione del plasma e dei tessuti
- Alla fine dell'esperimento, sacrificare i topi utilizzando metodologie approvate (ad esempio, sovradosaggio di anidride carbonica seguito da lussazione cervicale).
- Utilizzare tamponi riscaldanti/freddi o altri metodi per evitare improvvisi sbalzi di temperatura prima dell'eutanasia che potrebbero influire sui risultati. Sopprimere i topi seguendo metodologie approvate. Procedere immediatamente al prelievo di sangue e tessuti.
- Prelevare il sangue attraverso la puntura cardiaca utilizzando un ago da 26 G e conservarlo in una provetta per la raccolta del sangue di acido etilendiamminotetraacetico. Tenere il sangue sul ghiaccio fino a un'ulteriore lavorazione.
- Taglia la pelle lungo la linea mediana della schiena del topo dalla zona inferiore della cavità toracica fino alla zona superiore del collo, tirando la pelle verso l'alto per evitare di intaccare i tessuti sotto la pelle. Il BAT interscapolare si trova tra le scapole sotto un sottile strato di tessuto adiposo bianco, ed è composto da due lobi di forma piramidale.
- Pulire il tessuto lavandolo in soluzione salina tamponata con fosfato ghiacciato (PBS). Tamponare su un tovagliolo di carta per eliminare il liquido in eccesso, pesare su una bilancia analitica e raccoglierlo in una microprovetta.
- Congelare immediatamente il tessuto utilizzando azoto liquido. Possono essere raccolti anche altri depositi BAT.
- Centrifugare i campioni di sangue a 10.000 x g per 10 minuti a 4 °C. Dopo la centrifugazione, raccogliere con cura il plasma senza disturbare il pellet di globuli rossi. Trasferiscilo in una nuova microprovetta ghiacciata e congela in azoto liquido.
- Conservare i campioni di grasso bruno e plasma a -80 °C fino all'uso.
5. Estrazione dei lipidi dal tessuto adiposo
- Prima di iniziare l'estrazione
- Preparare una soluzione 1 mM di acido esadecenoico-d31 in metanolo in un flaconcino di vetro. Questo servirà come standard interno per gli acidi grassi.
- Preraffreddare la quantità necessaria di cloroformio (CHCl 3) e metanolo (CH3OH) in un congelatore a -80 °C o su ghiaccio secco.
NOTA: L'antiossidante di-terz-butil-4-metilfenolo (BHT) può essere aggiunto al CHCl3 a una concentrazione dello 0,01% p/v (2,5 mg/25 mL) per prevenire l'ossidazione dei doppi legami negli acidi grassi insaturi. - Pre-etichettare le provette per microcentrifuga per ogni campione di tessuto e una provetta aggiuntiva da utilizzare per l'estrazione in bianco.
ATTENZIONE: CH 3 OHe CHCl3 sono altamente volatili e tossici se inalati. Utilizzare solo in cappe aspiranti.
NOTA: Diverse marche di provette per microcentrifuga hanno diversi livelli di palmitato di fondo e capacità in termini di prevenzione delle perdite di solvente. Si consiglia di testare prima una varietà di provette, per garantire che le provette siano evitate e che le provette abbiano livelli minimi di palmitato contaminante. Si veda Yao et al.32 per ulteriori discussioni.
- Estrarre i campioni dal congelatore e metterli su ghiaccio secco.
- Posizionare la provetta per microcentrifuga pre-etichettata su una bilancia analitica e tarare la bilancia. Metti una pinzetta e una lama di bisturi/rasoio in acciaio sul ghiaccio secco per 10-20 secondi a raffreddare.
- Usa le pinzette per estrarre il campione di tessuto congelato dalla provetta e posizionarlo su una pesa di plastica. La pesa può essere posizionata su un blocco piatto di ghiaccio secco o su un'altra superficie preraffreddata.
- Utilizzando il bisturi o la lametta d'acciaio, sezionare una piccola porzione di tessuto, equivalente a 5-15 mg di peso. Inserire nella provetta per microcentrifuga e registrare il peso esatto. Ripetere l'operazione per ogni campione. A questo punto i campioni possono essere conservati nel congelatore o possono essere avanzati ai passaggi seguenti per l'estrazione dei lipidi.
NOTA: Assicurarsi che il bisturi sia adeguatamente pulito con etanolo al 70% tra un campione e l'altro e che venga utilizzata una nuova barca di pesatura tra un campione e l'altro.
- Aggiungere 1 μL/mg di acido esadecenoico-d 31 (C16:0-d31) a 10 mM a ciascun campione.
ATTENZIONE: I seguenti passaggi (da 5.4 a 5.8) devono essere eseguiti sotto una cappa aspirante a causa del rischio di inalazione dei solventi. - Aggiungere 250 μL di CH 3 OH, 250 μL di H2O e 500 μL di CHCl3a ciascun campione con tre microsfere di acciaio inossidabile da 5 mm. Posizionare le provette in un blocco preraffreddato di un mulino di macinazione e miscelare i campioni a una frequenza vibrazionale di 25 Hz per 5 minuti, oppure utilizzare le linee guida raccomandate dal produttore per i campioni di tessuto. Rimuovere le perline usando un magnete.
- Centrifugare i campioni a 12.000 x g per 10 minuti a 4 °C.
NOTA: Dopo la centrifugazione, si deve osservare una netta separazione bifasica con la fase acquosa superiore contenente metaboliti polari e la fase organica inferiore contenente lipidi e acidi grassi. Se non si nota alcuna separazione, aggiungere 250 μL di H2O e ripetere le fasi del vortice e della centrifugazione. - Utilizzando una micropipetta, prelevare un volume fisso dalla fase inferiore di ciascun campione in provette per microcentrifuga etichettate in modo corrispondente.
- Aggiungere 500 μL di CHCl3 al campione rimanente e ripetere i passaggi 5.6-5.7.
- Porre i campioni sotto azoto gassoso o in un vuoto centrifugo refrigerato resistente CHCl3 a 4 °C fino a completa asciugatura. I campioni essiccati possono essere conservati a -20 °C fino a quando non sono pronti per la derivatizzazione.
NOTA: A questo punto è possibile raccogliere anche lo strato superiore di ciascun campione ed essiccarlo come al punto 5.9 per analizzare i metaboliti polari.
6. Preparazione di esteri metilici degli acidi grassi (FAME) e analisi GCMS
- Esterificazione e transesterificazione catalizzata da acido per la preparazione di FAME
ATTENZIONE: I seguenti passaggi devono essere eseguiti sotto una cappa aspirante a causa del rischio di inalazione dei solventi.- Se i campioni sono stati conservati nel congelatore, asciugare sotto azoto per 5 minuti per assicurarsi che non sia presente acqua.
- Utilizzando solventi di grado MS, pipettare 98 mL di CH3OH anidro in un flacone di vetro. Aggiungere lentamente 2 mL di acido solforico anidro nella cappa aspirante per ottenere il 2% di H2SO4 in CH3OH. Mescolare facendo roteare il flacone chiuso.
- Aggiungere 500 μL di soluzione al 2% di H2SO4 in CH3OH a ciascun campione e vorticare brevemente.
- Incubare i campioni su un blocco termico a 50 °C per 2 ore.
- Rimuovere i campioni dal blocco termico e aggiungere 100 μL di soluzione satura di NaCl e 500 μL di esano a ciascun campione.
- Agitare energicamente i campioni a temperatura ambiente per 1 min. Lasciare riposare i campioni per 1 minuto; Dopodiché dovrebbero essere evidenti due fasi.
- Raccogliere la fase superiore in una provetta per microcentrifuga fresca (vedere la nota al paragrafo 5.1.3 per la scelta appropriata della provetta per microcentrifuga).
- Per massimizzare la resa, ripetere i passaggi 6.1.5-6.1.7, raccogliendo il secondo campione nelle stesse provette etichettate.
- Essiccare i campioni a temperatura ambiente sotto azoto gassoso.
- Risospendere i campioni in 20 μL/mg di esano, rispetto al peso originale del tessuto, e trasferirli immediatamente in una fiala di vetro GC con un inserto di vetro.
NOTA: Lavorare rapidamente durante il trasferimento dei campioni per ridurre al minimo l'evaporazione.
- Analisi GCMS
- Per determinare l'abbondanza degli isotopologhi di FAME, iniettare i campioni su un singolo spettrometro di massa per gascromatografia a quadrupolo (GCMS).
NOTA: Sebbene sia possibile utilizzare molti tipi di colonne per rilevare il palmitato, è stato stabilito il seguente programma di temperatura per una colonna GCMS che è stata sviluppata per la separazione degli isomeri cis/trans degli acidi grassi, come dettagliato nella Tabella dei materiali. Questa colonna ha una lunghezza di 50 m con un diametro interno di 0,25 mm. - Iniettare 1 μL di campione in un ingresso split/splitless a una temperatura di ingresso di 270 °C, utilizzando l'elio come gas di trasporto, che scorre a 1 mL/min. Utilizzare un'iniezione splitless per acidi grassi poco abbondanti con un flusso totale di 19 mL/min, uno spurgo del setto di 3 mL/min e un flusso di spurgo per lo sfiato diviso di 15 mL/min a 0,75 min. Utilizzare un rapporto di divisione di 10:1-40:1 per acidi grassi abbondanti come palmitato e oleato.
- Utilizzare i seguenti parametri del forno: una temperatura iniziale di 80 °C; aumentare con incrementi di 20 °C/min fino a 170 °C; aumentare con incrementi di 1 °C/min fino a 204 °C; aumentare con incrementi di 20 °C/min fino a 250 °C; e poi tenere a 250 °C per 10 min.
- Utilizzare i seguenti parametri del rivelatore di massa selettivo (MSD): una modalità di ionizzazione a impatto elettronico di 70 eV e scansione nell'intervallo di 50-400 m/z con una velocità di scansione di 1.562 (u/s) e una frequenza di 4,1 scansioni/s. Utilizzare una linea di trasferimento a 280 °C, una sorgente di ioni a 230 °C e un quadrupolo a 150 °C.
NOTA: È possibile utilizzare altre colonne, ma il programma di temperatura può variare. - Sequenza del campione: randomizzare l'ordine di iniezione del campione e iniettare almeno due o tre bianchi di esano all'inizio della sequenza, dopo ogni quinto campione all'interno della sequenza e due o tre alla fine della sequenza.
- Utilizzare un software specifico per lo strumento o un software gratuito ad accesso aperto come Metabolite-Detector33, per integrare gli ioni nella Tabella 1 per ciascun estere metilico di acidi grassi.
NOTA: Abbiamo delineato gli ioni che coprono gli isotopologhi M1-M5 nella Tabella 1 che abbiamo scoperto copre la quantità di incorporazione di deuterio con questa finestra di etichettatura. Tuttavia, potrebbe essere necessario ampliarlo se il flusso de novo è significativamente più elevato e/o se si utilizza un tempo di etichettatura più lungo. - Usa l'abbondanza di ogni ione integrato per generare una distribuzione di isotopomeri di massa, in cui le intensità degli ioni possono essere convertite in abbondanza frazionaria in modo che la somma della distribuzione dell'isotopomero di massa sia uguale a uno. Si prega di consultare il foglio di calcolo di esempio nel file supplementare.
NOTA: Al fine di determinare con precisione l'incorporazione di deuterio, è necessario impiegare la correzione dell'abbondanza di isotopi naturali per tenere conto della presenza di isotopi presenti in natura come 13C, 15N e 2H. Questo viene eseguito applicando una matrice di correzione come delineato da Fernandez et al.34,35 e non può essere eseguito sottraendo il MID di un metabolita misurato non marcato da un metabolita marcato. In pratica, raccomandiamo l'uso di software liberamente disponibili come fluxfix36, polyMID37 o IsoCor38 per trasformare i dati grezzi in MID frazionari e abbiamo fornito la formula per la correzione isotopica per i prodotti a base di estere metilico di FAS nella Tabella 1. - Per determinare la quantità di palmitato presente, utilizzare la seguente formula:
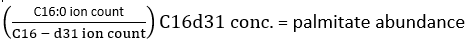
dove la conta ionica si riferisce alla somma di tutti gli isotopologhi del palmitato integrati nella tabella 1 e C16:0-d 31 si riferisce allo standard interno esadecenoico-d31. Lo standard interno forma un picco separato da quello del palmitato endogeno. Può anche essere determinata l'abbondanza relativa di altri acidi grassi, ma per la quantificazione completa può essere necessario utilizzare standard interni di isotopi specifici degli acidi grassi (con spostamenti di massa maggiori di quelli osservati dall'incorporazione di D2O) o curve standard esterne. Utilizzare il campione bianco estratto per determinare la quantità di palmitato di fondo e sottrarla dal valore finale del tessuto. - Calcolare l'arricchimento molare (ME) del palmitato con la seguente equazione:

dove Mi è l'abbondanza normalizzata e frazionaria di un isotopologo del palmitato e n è il numero di possibili isotopologhi del palmitato. Ad esempio, il ME di una molecola di palmitato con la seguente distribuzione frazionaria, M1 = 0,25, M2 = 0,08, M3 = 0,02, è: (0,025*1) + (0,08*2) + (0,02*3) = 0,245 (vedi file supplementare).
- Per determinare l'abbondanza degli isotopologhi di FAME, iniettare i campioni su un singolo spettrometro di massa per gascromatografia a quadrupolo (GCMS).
7. Scambio di acetone di deuterio di campioni di plasma per determinare l'arricchimento dell'acqua corporea
- Reazione
- Preparare 10 standard di deuterio in acqua, compresi tra 0 e 9% v/v.
- Preparare una soluzione di acetone/acetonitrile al 5% v/v che consenta di ottenere 4 μL per campione, compresi gli standard del punto 5.1.1.
- In provette per microcentrifuga marcate e sicure da bloccare, combinare 10 μL di ciascun campione di plasma o standard, 4 μL di NaOH 10 M e 4 μL di acetone/acetonitrile al 5%. Eseguire questa operazione in triplice copia per ogni campione.
- Miscelare delicatamente i campioni mediante pipettaggio. Lasciare incubare i campioni a temperatura ambiente per una notte.
- Estrazione
- Dopo l'incubazione, aggiungere 450-550 mg di Na2SO4 a ciascun campione.
- Nella cappa aspirante, aggiungere 600 μL di CHCl3 a ciascun tubo e vorticare vigorosamente per 15 s.
- Centrifugare i campioni a 300 x g per 2 min.
- Sotto una cappa aspirante, trasferire aliquote triplicate da 80 μL del surnatante da ciascun campione in fiale GCMS di vetro etichettate con inserti in vetro e tappo ermetico.
- Analisi GCMS
- Separare i campioni su una colonna (30 m, diametro interno 0,25 mm, Agilent DB-35MS) e analizzarli sullo spettrometro di massa collegato.
- Iniettare 1 μL di campione in un ingresso split/splitless, con un rapporto di divisione di 40:1, un flusso di elio di 1 mL/min e una temperatura di ingresso di 270 °C.
- Utilizzare i seguenti parametri del forno: una temperatura iniziale di 60 °C, aumentare di 20 °C/min con incrementi di 100 °C, aumentare di 50 °C/min con incrementi di 220 °C, quindi mantenere a 220 °C per 1 min.
- Utilizzare i seguenti parametri del rivelatore selettivo di massa (MSD): modalità di ionizzazione a impatto elettronico a 70 eV con monitoraggio di ioni selezionati di 58 e 59 m/z. Utilizzare una linea di trasferimento a 280 °C, una sorgente di ioni a 230 °C e un quadrupolo a 150 °C.
NOTA: È possibile utilizzare altre colonne a basso spurgo, incollate, reticolate, a media polarità, ma il programma di temperatura può variare.
- Impostare il metodo del campionatore liquido in modo che inizi con un lavaggio CHCl 3 e quindi una sequenza casuale dei campioni, comprese ulteriori fasi di lavaggio CHCl3 ogni sei campioni.
NOTA: Se l'acetone viene utilizzato come lavaggio dell'ago per l'autocampionatore, sostituirlo con CHCl 3 o esano e iniettare più campioni bianchi di CHCl3 fino a quando qualsiasi picco di acetone contaminante non è più evidente nel cromatogramma. - Utilizzando questo metodo, un picco di acetone eluisce a circa 1,25 minuti. Integrare i dati e calcolare l'abbondanza frazionaria dell'arricchimento di acetone seguendo i passaggi 6.2.6-6.2.7, con una regolazione per analizzare i picchi contenenti un rapporto m/z di 58-60 come indicato nella Tabella 1.
- Utilizzare gli standard per generare una curva standard per determinare la percentuale di arricchimento dell'acqua corporea (p) dei campioni di prova, in base all'arricchimento frazionato di acetone.
- Separare i campioni su una colonna (30 m, diametro interno 0,25 mm, Agilent DB-35MS) e analizzarli sullo spettrometro di massa collegato.
8. Calcoli di lipogenesi de novo in vivo
- Calcolare la frazione di acidi grassi di nuova sintesi (FNS) che sono prodotti diretti di FAS (cioè palmitato, acidi grassi a catena dispari e mmBCFA) in ciascun campione con la seguente equazione:
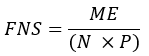
dove ME è l'arricchimento molare medio di una molecola di palmitato (passaggio 6.2.9), p è l'arricchimento di deuterio in acqua dal corrispondente campione di plasma (passaggio 7.3.4) e N è il numero di atomi di idrogeno scambiabili sul palmitato in cui può essere incorporato un deuterio. - Determinare N usando l'equazione seguente che è stata stabilita da Lee et al.31:
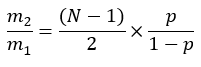
- Determinare la quantità molare di acidi grassi di nuova sintesi (MNS) mediante:
MNS = FNS x quantità totale di acidi grassi (nmol/mg di tessuto).
NOTA: Ad esempio, se si ottiene un arricchimento molare di palmitato (ME) di 0,245, un arricchimento di deuterio in acqua corporea (p) di 0,045 e un numero N calcolato di 22, la sintesi frazionaria del palmitato è 0,247. Se la quantità di palmitato presente nel tessuto è di 2 mmol/mg, allora il mmol del palmitato di nuova sintesi è di 0,494 mmol/mg (vedere il file supplementare).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Sulla base del dosaggio di D 2 O descritto nella fase 1, in genere troviamo che l'acqua corporea è arricchita nell'intervallo dal2,5% al 6% e che un livello basale di arricchimento di deuterio nell'acqua corporea viene rapidamente raggiunto in 1 ora e mantenuto per tutta la durata dello studio tramite acqua potabile arricchita all'8% (Figura 1). L'arricchimento continuo delle acque corporee allo stato stazionario è un'ipotesi dei calcoli utilizzati nella fase 6, e quindi ...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
Comprendere l'equilibrio e l'interazione tra vie metaboliche complesse è un passo indispensabile verso la comprensione delle basi biologiche delle malattie metaboliche. Qui, mostriamo una metodologia non invasiva e poco costosa per determinare i cambiamenti nella sintesi de novo degli acidi grassi. Questo metodo è adattato da metodi pubblicati in precedenza che hanno sviluppato calcoli per stimare il flusso di sintesi de novo dall'arricchimento di deuterio di acidi grassi31 e per...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori non hanno nulla da rivelare.
Ringraziamenti
Ringraziamo i membri del laboratorio Sanchez-Gurmaches e Wallace per le preziose discussioni. Questo lavoro è stato supportato da sovvenzioni dell'American Heart Association (18CDA34080527 a JSG e 19POST34380545 a RM), dal NIH (da R21OD031907 a JSG), da un CCHMC Trustee Award, da un CCHMC Center for Pediatric Genomics Award e da un CCHMC Center for Mendelian Genomics & Therapeutics Award. Questo lavoro è stato sostenuto in parte dal NIH P30 DK078392 del Digestive Diseases Research Core Center di Cincinnati. Il contenuto è di esclusiva responsabilità degli autori e non rappresenta necessariamente il punto di vista ufficiale del National Institutes of Health. RT e MW sono stati sostenuti da una borsa di studio Ad Astra dell'UCD.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Fiale di vetro da 4 mL | Fisher Scientific | 14-955-334 | |
| 0,2 µ m filtro | Olympus Plastic | 25-244 | |
| 26G siringhe needeled | BD | 309597 | |
| Acetone | Merck | 34850 | |
| Acetonitrile | Merck | 900667 | |
| Blue GC tappo a vite con setti | Agilent | 5190-1599 | |
| Centrifuga | Eppendorf | 5424R | |
| Cloroformio | Sigma | 366927 | |
| Ossido di deuterio | Sigma | 151882 | |
| Di-terz-butil-4-metilfenolo (BHT) Seleziona colonna FAME | Merck | B1378 | |
| Di-terz-butil-4-metilfenolo (BHT) Seleziona colonna FAME | Agilent | CP7419 | |
| Tubo EDTA | Sarstedt | 411395105 | |
| Etanolo | Merck | 51976 | |
| Esadecenoico-d31 | Larodano | 71-1631 | |
| Esano | Merck | 34859 | |
| Metanolo | Merck | 34860 | |
| Provetta per microcentrifuga | Olympus Plastic | 24-282 | |
| Camera climatica per topi | Caron | Caron 7001-33 | |
| Cloruro di potassio | Fisher Bioreagenti | BP366-500 | |
| Fosfato di potassio | MP Biomedicals | 194727 | |
| Provette per microcentrifuga | SafeLock Eppendorf | 30120086 | |
| Fiala GC ambrata con tappo a vite | Agilent | 5182-0716 | |
| Cloruro di sodio | Fisher Bioreagents | BP358-212 | |
| Idrossido di sodio | Merck | S5881 | |
| Fosfato di sodio, bioreagenti Fisher bibasici | BP332-500 | ||
| Solfato di sodio | Merck | 239313 | |
| Acido solforico | Merck | 258105 | |
| Foglietto illustrativo | Agilent | 5183-2088 |
Riferimenti
- The Lancet, Diabetes Endocrinology. Childhood obesity: a growing pandemic. The Lancet. Diabetes & Endocrinology. 10 (1), 1(2022).
- Gonzalez-Muniesa, P., et al. Obesity. Nature Reviews Disease Primers. 3, 17034(2017).
- Müller, T. D., Blüher, M., Tschöp, M. H., DiMarchi, R. D. Anti-obesity drug discovery: advances and challenges. Nature Reviews Drug Discovery. 21 (3), 201-223 (2021).
- Virtue, S., Vidal-Puig, A. GTTs and ITTs in mice: simple tests, complex answers. Nature Metabolism. 3 (7), 883-886 (2021).
- Müller, T. D., Klingenspor, M., Tschöp, M. H. Revisiting energy expenditure: how to correct mouse metabolic rate for body mass. Nature Metabolism. 3 (9), 1134-1136 (2021).
- Virtue, S., Lelliott, C. J., Vidal-Puig, A. What is the most appropriate covariate in ANCOVA when analysing metabolic rate. Nature Metabolism. 3 (12), 1585(2021).
- Hellerstein, M. K. De novo lipogenesis in humans: metabolic and regulatory aspects. European Journal of Clinical Nutrition. 53 Suppl 1, S53-S65 (1999).
- Zhao, S., et al. Dietary fructose feeds hepatic lipogenesis via microbiota-derived acetate. Nature. 579 (7800), 586-591 (2020).
- Wallace, M., et al. Enzyme promiscuity drives branched-chain fatty acid synthesis in adipose tissues. Nature Chemical Biology. 14 (11), 1021-1031 (2018).
- Zhao, S., et al. ATP-citrate lyase controls a glucose-to-acetate metabolic switch. Cell Reports. 17 (4), 1037-1052 (2016).
- Green, C. R., et al. Branched-chain amino acid catabolism fuels adipocyte differentiation and lipogenesis. Nature Chemical Biology. 12 (1), 15-21 (2016).
- Zhang, Z., et al. Serine catabolism generates liver NADPH and supports hepatic lipogenesis. Nature Metabolism. 3 (12), 1608-1620 (2021).
- Chirala, S. S., et al. Fatty acid synthesis is essential in embryonic development: fatty acid synthase null mutants and most of the heterozygotes die in utero. Proceedings of the National Academy of Sciences. 100 (11), 6358-6363 (2003).
- Icard, P., et al. ATP citrate lyase: A central metabolic enzyme in cancer. Cancer Letters. 471, 125-134 (2020).
- Fhu, C. W., Ali, A. Fatty acid synthase: an emerging target in cancer. Molecules. 25 (17), 3935(2020).
- Lawitz, E. J., et al. Acetyl-CoA carboxylase inhibitor GS-0976 for 12 weeks reduces hepatic de novo lipogenesis and steatosis in patients with nonalcoholic steatohepatitis. Clinical Gastroenterology and Hepatology. 16 (12), 1983e3-1991e3 (2018).
- Smith, G. I., et al. Insulin resistance drives hepatic de novo lipogenesis in nonalcoholic fatty liver disease. The Journal of Clinical Investigation. 130 (3), 1453-1460 (2020).
- Imamura, F., et al. Fatty acids in the de novo lipogenesis pathway and incidence of type 2 diabetes: A pooled analysis of prospective cohort studies. PLoS Medicine. 17 (6), e1003102(2020).
- Lai, H. T. M., et al. Serial plasma phospholipid fatty acids in the de novo lipogenesis pathway and total mortality, cause-specific mortality, and cardiovascular diseases in the cardiovascular health study. Journal of the American Heart Association. 8 (22), e012881(2019).
- Ference, B. A., et al. Mendelian randomization study of ACLY and cardiovascular disease. The New England Journal of Medicine. 380 (11), 1033-1042 (2019).
- Herman, M. A., et al. A novel ChREBP isoform in adipose tissue regulates systemic glucose metabolism. Nature. 484 (7394), 333-338 (2012).
- Sanchez-Gurmaches, J., et al. Brown fat AKT2 Is a cold-induced kinase that stimulates ChREBP-mediated de novo lipogenesis to optimize fuel storage and thermogenesis. Cell Metabolism. 27 (1), 195e6-209e6 (2018).
- Wang, X., et al. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. II. Purification and characterization. The Journal of Biological Chemistry. 268 (19), 14497-14504 (1993).
- Briggs, M. R., Yokoyama, C., Wang, X., Brown, M. S., Goldstein, J. L. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. I. Identification of the protein and delineation of its target nucleotide sequence. The Journal of Biological Chemistry. 268 (19), 14490-14496 (1993).
- Yokoyama, C., et al. SREBP-1, a basic-helix-loop-helix-leucine zipper protein that controls transcription of the low density lipoprotein receptor gene. Cell. 75 (1), 187-197 (1993).
- Chen, G., Liang, G., Ou, J., Goldstein, J. L., Brown, M. S. Central role for liver X receptor in insulin-mediated activation of Srebp-1c transcription and stimulation of fatty acid synthesis in liver. Proceedings of the National Academy of Sciences. 101 (31), 11245-11250 (2004).
- Denechaud, P. D., et al. ChREBP, but not LXRs, is required for the induction of glucose-regulated genes in mouse liver. The Journal of Clinical Investigation. 118 (3), 956-964 (2008).
- Crewe, C., et al. SREBP-regulated adipocyte lipogenesis is dependent on substrate availability and redox modulation of mTORC1. JCI Insight. 5 (15), e129397(2019).
- Batchuluun, B., Pinkosky, S. L., Steinberg, G. R. Lipogenesis inhibitors: therapeutic opportunities and challenges. Nature Reviews Drug Discovery. 21 (4), 283-305 (2022).
- Wallace, M., Metallo, C. M. Tracing insights into de novo lipogenesis in liver and adipose tissues. Seminars in Cell & Developmental Biology. 108, 65-71 (2020).
- Lee, W. N., et al. In vivo measurement of fatty acids and cholesterol synthesis using D2O and mass isotopomer analysis. The American Journal of Physiology. 266 (5 Pt 1), E699-E708 (1994).
- Yao, C. H., Liu, G. Y., Yang, K., Gross, R. W., Patti, G. J. Inaccurate quantitation of palmitate in metabolomics and isotope tracer studies due to plastics. Metabolomics. 12, 143(2016).
- Hiller, K., et al. MetaboliteDetector: comprehensive analysis tool for targeted and nontargeted GC/MS based metabolome analysis. Analytical Chemistry. 81 (9), 3429-3439 (2009).
- Fernandez, C. A., Des Rosiers, C., Previs, S. F., David, F., Brunengraber, H. Correction of 13C mass isotopomer distributions for natural stable isotope abundance. Journal of Mass Spectrometry. 31 (3), 255-262 (1996).
- Midani, F. S., Wynn, M. L., Schnell, S. The importance of accurately correcting for the natural abundance of stable isotopes. Analytical Biochemistry. 520, 27-43 (2017).
- Trefely, S., Ashwell, P., Snyder, N. W. FluxFix: automatic isotopologue normalization for metabolic tracer analysis. BMC Bioinformatics. 17 (1), 485(2016).
- Jeong, H., et al. Correcting for naturally occurring mass isotopologue abundances in stable-isotope tracing experiments with PolyMID. Metabolites. 11 (5), 310(2021).
- Millard, P., et al. IsoCor: isotope correction for high-resolution MS labeling experiments. Bioinformatics. 35 (21), 4484-4487 (2019).
- Brunengraber, D. Z., et al. Influence of diet on the modeling of adipose tissue triglycerides during growth. American Journal of Physiology. Endocrinology and Metabolsim. 285 (4), E917-E925 (2003).
- Svensson, R. U., et al. Inhibition of acetyl-CoA carboxylase suppresses fatty acid synthesis and tumor growth of non-small-cell lung cancer in preclinical models. Nature Medicine. 22 (10), 1108-1119 (2016).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis: a technique for measuring biosynthesis and turnover of polymers. The American Journal of Physiology. 263 (5 Pt 1), E988-E1001 (1992).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis at eight years: theoretical, analytic, and experimental considerations. The American Journal of Physiology. 276 (6), E1146-E1170 (1999).
- Kelleher, J. K., Masterson, T. M. Model equations for condensation biosynthesis using stable isotopes and radioisotopes. The American Journal of Physiology. 262 (1 Pt 1), E118-E125 (1992).
- Kelleher, J. K., Nickol, G. B. Isotopomer spectral analysis: utilizing nonlinear models in isotopic flux studies. Methods in Enzymology. 561, 303-330 (2015).
- Argus, J. P., et al. Development and application of FASA, a model for quantifying fatty acid metabolism using stable isotope labeling. Cell Reports. 25 (10), 2919.e8-2934.e8 (2018).
- Guilherme, A., et al. Control of adipocyte thermogenesis and lipogenesis through β3-adrenergic and thyroid hormone signal integration. Cell Reports. 31 (5), 107598(2020).
- Guilherme, A., et al. Neuronal modulation of brown adipose activity through perturbation of white adipocyte lipogenesis. Molecular Metabolism. 16, 116-125 (2018).
- Guilherme, A., et al. Adipocyte lipid synthesis coupled to neuronal control of thermogenic programming. Molecular Metabolism. 6 (8), 781-796 (2017).
- Lodhi, I. J., et al. Inhibiting adipose tissue lipogenesis reprograms thermogenesis and PPARgamma activation to decrease diet-induced obesity. Cell Metabolism. 16 (2), 189-201 (2012).
- McCormack, J. G., Denton, R. M. Evidence that fatty acid synthesis in the interscapular brown adipose tissue of cold-adapted rats is increased in vivo by insulin by mechanisms involving parallel activation of pyruvate dehydrogenase and acetyl-coenzyme A carboxylase. The Biochemistry Journal. 166 (3), 627-630 (1977).
- Trayhurn, P. Fatty acid synthesis in vivo in brown adipose tissue, liver and white adipose tissue of the cold-acclimated rat. FEBS Letters. 104 (1), 13-16 (1979).
- Negron, S. G., Ercan-Sencicek, A. G., Freed, J., Walters, M., Lin, Z. Both proliferation and lipogenesis of brown adipocytes contribute to postnatal brown adipose tissue growth in mice. Science Reports. 10 (1), 20335(2020).
- Schlein, C., et al. Endogenous fatty acid synthesis drives brown adipose tissue involution. Cell Reports. 34 (2), 108624(2021).
- Mottillo, E. P., et al. Coupling of lipolysis and de novo lipogenesis in brown, beige, and white adipose tissues during chronic beta3-adrenergic receptor activation. Journal of Lipid Research. 55 (11), 2276-2286 (2014).
- Adlanmerini, M., et al. Circadian lipid synthesis in brown fat maintains murine body temperature during chronic cold. Proceedings of the National Academy of Sciences. 116 (37), 18691-18699 (2019).
- Yu, X. X., Lewin, D. A., Forrest, W., Adams, S. H. Cold elicits the simultaneous induction of fatty acid synthesis and beta-oxidation in murine brown adipose tissue: prediction from differential gene expression and confirmation in vivo. FASEB Journal. 16 (2), 155-168 (2002).
- Kushner, D. J., Baker, A., Dunstall, T. G. Pharmacological uses and perspectives of heavy water and deuterated compounds. Canadian Journal of Physiology and Pharmacology. 77 (2), 79-88 (1999).
- Diraison, F., Pachiaudi, C., Beylot, M. Measuring lipogenesis and cholesterol synthesis in humans with deuterated water: use of simple gas chromatographic/mass spectrometric techniques. Journal of Mass Spectrometry. 32 (1), 81-86 (1997).
- Yang, D., et al. Assay of low deuterium enrichment of water by isotopic exchange with [U-13C3]acetone and gas chromatography-mass spectrometry. Analytical Biochemistry. 258 (2), 315-321 (1998).
- Fu, X., et al. Measurement of lipogenic flux by deuterium resolved mass spectrometry. Nature Communications. 12 (1), 3756(2021).
- Shah, V., Herath, K., Previs, S. F., Hubbard, B. K., Roddy, T. P. Headspace analyses of acetone: a rapid method for measuring the 2H-labeling of water. Analytical Biochemistry. 404 (2), 235-237 (2010).
- Argus, J. P., Yu, A. K., Wang, E. S., Williams, K. J., Bensinger, S. J. An optimized method for measuring fatty acids and cholesterol in stable isotope-labeled cells. Journal of Lipid Research. 58 (2), 460-468 (2017).
- Belew, G. D., Jones, J. G. De novo lipogenesis in non-alcoholic fatty liver disease: Quantification with stable isotope tracers. European Journal of Clinical Investigation. 52 (3), e13733(2022).
- Zhang, Z., Chen, L., Liu, L., Su, X., Rabinowitz, J. D. Chemical basis for deuterium labeling of fat and NADPH. Journal of the American Chemical Society. 139 (41), 14368-14371 (2017).
- Belew, G. D., et al. Transfer of glucose hydrogens via acetyl-CoA, malonyl-CoA, and NADPH to fatty acids during de novo lipogenesis. Journal of Lipid Research. 60 (12), 2050-2056 (2019).
- Diraison, F., Pachiaudi, C., Beylot, M. In vivo measurement of plasma cholesterol and fatty acid synthesis with deuterated water: determination of the average number of deuterium atoms incorporated. Metabolism. 45 (7), 817-821 (1996).
- Ajie, H. O., et al. In vivo study of the biosynthesis of long-chain fatty acids using deuterated water. The American Journal of Physiology. 269 (2 Pt 1), E247-E252 (1995).
- Schloerb, P. R., Friis-Hansen, B. J., Edelman, I. S., Solomon, A. K., Moore, F. D. The measurement of total body water in the human subject by deuterium oxide dilution; with a consideration of the dynamics of deuterium distribution. The Journal of Clinical Investigation. 29 (10), 1296-1310 (1950).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
