L'epitelio nasale è il sito di barriera primario incontrato da tutti i patogeni respiratori. Qui, descriviamo i metodi per utilizzare le cellule epiteliali nasali primarie cresciute come colture di interfaccia aria-liquido (ALI) per caratterizzare le interazioni coronavirus-ospite umano in un sistema fisiologicamente rilevante.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Infezione di cellule epiteliali nasali primarie cresciute in un'interfaccia aria-liquido per caratterizzare le interazioni uomo-coronavirus-ospite
In questo articolo
Sommario
Abstract
Negli ultimi 20 anni sono emersi tre coronavirus umani ad alta patogenicità (HCoV) - SARS-CoV (2002), MERS-CoV (2012) e SARS-CoV-2 (2019) - che hanno causato significative crisi di salute pubblica. Quattro HCoV aggiuntivi causano una parte significativa dei casi di raffreddore comune ogni anno (HCoV-NL63, -229E, -OC43 e -HKU1), evidenziando l'importanza di studiare questi virus in sistemi fisiologicamente rilevanti. Gli HCoV entrano nel tratto respiratorio e stabiliscono l'infezione nell'epitelio nasale, il sito primario incontrato da tutti i patogeni respiratori. Utilizziamo un sistema di coltura epiteliale nasale primaria in cui i campioni nasali derivati dal paziente vengono coltivati in un'interfaccia aria-liquido (ALI) per studiare le interazioni ospite-patogeno in questo importante sito sentinella. Queste colture ricapitolano molte caratteristiche delle vie aeree in vivo , compresi i tipi di cellule presenti, la funzione ciliare e la produzione di muco. Descriviamo i metodi per caratterizzare la replicazione virale, il tropismo della cellula ospite, la citotossicità indotta dal virus e l'induzione immunitaria innata in colture nasali di ALI a seguito di infezione da HCoV, utilizzando un recente lavoro che confronta HCoV letali e stagionali come esempio1. Una maggiore comprensione delle interazioni ospite-patogeno nel naso ha il potenziale per fornire nuovi bersagli per terapie antivirali contro HCoV e altri virus respiratori che probabilmente emergeranno in futuro.
Introduzione
Ad oggi sono stati identificati sette coronavirus umani (HCoV) che causano una serie di malattie respiratorie2. Gli HCoV comuni o stagionali (HCoV-NL63, -229E, -OC43 e -HKU1) sono tipicamente associati alla patologia del tratto respiratorio superiore e causano circa il 10%-30% dei casi di raffreddore comuni ogni anno. Sebbene questo sia il tipico fenotipo clinico associato ai comuni HCoV, questi virus possono causare malattie più significative del tratto respiratorio inferiore nelle popolazioni a rischio, inclusi bambini, anziani e individui immunocompromessi 3,4. Negli ultimi 20 anni sono emersi tre HCoV patogeni che hanno causato significative emergenze di salute pubblica, tra cui la sindrome respiratoria acuta grave (SARS)-CoV, la sindrome respiratoria mediorientale (MERS)-CoV e SARS-CoV-2. Gli HCoV letali sono associati a una patologia del tratto respiratorio più grave, il che è chiaramente illustrato dal tasso di mortalità del >34% associato ai casi di MERS-CoV (894 decessi su oltre 2.500 casi dalla sua comparsa nel 2012)5,6. È importante notare che gli HCoV letali causano anche una serie di malattie del tratto respiratorio, dalle infezioni asintomatiche alla polmonite letale, come si è visto con la pandemia di COVID-19 in corso7.
Gli HCoV, come altri patogeni respiratori, entrano nel tratto respiratorio e stabiliscono un'infezione produttiva nell'epitelio nasale8. Si ritiene che la diffusione alle vie aeree inferiori sia associata all'aspirazione dalla cavità orale/nasale al polmone, dove gli HCoV causano una patologia più significativa del tratto respiratorio inferiore 9,10,11. Pertanto, il naso funge da portale iniziale per l'ingresso virale ed è la barriera primaria all'infezione con il suo robusto meccanismo di clearance mucociliare e meccanismi immunitari innati unici volti a prevenire un'ulteriore diffusione virale alle vie aeree inferiori12,13. Ad esempio, è stato riportato che le cellule epiteliali nasali esprimono livelli basali superiori alla media di interferoni antivirali e geni stimolati dall'interferone, indicando che le cellule nasali possono essere innescate per risposte precoci ai virus respiratori14,15,16.
In precedenza abbiamo utilizzato cellule epiteliali nasali primarie derivate da pazienti cresciute in un'interfaccia aria-liquido (ALI) per modellare le interazioni HCoV-ospite nel naso, dove iniziano le infezioni da HCoV. Le colture nasali di ALI sono permissive sia per gli HCoV patogeni (SARS-CoV-2 e MERS-CoV) che per quelli comuni (HCoV-NL63 e HCoV-229E) e offrono vari vantaggi rispetto alle tradizionali linee cellulari epiteliali delle vie aeree come A549 (una linea cellulare di adenocarcinoma polmonare)16,17. Dopo il differenziamento, le colture nasali di ALI contengono una popolazione cellulare eterogenea e presentano molte delle funzioni attese dall'epitelio nasale in vivo, come il meccanismo di clearance mucociliare18. Le cellule nasali offrono anche vantaggi rispetto ai sistemi di coltura delle vie aeree inferiori (come le cellule epiteliali bronchiali umane, HBEC), poiché l'acquisizione di cellule epiteliali nasali tramite spazzolamento citologico è significativamente meno invasiva rispetto all'utilizzo di tecniche come la broncoscopia per ottenere HBEC 19,20,21.
Questo documento descrive i metodi per l'utilizzo di questo sistema di coltura ALI nasale per caratterizzare le interazioni HCoV-ospite nell'epitelio nasale. Abbiamo applicato questi metodi in lavori pubblicati di recente per confrontare SARS-CoV-2, MERS-CoV, HCoV-NL63 e HCoV-229E 1,16,17. Sebbene questi metodi e risultati rappresentativi enfatizzino lo studio degli HCoV in questo modello di cellule nasali, il sistema è altamente adattabile ad altri HCoV, così come ad altri patogeni respiratori. Inoltre, questi metodi possono essere applicati in modo più ampio ad altri sistemi di coltura ALI al fine di studiare la replicazione virale e il tropismo cellulare, nonché la citotossicità e l'induzione immunitaria innata a seguito di infezione.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
L'uso di campioni nasali è stato approvato dall'Institutional Review Board dell'Università della Pennsylvania (protocollo # 800614) e dal Philadelphia VA Institutional Review Board (protocollo # 00781).
1. Infezione delle colture nasali di ALI
NOTA: L'acquisizione di campioni clinici, così come la crescita e la differenziazione di colture ALI nasali, non rientrano nell'ambito di questo documento. Metodi specifici per la coltura di cellule epiteliali nasali primarie possono essere trovati in lavori pubblicati di recente che utilizzano queste colture 18,22,23. I protocolli seguenti possono essere applicati anche alle colture ALI epiteliali nasali disponibili in commercio, se lo si desidera. I protocolli e i volumi descritti di seguito sono applicabili agli inserti transwell su piastra a 24 pozzetti (diametro 6,5 mm, superficie della membrana 0,33 cm2). Se si utilizzano colture ALI coltivate su pozzetti più grandi (ad es. piastre a 12 pozzetti, diametro 12 mm, superficie 1,12 cm2), regolare i volumi proporzionalmente per riflettere la dimensione del pozzetto.
- Il giorno prima dell'infezione:
- Lavare le colture ALI 3 volte con soluzione salina tamponata con fosfato (PBS) per via apicale (aggiungere ~200 μL di PBS riscaldato, porre in incubatore a 37 °C per 5 minuti, aspirare PBS e ripetere).
- Sostituire il terreno basale (500 μL).
- Lasciare che le colture si equilibrino alla temperatura alla quale verranno condotte le infezioni durante la notte (cioè, se si infetta a 33 °C, posizionare le colture in un incubatore a 33 °C dopo i lavaggi PBS).
NOTA: È stato riportato che gli HCoV associati al comune raffreddore come HCoV-229E e HCoV-NL63 si replicano in modo più efficiente a 33 °C. Inoltre, la temperatura dell'epitelio nasale in vivo è di 33 °C (questo differisce dalla temperatura del polmone, che è di 37 °C).
- Diluire il virus secondo necessità nel terreno di Dulbecco modificato (DMEM) privo di siero per ottenere la molteplicità di infezione (MOI) desiderata in un volume totale di inoculo di 50 μL.
NOTA: Le infezioni sono state in genere condotte a MOI = 5 (MOI alto); tuttavia, le infezioni a MOI = 0,5 (MOI basso) sono state utilizzate anche per SARS-CoV-2 e HCoV associati al raffreddore comune, e queste si traducono in titoli virali di picco comparabili, ma con cinetica variabile (entrambi i MOI sono accettabili). - Aggiungere l'inoculo per via apicale e rimettere le colture nell'incubatrice per 1 ora.
- Scuotere delicatamente le piastre ogni 15 minuti durante l'infezione (tenendo saldamente la piastra con entrambe le mani, oscillare avanti e indietro e da un lato all'altro per garantire un adsorbimento uniforme dell'inoculo virale).
- Dopo 1 ora di incubazione, aspirare l'inoculo virale e lavare ogni coltura infetta 3 volte con PBS per garantire la rimozione dell'inoculo virale (per ogni lavaggio, aggiungere 200 μL di PBS, incubare per 5 minuti e aspirare o rimuovere con una pipetta).
- Se lo si desidera, raccogliere il terzo lavaggio PBS per confermare l'adeguata rimozione del virus in ingresso.
- Sostituire il terreno basale con terreno fresco sugli ALI infetti ogni 72 ore durante l'infezione.
2. Prelievo del liquido superficiale apicale (ASL) e titolazione del virus
- In momenti predeterminati dopo l'infezione, aggiungere 200 μL di PBS alla camera apicale di ciascun transwell infetto.
NOTA: I punti temporali rilevanti variano a seconda dell'HCoV di interesse e vanno da 24 ore a 192 ore dopo l'infezione (vedere la sezione dei risultati rappresentativi per i dati di replicazione virale per vari HCoV). - Pipettare il PBS su e giù 5 volte per garantire la massima raccolta del virus apicalmente e raccogliere l'intero volume in una provetta per microcentrifuga (questo è il campione ASL).
NOTA: L'ASL include le particelle virali sparse oltre al muco e ad altri prodotti secreti apicalmente dalle colture ALI. - Quantificare il virus infettivo nell'ASL tramite il test standard della placca virale (diluire in serie campioni contenenti virus per quantificare la concentrazione di particelle virali).
NOTA: I tipi di cellule e il periodo di incubazione utilizzati per il test della placca dipenderanno dal virus utilizzato: SARS-CoV-2 (cellule VeroE6); MERS-CoV (cellule VeroCCL81); HCoV-NL63 (cellule LLC-MK2); HCoV-229E (cellule Huh7). Le specifiche su come condurre i saggi delle placche virali esulano dallo scopo di questo manoscritto, ma sono state dettagliate in precedenza in una pubblicazione del Journal of Visualized Experiments (JoVE)24. - Se lo si desidera, raccogliere il terreno basale in vari momenti dopo l'infezione per confermare l'assenza di virus rilasciato per via basale. Gli HCoV sono tipicamente rilasciati apicalmente dalle cellule epiteliali nasali, ma lo confermano attraverso il dosaggio della placca del terreno basale non diluito.
- Conservare i campioni ASL a -80 °C se il giorno del prelievo non si verifica la quantificazione mediante test della placca.
3. Quantificazione del virus intracellulare
- Dopo aver raccolto il campione di ASL, spostare ciascun transwell in una piastra pulita a 24 pozzetti precaricata con 500 μL di DMEM contenente il 2% di siero fetale bovino (FBS) per via basale.
NOTA: DMEM con FBS al 2% viene utilizzato per stabilizzare il virus durante i successivi cicli di gelo-disgelo. - Lavare ogni transwell 3 volte per via apicale con PBS per garantire la completa rimozione del virus apicale.
- Dopo l'aspirazione per rimuovere il lavaggio finale del PBS, aggiungere 100 μL di DMEM con FBS al 2% nello scomparto apicale.
- Spostare la piastra contenente i pozzetti con terreni apicali e basali in un congelatore a -80 °C e completare tre cicli consecutivi di gelo-disgelo per lisare le cellule.
- Dopo l'ultimo ciclo di gelo-disgelo, raggruppare i terreni apicali (100 μL) e basali (500 μL) in una provetta pulita.
- Centrifugare a 500 × g per 10 minuti a 4 °C per pellettare eventuali detriti cellulari.
- Raccogli il surnatante. Questo è il campione di virus intracellulare per la titolazione tramite il test della placca standard.
NOTA: Durante il processo di raccolta si verifica una diluizione tripla rispetto alla raccolta ASL; I campioni di ASL vengono raccolti in 200 μL di PBS, mentre i campioni di virus intracellulari vengono raccolti in un volume totale di 600 μL.
4. Misurazione della resistenza elettrica transepiteliale (TEER)
NOTA: Per la misurazione del TEER, è necessario utilizzare PBS integrato con calcio e magnesio (PBS + Ca 2+/Mg2+). Viene utilizzato un volt/ohmmetro epiteliale impostato per leggere in ohm (vedere la tabella dei materiali).
- Pulire, equilibrare e svuotare lo strumento EVOM secondo le istruzioni del produttore; Utilizzare un pozzetto "vuoto" senza cellule nasali aggiunte per il blanking. Registrare la misurazione del TEER in bianco.
NOTA: Se si utilizzano più virus, lo strumento EVOM deve essere pulito rigorosamente tra una condizione e l'altra per evitare la contaminazione incrociata (sono sufficienti lavaggi con etanolo al 70% seguiti da acqua deionizzata). - Spostare ciascun transwell infetto in una piastra a 24 pozzetti pulita e premarcata con 500 μL di PBS + Ca 2+/Mg2+ per via basale per lavare il terreno basale residuo dai pozzetti.
- Aggiungere 200 μL di PBS + Ca 2+/Mg2+ al compartimento apicale di ciascun transwell.
- Aggiungere 1 mL di PBS + Ca 2+/Mg2+ alla camera di misurazione Endohm-6.
- Spostare ciascun transwell nella camera di misura Endohm-6 e riposizionare il coperchio della camera in modo che l'elettrodo apicale poggi nei 200 μL di PBS nel compartimento apicale; l'elettrodo basale è integrato nella parte inferiore della camera Endohm-6.
- Consenti alla lettura EVOM di stabilizzarsi e registra la misurazione TEER grezza.
- Raccogliere il campione ASL come descritto sopra dopo aver effettuato la misurazione del TEER, se si desidera titolare (raccogliere i 200 μL di PBS + Ca 2+/Mg2+ che sono stati aggiunti per la misurazione del TEER).
NOTA: La raccolta del campione ASL può indurre micro-lacerazioni nella barriera epiteliale che possono confondere le letture TEER, quindi l'ASL deve essere raccolto dopo la misurazione del TEER. Inoltre, il terreno basale non deve essere cambiato immediatamente prima delle letture TEER, in quanto ciò potrebbe influire sui valori TEER. - Per convertire le letture TEER grezze in misurazioni finali in Ohm/cm2, sottrarre il valore TEER vuoto e moltiplicare questo valore per l'area della superficie della membrana del pozzetto utilizzando l'equazione (1):
TEER = [Lettura TEER - valore TEER in bianco] × (superficie del pozzetto) (1) - Per gli HCoV, valutare il TEER ogni 24 o 48 ore dopo l'infezione; la cinetica delle modifiche di TEER spesso varia tra i virus e richiede la risoluzione dei problemi in vari momenti.
- Quando si misura il TEER, includere sempre colture finte infette e valutarle in ogni momento (controllo negativo).
NOTA: Per le colture simulate, le misurazioni TEER devono rimanere stabili o possono aumentare leggermente rispetto al basale dopo il completamento della differenziazione delle colture. L'area superficiale dei supporti a membrana varia a seconda delle dimensioni e del produttore dei pozzetti; I transwell a 24 pozzetti hanno in genere una superficie di 0,33 cm2.
5. Misurazione della citotossicità durante l'infezione tramite il saggio della lattato deidrogenasi (LDH)
NOTA: In questo lavoro, il contenuto di LDH nei campioni di ASL è stato quantificato utilizzando un kit di rilevamento della citotossicità disponibile in commercio. Il segnale LDH in terreno basale era spesso al di sotto del limite di rilevabilità e spesso meno riproducibile rispetto all'LDH quantificato nei campioni ASL provenienti da colture infette da HCoV.
- Preparare i controlli aggiuntivi necessari per il dosaggio dell'LDH.
- Controllo di fondo: utilizzare PBS (utilizzare PBS contenente calcio e magnesio se i campioni ASL sono stati raccolti in questo modo).
- Controllo positivo (valore massimo): trattare gli ALI apicalmente con Triton X-100. Raccogliere i pozzi di controllo Triton (in genere utilizzare tre colture ALI per questo in ogni punto temporale).
- Aggiungere 200 μL di Triton X-100 al 2% in PBS direttamente nel compartimento apicale del transwell.
- Incubare per 10-15 minuti per consentire alle cellule di lisarsi completamente.
- Raccogli l'intero volume come campione di soffitto Triton.
- Controllo negativo (basso controllo/rilascio basale di LDH): raccogliere ASL da colture ALI finte-infette derivate dallo stesso donatore di colture infette.
- Raccogliere l'ASL simulato del controllo negativo seguendo la procedura di raccolta ASL di cui sopra.
NOTA: Gli stessi transwell possono essere utilizzati per questo controllo negativo per tutti i punti temporali, mentre saranno necessari nuovi transwell per ogni punto temporale per il controllo Triton.
- Raccogliere l'ASL simulato del controllo negativo seguendo la procedura di raccolta ASL di cui sopra.
- Per consentire la quantificazione del virus sparso oltre alle letture LDH da ciascun campione ASL, caricare una piastra nera a 96 pozzetti a fondo piatto otticamente trasparente come segue:
- Diluire tutti i campioni in PBS, utilizzando 45 μL di campione e 55 μL di PBS (100 μL di volume totale).
- Trattare allo stesso modo i campioni di controllo positivo Triton e di controllo dello sfondo simulato.
NOTA: Questa diluizione consente il carico triplicato di ciascun campione sperimentale (45 μL x 3) e un volume ASL residuo sufficiente per la titolazione tramite il test della placca. - Caricare la piastra LDH in triplice: soffitto Triton, controllo dello sfondo simulato, controllo PBS e campioni sperimentali.
- Preparare la miscela di reazione come indicato dal produttore (soluzione colorante + catalizzatore).
- Aggiungere 100 μL di miscela di reazione a ciascun pozzetto e incubare la piastra a temperatura ambiente per 20 minuti al riparo dalla luce.
- Dopo 20 minuti, misurare l'assorbanza a 492 nm.
- Calcolare la percentuale di citotossicità rispetto al valore del limite di Triton utilizzando l'equazione (2).
Citotossicità (%)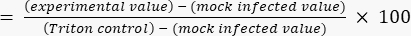 (2)
6. Preparazione di colture nasali di ALI per l'imaging in immunofluorescenza (IF)
- Spostare il transwell in una nuova piastra a 24 pozzetti e lavare 3 volte apicalmente con PBS (raccogliere il primo lavaggio PBS come ASL se si titolano; quindi, eseguire altri due lavaggi PBS per rimuovere il virus in eccesso che potrebbe ostacolare la qualità del digiuno intermittente)
- Dopo il lavaggio finale del PBS, coprire il transwell apicale e basale con PFA al 4%.
- Incubare per 30 minuti per fissare in PFA al 4%, quindi rimuovere e lavare 3 volte con PBS.
- Eseguire l'asportazione del supporto del pozzetto contenente le celle utilizzando una lama di rasoio affilata o delle forbici.
- Per aumentare il numero di bersagli IF per ciascun transwell, tagliare ciascuna membrana a metà e colorare ogni metà con diverse combinazioni di anticorpi.
- Permeabilizzare con Triton X-100 allo 0,2% in PBS per 10 min.
- Bloccare con il 10% di siero d'asina normale e l'1% di BSA in PBST (PBS + 0,2% Triton X-100) per 60 minuti a temperatura ambiente.
NOTA: Proteggere i campioni dall'esposizione alla luce da questo passaggio in avanti. - Incubare in soluzione di anticorpi primari per una notte a 4 °C. Diluire tutti gli anticorpi 1:1.000 in tampone bloccante.
NOTA: Di seguito sono elencati gli anticorpi rappresentativi per la colorazione del nucleocapside HCoV, nonché i marcatori del tipo di cellula epiteliale e le colorazioni del citoscheletro (vedere la Tabella dei materiali per le informazioni sul produttore e i numeri di catalogo).- Per la colorazione dell'antigene HCoV, utilizzare anticorpi mirati al nucleocapside SARS-CoV-2, al nucleocapside MERS-CoV e al nucleocapside HCoV-NL63.
- Per identificare i tipi di cellule epiteliali, utilizzare anticorpi che hanno come bersaglio il marcatore delle cellule caliciformi MUC5AC e il marcatore delle cellule ciliate di tipo IV β-tubulina.
- Per i marcatori del citoscheletro, utilizzare anticorpi diretti contro la falloidina (lega la F-actina) e il marcatore di adesione delle cellule epiteliali: EpCAM (CD326).
- Incubare in soluzione anticorpale secondaria per 60 minuti a temperatura ambiente; Utilizzare coloranti anticorpali secondari diluiti 1:1.000 in tampone bloccante.
- Al termine della colorazione, trasferire la membrana su un vetrino con una spatola, orientare il pozzetto con il lato apicale verso il vetrino e aggiungere la soluzione di montaggio. Lasciare riposare per 15-30 minuti prima di applicare lo smalto trasparente intorno ai bordi.
- Acquisizione di immagini con microscopio confocale (passo dell'asse Z: 0,5 μm; scansione sequenziale)1,16,17.
NOTA: Dopo la fissazione delle colture in PFA al 4% e il lavaggio con PBS, le colture fissate possono essere conservate a 4 °C per settimane o mesi prima della colorazione e della preparazione per l'imaging. Dopo la colorazione e il montaggio delle membrane, i campioni possono essere conservati a lungo termine (>2 anni) a 4 °C al buio.
7. Raccolta di proteine intracellulari per l'immunoblotting occidentale o di RNA per l'analisi RT-qPCR
- Raccogliere l'ASL come descritto sopra se si quantificano i titoli virali (sezione 2 del protocollo).
- Spostare il pozzetto su una piastra pulita a 24 pozzetti, poiché la raschiatura della membrana può portare alla rottura dell'inserto.
- Per l'analisi western blot, raccogliere il lisato proteico totale in 125 μL di tampone RIPA (50 mM Tris, pH 8, 150 mM NaCl, 0,5% desossicolato, 0,1% SDS, 1% NP40) integrato con inibitori della proteasi e della fosfatasi.
- Aggiungere 125 μL di tampone RIPA al compartimento apicale e incubare per 5-10 minuti.
- Raschiare la membrana utilizzando un puntale per pipetta P200 per rimuovere eventuali cellule attaccate rimanenti e raccogliere l'intero volume (raschiare energicamente su tutta la superficie della membrana, quindi pipettare su e giù più volte per raccogliere l'intero campione).
- Incubare i campioni di lisato proteico su ghiaccio per 10 minuti, quindi centrifugare alla massima velocità (20.000 × g) per 10 minuti a 4 °C.
- Miscelare il surnatante con 4 tamponi per campioni Laemmli con β-mercaptoetanolo (agente riducente) secondo i protocolli del produttore.
- Far bollire i campioni proteici a 95 °C per 5 minuti, quindi eseguire utilizzando i tradizionali protocolli di western blotting 1,16,17.
- Per la raccolta dell'RNA totale, utilizzare un kit di estrazione dell'RNA disponibile in commercio a scelta.
NOTA: Il compartimento apicale degli inserti transwell a 24 pozzetti ha un volume massimo di ~200 μL; Pertanto, eseguiamo due lavaggi sequenziali su ciascuna coltura per raggiungere il volume totale raccomandato. I dettagli riportati di seguito corrispondono alla raccolta raccomandata di campioni di RNA in un volume totale di 350 μL. - Aggiungere 200 μL di tampone di lisi al compartimento apicale del pozzetto infetto.
- Lasciare riposare per 5-10 minuti, raschiare le cellule rimanenti dalla membrana utilizzando un puntale per pipette e raccogliere l'intero volume in una provetta per microcentrifuga etichettata.
- Aggiungere 150 μL di tampone di lisi aggiuntivo al compartimento apicale del transwell e pipettare su e giù prima di raccogliere nella stessa provetta per microcentrifuga.
- Estrarre l'RNA secondo il protocollo del produttore.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Le cifre rappresentative sono parzialmente adattate dai dati che si possono trovare nel manoscritto Otter et al.1. Le colture nasali di ALI derivate da quattro o sei donatori sono state infettate con uno dei quattro HCoV (SARS-CoV-2, MERS-CoV, HCoV-NL63 e HCoV-229E) secondo i protocolli sopra descritti e i titoli virali medi apicali per ciascun virus sono illustrati nella Figura 1A. Mentre tutti e quattro questi HCoV si replicano in modo produttivo nelle colture ALI n...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
I metodi qui descritti descrivono un sistema di coltura epiteliale primaria in cui le cellule epiteliali nasali derivate dal paziente vengono coltivate ad un'interfaccia aria-liquido e applicate allo studio delle interazioni HCoV-ospite. Una volta differenziate, queste colture nasali di ALI ricapitolano molte caratteristiche dell'epitelio nasale in vivo, tra cui una popolazione cellulare eterogenea con cellule ciliate, caliciformi e basali rappresentate, nonché una funzione mucociliare intatta con ciglia e secrezione di ...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Susan Weiss fa parte del comitato consultivo scientifico di Ocugen. Noam A. Cohen è consulente per GSK, AstraZeneca, Novartis, Sanofi/Regeron e Oyster Point Pharmaceuticals e ha un brevetto statunitense, "Therapy and Diagnostics for Respiratory Infection" (10.881.698 B2, WO20913112865), e un accordo di licenza con GeneOne Life Sciences.
Ringraziamenti
Questo studio ha le seguenti fonti di finanziamento: National Institutes of Health (NIH) R01AI 169537 (S.R.W. e N.A.C.), NIH R01AI 140442 (S.R.W.), VA Merit Review CX001717 (N.A.C.), VA Merit Review BX005432 (S.R.W. e N.A.C.), Penn Center for Research on Coronaviruses and other Emerging Pathogens (S.R.W.), Laffey-McHugh Foundation (S.R.W. e N.A.C.), T32 AI055400 (CJO), T32 AI007324 (AF).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Alexa Fluor anticorpi secondari (488, 594, 647) | Invitrogen | Vari | |
| BSA (albumina sierica bovina) | Sigma-Aldrich | A7906 | |
| cOmplete mini inibitore della proteasi senza EDTA | Roche | 11836170001 | |
| Kit per il rilevamento della citotossicità | Roche | 11644793001 | |
| DMEM (Dulbecco's Modified Eagle Media) | Gibco | 11965-084 | |
| DPBS (soluzione salina tamponata con fosfato di Dulbecco) | Gibco | 14190136 | |
| DPBS + calcio + magnesio | Gibco | 14040-117 | |
| Camera di misura Endohm-6G | World Precision Instruments | ENDOHM-6G | |
| Marcatore di adesione delle cellule epiteliali (EpCAM; CD326) | eBiosciences | 14-9326-82 | |
| Misuratore epiteliale volt/ohm (TEER) (EVOM) | World Precision Instruments | 300523 | |
| FBS (siero bovino fetale) | HyClone | SH30071.03 | |
| FV10-ASW software per l'imaging | Olympus | versione 4.02 | |
| HCoV-NL63 (coronavirus umano, NL63) | BEI Resources | NR-470 | |
| Anticorpo nucleocapside HCoV-NL63 | Sino Biological | 40641-V07E | |
| Colorazione Hoescht | Thermo Fisher | H3570 | |
| Tampone campione Laemmli (4x)Cellule | BIO-RAD | 1610747 | |
| LLC-MK2 | ATCC | CCL-7 | Per titolare HCoV-NL63 |
| MERS-CoV (Coronavirus umano, Sindrome respiratoria mediorientale Coronavirus (MERS-CoV), EMC/2012) | BEI Risorse | NR-44260 | |
| MERS-CoV anticorpo nucleocapside | Sino Biological | 40068-MM10 | |
| MUC5AC anticorpo | Sigma-Aldrich | AMAB91539 | |
| Olympus Fluoview microscopio confocale | Olympus | FV1000 | |
| Phalloidin-iFluor 647 colorante | Abcam | ab176759 | |
| PhosStop easy pack (inibitori della fosfatasi) | Roche | PHOSS-RO | |
| Lettore di piastre | Perkin Elmer | HH34000000 | Qualsiasi lettore di piastre o lettore ELISA è sufficiente; deve essere in grado di leggere l'assorbanza a 492 nm |
| di tampone RIPA (50 mM Tris pH 8; 150 mM NaCl; 0,5% desossicolato; 0,1% SDS; 1% NP40) | Thermo Fisher | 89990 | Può essere preparato internamente o acquistare |
| RNeasy Plus Kit | Qiagen | 74134 | |
| SARS-CoV-2 (SARS-Related Coronavirus 2, Isolate USA-WA1/2020) | BEI Resources | NR-52281 | |
| Anticorpo nucleocapside SARS-CoV-2 | Genetex | GTX135357 | |
| Triton-X 100 | Fisher Scientific BP151100 | ||
| Tipo IV β- anticorpo tubulina | Abcam | ab11315 | |
| Cellule VeroCCL81 | ATCC | CCL-81 | Per titolare le cellule MERS-CoV |
| VeroE6 | ATCC | CRL-1586 | Per titolare SARS-CoV-2 |
Riferimenti
- Otter, C. J., et al. Infection of primary nasal epithelial cells differentiates among lethal and seasonal human coronaviruses. Proceedings of the National Academy of Sciences of the United States of America. 120 (15), 2218083120(2023).
- Fehr, A., Perlman, S. Coronaviruses: An overview of their replication and pathogenesis. Methods in Molecular Biology. 1282, 1-23 (2015).
- Gaunt, E. R., Hardie, A., Claas, E. C. J., Simmonds, P., Templeton, K. E. Epidemiology and clinical presentations of the four human coronaviruses 229E, HKU1, NL63, and OC43 detected over 3 years using a novel multiplex real-time PCR method. Journal of Clinical Microbiology. 48 (8), 2940-2947 (2010).
- Kesheh, M. M., Hosseini, P., Soltani, S., Zandi, M. An overview on the seven pathogenic human coronaviruses. Reviews in Medical Virology. 32 (2), 2282(2022).
- MERS-CoV Worldwide Overview. European Centre for Disease Prevention and Control. , Available from: https://www.ecdc.europa.eu/en/middle-east-respiratory-syndrome-coronavirus-mers-cov-situation-update (2022).
- MERS Situation Update. World Health Organization Regional Office for the Eastern Mediterranean. , Available from: http://www.emro.who.int/health-topics/mers-cov/mers-outbreaks.html (2022).
- Cao, Y., Liu, X., Xiong, L., Cai, K. Imaging and clinical features of patients with 2019 novel coronavirus SARS-CoV-2: A systematic review and meta-analysis. Journal of Medical Virology. 92 (9), 1449-1459 (2020).
- Vareille, M., Kieninger, E., Edwards, M. R., Regamey, N. The airway epithelium: Soldier in the fight against respiratory viruses. Clinical Microbiology Reviews. 24 (1), 210-229 (2011).
- Farzal, Z., et al. Comparative study of simulated nebulized and spray particle deposition in chronic rhinosinusitis patients. International Forum of Allergy and Rhinology. 9 (7), 746-758 (2019).
- Gaeckle, N. T., Pragman, A. A., Pendleton, K. M., Baldomero, A. K., Criner, G. J. The oral-lung axis: The impact of oral health on lung health. Respiratory Care. 65 (8), 1211-1220 (2020).
- Hou, Y., et al. SARS-CoV-2 reverse genetics reveals a variable infection gradient in the respiratory tract. Cell. 182, 429-446 (2020).
- Hariri, B. M., Cohen, N. A. New insights into upper airway innate immunity. American Journal of Rhinology and Allergy. 30 (5), 319-323 (2016).
- Hiemstra, P. S., McCray, P. B., Bals, R. The innate immune function of airway epithelial cells in inflammatory lung disease. European Respiratory Journal. 45 (4), 1150-1162 (2015).
- Hatton, C. F., et al. Delayed induction of type I and III interferons mediates nasal epithelial cell permissiveness to SARS-CoV-2. Nature Communications. 12 (1), 7092(2021).
- Sungnak, W., et al. SARS-CoV-2 entry factors are highly expressed in nasal epithelial cells together with innate immune genes. Nature Medicine. 26 (5), 681-687 (2020).
- Li, Y., et al. SARS-CoV-2 induces double-stranded RNA-mediated innate immune responses in respiratory epithelial-derived cells and cardiomyocytes. Proceedings of the National Academy of Sciences of the United States of America. 118 (16), 2022643118(2021).
- Comar, C. E., et al. MERS-CoV endoribonuclease and accessory proteins jointly evade host innate immunity during infection of lung and nasal epithelial cells. Proceedings of the National Academy of Sciences of the United States of America. 119 (21), 2123208119(2022).
- Lee, R. J., et al. Bacterial D-amino acids suppress sinonasal innate immunity through sweet taste receptors in solitary chemosensory cells. Science Signaling. 10 (495), (2017).
- Brewington, J. J., et al. Brushed nasal epithelial cells are a surrogate for bronchial epithelial CFTR studies. JCI Insight. 3 (13), 99385(2018).
- Comer, D. M., Elborn, J. S., Ennis, M. Comparison of nasal and bronchial epithelial cells obtained from patients with COPD. PLoS One. 7 (3), e32924(2012).
- Vanders, R. L., Hsu, A., Gibson, P. G., Murphy, V. E., Wark, P. A. B. Nasal epithelial cells to assess in vitro immune responses to respiratory virus infection in pregnant women with asthma. Respiratory Research. 20 (1), 259(2019).
- Lee, R. J., et al. Fungal aflatoxins reduce respiratory mucosal ciliary function. Scientific Reports. 6, 33221(2016).
- Patel, N. N., et al. Fungal extracts stimulate solitary chemosensory cell expansion in noninvasive fungal rhinosinusitis. International Forum of Allergy and Rhinology. 9 (7), 730-737 (2019).
- Baer, A., Kehn-Hall, K. Viral concentration determination through plaque assays: Using traditional and novel overlay systems. Journal of Visualized Experiments. 93 (93), e52065(2014).
- Robinot, R., et al. SARS-CoV-2 infection induces the dedifferentiation of multiciliated cells and impairs mucociliary clearance. Nature Communications. 12 (1), 4354(2021).
- Whitsett, J. A. Airway epithelial differentiation and mucociliary clearance. Annals of the American Thoracic Society. 15, S143-S148 (2018).
- Gao, N., Raduka, A., Rezaee, F. Respiratory syncytial virus disrupts the airway epithelial barrier by decreasing cortactin and destabilizing F-actin. Journal of Cell Science. 135 (16), 259871(2022).
- Schmidt, H., et al. IL-13 impairs tight junctions in airway epithelia. International Journal of Molecular Sciences. 20 (13), 3222(2019).
- Huang, Z. Q., et al. Interleukin-13 alters tight junction proteins expression thereby compromising barrier function and dampens rhinovirus induced immune responses in nasal epithelium. Frontiers in Cell and Developmental Biology. 8, 572749(2020).
- Saatian, B., et al. Interleukin-4 and interleukin-13 cause barrier dysfunction in human airway epithelial cells. Tissue Barriers. 1 (2), e24333(2013).
- Coles, J. L., et al. A revised protocol for culture of airway epithelial cells as a diagnostic tool for primary ciliary dyskinesia. Journal of Clinical Medicine. 9 (11), 3753(2020).
- Baldassi, D., Gabold, B., Merkel, O. M. Air−liquid interface cultures of the healthy and diseased human respiratory tract: Promises, challenges, and future directions. Advanced NanoBiomed Research. 1 (6), 2000111(2021).
- Seibold, M. A. Interleukin-13 stimulation reveals the cellular and functional plasticity of the airway epithelium. Annals of the American Thoracic Society. 15, S98-S106 (2018).
- Morrison, C. B., et al. SARS-CoV-2 infection of airway cells causes intense viral and cell shedding, two spreading mechanisms affected by IL-13. Proceedings of the National Academy of Sciences of the United States of America. 119 (16), 2119680119(2022).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
