Il metodo sviluppato della marcatura del 13C6-glucosio combinato con la cromatografia liquida e la spettrometria di massa ad alta risoluzione è versatile e pone le basi per studi futuri sugli organi primari e sui percorsi coinvolti nella sintesi di metaboliti secondari nelle piante medicinali, nonché sull'utilizzo completo di questi metaboliti secondari.
Articolo metodologico
13Marcatura del C6-glucosio associata a LC-MS: identificazione degli organi primari delle piante nella sintesi di metaboliti secondari
In questo articolo
Sommario
Abstract
Questo articolo presenta un metodo nuovo ed efficiente per certificare gli organi primari coinvolti nella sintesi dei metaboliti secondari. Come il più importante metabolita secondario in Parispolyphylla var. yunnanensis (Franch.) Mano. -Mzt. (PPY), la saponina di Parigi (PS) ha una varietà di attività farmacologiche e la PPY è sempre più richiesta. Questo studio ha stabilito quattro trattamenti per certificare con precisione gli organi primari coinvolti nella sintesi delle saponine di Parigi VII (PS VII). Combinando cromatografia liquida-spettrometria di massa (LC-MS), i rapporti 13C/12C di foglia, rizoma, fusto e radice in diversi trattamenti sono stati calcolati in modo rapido e accurato e sono stati trovati quattro tipi di rapporti di picco ionico isotopico PS (M−): (M+1) −/M−, (M+2) −/M−, (M+3) −/M− e (M+4) −/M−. I risultati hanno mostrato che il rapporto di 13C/12C nei rizomi dei trattamenti di alimentazione staminale-vascolare e rizoma era significativamente più alto di quello del trattamento non alimentare. Rispetto al trattamento senza alimentazione, il rapporto tra le molecole di PS VII (M+2) −/M− nelle foglie è aumentato significativamente durante i trattamenti di alimentazione fogliare e stelo vascolare. Contemporaneamente, rispetto al trattamento senza alimentazione, il rapporto tra le molecole di PS VII (M+2) −/M− nelle foglie sottoposte a trattamento con rizoma non ha mostrato differenze significative. Inoltre, il rapporto tra le molecole di PS VII (M+2) −/M− nel fusto, nella radice e nel rizoma non ha mostrato differenze tra i quattro trattamenti. Rispetto al trattamento senza alimentazione, il rapporto tra la molecola di saponina Paris II (PS II) (M+2) -/M− nelle foglie sottoposte a trattamento di alimentazione fogliare non ha mostrato differenze significative e il rapporto (M+3) −/M− delle molecole di PS II nelle foglie sottoposte a trattamento di alimentazione fogliare era inferiore. I dati hanno confermato che l'organo primario per la sintesi di PS VII sono le foglie. Getta le basi per la futura identificazione degli organi primari e delle vie coinvolte nella sintesi dei metaboliti secondari nelle piante medicinali.
Introduzione
Le vie biosintetiche dei metaboliti secondari nelle piante sono intricate e diversificate e coinvolgono organi di accumulo altamente specifici e diversificati1. Attualmente, i siti di sintesi specifici e gli organi responsabili dei metaboliti secondari in molte piante medicinali non sono ben definiti. Questa ambiguità pone un ostacolo significativo all'avanzamento strategico e all'attuazione di metodi di coltivazione progettati per ottimizzare sia la resa che la qualità dei materiali medicinali.
La biologia molecolare, la biochimica e le tecniche di marcatura isotopica sono ampiamente impiegate per svelare le vie di sintesi e i siti dei metaboliti secondari nelle piante medicinali 2,3,4,5 e ciascuna di queste metodologie presenta punti di forza e limiti unici, come le differenze di efficienza e precisione. Gli approcci di biologia molecolare, ad esempio, offrono un'elevata precisione nell'individuare i siti all'interno dei percorsi biosintetici, ma richiedono molto tempo. La loro utilità è ulteriormente limitata per le specie prive di sequenze genomiche disponibili pubblicamente, rendendo queste tecniche meno praticabili per tali casi6. Al contrario, le tecniche di marcatura isotopica, che impiegano rapporti isotopici come 3C/12C, 2H/1H e 18O/16O, forniscono un mezzo rapido e accessibile per studiare la sintesi, il trasporto e i meccanismi di stoccaggio dei metaboliti secondari 7,8. Possono rivelare la distribuzione spaziale dei composti organici e degli isotopi stabili nelle foglie, consentendo così la ricostruzione delle condizioni ambientali vissute dalle foglie durante il loro ciclo di vita9. Inoltre, l'applicazione di marcature isotopiche esterne, come 13C6-Glucosio 10 e 13C 6-Fenilalanina11, consente la generazione di metaboliti secondari marcati con carbonio, migliorando la nostra comprensione della loro produzione e funzione.
Le tecniche tradizionali di marcatura degli isotopi di carbonio incontrano sfide nell'individuare gli organi specifici responsabili della sintesi dei metaboliti secondari a causa della natura altamente specie-specifica delle loro vie biosintetiche e dei meccanismi di trasporto. La cromatografia liquida-spettrometria di massa (LC-MS) è diventata uno strumento analitico fondamentale in questo settore, offrendo un metodo robusto per tracciare gli isotopi esogeni nella sintesi chimica di farmaci e studiare processi in vivo come l'assorbimento, la distribuzione, il metabolismo e l'escrezione12. La sensibilità, la semplicità e l'affidabilità superiori della LC-MS la rendono la scelta ideale per il monitoraggio della produzione di metaboliti secondari nelle piante13. Negli ultimi tempi, la LC-MS è diventata sempre più apprezzata per la sua applicazione nelle tecniche di marcatura isotopica esterna, che consente di valutare l'efficienza della marcatura su diversi campioni. Questa metodologia fornisce informazioni critiche sugli organi primari coinvolti nella sintesi di metaboliti secondari nelle piante medicinali, fungendo da prezioso complemento ai metodi biologici per identificare gli organi di sintesi di questi composti14,15. Di conseguenza, questo approccio non solo facilita il confronto delle efficienze di marcatura tra i vari campioni, ma fa anche luce sugli organi chiave implicati nella generazione di metaboliti secondari delle piante, migliorando così la nostra comprensione della loro biosintesi.
Abbiamo introdotto un nuovo metodo che combina la marcatura degli isotopi di carbonio con il rilevamento LC-MS per identificare gli organi primari responsabili della sintesi dei metaboliti secondari nelle piante medicinali. La saponina di Parigi (PS) ha una varietà di attività farmacologiche come l'antitumorale, l'immunomodulazione e l'antinfiammatorio16 e la PPY è sempre più richiesta17. Pertanto, abbiamo utilizzato piantine di PPY come soggetti di ricerca e abbiamo decifrato che le foglie sono l'organo principale per sintetizzare la saponina Paris VII (PS VII) (Figura 1B) utilizzando la marcatura 13C6-Glucosio associata al metodo LC-MS. Il nostro approccio includeva quattro diversi trattamenti che prevedevano l'alimentazione di 13C6-glucosio su foglie, rizoma e fasci staminali-vascolari, nonché un controllo di non alimentazione. La scelta del 13C6-glucosio è strategica, in quanto viene rapidamente metabolizzato in acetil coenzima A attraverso la respirazione, che poi facilita la sintesi del PS. Utilizzando l'abbondanza naturale di 13C, abbiamo utilizzato un sistema di spettrometro di massa con rapporto isotopico stabile per gascromatografia (GC-IRMS) per valutare i rapporti 13C/12C in vari organi della pianta e per analizzare i rapporti di picco degli ioni isotopici nelle molecole PS VII e Paris saponine II (PS II) (Figura 1B). La nostra metodologia, che sfrutta 13precursori di metaboliti secondari di piante marcati con C e tecniche di spettrometria di massa all'avanguardia, offre un'alternativa più semplice e accurata ai metodi convenzionali di etichettatura degli isotopi di carbonio. Questo nuovo approccio non solo approfondisce la nostra comprensione degli organi coinvolti nella sintesi dei metaboliti secondari nelle piante medicinali, ma getta anche solide basi per future esplorazioni sui percorsi biosintetici di questi composti.
Protocollo
1. Preparazione sperimentale
- Assicurati che durante la crescita delle piante, l'umidità relativa della serra sia del 75%, le temperature giorno/notte siano di 20 °C/10 °C, il fotoperiodo sia composto da 12 ore di giorno e 12 ore di notte e l'intensità della luce sia di 100 μmol·m-2·s-1. Fornire irraggiamento tramite lampade a diodi emettitori di luce (LED), mantenendo una distanza di 30 cm tra la lampada a LED e la chioma della pianta.
NOTA: Il fotoperiodo e l'intensità della luce sono in base al numero di ore di sole durante il periodo di crescita in Yunnan. L'irraggiamento viene misurato di routine da un sensore quantistico (vedi Tabella dei materiali). Apportare le modifiche necessarie ai parametri ambientali in base alle caratteristiche della pianta medicinale. Una volta che queste condizioni ambientali sono state attentamente calibrate in base alle caratteristiche della pianta e al profilo solare regionale, è fondamentale mantenere la coerenza in questi ambienti per tutta la durata dell'esperimento. Modifiche arbitrarie dei parametri ambientali dopo la loro istituzione iniziale potrebbero compromettere l'integrità dell'esperimento e l'affidabilità dei risultati. - Utilizzare un approccio idroponico18 per garantire l'accuratezza e la specificità del nostro esperimento. Assicurati che le piantine PPY lavate di 2 anni (raccolte a Wenshan, nella provincia dello Yunnan (104°11′E, 23°04′N) siano immerse in una concentrazione standard di 1/4 della soluzione nutritiva di Hoagland per 3 giorni per l'adattamento.
- Preparare la soluzione nutritiva di Hoagland (vedi Tabella dei materiali) secondo le istruzioni; aggiungere 1,26 g di polvere di Hoagland e 0,945 g di polvere di nitrato di calcio in 4 L di acqua purificata. Preparare la soluzione di 13C6-glucosio (vedi Tabella dei materiali) come descritto nel manuale standard; aggiungere 0,2 g di polvere di 13C6-Glucosio in 100 ml di acqua purificata o soluzione nutritiva di Hoagland.
- Preparare la bombola idroponica e la pompa di ossigeno (Figura 2; vedi Tabella dei materiali).
NOTA: Nella configurazione idroponica, l'utilizzo di una soluzione di 13C6-Glucosio per l'etichettatura elude l'influenza dei microrganismi del suolo, garantendo così che la soluzione contribuisca direttamente alla rapida sintesi di metaboliti secondari nelle piante medicinali. Per ottimizzare le condizioni per l'assorbimento di 13C6-Glucosio da parte delle piante, è indispensabile regolare la portata della pompa di ossigeno tra 4 e 8 L/min. Questa portata controllata è fondamentale per evitare che le piantine galleggino sulla superficie dell'acqua, il che potrebbe ostacolare in modo significativo la loro capacità di assorbire efficacemente il 13C6-glucosio. Il mantenimento delle piantine immerse alla profondità corretta consente un assorbimento efficiente del composto di marcatura, garantendo così il successo del processo di sintesi dei metaboliti nel sistema idroponico.
2. Operazione dell'esperimento di etichettatura del carbonio
- Impostare quattro trattamenti e tracciare gli organi e le vie di sintesi di PS VII e PS II in PPY per dimostrare che le foglie sono l'organo principale per la sintesi di PS.
- Nel Trattamento 1, la piantina PPY non si nutre; nel Trattamento 2, spruzzare le foglie della piantina PPY con 0,2% 13C6-Glucosio; nel Trattamento 3, nutrire i rizomi della piantina PPY con lo 0,2% di 13C6-glucosio; nel Trattamento 3, nutrire la piantina PPY all'incisione dello stelo con il glucosio 0,2% 13C6 (Figura 2A).
NOTA: Il trattamento 1 è impostato come gruppo di controllo. Il trattamento 2 è impostato per dimostrare che le foglie possono sintetizzare il PS. I trattamenti 3 e 4 sono impostati per dimostrare che i rizomi possono assorbire 13C6-glucosio. - Nei trattamenti 1 e 2, coltivare le piantine PPY nella normale soluzione nutritiva di Hoagland. Spruzzare 5 ml di soluzione di glucosio 0,2% 13C6 una volta al mattino, pomeriggio e sera sulle foglie del Trattamento 2.
- Nei trattamenti 3 e 4, coltivare le piantine PPY nella soluzione nutritiva di Hoagland contenente lo 0,2% di 13C6-glucosio. Nel Trattamento 4, utilizzare un bisturi (vedi Tabella dei materiali) per tagliare gli steli delle piantine PPY dal centro, ma mantenere attaccati i fasci vascolari.
- Lasciare che ogni trattamento sia etichettato per 3 giorni e cambiare la soluzione nutritiva ogni 1,5 giorni. Condurre l'esperimento utilizzando un design a blocchi randomizzato e ripetere ogni trattamento 3 volte.
NOTA: Quando si spruzzano le foglie, è importante posizionare una carta assorbente dietro le foglie spruzzate. Ciò impedisce alle goccioline d'acqua di cadere nella soluzione nutritiva sottostante, che altrimenti potrebbe influenzare i risultati dell'esperimento. I tagli negli steli non vengono tutti rimossi, ma sono attaccati dei condotti visibili ad occhio nudo.
- Nel Trattamento 1, la piantina PPY non si nutre; nel Trattamento 2, spruzzare le foglie della piantina PPY con 0,2% 13C6-Glucosio; nel Trattamento 3, nutrire i rizomi della piantina PPY con lo 0,2% di 13C6-glucosio; nel Trattamento 3, nutrire la piantina PPY all'incisione dello stelo con il glucosio 0,2% 13C6 (Figura 2A).
3. Metodi di campionamento e preparazione
- Raccogli foglie, steli, rizomi e radici da ogni trattamento separatamente alla fine dell'esperimento di 3 giorni con 13C6-glucosio. Lavare accuratamente gli organi vegetali raccolti per rimuovere le impurità superficiali.
NOTA: L'assenza di abbondanza di 13C può essere rilevata dall'analisi LC-MS della soluzione di lavaggio, che dimostra che il lavaggio è pulito19. - Utilizzare un forno elettrico di essiccazione a temperatura costante (vedi Tabella dei materiali) per asciugare gli organi vegetali lavati. Iniziare a 105 °C per 30 minuti e poi impostare a 60 °C fino a peso costante. Ridurre in polvere gli organi vegetali essiccati utilizzando un trituratore rapido per campioni completamente automatico (vedi Tabella dei materiali).
NOTA: La polvere viene utilizzata per l'analisi quantitativa dei rapporti PS VII, II e 13C/12C in diversi organi vegetali. - Utilizzare una bilancia analitica elettronica (vedere la Tabella dei materiali) per pesare con precisione 30 mg di polvere per ciascun campione e immergerlo in 2 mL di etanolo e acqua al 75% v/v. Utilizzare un pulitore a ultrasuoni CNC (vedi Tabella dei materiali) ed eseguire l'estrazione a ultrasuoni a 25 °C per 20 min (60 kHz), ripetere 2 volte; Unire le soluzioni di estrazione e preparare tre campioni paralleli20.
NOTA: Gli errori nel peso del campione devono essere ridotti al minimo. - Utilizzare l'azoto per asciugare la soluzione di estrazione, quindi scioglierla in metanolo cromatografico fino a un volume di 1 ml. Prima dell'iniezione, utilizzare un filtro in fase organica da 0,22 μm (vedere la Tabella dei materiali) per la filtrazione (Figura 2B).
NOTA: Non soffiare l'estratto durante l'asciugatura con azoto gassoso; L'estratto deve essere fatto passare attraverso una membrana microporosa per garantire che le impurità interferiscano minimamente.
4. Configurazione e funzionamento LC-MS
- Impostazione MS
- Attivare la pompa del vuoto portando il suo interruttore in posizione on. Aprire la valvola principale sulla bombola del gas argon, quindi regolare la valvola di pressione parziale per ottenere una pressione target di circa 0,3 MPa. Successivamente, assicurarsi che anche la valvola del gas azoto sia aperta.
- Avviare il software di controllo MS (vedere la tabella dei materiali). Fare clic sulla sorgente di ionizzazione elettrospray riscaldata (HESI Source) nel pannello del software e inserire i parametri, tra cui la tensione capillare (3,0 kV per la modalità negativa), la temperatura capillare (350 °C), la portata del gas di guaina (N2) (35 unità arbitrarie), la portata del gas ausiliario (N2) (15 unità arbitrarie), attraverso la scansione completa basata sulla massa molecolare del PS (operata da m/z 100-1.500). Fare clic sul pulsante Applica per attivare la sorgente ionica.
NOTA: Attendere almeno 8 ore per garantire un grado di vuoto sufficiente per le condizioni sperimentali. Verificare che la pressione del gas di argon e azoto sia sufficientemente alta prima dell'analisi.
- LC pre-corsa
- Preparare la fase mobile A mescolando acido formico allo 0,1% con acqua e utilizzare acetonitrile per la fase mobile B (vedi Tabella dei materiali). Degassare entrambe le fasi in un sonicatore a bagno ad ultrasuoni per 15 minuti per eliminare i gas disciolti. Quindi, collegare la fase mobile A al rispettivo passaggio del fluido e fare lo stesso con la fase mobile B. Infine, miscelare una soluzione 1:9 v/v di metanolo e acqua per il fluido di pulizia e riempire manualmente la pompa e i flaconi dell'iniettore.
NOTA: La frequenza del sonicatore a ultrasuoni è di 40 kHz.
- Preparare la fase mobile A mescolando acido formico allo 0,1% con acqua e utilizzare acetonitrile per la fase mobile B (vedi Tabella dei materiali). Degassare entrambe le fasi in un sonicatore a bagno ad ultrasuoni per 15 minuti per eliminare i gas disciolti. Quindi, collegare la fase mobile A al rispettivo passaggio del fluido e fare lo stesso con la fase mobile B. Infine, miscelare una soluzione 1:9 v/v di metanolo e acqua per il fluido di pulizia e riempire manualmente la pompa e i flaconi dell'iniettore.
- Istituzione del metodo LC
- Selezionare il pulsante "Impostazione strumento" per accedere alla finestra di modifica del metodo.
- Premere il pulsante "Nuovo" per avviare la creazione di un nuovo metodo di strumento LC-MS.
- Impostare il tempo di esecuzione totale per il metodo LC. Quindi, inserire i valori necessari per il limite di pressione, la portata totale, il gradiente di flusso, la temperatura del campione, la temperatura della colonna e il delta di temperatura pronto all'interno della finestra di modifica del metodo.
NOTA: Le impostazioni del metodo dello strumento LC-MS sono personalizzate in base all'analita di interesse e al tipo di colonna per cromatografia liquida utilizzata. Per risultati ottimali, utilizzare una portata di 0,3 mL/min con una colonna BEH C18 mantenuta a 40 °C (vedere la tabella dei materiali). L'eluizione del gradiente è configurata come segue: iniziare dal 10% B, aumentare linearmente al 30% B in 8 minuti, quindi al 45% B da 8 a 16 minuti, al 50% B da 16 a 24 minuti e al 70% B da 24 a 30 minuti. Subito dopo, riportare la pendenza alla condizione iniziale del 10% B entro 0,1 minuti, mantenendola lì per altri 2,9 minuti. Iniettare un volume di campione di 5 μl per ogni analisi. Le impostazioni del metodo dello strumento LC-MS dipendono dalla sostanza specifica da analizzare e dal tipo di colonna per cromatografia liquida utilizzata21.
- Acquisizione MS
- Nella scheda Impostazioni scegliere il tipo di esperimento General MS o MSn per la configurazione del metodo MS. Immettere i valori necessari per impostare il tempo di acquisizione, la polarità (positiva o negativa), l'intervallo di massa, il numero della valvola di deviazione e la durata della valvola di deviazione. Dopo aver inserito questi dettagli, fare clic sul pulsante "Salva" per finalizzare e salvare queste impostazioni come metodo dello strumento.
NOTA: Le impostazioni predefinite senza colonna cromatografica sono le seguenti: tempo di acquisizione, 2 min; polarità, positiva o negativa; intervallo di massa, da 100 a 1.500.
- Nella scheda Impostazioni scegliere il tipo di esperimento General MS o MSn per la configurazione del metodo MS. Immettere i valori necessari per impostare il tempo di acquisizione, la polarità (positiva o negativa), l'intervallo di massa, il numero della valvola di deviazione e la durata della valvola di deviazione. Dopo aver inserito questi dettagli, fare clic sul pulsante "Salva" per finalizzare e salvare queste impostazioni come metodo dello strumento.
- Eseguire la spettrometria di massa a più stadi secondo i metodi convenzionali.
- Utilizzare sempre la modalità di acquisizione dipendente dai dati (DDA) per la raccolta dei dati nella spettrometria di massa multistadio. In modalità DDA, lo spettrometro di massa identifica i cinque ioni più intensi durante ogni scansione nel primo stadio della MS tandem, che vengono successivamente frammentati ed esaminati nel secondo stadio della spettrometria di massa tandem.
NOTA: I dati MS e MS/MS raccolti possono essere utilizzati per successive analisi e ricerche nel database.
- Utilizzare sempre la modalità di acquisizione dipendente dai dati (DDA) per la raccolta dei dati nella spettrometria di massa multistadio. In modalità DDA, lo spettrometro di massa identifica i cinque ioni più intensi durante ogni scansione nel primo stadio della MS tandem, che vengono successivamente frammentati ed esaminati nel secondo stadio della spettrometria di massa tandem.
5. Acquisizione, analisi e calcolo manuale dei dati
- Acquisizione e analisi dei dati
- Fare doppio clic sui file grezzi per aprire tutti gli spettri di massa da MS. Calcolare manualmente i valori di differenza m/z tra lo ione e gli ioni frammento corrispondenti.
- Importare i file di dati grezzi del controllo e dei trattamenti dei campioni e i bianchi nel software di analisi della spettrometria di massa per identificare i PS calcolando con precisione la massa e i frammenti di PS.
NOTA: PS VII e PS II sono identificati in base al confronto con i tempi di ritenzione e la coeluizione di soluzioni standard autentiche. LC-MS rileva una serie di piccoli picchi nelle posizioni dei picchi degli ioni molecolari. Il rapporto di ogni serie di picchi di ioni isotopici è costante. Quando vengono somministrati isotopi esogeni del 13C, l'abbondanza totale di 13C nella pianta aumenta e i rapporti della serie di picchi di ioni isotopici dei metaboliti secondari della pianta cambiano. La tolleranza massima dell'errore di massa è fissata a 5 ppm. - Scansiona l'intervallo di massa m/z 500-1.500 per identificare il picco di base. Determinare il peso molecolare accurato con 4 cifre decimali, in base al peso molecolare preciso e al tempo di ritenzione della molecola target. Cerca l'area del picco del flusso di ioni isotopici seriali e ricava i valori per M−, (M+1) −, (M+2) −, (M+3) − e (M+4) −. Quando la fase mobile contiene acido formico, gli ioni negativi includono anche (M+COOH) −, (M+COOH+1) −, (M+COOH+2) −, (M+COOH+3) − e (M+COOH+4) −.
NOTA: La selezione di picchi all'interno dell'intervallo di massa m/z 500-1.500 migliora l'accuratezza dell'identificazione dei picchi di ioni molecolari per PS VII e PS II. Ad esempio, lo spettro di massa degli ioni negativi di PS VII (C51H82O21, 1030.5349) ionizza principalmente con ioni COOH− in una miscela di acido formico-acqua. Gli ioni isotopi seriali osservati includono 1029.53−, 1030.54−, 1031.54−, 1032.55−, 1033.55−, e si estendono fino a 1079.56−.
- Calcolo dei dati
- Per ridurre l'effetto dell'abbondanza naturale di 13C, calcolare i rapporti tra correnti ioniche marcate e non marcate per ciascun organo sottoposto a diversi trattamenti, concentrandosi in particolare sui rapporti (M+1)-/ M-, (M+2)-/M-, (M+3)-/ M-e (M+4)/M-. Per differenziare tra isotopi marcati e naturali per una valutazione accurata dell'incorporazione di 13C, calcolare questi rapporti per n = 1, 2, 3, 4 utilizzando l'equazione (1).
Rapporto = A (M+2) −/ AM− (1)
PS: (M+2) − include (M+2+COOH) − e (M+2) −; M− include (M+COOH) - e M−.
NOTA: Qui, M− si riferisce alle aree di picco combinate delle correnti ioniche per (M+COOH) − e M −, principalmente ionizzate con COOH− in acido formico-acqua. A rappresenta l'area di picco. Ad esempio, le formule per calcolare i rapporti PS VII sono illustrate come segue:
Rapporto+1= (A1030.54+A1076.55)/(A1029.53+A1075.55)
Rapporto+2= (A1031.54+A1077.55)/(A1029.53+A1075.55)
Rapporto+3= (A1032.55+A1078.56)/(A1029.53+A1075.55)
Rapporto+4= (A1033.55+A1079.56)/(A1029.53+A1075.55)
- Per ridurre l'effetto dell'abbondanza naturale di 13C, calcolare i rapporti tra correnti ioniche marcate e non marcate per ciascun organo sottoposto a diversi trattamenti, concentrandosi in particolare sui rapporti (M+1)-/ M-, (M+2)-/M-, (M+3)-/ M-e (M+4)/M-. Per differenziare tra isotopi marcati e naturali per una valutazione accurata dell'incorporazione di 13C, calcolare questi rapporti per n = 1, 2, 3, 4 utilizzando l'equazione (1).
Risultati
Per confermare che l'apporto di 13C6-glucosio nei rizomi ha avuto successo, abbiamo ulteriormente analizzato i rapporti isotopici 13C/12C nei rizomi. I rapporti isotopici 13C/12C dei trattamenti 3 e 4 erano molto più alti di quelli del trattamento 2 (Figura 1A). I risultati hanno indicato che 13C6-glucosio dei trattamenti 3 e 4 sono entrati nei rizomi attraverso l'ingestione.
I rapporti dei picchi di 13isotopi del C, come (M+1) −/M−, (M+2) −/M−, (M+3) −/M− e (M+4) −/M−, rimangono tipicamente costanti. I composti marcati con 13C aggiunto esogenamente hanno la stessa struttura molecolare, pesi molecolari, proprietà fisico-chimiche e tempi di ritenzione simili delle loro controparti non marcate. Tuttavia, quando questi composti marcati sono stati analizzati utilizzando la spettrometria di massa, i rapporti del loro picco di ioni isotopici sono cambiati. Nel nostro studio, abbiamo utilizzato LC-MS per rilevare PS VII e PS II in quattro diversi organi di PPY in vari trattamenti (Figura 3). Rispetto al Trattamento 1, i risultati hanno indicato un aumento significativo del rapporto di PS VII (M+2) −/M− nelle foglie del PPY trattate con 13C esogeno (Figura 3B). In particolare nel Trattamento 2, dove le foglie di PPY sono state spruzzate con 13C6-Glucosio, sono state sintetizzate PS VII marcate con due atomi di 13C. Tuttavia, nel trattamento 4, il rapporto tra le molecole di PS VII (M+2) -/M− nelle foglie non aveva differenze significative tra il rizoma e il trattamento senza alimentazione, e i rapporti tra le molecole di PS VII (M+1) -/M−, (M+3) −/M−, (M+4) −/M− in tutti e quattro i trattamenti non hanno mostrato differenze significative (Figura 3A, C,D). Inoltre, il rapporto tra le molecole di PS II (M+2) -/ M− è aumentato lentamente nel Trattamento 2 (Figura 3F). Non ci sono state differenze notevoli nei rapporti delle molecole di PS II (M+1) -/M− e (M+4) -/M− nelle foglie tra i trattamenti 1 e 2 (Figura 3E, H), mentre il rapporto tra le molecole di PS II (M+3) -/M− ha mostrato una notevole diminuzione delle foglie nel trattamento 2 rispetto al trattamento 1 (Figura 3G). Questi risultati suggeriscono che la sintesi di PS VII avviene effettivamente nelle foglie trattate con 13C6-glucosio, allineandosi con la nota via biosintetica di PSS.
Il nostro approccio suggerisce la foglia come organo primario per la sintesi di PS VII in PPY, in contrasto con la sintesi di PS II. In particolare, il PS VII marcato con 13C era assente nel rizoma dopo il trattamento fogliare con 13C6-glucosio, il che implica un lento trasporto di PS VII dalle foglie ai rizomi. Al contrario, il PS II marcato con 13C è stato rilevato nel rizoma dopo trattamenti di marcatura del fascio vascolare e del rizoma, indicando una possibile sintesi del rizoma in questa fase e richiedendo ulteriori esplorazioni delle posizioni di sintesi del PS II. La rilevazione esclusiva del rapporto (M+2) −/M− per le molecole di PS VII nelle foglie si allinea con il destino metabolico del 13C6-glucosio; dopo l'assorbimento, viene metabolizzato attraverso la glicolisi per produrre acetil-CoA con due isotopi 13C. Considerando il PS come un composto isoprenoide, la sua biosintesi dall'acetil-CoA procede attraverso la via dell'acido mevalonico (MVA) o del 2-C-metil-D-eritritolo-4-fosfato (MEP) (Figura 4), portando alla formazione di (M+2) −/M− PS VII. Pertanto, il nostro studio delinea la foglia come l'organo definitivo per la sintesi di PS VII nella PPY.

Figura 1: Il rapporto tra l'isotopo 13C e l'isotopo 12C nei rizomi di quattro trattamenti. (A) I rapporti tra gli isotopi 13C e 12C nei rizomi dei trattamenti 4 e 3 erano molto più alti di quelli dei trattamenti 1 e 2, indicando che il 13C6-glucosio era entrato significativamente nei rizomi attraverso l'alimentazione radicale. Ogni colonna rappresenta la media (± SE) di tre repliche. Le lettere sulle colonne significano significativamente diverso nel rapporto dell'isotopo 13C/12C in quattro trattamenti (p < 0,05). Abbreviazione: PS = saponine di Parigi . (B) La spettrometria di massa ad alta risoluzione del PS VII (C51H82O21, 1030.5349) ha rilevato il suo ione negativo con un tempo di ritenzione di 16,83 minuti. A causa dell'abbondanza naturale del 13C (con un peso molecolare esatto di 13,003, rispetto al 12C a 12,000), una serie di picchi isotopici tra cui (M−), principalmente (M+1)−, (M+2)−, (M+3)− e (M+4)−, appaiono nello stesso tempo di ritenzione del picco di ioni molecolari PS VII M−. Questi picchi erano principalmente dovuti alla ionizzazione del COOH− nell'acqua dell'acido formico. Un diagramma a barre ingrandito evidenzia questi picchi isotopici. Sono stati calcolati i rapporti di corrente ionica di (M+1)−/M−, (M+2)−/M−, (M+3)−/M− e (M+4)−/M− . Analizzando i cambiamenti in questi rapporti, abbiamo potuto tracciare e dedurre la biosintesi delle saponine. Qui, M− rappresentava le aree di picco combinate della corrente ionica per (M+COOH)- e M−. La Figura 1B è stata modificata da Wen et al.24. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 2: 13C6-Flusso di lavoro per l'etichettatura del glucosio e l'integrazione dei dati. Le piantine sono state etichettate spruzzando e somministrando 0,2% 13C6-glucosio per 3 giorni; quindi, gli estratti di ciascun organo sono stati analizzati isotopicamente mediante LC/MS e GC/IRMS e combinati con l'integrazione dei picchi e i dati per l'analisi organo-specifica della sintesi di PS. (A) Un diagramma schematico che illustra l'alimentazione del glucosio in diversi organi. I trattamenti 1-4 erano senza alimentazione, alimentati rispettivamente in foglia, fascio vascolare e rizoma. (B) Le fasi per l'analisi LC-MS del liquido estratto dal tessuto PPY essiccato attraverso uno strumento di macinazione e soffiaggio di azoto. Abbreviazioni: LC/MS = cromatografia liquida-spettrometria di massa; yunnanensis (Franch.) Mano. -Mzt.; PS = saponina di Parigi. Clicca qui per visualizzare una versione più grande di questa figura.
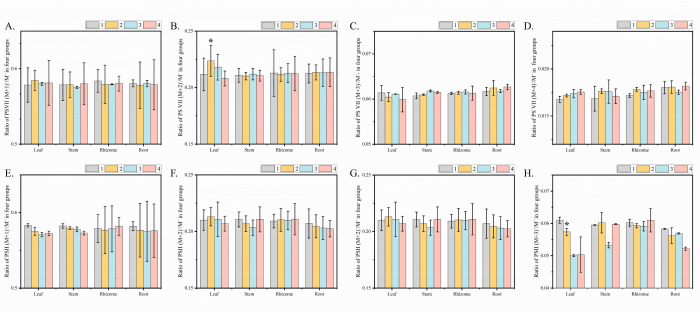
Figura 3: Monitoraggio della biosintesi della saponina di Parigi VII e della saponina II di Parigi attraverso l'alimentazione di organi vegetali con 13C6-glucosio. (A-D) Il rapporto tra le molecole di PS VII (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− in ciascun organo dei quattro trattamenti. Il rapporto tra le molecole di PS VII (M+2) -/M− è aumentato significativamente nelle foglie del Trattamento 2 e del Trattamento 3. Nel fusto, nella radice e nel rizoma, il rapporto tra le molecole di PS VII (M+2) -/M− non ha mostrato differenze evidenti tra i quattro trattamenti. (E-H) Il rapporto tra le molecole di PS VII (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− in ciascun organo dei quattro trattamenti. Rispetto al Trattamento 1, i rapporti delle molecole di PS II (M+2) -/ M− nelle foglie non hanno avuto differenze nel Trattamento 2. Nel Trattamento 2, il rapporto tra le molecole di PS II (M+1) -/M− e (M+4) -/M− non presenta differenze evidenti nelle foglie rispetto al Trattamento 1. I rapporti delle molecole di PS II (M+3) -/M− sono diminuiti nelle foglie rispetto al Trattamento 1. Saponina di Parigi VII, PS VII. Ogni colonna rappresenta la media (± SE) di tre repliche. "*" indicava una differenza significativa rispetto al trattamento senza alimentazione (test t a p < 0,01). Abbreviazione: PS = saponine di Parigi . Clicca qui per visualizzare una versione più grande di questa figura.

Figura 4: Descrizione del PS VII generato dall'ingresso esogeno del 13C6-glucosio nella via MVA. Diagramma schematico del metabolismo dell'acetil coenzima A marcato con 13C6-Glucosio per generare molecole di PS VII (M+2) −/M− attraverso la via MVA. Il carbonio etichettato è mostrato in rosso; Il carbonio non etichettato è grigio. Sotto l'azione della glicolisi, il 13C6-glucosio viene scisso in due molecole di acetil coenzima A (M+2)-, che quindi genera isopentenil pirofosfato e dimetilpropenile pirofosfato attraverso la via MVA, e quindi genera atenolo ciclico tramite la generazione catalitica di geranilgeranil pirofosfato sintasi, farnesil pirofosfato sintasi, squalene sintasi, squalene epossigenasi, cicloatenolo sintasi Cicloartenolo, poi ossidazione, decarbossilazione, riduzione e altre reazioni per ottenere colesterolo, colesterolo attraverso una serie di enzimi del citocromo P450, glicosiltransferasi e furostanoidi saponina 26-O-β-glucosidasi della modifica tardiva della formazione di molecole PS VII contenenti due atomi di carbonio marcati. (M+2) - indica che il COOH- di due atomi di carbonio è ionizzato a questo punto, e il numero di etichette per due atomi di carbonio può essere derivato utilizzando (M+2) -/M-. Utilizzando protocolli standard, il corpo isotopico viene identificato individualmente e le correnti ioniche sono state divise per ottenere dati di marcatura per gli isotopi. Il valore di M− è stabile. Abbreviazione: PS = saponine di Parigi ; PS VII = saponina di Parigi VII; MVA = via del mevalonato; GPPS = Geranilgeranil pirofosfato sintasi; FPPS = farnesil pirofosfato sintasi; SQS = Squalene sintasi; SQE = squalene epossigenasi; CYPs = enzimi del citocromo P450; UGTs = glucuronica transferasi; F26G = Saponina furostanoide 26-O-β-glucosidasi. Clicca qui per visualizzare una versione più grande di questa figura.
Discussione
Il successo dell'implementazione di questo protocollo si basa su una ricerca completa sulle proprietà fisiologiche delle piante, sui tessuti, sugli organi e sui metaboliti secondari. L'approccio di progettazione sperimentale delineato nel protocollo getta solide basi per lo studio delle vie biosintetiche dei metaboliti secondari delle piante. I fattori critici in questo esperimento sono (1) determinare l'età delle piantine perenni e (2) scegliere il corretto momento di marcatura-rilevamento degli isotopi. Le piante medicinali sono classificate in perenni e annuali, ciascuna con diversi modelli di sintesi e accumulo di metaboliti secondari. Questo esperimento mira a chiarire gli organi sintetici primari dei metaboliti secondari nelle piante medicinali analizzando il tasso di sintesi di questi metaboliti. Pertanto, è essenziale selezionare attentamente gli anni e le fasi di crescita che corrispondono a questi modelli e tassi di sintesi.
La PPY è una pianta medicinale perenne e il contenuto di PS si accumula di anno in anno. Tuttavia, è stato dimostrato che il tasso di sintesi di PS non differiva da quello delle piante perenni PPY22. Allo stesso tempo, le dimensioni più piccole delle piantine di 2 anni rispetto a quelle più vecchie facilitano l'idroponica. Quindi, questo studio ha utilizzato piantine PPY di 2 anni. Ciò garantisce che le piante selezionate mostrino il più alto tasso di sintesi di metaboliti secondari. È fondamentale riconoscere la variazione nella sintesi e nei tassi di trasporto dei metaboliti secondari tra le diverse specie23. La lunghezza ottimale per il periodo di rilevamento dell'etichettatura è determinata da queste velocità. La ricerca indica che il contenuto di zucchero e PS nelle foglie di PPY diminuisce entro 3 giorni24, suggerendo un lento processo di trasporto per PS a causa del loro notevole peso molecolare, che difficilmente verrà completato entro questo lasso di tempo. Una durata del trattamento inferiore a poche ore potrebbe portare a difficoltà di sintesi e rilevamento inadeguate per PS 5,25 marcato. Al contrario, prolungare il trattamento oltre i 3 giorni rischia di traslocare il PS dalle foglie al rizoma, il che potrebbe distorcere i risultati sperimentali. Pertanto, viene selezionato un periodo di marcatura intermedio di 3 giorni per ridurre al minimo l'interferenza degli organi, in particolare per i metodi di spruzzatura fogliare e di marcatura del rizoma, garantendo così risultati sperimentali più accurati.
Precedenti studi di marcatura isotopica su Nicotiana tabacum26,27 e Brassica napus28 avevano dimostrato il successo dell'assorbimento e dell'integrazione del 13C6-glucosio nei tessuti vegetali. Nella nostra ricerca, ci siamo concentrati su piantine PPY di 2 anni coltivate in idroponica, implementando trattamenti di alimentazione a 13C6-glucosio per foglie, rizomi e fasci vascolari di fusti, insieme a trattamenti di controllo non di alimentazione. Utilizzando il rilevamento LC-MS, abbiamo scoperto che entro il terzo giorno dopo la marcatura, il rapporto 13C/12C nei rizomi provenienti dai trattamenti di alimentazione staminale-vascolare e rizoma era significativamente più alto rispetto ai controlli non alimentati, confermando l'efficace assimilazione del 13C6-glucosio e il successo del nostro approccio di marcatura (Figura 2). Nel nostro studio, abbiamo analizzato simultaneamente quattro tipi di rapporti di picco ionico isotopico per le molecole PS VII e PS II in quattro diversi organi di PPY: (M+1) −/M−, (M+2) −/M−, (M+3) −/M− e (M+4) −/M−. È importante sottolineare che abbiamo osservato che nel trattamento di marcatura delle foglie, i rapporti della molecola PS VII (M+2) −/M− nelle foglie erano notevolmente più alti rispetto al trattamento senza alimentazione. Il rapporto tra le molecole di PS VII (M+2) -/M− nelle foglie sotto il rizoma e nel trattamento di non alimentazione senza differenza (Figura 3B). Inoltre, rispetto al trattamento di non alimentazione, il rapporto tra la molecola di saponine di Paris II (PS II) (M+2) −/M− nelle foglie sottoposte a trattamento di alimentazione fogliare senza differenze significative, e i rapporti tra le molecole di PS II (M+3) −/M− nelle foglie sottoposte a trattamento di alimentazione fogliare erano inferiori (Figura 3G). I trattamenti di marcatura staminale-vascolare e del rizoma hanno mostrato differenze significative nei rapporti delle molecole di PS II (M+1) −/M− e (M+4) −/M− nei rizomi rispetto al trattamento non alimentare (Figura 3E, H).
Quando si adatta questo approccio ad altre piante medicinali, è fondamentale selezionare composti marcatori su misura per i precursori dei metaboliti secondari primari della pianta, garantendo la specificità del marcatore. Se il composto bersaglio viene sintetizzato principalmente nello stelo, il composto marcante dovrebbe essere in grado di essere trasportato e metabolizzato in modo efficiente nello stelo. Rivalutare la via di sintesi se i rapporti isotopici attesi, come (M+2) -/M− per PS VII, sono assenti, confermando l'idoneità dei composti marcanti. Potrebbe essere necessario regolare la concentrazione del composto marcante nella soluzione nutritiva per garantire un adeguato assorbimento e integrazione nei composti target all'interno dell'organo desiderato. I parametri di rilevamento LC-MS possono richiedere un'ottimizzazione per rilevare efficacemente gli specifici metaboliti marcati di interesse. Ciò potrebbe comportare la regolazione delle impostazioni della spettrometria di massa, come la modalità di ionizzazione, per migliorare la sensibilità e la specificità dei composti unici per la specie vegetale e l'organo in esame. Se i rapporti 13C/12C non vengono rilevati nei rizomi dai trattamenti di marcatura staminale-vascolare e rizoma, la concentrazione di 13C6-glucosio nella soluzione nutritiva di Hoagland e la durata della marcatura devono essere aumentate fino a quando non è possibile rilevarlo. I metodi di alimentazione e le tecniche analitiche di 13C6-glucosio stabiliti in questo studio dovrebbero guidare l'analisi e l'interpretazione dei risultati per l'identificazione degli organi di sintesi dei metaboliti secondari in varie piante medicinali.
I trattamenti di alimentazione e non alimentazione del 13C6-glucosio per foglie, rizomi e fasci staminali-vascolari in questo esperimento offrono una maggiore specificità nell'identificazione degli organi di sintesi dei metaboliti secondari rispetto ai tradizionali metodi di marcatura degli isotopi del carbonio. Ciononostante, le sfide rimangono. Una limitazione chiave è l'assenza di un calendario unico per l'etichettatura e il rilevamento adatto a tutte le piante medicinali. La selezione di un intervallo di tempo ottimale migliora l'efficacia dell'etichettatura. Inoltre, l'utilizzo dei rapporti per analizzare i risultati complica la differenziazione delle posizioni dei gruppi funzionali in isomeri grandi e complessi. Pertanto, si consiglia un'approfondita revisione della letteratura ed esperimenti preliminari prima di utilizzare questa metodologia. Questa strategia non solo garantisce l'accuratezza e l'efficienza, ma ha anche implicazioni significative per la biologia vegetale e la farmacologia. L'integrazione di questo metodo con la spettroscopia di risonanza magnetica nucleare, una tecnica leader per l'analisi delle strutture dei composti organici, consente l'identificazione precisa delle posizioni di marcatura a 13C. Questo metodo apre la strada all'esplorazione delle vie biosintetiche dei metaboliti secondari delle piante, presentando un approccio dettagliato ed efficace per determinare la specificità degli organi nella sintesi dei metaboliti secondari nelle piante medicinali.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari concorrenti.
Ringraziamenti
Questo lavoro è stato finanziato dalla National Natural Science Foundation of China's Youth Program (n. 82304670).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 0,1% acqua di acido formico | Chengdu Kelong fabbrica di reagenti chimici | 44890 | |
| 13< / sup>C6< / sub>-glucosio in polvere | MERCK | 110187-42-3 | |
| acetonitrile | Chengdu Kelong fabbrica di reagenti chimici | 44890 | |
| AUTOCAMPIONATORE FIALE | Biosharp Biotechnology Company | 44866 | |
| BEH C18 colonna | Acque, Milfor, MA | 1.7μ m,2.1*100 mm | |
| Pulitore ad ultrasuoni CNC | Kunshan Ultrasound Instrument Co., Ltd | KQ-600DE | |
| Compound DiscovererTM software | Thermo Scientific, Fremont,CA | 3 | |
| Compound DiscovererTM | Thermo Scientific, Fremont, CA | 3 | |
| Forno | DHG-9146A | ||
| Bilancia analitica elettronica | Sedolis Scientific Instruments Beijing Co., Ltd | SOP | |
| Etanolo | Chengdu Kelong Chemical Reagent Factory | 44955 | |
| Macinatore rapido per campioni completamente automatico | Tecnologia Shanghai Jingxin | Tissuelyser-48 | |
| Gas Cromatografia-Rapporto isotopico stabile Spettrometro di massa | Thermo Fisher | Delta V Advantage | |
| Hoagland Solution | Sigma-Aldrich | H2295-1L | |
| Serbatoio idroponico | JRD | 1020421 | |
| Software Isodat | Thermo Fisher Scientific | 3 | |
| Cromatografia liquida spettrometria di massa ad alta risoluzione | Agilent Technology | Agilent 1260 -6120 | |
| Strumento di produzione di azoto | PEAK SCIENTIFIC | Genius SQ 24 | |
| Filtro in fase organica | Tianjin Jinteng Experimental Equipment Co., Ltd | 44890 | |
| Pompa di ossigeno | Magic Dragon | MFL | |
| Quantum sensore | Highpoint | UPRtek | |
| Scalpel | Handskit | 11-23 | |
| Aspersione può | CHUSHI | WJ-001 | |
| Xcalibur software | Thermo Fisher Scientific | 4.2 |
Riferimenti
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
Ristampe e permessi
