Presentiamo un protocollo per la preparazione di condensati biomolecolari sintetici costituiti da nanostelle di DNA anfifilico a partire dai loro oligonucleotidi di DNA costituenti. I condensati sono prodotti da un singolo componente nanostar o da due componenti e sono modificati per sostenere la trascrizione in vitro dell'RNA da un modello di DNA incorporato.
Articolo metodologico
Condensati sintetici e architetture simili a cellule da nanostrutture di DNA anfifilico
In questo articolo
Sommario
Abstract
Le goccioline e i condensati sintetici stanno diventando costituenti sempre più comuni dei sistemi biomimetici avanzati e delle cellule sintetiche, dove possono essere utilizzati per stabilire la compartimentazione e sostenere risposte simili alla vita. Le nanostrutture di DNA sintetico hanno dimostrato un potenziale significativo come blocchi costitutivi per la formazione di condensati grazie alla loro forma programmabile, alla funzionalizzazione chimica e al comportamento di autoassemblaggio. Abbiamo recentemente dimostrato che le "nanostelle" di DNA anfifilico, ottenute marcando giunzioni di DNA con frazioni idrofobiche, costituiscono una soluzione particolarmente robusta e versatile. I condensati di DNA anfifilico risultanti possono essere programmati per visualizzare architetture interne complesse e multicompartimentali, rispondere strutturalmente a vari stimoli esterni, sintetizzare macromolecole, catturare e rilasciare carichi utili, subire trasformazioni morfologiche e interagire con cellule vive. Qui, dimostriamo i protocolli per la preparazione di condensati di DNA anfifilico a partire dagli oligonucleotidi di DNA costituenti. Affronteremo (i) i sistemi a singolo componente che formano condensati uniformi, (ii) i sistemi a due componenti che formano i condensati core-shell e (iii) i sistemi in cui i condensati sono modificati per supportare la trascrizione in vitro di nanostrutture di RNA.
Introduzione
Le cellule sintetiche sono dispositivi su scala micrometrica (10-50 μm) costruiti dal basso verso l'alto per replicare funzioni e strutture di cellule biologiche esistenti 1,2. Le cellule sintetiche sono spesso legate da membrane costituite da vescicole a doppio strato lipidico 3,4,5,6,7, polimerisomi 8,9 o proteinosomi10,11, che possono anche essere utilizzate per stabilire la compartimentazione interna12,13. Ispirate agli organelli senza membrana noti per sostenere varie funzionalità nelle cellule viventi14, strutture come i coacervati polimerici, i condensati biomolecolari e gli idrogel stanno guadagnando terreno come alternative versatili e robuste per stabilire la compartimentazione sia esterna che interna nelle cellule sintetiche 15,16,17,18.
Sfruttando il versatile kit di strumenti della nanotecnologia del DNA19, sono state sviluppate molteplici soluzioni per ingegnerizzare goccioline e condensati sintetici dall'autoassemblaggio di nanostrutture di DNA artificiale, le cui dimensioni, forma, funzionalità, valenza e interazioni reciproche possono essere programmate con precisione20. Le goccioline o i condensati di DNA sono biocompatibili e possono fungere da impalcature sia per le cellule sintetiche che per gli organelli, ospitando reazioni chimiche e biomolecolari21, calcolando informazioni22,23, catturando e rilasciando carichi24,25 e sostenendo le risposte strutturali26.
Tra i diversi progetti di nanostrutture di DNA che formano condensati, le nanostelle di DNA anfifilico - soprannominate stelle C - si sono dimostrate robuste e versatili27. Le stelle C sono semplici motivi ramificati costituiti da una giunzione fissa del DNA (tipicamente a quattro vie), dacui emergono bracci di DNA a doppio filamento (ds). I bracci vengono quindi ricoperti di frazioni idrofobiche, tipicamente colesterolo, rendendo le nanostrutture anfifiliche e guidando la loro condensazione dopo una semplice ricottura one-pot. I condensati C-star offrono una precisa programmabilità strutturale e funzionale, inclusa la possibilità di stabilire architetture multicompartimentali29,30, rispondere strutturalmente ai trigger di DNA e cationi31, sintetizzare macromolecole29, catturare e rilasciare carichi utili32 e interagire con cellule vive33. Di seguito, descriveremo e discuteremo i protocolli per produrre condensati di stelle C a partire dai loro oligonucleotidi costituenti.
Il protocollo riassume la preparazione di condensati unari (monocomponenti) e binari (bicomponenti), utilizzando tre diversi design C-star (Figura 1): "Non responsivo", "TMSD-responsivo" e "RNA-templante". La stella C "non responsiva" (pannello A) è costituita da quattro "filamenti centrali" con sequenze distinte che formano la giunzione a quattro vie. Quattro oligonucleotidi identici modificati con colesterolo sono collegati alla giunzione, assicurando che una molecola di colesterolo sia presente all'estremità di ciascun braccio. Le stelle C non responsive costituiscono semplici scaffold inerti per condensati unari e binari. Nella stella C "TMSD-responsive" (pannello B), la connessione tra i filamenti colesterolemizzati e la giunzione è assicurata da un filamento "Toeholding bridge", che presenta un dominio "toehold" di DNA a filamento singolo (ss). In presenza di un filamento di DNA invasore con un dominio di toehold complementare, può essere innescata una reazione di spostamento del filamento mediata da toehold34, per cui l'invasore sposta il ponte di Toeholding, rompendo la connessione tra la giunzione e le frazioni idrofobiche e innescando il disassemblaggio della rete di DNA32. Infine, la C-star "RNA templating" (pannello C) include una modifica "Base" complementare a un filamento "Bridge", quest'ultimo dei quali collega il modello di ssDNA trascrivibile per l'aptameroBroccoli 29. I dettagli della sequenza degli oligonucleotidi costituenti per i tre tipi di disegni di stelle C qui menzionati possono essere trovati nella Tabella supplementare 1 e in lavori precedenti 29,30,32.

Figura 1. Schemi di tre diversi disegni di nanostelle di DNA anfifilico (C-stars). Le sequenze oligonucleotidiche per vari esempi di stelle C qui descritte possono essere trovate nella Tabella supplementare 1. (A) Schema di una stella C destinata a formare condensati non responsivi, con i filamenti di oligonucleotidi componenti "Core 1", "Core 2", "Core 3", "Core 4" (colorati in tonalità di rosa) e "Colesterolo terminale" (colorati in blu). Ogni colore unico rappresenta un filamento di oligonucleotidi di sequenza unica. "Core 1" e "Core 3" sono parzialmente complementari a "Core 2" e "Core 4", ma non complementari l'uno all'altro. (B) Schema di una stella C progettata per disassemblarsi all'aggiunta di un filamento invasore attraverso lo spostamento del filamento mediato dall'appoggio, come descritto nel precedente lavoro32. Questa stella C è composta da filamenti "Core" e "Colesterolo terminale" (colorati in grigio), nonché da un "complemento terminale" (mostrato in arancione) e da un filamento "Toeholding bridge" (mostrato in verde acqua scuro). Quest'ultimo contiene una sporgenza di sei nucleotidi a cui un filamento invasore opportunamente progettato può legarsi e successivamente spostare completamente il filamento del "ponte di Toeholding", che provoca la dissociazione della giunzione nanostella centrale (composta da "Core 1, 2, 3 e 4") dai duplex composti dai filamenti "Complemento terminale" e "Colesterolo terminale". (C) Schema di una stella C funzionalizzata con un modello di DNA per un aptamero di RNA. Anche questo è composto dal filamento "Colesterolo terminale" e "Nucleo 2, 3 e 4" (tutti mostrati in grigio), così come una versione estesa del filamento "Nucleo 1" (mostrato in rosa), un filamento "Base" (marrone), un filamento "Ponte" (giallo) e il "modello Aptamero" (verde). Il duplex di DNA composto dagli ultimi due filamenti forma la regione del promotore della polimerasi T7, che segna il sito di inizio della trascrizione. Clicca qui per visualizzare una versione più grande di questa figura.
I condensati C-star si formano in seguito alla ricottura termica degli oligonucleotidi costituenti, che nel protocollo qui presentato viene condotta all'interno di capillari di vetro sigillati con una sezione trasversale rettangolare ad alto rapporto d'aspetto. Questi contenitori offrono molteplici vantaggi chiave: i) La sigillatura assicura che l'evaporazione sia completamente impedita durante le (a volte lente) fasi di ricottura; ii) Il fondo piatto dei capillari di qualità ottica consente l'imaging del transitorio di autoassemblaggio (o smontaggio); iii) l'elevato rapporto d'aspetto dei capillari assicura che le condense pesanti si depositino su un'area ampia e piana, riducendo le possibilità di coalescenza e aggregazione nelle fasi successive del transitorio di auto-assemblaggio che si verificherebbe in contenitori a forma di cuneo (ad esempio, provette per microcentrifuga) e producendo popolazioni di condensato relativamente monodisperse; iv) L'esecuzione della ricottura in un capillare di vetro allungato riduce al minimo l'esposizione del campione alle interfacce idrofobiche (aria, plastica o olio), che sono state osservate perturbare l'autoassemblaggio reclutando gli oligonucleotidi anfifilici colesterolosi. Una volta completato il protocollo di assemblaggio, i condensati possono essere estratti dai capillari di vetro per ulteriori esperimenti che coinvolgono reagenti aggiuntivi.
Protocollo
NOTA: Il protocollo è diviso in tre sezioni. La sezione 1 descrive le fasi preliminari, compresa la preparazione degli oligonucleotidi del DNA e dei capillari di vetro. La sezione 2 descrive la preparazione di condensati C-star di varie versioni, comprese quelle monocomponenti e bicomponenti, e la loro estrazione dai capillari di vetro. La sezione 3 descrive l'uso di condensati di stelle C che templano l'RNA monocomponente per la sintesi di un aptamero di RNA. L'utente deve seguire le buone pratiche di laboratorio per tutto il tempo, assicurarsi che siano in atto tutte le valutazioni e le mitigazioni dei rischi necessarie e indossare dispositivi di protezione individuale (DPI) adeguati, inclusi guanti, occhiali di sicurezza e camice da laboratorio. La pulizia dei tubi capillari in vetro richiede la loro sonicazione, prima in una soluzione di tensioattivo e poi in isopropanolo o etanolo. L'estrazione dei condensati C-star dai tubi capillari richiede l'uso di una penna per incisione a diamante per incidere e spezzare il vetro, con il rischio associato di lesioni da frammenti di vetro. I materiali, le attrezzature e i reagenti chiave utilizzati sono elencati nella Tabella dei materiali. La maggior parte degli oligonucleotidi non funzionalizzati viene purificata dal fornitore utilizzando la desalinizzazione standard, ad eccezione dei filamenti "Extended Core 1" e "Aptamer template", che vengono ordinati con purificazione con elettroforesi su gel di poliacrilammide (PAGE). Gli oligonucleotidi modificati con colesterolo vengono purificati dal fornitore mediante cromatografia liquida ad alte prestazioni (HPLC) in fase inversa.
1. Prerequisiti
NOTA: Le seguenti soluzioni devono essere preparate in acqua ultrapura (Tipo I) e filtrate utilizzando filtri per siringhe da 0,22 μm: tampone Tris-EDTA (TE), comprendente 10 mM di Tris, 1 mM EDTA, a pH ~8,0; tampone TE integrato con 2 M di NaCl; e tampone TE integrato con 0,3 M di NaCl. Le soluzioni tampone devono essere utilizzate entro 2 settimane dalla preparazione e conservate a 4 °C quando non vengono utilizzate. Inoltre, per la pulizia dei capillari in vetro verrà utilizzata una soluzione all'1% di detergente ottico alcalino in acqua ultrapura.
- Preparazione di oligonucleotidi di DNA da stato liofilizzato
- Centrifugare brevemente (2000 x g per 10-30 s) le provette di oligonucleotidi di DNA liofilizzato per garantire che i pellet di DNA liofilizzato si raccolgano sul fondo.
NOTA: La centrifugazione viene eseguita a temperatura ambiente (RT) per 10-30 s. La mini centrifuga utilizzata qui ha un valore predefinito di 2000 x g (6000 giri/min). - Aggiungere la quantità appropriata di tampone TE per ricostituire ciascun oligonucleotide a 100 μM. Vorticare accuratamente per garantire la completa dissoluzione, quindi far girare le provette per raccogliere tutto il liquido come indicato al punto 1.1.1.
- Per ogni soluzione madre, misurare l'assorbanza a 260 nm e calcolare la concentrazione finale utilizzando il coefficiente di estinzione della sequenza oligonucleotidica in prova.
NOTA: Il coefficiente di estinzione per una data sequenza di oligonucleotidi si trova solitamente sulla scheda tecnica del fornitore, ma può anche essere calcolato con strumenti online utilizzando il modello del vicino più vicino35 o i valori tabulati del coefficiente di estinzione dei singoli nucleotidi36. - Conservare gli oligonucleotidi reidratati a 4 °C per brevi periodi di tempo (fino a 1 settimana) o a -20 °C per una conservazione a lungo termine (fino a 6 mesi).
- Centrifugare brevemente (2000 x g per 10-30 s) le provette di oligonucleotidi di DNA liofilizzato per garantire che i pellet di DNA liofilizzato si raccolgano sul fondo.
- Pulizia dei tubi capillari in vetro
- Sonicare in detergente ottico alcalino all'1% per componenti ottici in acqua deionizzata.
- Prelevare il numero necessario di provette capillari di vetro da pulire e metterle in un contenitore alto e stretto (ad es. un becher o una provetta da centrifuga da 15/50 mL) in modo che i capillari non siano piatti sulla base del contenitore.
- Aggiungere il detersivo nel contenitore, riempiendolo appena sopra il livello dei tubi capillari. Assicurarsi che non vi siano bolle d'aria intrappolate all'interno dei tubi capillari - picchiettare per rimuoverle, se necessario. Coprire liberamente il contenitore (ad es. con carta stagnola o utilizzando il coperchio della provetta da centrifuga, assicurandosi che non sia ben chiuso).
- Impostare un bagnomaria sonicante a 40 °C, posizionare il contenitore coperto in posizione verticale nella vasca e sonicare per 30 minuti. Assicurarsi che la pellicola, se utilizzata, non entri in contatto con l'acqua nel bagno sonicante.
NOTA: Il bagno sonicante utilizzato in questo studio ha una frequenza di sonicazione predefinita di 60 Hz e una potenza di sonicazione di 150 W.
ATTENZIONE: Non aggiungere o rimuovere mai oggetti da un bagno sonicante durante il funzionamento; Metti sempre in pausa prima il protocollo. - Una volta completata la sonicazione, spegnere l'elemento riscaldante del bagnomaria sonicante, quindi sciacquare accuratamente i capillari nel contenitore con acqua deionizzata o ultrapura, almeno cinque volte, scartando ogni volta l'acqua di risciacquo.
- Sonicare in detergente ottico alcalino all'1% per componenti ottici in acqua deionizzata.
- Sonicato in isopropanolo o etanolo.
- Ai tubi capillari di vetro nel contenitore per la pulizia, aggiungere isopropanolo o etanolo (minimo 70%), riempiendo appena sopra il livello dei tubi capillari. Come al punto 1.2.1.2, assicurarsi che non vi siano bolle d'aria intrappolate nei tubi capillari e coprire il contenitore in modo allentato.
- Posizionare il contenitore in posizione verticale nel bagno sonicante e sonicare per 15-30 minuti.
ATTENZIONE: L'isopropanolo e l'etanolo sono infiammabili, con punti di infiammabilità inferiori a RT. Ridurre al minimo i volumi di solventi utilizzati durante la pulizia scegliendo un contenitore di dimensioni adeguate, assicurarsi che i contenitori siano coperti in modo lasco e non lasciare il bagno sonicante incustodito durante questa fase. - Una volta completata la sonicazione, smaltire in modo appropriato l'isopropanolo o l'etanolo e asciugare i capillari sotto azoto, maneggiandoli con un panno privo di lanugine.
2. Preparazione ed estrazione dei condensati C-star (Figura 2)
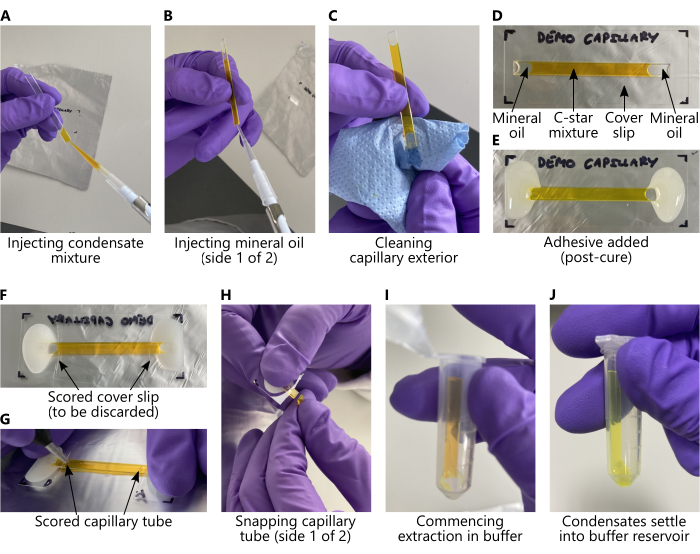
Figura 2: Caricamento di miscele C-star ed estrazione di condensa da tubi capillari di vetro. In tutti i pannelli, la miscela C-star è stata sostituita con una soluzione acquosa di 25 mM di calceina per favorire la visibilità. (A-E) Passaggi chiave, in ordine, da adottare prima della ricottura, corrispondenti alle sezioni 2.1 e 2.2 del protocollo. (F-J) Passaggi chiave, nell'ordine, da adottare dopo la ricottura, corrispondenti alla sezione 2.3 del protocollo. Durante l'estrazione (pannelli (I-J)), i condensati di DNA sedimentano dal capillare nel serbatoio tampone finché la provetta per microcentrifuga è conservata verticalmente. Le condense non saranno visibili ad occhio nudo. Clicca qui per visualizzare una versione più grande di questa figura.
- Preparazione di miscele C-star per condensati monocomponenti
NOTA: I dettagli della sequenza per i vari progetti di singoli componenti possono essere trovati nella Tabella supplementare 1 e nei lavori precedenti 29,30,32. I protocolli di ricottura lenta definiti nelle fasi 2.1.9 e 2.2.2 sono stati sviluppati per garantire il rilassamento delle reti di nanostelle in morfologie compatte, date le proprietà reologiche fortemente dipendenti dalla temperatura delle reti di nanostelle37.- I componenti dell'oligonucleotide e del tampone variano a seconda del design della stella C desiderato. Preparare una miscela da 60 μl di condensati di stelle C monocomponenti a una concentrazione di 5 μM per la stella C a quattro bracci non responsiva, la stella C sensibile al TMSD o la stella C che templa l'RNA.
- Per ogni progetto, pipettare i componenti appropriati elencati nella Tabella 2 supplementare in una provetta per microcentrifuga separata e miscelare accuratamente mediante pipettaggio.
NOTA: Si presume che tutte le soluzioni madre di oligonucleotidi siano a una concentrazione di 100 μM in TE. - Prelevare tutti i 60 μl di soluzione C-star e pipettare con cura per iniettare la miscela nel tubo capillare di vetro pulito e asciutto come mostrato nella Figura 2A, facendo attenzione a evitare l'introduzione di bolle d'aria.
- Utilizzando una pipetta, iniettare circa 9-12 μL di olio minerale in ciascuna estremità del tubo capillare, tappando il campione in modo che non vi sia un'interfaccia libera tra la soluzione C-star e l'aria (vedere Figura 2B). Quindi, asciugare accuratamente il tubo capillare con carta velina per assicurarsi che non sia presente olio all'esterno (Figura 2C), facendo attenzione a non espellere l'olio minerale o la soluzione C-star dal tubo capillare. Il risultato finale è illustrato nella Figura 2D.
- Preparare un piccolo lotto di colla epossidica bicomponente per far aderire ciascuna estremità del tubo capillare, con il lato piatto rivolto verso il basso, a un vetrino coprivetro. Assicurarsi che le aperture del tubo siano completamente ricoperte di colla, formando una tenuta continua, come mostrato nella Figura 2E.
- Mettere da parte a polimerizzare per un minimo di 3 ore, ma preferibilmente durante la notte.
- Dopo ~30 minuti di indurimento, ispezionare lo strato di colla per verificare la presenza di spazi vuoti nella guarnizione causati da bolle d'aria. Se questi sono presenti, sigillarli con una piccola quantità di colla.
- Avvolgere il tubo capillare incollato al vetrino coprioggetti in un foglio di stagnola, assicurandosi che la pellicola sia mantenuta piatta sul lato inferiore del vetrino. La lamina garantisce un buon contatto termico tra la stessa e l'elemento riscaldante del termociclatore (vedi passaggio successivo).
- Posizionare il campione avvolto in un termociclatore e ricuocere utilizzando il seguente protocollo: Mantenere a 95 °C per 30 minuti, quindi raffreddare da 85 °C a 50 °C a -0,04 °C·min-1, quindi raffreddare da 50 °C a RT a -0,5 °C·min-1.
- Conservare i condensati C-star ricotti a 4 °C o RT per periodi prolungati (mesi) finché il capillare rimane sigillato, poiché la ricottura termica sterilizza efficacemente il campione e denatura le nucleasi. Mantenere il capillare piatto durante lo stoccaggio e la manipolazione per evitare che la condensa si sedimenti verso un'estremità e si aggreghi.
- Preparazione di miscele C-star per condensati binari
NOTA: Per informare la selezione delle popolazioni di stelle C per i sistemi binari, fare riferimento al lavoro di Malouf et al., che descrive le regole di progettazione e il comportamento di fase atteso dei condensati binari di stelle C30.- Per preparare i condensati binari, combinare volumi di 30 μl delle miscele C-star descritte nella fase 2.1 sopra per un volume totale di 60 μl, mescolare accuratamente, caricare nei capillari e seguire i passaggi 2.1.4-2.1.8.
- Posizionare il campione avvolto in un termociclatore e ricuocere utilizzando il seguente protocollo: Mantenere a 95 °C per 30 minuti, quindi raffreddare da 85 °C a 40 °C a -0,01 °C·min-1, quindi raffreddare da 40 °C a RT a -0,1 °C·min-1.
- Estrazione di condensati C-star da tubi capillari.
- Preparare una provetta per microcentrifuga grande (1,5 mL o 2,0 mL) contenente 60 μl di NaCl 0,3 M in tampone TE.
- Scartare il campione capillare e utilizzare una penna a diamante per incidere la parte inferiore del vetrino coprioggetti a ciascuna estremità interna dell'area incollata (Figura 2F). Rompi il vetrino coprioggetti in questa regione e gettalo in modo appropriato.
- Pulire accuratamente i tubi capillari con etanolo e asciugarli.
- Incidere ciascuna estremità dei tubi capillari con la penna a diamante, prima con la parte inferiore (Figura 2G), poi capovolgendo e incidendo i tubi "con il diritto rivolto verso l'alto".
- Assicurarsi che le linee di incisione non si sovrappongano all'interfaccia olio-acqua. Devono trovarsi all'interno della regione acquosa per evitare che l'olio rimanga nel campione estratto.
- Staccare le estremità dei tubi capillari (Figura 2H), trattenendo la parte centrale del tubo e scartando il resto. Posizionare la provetta capillare tagliata nella provetta per microcentrifuga preparata al punto 2.3.1, assicurandosi che la parte inferiore della provetta capillare entri in contatto con la soluzione tampone (Figura 2I).
- Le condense sedimenteranno dal tubo nel serbatoio tampone per gravità; lasciare che ciò avvenga per un minimo di 10 minuti (Figura 2J). Rimuovere il tubo capillare tagliato e gettarlo in modo appropriato. Questo approccio di estrazione delicato limita il rischio di aggregazione della condensa.
3. Trascrizione di un aptamero di RNA da condensati di stelle C che templano l'RNA
NOTA: Per la produzione dell'aptamero dell'RNA del broccolo, è necessaria una soluzione di difluoro-4-idrossibenzilidene imidazolidinone (DFHBI) - la polvere di DFHBI viene prima preparata come soluzione madre a 10 mM in dimetilsolfossido (DMSO), che viene poi diluita a 600 μM in acqua priva di RNasi e DNasi.
- Lavaggio di condensati C-star che templano l'RNA
NOTA: I condensati di stelle C che templano l'RNA vengono lavati tre volte per garantire la rimozione degli oligonucleotidi stampo non legati.- Lasciare riposare la soluzione dei condensati estratti per almeno 5 minuti, quindi rimuovere circa la metà del volume del surnatante.
- Per un volume di 60 μl di condensati estratti, rimuovere tra 25-30 μl di surnatante.
- Pipettare dalla parte superiore del livello del liquido per ridurre al minimo il numero di condensa rimosse durante questa fase.
- Aggiungere lo stesso volume di NaCl 0,3 M in TE per sostituire il surnatante rimosso e miscelare mediante pipettaggio.
- Ripetere i due passaggi precedenti per un totale di tre cicli.
- Lasciare riposare la soluzione dei condensati estratti per almeno 5 minuti, quindi rimuovere circa la metà del volume del surnatante.
- Preparazione della miscela di trascrizione T7
NOTA: La miscela di trascrizione T7 viene preparata utilizzando il kit di trascrizione CellScript T7-FlashScribe. Il passaggio 3.2.2 è una modifica del protocollo del produttore, che può essere trovato qui38. Qui descriviamo la trascrizione dell'aptamero dell'RNA di broccoli, che induce la fluorescenza in DFHBI al momento del legame. Per altri aptameri luminosi, sostituire il volume di DFHBI descritto al punto 3.2.2 con il fluorogeno appropriato. Per altre trascrizioni, rimuovere completamente questo componente.- Preparare una soluzione madre di 10 mM di DFHBI in DMSO, quindi diluire un'aliquota fino a una concentrazione finale di 600 μM utilizzando acqua priva di RNasi e DNasi.
- Scongelare i componenti del kit di trascrizione con ghiaccio e quindi pipettare quanto segue in una provetta da microcentrifuga autoclavata a temperatura ambiente utilizzando puntali per pipette sterili: 2 μL di tampone di trascrizione T7x 10x (fornito nel kit di trascrizione), 1,8 μL di ATP 100 mM, 1,8 μL di CTP 100 mM, 1,8 μL di UTP 100 mM, 1,8 μL di GTP 100 mM, 2 μL di 100 mM DTT, 2 μL di 600 μM DFHBI, 0,5 μL di inibitore della RNasi, 2 μL di soluzione enzimatica T7 (fornita nel kit di trascrizione).
- Miscelare delicatamente la soluzione mediante pipettaggio.
- Utilizzare la miscela di trascrizione per la fase 3.3 (sintesi del trascritto dell'RNA) subito dopo la preparazione.
- Sintesi del trascritto dell'RNA
- In una camera adatta per l'imaging al microscopio, pipettare 3,3 μL dei condensati lavati preparati da stelle C RNA-templanti e aggiungere il volume totale della miscela di trascrizione preparata in precedenza.
- Acquisire immagini al microscopio per una durata di 18 ore, iniziando immediatamente dopo aver aggiunto la miscela di trascrizione ai condensati.
NOTA: Le impostazioni della microscopia dipendono dal sistema preparato. Assicurarsi che vengano utilizzate le impostazioni di eccitazione ed emissione appropriate per tutti i fluorofori nel campione, insieme a tempi di esposizione che non portino alla saturazione con il progredire della trascrizione. Come per qualsiasi time-lapse, è necessario trovare un compromesso tra una potenza laser o LED sufficientemente elevata per un buon segnale, riducendo al minimo il rischio di fotosbiancamento. Il fotosbiancamento per lunghi periodi di tempo sarà ridotto al minimo nei sistemi basati su LED rispetto ai sistemi basati su laser. Intervalli di imaging consigliati: 20 minuti per le prime 2 ore e 30 minuti successivamente.
Risultati
Dopo la ricottura, i condensati C-star possono essere riprodotti direttamente nel tubo capillare o dopo l'estrazione, per confermarne la formazione. Per tutte le variazioni di design delle stelle C, si dovrebbero osservare condensati sferici o poliedrici distinti di circa 10-50 μm di diametro, questi ultimi che si formano quando avviene la cristallizzazione28,32. Per i condensati monocomponenti, i condensati devono essere discreti e uniformi nell'aspetto e possono apparire poliedrici (Figura 3A) o sferici (Figura 3B, C) a seconda del design a stella C utilizzato. La morfologia dei condensati binari dipende dalle proprietà delle popolazioni di stelle C utilizzate, come descritto in precedenza30. La Figura 3D mostra condensati binari che mostrano una separazione di fase, osservabile nell'imaging in campo chiaro. La presenza di bolle d'aria nel tubo capillare può anche interferire con l'autoassemblaggio delle condense, provocando spesso l'aggregazione vicino all'interfaccia dell'aria (Figura 4A, B). Le miscele preparate in modo errato, come quelle prive di componenti oligonucleotidici o quelle preparate con stechiometrie sbilanciate, possono causare la mancata formazione di condensati o la formazione di reti o aggregati collegati non sferici come nella Figura 4C. Allo stesso modo, i condensati binari preparati in modo errato possono mostrare aggregazione e reti e possono anche non mostrare alcuna separazione di fase osservabile, come mostrato nella Figura 4D.
Per la trascrizione degli aptameri light-up dell'RNA, si osserverà un risultato positivo monitorando l'aumento della fluorescenza del fluorogeno nel tempo, ad esempio tramite microscopia (Figura 5) o spettrofotometria.
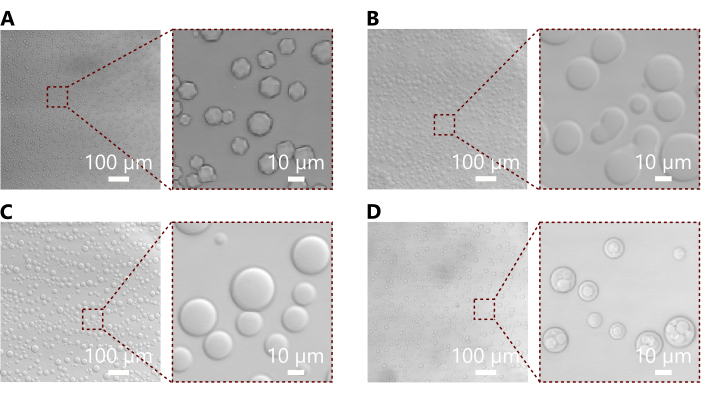
Figura 3: Micrografie rappresentative che mostrano condensati di stelle C ricotte. (A) Micrografia in campo chiaro e riquadro che mostra i condensati formati da una stella C non responsiva con una lunghezza del braccio di 28 coppie di basi. Qui notiamo la morfologia poliedrica che riflette l'ordine cristallino delle stelle C più piccole32. (B) Micrografia in campo chiaro e riquadro che mostra i condensati formati da una stella C sensibile a TMSD, con una lunghezza del braccio di 50 coppie di basi. Questi condensati sono largamente sferici, anche se molti mostrano una morfologia più irregolare indicativa della fusione di più condensati, come ci si aspetta per le stelle C più grandi che tendono ad essere più fluide32. (C) Micrografia in campo chiaro e riquadro che mostra i condensati formati da una stella C non responsiva con una lunghezza del braccio di 35 coppie di basi. Questi condensati appaiono sferici, anche se i dati di diffusione dei raggi X a piccolo angolo provenienti da lavori precedenti mostrano che la loro microstruttura è cristallina32. (D) Micrografia in campo chiaro e riquadro che mostra condensati binari formati da una combinazione delle popolazioni di stelle C utilizzate anche nei pannelli (B) e (C). La combinazione di queste due popolazioni porta alla formazione di condensati con separazione di fase distinta, visibili senza marcatura fluorescente. Altre combinazioni potrebbero non mostrare separazione di fase, come descritto nel precedente lavoro30. Clicca qui per visualizzare una versione più grande di questa figura.
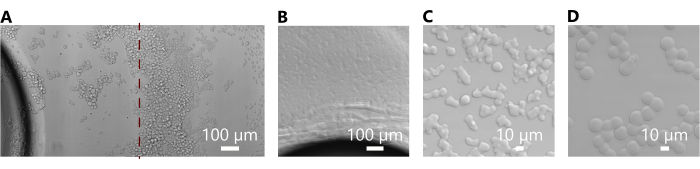
Figura 4: Micrografie che mostrano problemi comuni riscontrati con condensati preparati in modo errato. (A) Micrografie in campo chiaro che mostrano condensati formati da una stella C non responsiva con una lunghezza del braccio di 28 coppie di basi (che si è formata con successo nella Figura 3A) in presenza di una bolla d'aria nel tubo capillare. Il pannello è composto da due micrografie cucite in corrispondenza della linea rossa tratteggiata e mostra l'aggregazione di condensa in prossimità dell'interfaccia dell'aria. (B) Micrografia in campo chiaro che mostra i condensati formati da una stella C sensibile a TMSD di 50 coppie di basi della lunghezza del braccio (che si è formata con successo in Figura 3B) in presenza di una bolla d'aria nel tubo capillare. Qui, i condensati si sono fusi per formare una rete interconnessa continua a causa della natura più fluida dei condensati composti da motivi a stella C più grandi32. (C) Micrografia in campo chiaro che mostra i condensati formati da una stella C non responsiva con una lunghezza del braccio di 35 coppie di basi (che si è formata con successo in Figura 3C). La morfologia è irregolare e spigolosa, indice di un errore nella preparazione, possibilmente stechiometrie sbilanciate. (D) Micrografia in campo chiaro di condensati binari formati da una combinazione delle popolazioni di stelle C come in Fig. 3D. Queste condense sono altamente collegate, come nel pannello (C), e inoltre non mostrano la separazione di fase prevista (vedi Figura 3D), indicando un errore nella loro preparazione. Sebbene le fonti esatte degli errori siano difficili da individuare, le stechiometrie errate o l'uso di sequenze oligonucleotidiche errate sono potenziali cause. Clicca qui per visualizzare una versione più grande di questa figura.
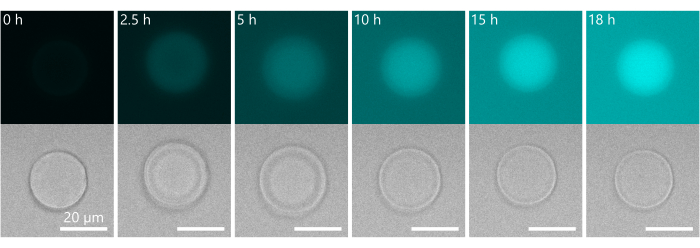
Figura 5: Risultati rappresentativi della trascrizione di un modello di DNA incorporato per un aptamero di RNA. Timelapse che mostra la sintesi dell'aptamero luminoso di Broccoli tramite la trascrizione di un modello di DNA incorporato in condensati realizzati con il motivo della stella C descritto in Figura 1C. L'aptamero si lega al DFHBI presente nella miscela di trascrizione, inducendo un aumento della fluorescenza nel tempo. Notevole qui è un cambiamento nella morfologia del condensato nel tempo, che sembra formare una struttura nucleo-guscio. Questo fenomeno è probabilmente dovuto al rigonfiamento dello strato esterno del condensato a causa di uno squilibrio transitorio della pressione osmotica associato alla produzione locale dell'aptamero dell'RNA. La produzione di aptameri può avvenire preferenzialmente negli strati esterni dei condensati a causa della tendenza riportata del filamento stampo dell'aptamero ad accumularsi in questa regione30. Clicca qui per visualizzare una versione più grande di questa figura.
Tabella supplementare 1: Dettagli della sequenza per vari progetti di singoli componenti. Clicca qui per scaricare questo file.
Tabella supplementare 2: Volume dei componenti per ogni progetto. Clicca qui per scaricare questo file.
Discussione
Il protocollo qui descritto fornisce un approccio per la preparazione di condensati a uno o due componenti da nanostelle di DNA anfifilico, con variazioni di progettazione per introdurre risposte diverse nei condensati. Il protocollo dato produce condensati in una soluzione tampone di 0,3 M NaCl in TE, ma le condizioni tampone possono essere modificate modificando opportunamente i volumi sopra elencati. Lavori precedenti hanno studiato la formazione di condensati di stelle C in NaCl 0,2 M in TE e NaCl 0,1 M in TE e in soluzione salina tamponata con fosfato (PBS)32. I condensati C-star sono prodotti a una concentrazione finale di 5 μM, ma anche questa può essere variata modificando opportunamente le concentrazioni di oligonucleotidi e/o i volumi aggiunti nel protocollo precedente. A seconda delle variazioni desiderate, può essere necessario preparare soluzioni madre di oligonucleotidi a concentrazioni diverse e in tamponi diversi rispetto al protocollo descritto nella sezione 1, sebbene gli aspetti pratici del protocollo rimangano gli stessi. Il design C-star può essere facilmente modificato per introdurre una funzionalità o una risposta diversa, come descritto nel lavoro precedente32. Le variazioni di progettazione includono l'introduzione di motivi che rispondono alle variazioni di pH32, agli ioni potassio31 o alle sequenze oligonucleotidiche30,32. Se si desiderano nuovi progetti, si consiglia di testare prima l'assemblaggio computazionalmente (utilizzando strumenti come NUPACK39) e quindi testare la formazione delle nanostelle equivalenti, non colesterolizzate, utilizzando l'elettroforesi su gel di agarosio 32,40. L'entità della separazione di fase nei condensati binari dipenderà dalla combinazione di popolazioni di stelle C utilizzate, come descritto nel precedente lavoro30. Notiamo che i protocolli di ricottura specificati per la formazione di condensati richiedono tempi molto più lunghi di quelli tipici per il ripiegamento di piccole nanostrutture di DNA simili alle singole stelle C. La ricottura lenta è infatti necessaria per consentire l'equilibrio su scale di lunghezza maggiori dei condensati. Per i condensati monocomponenti, il protocollo suggerito ha una durata di 17 ore, mentre per i condensati binari, viene utilizzato un protocollo di ricottura ancora più lungo (~3 giorni) per avvicinarsi all'equilibrio termodinamico. Abbiamo scoperto che questi protocolli producono risultati riproducibili in tutte le diverse popolazioni di stelle C utilizzate fino ad oggi, ma se i ricercatori desiderano migliorare la produttività del campione, raccomandiamo uno studio sistematico in cui i tassi di ricottura sono modulati per trovare il protocollo più breve possibile in cui è possibile ottenere le morfologie desiderate per il sistema in prova. Si consiglia di lasciare invariata la tenuta di 30 minuti a 95 °C, poiché questo passaggio sterilizza efficacemente il campione e consente la conservazione a lungo termine in tubi capillari.
La camera in cui vengono prodotti i condensati di stelle C è fondamentale per la loro formazione di successo. La camera deve essere in vetro o quarzo; L'uso di contenitori di plastica come il polipropilene, un materiale tipico per le provette per microcentrifuga, interromperà l'autoassemblaggio a causa delle interazioni idrofobiche tra la plastica e le frazioni di colesterolo. Anche il rapporto d'aspetto del contenitore di ricottura e la concentrazione della miscela C-star influenzeranno le caratteristiche dei condensati, in particolare le loro dimensioni e aggregazione. Nello specifico, se si utilizza un contenitore più "alto", con una piccola superficie sul fondo rispetto alla sua altezza, i condensati C-star sedimenteranno sul fondo con alte densità superficiali, il che favorirà la formazione di punti di contatto tra i condensati. Se questi si verificano in una fase avanzata del processo di ricottura termica, quando la temperatura è relativamente bassa e i condensati si comportano come liquidi o solidi altamente viscosi, i condensati a contatto non riusciranno a rilassarsi in forme sferiche e piuttosto formeranno aggregati irregolari di configurazioni parzialmente coalesce. Quando si pipetta la miscela C-star in provette capillari, è necessario prestare attenzione per evitare l'introduzione di bolle d'aria: grandi aggregati tendono a formarsi all'interfaccia aria/acqua, quindi i condensati estratti avranno dimensioni e morfologia non ideali. L'asciugatura delle estremità dei tubi capillari dopo l'iniezione della miscela C-star o dell'olio minerale porterà a una migliore adesione. L'adesivo selezionato deve essere sufficientemente viscoso da rivestire completamente le aperture del tubo capillare senza essere penetrato nel tubo, inerte all'olio minerale, compatibile con il vetro e stabile alle temperature di ricottura utilizzate. Abbiamo scoperto che l'adesivo epossidico bicomponente Araldite Rapid è adatto ai nostri scopi, nonostante sia classificato solo a temperature di 80 °C. Bolle d'aria o spazi vuoti nella colla porteranno a capillari non perfettamente sigillati, che tendono a perdere durante la ricottura. Dopo che la colla si è indurita, avvolgere i campioni in un foglio di alluminio ha il duplice vantaggio di contenere eventuali perdite e di migliorare il contatto termico tra il campione e il termociclatore. La lamina deve essere mantenuta il più liscia e piatta possibile per garantire che i capillari siano mantenuti a livello durante la ricottura. Le condense ricotte nei capillari possono essere conservate a lungo a temperatura ambiente e ricotte se necessario. I campioni devono essere maneggiati con cura: è probabile che i condensati si uniscano quando vengono a contatto, quindi i capillari devono essere conservati in piano. Per un imaging microscopico ottimale, il vetrino coprioggetti può essere inciso e rimosso lasciando intatti i tubi capillari. I condensati tendono ad avere un diametro superiore a 5 μm e non abbiamo osservato un movimento browniano significativo durante il loro imaging29,30.
Si raccomanda di preparare più lotti indipendenti di condensati C-star per garantire che le possibili differenze osservate tra i campioni riflettano le differenze nella composizione o nelle condizioni di ricottura e non le differenze causate da potenziali errori sperimentali.
Piccole particelle di vetro verranno probabilmente introdotte nella soluzione di condensa a seguito del processo di estrazione. Questi possono essere ridotti al minimo tamponando accuratamente le estremità tagliate del tubo capillare con una striscia pulita di Parafilm, che è molto efficace nel raccogliere il vetro, prima di posizionare il tubo capillare tagliato nella provetta per microcentrifuga contenente la soluzione tampone. Durante l'estrazione, il numero di condensati estratti può essere massimizzato ruotando brevemente lungo il tubo della microcentrifuga contenente il tubo capillare tagliato, anche se ciò aumenta la probabilità che i condensati si coalescano e formino morfologie non ideali. Dopo l'estrazione, i condensati devono essere conservati a temperature di frigorifero (in genere 4 °C) e utilizzati entro tre giorni per evitare potenziali problemi di contaminazione biologica e perché i condensati nelle provette per microcentrifuga si aggregano e si fondono nel tempo a causa delle forme tipicamente arrotondate o appuntite di queste provette. Evitare un pipettaggio molto energico dei condensati estratti, in quanto possono essere danneggiati da un flusso di taglio eccessivo.
Per la trascrizione di un aptamero di RNA, può essere necessario modificare il volume della miscela di trascrizione utilizzata poiché il numero e la dimensione dei condensati (e, quindi, la concentrazione del stampo) in ogni singola reazione non possono essere controllati con precisione. Negli esperimenti descritti nella sezione 3, viene utilizzato un eccesso di miscela di trascrizione rispetto alla concentrazione teorica del stampo. Si raccomanda di conservare i surnatanti delle tre fasi di lavaggio (paragrafo 3.1) e di utilizzarli per eseguire le reazioni di trascrizione. Questi esperimenti daranno un'indicazione della quantità di stampo di aptamero non legato presente nella soluzione.
Uno dei principali vantaggi della piattaforma C-star è la sua flessibilità e modularità. Come descritto sopra e in lavori precedenti, i condensati possono essere progettati per rispondere a una serie di input, come lo spostamento del filamento mediato dall'appoggio dell'alluce e la trascrizione dell'aptamero dell'RNA separatamente o in sequenza. In combinazione con l'intrinseca programmabilità dei suoi elementi costitutivi del DNA, le nanostelle di DNA anfifilico forniscono una soluzione robusta e versatile per la progettazione e la preparazione di cellule sintetiche.
Dichiarazioni
Nessun conflitto di interessi dichiarato.
Ringraziamenti
LM, LDM e DT riconoscono il sostegno del Consiglio europeo della ricerca (CER) nell'ambito del programma di ricerca e innovazione Horizon 2020 (ERC-STG n. 851667 - NANOCELL). LDM riconosce il sostegno di una Royal Society Research Grant for Research Fellows (RGF/R1/180043) e il supporto di una Royal Society University Research Fellowship (UF160152, URF/R/221009).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 0,22 μ m filtri per siringhe | Sigma-Aldrich | SLGVR33RB | |
| 24 x 60 mm #1.5 Bicchieri di copertura rettangolari, Menzel Glä ser | VWR | 631-0853 | |
| 2-propanolo | Sigma-Aldrich | 34683 | |
| Pulitore ad ultrasuoni da 6 L con timer digitale e calore, 230 V CA | Cole-Parmer | WZ-08895-11 | |
| Colla epossidica rapida Araldite Colla epossidica in 2 parti | RS | ARA-400005 | |
| Bio-Rad C1000 termociclatore | Bio-Rad | 1851197 | |
| Marca Microcentrifuga Tubo 2 mL con coperchio di chiusura | Fisher Scientific 15338665 | Provette per microcentrifuga da 2 mL per l'estrazione di condensati C-star | |
| Diamond Scribing Pen | RS | 394-217 | |
| Difluoro-4-idrossibenzilidene imidazolidinone (DFHBI) | Sigma-Aldrich | SML1627 | |
| Dimetil solfossido (DMSO) | Sigma-Aldrich | 472301 | |
| Eppendorf PCR Clean Incolore Provette per centrifuga Safe-Lock | Fisher Scientific | 0030123301 | Provette per microcentrifuga da 0,5 mL per la preparazione di miscele C-star |
| Etanolo Assoluto 99,8+% | Fisher Scientific | 10437341 | Il 70% di etanolo è sufficiente per la pulizia |
| Fisherbrand ZX4 IR Vortex Mixer | Fisherbrand | 13284769 | |
| Hellmanex III | Hellma | 9-307-011-4-507 | |
| Capillari rettangolari cavi ID 0,40 x 4,00 mm, lunghezza 50 mm | CM Scientific | 2540-50 | |
| Olio minerale | Sigma-Aldrich | 69794 | |
| Mini centrifuga, 230 V | PRISM(TM) | ||
| NaCl | Sigma-Aldrich | S3014 | |
| NanoDrop One Spettrofotometro | Thermo Fisher Scientific | ND-ONE-W | Utilizzato per misurare l'assorbanza degli oligonucleotidi per il calcolo della concentrazione |
| Oligonucleotidi | Tecnologie DNA integrate | Le sequenze di oligonucleotidi personalizzate sono uniche per il design C-star richiesto. | |
| ScriptGuard Inibitore della RNasi | CELLSCRIPT | C-SRI6310K | Inibitore della RNasi |
| T7-FlashScribe Kit di trascrizione | Cambio | C-ASF3507 | |
| Tampone Tris-EDTA, 100x soluzione madre | Sigma-Aldrich | 574793 | |
| UltraPure DNasi/RNase-Free Acqua | distillata Invitrogen | 10977035 | |
| VWR Spec-Wipe 3 Tergicristalli | VWR | 21914-758 |
Riferimenti
- Buddingh', B. C., Hest, J. C. M. v Artificial cells: Synthetic compartments with life-like functionality and adaptivity. Acc Chem Res. 50 (4), 769-777 (2017).
- Fanalista, F., et al. Shape and size control of artificial cells for bottom-up biology. ACS Nano. 13 (5), 5439-5450 (2019).
- Dora Tang, T. -Y., et al. Fatty acid membrane assembly on coacervate microdroplets as a step towards a hybrid protocell model. Nat Chem. 6 (6), 527-533 (2014).
- Deshpande, S., et al. Spatiotemporal control of coacervate formation within liposomes. Nat Commun. 10 (1), 1800(2019).
- Rubio-Sánchez, R., et al. Thermally driven membrane phase transitions enable content reshuffling in primitive cells. J Am Chem Soc. 143 (40), 16589-16598 (2021).
- Jahnke, K., Huth, V., Mersdorf, U., Liu, N., Göpfrich, K. Bottom-up assembly of synthetic cells with a DNA cytoskeleton. ACS Nano. 16 (5), 7233-7241 (2022).
- Tran, M. P., et al. A DNA segregation module for synthetic cells. Small. 19 (13), 2202711(2023).
- Mason, A. F., Buddingh', B. C., Williams, D. S., Hest, J. C. M. v Hierarchical self-assembly of a copolymer-stabilized coacervate protocell. J Am Chem Soc. 139 (48), 17309-17312 (2017).
- Gumz, H., et al. Toward functional synthetic cells: In-depth study of nanoparticle and enzyme diffusion through a cross-linked polymersome membrane. Adv Sci. 6 (7), 1801299(2019).
- Huang, X., Patil, A. J., Li, M., Mann, S. Design and construction of higher-order structure and function in proteinosome-based protocells. J Am Chem Soc. 136 (25), 9225-9234 (2014).
- Booth, R., Qiao, Y., Li, M., Mann, S. Spatial positioning and chemical coupling in coacervate-in-proteinosome protocells. Angew Chem Int Ed Engl. 58 (27), 9120-9124 (2019).
- Hindley, J. W., et al. Light-triggered enzymatic reactions in nested vesicle reactors. Nat Commun. 9 (1), 1093(2018).
- Zubaite, G., Hindley, J. W., Ces, O., Elani, Y. Dynamic reconfiguration of subcompartment architectures in artificial cells. ACS Nano. 16 (6), 9389-9400 (2022).
- Hirose, T., et al. A guide to membraneless organelles and their various roles in gene regulation. Nat Rev Mol Cell Biol. 24 (4), 288-304 (2023).
- Guindani, C., Silva, L. C. d, Cao, S., Ivanov, T., Landfester, K. Synthetic cells: From Simple Bio-Inspired Modules to Sophisticated Integrated Systems. Angew Chem Int Ed Engl. 61 (16), e202110855(2022).
- Adamala, K. P., et al. Present and future of synthetic cell development. Nat Rev Mol Cell Biol. 25 (3), 162-167 (2023).
- Allen, M. E., et al. Biomimetic behaviors in hydrogel artificial cells through embedded organelles. Proc Natl Acad Sci U S A. 120 (35), e2307772120(2023).
- Cook, A. B., Novosedlik, S., Hest, J. C. M. v Complex coacervate materials as artificial cells. Acc Mater Res. 4 (3), 287-298 (2023).
- Seeman, N. C., Sleiman, H. F. DNA nanotechnology. Nat Rev Mater. 3, 17068(2018).
- Takinoue, M. DNA droplets for intelligent and dynamical artificial cells: from the viewpoint of computation and non-equilibrium systems. Interface Focus. 13 (5), 20230021(2023).
- Liu, W., Lupfer, C., Samanta, A., Sarkar, A., Walther, A. Switchable hydrophobic pockets in DNA protocells enhance chemical conversion. J Am Chem Soc. 145 (13), 7090-7094 (2023).
- Wilner, O. I., Willner, I. Functionalized DNA nanostructures. Chem Rev. 112 (4), 2528-2556 (2012).
- Gong, J., Tsumura, N., Sato, Y., Takinoue, M. Computational DNA droplets recognizing miRNA sequence inputs based on liquid-liquid phase separation. Adv Funct Mater. 32, 2202322(2022).
- Jeon, B. -J., Nguyen, D. T., Saleh, O. A. Sequence-controlled adhesion and microemulsification in a two-phase system of DNA liquid droplets. J Phys Chem. 124 (40), 8888-8895 (2020).
- Sato, Y., Sakamoto, T., Takinoue, M. Sequence-based engineering of dynamic functions of micrometer-sized DNA droplets. Sci Adv. 6 (23), 3471(2020).
- Saleh, O. A., et al. Vacuole dynamics and popping-based motility in liquid droplets of DNA. Nat Commun. 14 (1), 3574(2023).
- Rubio-Sánchez, R., Fabrini, G., Cicuta, P., Michele, L. D. Amphiphilic DNA nanostructures for bottom-up synthetic biology. Chem Commun. 57 (95), 12725-12740 (2021).
- Brady, R. A., Brooks, N. J., Cicuta, P., Di Michele, L. Crystallization of amphiphilic DNA C-Stars. Nano Lett. 17 (5), 3276-3281 (2017).
- Leathers, A., et al. Reaction-diffusion patterning of DNA-based artificial cells. J Am Chem Soc. 144 (38), 17468-17476 (2022).
- Malouf, L., et al. Sculpting DNA-based synthetic cells through phase separation and phase-targeted activity. Chem. 9 (11), 3347-3364 (2023).
- Fabrini, G., Minard, A., Brady, R. A., Antonio, M. D., Michele, L. D. Cation-responsive and photocleavable hydrogels from noncanonical amphiphilic DNA nanostructures. Nano Lett. 22 (2), 602-611 (2022).
- Brady, R. A., Brooks, N. J., Foderà, V., Cicuta, P., Di Michele, L. Amphiphilic-DNA platform for the design of crystalline frameworks with programmable structure and functionality. J Am Chem Soc. 140 (45), 15384-15392 (2018).
- Walczak, M., et al. Responsive core-shell DNA particles trigger lipid-membrane disruption and bacteria entrapment. Nat Commun. 12 (1), 4743(2021).
- Zhang, D. Y., Winfree, E. Control of DNA strand displacement kinetics using Toehold exchange. J Am Chem Soc. 131 (47), 17303-17314 (2009).
- Integrated DNA Technologies OligoAnalyzer Tool. , Available from: https://www.idtdna.com/pages/products/custom-dna-rna/dna-oligos/custom-dna-oligos (2024).
- Cavaluzzi, M. J., Borer, P. N. Revised UV extinction coefficients for nucleoside-5'-monophosphates and unpaired DNA and RNA. Nucleic Acids Res. 32 (1), e13(2004).
- Lattuada, E., Caprara, D., Piazza, R., Sciortino, F. Spatially uniform dynamics in equilibrium colloidal gels. Sci Adv. 7 (49), (2021).
- T7-FlashScribeTM Transcription Kit. , Available from: https://www.cellscript.com/products/018pl0617CS.pdf (2017).
- Zadeh, J. N., et al. NUPACK: Analysis and design of nucleic acid systems. J Comput Chem. 32 (1), 170-173 (2011).
- Walczak, M., Brady, R. A., Leathers, A., Kotar, J., Di Michele, L. Influence of hydrophobic moieties on the crystallization of amphiphilic DNA nanostructures. The Journal of Chemical Physics. 158 (8), 084501(2023).
Ristampe e permessi
