Qui, viene descritto un metodo di cromatografia liquida in fase normale ad alte prestazioni per rilevare e quantificare i retinoidi critici coinvolti nella facilitazione della funzione visiva sia nel tessuto oculare che in quello sistemico, nel contesto dell'apporto sistemico di vitamina A per generare il cromoforo fotosensibile essenziale della rodopsina 11-cis-retinale.
Articolo metodologico
Analisi quantitativa dei metaboliti alimentari della vitamina A nei tessuti oculari e non oculari murini mediante cromatografia liquida ad alte prestazioni
In questo articolo
Sommario
Abstract
I recettori accoppiati a proteine G (GPCR) sono una superfamiglia di proteine transmembrana che avviano cascate di segnalazione attraverso l'attivazione della sua proteina G in seguito all'associazione con il suo ligando. In tutti i mammiferi, la rodopsina è il GPCR responsabile dell'inizio della cascata di fototrasduzione. All'interno dei fotorecettori, la rodopsina è legata al suo cromoforo 11-cis-retinico e viene attivata attraverso l'isomerizzazione fotosensibile di 11-cis-retinico a all-trans-retinal, che attiva la proteina G della transducina, con conseguente cascata di fototrasduzione.
Mentre la fototrasduzione è ben compresa, i processi coinvolti nell'apporto di precursori della vitamina A nella dieta per la generazione di 11-cis-retinale nell'occhio, così come le malattie che provocano l'interruzione di questo approvvigionamento, non sono ancora completamente compresi. Una volta che i precursori della vitamina A vengono assorbiti nell'intestino, vengono immagazzinati nel fegato come esteri del retinile e rilasciati nel flusso sanguigno come all-trans-retinolo legato alla proteina legante il retinolo 4 (RBP4). Questo RBP4-retinolo circolatorio sarà assorbito dagli organi sistemici, come fegato, polmoni, reni e occhi. Pertanto, un metodo per la quantificazione dei vari metaboliti della vitamina A alimentare nell'occhio e negli organi sistemici è fondamentale per lo studio della corretta funzione della rodopsina GPCR.
In questo metodo, presentiamo un metodo completo di estrazione e analisi per l'analisi della vitamina A nel tessuto murino. Attraverso l'analisi cromatografica liquida ad alte prestazioni in fase normale, tutti gli isomeri rilevanti di retinaldeide, retinoli ed esteri retinilici possono essere rilevati simultaneamente attraverso un'unica corsa, il che consente l'uso efficiente di campioni sperimentali e aumenta l'affidabilità interna tra diversi metaboliti della vitamina A all'interno dello stesso campione. Con questo metodo completo, i ricercatori saranno in grado di valutare meglio l'apporto sistemico di vitamina A nella funzione GPCR della rodopsina.
Introduzione
I recettori accoppiati a proteine G (GPCR) sono una delle superfamiglie di proteine più studiate e caratterizzate conosciute. Nella sua funzione più nota, i GPCR fungono da recettore della superficie cellulare nella trasduzione del segnale, inizializzando le risposte intracellulari dopo il legame con un ligando specifico. I GPCR sono caratterizzati da sette domini elicoidali transmembrana (TM) e sei domini ad anello totale. Dei sei loop, tre loop sono orientati extracellulare per facilitare il legame del ligando, mentre gli altri tre loop intracellulari sono accoppiati a una proteina G eterotrimerica costituita dalle subunitàGα, Gβ e Gγ 1,2.
I GPCR sono classificati in diverse classi, tra cui la classe A rodopsina-simile, la famiglia dei recettori della secretina di classe B, il glutammato di classe C, i recettori dei feromoni di accoppiamento fungino di classe D, i recettori AMP ciclici di classe E e la classe F crespata/levigata 3,4. Come suggerisce il nome, la sottoclasse GPCR di classe A simile alla rodopsina include la rodopsina, il GPCR critico responsabile della fototrasduzione e della funzione visiva. La rodopsina contiene tutte le caratteristiche chiave pertinenti e gli elementi strutturali che si trovano nel modello canonico dei GPCR, inclusi i sette domini elicoidali TM precedentemente menzionati, i sei loop extracellulari e intracellulari e l'associazione con una proteina G eterotrimerica, nota anche come transducina (Gt) nei fotorecettori 1,5,6,7. All'interno della tasca di legame della rodopsina, l'11-cis-retinal, il ligando cromoforo sensibile alla luce, si lega alla rodopsina sulla lisina 296 attraverso un legame covalente di base di Schiff, formando così l'11-cis-retinilidene-1,8. Dopo l'assorbimento di un fotone, l'11-cis-retinilidene fotoisomerizza in all-trans-retinilidene, inducendo un cambiamento conformazionale all'interno della rodopsina. Pertanto, il ligando 11-cis-retinico è fondamentale per la funzione della rodopsina GPCR e un rifornimento robusto ed efficiente di 11-cis-retinale deve essere continuamente mantenuto per superare l'alto tasso di turnover all'interno dei fotorecettori.
Le retinaldeidi come l'11-cis-retinale appartengono a un gruppo di molecole chiamate collettivamente retinoidi, e i retinoidi biologicamente rilevanti sono più ampiamente indicati come vitamina A. I retinoidi sono caratterizzati da un gruppo terminale ciclico collegato a una catena di poliene coniugata, con un gruppo terminale polare all'altra estremità. Le retinaldeidi e i vitameri associati della vitamina A non fanno eccezione a questa caratterizzazione, che contengono l'anello β-ionone come gruppo terminale ciclico, una catena di poliene diterpenico e un gruppo terminale polare diverso a seconda del vitamero, cioè il gruppo aldeidico per le retinaldeidi, il gruppo ossidrile per i retinoli, il gruppo carbossilico per gli acidi retinoici, il legame estere per gli esteri del retinile, ecc. (Figura 1)9,10.
I mammiferi non possono sintetizzare la vitamina A de novo, ma le piante sì; Pertanto, tutti i retinoidi all'interno dei sistemi dei mammiferi devono provenire dalla dieta dei produttori di origine vegetale fino ai consumatori della catena alimentare. Nel modello canonico del metabolismo della vitamina A, il β-carotene, l'archetipo della provitamina A della pianta, viene assorbito nell'enterocita intestinale attraverso il recettore scavenger di classe B, membro 1 (SCARB1), scisso in due molecole di all-trans-retinal dalla β-carotene ossigenasi 1 (BCO1/BCMO1), che si lega alla proteina legante la retinaldeide 2 (RBP2) ed è ridotto a all-trans-retinolo dalle retinolo deidrogenasi (RDH), convertito in esteri retinilici dalla lecitina retinolo aciltransferasi (LRAT), e quindi inviato al flusso sanguigno nei chilomicroni 11,12,13,14. Gli esteri del retinile, come il palmitato di retinile, d'altra parte, fungono da provitamina A predominante da fonti animali. Il palmitato di retinile dal lume intestinale viene idrolizzato in all-trans-retinolo dalla carbossilesterasi 1 (CES1) e si diffonde nell'enterocita intestinale15. Il fegato è il principale organo di stoccaggio e omeostatico per l'omeostasi della vitamina A, che assorbe gli esteri del retinile all'interno di questi chilomicroni, che vengono idrolizzati in all-trans-retinolo legato alla proteina 1 legante il retinolo cellulare (CRBP1) dalle idrolasi degli esteri del retinile, entrano nelle cellule stellate epatiche e vengono riconvertiti in esteri del retinile da LRAT per la conservazione13,16, 17. Per mantenere un livello omeostatico di vitamina A nell'organismo, il fegato rilascia vitamina A sotto forma di all-trans-retinolo legato a un complesso di trasporto del siero, costituito dalla proteina legante il retinolo 4 (RBP4) e dalla transtiretina (TTR)15,18,19. Questo complesso sarà indicato come olo-RBP4 in questo manoscritto.
Per utilizzare questo apporto sistemico di vitamina A nel sangue, i tessuti sistemici, compreso il tessuto oculare dove viene mantenuta una robusta fonte di vitamina A, devono disporre di un metodo per assorbire l'olo-RBP4 nei tessuti. All'interno della retina ricca di fotorecettori nel tessuto oculare, il recettore di membrana stimolato dall'acido retinoico 6 (STRA6) è il trasportatore implicato in questa funzione. Negli studi meccanicistici, STRA6 ha dimostrato di essere in grado di facilitare l'assunzione di all-trans-retinolo extracellulare dall'olo-RBP4 nell'RPE20. Questo all-trans-retinolo importato entrerà quindi nel ciclo visivo, che è il processo mediante il quale l'all-trans-retinolo viene convertito in 11-cis-retinale all'interno dell'RPE e del segmento esterno del fotorecettore, facilitando così la funzione visiva quando legato alla rodopsina 9,21.
Una volta che l'all-trans-retinolo dall'olo-RBP4 circolatorio attraversa la barriera emato-retinica nell'RPE all'interno del tessuto oculare attraverso STRA6, l'all-trans-retinolo nell'RPE viene prima esterificato in esteri retinilici da LRAT, quindi idrolizzato in 11-cis-retinolo dalla proteina 65 kDa specifica per l'epitelio pigmentato retinico (RPE65). L'11-cis-retinolo viene quindi convertito in 11-cis-retinico dalla retinolo deidrogenasi 5. Questo 11-cis-retinico viene quindi trasportato nel segmento esterno del fotorecettore (OS) dalla proteina legante i retinoidi interfotorecettori (IRBP)9,21. All'interno del reticolo endoplasmatico che circonda il nucleo del fotorecettore all'interno dello strato nucleare esterno (ONL), i GPCR dell'opsina vengono sintetizzati e trasportati attraverso il cilio di connessione (CC). Le proteine motrici coinvolte in questo trasporto attraverso il CC sono controverse, ma le ipotesi attuali implicano che il trasporto intraflagellare basato sulla chinesina e la dineina (IFT) o il trasporto basato sulla miosina siano probabili facilitatori di questo processo 14,22,23,24,25,26. Una volta che questi due componenti si incontrano all'interno dei dischi membranosi all'interno dell'OS, l'11-cis-retinale e l'opsina formano l'11-cis-retinilidene attraverso un legame covalente alla base di Schiff alla lisina 196 sulla rodopsina, pronta per la fototrasduzione8.
Mentre l'espressione di STRA6 all'interno dell'RPE della retina aiuta a facilitare l'assunzione di all-trans-retinolo da holo-RBP4, STRA6 non è stato trovato per essere espresso nel fegato, nonostante il suo ruolo come principale organo omeostatico per la vitamina A e mostrando capacità nell'assunzione di all-trans-retinolo da holo-RBP4 15,19,27,28, 29,30,31. Alla fine, è stato scoperto un recettore analogo chiamato recettore 2 della proteina legante il retinolo 4 (RBPR2), che mostra la capacità di assumere all-trans-retinolo da olo-RBP4, molto simile a STRA6, ma è espresso nel tessuto epatico32.
Pertanto, una comprensione completa del ruolo della rodopsina nella funzione visiva richiede una comprensione dei processi biologici che culminano nella rigenerazione del pigmento visivo. Questo è, a sua volta, intimamente correlato ai processi precedentemente descritti, tra cui il metabolismo dei precursori della provitamina A, l'immagazzinamento all'interno del fegato, il rilascio di olo-RBP4 da parte del fegato e l'eventuale assorbimento di olo-RBP4 attraverso i recettori di membrana STRA6 e RBPR2. Come accennato in precedenza, i modelli animali come i topi rimangono uno dei principali modelli nello studio di tali processi. Pertanto, vorremmo presentare un metodo di estrazione per i retinoidi nel tessuto murino, nonché un metodo di cromatografia liquida ad alte prestazioni (HPLC) in fase normale in grado di rilevare e quantificare questi retinoidi. Utilizzando questi metodi, gli importanti retinoidi sopra descritti, come il ligando della rodopsina 11-cis-retinica o il retinoide di trasporto principale all-trans-retinolo, possono essere analizzati in organi oculari, epatici e sistemici. Valutando l'apporto di retinoidi nel tessuto murino, la nostra comprensione degli stati patologici e delle patologie legate all'apporto logistico di retinoidi può essere ulteriormente avanzata.
Oltre a funzionare come cromoforo nella funzione visiva attraverso l'associazione con i GPCR opsina, i retinoidi svolgono anche un ruolo importante nella segnalazione delle cellule di mammifero attraverso la segnalazione dell'acido retinoico, facilitata da due famiglie di recettori nucleari, i recettori dell'acido retinoico (RAR) e i recettori X retinoidi (RXR), che si legano direttamente al DNA e regolano la trascrizione genica33. Queste due famiglie o recettori utilizzano entrambe i retinoidi sotto forma di acidi retinoici come ligando. È stato dimostrato che i RAR hanno affinità sia per l'acido all-trans-retinoico che per l'acido 9-cis-retinoico, mentre gli RXR esprimono affinità per il solo acido 9-cis-retinoico 34,35. Gli acidi retinoici in quantità incontrollate sono teratogeni e la segnalazione dell'acido retinoico deve essere controllata in modo estremamente stretto36. La produzione di acidi retinoici per la segnalazione deve avvenire localmente e in momenti molto specifici per il corretto sviluppo dei tessuti, come nello sviluppo del rombencefalo e degli arti, ma innumerevoli altri esempi utilizzano la segnalazione dell'acido retinoico37,38. All'interno delle cellule che partecipano alla segnalazione dell'acido retinoico, gli acidi retinoici sono sintetizzati da due gruppi di enzimi, l'alcol/retinolo deidrogenasi (ADHs/RDHs) che facilitano l'ossidazione dei retinoli assunti da STRA6 o RBPR2 a retinaldeide, e le retinaldeide deidrogenasi (RALDHs) che facilitano l'ossidazione delle retinaldeidi ad acidi retinoici39. Pur non partecipando di per sé alla segnalazione dei GPCR, gli acidi retinoici si presentano comunque come un retinoide cruciale che funge anche da ligando per i recettori di segnalazione.
Sebbene non sia qui descritto in dettaglio, vorremmo riconoscere i metodi precedentemente consolidati per la rilevazione dei retinoidi utilizzando l'HPLC in vari contesti, come nella ricerca alimentare e nello studio della rodopsina microbica. Questi metodi impiegano diversi obiettivi e approcci alla rilevazione dei retinoidi, tra cui l'uso di tecniche di fase inversa che richiedono fasi mobili meno volatili e pericolose 40,41,42, la rilevazione degli acidi retinoici e dei loro isomeri associati 40,41 e la purificazione e l'estrazione da diverse fonti biologiche43. Il nostro metodo si concentra in particolare sulla rilevazione del palmitato di retinile, degli isomeri della retinaldeide e degli isomeri del retinolo dal tessuto dei mammiferi. È necessario prendere in considerazione protocolli diversi se il caso d'uso previsto differisce da questa specifica applicazione.
Protocollo
NOTA: Tutti gli esperimenti sugli animali sono stati approvati dall'Institutional Animal Care and Use Committee (IACUC) dell'Università del Minnesota (protocollo # 2312-41637A) ed eseguiti in conformità con la dichiarazione ARVO per l'uso degli animali nella ricerca oftalmica e visiva. Eseguire tutte le estrazioni al buio, sotto una luce rossa fioca per l'illuminazione. Prestare attenzione alla luce residua emessa dai display degli strumenti e dai LED degli accessori.
1. Generazione standard di retinoidi spettrofotometrici e generazione di curve standard esterne
NOTA: Preparare un contenitore per il ghiaccio secco per la conservazione temporanea dei retinoidi prima dell'analisi con l'HPLC.
- Pesare una quantità arbitraria ma appropriata di retinoidi e scioglierli in un solvente appropriato per la quantificazione mediante spettrofotometria.
NOTA: Il solvente di scelta utilizzato in questo studio è l'etanolo e i valori di assorbività molare dei retinoidi disciolti nell'etanolo sono dettagliati nella Tabella 1. L'etanolo anidro di grado HPLC deve essere utilizzato per sciogliere standard e campioni. L'etanolo purificato esclusivamente per distillazione forma una miscela azeotropica con acqua, contenente circa il 4% di acqua in volume. L'acqua è immiscibile con la fase mobile esanoica e provocherà l'idratazione della fase stazionaria di silice, portando all'eventuale degradazione della colonna. - Utilizzando la legge di Beer-Lambert e l'assorbività molare del retinoide pertinente, quantificare la concentrazione dello standard generato (Tabella 1).
Assorbanza = Assorbenzitità molare (ε) × Concentrazione molare × Lunghezza del percorso - Eseguire diluizioni seriali per creare concentrazioni in grado di generare una curva standard all'interno dell'intervallo di quantificazione per il tessuto desiderato.
NOTA: Essere consapevoli dei limiti fondamentali della Legge di Beer-Lambert, come la sua mancanza di validità con alte concentrazioni di analita. Per evitare questo problema, gli standard dei retinoidi diluiti dovrebbero evitare di generare valori di assorbanza superiori a 1. Per le nostre applicazioni nella quantificazione del retinolo e della retinaldeide negli organi murini, abbiamo scoperto che una curva di calibrazione con un intervallo di 1-10 ng era in grado di coprire le quantità tipiche trovate. Per la quantificazione del palmitato di retinile dal fegato murino, abbiamo scoperto che una curva di calibrazione con un intervallo di 20-80 μg era in grado di coprire le quantità tipiche trovate. - Modificando in modo incrementale il volume di iniezione dalla soluzione madre precedentemente creata, alterando così in modo incrementale la quantità iniettata di retinoide, integrare i picchi per generare una curva standard esterna adatta alla quantificazione dei retinoidi in cui l'integrazione dei picchi è direttamente proporzionale alla quantità di retinoide iniettata.
2. Prelievo dei tessuti e raccolta dei campioni
NOTA: Preparare un contenitore per ghiaccio secco per la conservazione temporanea dei tessuti prima dell'omogeneizzazione dei tessuti e dell'estrazione dei retinoidi. Le quantità raccomandate per la raccolta dei tessuti sono descritte in dettaglio nella Tabella 2. Per tenere conto delle variazioni dei retinoidi dovute alle variazioni del contenuto ematico per ciascun tessuto, l'estrazione del tessuto deve essere eseguita su topi completamente perfusi e l'estrazione del sangue deve essere completata su topi separati.
- Eutanasia dei topi seguendo le linee guida stabilite dal protocollo dettato dall'Institutional Animal Care and Use Committee (IACUC) (asfissia da CO2 qui).
- Sangue: Immediatamente dopo l'eutanasia, decapitare i topi con un paio di forbici e drenare il sangue dal tronco principale dei topi in una provetta da 1,5 ml.
- Occhio: Usando un paio di pinze, rimuovi gli occhi dalla testa decapitata.
- Cervello: Usando un paio di piccole forbici, taglia la testa decapitata e rimuovi il cervello usando un paio di pinze.
- Reni, fegato, milza, cuore e polmone: usando un paio di piccole forbici, praticare un'incisione nell'addome, tagliare nella direzione superiore lungo la linea mediana e tagliare lo sterno e la gabbia toracica. Rimuovere il tessuto esposto utilizzando un paio di pinze.
3. Omogeneizzazione tissutale
NOTA: Se si desidera analizzare partizioni più piccole di organi, come in organi più grandi (ad esempio, fegato o tessuto polmonare), l'intero organo deve essere omogeneizzato per evitare differenze nel contenuto di retinoidi in diverse parti del tessuto. Invece, partizionare l'omogenato se si desiderano quantità minori di tessuto. Uno schema per il protocollo è dettagliato nella Figura 2. Questo protocollo modificato è stato adattato da Kane e Napoli44.
- Posizionare il fazzoletto nel tubo del macinatore di tessuti, insieme al 50% di soluzione salina ghiacciata (0,9%) e al 50% di metanolo. Vedere la Tabella 2 per il volume utilizzato per ciascun tipo di tessuto.
- Posizionare il pestello nel tubo del macinino, eseguire lentamente e delicatamente cinque rotazioni complete con il pestello per ottenere un omogeneizzato.
- Trasferire i campioni in provette da 15 mL subito dopo l'omogeneizzazione.
- Aggiungere 2 ml di metanolo e lasciare riposare per 15 minuti a temperatura ambiente.
NOTA: Se si desidera analizzare i derivati dell'ossima di retinaldeide, aggiungere 1 mL di idrossilammina cloridrato 0,1 M in HEPES 0,1 M (pH 6,5) (Figura 1).
4. Estrazione dei retinoidi
ATTENZIONE: L'esano è altamente infiammabile, altamente volatile e altamente tossico. Quando si maneggia l'esano, è necessario utilizzare respiratori approvati dall'Istituto nazionale per la sicurezza e la salute sul lavoro (NIOSH), protezione per gli occhi, guanti butilici e una cappa aspirante. Quando si evapora l'esano dai campioni, si consiglia una qualche forma di apparato di circolazione dell'aria potenziato per prevenire l'accumulo di fumi di solvente, ad esempio un apparecchio di aspirazione a boccaglio.
- Aggiungere 10 mL di esano all'omogeneizzato e mescolare la provetta orizzontalmente a vortice per almeno 10 s.
NOTA: È fondamentale che le fasi si mescolino completamente. - Centrifugare la miscela omogeneizzato/esano per 3 minuti a 1.000 × g per facilitare la separazione di fase.
- Condurre l'estrazione 2 volte per garantire l'estrazione totale dei retinoidi dall'omogeneizzato. Ripetere i passaggi 4.1 e 4.2.
- Prelevare lo strato di esano utilizzando una pipetta e posizionare lo strato di esano in un set separato di provette di vetro da 15 ml per l'evaporazione sotto vuoto.
NOTA: Per l'evaporazione, utilizzare provette di VETRO da 15 ml per evitare l'adesione dei retinoidi alle pareti della provetta. - Utilizzando una centrifuga sottovuoto, far evaporare completamente l'esano.
5. Analisi di risospensione e HPLC
NOTA: Poiché il sistema HPLC utilizzato in questo manoscritto era un sistema di pompe binarie, la fase mobile a quattro componenti è stata premiscelata in una singola bottiglia prima dell'operazione.
ATTENZIONE: Tutti e quattro i solventi organici utilizzati in questo metodo sono altamente infiammabili, altamente volatili e altamente tossici. L'1,4-diossano è suscettibile alla formazione di perossidi esplosivi in seguito all'esposizione all'ossigeno. Tenere chiusi tutti i recipienti contenenti 1,4-diossano quando non vengono utilizzati. Per la manipolazione di questi solventi è necessario utilizzare respiratori, protezione per gli occhi, guanti butilici e una cappa aspirante approvati dall'Istituto nazionale per la sicurezza e la salute sul lavoro (NIOSH). Durante l'esecuzione di questi solventi in un'HPLC, si consiglia una qualche forma di apparato di circolazione dell'aria potenziato per prevenire l'accumulo di fumi di solvente, ad esempio un apparecchio di aspirazione a boccaglio.
- Risospendere la provetta essiccata da 15 mL con 100 μL di esano; vorticare bene per assicurarsi che tutti i retinoidi siano disciolti.
- Pipettare tutti i 100 μl di esano in un unico inserto di vetro per l'analisi HPLC.
- Impostazione della corsa HPLC (adattata da Landers e Olson45): fase mobile: 85,4% esano (v/v), 11,2% acetato di etile (v/v), 2% diossano (v/v), 1,4% 1-ottanolo (v/v); colonna: due colonne da 4,6 mm ID x 250 nm, 5 μm, collegate in serie; a Termostato multicolonna Temperatura: 25 °C; volume di iniezione: 100 μl; portata: 1 mL/min; Durata: 40 min. Utilizzare il rilevamento dell'assorbanza dello spettro UV; mantenere selezionata l'opzione per acquisire lo spettro UV da 200 nm a 400 nm.
6. Identificazione e integrazione dei picchi
- Identificare i picchi utilizzando il tempo di ritenzione e gli spettri UV di ciascun retinoide di interesse, come osservato dall'analisi degli standard dei retinoidi (Figura 3, Tabella 3 e Tabella 4).
- Utilizzando il sistema di dati cromatografici del sistema HPLC scelto, integrare i picchi identificati. L'integrazione, o area sotto la curva, è direttamente proporzionale alla quantità di analita. Fare riferimento alla curva standard esterna generata nella fase 1 per quantificare l'analita.
- Per l'analisi dei cromatogrammi generati da tessuti biologici, utilizzare l'integrazione manuale rispetto all'integrazione automatica offerta dai tipici sistemi di dati cromatografici, poiché in tali campioni si osservano spesso variabilità in parametri come il tempo di ritenzione.
- Assicurarsi che i cromatogrammi non presentino irregolarità che potrebbero indicare problemi durante la corsa, come linee di base rumorose o picchi non gaussiani. Questi problemi indicano la presenza di contaminanti nell'HPLC o l'usura delle colonne e devono essere corretti per un'analisi valida.
Risultati
Qui, abbiamo utilizzato il metodo sopra descritto per rilevare e quantificare i retinoidi nel tessuto oculare e sistemico murino e abbiamo generato cromatogrammi rappresentativi. Daremo inoltre un riassunto dei tipici retinoidi che possono essere rilevati in questi tessuti.
A 6 mesi di età, i topi sono stati soppressi attraverso l'asfissia da CO2 . Per mantenere il contenuto di retinoidi oculari, i topi sono stati adattati al buio per 2 giorni prima dell'eutanasia e dell'estrazione. Due occhi, 0,2 g di fegato e 75 μL di sangue sono stati prelevati per l'estrazione dei retinoidi e la successiva analisi HPLC. Per il tessuto oculare, un occhio è stato estratto senza l'aggiunta di idrossilammina, mentre l'altro è stato sottoposto a trattamento con idrossilammina. Per il fegato e il sangue, il trattamento con idrossilammina non è stato necessario poiché le retinaldeidi non sono tipicamente rilevate in questi tessuti.
Nel cromatogramma dell'occhio di topo non trattato con idrossilammina è stato identificato il 13-cis-retinal, uno dei due isomeri non canonici della retinaldeide. Inoltre, sono stati identificati sia l'11-cis-retinico che l'all-trans-retinal, i due isomeri canonici della retinaldeide. In entrambi i cromatogrammi sono stati identificati l'intermedio del ciclo visivo 11-cis-retinolo, nonché la principale forma di trasporto della vitamina A all-trans-retinolo (Figura 4A).
Nel cromatogramma dell'occhio di topo trattato con idrossilammina, tutti gli isomeri della retinaldeide precedentemente menzionati erano ancora presenti. Tuttavia, i tempi di ritenzione di questi isomeri sono stati significativamente aumentati. Inoltre, questi isomeri della retinaldeide sono ora presenti sia come isomeri syn che anti. Durante la quantificazione attraverso l'integrazione dei picchi, sia i picchi syn che quelli anti devono essere sommati per ottenere un valore di integrazione accurato. Sia l'11-cis-retinolo che l'all-trans-retinolo erano ancora presenti (Figura 4B).
Nel cromatogramma del tessuto epatico di topo, all'interno di questi tessuti sono stati identificati il palmitato di retinile e il retinolo all-trans. Il palmitato di retinile, un estere di retinile, funge da principale forma di stoccaggio della vitamina A nei mammiferi e può essere trovato in quantità significative all'interno del tessuto epatico dei mammiferi. Il fegato rilascia vitamina A nei tessuti sistemici come olo-RBP4, contenente all-trans-retinolo all'interno del complesso RBP4-transtretinetina. Successivamente, all'interno di questo cromatogramma è possibile identificare un grande picco all-trans-retinolo (Figura 4C).
Nel cromatogramma del sangue dei topi, è stato identificato un grande picco all-trans-retinolo. Dato che l'olo-RBP4 dal fegato viene rilasciato ai tessuti sistemici attraverso il sistema circolatorio, questo è come previsto (Figura 4D). L'assorbanza caratteristica dello spettro UV (~250-400 nm) delle isoforme dei retinoidi sui picchi HPLC risolti dipendenti dal tempo può essere utile per la conferma incrociata iniziale della qualità della presenza dell'isoforma in un particolare picco (Figura 5).
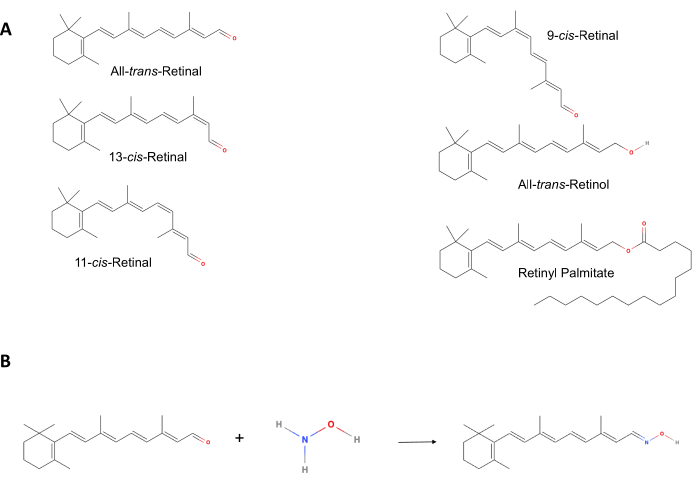
Figura 1: Strutture chimiche dei retinoidi. (A) Questi retinoidi si trovano tipicamente nel tessuto murino estratto. Si notino i diversi gruppi terminali polari, così come le diverse posizioni dei doppi legami cis negli isomeri dei retinoidi. (B) La conversione delle retinaldeidi in ossime retiniche aumenta l'efficienza dell'estrazione, previene la co-eluizione dei picchi con il palmitato di retinile, così come la co-eluizione all'interno degli isomeri della retinaldeide. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 2: Flusso di lavoro per la raccolta, l'omogeneizzazione, l'estrazione e l'analisi dei retinoidi. Le retine e i campioni di tessuto di topi adattati al buio sono stati omogeneizzati ed estratti. Passo 1: Dopo l'eutanasia dei topi secondo le linee guida, vengono raccolti sangue e vari tessuti. Fasi 2-4: L'omogeneizzazione dei tessuti viene quindi eseguita con soluzione fisiologica e metanolo, con idrossilammina cloridrato per analisi quantitative. Fasi 5-7: I retinoidi vengono trattati con esano, seguiti dall'evaporazione. Passi 8,9: Risospeso con 100 μL di esano per assicurarsi che tutti i retinoidi siano disciolti. Passo 10: Infine, i campioni vengono analizzati mediante HPLC. Abbreviazione: HPLC = Cromatografia liquida ad alte prestazioni. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 3: Cromatogramma degli standard dei retinoidi e degli standard dei retinoidi trattati con idrossilammina. (A) Questo cromatogramma contiene gli standard di retinile palmitato, 13-cis-retinale, 11-cis-retinale, all-trans-retinal, 11-cis-retinolo, 13-cis-retinolo e all-trans-retinolo. (B) Questo cromatogramma contiene gli standard di retinile palmitato, 13-cis-retinale, 11-cis-retinale, all-trans-retinal, 11-cis-retinolo, 13-cis-retinolo e all-trans-retinolo. Questo cromatogramma contiene gli isomeri della retinaldeide syn e anti ossima, oltre agli isomeri del retinolo. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 4: Cromatogrammi rappresentativi. (A) Cromatogramma rappresentativo del tessuto oculare di topo. Questo cromatogramma contiene retinoidi che si trovano tipicamente nel tessuto oculare murino, compresi gli isomeri della retinaldeide, oltre agli isomeri del retinolo. (B) Cromatogramma rappresentativo del tessuto oculare di topo trattato con idrossilammina. Si noti che al posto delle retinaldeidi non chimicamente modificate presenti nei precedenti cromatogrammi (Figura 4A), questo cromatogramma contiene gli isomeri syn e anti ossima retinaldeide, oltre agli isomeri del retinolo. (C) Cromatogramma rappresentativo del tessuto epatico di topo. Questo cromatogramma contiene retinoidi che si trovano tipicamente nel tessuto epatico murino, tra cui il palmitato di retinile e il retinolo. (D) Cromatogramma rappresentativo del sangue di topo. Questo cromatogramma contiene retinoidi che si trovano tipicamente nel sangue murino, incluso l'all-trans-retinolo. Fare clic qui per visualizzare una versione più grande di questa figura.
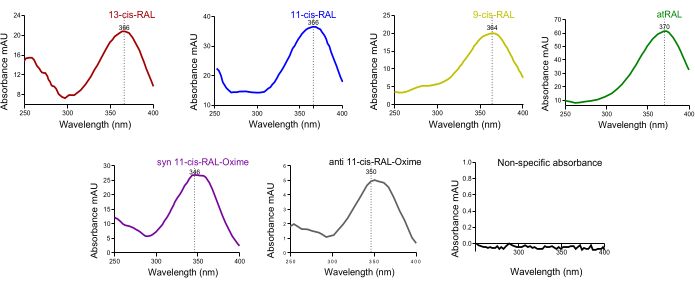
Figura 5: Spettro di assorbanza UV degli isomeri della retinaldeide dal tessuto oculare murino. Spettri di assorbanza di (A) 13-cis-retinale, (B) 11-cis-retinico, (C) 9-cis-retinale, (D) all-trans-retinal, (E) syn 11-cis-retinal oxime, (F) anti 11-cis-retinal oxime. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 6: Panoramica dei moduli HPLC, del flusso di fase mobile e di altra strumentazione. Il flusso in fase mobile inizia dai flaconi di solvente preparati e viene pompato ad alta pressione dalla pompa binaria nell'autocampionatore, dove l'analita viene incorporato nel flusso di solvente. La fase mobile e l'analita raggiungono il vano della colonna a temperatura regolata e, infine, nel rivelatore a serie di diodi per la misura. (A) Schermo del monitor colorato di rosso che riduce al minimo la fotoisomerizzazione dei retinoidi. (B) Pompa binaria. (C) Campionatore di fiale. (D) Termostato multicolonna. (E) Rivelatore a serie di diodi. (F) Collettore di frazioni analitiche. (G) Contenitore per rifiuti in polietilene ad alta densità. (H) Da sinistra a destra, tappo a crimpare in alluminio, inserto da 250 μL con piedini in polimero, flacone superiore a crimpare color ambra, assemblaggio finale del flacone per iniezione. (I) A sinistra, centrifuga refrigerata. A destra, concentratore a centrifuga. Clicca qui per visualizzare una versione più grande di questa figura.
| Composto | Assorbimento molare (ε) | Solvente | Riferimento |
| Palmitato di retinile | 49260 | Etanolo | Hubbard et al.49 |
| 13-cis-retinale | 35500 | Etanolo | Hubbard et al.49 |
| 11-cis-retinico | 24935 | Etanolo | Hubbard et al.49 |
| 9-cis-retinale | 36100 | Etanolo | Robeson et al.51 |
| All-trans-Retinal | 42880 | Etanolo | Hubbard et al.49 |
| 11-cis-retinolo | 34890 | Etanolo | Hubbard et al.49 |
| 13-cis-retinolo | 48305 | Etanolo | Robeson et al.50 e Robeson et al.51 |
| All-trans-Retinolo | 52770 | Etanolo | Hubbard et al.49 |
Tabella 1: Assorbimento molare dei retinoidi nell'etanolo. I valori di assorbività molare dei retinoidi sono stati raccolti da Kane e Napoli44, Hubbard et al.46, Robeson et al.47 e Robeson et al.48. L'assorbività molare dipende dal solvente. I valori qui elencati sono specifici per i retinoidi disciolti in etanolo.
| Fazzoletto | Quantità di raccolta dei tessuti | Volume per l'omogeneizzazione |
| Sangue | 75 μl | N/A |
| Fegato | 0,2 g | 2 ml |
| Rene | 2 reni interi | 2 ml |
| Pelle | 0,2 g | 1 ml – 1,5 ml |
| Milza | 1 milza intera | 1 ml |
| Occhio | Entrambi Retina, pool 4 Retina | 1 ml |
| Cervello | 1 Cervello intero | 2 ml |
| Cuore | 1 Cuore intero | 1 ml |
| Polmone | 0,2 g | 2 ml |
Tabella 2: Quantità di tessuto raccomandata per analisi. Quantità di tessuto per analisi e volume di soluzione salina ghiacciata al 50% (0,9%) e metanolo al 50% per l'omogeneizzazione dei tessuti, come raccomandato da Kane e Napoli44.
| Composto | Tempo di ritenzione (min) | Assorbanza UV Maxima (nm) |
| Palmitato di retinile | 5.177 | 326 |
| 13-cis-retinale | 7.268 | 366 |
| 11-cis-retinico | 7.691 | 366 |
| 9-cis-retinale | 7.931 | 364 |
| All-trans-Retinal | 8.993 | 370 |
| 11-cis-retinolo | 17.003 | 318 |
| 13-cis-retinolo | 17.83 | 328 |
| All-trans-Retinolo | 23.933 | 326 |
Tabella 3: Tempi di ritenzione e lunghezze d'onda massime di assorbanza dei retinoidi. Questi valori sono stati osservati quando utilizzati con il metodo descritto e la fase mobile, come rilevato con il rivelatore a schiera di diodi di riferimento.
| Composto | Tempo di ritenzione (min) | Assorbanza UV Maxima (nm) |
| Syn 11-cis-Ossima retinica | 9.59 | 346 |
| Syn Ossima all-trans-retinica | 10.6 | 356 |
| Syn 13-cis-ossima retinica | 11.3 | 352 |
| Anti 13-cis-Ossima retinica | 13 | 356 |
| Anti 11-cis-Ossima retinica | 15.1 | 350 |
| Anti Ossima all-trans-retinica | 19.7 | 360 |
Tabella 4: Tempi di ritenzione e lunghezze d'onda massime di assorbanza delle retinaldeidi trattate con idrossilammina, con conseguente isomeri syn e anti ossima di ciascuna retinaldeide. Questi valori sono stati osservati quando utilizzati con il metodo descritto e la fase mobile, come rilevato con il rivelatore a schiera di diodi di riferimento.
Discussione
In questo metodo, l'HPLC in fase normale viene utilizzata per rilevare e quantificare i retinoidi rilevanti, inclusi esteri di retinile, retinaldeidi e retinoli. Data l'importanza dell'11-cis-retinico come cromoforo critico nell'attivazione della rodopsina GPCR, un metodo in grado di rilevare i metaboliti correlati alla produzione di 11-cis-retinico è fondamentale per lo studio della funzione visiva complessiva. Il vantaggio principale di questo metodo è che tutti gli isomeri rilevanti sia della retinaldeide che dei retinoli possono essere rilevati e quantificati contemporaneamente con un'unica corsa. Data la scarsità di tessuti sperimentali vitali, questo metodo consente un uso efficiente del tessuto nella rilevazione dei retinoidi. Mentre l'uso di fasi mobili a base di esano e acetato di etile è stato riportato nella separazione dei retinoidi49, l'aggiunta di 1,4-diossano e 1-ottanolo migliora la risoluzione degli isomeri dei retinoidi. L'1,4-diossano è necessario per la risoluzione del 13-cis-retinolo e dell'11-cis-retinolo50, mentre gli alcoli a catena lunga come l'1-ottanolo migliorano ulteriormente la separazione degli isomeri del retinolo 45,51,52.
Per la quantificazione degli isomeri della retinaldeide, è necessaria una precedente conversione nelle corrispondenti ossime di retinaldeide con idrossilammina, poiché il gruppo aldeidico reattivo è incline a reagire con altre biomolecole come proteine e lipidi 45,53,54. Le ossime di retinaldeide vengono estratte più facilmente e causano l'eluizione dei picchi di retinaldeide più tardi nella corsa, impedendo così la co-eluizione del picco con il gruppo sconosciuto di picchi e il picco di palmitato di retinile che eluisce a ~5-8 min per i tessuti biologici. Il trattamento delle retinaldeidi con idrossilammina previene anche la co-eluizione di retinaldeidi con tempi di eluizione simili45. La conversione in ossime di retinaldeide genera sia isomeri syn che anti, che eluiscono in due tempi diversi con due picchi diversi per ogni isomero della retinaldeide. L'integrazione per entrambi i picchi deve essere sommata per quantificare correttamente ciascun isomero della retinaldeide. Oltre al tempo di ritenzione, gli spettri UV forniscono un'altra metrica che può essere utilizzata nell'identificazione dei picchi. Ogni retinoide presenta un massimo di assorbanza UV leggermente diverso. Se prese in considerazione insieme al tempo di ritenzione, queste due metriche consentono l'identificazione accurata dei picchi (Tabella 3 e Tabella 4).
Mentre la presenza di isomeri canonici della retinaldeide come l'11-cis-retinico e l'all-trans-retinico sono attesi nel tessuto oculare, con l'11-cis-retinico che è il cromoforo critico del ligando della rodopsina e l'all-trans-retinico che è il ligando fotoisomerizzato, altri isomeri della retinaldeide non canonici vengono rilevati con questo metodo. In particolare, il 13-cis-retinale è stato prontamente rilevato in cicli HPLC di tessuto oculare murino durante la nostra analisi (Figura 4A-D). La comparsa di queste retinaldeidi non canoniche non è del tutto inaspettata, tuttavia, sia la 13-cis-retinale che la 9-cis-retinale sono noti sottoprodotti derivanti dallo stress indotto dalla luce sulla retina 55,56. Questi isomeri della retinaldeide non partecipano alla nota via canonica della cascata di fototrasduzione e i loro destini metabolici rimangono relativamente sconosciuti. Tuttavia, è stato dimostrato che il 9-cis-retinico si lega stabilmente anche alla tasca di legame della rodopsina, formando l'isorhodopsina. Il ruolo dell'isorhodopsina deve ancora essere completamente caratterizzato, ma gli studi hanno dimostrato che l'isorhodopsina mostra capacità fotosensibili molto simili alla rodopsina 57,58 a base di 11-cis-retina. Per lo meno, la capacità del 9-cis-retinale di formare stabilmente l'isorhodopsina e di fotoisomerizzarsi in all-trans-retinal fornisce una spiegazione ragionevole per la sua assenza nella nostra analisi HPLC56. Il 13-cis-retinale, d'altra parte, non ha dimostrato di partecipare ad alcuna via biochimica oculare nota e il suo accumulo all'interno del tessuto oculare potrebbe provocare stress ossidativo all'interno della retina 55,59,60.
Sebbene il 9-cis-retinico non si trovi tipicamente nel tessuto murino, va detto che il metodo trattato con idrossilammina non è un metodo praticabile per la separazione e la quantificazione del 9-cis-retinale. I picchi per syn 9-cis-retinal e syn 13-cis-retinal si eluiscono a 11,2 min. Nei casi in cui sono attese quantità significative di 9-cis-retinale, come quando viene applicato esogenamente, sarà possibile solo la quantificazione combinata di 9-cis-retinale e 13-cis-retinale. Per l'identificazione qualitativa, l'esecuzione del metodo senza trattare il tessuto con idrossilammina consente la completa separazione dei picchi 13-cis-retinali e 9-cis-retinali.
Oltre che al tessuto oculare, questo metodo può essere facilmente applicato anche al tessuto sistemico. Mentre le retinaldeidi nelle loro varie forme isomeriche non si trovano tipicamente nei tessuti sistemici, il retinolo all-trans legato alla proteina legante il retinolo 4 (olo-RBP4) è la principale forma di trasporto della vitamina A negli organismi dei mammiferi e il retinolo all-trans può essere facilmente rilevato nel sangue utilizzando questo metodo. Oltre che nel sangue, anche l'all-trans-retinolo può essere tipicamente rilevato in tutti i tessuti sistemici. Quindi, utilizzando questo metodo, è possibile creare un profilo retinoide sistemico completo a livello tissutale.
Poiché le retinaldeidi, in particolare il ligando critico della rodopsina 11-cis-retinal, sono estremamente suscettibili alla fotoisomerizzazione, è fondamentale adottare misure preventive per prevenire l'esposizione accidentale alla luce durante una qualsiasi delle fasi sopra descritte. Oltre alle ovvie fonti provenienti dall'illuminazione delle stanze e dai cruscotti, abbiamo scoperto che la luce errata proveniente dai LED accessori in vari strumenti, come quelli che si trovano dietro gli strumenti, incluso l'HPLC stesso, sono le principali fonti di esposizione accidentale alla luce (Figura 6). Inoltre, abbiamo scoperto che una camera oscura dedicata era vitale per la corretta gestione degli isomeri della retinaldeide e dei tessuti sperimentali. Oltre alla minimizzazione della luce, si raccomanda che il tessuto venga elaborato rapidamente e prontamente dopo l'eutanasia e il raccolto, poiché la degradazione degli isomeri della retinaldeide avviene anche in assenza di luce. Idealmente, il prelievo dei tessuti, l'estrazione e l'analisi HPLC dovrebbero essere completati lo stesso giorno.
Il tessuto che non viene lavorato immediatamente deve essere conservato al buio a -80 °C e non deve essere conservato per più di una settimana prima della lavorazione. Come accennato in precedenza, tutti i solventi utilizzati nella fase mobile e nelle fasi di estrazione nel metodo sopra descritto sono altamente tossici, volatili e infiammabili. Quando si maneggiano questi solventi pericolosi, è necessario utilizzare procedure e attrezzature adeguate. Prima della manipolazione del solvente, è necessario indossare adeguati dispositivi di protezione individuale (DPI) come guanti butilici, respiratori approvati dal NIOSH e protezioni per gli occhi e tutti i trasferimenti di solvente devono essere effettuati all'interno di una cappa aspirante. Tenere presente che l'1,4-diossano è suscettibile alla formazione di perossido esplosivo in seguito all'esposizione all'ossigeno e tenere tutti i contenitori di solventi con 1,4-diossano ermeticamente sigillati dall'aria.
Se un metodo HPLC in fase normale non è praticabile a causa di materiali o attrezzature inadeguati, esistono metodi più tipici in fase inversa con solventi meno volatili come l'acetonitrile e l'acqua per rilevare e quantificare le retinaldeidi e i retinoli. Tuttavia, questi metodi non sono in grado di separare gli isomeri e sono in grado di rilevare solo le retinaldeidi totali o i retinoli totali44,54.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interesse.
Ringraziamenti
Questo lavoro è stato sostenuto da sovvenzioni NIH-NEI (EY030889 e 3R01EY030889-03S1) e in parte dai fondi di avviamento dell'Università del Minnesota a G.P.L. Vorremmo anche ringraziare il National Eye Institute per averci fornito lo standard 11-cis-retinale utilizzato in questo manoscritto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Reagente | |||
| 1-ottanolo, adatto per HPLC, ≥ 99,5% | Sigma-Aldrich, Millipore Sigma | 203-917-6 | |
| 1,4-diossano, adatto per HPLC, ≥ 99,5% | Sigma-Aldrich, Millipore Sigma | 204-661-8 | |
| 11-cis-retinal | National Eye Institute | N/A | |
| 11-cis-retinolo | Toronto Research Chemicals | TRC-R252105 | |
| 13-cis-retinal | Toronto Research Chemicals | TRC-R239900 | |
| 13-cis-retinolo | Toronto Research Chemicals | TRC-R252110 | |
| Prodotti chimici di ricerca di Toronto all-trans-retinal | TRC-R240000 | ||
| All-trans-Retinol | Toronto Research Chemicals | TRC-R252002 | |
| acetato di etile, adatto per HPLC, ≥ 99,7% | Sigma-Aldrich, Millipore Sigma | 205-500-4 | |
| Hesane, HPLC Grade | Fisher Scientific, Spectrum Chemical | 18-610-808 | |
| Metanolo (HPLC) | Fisher Scienctific | A452SK-4 | |
| Retinil Palmitato | Toronto Research Chemicals | TRC-R275450 | |
| Cloruro di sodio (cristallino/certificato ACS) | Fisher Scientific | S271-500 | |
| Instruments | |||
| 1260 Collettore di frazioni analitiche Infinity II | Agilent | G1364F | |
| Pompa binaria 1260 Infinity II | Agilent | G7112B | |
| 1260 Rivelatore array di diodi Infinity II | Agilent | G7115A | |
| 1260 Termostato multicolonna Infinity II | Agilent | G7116A | |
| 1260 Infinity II Fialsampler | Agilent | G7129A | |
| ST40R Centrifuga refrigerata | Thermo Scientific | TSST40R | |
| Vacufuge Plus Concentratore di centrifuga | Eppendorf | 22820168 | |
| Consumabili | |||
| 2 mL Ambra Fiale con tappo a vite | Agilent | 5188-6535 | |
| Tappo a crimpare con setti in PTFE/gomma rossa, 11 mm | Agilent | 5183-4498 | |
| Provette da centrifuga coniche monouso in vetro | Millipore Sigma | CLS9950215 | |
| Tubo con tappo a vite, 15 mL | Sarstedt | 62.554.502 | |
| Inserto per fiale, 150 &; L, vetro con piedini in polimero | Agilent | 5183-2088 |
Riferimenti
- Palczewski, K., et al. Crystal structure of rhodopsin: A G protein-coupled receptor. Science. 289 (5480), 739-745 (2000).
- Rosenbaum, D. M., Rasmussen, S. G. F., Kobilka, B. K. The structure and function of G-protein-coupled receptors. Nature. 459 (7245), 356-363 (2009).
- Alhosaini, K., Azhar, A., Alonazi, A., Al-Zoghaibi, F. GPCRs: The most promiscuous druggable receptor of the mankind. Saudi Pharm J. 29 (6), 539-551 (2021).
- Hu, G. -M., Mai, T. -L., Chen, C. -M. Visualizing the GPCR network: Classification and evolution. Sci Rep. 7 (1), 15495(2017).
- Lerea, C. L., Somers, D. E., Hurley, J. B., Klock, I. B., Bunt-Milam, A. H. Identification of specific transducin α subunits in retinal rod and cone photoreceptors. Science. 234 (4772), 77-80 (1986).
- Gao, Y., Hu, H., Ramachandran, S., Erickson, J. W., Cerione, R. A., Skiniotis, G. Structures of the rhodopsin-transducin complex: Insights into G protein activation. Mol Cell. 75 (4), 781-790.e3 (2019).
- Zhou, X. E., Melcher, K., Xu, H. E. Structure and activation of rhodopsin. Acta Pharmacol Sin. 33 (3), 291-299 (2012).
- Robinson, P. R., Cohen, G. B., Zhukovsky, E. A., Oprian, D. D. Constitutively active mutants of rhodopsin. Neuron. 9 (4), 719-725 (1992).
- Kiser, P. D., Golczak, M., Palczewski, K. Chemistry of the retinoid (visual) cycle. Chem Rev. 114 (1), 194-232 (2014).
- Sani, B. P., Hill, D. L. [3] Structural characteristics of synthetic retinoids. Methods Enzymol. 189, 43-50 (1990).
- Lobo, G. P., Amengual, J., Palczewski, G., Babino, D., von Lintig, J. Carotenoid-oxygenases: Key players for carotenoid function and homeostasis in mammalian biology. Biochim Biophys Acta. 1821 (1), 78-87 (2012).
- Amengual, J., et al. Two carotenoid oxygenases contribute to mammalian provitamin A metabolism. J Biol Chem. 288 (47), 34081-34096 (2013).
- Harrison, E. H. Mechanisms involved in the intestinal absorption of dietary vitamin A and provitamin A carotenoids. Biochim Biophys Acta. 1821 (1), 70-77 (2012).
- Leung, M., et al. The logistical backbone of photoreceptor cell function: Complementary mechanisms of dietary vitamin A receptors and rhodopsin transporters. Int J Mol Sci. 25 (8), 4278(2024).
- Martin Ask, N., Leung, M., Radhakrishnan, R., Lobo, G. P. Vitamin A transporters in visual function: A mini review on membrane receptors for dietary vitamin A uptake, storage, and transport to the eye. Nutrients. 13 (11), 3987(2021).
- Harrison, E. H. Carotenoids, β-apocarotenoids, and retinoids: The long and the short of it. Nutrients. 14 (7), 1411(2022).
- Li, Y., Wongsiriroj, N., Blaner, W. S. The multifaceted nature of retinoid transport and metabolism. Hepatobiliary Surg Nutr. 3 (3), 126-139 (2014).
- D'Ambrosio, D. N., Clugston, R. D., Blaner, W. S. Vitamin A metabolism: An update. Nutrients. 3 (1), 63-103 (2011).
- Yamamoto, Y., et al. Interactions of transthyretin (TTR) and retinol-binding protein (RBP) in the uptake of retinol by primary rat hepatocytes. Exp Cell Res. 234 (2), 373-378 (1997).
- Kawaguchi, R., et al. A membrane receptor for retinol binding protein mediates cellular uptake of vitamin A. Science. 315 (5813), 820-825 (2007).
- Kiser, P. D., Golczak, M., Maeda, A., Palczewski, K. Key enzymes of the retinoid (visual) cycle in vertebrate retina. Biochim Biophys Acta. 1821 (1), 137-151 (2012).
- Radhakrishnan, R., et al. The role of motor proteins in photoreceptor protein transport and visual function. Ophthalmic Genet. 43 (3), 285-300 (2022).
- Solanki, A. K., et al. Loss of motor protein MYO1C causes rhodopsin mislocalization and results in impaired visual function. Cells. 10 (6), 1322(2021).
- Liu, X., Udovichenko, I. P., Brown, S. D. M., Steel, K. P., Williams, D. S. Myosin VIIa participates in opsin transport through the photoreceptor cilium. J Neurosci. 19 (15), 6267-6274 (1999).
- Insinna, C., Besharse, J. C. Intraflagellar transport and the sensory outer segment of vertebrate photoreceptors. Dev Dyn. 237 (8), 1982-1992 (2008).
- Krock, B. L., Mills-Henry, I., Perkins, B. D. Retrograde intraflagellar transport by cytoplasmic dynein-2 is required for outer segment extension in vertebrate photoreceptors but not arrestin translocation. Invest Ophthalmol Vis Sci. 50 (11), 5463-5471 (2009).
- Blaner, W. S. STRA6, a cell-surface receptor for retinol-binding protein: The plot thickens. Cell Metab. 5 (3), 164-166 (2007).
- Bouillet, P., et al. Developmental expression pattern of Stra6, a retinoic acid-responsive gene encoding a new type of membrane protein. Mech Dev. 63 (2), 173-186 (1997).
- Blomhoff, R., Norum, K. R., Berg, T. Hepatic uptake of [3H]retinol bound to the serum retinol binding protein involves both parenchymal and perisinusoidal stellate cells. J Biol Chem. 260 (25), 13571-13575 (1985).
- Kelly, M., von Lintig, J. STRA6: role in cellular retinol uptake and efflux. Hepatobiliary Surg Nutr. 4 (4), 229-242 (2015).
- Quadro, L., et al. The role of extrahepatic retinol binding protein in the mobilization of retinoid stores. J. Lipid Res. 45 (11), 1975-1982 (2004).
- Alapatt, P., et al. Liver retinol transporter and receptor for serum retinol-binding protein (RBP4). J Biol Chem. 288 (2), 1250-1265 (2013).
- Chawla, A., Repa, J. J., Evans, R. M., Mangelsdorf, D. J. Nuclear receptors and lipid physiology: Opening the X-files. Science. 294 (5548), 1866-1870 (2001).
- Heyman, R. A., et al. 9-cis retinoic acid is a high affinity ligand for the retinoid X receptor. Cell. 68 (2), 397-406 (1992).
- Allenby, G., et al. Retinoic acid receptors and retinoid X receptors: interactions with endogenous retinoic acids. Proc Natl Acad Sci USA. 90 (1), 30-34 (1993).
- Das, B. C., et al. Retinoic acid signaling pathways in development and diseases. Bioorg Med Chem. 22 (2), 673-683 (2014).
- Hernandez, R. E., Putzke, A. P., Myers, J. P., Margaretha, L., Moens, C. B. Cyp26 enzymes generate the retinoic acid response pattern necessary for hindbrain development. Development. 134 (1), 177-187 (2007).
- Yashiro, K., et al. Regulation of retinoic acid distribution is required for proximodistal patterning and outgrowth of the developing mouse limb. Dev Cell. 6 (3), 411-422 (2004).
- Duester, G. Families of retinoid dehydrogenases regulating vitamin A function. Eur J Biochem. 267 (14), 4315-4324 (2000).
- Tatum, V., Chow, C. K. Rapid measurement of retinol, retinal, 13-cis-retinoic acid and all-trans-retinoic acid by high performance liquid chromatography. J Food Drug Anal. 13 (3), (2020).
- Teerlink, T., Copper, M. P., Klaassen, I., Braakhuis, B. J. M. Simultaneous analysis of retinol, all-trans- and 13-cis-retinoic acid and 13-cis-4-oxoretinoic acid in plasma by liquid chromatography using on-column concentration after single-phase fluid extraction. J Chromatogr B. Biomed Sci App. 694 (1), 83-92 (1997).
- Egberg, D. C., Heroff, J. C., Potter, R. H. Determination of all-trans and 13-cis vitamin A in food products by high-pressure liquid chromatography. J Agric Food Chem. 25 (5), 1127-1132 (1977).
- Sudo, Y., et al. A microbial rhodopsin with a unique retinal composition shows both sensory rhodopsin II and bacteriorhodopsin-like properties. J Biol Chem. 286 (8), 5967-5976 (2011).
- Kane, M. A., Napoli, J. L. Quantification of endogenous retinoids. Methods Mol Biol. 652, 1-54 (2010).
- Landers, G. M., Olson, J. A. Rapid, simultaneous determination of isomers of retinal, retinal oxime and retinol by high-performance liquid chromatography. J Chromatogr A. 438, 383-392 (1988).
- Hubbard, R., Brown, P. K., Bownds, D. [243] Methodology of vitamin A and visual pigments. Methods Enzymol. 18, 615-653 (1971).
- Robeson, C. D., et al. Chemistry of vitamin A. XXIV. The synthesis of geometric isomers of vitamin A via methyl β-methylglutaconate1. J Am Chem Soc. 77 (15), 4111-4119 (1955).
- Robeson, C. D., Blum, W. P., Dieterle, J. M., Cawley, J. D., Baxter, J. G. Chemistry of vitamin A. XXV. Geometrical isomers of vitamin A aldehyde and an isomer of its α-ionone analog1. J Am Chem Soc. 77 (15), 4120-4125 (1955).
- Hubinger, J. C. Determination of retinol, retinyl palmitate, and retinoic acid in consumer cosmetic products. J Cosmet Sci. 60 (5), 485-500 (2009).
- Bhat, P. V., Co, H. T., Lacroix, A. Effect of 2-alkanols on the separation of geometric isomers of retinol in non-aqueous high-performance liquid chromatography. J Chromatogr A. 260, 129-136 (1983).
- Stancher, B., Zonta, F. Quantitative high-performance liquid chromatographic method for determining the isomer distribution of retinol (vitamin A1) and 3-dehydroretinol (vitamin A2) in fish oils. J Chromatogr. 312, 423-434 (1984).
- Zonta, F., Stancher, B. High-performance liquid chromatography of retinals, retinols (vitamin A1) and their dehydro homologues (vitamin A2): improvements in resolution and spectroscopic characterization of the stereoisomers. J Chromatogr A. 301, 65-75 (1984).
- van Kuijk, F. J., Handelman, G. J., Dratz, E. A. Rapid analysis of the major classes of retinoids by step gradient reversed-phase high-performance liquid chromatography using retinal (O-ethyl) oxime derivatives. J Chromatogr. 348 (1), 241-251 (1985).
- Kane, M. A., Folias, A. E., Napoli, J. L. HPLC/UV quantitation of retinal, retinol, and retinyl esters in serum and tissues. Anal Biochem. 378 (1), 71-79 (2008).
- Widjaja-Adhi, M. A. K., Ramkumar, S., von Lintig, J. Protective role of carotenoids in the visual cycle. FASEB J. 32 (11), 6305-6315 (2018).
- Ramkumar, S., Jastrzebska, B., Montenegro, D., Sparrow, J. R., von Lintig, J. Unraveling the mystery of ocular retinoid turnover: Insights from albino mice and the role of STRA6. J Biol Chem. 300 (3), 105781(2024).
- de Grip, W. J., Lugtenburg, J. Isorhodopsin: An undervalued visual pigment analog. Colorants. 1 (3), 256-279 (2022).
- Fan, J., Rohrer, B., Moiseyev, G., Ma, J., Crouch, R. K. Isorhodopsin rather than rhodopsin mediates rod function in RPE65 knock-out mice. Proc Natl Acad Sci USA. 100 (23), 13662-13667 (2003).
- Sparrow, J. R. Bisretinoids of RPE lipofuscin: Trigger for complement activation in age-related macular degeneration. Adv Exp Med Biol. 703, 63-74 (2010).
- Różanowska, M., Handzel, K., Boulton, M. E., Różanowski, B. Cytotoxicity of all-trans-retinal increases upon photodegradation. Photochem Photobiol. 88 (6), 1362-1372 (2012).
Ristampe e permessi
