Questo protocollo descrive in dettaglio la preparazione di terreni limitati da Zn2+, vasi di crescita e colture di semi per produrre ribosomi limitati da Zn2+ nei micobatteri. Tracce di Zn2+ portano a una crescita limitante di Zn2+ e descriviamo le caratteristiche morfogeniche utilizzate come bioindicatori per verificare la limitazione di Zn2+ in vitro nel batterio modello, Mycobacterium smegmatis, e nel patogeno umano M. tuberculosis.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Utilizzo di Mycobacterium smegmatis come bioindicatore per le condizioni di crescita limitata allo zinco nei micobatteri
* These authors contributed equally
In questo articolo
Sommario
Abstract
Molti batteri costruiscono ribosomi alternativi in condizioni di crescita limitanti Zn2+, sostituendo le proteine ribosomiali leganti Zn2+ con paraloghi indipendenti da Zn2+. La definizione di un sistema per studiare questi ribosomi alternativi si è rivelata difficile perché la contaminazione da Zn2+ in laboratorio è comune. Per affrontare questo problema, gli agenti chelanti vengono talvolta aggiunti ai terreni di crescita, ma questo approccio complica la risposta biologica alla graduale limitazione di Zn2+ ed è associato al letargo dei ribosomi. Qui, vengono delineate istruzioni dettagliate per la preparazione dei terreni e le colture di semina per una crescita limitata a Zn2+ senza l'aggiunta di chelanti. Seguendo questo metodo, il batterio modello, Mycobacterium smegmatis, subisce la morfogenesi, che dipende da ribosomi alternativi. Poiché la morfogenesi è trattabile e si verifica solo in condizioni limitanti di Zn2+, M. smegmatis può essere utilizzato come bioindicatore per verificare le condizioni di crescita biologicamente rilevanti. Vengono descritti tre fenotipi di bioindicatori (densità cellulare, lunghezza cellulare e fluorescenza del coenzima F420) che indicano una limitazione di Zn2+ nel wild-type e vengono delineati i cambiamenti in questi bioindicatori per un mutante di delezione che non può costruire ribosomi alternativi. Poiché la contaminazione da tracce di Zn2+ è difficile da controllare per ogni lotto di terreno e la quantificazione precisa di Zn2+ in ogni preparazione di terreno è eccessivamente onerosa, seguire questo fenotipo di bioindicatore è un modo accessibile per convalidare la preparazione di terreni di crescita limitati da Zn2+. Per aiutare a identificare le condizioni corrette per la crescita limitante di Zn2+ e la produzione alternativa di ribosomi, sono stati profilati cambiamenti nei fenotipi dei bioindicatori anche per preparazioni contaminate da Zn2+ o gravemente impoverite di Zn2+ di terreni limitati da Zn2+. Vengono presentati ulteriori dettagli per ottenere una crescita limitante di Zn2+ e una produzione alternativa di ribosomi in M. tuberculosis, insieme al fenotipo bioindicatore associato. Nel complesso, le istruzioni dettagliate e i fenotipi bioindicatori qui descritti aiuteranno a standardizzare la produzione di ribosomi alternativi traduzionalmente attivi nei micobatteri.
Introduzione
Lo ione zinco (Zn2+) è un micronutriente essenziale e un componente standard dei mezzi microbiologici. Tuttavia, molti batteri sopportano la limitazione di Zn2+ nell'ambiente poiché le condizioni limitanti di Zn2+ sono diffuse; soil1, marine2 e nicchie all'interno dell'host3 sono spesso limitate a Zn2+. Pertanto, la maggior parte dei batteri ha sviluppato meccanismi per superare la limitazione di Zn2+ e preservare la funzione cellulare4. I sistemi coinvolti nel mantenimento dell'omeostasi di Zn2+ sono sotto stretto controllo trascrizionale5 e sono coinvolti nello scavenging di Zn2+ utilizzando sistemi di importazione di Zn2+ ad alta affinità, mobilizzando le riserve cellulari di Zn2+ e sostituendo alcune proteine leganti Zn2+ con paraloghi alternativi indipendenti da Zn2+6. Un esempio di quest'ultimo è rappresentato dai paraloghi della proteina ribosomiale (RPs) Zn2+-indipendente, che sono una caratteristica comune dei regolatori Zn2+-responsivi nei batteri4. Questi RP indipendenti da Zn2+ altamente divergenti si distinguono dai loro paraloghi di legame Zn2+ per l'interruzione del motivo CXXC di legame Zn2+7. Più della metà dei genomi procariotici sequenziati contiene almeno una coppia di RP duplicati dove, in molti di essi, un RP lega Zn2+, mentre il suo paralogo non8. Mentre la notazione C+/C- (che indica la presenza/assenza del motivo di legame Zn2+ ricco di cisteina) è comunemente usata in riferimento a queste coppie di RP paraloghi7, gli RP indipendenti da Zn2+ sono stati anche descritti come versioni alternative (Alt) dei paraloghi RP primari (Prim), che legano Zn2+, poiché gli AltRP servono come RP alternativi per la biogenesi dei ribosomi nello Zn2+-condizione limitata in alcuni batteri ed è una parola chiave con una migliore ricercabilità9,10,11.
Poiché l'espressione di AltRP è strettamente regolata da Zn2+, è logico supporre che l'espressione di AltRP offra ridondanza funzionale alle proteine ribosomiali Zn2+-dipendenti a fronte della limitazione di Zn2+. Infatti, questa caratteristica degli AltRP è stata dimostrata per il batterio del suolo modello Bacillus subtilis, dove la crescita viene salvata durante la limitazione di Zn2+ liberando il PrimRP L31 di superficie e sostituendolo con l'AltRP L3112,13. Tuttavia, alcuni AltRP sono paraloghi ai PrimRP principali, ad esempio S14, il che significa che la loro incorporazione è necessaria durante la biogenesi dei ribosomi12,13. La ricostruzione del ribosoma con gli AltRP è un programma impegnato e ad alta intensità energetica. Mentre questi AltRP principali possono servire a liberare Zn2+ dal ribosoma, è anche possibile che alcuni AltRP abbiano sviluppato una funzione aggiuntiva nell'ambiente limitato da Zn2+. Ciò è supportato dall'osservazione che gli AltRP divergono dai loro PrimRP paraloghi; l'omologia di sequenza dei geni AltRP è spesso più alta tra gli omologhi in specie diverse rispetto alla sequenza genica PrimRP legante Zn2+ all'interno della stessa specie7,10. Poiché i geni che codificano AltRP altamente divergenti sono sotto controllo trascrizionale Zn2+-dipendente, vengono rimossi dalla pressione selettiva esercitata sui superoperoni ribosomiali strettamente regolati e altamente conservati14. La pressione selettiva disaccoppiata sull'informazione genetica che codifica il macchinario ribosomiale e gli AltRP espone questi RP a traiettorie evolutive diverse rispetto ai PrimRP omologhi e potrebbe consentire l'evoluzione specifica del lignaggio dello stesso AltRP in diversi batteri10,15. L'esistenza diffusa di AltRP nei batteri e la regolazione genetica disaccoppiata di questi RP unici solleva un'interessante questione se l'incorporazione di AltRP nei ribosomi batterici conferisca una proprietà speciale ai ribosomi contenenti AltRP (Alt-ribosomi).
I micobatteri sono un gruppo ideale di batteri per studiare le proprietà meccanicistiche degli alt-ribosomi. Innanzitutto, i micobatteri possiedono un operone altRP altamente conservato contenente quattro geni che codificano per AltRP: S14-2, S18-2, L28-2 e L33-28,9. Gli AltRP micobatterici sono significativamente diversi dai loro paraloghi PrimRP; in tutte e quattro le coppie PrimRP/AltRP, un dato gene AltRP è più simile in tutte le specie micobatteriche di quanto non lo sia al gene PrimRP nella stessa specie10. L'evoluzione specifica del lignaggio degli AltRP è evidente anche all'interno dei micobatteri, come evidenziato dagli AltRP S18-2 e L28-2 in Mycobacterium tuberculosis e M. bovis, che contengono sequenze uniche all'estremità C che non sono presenti in altri micobatteri10. In secondo luogo, questo gruppo di batteri altamente correlati contiene membri non patogeni e patogeni che risiedono in ambienti diversi, dal suolo (ad esempio, M. smegmatis) a una miriade di ospiti: umani (ad esempio, M. tuberculosis), bovini (ad esempio, M. bovis), acquatici (ad esempio, M. marinum) e aviari (ad esempio, M. avium), solo per citarne alcuni. La natura altamente conservata dell'operone altRP nei micobatteri, l'evoluzione specifica del lignaggio di specifici geni AltRP e gli ambienti molto diversi in cui esistono i membri di questo gruppo forniscono un'opportunità unica per analizzare l'evoluzione conservata e specifica del lignaggio della funzione AltRP e le proprietà meccanicistiche degli alt-ribosomi. Nonostante l'abbondanza di AltRP nei genomi procariotici, il ruolo degli AltRP e degli Alt-ribosomi è stato studiato solo in pochi batteri9,10,11,12,13,16,17,18,19. La creazione di un sistema standardizzato con metriche specifiche per convalidare le condizioni di crescita limitanti lo Zn2+ nei micobatteri migliorerebbe i risultati sperimentali e farebbe progredire la comprensione degli alt-ribosomi nel campo della ricerca sui ribosomi.
Zn2+ è un micronutriente; pertanto, tracce di contaminazione di Zn2+ nelle sostanze chimiche e nell'acqua contribuiscono alla biodisponibilità di Zn2+, anche se omesso dalla preparazione del terreno. Le tracce di Zn2+ presenti nell'acqua o nelle sostanze chimiche possono variare drasticamente da un laboratorio all'altro, influenzando così l'esito della crescita che limita lo Zn2+. Quantificare empiricamente lo [Zn2+] in ogni preparazione indipendente di terreni è eccessivamente oneroso per la maggior parte dei laboratori che conducono saggi di crescita di routine, ma un meccanismo per eliminare la possibilità di contaminazione da Zn2+ nei terreni di crescita sarebbe intrinsecamente prezioso. A tal fine, qui viene presentato un metodo dettagliato per preparare un terreno limitato da Zn2+ chimicamente definito (ZLM), vasi di crescita e colture di semi per la crescita limitante di Zn2+ e la produzione di ribosomi alternativi in M. smegmatis e M. tuberculosis. Le caratteristiche morfogeniche chiave (densità cellulare misurata da OD600, lunghezza cellulare e fluorescenza del coenzima F420) dopo la crescita in ZLM sono utilizzate per verificare che la limitazione di Zn2+ sia stata raggiunta. Il coenzima F420 è un cofattore della deazaflavina che ha ruoli importanti nel catabolismo e nella difesa contro lo stress ossidativo nei metanogeni e nei micobatteri20,21. È importante sottolineare che i micobatteri sono autofluorescenti quando eccitati a 420 nm a causa dell'abbondanza di questo cofattore22. Il legame molecolare tra [Zn2+] e la fluorescenza F420 rimane irrisolto, ma seguire la fluorescenza F420 nelle colture è un bioindicatore trattabile e affidabile.
In M. smegmatis, i fenotipi bioindicatori si verificano nei batteri wild-type, ma un mutante di delezione privo dell'operone altRP non subisce lo stesso programma morfogenico e può essere utilizzato come bioindicatore differenziale10. Sebbene M. tuberculosis non segua lo stesso programma morfogenico di M. smegmatis durante la limitazione di Zn2+, M. tuberculosis ha una risposta robusta e globale allo ZnLimitazione 2+ e fenotipo bioindicatore chiave che segue questo metodo23. Pertanto, il sistema qui definito consente di generare ribosomi Prim e Alt- nelle stesse condizioni di crescita (cioè limitazione di Zn2+), facilitando la dissezione meccanicistica della funzione dell'alt-ribosoma e il suo ruolo nel plasmare la fisiologia batterica. Questo metodo di crescita è stato utilizzato per risolvere la struttura di Ribosomi Alternativi attivi e dimostrare la loro attività traslazionale in M. smegmatis24. A ulteriore sostegno del fatto che questo metodo di crescita e fenotipo bioindicatore evidenzia la funzionalità biologica degli AltRP durante la limitazione di Zn2+, l'espressione di AltRP è necessaria per la morfogenesi Zn2+-dipendente e ha un profondo effetto sul trascrittoma e sul proteoma di M. smegmatis2+ class="xref">10,25. Lo stesso metodo, con piccole modifiche nella quantità di inoculo e nel tempo di incubazione, viene utilizzato per generare colture limitate a Zn2+ di M. tuberculosis9,23. Qui, vengono dettagliati i protocolli e i fenotipi dei bioindicatori per ottenere una crescita limitante di Zn2+ sia in M. smegmatis che in M. tuberculosis, con particolare attenzione a M. smegmatis poiché questo batterio è più sensibile alla contaminazione da Zn2+ nei terreni ed è più ampiamente accessibile rispetto al patogeno a crescita lenta.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
NOTA: I ceppi utilizzati in questo studio sono M. smegmatis wild-type mc2 155 (donato dal Dott. Robert Husson, Boston Children's Hospital) e il ceppo di delezione ΔaltRP (proveniente dal laboratorio Prisic10). Possono essere coltivati in un laboratorio di livello di sicurezza biologica 1 (BSL1) o in un laboratorio BSL2, a seconda delle normative locali sulla sicurezza biologica e delle risorse disponibili. Qui, il protocollo è descritto per un laboratorio BSL2. Se eseguito in un laboratorio BSL1, una tecnica asettica con becco Bunsen può sostituire la cappa di sicurezza biologica. Inoltre, i ricercatori che desiderano includere altri ceppi o condizioni dovranno calcolare il volume di terreno necessario in base al numero totale di colture analizzate. Manipolare M. tuberculosis patogeno H37Rv (Mtb-H37Rv; donato dal Dott. Robert Husson, Boston Children's Hospital) in un laboratorio BSL3 indossando un respiratore (ad esempio, PAPR o N95). Non riutilizzare fiasche durante la coltivazione di micobatteri altamente virulenti, come Mtb-H37Rv. M. tuberculosis auxotrofo mc26206 (Mtb-Aux) è attenuato e può essere manipolato in un laboratorio BSL2 (donato dal Dott. William R. Jacobs Jr., Albert Einstein College of Medicine).
1. Preparazione dei flaconi
NOTA: Le condizioni di crescita limitanti per Zn2+ vengono ottenute in palloni Erlenmeyer in policarbonato riutilizzabili (autoclavabili) da 250 mL. Non utilizzare palloni in vetro per la crescita limitante in Zn2+, oppure investigare e confrontare rigorose procedure di lavaggio acido con i risultati presentati in questo protocollo19. Palloni nuovi di fabbrica sono adeguati per ottenere condizioni di crescita limitanti per Zn2+, ma non mescolare mai palloni nuovi e usati all'interno dello stesso esperimento. Scartare i palloni che mostrano segni di usura (di solito alle saldature) o che sono stati utilizzati più di circa 20 volte. Controllare regolarmente i filtri dei tappi per verificarne il degrado e smaltirli se compromessi. Se presenti, scartare i coperchi dei tappi che si avvitano sulla parte superiore dei tappi e coprono i filtri. Questo metodo descrive le precauzioni adottate per pulire i palloni e prepararli per il riutilizzo.
- Etichettare in modo permanente i flaconi in modo che lo stesso set venga utilizzato esclusivamente per condizioni di limitazione di Zn2+. Etichettare un altro set di flaconi per la crescita in condizioni di abbondanza di Zn2+. L'uso di colori diversi per l'etichettatura è utile per evitare di mescolare i flaconi.
- Non permettere mai che il residuo della coltura si asciughi nei flaconi. Aggiungere acqua immediatamente nei flaconi dopo il decantamento della coltura (ad esempio, 100 mL). Se la coltura non viene raccolta al termine della crescita, svuotare i flaconi versando l'intera coltura in un contenitore per rifiuti liquidi con concentrazione finale di candeggina al 10%, dopo aver registrato i fenotipi del bioindicatore come descritto in questo protocollo.
- Sottoporre i flaconi all'autoclavaggio con ciclo per liquidi (almeno 121 °C a 15 psi) per 20 minuti, con acqua all'interno e tappi posizionati.
- Dopo l'autoclavaggio, lavare i flaconi con un detergente non ionico a bassa schiumogenicità e strofinare accuratamente utilizzando una spazzola morbida. Dedicare una spazzola esclusivamente al lavaggio dei flaconi utilizzati per la crescita in condizioni di limitazione di Zn2+. Assicurarsi che i flaconi siano puliti, senza residui né detriti. Non strofinare né usare sapone sui tappi; risciacquare delicatamente con acqua deionizzata.
- Risciacquare accuratamente i flaconi con acqua di rubinetto, seguito da tre risciacqui con acqua deionizzata (tipo II o III) e almeno un ulteriore risciacquo con acqua ultrapura (tipo I) (18,2 MΩ-cm a 25 °C e ≤ 5 ppb di carbonio organico totale).
- Posizionare i flaconi verticalmente capovolti in modo che l'acqua non possa raccogliersi sul fondo. Non utilizzare rastrelliere da laboratorio standard montate a parete, poiché queste mantengono i flaconi inclinati e permettono la formazione di piccole pozzette d'acqua. Vanno bene anche rastrelliere standard per stoviglie. Lasciare asciugare completamente i flaconi e i tappi.
- Una volta asciutti, avvitare i tappi sui flaconi e coprire i tappi con carta d'alluminio. Applicare un pezzo di nastro indicatore per autoclave sulla carta d'alluminio per indicare lo stato sterile e proteggere i filtri dei tappi dalla polvere.
- Sottoporre i flaconi puliti all'autoclavaggio (almeno 121 °C a 15 psi) per 20 minuti, seguito da un vuoto post-ciclo per asciugare il carico (se l'autoclave è dotata di questa funzione). Conservare i flaconi asciutti e protetti dalla polvere.
2. Preparazione del mezzo privo di Zn2+ (ZLM)
NOTA: utilizzare esclusivamente becher di plastica, cilindri graduati e qualsiasi altro materiale per la preparazione dei mezzi. Designare un insieme di attrezzature da laboratorio che venga usato esclusivamente per la preparazione di mezzi limitati in Zn2+. Risciacquare accuratamente tutte le attrezzature con acqua ultrapura (tipo I) prima e dopo l'uso. Utilizzare prodotti chimici ad alta purezza e acquistarli dagli stessi fornitori, se possibile.
- Preparare il mezzo di Sauton limitato in Zn2+ senza sali aggiunti di Zn2+26 mescolando i seguenti composti con circa 950 mL di acqua ultrapura in un becher di plastica da 1 L contenente una barretta magnetica:
0,5 g di KH2PO4 (0,05%; PM: 136,09)
0,5 g di MgSO4 x 7H2O (0,05%; PM: 246,48)
2 g di acido citrico anidro (0,2%; PM: 192,12)
4 g di L-asparagina, 99% (0,4%; PM: 132,12)
60 mL di glicerolo (6%)
189 µL di soluzione di citrato ferrico ammonico 1 M (0,005%; PM: 265)- Aggiungere il glicerolo utilizzando una pipetta sierologica monouso da 50 mL in plastica. Risciacquare accuratamente la pipetta aspirando e dispensando su e giù circa 10 volte nel mezzo fino a quando non rimane glicerolo residuo.
NOTA: Il glicerolo è altamente viscoso e difficile da misurare. In alternativa, il glicerolo può essere versato in un cilindro graduato e risciacquato più volte con circa 30 mL di acqua ultrapura, che vengono poi aggiunti al mezzo. Se si adotta questo metodo, iniziare con un volume inferiore (~600 mL) in modo che il volume finale non superi ~950 mL dopo l’aggiunta del glicerolo e dei risciacqui dal cilindro graduato al mezzo.
- Aggiungere il glicerolo utilizzando una pipetta sierologica monouso da 50 mL in plastica. Risciacquare accuratamente la pipetta aspirando e dispensando su e giù circa 10 volte nel mezzo fino a quando non rimane glicerolo residuo.
- Portare il volume del mezzo a circa 950 mL e mescolare bene. La L-asparagina richiede alcuni minuti per sciogliersi; attendere finché non rimangono fiocchi bianchi prima di procedere.
NOTA: La soluzione di citrato ferrico ammonico conferisce al mezzo un colore giallo chiaro. - Preparare 15 mL di soluzione fresca di NaOH (~10% p/v) con acqua ultrapura in un contenitore di plastica (ad esempio, un tubo conico da 15 mL).
- Risciacquare accuratamente un pHmetro con acqua ultrapura prima dell’uso e immergere solo la sonda del pHmetro nel mezzo. Lasciare il pHmetro immerso nel mezzo con leggera agitazione durante la regolazione del pH. Utilizzando una pipetta di trasferimento monouso in plastica, aggiungere la soluzione di NaOH appena preparata fino a raggiungere un pH finale di 7,4.
NOTA: Il pH iniziale del mezzo è fortemente acido. È necessario un volume elevato di soluzione di NaOH per portare il pH nella zona neutra. Aggiungere inizialmente 4-6 mL di soluzione di NaOH; una volta raggiunto un pH di circa 6,5, aggiungere la soluzione di NaOH goccia a goccia. Non superare il pH obiettivo di 7,4. In caso contrario, non tentare di riaggiustare con HCl o altri acidi: scartare il mezzo. È buona pratica dedicare un pHmetro esclusivamente alla preparazione del mezzo limitato in Zn (ZLM) e non utilizzarlo per misurare il pH di altri mezzi o tamponi che potrebbero contaminare la sonda. - Trasferire il mezzo in un cilindro graduato e portarlo al volume finale di 1 L con acqua ultrapura. Sterilizzare il mezzo per filtrazione attraverso un filtro monouso da 0,2 µm montato su un matraccio.
- Aggiungere in modo asettico 2,5 mL di soluzione di Tween-80 al 20%, sterilizzata per filtrazione (concentrazione finale 0,05%). Conservare a 4 °C al riparo dalla luce per un massimo di 6 mesi.
Crescita in condizioni di limitazione di Zn2+ in M. smegmatis
NOTA: A causa della variabilità tra lotti nella quantità di Zn2+ presente nel mezzo ZLM, è fondamentale utilizzare lo stesso lotto di mezzo oppure diversi lotti che siano stati accuratamente miscelati insieme per tutte le colture in un esperimento. Oltre al mezzo necessario per l'allestimento delle colture, sono necessari circa 100 mL aggiuntivi per il lavaggio e la normalizzazione delle colture seme.
- Eseguire tutti i passaggi in una cappa a sicurezza biologica. Preparare le colture seme 18 h prima dell’allestimento dell’esperimento di crescita. Non utilizzare colture seme troppo cresciute o che formano grumi. Una coltura seme per ceppo è sufficiente.
- Aggiungere asetticamente 5 mL di mezzo 7H9-ADC (brodo Middlebrook 7H9 con 0,05% di Tween 80 e arricchimento ADC al 10% [concentrazione finale: 0,5% albumina sierica bovina, 0,2% destrosio, 0,085% NaCl e catalasi opzionale allo 0,0003%]) in un tubo da bioreattore da 50 mL.
- Aggiungere asetticamente 10 µL di cellule da stock glicerolato scongelato (preparato secondo26) direttamente nel mezzo. Avvitare il coperchio sul tubo.
- Posizionare i tubi saldamente in un incubatore agitato a un angolo di circa 45° in modo che il liquido raggiunga circa metà altezza del tubo durante l’agitazione.
- Incubare i tubi a 37 °C con agitazione a 120 rpm per circa 18 h.
- Verificare le colture seme notturne per assicurarsi che la sospensione sia uniformemente torbida e non presenti grumi significativi. La densità ottica a 600 nm (OD600) della coltura notturna dovrebbe essere idealmente compresa tra 0,5 e 0,8.
- Centrifugare le colture notturne nei tubi da bioreattore utilizzati per la crescita notturna a 3.000 x g per 5 min a temperatura ambiente.
- Decantare o aspirare il sopranatante e risospendere in 5 mL di ZLM. Ripetere i passaggi di centrifugazione e risospensione per 2 volte, per un totale di tre lavaggi.
- Durante i passaggi di centrifugazione, riempire una cuvetta fino all’orlo con etanolo al 70% per sterilizzarla. Lasciare la cuvetta piena in cappa a sicurezza biologica per 10 min e risciacquarla accuratamente 3 volte con ZLM utilizzando una pipetta.
NOTA: Il processo di normalizzazione cellulare richiede tempo e pratica per essere eseguito in modo efficiente. Normalizzando direttamente le cellule nella cuvetta sterilizzata con etanolo, il processo viene notevolmente accelerato. - Preparare un numero sufficiente di cuvette per il numero di ceppi inclusi nello studio; ad esempio, questo protocollo richiede due cuvette sterilizzate, una per il ceppo selvatico e una per il mutante ΔaltRP.
- Durante i passaggi di centrifugazione, riempire una cuvetta fino all’orlo con etanolo al 70% per sterilizzarla. Lasciare la cuvetta piena in cappa a sicurezza biologica per 10 min e risciacquarla accuratamente 3 volte con ZLM utilizzando una pipetta.
- Dopo tre lavaggi con ZLM, risospendere ogni pellet cellulare in 2 mL di ZLM.
- Effettuare la messa a zero dello spettrofotometro utilizzando 600 µL di ZLM in una cuvetta. La cuvetta non deve essere sterilizzata. Mettere da parte la cuvetta e utilizzarla per la messa a zero dello spettrofotometro prima di normalizzare ogni coltura (ossia, ceppo).
- Lavorando con un ceppo alla volta, trasferire 600 µL di cellule lavate dal passaggio 3.5 in una cuvetta sterilizzata preparata al passaggio 3.4.1 e misurare l’OD600 iniziale. Se l’OD600 è superiore a 1, procedere al passaggio 3.8. Se l’OD600 è inferiore a 1, seguire i sottopassi 3.7.1 e 3.7.2.
- Se la lettura iniziale di OD600 del passaggio 3.7 è inferiore a 1, raccogliere tutta la coltura dalla cuvetta, aggiungerla nuovamente alle cellule seme lavate rimanenti nel tubo da centrifuga e centrifugare nuovamente la coltura come al passaggio 3.3. Risospendere la coltura in un volume inferiore rispetto a quello usato al passaggio 3.5 (ad esempio, 1 mL) per ottenere una densità cellulare più elevata e ripetere il passaggio 3.7.
- Se l’OD600 dopo il passaggio 3.7.1 è ancora inferiore a 1, la coltura non è abbastanza densa; riavviare la procedura dal passaggio 3.1. Incubare le colture per un tempo più lungo o aumentare la quantità di inocolo per l’allestimento delle colture notturne in modo che la densità finale della coltura notturna sia intorno a OD600 = 0,5-0,8, come descritto al passaggio 3.2.
- Calcolare il volume di ZLM da aggiungere ai 600 µL di cellule lavate nella cuvetta per ottenere un OD600 pari a 1 utilizzando la seguente equazione e l’OD600 misurato al passaggio 3.7:
Volume di ZLM (μL) = (OD600 iniziale - 1) × 600 μL - Aggiungere alla cuvetta preparata al passaggio 3.7 il volume di ZLM calcolato al passaggio 3.8, mescolare bene aspirando e dispensando 5-10 volte con la pipetta e rileggere l’OD600.
- Regolare l’OD600 entro il 5% di OD600 = 1 seguendo i sottopassi indicati di seguito. Utilizzare due pipette, di cui una (di dimensioni P1000) dedicata esclusivamente al mescolamento della coltura per evitare di consumare troppe punte ad ogni aggiustamento.
- Se l’OD600 è superiore a 1, aggiungere ZLM goccia a goccia (~50 µL alla volta), mescolare bene aspirando e dispensando 5-10 volte e misurare l’OD600. Ripetere questo processo secondo necessità finché la coltura non rientra nel 5% di OD600 = 1.
- Se durante la normalizzazione l’OD600 scende al di sotto di 1, aggiungere ulteriori cellule lavate (~20 µL inizialmente) dal passaggio 3.5, mescolare bene aspirando e dispensando 5-10 volte e misurare l’OD600. Ripetere questo processo secondo necessità (oppure aggiungere più ZLM come descritto al passaggio 3.10.1 se l’OD600 supera 1) finché la coltura non rientra nel 5% di OD600 = 1.
- Assicurarsi che il volume nella cuvetta non superi ~1,5 mL durante la normalizzazione cellulare per evitare fuoriuscite nello spettrofotometro. Se necessario, rimuovere parte della coltura dalla cuvetta durante la diluizione. Inoltre, assicurarsi che il volume della coltura nella cuvetta sia superiore al minimo richiesto per misurare accuratamente l’OD600 con lo spettrofotometro. La maggior parte degli spettrofotometri richiede almeno 600 µL.
- Ripetere i passaggi di normalizzazione cellulare (3.6 - 3.10) per tutti i ceppi e le condizioni inclusi nello studio.
- Preparare il numero totale di fiale necessarie per l’esperimento aggiungendo asetticamente 50 mL di ZLM in fiale Erlenmeyer di plastica da 250 mL preparate come descritto al passaggio 1.
- Inoculare le fiale aggiungendo asetticamente 50 µL della coltura normalizzata a OD600 = 1 direttamente dalla cuvetta per ottenere un OD600 finale di 0,001 (diluizione 1:1000 dell’inoculo normalizzato).
- Per le colture coltivate senza limitazione di Zn2+ (ossia, mezzo ricco di Zn2+, ZRM), aggiungere 30 µL di ZnSO4 sterile 10 mM (preparato al momento da soluzione madre sterile 1 M) direttamente nei flaconi di coltura per ottenere una concentrazione finale di 6 µM di ZnSO4.
- Incubare le fiale a 37 °C con agitazione a 100 rpm per 3 giorni fino alla fase stazionaria (il giorno 0 è il giorno dell’inoculo).
- Ogni giorno di crescita, utilizzare un microlettore a monocromatore o a filtri per misurare le seguenti metriche di crescita usando 200 µL di coltura in una micropiastra a 96 pozzetti con fondo piatto. Effettuare le letture della piastra immediatamente dopo il prelievo delle aliquote per evitare il sedimentamento delle cellule.
NOTA: Non è necessario preriscaldare il microlettore poiché i valori assoluti di fluorescenza sono meno informativi rispetto al rapporto e alle scansioni di fluorescenza, e il piccolo volume misurato si equilibra rapidamente alla temperatura ambiente durante l’allestimento della piastra. La fluorescenza può essere misurata dalla parte superiore o inferiore della piastra se si verifica condensa sul coperchio, anche se i valori di intensità di fluorescenza sono complessivamente inferiori quando letti dal basso.- Densità cellulare (ossia, OD600): Per riportare l’OD600 ottenuto da un microlettore, generare una curva standard per convertire la lettura dal cammino ottico della micropiastra con volume fisso (ad esempio, 200 µL) al cammino ottico standard di 1 cm.
- Fluorescenza del cofattore F420 (es 420 nm/em 475 nm): Per microlettori a filtri, utilizzare il set di filtri più vicino (ad esempio, es 430 nm/em 488 nm) e micropiastre nere a 96 pozzetti.
- Misurare la fluorescenza di fondo a 375 nm (es 375 nm/em 475 nm).
- Se si utilizza un monocromatore, generare una scansione dell’intensità di fluorescenza da es 230 a 440 nm a passi di 5 nm e emissione fissa a 475 nm.
- Se si utilizza un monocromatore, calcolare la percentuale di intensità di fluorescenza a 375 nm rispetto a 420 nm utilizzando l’equazione:
F375/420 (%) = (F375/F420) x 100
4. Registrazione e misurazione della lunghezza cellulare
- Al terzo giorno, visualizzare e registrare la lunghezza delle cellule. Pulire un vetrino e un coprivetrino con un panno senza pelucchi. Pipettare una goccia di 10 µL di coltura sul vetrino e posizionare il coprivetrino direttamente sopra la coltura. Premere delicatamente il coprivetrino in modo che la coltura si espanda e occupi quasi l'intera area sotto il coprivetrino. Preparare i vetrini e osservarli immediatamente per evitare l'essiccamento.
NOTA: Se la coltura non si espande facilmente, i detriti impediscono un buon contatto e il movimento dell'acqua ostacolerà l'osservazione delle cellule a fuoco. Preparare un nuovo vetrino. - Utilizzando un microscopio composto (o in contrasto di interferenza differenziale, vedi sotto) con obiettivo ad immersione in olio da 100x e oculari da 10x (ingrandimento totale 1000x) e un dispositivo fotografico, osservare il vetrino preparato.
NOTA: Le cellule sono molto più facili da vedere grazie al contrasto fornito dalla microscopia in contrasto di interferenza differenziale (DIC)10. Utilizzare questo tipo di microscopio per ottenere immagini di alta qualità, se possibile. Per analisi di routine e verifica dello stato di crescita limitato da Zn2+, un microscopio ottico composto standard è sufficiente. - Scattare immagini di aree del vetrino contenenti più cellule a fuoco, in piano (cioè l'intera lunghezza della cellula è visibile) e non in movimento. Registrare un numero sufficiente di immagini in diverse aree del vetrino (o su più vetrini della stessa coltura) in modo da misurare almeno 100 cellule.
- Utilizzando lo stesso microscopio e lo stesso obiettivo, acquisire un'immagine di un vetrino di calibrazione.
- In Fiji27, utilizzare lo strumento linea retta per tracciare una linea lungo la lunghezza del vetrino di calibrazione. Selezionare Analizza > Imposta scala e inserire la distanza e l'unità note della barra di scala. Selezionare Global per applicare la scala a tutte le immagini e le misurazioni future.
- Aprire una foto al microscopio. Utilizzare lo strumento linea retta per tracciare una linea lungo la lunghezza di una cellula e premere il tasto M sulla tastiera per misurare la cellula. Misurare almeno 100 cellule per ogni coltura.
- Copiare i dati di lunghezza generati nella finestra popup di Fiji in un software per fogli di calcolo o salvarli come file di valori separati da virgola (.csv) per l'analisi statistica.
5. Modifiche per la coltivazione di M. tuberculosis (Mtb) limitato per Zn2+
NOTA: A differenza di Mtb-H37Rv, Mtb-Aux non è in grado di sintetizzare L-leucina e D-pantotenato, e questi supplementi vengono aggiunti al terreno28. La supplementazione per Mtb-Aux non influisce sulla limitazione di Zn2+, e entrambi i ceppi mostrano fenotipi simili in ZLM23. Questo protocollo è una modifica di un protocollo precedentemente pubblicato23; la differenza principale consiste nel fatto che le colture vengono fatte crescere per 8 giorni invece di 10 per ridurre l'aggregazione e favorire l'arricchimento di cellule singole, necessario per applicazioni successive come l'infezione dei macrofagi. Per ulteriori differenze minori, si prega di fare riferimento alla pubblicazione originale23. Il metodo di inoculo differisce da quello di M. smegmatis a causa dell'inoculo molto più elevato necessario per avviare la crescita di M. tuberculosis.
- Per Mtb-Aux, aggiungere un'ulteriore supplementazione di 50 µg/mL di L-leucina e 48 µg/mL di D-pantotenato in tutti i mezzi. Sterilizzare per filtrazione soluzioni stock 1000x di 50 mg/mL di L-leucina e 48 mg/mL di D-pantotenato di calcio mediante filtro da 0,2 µm e aggiungerle ai mezzi sterilizzati.
- Aggiungere asetticamente 1 mL di cellule da stock glicerolato scongelato a 4 mL di 7H9-ADC in un tubo rotondo da 14 mL con tappo a scatto (per Mtb-Aux) o in un tubo da bioreattore da 50 mL (per Mtb-H37Rv).
- Incubare a 37 °C senza agitazione fino a quando la coltura raggiunge un OD600 ~1. Ci vorrà circa 1 settimana. Aerare la coltura una volta al giorno aprendo il tubo all'interno di una cappa a sicurezza biologica e pipettando alcune volte per mescolare.
- Innestare 1 mL della coltura statica in 50 mL di 7H9-ADC in un flacone di plastica ventilato da 250 mL. Una coltura da 50 mL in 7H9-ADC è sufficiente per triplicati biologici per ceppo e condizione (ad esempio, ceppo selvatico in ZLM e ZRM). Prestare attenzione ad evitare grandi aggregati (cioè grandi ammassi di cellule) lasciando riposare la coltura per 5-10 minuti prima dell'innesto, permettendo agli aggregati di sedimentare sul fondo del tubo e prelevando la coltura dalla parte superiore.
NOTA: L'innesto con grandi aggregati produce colture grumose, il che influisce sulla normalizzazione e riproducibilità delle colture. - Incubare a 37 °C con agitazione a 100 rpm fino a quando la coltura raggiunge un OD600 compreso tra 0,5 e 0,8 (fase logaritmica media). Ci vorranno 3-5 giorni.
- Trasferire la coltura in un tubo conico da 50 mL e pellettare le cellule mediante centrifugazione a 3.000 x g per 10 minuti a temperatura ambiente. Rimuovere il soprannatante aspirando 40 mL con una pipetta serologica ed eliminando il resto del soprannatante con una micropipetta P1000.
NOTA: Questo passaggio è fondamentale per ridurre il trascinamento di Zn2+ dal mezzo 7H9-ADC. - Risospendere il pellet in 5 mL di ZLM e portare il volume totale della coltura a 50 mL nel tubo conico con ZLM.
- Ripetere la centrifugazione a 3.000 x g per 10 minuti a temperatura ambiente per pellettare le cellule. Rimuovere il soprannatante. Risospendere il pellet cellulare a un volume finale di 50 mL come descritto al punto 5.7.
- Misurare l'OD600 delle cellule seme lavate e calcolare il volume necessario per ottenere un OD600 iniziale di 0,05 (Mtb-H37Rv) o 0,08 (Mtb-Aux) in 50 mL utilizzando la seguente equazione:
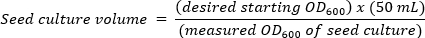
NOTA: La crescita di Mtb-Aux con un OD600 iniziale di 0,05 è inconsistente; pertanto, si utilizza un OD600 più alto, pari a 0,08, per garantire una crescita costante. - Aliquotare il volume di coltura seme calcolato al punto 5.9 in un nuovo tubo conico da 50 mL e portare il volume a 50 mL con ZLM. Versare la coltura lavata e normalizzata dal tubo conico in flaconi Erlenmeyer di plastica preparati come descritto al punto 1. Ripetere utilizzando lo stesso tubo conico per tutti i replicati biologici per ogni ceppo e condizione.
- Per le colture cresciute senza limitazione di Zn2+ (cioè in mezzo ricco di Zn2+, ZRM), aggiungere direttamente ai flaconi di coltura 30 µL di ZnSO4 sterile 10 mM per ottenere una concentrazione finale di 6 µM di ZnSO4.
- Incubare i flaconi di coltura a 37 °C con agitazione a 100 rpm per 8 giorni. Misurare l'OD600 e la fluorescenza di F420 durante tutta la crescita come descritto al punto 3. Scartare le colture se risultano grumose nei primi giorni di crescita (cioè la coltura non appare torbida e presenta aggregati diffusi).
NOTA: Idealmente, le colture devono essere prevalentemente planctoniche (cioè prive di grandi aggregati visibili ad occhio nudo) durante i primi giorni di crescita. Le colture di Mtb, specialmente quelle in ZLM, diventano progressivamente più grumose durante la crescita, e la presenza di aggregati galleggianti sulla superficie del mezzo sotto forma di fiocchi è attesa alla fase logaritmica avanzata23.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Fenotipi bioindicatori di M. smegmatis
wild-type M. smegmatis colture cresciute in ZLM che raggiungono Zn2+-limitazione della crescita presentano tre fenotipi principali di bioindicatore rispetto alle cellule coltivate in condizioni di Zn2+-condizioni di replezione: [1] diminuzione dell'OD600, [2] cellule allungate e [3] riduzione del picco di fluorescenza a 420 nm. Il mutante privo di AltRPs (ΔaltRP) non ha lo stesso Zn
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
Un importante contributo al divario di conoscenza sulle basi meccanicistiche degli alt-ribosomi è la difficoltà di raggiungere condizioni limitanti di Zn2+ in vitro. La contaminazione da tracce di Zn2+ in laboratorio è comune; pertanto, è difficile ottenere condizioni di crescita riproducibili limitate da Zn2+. La contaminazione da Zn2+ può provenire da diverse fonti, sebbene la fonte più significativa e comune di contaminazione e variabilità provenga dall'acqua ultrap...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori non hanno conflitti di interesse.
Ringraziamenti
Questo studio è stato finanziato dal National Science Foundation (NSF) CAREER Award 1844854, dall'American Lung Association Innovation Award IA -937538 e dal National Institute of Health (NIH) NIAID R21 AI109293 a S.P. L'indirizzo attuale di Allexa D. Burger è il Pacific Biosciences Research Center, Università delle Hawaii a Mānoa, Honolulu, Hawaii, USA.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Sistemi di filtrazione sottovuoto da 1000 mL, Standard Line | VWR | 10040-440 | |
| Palloni per agitatori Erlenmeyer da 125 mL | Greiner Bio-One | 679501 | |
| Provette per coltura da 14 mL, plastica, con tappi a doppia posizione VWR | 60818-725 | ||
| Palloni per agitatore Erlenmeyer da 250 mL | Greiner Bio-One | 679502 | |
| 40X-1000X Composto biologico binoculare da laboratorio Microscopio | Omax | M82EZ | |
| Provette per bioreazione da 50 mL, sterili | VWR | 76211-286 | |
| Provette per centrifuga ad alte prestazioni da 50 mL con tappi a bandiera | VWR | 89039-656 | |
| Detergente in polvere a bassa schiuma Alcojet | Alconox | 1404 | |
| Citrato di ferro (III) ammonio, marrone | Thermo Scientific | AAA1119930 | MW: 265 g/mol, per la soluzione 1M aggiungere 1,325 g a 5 mL di acqua ultrapura; conservare al riparo dalla luce a 4 C |
| Albumina sierica bovina | Thermo Scientific | J10857-A1 | |
| Calcio D-Pantotenato | Thermo Scientific | AC243300050 | |
| Catalasi | Sigma-Aldrich | C1345-10G | |
| Acido citrico anidro, cristallino | Fisher Scientific | BP339-500 | |
| Destrosio anidro | Fisher Scientific | D14-500 | |
| Difco Middlebrook 7H9 Brodo | BD Diagnostics | 271310 | |
| DiluFotometro OD600 per la determinazione della densità cellulare e dei saggi di Bradford | Implen | OD600-10 | |
| GENios FL Lettore di micropiastre | Tecan | Fuori produzione | |
| Glicerolo | Fisher Scientific | G33-4 | |
| Infinite M200 PRO Lettore di micropiastre multimodale | Tecan | LGE140213-20BL | |
| L-Asparagina | Thermo Scientific | AAB2147336 | |
| L-Leucina | Thermo Scientific | A1231122 | |
| Macrofire SP CCD camera | Optronics | Per l'uso con il microscopio Olympus | |
| Solfato di magnesio eptaidrato | VWR | 97062-134 | |
| Milli-Q Direct 8 Sistema di purificazione dell'acqua | Millipore | C85358 | |
| Moticam X3 | Motic | Fuori produzione, sostituito da Moticam X5 Plus; per l'uso con microscopio composto | |
| Acido oleico | Thermo Scientific | 031997-14 | |
| Microscopio verticale Olympus BX51 | Fuori | produzione, sostituito da BX53M | |
| Fosfato di potassio, monobasico | Fisher Scientific | BP362-500 | |
| Cuvette di plastica monouso semi-micro su due lati | VWR | 97000-590 | |
| Cloruro di sodio, cristallo | VWR | VW1494-01 | |
| idrossido di sodio | Fisher Scientific | S318-500 | |
| Tween 80 | MP Biomedicals | 103170 | |
| Solfuro di zinco eptaidrato, cristallino/ACS | MP Biomedicals | 219145290 |
Riferimenti
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
