Questo manoscritto descrive le procedure operative e le precauzioni per sondare i potenziali meccanismi patogenetici comuni che legano la sindrome di Sjogren primaria e l'adenocarcinoma polmonare attraverso analisi bioinformatiche e verifiche sperimentali.
Articolo metodologico
Sindrome di Sjogren primaria associata ad adenocarcinoma polmonare: sondare i potenziali meccanismi patogenetici comuni e verifica sperimentale
In questo articolo
Sommario
Abstract
Questo studio ha avuto lo scopo di sondare i potenziali meccanismi patogenetici comuni che collegano la sindrome di Sjogren primaria (pSS) e l'adenocarcinoma polmonare (LUAD) attraverso analisi bioinformatiche e verifiche sperimentali. I geni rilevanti associati a pSS e LUAD sono stati recuperati dal database Gene Expression Omnibus (GEO) e dal database Genecard. Successivamente, i geni differenzialmente espressi (DEG) associati a pSS e LUAD sono stati sottoposti a screening come pSS-LUAD-DEG. Le analisi di arricchimento dell'Enciclopedia dei geni e dei genomi (KEGG) e dell'ontologia genica (GO) di Kyoto sono state eseguite per chiarire le funzioni biologiche significative dei pSS-LUAD-DEG. I bersagli principali sono stati identificati costruendo la rete di interazione proteina-proteina (PPI), valutando ulteriormente l'accuratezza diagnostica del gene hub attraverso l'analisi della curva delle caratteristiche operative del ricevitore (ROC). In questo studio, i topi NOD/Ltj sono serviti come modelli animali pSS e sono stati stimolati con particolato 2,5 (PM2,5) per generare una reazione infiammatoria. La reazione quantitativa a catena della polimerasi in tempo reale (qPCR), il saggio di immunoassorbimento enzimatico (ELISA) e il western blotting sono stati impiegati per la verifica di esperimenti di biologia molecolare. I risultati rivelati attraverso le analisi di arricchimento KEGG e GO indicano che l'infiammazione svolge un ruolo fondamentale nel collegare pSS e LUAD. IL6, CCNA2, JAK2, IL1B, ASPM, CCNB2, NUSAP1 e CEP55 sono stati determinati come bersagli chiave di pSS-LUAD. I topi BALB/c e i topi NOD/Ltj hanno mostrato una maggiore espressione delle citochine infiammatorie IL-6 e IL-1β nei tessuti polmonari dopo 21 giorni di stimolazione con PM2.5, attivando la via di segnalazione JAK2/STAT3 e sovraregolando l'espressione dei geni associati al tumore CCNA2, CCNB2 e CEP55, con i topi NOD/Ltj che mostravano cambiamenti più pronunciati rispetto ai topi BALB/c. Questo protocollo dimostra che la cancerogenesi indotta dal microambiente infiammatorio polmonare può essere una ragione chiave per l'alta incidenza di LUAD nei pazienti con pSS. Inoltre, i meccanismi correlati al blocco possono aiutare a prevenire l'insorgenza di LUAD nei pazienti con pSS.
Introduzione
La sindrome di Sjögren primaria (pSS) è una malattia autoimmune caratterizzata da infiltrazione linfocitaria delle ghiandole esocrine e porta ai sintomi clinici di secchezza oculare (xeroftalmia) e secchezza delle fauci (xerostomia)1,2. La pSS è solitamente accompagnata da manifestazioni extraghiandolari di coinvolgimento, tra cui iperglobulinemia3, malattia polmonare interstiziale4, acidosi tubulare renale5, danno neurologico6 e trombocitopenia7, che costituiscono i principali fattori prognostici avversi. Negli ultimi anni, una serie di studi ha dimostrato che la pSS è generalmente accompagnata da un'aumentata prevalenza di cancro, comprese le neoplasie ematologiche e i tumori solidi 8,9,10. Il cancro del polmone è uno dei tumori più comuni correlati al pSS, in particolare l'adenocarcinoma polmonare (LUAD)11.
Nel complesso, ulteriori indagini hanno suggerito che la pSS con LUAD potrebbe avere una patogenesi comune sottostante. Secondo le nostre attuali conoscenze, non esistono ancora studi speciali che spieghino i meccanismi comuni tra le due malattie. Recentemente, l'analisi bioinformatica ci offre una potenziale possibilità di rivelare meccanismi di malattia potenzialmente condivisi tra le specie 12,13,14. Per rivelare ulteriormente i meccanismi sottostanti, l'analisi bioinformatica viene utilizzata per l'analisi di bersagli comuni e vie di segnalazione tra pSS e LUAD, e successivamente vengono stabiliti modelli animali per la verifica sperimentale. La rivelazione di questi meccanismi può aiutare a fornire una base di prove per la prevenzione clinica della LUAD nei pazienti con pSS.
Questo studio ha utilizzato i database GEO e Genecard per recuperare i geni rilevanti associati a pSS e LUAD. Successivamente, i DEG associati a pSS e LUAD sono stati sottoposti a screening come pSS-LUAD-DEG. Abbiamo eseguito analisi di arricchimento KEGG e GO per chiarire le funzioni biologiche significative dei pSS-LUAD-DEG. La costruzione della rete PPI è stata utilizzata per identificare i bersagli principali e abbiamo ulteriormente valutato l'accuratezza diagnostica del gene hub attraverso l'analisi della curva ROC. Abbiamo utilizzato topi NOD/Ltj come modelli animali pSS stimolati con particolato 2,5 (PM2,5) per generare una reazione infiammatoria. QPCR, ELISA e western blotting sono stati eseguiti per verificare lo studio sperimentalmente. Nel complesso, i risultati indicano che la cancerogenesi indotta dal microambiente infiammatorio polmonare può essere una ragione critica per l'alta incidenza di LUAD nei pazienti con pSS. Suggerisce inoltre che l'insorgenza di LUAD nei pazienti con pSS può essere prevenuta da meccanismi correlati al blocco.
Protocollo
Gli animali da esperimento sono stati ospitati nella struttura per animali dell'Ospedale dell'Amicizia Cina-Giappone, dove le condizioni di stabulazione hanno soddisfatto l'ambiente di alimentazione degli animali in linea con lo standard nazionale cinese, Laboratory Animal-Requirements of Environment and Housing Facilities (GB14925-2010). Tutte le procedure e gli esperimenti per la cura degli animali sono stati conformi alle linee guida ARRIVE e si sono basati sui principi delle 3R (riduzione, sostituzione, perfezionamento), aderendo alle linee guida della legge nazionale sul benessere degli animali della Cina. I topi BALB/c sono stati acquistati da SPF (Beijing) Biotechnology Co., Ltd., mentre i topi NOD/Ltj sono stati acquistati da Huafukang (Beijing) Biotechnology Co., Ltd.
1. Analisi bioinformatica
- Preparazione di dataset
- Apri il database Gene Expression Omnibus (GEO) (www.ncbi.nlm.nih.gov/geo)15 e utilizza la sindrome di Sjögren primaria e l'adenocarcinoma polmonare come parole chiave per cercare i profili di espressione genica. Quindi fare clic sui risultati nel database GEO DataSets e selezionare Homo sapiens in Top Organisms. Seleziona e scarica il set di dati di interesse insieme alle informazioni sulla piattaforma corrispondenti.
- Apri il database Genecard (https://www.genecards.org/)16 e usa lasindrome di Sjögren primiaria e l'adenocarcinoma polmonare come parole chiave per ottenere i geni di pSS e LUAD. Scarica i fogli di calcolo dei geni della malattia.
- Identificazione di DEG condivisi tra pSS e LUAD
- Scarica e apri il software R (https://cran.r-project.org/)17. Installare il pacchetto GEOquery R, il pacchetto stringr R, il pacchetto ggplot2 R, il pacchetto reshape2 R e il pacchetto limma R nel software R.
- Identifica e visualizza i geni differenzialmente espressi (DEG) in diversi set di dati GEO (GSE84844, GSE51092, GSE32863 e GSE75037) utilizzando il software R, quindi confronta e analizza l'espressione genica tra questi set di dati. Considera i geni con un valore P aggiustato < 0,05 e il cambio di piega (FC) > 1,2 o < 0,83 come DEG.
- Selezionare i geni con un livello di espressione maggiore o uguale a 20 correlati a pSS e LUAD dal database Genecard.
- Unisci i DEG associati a pSS e i DEG associati a LUAD sia dal database GEO che dal database Genecard.
- Installa e carica il pacchetto VennDiagram in R per ottenere e visualizzare i DEG associati a pSS e LUAD (PSS-LUAD-DEG).
- Analisi dell'arricchimento del percorso dell'Enciclopedia dei geni e dei genomi di Kyoto (KEGG)
- Entra in Metascape (https://metascape.org/)18. Fare clic su Seleziona file e caricare il file in formato .xlsx di pSS-LUAD-DEG. Selezionare H. sapiens in Input come specie. Allo stesso modo, selezionare H. sapiens in Analisi come specie.
- Fare clic su Analisi personalizzata. Fare clic su Arricchimento e selezionare Percorso KEGG. Fare clic su Analisi arricchimento, quindi su Pagina report analisi al termine dell'analisi dell'arricchimento.
- Fare clic su Tutto in un file zip per scaricare il risultato. Accedi al file _ FINAL_GO.csv nella cartella del Enrichment_GO di download per visualizzare il risultato.
- Utilizzare il pacchetto ggplot2 per eseguire il programma di visualizzazione KEGG in R.
- Analisi dell'arricchimento dell'ontologia genica (GO)
- Installare e caricare clusterProfiler e il pacchetto enrichplot in R.
- Importa l'elenco in formato testo di pSS-LUAD-DEG in R.
- Esegui i pacchetti clusterProfiler e enrichplot per l'analisi dell'arricchimento GO e la visualizzazione dei risultati. Definisci la significatività statistica nell'analisi con un valore P rettificato < 0,05.
- Costruzione di una rete di interazione proteina-proteina (PPI) e analisi dei moduli
- Entra nel database STRING (Retrieval of Interacting Genes) (http://string-db.org/)19. Fare clic su Sfoglia e caricare il file di pSS-LUAD-DEGs. Seleziona Homo sapiens in Organismi, quindi fai clic su Cerca.
- Fai clic su Continua. Una volta disponibili i risultati, fai clic su Impostazioni. In Impostazioni di base > punteggio minimo di interazione richiesto, seleziona Alta confidenza (0,700). Seleziona Nascondi nodi disconnessi nella rete in Impostazioni avanzate, quindi fai clic su Aggiorna.
- Fare clic su Esportazioni nella barra del titolo per scaricare il testo della relazione PPI in formato TSV.
- Scarica e attiva il software Cytoscape 3.7.1 (https://cytoscape.org/)20. Fare clic su File > Importa > rete da file per importare il file in formato TSV per la creazione della rete PPI.
- Utilizzare lo strumento Network Analyzer per analizzare i parametri topologici della rete. Ottimizza le dimensioni e il colore dei nodi tramite la barra di stile nel pannello di controllo a sinistra.
- Sulla barra dei menu, selezionare Strumenti > Analizza rete. Nel pannello Tabella , fare clic su Grado per ordinare i componenti in base al grado in ordine decrescente. Prendi i primi 20 geni con gradi più alti come geni hub.
- Installa e carica i pacchetti igraph e ggplot2 in R per visualizzare i geni hub per grado.
- Identificazione e validazione di geni hub
- Installare e caricare il pacchetto pROC in R.
- Importa l'elenco in formato testo dei geni hub in R.
- Tracciare le curve delle caratteristiche operative del ricevitore (ROC) dei geni dell'hub e calcolare l'area sotto i valori della curva ROC (AUC).
NOTA: Fare riferimento al file di codifica supplementare 1 per il codice R per il filtraggio dei DEG.
2. Verifica sperimentale
NOTA: Fare riferimento alla Tabella dei materiali per i dettagli sui materiali, i reagenti e gli strumenti utilizzati in questo protocollo.
- Preparazione degli animali
- Nutrire 12 topi femmina BALB/c di nove settimane e 12 topi femmina NOD/Ltj di nove settimane in modo adattivo per 1 settimana.
- Usa una tabella numerica casuale per allocare uniformemente 12 topi femmina BALB/c di nove settimane nel gruppo di controllo vuoto e nel gruppo PM2.5. Allo stesso modo, dividere equamente 12 topi femmina NOD/Ltj di nove settimane nel gruppo pSS e nel gruppo pSS-PM2.5.
- Preparazione della sospensione di particolato 2,5 (PM2,5)
NOTA: Il PM2.5 può indurre l'insorgenza e lo sviluppo di LUAD correlato all'infiammazione nel modello murino21. I topi BALB/c e i topi NOD/Ltj sono stati indotti dal PM2.5 a sviluppare cambiamenti correlati all'infiammazione. Secondo il metodo descritto da Piao et al.22, la concentrazione della sospensione di PM2,5 è stata preparata a 1 mg/mL.- Pesare le membrane in fibra di quarzo PM2,5, tagliarle in pezzi di 2 cm × 2 cm e immergerle in un becher contenente un'adeguata quantità di acqua deionizzata.
- Sigillare il becher e sonicarlo in un sonicatore a bagnomaria a 37 °C per 30 minuti ogni volta. Ripetere questo processo 3 volte fino a quando le particelle non sono completamente sciolte.
- Filtrare il liquido nel becher attraverso 16 strati di garza medica sterile, quindi spremere l'umidità residua dalla garza.
- Mettere il filtrato su un piatto piano e congelarlo in blocchi di ghiaccio in un congelatore a -20 °C. Quindi, utilizzare uno strumento di liofilizzazione (−52 °C, 0,1 mbar, 48 h) per asciugare i blocchi di ghiaccio di filtrato e raccogliere le particelle in polvere.
- Sciogliere accuratamente le particelle in polvere in soluzione salina per preparare una sospensione di PM2,5 con una concentrazione di 1 mg/mL. Versare la sospensione di PM2,5 in una bottiglia di vetro, metterla in uno sterilizzatore ad alta pressione e applicare alta pressione e temperatura (15 minuti a 121°C, 15 psi) per la sterilizzazione.
- Eseguire l'agitazione ultrasonica (200 W, 10 s di agitazione, 10 s di riposo, per 3 cicli). Dopo il trattamento, conservarlo in frigorifero a 4 °C per un uso successivo.
- Istituzione del modello murino PM2.5
NOTA: Al gruppo PM2.5 e al gruppo pSS-PM2.5 è stata somministrata una sospensione di PM2.5 mediante flebo tracheale una volta ogni 3 giorni per 28 giorni, con ogni dose di 0,1 ml. Al gruppo di controllo in bianco e al gruppo pSS è stata somministrata soluzione fisiologica mediante flebo di trachea una volta ogni 3 giorni per 28 giorni, con ogni dose di 0,1 ml.- Iniettare una miscela di ketamina (100 mg/kg) e xilazina (10 mg/kg) nel topo. Confermare il piano chirurgico dell'anestesia controllando la mancanza di risposta a un pizzicamento del dito del piede e garantendo il completo rilassamento muscolare. Monitorare continuamente i riflessi, la respirazione e la risposta generale per garantire che venga mantenuta un'anestesia adeguata durante tutta la procedura fino al completamento di tutti i passaggi.
- Posiziona il mouse sul piccolo sistema di ritenuta per animali con l'addome rivolto verso l'alto, la testa sollevata e la coda abbassata con un angolo di 45°. Utilizzare un filo sottile per avvolgere gli incisivi superiori del topo, tirandoli verso l'alto, e fissare il filo su una vite sul supporto dell'animale, garantendo la piena esposizione della cavità orale del topo.
- Apri la lampada a luce fredda e fai brillare la luce sulla pelle del collo del topo. Usa il forcipe per estrarre la lingua del topo, esponendo completamente la glottide. Osservare all'interno della cavità orale del topo un punto di luce ricorrente che si apre e si chiude, che indica la posizione dell'apertura delle vie aeree del topo.
- Inserire l'ago a permanenza venosa da 18 G nella trachea del topo, estrarre il nucleo dell'ago, posizionare il filo di cotone all'estremità esterna dell'ago a permanenza venosa e confermare il successo quando si osserva il filo di cotone che si muove con i movimenti del torace del topo.
- Aspirare prima 0,2 mL di aria utilizzando una siringa da 1 mL, quindi aspirare 0,1 mL di sospensione PM2,5, quindi aspirare altri 0,2 mL di aria. Iniettare la miscela attraverso l'ago a permanenza venosa da 18 G nella trachea.
- Estrarre l'ago a permanenza venosa da 18 G. Fissare il supporto dell'animale in posizione verticale e ruotarlo in senso orario e antiorario 30 volte per distribuire uniformemente la sospensione PM2.5 nei polmoni del topo. Quindi, allunga il collo del topo dritto e appoggialo su un lato per evitare il soffocamento.
- Raccolta di esemplari
NOTA: Raccogliere i campioni il 29° giorno dell'esperimento per le successive analisi di biologia molecolare.- Verificare la connessione del sistema di eutanasia e accendere il controller. Aprire la valvola della bombola di anidride carbonica (CO2).
NOTA: Non preriempire la camera di eutanasia prima di posizionare gli animali all'interno. - Metti i topi nella camera e infondi CO2 al 30%-70% del volume della camera al minuto. Esporre i topi a CO2 per 5 minuti, assicurandosi che siano immobili, non respirino e abbiano le pupille dilatate. Chiudere la valvola della bombola di CO2 e osservare per altri 5 minuti per confermare la morte.
- Posizionare il topo soppresso in posizione supina su una tavola da dissezione pulita. Esporre la trachea, il cuore e i polmoni.
- Usa forbici e pinze per rimuovere la pelle e i muscoli che coprono le regioni ventrali, toraciche e del collo. Usa forbici e pinze per praticare incisioni lungo i bordi delle costole su entrambi i lati della cavità toracica per esporre la cavità toracica contenente il cuore e i polmoni. Quindi, tagliare la clavicola per creare un'apertura sufficientemente ampia da esaminare a fondo i lobi polmonari sinistro e destro.
- Asportare i muscoli del collo che si estendono dallo sterno e dalle costole alla mascella. Inserire le forbici sotto il bordo anteriore delle costole e praticare incisioni su entrambi i lati per rimuovere la parte ossea che copre la trachea.
- Afferrare la trachea vicino alla mascella con una pinza e praticare un'incisione trasversale completa utilizzando le forbici posizionate sopra la pinza.
- Tirare delicatamente la trachea con una pinza, tagliando le connessioni del tessuto ventrale con le forbici fino a rimuovere l'intero tessuto toracico dal corpo.
- Appoggia i polmoni sul banco da lavoro. Sciacquare i residui superficiali del tessuto polmonare con soluzione fisiologica, asciugare con carta da filtro, aliquotare in criotubi e conservare a -80 °C.
- Verificare la connessione del sistema di eutanasia e accendere il controller. Aprire la valvola della bombola di anidride carbonica (CO2).
- Reazione a catena della polimerasi quantitativa in tempo reale (qPCR)
- Macinare il tessuto polmonare in polvere utilizzando un mortaio contenente azoto liquido.
- Pesare 20 mg di tessuto macinato utilizzando una bilancia di precisione, combinarlo con 750 μL di Buffer RL in una provetta da centrifuga, mescolare accuratamente utilizzando un miscelatore a vortice e lasciarlo riposare a temperatura ambiente (RT) per 3 minuti. Quindi, centrifugare a 14.000 x g per 5 minuti a RT e raccogliere il surnatante.
- Posizionare la mini colonna con filtro per DNA genomico (gDNA) in una provetta di raccolta da 2 mL. Trasferire il surnatante nella mini colonna del filtro gDNA e centrifugare a 14.000 x g per 2 minuti a RT.
- Eliminare la mini colonna del filtro gDNA. Aggiungere un volume uguale di etanolo al 70% al filtrato e mescolare pipettando su e giù 5 volte.
- Posizionare la mini colonna di RNA in una provetta di raccolta da 2 mL. Trasferire 750 μl della miscela nella mini colonna di RNA e centrifugare a 12.000 x g per 1 minuto a RT.
- Scartare il filtrato e reinserire la mini colonna di RNA nella provetta di raccolta da 2 mL. Aggiungere 500 μL di tampone RW1 alla mini colonna di RNA e centrifugare a 12.000 x g per 1 minuto a RT.
- Scartare il filtrato e reinserire la mini colonna di RNA nella provetta di raccolta da 2 mL. Aggiungere 500 μL di tampone RW2 alla mini colonna di RNA. Centrifugare a 12.000 x g per 1 minuto a RT. Ripetere ancora una volta questo passaggio.
- Scartare il filtrato e reinserire la mini colonna di RNA nella provetta di raccolta da 2 mL. Centrifugare a 12.000 x g per 2 minuti a RT.
- Trasferire la mini colonna di RNA in una provetta da centrifuga da 1,5 mL, aggiungere 100 μL di acqua priva di RNasi al centro della membrana della colonna e incubare a RT per 2 minuti. Quindi, centrifugare a 12.000 x g per 1 minuto a RT. Scartare la mini colonna di RNA e conservare la soluzione di RNA a -80 °C.
- Prelevare 2 μL della soluzione di RNA e misurarla utilizzando lo spettrofotometro NanoDrop secondo il manuale dell'apparecchiatura per determinarne la concentrazione e la qualità.
NOTA: Lo studio ha selezionato rapporti 260/280 e 260/230 per il controllo della qualità dell'RNA. - Preparare la soluzione di RNA aggiungendo in sequenza i seguenti componenti in una provetta da microcentrifuga: 1 μg di RNA totale, 4 μL di MgCl2 (25 mM), 2 μL di tampone 10x a trascrizione inversa, 2 μL di miscela dNTP (10 mM), 0,5 μL di inibitore ribonucleasi ricombinante, 15 unità di trascrittasi inversa, 0,5 μg di primer oligo(dT)15 , e aggiungere acqua priva di nucleasi a 20 μl. Mescolare delicatamente il contenuto per raccogliere tutto il liquido sul fondo della provetta.
NOTA: Le soluzioni cocktail devono essere preparate per garantire una sintesi del cDNA e una quantificazione dell'RNA più coerenti. - Trascrivere la soluzione di RNA da 20 μL in cDNA incubandola a 42 °C per 15 minuti, denaturandola a 95 °C per 5 minuti e quindi raffreddandola a 4 °C, seguita da una conservazione a -20 °C.
- Combinare e miscelare accuratamente 6,4 μL di acqua distillata, 10 μL di master mix SYBR Green real-time PCR, 2 μL della soluzione di cDNA ottenuta, 0,8 μL di primer diretto (10 μM) e 0,8 μL di primer inverso (10 μM) (Tabella 1) per preparare il sistema di reazione.
- Eseguire la reazione sullo strumento PCR per ottenere i valori di soglia del ciclo (CT) per i geni bersaglio e i geni di riferimento.
- Impostare la denaturazione iniziale a 95 °C per 60 s all'inizio di ogni ciclo di PCR.
- Durante i cicli di PCR, eseguire la denaturazione a 95 °C per 15 s, la ricottura a 60 °C per 15 s e l'estensione a 72 °C per 45 s, raccogliendo i dati durante la fase di estensione. Condurre un totale di 40 cicli di PCR.
- Dopo aver completato i cicli di PCR, eseguire automaticamente l'analisi della curva di fusione utilizzando lo strumento PCR.
NOTA: Se la curva di fusione mostra un doppio picco o una forma irregolare del picco, ciò indica che potrebbe esserci un problema con l'esperimento.
- Determinare i livelli di espressione relativi di ciascun gene bersaglio utilizzando il metodo 2-ΔΔCT, seguito da ulteriori analisi statistiche. Utilizzare il seguente elenco di formule per il metodo 2-ΔΔCT:
ΔCT (test) = CT (bersaglio, test) - CT (ref, test)
ΔCT (calibratore) = CT (target, calibratore) - CT (ref, calibratore)
ΔΔCT = ΔCT (test) -ΔCT (calibratore)
2-ΔΔCT = Variazione di piega nell'espressione genica
| Nome del gene | Sequenza (da 5′ a 3′) |
| Mouse CCNA2 in avanti | CCCAGAAGTAGCAGAGTTTGTG |
| Mouse CCNA2 inverso | TTGTCCCGTGACTGTGTAGAG |
| Mouse ASPM in avanti | CTTATTCAGGCTATGTGGAGGA |
| Mouse ASPM inverso | CCAGGCTTGAATCTTGCAG |
| Mouse CCNB2 in avanti | TTGAAATTTGAGTTGGGTCGAC |
| Mouse CCNB2 inverso | CTGTTCAACATCAACCTCCC |
| Mouse NUSAP1 in avanti | CTCCCTCAAGTACAGTGACC |
| Mouse NUSAP1 inverso | TTTAACAACTTGGTTGCCCTC |
| Mouse CEP55 avanti | CCGCCAGAATATGCAGCATCAAC |
| Mouse CEP55 inverso | AGTGGGAATGGCTGCTCTGTGA |
Tabella 1: Sequenze prime per la PCR quantitativa in tempo reale.
- Saggio di immunoassorbimento enzimatico (ELISA)
NOTA: Secondo le istruzioni del kit ELISA, equilibrare il kit ELISA su RT, preparare un tampone di lavaggio e diluire lo standard. Diluire in anticipo 90 μl di anticorpo biotinilato concentrato con 8910 μl di tampone di diluizione di anticorpi biotinilati per preparare una soluzione di lavoro per anticorpi biotinilati (1:100). Allo stesso modo, diluire 90 μl di coniugato enzimatico concentrato con 8910 μl di tampone di diluizione coniugato enzimatico per preparare in anticipo una soluzione di lavoro coniugato enzimatico (1:100).- Macinare il tessuto polmonare in polvere utilizzando un mortaio contenente azoto liquido.
- Pesare 50 mg di tessuto polmonare utilizzando una bilancia di precisione, combinarlo con 1 mL di PBS in una provetta di macinazione e macinarlo accuratamente con ghiaccio.
- Centrifugare la miscela a 4 °C, 3000 x g per 5 minuti e raccogliere il surnatante come campione.
- Posizionare 100 μL di campione/standard di diverse concentrazioni nei rispettivi pozzetti della piastra ELISA, coprire i pozzetti di reazione con una pellicola sigillante adesiva e incubare in un incubatore a 37 °C per 90 minuti.
- Utilizzare un lavapiastre automatizzato per lavare la piastra ELISA 4 volte, iniettando ogni volta 350 μL di tampone di lavaggio con un intervallo di 30 s tra l'iniezione e l'aspirazione.
- Aggiungere 100 μl di soluzione di lavoro per anticorpi biotinilati per pozzetto, sigillare i pozzetti con una pellicola sigillante adesiva e incubare in un incubatore a 37 °C per 60 minuti. Successivamente, lavare la piastra ELISA 4 volte seguendo la procedura descritta in precedenza.
- Aggiungere 100 μl di soluzione di lavoro coniugato enzimatico per pozzetto, sigillare i pozzetti con una pellicola sigillante adesiva e incubare in un incubatore a 37 °C per 30 minuti. Successivamente, lavare la piastra ELISA 4 volte seguendo la procedura descritta in precedenza.
- Aggiungere 100 μL di agente cromogenico per pozzetto, proteggere dalla luce e incubare in un incubatore a 37 °C per 10-20 minuti. Quindi, aggiungere 100 μL di soluzione di arresto per pozzetto, mescolare accuratamente e misurare immediatamente la densità ottica a valori di 450 nm (OD450).
NOTA: Una pipetta a 8 canali viene utilizzata per aggiungere la soluzione di lavoro dell'anticorpo biotinilato, la soluzione di lavoro coniugato enzimatico e la soluzione di arresto, che consente di completare rapidamente l'aggiunta ed evitare potenziali errori. - Genera una curva standard utilizzando il software CurveExpert (http:// curveexpert.webhop.net/) per calcolare la concentrazione delle sostanze target in ciascun pozzetto del campione.
- Western blotting
- Preparare la soluzione del saggio di radioimmunoprecipitazione (RIPA) mescolando il tampone di lisi RIPA, il fenilmetansulfonilfluoruro (PMSF) e l'inibitore della fosfatasi in un rapporto di 100:1:1 e metterlo su ghiaccio.
- Macinare i tessuti polmonari in polvere utilizzando un mortaio contenente azoto liquido.
- Pesare accuratamente 20 mg di tessuto polmonare utilizzando una bilancia di precisione e aggiungerli a 250 μl della soluzione miscelata RIPA.
- Incubare la miscela con ghiaccio per 20 minuti, quindi centrifugarla a 12.000 x g per 15 minuti a 4 °C e raccogliere il surnatante come campione.
- Preparare la soluzione di lavoro BCA mescolando il reagente A e il reagente B del kit BCA in un rapporto 50:1.
- Diluire lo standard per preparare soluzioni standard diluite con concentrazioni di 0, 0,025, 0,05, 0,1, 0,2, 0,3, 0,4 e 0,5 mg/mL. Aggiungere 20 μl di ciascuna soluzione standard e campionare in pozzetti separati di una piastra a 96 pozzetti e incubare a 37 °C per 30 minuti.
- Misurare l'assorbanza a 490 nm utilizzando il lettore di micropiastre. Adattare la curva standard utilizzando le concentrazioni e le assorbanze delle soluzioni standard e calcolare la concentrazione del campione23. Regolare le concentrazioni del campione allo stesso livello utilizzando la soluzione miscelata RIPA.
- Miscelare il surnatante proteico con un tampone di carico 5x in un rapporto di 4:1 in una provetta da centrifuga. Far bollire in un bagno di metallo per 5 minuti, quindi centrifugare a 12.000 x g per 15 minuti a 4 °C e raccogliere il surnatante.
- Eseguire la separazione delle proteine utilizzando l'elettroforesi su gel di sodio dodecil solfato-poliacrilammide (SDS-PAGE) e trasferire elettricamente le proteine su una membrana di fluoruro di polivinilidene (PVDF). Bloccare la membrana in PVDF con latte scremato al 5% a RT per 1 ora.
- Incubare la membrana in PVDF con anticorpo primario (diluito 1:1000) a 4 °C per 12 ore, quindi lavare tre volte con TBST per 10 minuti ciascuna, quindi incubare con anticorpo secondario (diluito 1:5000) a RT per 2 ore.
- Rileva le bande target utilizzando un sistema di immunodosaggio a elettrochemiluminescenza completamente automatico ed esegui l'analisi quantitativa utilizzando il software integrato.
- Analisi statistica
- Utilizzare un software appropriato per l'analisi statistica.
- Presentare i dati sperimentali come media ± deviazione standard.
- Determinare la significatività utilizzando l'analisi unidirezionale della varianza (ANOVA).
- Considera P < 0,05 come statisticamente significativo.
Risultati
Un totale di 3290 DEG sono stati identificati dai 23348 geni in GSE84884 (pSS), inclusi 2659 geni up-regolati e 631 geni down-regolati (Figura 1A). Per GSE51092 (pSS), sono stati identificati un totale di 3290 DEG dai 11409 geni, inclusi 667 geni up-regolati e 587 geni down-regolati (Figura 1B). Il database GeneCards ha ottenuto 102 DEG ovarici correlati alla pSS e il punteggio di correlazione dei criteri di screening è stato di ≥20. L'unione e la deduplicazione dei DEG relativi a pSS ottenuti da GEO e GeneCards ha portato a 453 DEG (pSS-DEG). Un totale di 7154 DEG sono stati identificati dai 25440 geni in GSE32863 (LUAD), inclusi 3934 geni up-regolati e 3220 geni down-regolati (Figura 1C). Nel GSE75037 (LUAD), sono stati identificati un totale di 11235 DEG dai 25440 geni, inclusi 6125 geni up-regolati e 5110 geni down-regolati (Figura 1D). Il database GeneCards ha ottenuto 600 DEG correlati al LUAD ovarico e il punteggio di correlazione dei criteri di screening è stato di ≥20. L'unione e la deduplicazione dei DEG relativi a LUAD ottenuti da GEO e GeneCard ha portato a 7478 DEG (LUAD-DEG). Un totale di 233 DEG condivisi (pSS-LUAD-DEG) sono stati selezionati tra pSS-DEG e LUAD-DEG e visualizzati utilizzando i diagrammi di Venn (Tabella supplementare 1 e Figura 1E).
Per quanto riguarda l'analisi dell'arricchimento della via KEGG, le prime 10 vie di segnalazione significative di pSS-LUAD-DEG identificate erano correlate alle vie metaboliche dopo aver rimosso le vie di segnalazione correlate alla malattia. In particolare, queste vie includono la via di segnalazione PI3K-Akt, la via di segnalazione MAPK, l'interazione citochine-recettore delle citochine, la necroptosi, la regolazione del citoscheletro di actina, la via di segnalazione FoxO, la via di segnalazione del recettore NOD-like, la senescenza cellulare, la differenziazione cellulare Th17 e la via di segnalazione JAK-STAT (Figura 2A). Sono state visualizzate le prime 10 vie di segnalazione KEGG e i pSS-LUAD-DEG, come mostrato nella Figura 2B.
L'analisi dell'arricchimento OB dei pSS-LUAD-DEG ha rivelato i seguenti primi 10 processi biologici (Figura 3) e sono stati arricchiti nella componente cellulare (CC): risposta al virus, risposta immunitaria innata, risposta di difesa al virus, risposta di difesa al simbionte, regolazione del processo virale, regolazione del ciclo di vita virale, regolazione negativa del processo virale, regolazione negativa della replicazione del genoma virale, regolazione della replicazione del genoma virale, risposta immunitaria innata antivirale; processo biologico (BP): lato della membrana, lato esterno della membrana plasmatica, matrice extracellulare, struttura esterna di incapsulamento, matrice extracellulare contenente collagene, trimero di collagene, zattera di membrana, microdominio di membrana, zattera di membrana plasmatica, caveola; funzione molecolare (MF): legame con il recettore delle citochine, attività delle citochine, attività del regolatore del recettore del trasmettitore, legame con la superfamiglia del recettore del fattore di necrosi tumorale, attività dell'attivatore del recettore di segnalazione, legame con il recettore del fattore di necrosi tumorale, attività del ligando del recettore, attività di omodimerizzazione delle proteine, attività della proteina chinasi del recettore transmembrana, attività della proteina chinasi.
La rete PPI comprendeva 99 nodi e 466 bordi (Figura 4A). I primi 20 geni con gradi più elevati nella rete PPI sono STAT3, STAT1, TP53, TNF, IL6, IFNG, EGFR, ISG15, CCNA2, IL10, JAK2, MX1, IL1B, IFIT1, AKT1, SMAD3, ASPM, CCNB2, NUSAP1 e CEP55, che fungono da geni hub (Figura 4B).
L'analisi della curva ROC è stata eseguita per valutare l'accuratezza diagnostica dei 20 geni hub (Figura 5). I valori dell'area sotto la curva (AUC) per le curve ROC di STAT3, STAT1, TP53, TNF, IL6, IFNG, EGFR, ISG15, CCNA2, IL10, JAK2, MX1, IL1B, IFIT1, AKT1, SMAD3, ASPM, CCNB2, NUSAP1 e CEP55 erano 0,543, 0,840, 0,724, 0,892, 0,965, 0,529, 0,721, 0,763, 0,933, 0,784, 0,836, 0,648, 0,936, 0,689, 0,662, 0,548, 0,960, 0,939, 0,934 e 0,953 per GSE32863 (Figura 5A, D), e 0,620, 0,811, 0,676, 0,878, 0,955, 0,546, 0,642, 0,765, 0,945, 0,759, 0,804, 0,625, 0,938, 0,753, 0,641, 0,540, 0,958, 0,945, 0,908 e 0,941 per GSE75037 (Figura 5B, E). Inoltre, per il set di convalida GSE31210 (Figura 5C, F), i valori AUC erano 0,505, 0,676, 0,819, 0,688, 0,863, 0,540, 0,720, 0,665, 0,814, 0,562, 0,766, 0,661, 0,806, 0,528, 0,607, 0,652, 0,906, 0,927, 0,910 e 0,898. I valori di AUC per IL6, CCNA2, JAK2, IL1B, ASPM, CCNB2, NUSAP1 e CEP55 erano >0,7, suggerendo che tutti e otto hanno un significato diagnostico.
Nei tessuti polmonari dei topi BALB/c e dei topi NOD/Ltj, è stata rilevata solo una piccola quantità di espressione dei fattori pro-infiammatori IL-6 e IL-1β. Dopo la stimolazione con PM2.5, l'espressione di IL-6 e IL-1β è aumentata significativamente, con un aumento notevolmente più elevato osservato nei topi NOD/Ltj rispetto ai topi BALB/c (Figura 6).
Dopo la stimolazione con PM2.5, i livelli di espressione di JAK2/STAT3 non sono cambiati significativamente nei tessuti polmonari dei topi BALB/c e dei topi NOD/Ltj. Tuttavia, i livelli di p-JAK2 e p-STAT3 sono aumentati in modo significativo. I topi NOD/Ltj hanno mostrato un'espressione significativamente più elevata di p-JAK2 e p-STAT3 rispetto ai topi BALB/c dopo stimolazione con PM2.5 (Figura 7).
Dopo la stimolazione con PM2.5, l'espressione dell'mRNA di ASPM e NUSAP1 non è cambiata significativamente sia nei topi BALB/c che nei topi NOD/Ltj, ma l'espressione dell'mRNA di CCNA2, CCNB2 e CEP55 è aumentata (Figura 8). In particolare, l'espressione dell'mRNA di CCNA2, CCNB2 e CEP55 era significativamente più alta nei topi NOD/Ltj rispetto ai topi BALB/c dopo stimolazione con PM2.5.
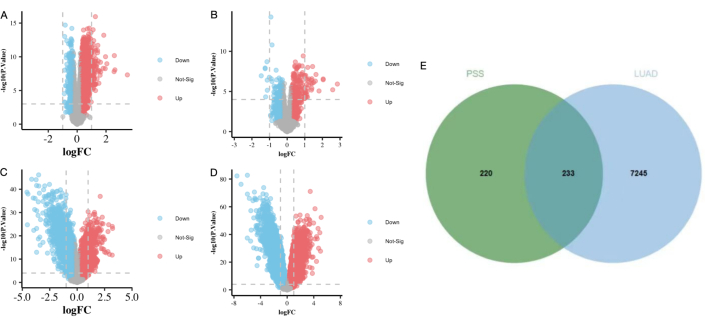
Figura 1: La mappa del vulcano e il diagramma di Venn dei DEG. (A) La mappa del vulcano di GSE84844. (B) La mappa del vulcano di GSE51092. (C) La mappa del vulcano di GSE32863. (D) La mappa del vulcano di GSE75037. (E) Diagramma di Venn di pSS-DEG e LUAD-DEG. I geni sovraregolati sono colorati in rosso; I geni sottoregolati sono colorati in verde. Abbreviazioni: pSS = sindrome di Sjögren primaria; LUAD = adenocarcinoma polmonare; DEG = geni differenzialmente espressi. Clicca qui per visualizzare una versione più grande di questa figura.
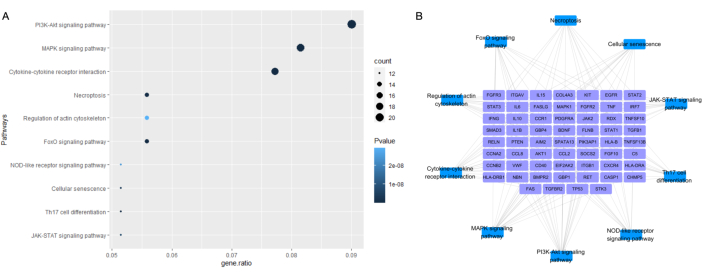
Figura 2: Arricchimento del percorso KEGG dei pSS-LUAD-DEG. (A) Mappa di arricchimento KEGG TOP10 dei pSS-LUAD-DEG. (B) L'associazione tra le vie di segnalazione TOP10 KEGG con pSS-LUAD-DEG. Abbreviazioni: KEGG = Kyoto Encyclopedia of Genes and Genomes; pSS = Sindrome di Sjögren primaria; LUAD = adenocarcinoma polmonare; DEG = geni differenzialmente espressi. Clicca qui per visualizzare una versione più grande di questa figura.
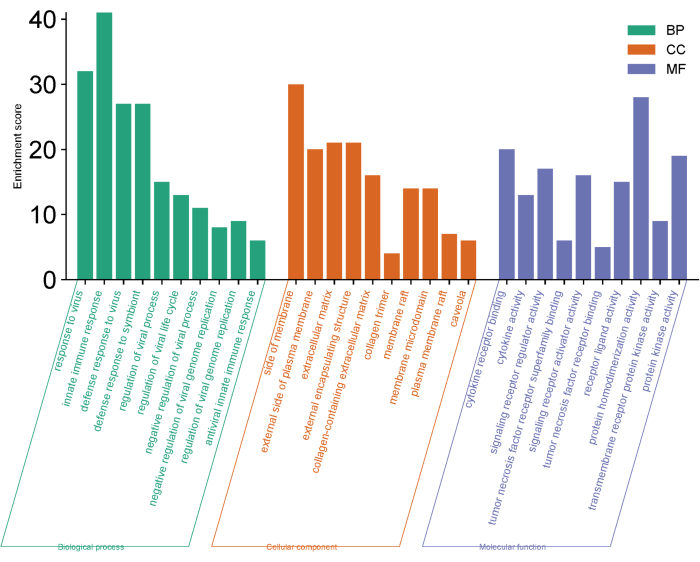
Figura 3: Analisi dell'arricchimento GO di pSS-LUAD-DEG. Abbreviazioni: GO = Gene Ontology; pSS = Sindrome di Sjögren primaria; LUAD = Adenocarcinoma polmonare; DEG = geni differenzialmente espressi. Clicca qui per visualizzare una versione più grande di questa figura.
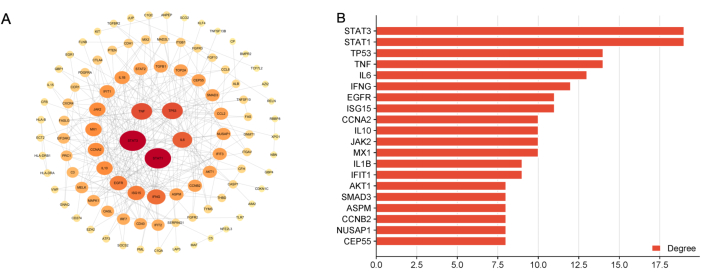
Figura 4: Rete PPI di pSS-LUAD-DEG. (A) Visualizzazione della rete PPI. Le tonalità più rosse indicano una maggiore connettività del nodo. (B) I primi 20 geni con gradi più alti nella rete PPI. Abbreviazioni: PPI = interazione proteina-proteina; pSS = Sindrome di Sjögren primaria; LUAD = adenocarcinoma polmonare; DEG = geni differenzialmente espressi. Clicca qui per visualizzare una versione più grande di questa figura.
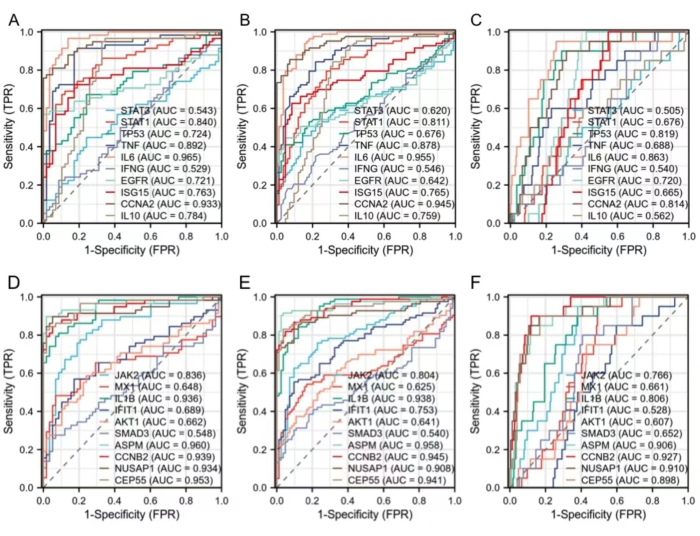
Figura 5: Analisi della curva ROC dei geni hub. (A-F) Analisi della curva ROC dei geni hub in GSE32863, GSE75037 e GSE31210. Abbreviazioni: ROC = Caratteristica operativa del ricevitore. Clicca qui per visualizzare una versione più grande di questa figura.
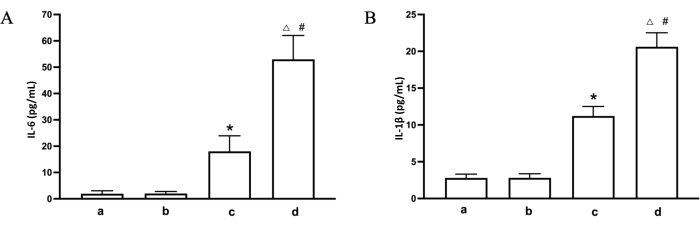
Figura 6: L'impatto del PM2.5 sui fattori pro-infiammatori nei tessuti polmonari di topo. (A) Espressione di IL-6 nei tessuti polmonari di topo di ciascun gruppo. (B) Espressione di IL-1β nei tessuti polmonari di topo di ciascun gruppo. a. gruppo di controllo in bianco; b. gruppo pSS; c. gruppo PM2,5; d. Gruppo pSS-PM2.5. * p < 0,05 rispetto al gruppo di controllo in bianco; # p < 0,05 rispetto al gruppo pSS; Δ p < 0,05 rispetto al gruppo PM2,5. Abbreviazioni: PM2.5 = particolato 2.5. Clicca qui per visualizzare una versione più grande di questa figura.
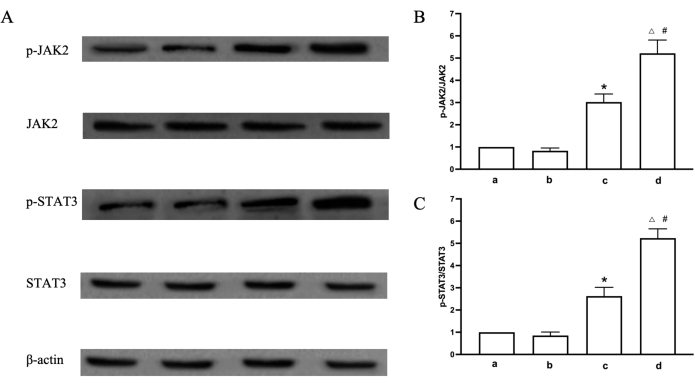
Figura 7: L'impatto del PM2.5 sulla via di segnalazione JAK2/STAT3 nei tessuti polmonari di topo. (A) Espressione di p-JAK2, JAK2, p-STAT3, STAT3 e β-actina nei tessuti polmonari di topo di ciascun gruppo. (B) Il rapporto tra p-JAK2/JAK2 nei tessuti polmonari di topo di ciascun gruppo. (C) Il rapporto di p-STAT3/STAT3 nei tessuti polmonari di topo di ciascun gruppo. a. gruppo di controllo in bianco; b. gruppo pSS; c. gruppo PM2,5; d. Gruppo pSS-PM2.5. * p < 0,05 rispetto al gruppo di controllo in bianco; # p < 0,05 rispetto al gruppo pSS; Δ p < 0,05 rispetto al gruppo PM2,5. Abbreviazioni: PM2.5 = particolato 2.5. Clicca qui per visualizzare una versione più grande di questa figura.
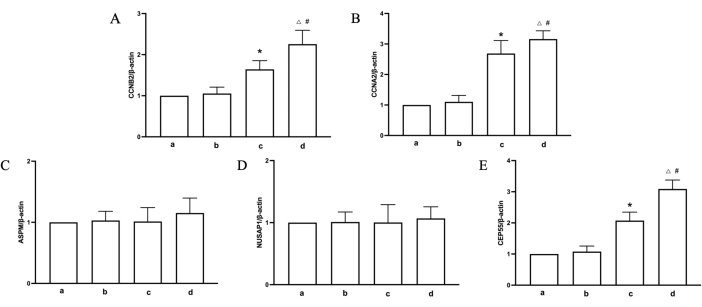
Figura 8: L'impatto di PM2.5 sui geni correlati a LUAD nei tessuti polmonari di topo. (A) Espressione dell'mRNA di CCNB2 nei tessuti polmonari di topo di ciascun gruppo. (B) Espressione dell'mRNA di CCNA2 nei tessuti polmonari di topo di ciascun gruppo. (C) Espressione dell'mRNA di ASPM nei tessuti polmonari di topo di ciascun gruppo. (D) Espressione dell'mRNA di NUSAP1 nei tessuti polmonari di topo di ciascun gruppo. (E) Espressione dell'mRNA di CEP55 nei tessuti polmonari di topo di ciascun gruppo. a. gruppo di controllo in bianco; b. gruppo pSS; c. gruppo PM2,5; d. Gruppo pSS-PM2.5. * p < 0,05 rispetto al gruppo di controllo in bianco; # p < 0,05 rispetto al gruppo pSS; Δ p < 0,05 rispetto al gruppo PM2,5. Abbreviazioni: PM2.5 = particolato 2.5. Clicca qui per visualizzare una versione più grande di questa figura.
Tabella supplementare 1: Elenco dei DEG condivisi (pSS-LUAD-DEGs) selezionati tra pSS-DEG e LUAD-DEGs. Clicca qui per scaricare questo file.
File di codifica supplementare 1: Codice R per filtrare i DEG. Clicca qui per scaricare questo file.
Discussione
Sebbene la pSS sia considerata una malattia caratterizzata principalmente dall'invasione delle ghiandole esocrine, il danno delle extra-ghiandole non può essere ignorato24. I polmoni rappresentano un organo bersaglio per la pSS e il coinvolgimento polmonare è una manifestazione extra-ghiandolare comune della pSS, che tipicamente coinvolge l'infiltrazione linfocitaria della mucosa bronchiale e dell'interstizio polmonare25. La ricerca indica che almeno il 20% dei pazienti con pSS soffre di malattia polmonare interstiziale (ILD)26,27. L'ILD è un fattore di rischio significativo per il cancro del polmone, il che, in una certa misura, spiega l'aumento dell'incidenza del cancro del polmone nella pSS28. Allo stesso tempo, i pazienti con pSS-ILD hanno un aumento significativo dei marcatori tumorali, sottolineando ulteriormente l'associazione tra pSS e neoplasie polmonari 29,30. Per esplorare i meccanismi dell'associazione tra pSS e LUAD, questo studio ha prima condotto un'analisi bioinformatica basata sui DEG associati sia a pSS che a LUAD e successivamente ha stabilito modelli animali rilevanti per entrambe le malattie per la verifica sperimentale.
Dopo l'identificazione dei pSS-LUAD-DEG, è stata condotta l'analisi dell'arricchimento della via KEGG, rivelando il ruolo critico svolto dalla via di segnalazione PI3K/Akt in questa associazione. La via di segnalazione PI3K/Akt, dopo l'attivazione da parte di PI3K, catalizza la generazione di PIP3, reclutando le proteine PDK1 e AKT sulla membrana plasmatica. PDK1 fosforila AKT per l'attivazione, avviando una cascata di effetti a valle. Studi correlati suggeriscono che il coinvolgimento della via di segnalazione PI3K/Akt nell'insorgenza, proliferazione, migrazione, apoptosi e angiogenesi dei tumori 31,32,33,34,35,36. Una serie di studi clinici ha dimostrato che la via di segnalazione PI3K/Akt è ampiamente attivata nella tumorigenesi36. Nel frattempo, AKT può regolare la via di segnalazione NFκB fosforilando la chinasi IκB, controllando la trascrizione dei fattori infiammatori correlati37,38. La via di segnalazione MAPK39, l'interazione citochine-recettore delle citochine40, la via di segnalazione del recettore NOD-like41, la differenziazione cellulare Th1742 e la via di segnalazione JAK-STAT43 svolgono ruoli regolatori cruciali nei processi correlati all'infiammazione. Tuttavia, la via di segnalazione FoxO44, la necroptosi45 e la senescenza cellulare46 influenzano la tumorigenesi regolando il processo di apoptosi nelle cellule. Nel frattempo, l'analisi dell'arricchimento di OB ha anche rivelato che i processi biologici strettamente correlati all'infiammazione, come il legame con il recettore delle citochine, l'attività delle citochine, il legame con la superfamiglia del recettore del fattore di necrosi tumorale e il legame con il recettore del fattore di necrosi tumorale, sono coinvolti in questo processo.
Per identificare ulteriormente i bersagli chiave tra pSS e LUAD, i geni principali sono stati ottenuti da pSS-LUAD-DEG attraverso l'analisi della rete PPI, seguita dalla convalida utilizzando il set di dati GSE31210. In definitiva, IL6, CCNA2, JAK2, IL1B, ASPM, CCNB2, NUSAP1 e CEP55 sono stati determinati come bersagli chiave di pSS-LUAD. IL6 e IL1B sono fattori infiammatori chiave che svolgono un ruolo critico nel processo infiammatorio di pSS47,48. Nel frattempo, JAK2 funge da bersaglio chiave nella regolazione della via di segnalazione JAK-STAT e, negli ultimi anni, è stata tentata una serie di inibitori dell'enzima JAK per il trattamento clinico di pSS49. ASPM, CCNB2, NUSAP1 e CEP55 sono coinvolti nella regolazione della replicazione del DNA, svolgendo così un ruolo cruciale nell'inizio e nella progressione dei tumori 50,51,52,53,54,55. Gli studi hanno dimostrato che ASPM, CCNB2, NUSAP1 e CEP55 promuovono l'invasione e la progressione di LUAD 51,52,55,56,57. Lo studio di cui sopra ha scoperto che l'infiammazione gioca un ruolo cruciale sia nella pSS che nel LUAD. La pSS caratterizzata da infiltrazione linfocitaria, induce reazioni infiammatorie croniche e persistenti nei tessuti locali58. L'insorgenza e le metastasi del cancro del polmone sono strettamente associate al microambiente infiammatorio dei polmoni59. In sintesi, abbiamo ipotizzato che la reazione infiammatoria possa essere la chiave di questa associazione tra pSS e LUAD. Sulla base di questo come punto di riferimento, è stata eseguita un'ulteriore verifica sperimentale.
Poiché attualmente non esiste un modello comune per pSS e LUAD, abbiamo deciso di utilizzare topi modello pSS stimolati con PM2,5 per simulare un modello rilevante per entrambe le malattie dopo aver esaminato la letteratura pertinente. Il PM2,5 si riferisce a particelle solide fini con un diametro inferiore o uguale a 2,5 μm. Può fluttuare nell'aria e penetrare in profondità nei polmoni, causando danni significativi alla salute60. La ricerca indica che l'esposizione a lungo termine al PM2.5 può portare a un microambiente infiammatorio cronico nei polmoni, portando infine all'insorgenza di LUAD21,61. I topi NOD/Ltj, che mostrano infiltrazione linfocitaria nelle ghiandole esocrine, sono un modello ideale per lo studio di pSS62. Pertanto, in un'ulteriore verifica sperimentale, abbiamo stimolato topi NOD/Ltj con PM2.5 per stabilire un modello composito di pSS e reazioni infiammatorie polmonari. I risultati sperimentali indicano che i fattori pro-infiammatori IL-6 e IL-1β erano a malapena espressi sia nei topi NOD/Ltj che nei topi BALB/c senza stimolazione PM2.5. Tuttavia, in seguito alla stimolazione con PM2.5, l'espressione di IL-6 e IL-1β è stata significativamente aumentata, indicando il successo della creazione del modello sperimentale di microambiente infiammatorio polmonare. I livelli di espressione di IL-6 e IL-1β erano più alti nei topi NOD/Ltj rispetto ai topi BALB/c dopo stimolazione con PM2.5, indicando che pSS è più sensibile alle reazioni infiammatorie indotte da PM2.5.
La via JAK/STAT è una via di trasduzione del segnale stimolata dalle citochine, che partecipa a processi biologici tra cui la crescita cellulare, la differenziazione, l'apoptosi e la regolazione immunitaria63. Le citochine infiammatorie, tra cui IL-6 e IL-1β, si legano ai recettori nella membrana cellulare, portando all'attivazione della fosforilazione delle Janus chinasi (JAK), e le JAK mediano la fosforilazione STAT64. Le proteine STAT fosforilate si trasferiscono al nucleo e regolano l'espressione dei geni STAT-responsivi. La via di segnalazione JAK2/STAT3 è strettamente correlata alla regolazione dei geni correlati al tumore, che è attivata principalmente da IL-6 e modula l'espressione di una serie di proteine che promuovono la crescita cellulare, la mobilità e la formazione del tumore. Questo studio ha rivelato che in seguito alla stimolazione con PM2.5, i livelli proteici di JAK2 e STAT3 nei polmoni dei topi NOD/Ltj e dei topi BALB/c non hanno mostrato cambiamenti significativi, ma i livelli di fosforilazione di JAK2 e STAT3 sono aumentati significativamente, indicando che la via JAK2/STAT3 era attivata in modo anomalo. Ulteriori confronti hanno rivelato che i livelli di fosforilazione di JAK2 e STAT3 sono aumentati significativamente nei polmoni dei topi NOD/Ltj rispetto ai topi BALB/c, suggerendo un'attivazione più pronunciata della via di segnalazione JAK2/STAT3 nei polmoni dei topi pSS in condizioni di stimolazione PM2.5 equivalenti.
Ulteriore esplorazione dei livelli di espressione genica correlati al tumore di CCNA2, ASPM, CCNB2, NUSAP1 e CEP55 come previsto dall'analisi bioinformatica. I risultati hanno rivelato che i livelli di espressione di CCNA2, CCNB2 e CEP55 erano elevati nei polmoni dopo la stimolazione con PM2.5, con livelli più elevati rilevati nei topi NOD/Ltj rispetto ai topi BALB/c. Ha suggerito che CCNA2, CCNB2 e CEP55 potrebbero essere strettamente correlati alle reazioni infiammatorie a seguito della stimolazione di PM2.5 e coinvolti nella potenziale insorgenza e sviluppo di LUAD.
Nella ricerca futura, speriamo di collaborare con la chirurgia toracica per ottenere campioni di chirurgia polmonare da pazienti con pSS, compresi quelli con LUAD e lesioni polmonari non cancerose, per chiarire la progressione dall'infiltrazione linfocitaria ai processi neoplastici attraverso il sequenziamento di singole cellule. Nel frattempo, i fattori infiammatori IL-6 e IL-1β, insieme alla via di segnalazione JAK/STAT cruciale per la regolazione dell'infiammazione, sono stati associati a potenziali meccanismi patogenetici nella progressione da pSS a LUAD. Ciò indica che farmaci come tocilizumab (anticorpi monoclonali IL-6), canakinumab (anticorpi monoclonali IL-1β) e tofacitinib (inibitori JAK), che sono correlati all'infiammazione, possono servire come potenziali farmaci candidati per prevenire il LUAD nei pazienti con pSS.
Dichiarazioni
Gli autori non hanno conflitti di interesse da rivelare.
Ringraziamenti
Questo studio è stato supportato dal National High Level Hospital Clinical Research Funding (2023-NHLHCRF-BQ-01) e dal Youth Project of China-Japan Friendship Hospital (No.2020-1-QN-8).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Epizima | marcatore proteico prestained a 3 colori | WJ103 | Western Blot |
| Antibody Dilution Buffer | PS119 | Western Blot | |
| Kit di quantificazione delle proteine BCA | Epizyme | ZJ101 | Western Blot |
| Cytoscape 3.7.1 software | National Institute of General Medical Sciences (NIGMS), National Institutes of Health (NIH) | Versione 3.7.1. | Software open source per l'analisi e la visualizzazione di reti biologiche |
| ECL Luminous Fluid | Epizyme | SQ203 | Western Blot |
| Elettroforesi Buffer | Epizyme | PS105S | Western Blot |
| GraphPad Prism 10.0 | GraphPad | Versione 10.0 | Analisi dei dati |
| HRP-coniugato Capra anti-coniglio IgG (H+L) (AS014) | abclonale | AS014 | Western Blot |
| JAK2 Anticorpo | Cell Signaling Technology | 3230T | Western Blot |
| Mouse IL-1β Kit ELISA | Pechino 4A Biotech Co., Ltd | CME0015 | ELISA |
| per mouse ELISA IL-6 | Pechino 4A Biotech Co., Ltd | CME0006 | |
| Cocktail di inibitori della fosfatasi ELISA (100 volte) | Epizima | GRF102 | Western Blot |
| Phospho-JAK2 (Tyr1007/1008) Anticorpo | Cell Signaling Technology | 3776S | Western Blot |
| Phospho-STAT3 (Tyr705) Antibody | Cell Signaling Technology | 9145S | Western Blot |
| Protease Inhibitor Cocktail (100×) | Epizyme | GRF101 | Western Blot |
| Tampone di blocco rapido senza proteine (5 volte;) | Epizyme | PS108 | Western Blot |
| PVDF | membrana Millipore | IPVH00010 | Western Blot |
| R software | R Foundation for Statistical Computing | Non applicabile | Software di analisi statistica e linguaggio di programmazione utilizzati per l'analisi dei dati, la visualizzazione e le applicazioni di apprendimento automatico |
| Saggio di immunoprecipitazione radio | Epizyme | PC101 | Western Blot |
| Sistema di trascrizione inversa | Promega | A3500 | PCR |
| SDS-PAGE | Epizyme | LK303 | Western Blot |
| SDS-PAGE Tampone di caricamento delle proteine (5 volte;) | Epizyme | LT103 | Western Blot |
| STAT3 | Tecnologia di segnalazione cellulare | 9139S | Western Blot |
| SYBR Green Realtime PCR Master Mix | TOYOBO | QPK-201 | PCR |
| TBST (10×) | Epizyme | PS103 | Western Blot |
| Buffer di trasferimento Western Blot (10×) | Epizyme | PS109 | Western Blot |
| β-Actin Anticorpo | clonale | AC026 | Western Blot |
Riferimenti
- Thorlacius, G. E., Bjork, A., Wahren-Herlenius, M. Genetics and epigenetics of primary sjogren syndrome: Implications for future therapies. Nat Rev Rheumatol. 19 (5), 288-306 (2023).
- Bjordal, O., Norheim, K. B., Rodahl, E., Jonsson, R., Omdal, R. Primary Sjogren's syndrome and the eye. Surv Ophthalmol. 65 (2), 119-132 (2020).
- Zhong, H., et al. Hyperglobulinemia predicts increased risk of mortality in primary Sjogren's syndrome: Based on a Chinese multicentre registry. Mod Rheumatol. 34 (1), 137-143 (2023).
- Lin, W., et al. Interstitial lung disease in primary Sjogren's syndrome. BMC Pulm Med. 22 (1), 73(2022).
- Aiyegbusi, O., et al. Renal disease in primary Sjogren's syndrome. Rheumatol Ther. 8 (1), 63-80 (2021).
- Liampas, A., et al. Primary sjogren syndrome-related peripheral neuropathy: A systematic review and meta-analysis. Eur J Neurol. 30 (1), 255-265 (2023).
- Wu, J., et al. Clinical and laboratory features of primary Sjogren's syndrome complicated with mild to severe thrombocytopenia. Ann Transl Med. 10 (6), 300(2022).
- Zhong, H., et al. Primary Sjogren's syndrome is associated with increased risk of malignancies besides lymphoma: A systematic review and meta-analysis. Autoimmun Rev. 21 (5), 103084(2022).
- Goulabchand, R., et al. Cancer incidence in primary Sjogren's syndrome: Data from the French hospitalization database. Autoimmun Rev. 20 (12), 102987(2021).
- Witkowski Durand Viel, P., et al. Chronological interplay, clinical features, and treatments among patients with cancer and primary Sjogren's syndrome. Cancer Immunol Immunother. 72 (12), 4309-4322 (2023).
- Xu, Y., et al. The prevalence and clinical characteristics of primary Sjogren's syndrome patients with lung cancer: An analysis of ten cases in China and literature review. Thorac Cancer. 6 (4), 475-479 (2015).
- Shi, L., Du, X., Li, J., Zhang, G. Bioinformatics and systems biology approach to identify the pathogenetic link between psoriasis and cardiovascular disease. Clin Cosmet Investig Dermatol. 16, 2283-2295 (2023).
- Xu, R., Ma, L. L., Cui, S., Chen, L., Xu, H. Bioinformatics and systems biology approach to identify the pathogenetic link between heart failure and sarcopenia. Arq Bras Cardiol. 120 (10), e20220874(2023).
- Lv, Y., et al. Bioinformatics and systems biology approach to identify the pathogenetic link of long COVID and myalgic encephalomyelitis/chronic fatigue syndrome. Front Immunol. 13, 952987(2022).
- Barrett, T., et al. Ncbi geo: Archive for functional genomics data sets--update. Nucleic Acids Res. 41 (database issue), D991-D995 (2013).
- Stelzer, G., et al. The GeneCards suite: From gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54, 1.30.1-1.30.33 (2016).
- Liu, S., et al. Three differential expression analysis methods for RNA sequencing: limma, EdgeR, DESeq2. J Vis Exp. 175, e62528(2021).
- Zhou, Y., et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 10 (1), 1523(2019).
- Szklarczyk, D., et al. The string database in 2023: Protein-protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 51 (D1), D638-D646 (2023).
- Shannon, P., et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Hill, W., et al. Lung adenocarcinoma promotion by air pollutants. Nature. 616 (7955), 159-167 (2023).
- Piao, C. H., et al. PM2.5 exposure regulates th1/th2/th17 cytokine production through NF-κβ signaling in combined allergic rhinitis and asthma syndrome. Int Immunopharmacol. 119, 110254(2023).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume protein concentration determination using the nanodrop 2000c spectrophotometer. J Vis Exp. 33, e1610(2009).
- Luo, J., et al. Distinct clinical phenotypes of primary Sjogren's syndrome differ by onset age: A retrospective study of 742 cases and review of the literature. Clin Exp Rheumatol. 40 (12), 2373-2380 (2022).
- Luppi, F., et al. Lung complications of Sjogren syndrome. Eur Respir Rev. 29 (157), (2020).
- Berardicurti, O., et al. Interstitial lung disease and pulmonary damage in primary Sjogren's syndrome: A systematic review and meta-analysis. J Clin Med. 12 (7), 2586(2023).
- Roca, F., et al. Interstitial lung disease in primary Sjogren's syndrome. Autoimmun Rev. 16 (1), 48-54 (2017).
- Fisher, D. A., et al. Diagnosis and treatment of lung cancer in the setting of interstitial lung disease. Radiol Clin North Am. 60 (6), 993-1002 (2022).
- Okudela, K., et al. Implications of thyroid transcription factor-1 gene methylation in carcinogenesis of interstitial pneumonia-related non-terminal respiratory unit lung adenocarcinoma. Int J Clin Exp Pathol. 15 (3), 120-130 (2022).
- Sekine, A., et al. Disease activity of lung cancer at the time of acute exacerbation of interstitial lung disease during cytotoxic chemotherapy. Thorac Cancer. 13 (17), 2443-2449 (2022).
- Glaviano, A., et al. PI3K/AKT/mTOR signaling transduction pathway and targeted therapies in cancer. Mol Cancer. 22 (1), 138(2023).
- Ediriweera, M. K., Tennekoon, K. H., Samarakoon, S. R. Role of the PI3K/AKT/mTOR signaling pathway in ovarian cancer: Biological and therapeutic significance. Semin Cancer Biol. 59, 147-160 (2019).
- Hoxhaj, G., Manning, B. D. The PI3K-AKT network at the interface of oncogenic signalling and cancer metabolism. Nat Rev Cancer. 20 (2), 74-88 (2020).
- Liu, R., et al. PI3K/AKT pathway as a key link modulates the multidrug resistance of cancers. Cell Death Dis. 11 (9), 797(2020).
- Manogaran, P., Beeraka, N. M., Paulraj, R. S., Sathiyachandran, P., Thammaiappa, M. Impediment of cancer by dietary plant-derived alkaloids through oxidative stress: Implications of PI3K/AKT pathway in apoptosis, autophagy, and ferroptosis. Curr Top Med Chem. 23 (10), 860-877 (2023).
- Acosta-Martinez, M., Cabail, M. Z. The PI3K/AKT pathway in meta-inflammation. Int J Mol Sci. 23 (23), 15330(2022).
- Chen, G. Y., et al. Prediction of Rhizoma Drynariae targets in the treatment of osteoarthritis based on network pharmacology and experimental verification. Evid Based Complement Alternat Med. 2021, 5233462(2021).
- Chen, G. Y., et al. Total flavonoids of Rhizoma Drynariae restore the MMP/TIMP balance in models of osteoarthritis by inhibiting the activation of the NF-κβ and PI3K/AKT pathways. Evid Based Complement Alternat Med. 2021, 6634837(2021).
- Chen, G. Y., et al. Network pharmacology analysis and experimental validation to investigate the mechanism of total flavonoids of Rhizoma Drynariae in treating rheumatoid arthritis. Drug Des Devel Ther. 16, 1743-1766 (2022).
- Yao, C., Narumiya, S. Prostaglandin-cytokine crosstalk in chronic inflammation. Br J Pharmacol. 176 (3), 337-354 (2019).
- Liu, P., et al. NOD-like receptor signaling in inflammation-associated cancers: From functions to targeted therapies. Phytomedicine. 64, 152925(2019).
- Damasceno, L. E. A., et al. PKM2 promotes Th17 cell differentiation and autoimmune inflammation by fine-tuning stat3 activation. J Exp Med. 217 (10), e20190613(2020).
- Banerjee, S., Biehl, A., Gadina, M., Hasni, S., Schwartz, D. M. JAK-STAT signaling as a target for inflammatory and autoimmune diseases: Current and future prospects. Drugs. 77 (5), 521-546 (2017).
- Jiramongkol, Y., Lam, E. W. FOXO transcription factor family in cancer and metastasis. Cancer Metastasis Rev. 39 (3), 681-709 (2020).
- Tong, X., et al. Targeting cell death pathways for cancer therapy: Recent developments in necroptosis, pyroptosis, ferroptosis, and cuproptosis research. J Hematol Oncol. 15 (1), 174(2022).
- Ou, H. L., et al. Cellular senescence in cancer: From mechanisms to detection. Mol Oncol. 15 (10), 2634-2671 (2021).
- Felten, R., et al. Interleukin 6 receptor inhibition in primary Sjogren syndrome: A multicentre double-blind randomised placebo-controlled trial. Ann Rheum Dis. 80 (3), 329-338 (2021).
- Bardsen, K., et al. Interleukin-1-related activity and hypocretin-1 in cerebrospinal fluid contribute to fatigue in primary Sjogren's syndrome. J Neuroinflammation. 16 (1), 102(2019).
- Barrera, M. J., et al. Tofacitinib counteracts il-6 overexpression induced by deficient autophagy: Implications in Sjogren's syndrome. Rheumatology (Oxford). 60 (4), 1951-1962 (2021).
- Liu, H., Zhou, Q., Xu, X., Du, Y., Wu, J. ASPM and TROAP gene expression as potential malignant tumor markers. Ann Transl Med. 10 (10), 586(2022).
- Qian, X., et al. CCNB2 overexpression is a poor prognostic biomarker in Chinese NSCLC patients. Biomed Pharmacother. 74, 222-227 (2015).
- Mo, M. L., et al. Use of serum circulating CCNB2 in cancer surveillance. Int J Biol Markers. 25 (4), 236-242 (2010).
- Li, L., et al. NuSAP is degraded by APC/C-Cdh1 and its overexpression results in mitotic arrest dependent of its microtubules' affinity. Cell Signal. 19 (10), 2046-2055 (2007).
- Fabbro, M., et al. Cdk1/Erk2- and Plk1-dependent phosphorylation of a centrosome protein, cep55, is required for its recruitment to midbody and cytokinesis. Dev Cell. 9 (4), 477-488 (2005).
- Jeffery, J., Sinha, D., Srihari, S., Kalimutho, M., Khanna, K. K. Beyond cytokinesis: The emerging roles of CEP55 in tumorigenesis. Oncogene. 35 (6), 683-690 (2016).
- Feng, Z., et al. Overexpression of abnormal spindle-like microcephaly-associated (ASPM) increases tumor aggressiveness and predicts poor outcome in patients with lung adenocarcinoma. Transl Cancer Res. 10 (2), 983-997 (2021).
- Zheng, H., et al. Comprehensive pan-cancer analysis reveals NuSAP1 is a novel predictive biomarker for prognosis and immunotherapy response. Int J Biol Sci. 19 (14), 4689-4708 (2023).
- Verstappen, G. M., Pringle, S., Bootsma, H., Kroese, F. G. M. Epithelial-immune cell interplay in primary sjogren syndrome salivary gland pathogenesis. Nat Rev Rheumatol. 17 (6), 333-348 (2021).
- El Rayes, T., et al. Lung inflammation promotes metastasis through neutrophil protease-mediated degradation of Tsp-1. Proc Natl Acad Sci U S A. 112 (52), 16000-16005 (2015).
- Zhao, L., et al. PM2.5 and serum metabolome and insulin resistance, potential mediation by the gut microbiome: A population-based panel study of older adults in china. Environ Health Perspect. 130 (2), 27007(2022).
- Li, J., et al. PM2.5 exposure perturbs lung microbiome and its metabolic profile in mice. Sci Total Environ. 721, 137432(2020).
- Liao, J. H., et al. Network pharmacology-based strategy to investigate the mechanisms of artemisinin in treating primary sjogren's syndrome. BMC Immunol. 25 (1), 16(2024).
- Hu, Q., et al. JAK/STAT pathway: Extracellular signals, diseases, immunity, and therapeutic regimens. Front Bioeng Biotechnol. 11, 1110765(2023).
- Xue, C., et al. Evolving cognition of the JAK-STAT signaling pathway: Autoimmune disorders and cancer. Signal Transduct Target Ther. 8 (1), 204(2023).
Ristampe e permessi
