L'abuso di alcol compromette l'immunità dei macrofagi alveolari (AM) a causa della soppressione della respirazione mitocondriale e della bioenergetica. Recentemente abbiamo dimostrato che l'esposizione all'etanolo (EtOH) aumenta la dipendenza dalla glutammina per la respirazione mitocondriale nelle AM. In questo articolo, vengono forniti metodi per determinare l'uso della glutammina per la respirazione mitocondriale nelle AM trattate con EtOH utilizzando un bioanalizzatore di flusso extracellulare.
Articolo metodologico
Valutazione della glutammina come fonte di combustibile per macrofagi alveolari esposti a etanolo cronico utilizzando un bioanalizzatore di flusso extracellulare
In questo articolo
Sommario
Abstract
I macrofagi alveolari (AM) sono la prima linea di difesa cellulare nelle vie aeree inferiori contro gli agenti patogeni. Tuttavia, l'uso cronico ed eccessivo di alcol compromette la capacità degli AM di fagocitare ed eliminare i patogeni dallo spazio alveolare, in parte attraverso il metabolismo disregolato del carburante e la bioenergetica. Il nostro lavoro precedente ha dimostrato che il consumo cronico di etanolo (EtOH) compromette la bioenergetica mitocondriale e aumenta i livelli di lattato nelle AM. Inoltre, abbiamo recentemente dimostrato che l'EtOH aumenta la dipendenza dalla glutammina e la respirazione massimale glutammina-dipendente, diminuendo la flessibilità, passando dalla respirazione piruvato-dipendente alla respirazione glutammina-dipendente. La glutamminolisi è un'importante via compensatoria per la respirazione mitocondriale quando il piruvato viene utilizzato per la produzione di acido lattico o quando altre fonti di carburante sono insufficienti. Utilizzando una linea cellulare AM di topo, cellule MH-S, esposte a nessun EtOH o EtOH (0,08%) per 72 ore, abbiamo determinato la dipendenza della respirazione mitocondriale e della bioenergetica dalla glutammina come fonte di combustibile utilizzando un bioanalizzatore di flusso extracellulare. Sono state effettuate misure in tempo reale in risposta al bis-2-(5-fenilacetammido-1,3,4-tiadiazl-2-il) solfuro di etile (BPTES), un inibitore della glutaminasi 1, che impedisce la conversione enzimatica della glutammina in glutammato, nel veicolo del mezzo o in risposta al solo veicolo, seguite dal test dello stress mitocondriale. Il protocollo passo-passo fornito qui descrive i nostri metodi e calcoli per analizzare i livelli medi di respirazione mitocondriale basale glutammina-dipendente, respirazione mitocondriale legata all'ATP, respirazione mitocondriale massima e capacità respiratoria di riserva mitocondriale attraverso più repliche biologiche e sperimentali.
Introduzione
Il disturbo da uso di alcol (AUD) colpisce oltre 28 milioni di persone negli Stati Uniti1. Le persone con AUD hanno una probabilità 2-4 volte maggiore di sviluppare infezioni respiratorie 2,3, aumentando il rischio di morbilità e mortalità prematura 3,4,5. L'abuso di alcol aumenta la suscettibilità alle infezioni respiratorie, in parte attraverso la soppressione della funzione immunitaria polmonare. I macrofagi alveolari (AM) sono la prima linea di difesa cellulare contro gli agenti patogeni nel polmone inferiore, dove fagocitano ed eliminano i microbi inalati. Tuttavia, il consumo cronico di alcol compromette la capacità degli AM di inghiottire e uccidere gli agenti patogeni 6,7.
Le funzioni immunitarie delle AM, come la fagocitosi, sono processi che richiedono energia e che richiedono vie metabolicamente attive necessarie per un'elevata generazione di adenosina trifosfato (ATP). La fosforilazione ossidativa mitocondriale è il processo cellulare più efficiente per la produzione di ATP, ma l'esposizione cronica all'etanolo (EtOH) aumenta lo stress ossidativo di derivazione mitocondriale, che può provocare disfunzione mitocondriale nelle AM 8,9,10. La respirazione mitocondriale misurata utilizzando il tasso di consumo di ossigeno cellulare (OCR) può essere quantificata utilizzando un bioanalizzatore di flusso extracellulare in tempo reale. I profili di respirazione mitocondriale valutati in risposta all'oligomicina (inibitore dell'ATP sintasi), al cianuro di carbonile-p-trifluorometossifenilidrazone (FCCP, disaccoppiatore di protoni) e al rotenone/antimicina A (R/A, inibitori del complesso mitocondriale I e III, rispettivamente) sono utilizzati per determinare la bioenergetica mitocondriale. L'EtOH cronica riduce la bioenergetica mitocondriale nelle AM, come evidenziato dalla diminuzione della respirazione basale mitocondriale, dalla respirazione legata all'ATP, dalla respirazione massimale e dalla capacità respiratoria di riserva10.
Le cellule hanno vari livelli di dipendenza da fonti di combustibili, come il piruvato, la glutammina o gli acidi grassi, per la produzione di ATP. Hanno anche un livello di flessibilità in base al quale possono cambiare l'uso del carburante per regolare la bioenergetica cellulare. La glutamminolisi è una via chiave per la respirazione mitocondriale, in particolare quando il piruvato è deviato verso la produzione di acido lattico o quando gli acidi grassi sono insufficienti. Il nostro recente studio ha dimostrato che l'esposizione cronica all'EtOH aumenta la dipendenza AM dalla glutammina e diminuisce la flessibilità dell'AM nell'utilizzare la glutammina e altre fonti di carburante per la respirazione mitocondriale11. Questi risultati, insieme ai dati che dimostrano che il trattamento delle cellule MH-S esposte a EtOH con l'inibitore dell'ossidazione del piruvato UK5099 non ha alterato la bioenergetica mitocondriale rispetto alle cellule MH-S esposte al controllo dei terreni trattate con UK5099, hanno suggerito un passaggio dalla respirazione dipendente al piruvato alla respirazione glutammina-dipendente nelle cellule MH-S di EtOH. Tuttavia, questo cambiamento è insufficiente per soddisfare le esigenze bioenergetiche AM11. In questo articolo, descriviamo i metodi per valutare la glutammina come fonte di combustibile per la respirazione mitocondriale in AM croniche esposte a EtOH utilizzando un bioanalizzatore di flusso extracellulare. Questo protocollo è stato creato e ottimizzato per un formato a 96 pozzetti (11,04 mm2 aree) e deve essere regolato per pozzetti di coltura cellulare di dimensioni maggiori. La dipendenza dalla glutammina per la bioenergetica mitocondriale è determinata utilizzando bis-2-(5-fenilacetamido-1,3,4-tiadiaz-2-il) solfuro di etile (BPTES, inibitore della glutaminasi 1) per inibire selettivamente la conversione enzimatica della glutammina in glutammato. I dati presentati in questo studio sono repliche biologiche aggiuntive per i gruppi sperimentali trattati con controllo dei terreni e BPTES di linee cellulari AM di topo non trattate con controllo e croniche esposte a EtOH, cellule MH-S, che sono pubblicate in Crotty et al.11.
Protocollo
1. Esposizione cronica a EtOH in vitro
- Coltura di cellule MH-S, una linea cellulare di macrofagi alveolari di topo, in terreno completo contenente RPMI-1640 con il 10% di siero fetale bovino, l'1% di penicillina/streptomicina, 11,9 mM di bicarbonato di sodio, 40 mg/mL di gentamicina e 50 μM di 2-mercaptoetanolo a 37°C con il 5% di CO2 in un incubatore umidificato.
- Trattare le cellule MH-S in coltura con o senza EtOH (0,8 mg/mL o 0,08%) per 72 ore, dove l'EtOH deve essere cambiato ogni 24 ore. Incubare le cellule MH-S trattate con EtOH a 37 °C con il 5% di CO2 in un incubatore umidificato separato contenente lo 0,08% di EtOH nell'acqua dell'incubatore.
2. Placcatura di cellule MH-S per la valutazione della glutammina come fonte di combustibile utilizzando un bioanalizzatore di flusso extracellulare
- Assicurarsi che le cellule MH-S di controllo (Con) e croniche trattate con EtOH non trattate vengano coltivate ad almeno il 50% di confluenza (la confluenza del 70%-90% è l'ideale) in fiasche di T-75 per passare in una piastra di microcoltura a flusso extracellulare a 96 pozzetti. Preparare una mappa su piastra per 5-6 repliche tecniche per replicato biologico delle condizioni sperimentali di Con ed EtOH e controlli dei terreni per ciascuna da confrontare con le iniezioni di BPTES (quattro gruppi in totale per n= 1 biologico).
- Sciacquare le celle con terreno o soluzione salina tamponata con fosfato.
- Aggiungere 6 mL di terreno contenente siero nel pallone.
- Raschiare le celle fino a quando non si staccano e il fondo della piastra è libero. La tripsina non è necessaria per il distacco delle cellule MH-S, ma può essere utile in altri tipi di cellule.
- Separare le cellule utilizzando una pipetta sierologica o una pipetta da 1 mL.
- Trasferire le cellule sospese in una provetta conica da 15 mL e centrifugarle a 200 x g per 6 minuti.
- Aspirare il surnatante.
- Aggiungere 1 mL di terreno e risospendere accuratamente le cellule.
- Trasferire 10 μl in una provetta da microcentrifuga e aggiungere 10 μl di blu di tripano. Mescola bene.
- Trasferire 10 μl della miscela cellula/blu di tripano su un lato di un emocitometro o di un contatore di cellule.
- Conta il numero di cellule usando un microscopio ottico o un contatore di cellule.
- Calcola la densità cellulare come numero medio di cellule vive per millilitro.
- Effettuare i calcoli per le diluizioni necessarie:
Numero di pozzetti necessari x 10000-15000 celle = numero totale di celle necessarie.
Numero di pozzetti necessari x 80 μL = volume totale di celle risospese necessarie. - Applicare 80 μL di cellule nei pozzetti necessari della piastra di microcoltura a flusso extracellulare a 96 pozzetti.
- Lasciare i pozzetti d'angolo completamente privi di celle o mezzi. Questi pozzetti saranno utilizzati per le misurazioni di fondo.
- Incubare le cellule in un incubatore umidificato a 37 °C con il 5% di CO2 durante la notte per consentire alle cellule di aderire ed equilibrarsi nella piastra di microcoltura a flusso extracellulare.
- Trattare le cellule MH-S nella piastra di microcoltura a flusso extracellulare a 96 pozzetti per 72 ore utilizzando la fase 1.
- Almeno 4 ore e fino a 24 ore prima di eseguire l'esperimento del bioanalizzatore di flusso extracellulare, idratare una cartuccia di flusso extracellulare pak a 96 pozzetti.
- Rimuovere la parte superiore del flux pak extracellulare e posizionare la parte sondata del flux pak a faccia in su sul banco. Applicare 200 μl di soluzione calibrante del flusso extracellulare in ciascun pozzetto nella parte inferiore della cartuccia del pacchetto di flusso extracellulare.
- Unire le sezioni e avvolgere la cartuccia extracellular flux pak in parafilm. Metterlo in un'incubatrice umidificata a 37 °C senza CO2 o in un bagno di perline a 37 °C.
- Accendere il computer contenente il progetto del saggio e aprire il software in esecuzione/analisi collegato allo strumento bioanalizzatore di flusso extracellulare per consentirne il riscaldamento almeno 4 ore prima di eseguire l'esperimento.
3. Utilizzo di un bioanalizzatore di flusso extracellulare per valutare la glutammina come fonte di combustibile per la respirazione mitocondriale nelle cellule MH-S
NOTA: La panoramica generale di questa procedura è mostrata nella Figura 1.
- Controllare le cellule MH-S in coltura trattate con Con ed EtOH al microscopio ottico e assicurarsi che le cellule siano sane e aderiscano ai pozzetti in un monostrato. Assicurarsi che le cellule siano confluenti almeno al 70% (la confluenza del 90% è l'ideale) per eseguire il test in modo affidabile.
- Preparare il terreno di base del flusso extracellulare con i seguenti integratori:
- Aliquotare 35 mL di terreno base di flusso extracellulare in una provetta da 50 mL.
- Aggiungere 350 μL di 100 mM di piruvato di sodio (concentrazione finale di 1 mM), 350 μL di D-glucosio (concentrazione finale di 10 mM) e 350 μl di GlutaMAX, che è più stabile rispetto alla L-glutammina (concentrazione finale di 2 mM).
NOTA: La L-glutammina fresca può essere utilizzata anche alla stessa concentrazione. - Riscaldare la soluzione a 37 °C e assicurarsi che il pH sia compreso tra 7,4 ± 0,05 a 37 °C.
- Aspirare delicatamente il terreno di coltura dalla piastra di microcoltura extracellulare. Lasciare il minor numero possibile di terreno senza aspirare le celle dal basso. Lavare una volta con un massimo di 50 μl di terreno base integrato con flusso extracellulare.
- Aggiungere 180 μl di terreno di base integrato con flusso extracellulare a ciascun pozzetto e incubare la piastra di microcoltura extracellulare in un incubatore umidificato non CO2 a 37 °C per 30 minuti - 1 ora per consentire l'equilibrio.
- Sciogliere i reagenti del test di ossidazione della glutammina:
- Nella provetta BPTES, aggiungere 700 μl di terreno base integrato con flusso extracellulare per ottenere una soluzione madre da 120 mM. Pipettare su e giù 10 volte per solubilizzare correttamente il composto.
ATTENZIONE: BPTES provoca irritazione alla pelle e agli occhi e può causare irritazione respiratoria. Indossare guanti protettivi, protezione per gli occhi e protezione per il viso durante la manipolazione. Smaltire il contenuto e i contenitori in un impianto di smaltimento rifiuti autorizzato. - Nella provetta di oligomicina, aggiungere 630 μL di terreno di base integrato con flusso extracellulare per ottenere una soluzione madre da 100 mM. Pipettare su e giù 10 volte per solubilizzare correttamente il composto.
- Nella provetta FCCP, aggiungere 720 μL di terreno base integrato con flusso extracellulare per ottenere una soluzione madre da 100 mM. Pipettare su e giù 10 volte per solubilizzare correttamente il composto.
ATTENZIONE: L'FCCP è dannoso se ingerito, provoca gravi ustioni cutanee e danni agli occhi, può causare una reazione allergica cutanea e può causare effetti dannosi di lunga durata per la vita acquatica. Indossare guanti, indumenti protettivi, protezioni per gli occhi e protezione per il viso durante la manipolazione. Smaltire il contenuto e i contenitori in un impianto di smaltimento rifiuti autorizzato. - Nella provetta R/A, aggiungere 540 μl di terreno base integrato con flusso extracellulare per ottenere una soluzione madre da 50 mM. Pipettare su e giù 10 volte per solubilizzare correttamente il composto.
ATTENZIONE: Il rotenone è fatale se ingerito o inalato, provoca irritazione della pelle, provoca grave irritazione agli occhi, può causare irritazione respiratoria ed è molto tossico per la vita acquatica con effetti di lunga durata. Indossare guanti protettivi, protezione per gli occhi, protezione per il viso e protezione delle vie respiratorie. Smaltire il contenuto e i contenitori in un impianto di smaltimento rifiuti autorizzato. L'antimicina A è fatale se ingerita ed è molto tossica per la vita acquatica, con effetti di lunga durata. Smaltire il contenuto e i contenitori in un impianto di smaltimento rifiuti autorizzato.
- Nella provetta BPTES, aggiungere 700 μl di terreno base integrato con flusso extracellulare per ottenere una soluzione madre da 120 mM. Pipettare su e giù 10 volte per solubilizzare correttamente il composto.
- Preparare le concentrazioni di lavoro dei reagenti per l'ossidazione del substrato e lo stress test mitocondriale:
- Per BPTES, miscelare 1.500 μl di terreno base integrato con flusso extracellulare con 500 μl di soluzione madre BPTES da 120 mM per ottenere una soluzione di lavoro BPTES da 30 μM.
- Per l'oligomicina, miscelare 2.520 μL di terreno di base integrato con flusso extracellulare con 480 μL di oligomicina 100 mM per ottenere una soluzione di lavoro di oligomicina 16 mM.
- Per FCCP, miscelare 2.865 μL di terreno di base integrato con flusso extracellulare con 135 μL di FCCP da 100 mM per ottenere una soluzione di lavoro FCCP da 4,5 mM.
- Per R/A, miscelare 2.700 μL di terreno di base integrato con flusso extracellulare con 300 μL di 50 mM R/A per ottenere una soluzione di lavoro di 5 mM R/A.
- Caricare le porte della parte superiore della cartuccia extracellular flux pak con quanto segue:
- Caricare i pozzetti di controllo del fondo e del terreno con 20 μL di terreno di base integrato con flusso extracellulare nella porta A, 22 μL di oligomicina nella porta B, 25 μL di FCCP nella porta C e 27 μL di R/A nella porta D.
- Caricare i pozzetti contenenti le celle con 20 μL di controllo del terreno o BPTES nella porta A (concentrazione finale di 3 μM per BPTES), 22 μL di oligomicina nella porta B (concentrazione finale di 2 μM per l'oligomicina), 25 μL di FCCP nella porta C (concentrazione finale di 0,5 μM per FCCP) e 27 μL di R/A (concentrazione finale di 0,5 μM per R/A) nella porta D.
- Eseguire l'esperimento del bioanalizzatore di flusso extracellulare utilizzando il programma software per la progettazione e l'analisi del saggio collegato allo strumento utilizzando la seguente strategia di temporizzazione e iniezione:
- Per l'iniezione con porta A per BPTES, impostare il numero di misurazioni su 6. Impostare il tempo di miscelazione su 3 minuti, con un tempo di attesa di 0 minuti e un tempo di misurazione di 3 minuti.
- Per l'iniezione con la porta B per l'oligomicina, impostare il numero di misurazioni su 3. Impostare il tempo di miscelazione su 3 minuti, con un tempo di attesa di 0 minuti e un tempo di misurazione di 3 minuti.
- Per l'iniezione con la porta C per FCCP, impostare il numero di misurazioni su 3. Impostare il tempo di miscelazione su 3 minuti, con un tempo di attesa di 6 minuti e un tempo di misurazione di 3 minuti.
- Per l'iniezione con porta D per R/A, impostare il numero di misurazioni su 3. Impostare il tempo di miscelazione su 3 minuti, con un tempo di attesa di 0 minuti e un tempo di misurazione di 3 minuti.
- Esamina tutti i pozzetti di sfondo impostati, controllo dei media e gruppi sperimentali. Salvare ed eseguire il test. Innanzitutto, caricare il pacchetto di flusso extracellulare con iniezioni A-D. La calibrazione avverrà fino a quando la piastra della cella non sarà pronta per il caricamento.
- Rimuovere la piastra cellulare immediatamente al termine del saggio. Salva i risultati per analizzarli in un secondo momento su un altro dispositivo.
- Controllare se le cellule sono ancora aderenti utilizzando un microscopio ottico. Lavare 1 volta con soluzione salina tamponata con fosfato e lisare le cellule con un tampone di lisi cellulare preferito. Conservare a -80 °C o dosare immediatamente per la concentrazione proteica.
4. Analisi dei risultati per valutare la glutammina come fonte di carburante per la respirazione mitocondriale nelle cellule MH-S
- Estrarre le proteine dalle cellule in ciascun pozzetto per normalizzare i dati del tasso di consumo di ossigeno (OCR) in proteine:
- Calcola la concentrazione (nanogrammi/microlitro [ng/μL]) di proteine per pozzetto.
- Calcolare la concentrazione media di proteine (ng/μL) per l'intera piastra di microcoltura a flusso extracellulare.
- Dividi la concentrazione proteica di ciascun pozzetto per la concentrazione proteica media della piastra per ottenere un fattore di normalizzazione.
- Applicare il fattore di normalizzazione al file di dati di interesse utilizzando il programma software per computer per la progettazione e l'analisi dei saggi.
- Assicurarsi che i valori OCR di tutti i pozzetti di sfondo siano vicini a 0.
- Deselezionare tutti i pozzetti delle celle in cui l'OCR è < 10 al basale. I dati non verranno eliminati, ma i pozzetti evidenziati verranno visualizzati nel file di dati esportato.
- Esporta i dati dal software per la progettazione e l'analisi dei saggi in un foglio di calcolo per computer.
- Apri il file nel programma di calcolo del computer e ordina tutti i dati diminuendo i valori di OCR. Eliminare i pozzetti di fondo, i pozzetti precedentemente deselezionati (e non sono stati eliminati), tutti i pozzetti con bassa vitalità cellulare, i pozzetti con bassa confluenza cellulare, i pozzetti senza completamento completo della strategia di iniezione, i pozzetti con letture imprecise della concentrazione proteica, i pozzetti con OCR basale < 10 e qualsiasi altro criterio predeterminato.
- Ordina tutti i dati rimanenti per misurazione, quindi per gruppo e quindi per OCR.
- La media delle repliche tecniche di ogni N biologico si replica indipendentemente dalla misurazione. Assicurarsi che ci siano almeno 18 valori diversi (3 basale, 3 dopo media/BPTES, 3 dopo oligomicina, 3 dopo FCCP e 6 dopo rotenone/antimicina A) per gruppo sperimentale per N biologico dopo aver calcolato la media delle repliche tecniche. Eseguire questa operazione separatamente per ogni N biologico in modo che la deviazione standard o l'errore standard della media possano essere calcolati in seguito per i dati analizzati.
- Copia tutti i valori medi in un nuovo foglio di calcolo, separati per gruppo sperimentale.
- Calcolare la media dei valori OCR in base alla strategia di iniezione in ciascun gruppo sperimentale.
- Calcola i parametri della bioenergetica mitocondriale in base al consumo di ossigeno:
- Calcola la respirazione basale:
- Calcolare la respirazione mitocondriale basale come segue:
Respirazione mitocondriale basale (pmol O2 consumato) = ([Misure OCR medie #1, 2, 3 - Misure OCR medie #16, 17, 18] x [Tempo #3 - Orario #1])
NOTA: La respirazione basale dovrebbe essere simile tra i gruppi di controllo del terreno e BPTES perché questo avviene prima dell'iniezione dell'inibitore. - Calcolare la respirazione mitocondriale basale non dipendente dalla glutammina come segue:
Respirazione mitocondriale basale non dipendente dalla glutammina (pmol O2 consumato) = ([Misure OCR medie #4, 5, 6, 7, 8, 9 - Misure OCR medie #16, 17, 18] x [Tempo #9 - Tempo #4])
NOTA: La respirazione mitocondriale basale non dipendente dalla glutammina dovrebbe essere inferiore alla respirazione mitocondriale basale, a meno che le cellule non siano fortemente dipendenti dalla glutammina. - Calcolare la respirazione mitocondriale basale dipendente dalla glutammina come segue:
Respirazione mitocondriale basale dipendente dalla glutammina (pmol O2 consumato) = ([Misure OCR AVG #1, 2, 3 - Misure OCR OCR #4, 5, 6, 7, 8, 9] x [Tempo #9 - Tempo #4])
NOTA: La respirazione mitocondriale basale totale non deve essere sottratta dalla respirazione mitocondriale basale e non deve dipendere dalla glutammina poiché queste vengono calcolate in momenti diversi.
- Calcolare la respirazione mitocondriale basale come segue:
- Calcolare la respirazione legata all'ATP come segue:
- Calcolare la respirazione mitocondriale totale legata all'ATP da tutti i combustibili come segue:
Respirazione totale mitocondriale legata all'ATP da tutti i combustibili (pmol O2 consumato) = ([Misurazioni OCR AVG #1, 2, 3 - Misurazioni OCR AVG #10, 11, 12] x [Ora #12 - Ora #10])
NOTA: L'OCR medio per le misurazioni #10, 11 e 12 dovrebbe essere simile tra i gruppi di controllo dei terreni e BPTES poiché l'oligomicina dovrebbe inibire fortemente l'ATP sintasi e l'inibizione di una via del carburante non dovrebbe modificare la respirazione totale legata all'ATP. - Calcolare la respirazione mitocondriale legata all'ATP non dipendente dalla glutammina come segue:
Respirazione mitocondriale legata all'ATP non dipendente dalla glutammina (pmol O2 consumato) = ([Misure OCR AVG #4, 5, 6, 7, 8, 9 - Misure OCR OCR #10, 11, 12] x [Tempo #12 - Tempo #10])
NOTA: La respirazione mitocondriale legata all'ATP non dipendente dalla glutammina dovrebbe essere inferiore alla respirazione mitocondriale legata all'ATP, a meno che le cellule non siano fortemente dipendenti dalla glutammina. - Calcolare la respirazione mitocondriale legata all'ATP dipendente dalla glutammina come segue:
Respirazione mitocondriale legata all'ATP dipendente dalla glutammina (pmol O2 consumato) = Respirazione mitocondriale totale legata all'ATP da tutti i combustibili - Respirazione mitocondriale legata all'ATP non dipendente dalla glutammina
- Calcolare la respirazione mitocondriale totale legata all'ATP da tutti i combustibili come segue:
- Calcola la respirazione massima come segue:
- Calcolare la respirazione mitocondriale massima totale come segue:
Respirazione mitocondriale massima totale (pmol O2 consumato) = ([Misurazioni OCR AVG #13, 14, 15 - Misurazioni OCR OCR AVG #16, 17, 18] x [Ora #15 - Ora #13]) - Calcolare la respirazione mitocondriale massima non dipendente dalla glutammina come segue:
Respirazione mitocondriale massima non dipendente dalla glutammina (pmol O2 consumato) = ([Misurazioni OCR medie #13, 14, 15 dei gruppi BPTES - Misurazioni OCR medie #16, 17, 18 dei gruppi BPTES] x [Tempo #15 - #Time 13]) - Calcolare la respirazione mitocondriale massima dipendente dalla glutammina come segue:
Respirazione mitocondriale massima dipendente dalla glutammina (pmol O2 consumato) = Respirazione mitocondriale massima totale da tutti i combustibili - Respirazione mitocondriale massima non dipendente dalla glutammina
NOTA: Questo calcolo può essere utilizzato per determinare la dipendenza cellulare per la capacità di riserva di glutammina rispetto ad altri combustibili. Maggiore è la respirazione mitocondriale massima, maggiore è la dipendenza dalla glutammina, che può essere espressa come gruppi BPTES - gruppi di controllo per mostrare una perdita nella respirazione mitocondriale massima o come percentuale della respirazione totale.
- Calcolare la respirazione mitocondriale massima totale come segue:
- Calcolare la capacità respiratoria di riserva come segue:
- Calcolare la capacità respiratoria totale di riserva come segue:
Capacità respiratoria totale di riserva (pmol O2 consumato) = ([Misurazioni OCR medie #13, 14, 15 - Misurazioni OCR OCR medie #1, 2, 3] x [Ora #15 - Ora #13]) - Calcolare la capacità respiratoria di riserva non dipendente dalla glutammina come segue:
Capacità respiratoria di riserva non dipendente dalla glutammina (pmol O2 consumato) = ([Misurazioni OCR medie #13, 14, 15 dei gruppi BPTES - Misurazioni OCR medie #1, 2, 3 dei gruppi BPTES] x [Tempo #15 - Tempo #13]) - Calcolare la capacità respiratoria di riserva dipendente dalla glutammina come segue:
Capacità respiratoria di riserva dipendente dalla glutammina (pmol O2 consumato) = Capacità respiratoria di riserva totale da tutti i combustibili - Capacità respiratoria di riserva non dipendente dalla glutammina
NOTA: Questo calcolo rappresenta la flessibilità delle cellule dipendenti dalla glutammina e se possono raggiungere una maggiore respirazione senza glutammina quando necessario.
- Calcolare la capacità respiratoria totale di riserva come segue:
- Calcola la respirazione basale:
- Sottrarre i controlli dei terreni per gruppi inibitori e normalizzare il pmol O2 consumato rispetto al gruppo di controllo, se lo si desidera.
- Crea grafici dei profili bioenergetici OCR (pmol O2/min), della respirazione basale (pmol O2), della respirazione legata all'ATP (pmol O2), della respirazione massimale (pmol O2) e della capacità respiratoria di riserva (pmol O2) dipendente dalla glutammina.
- Rappresentare i valori dei punti finali bioenergetici mitocondriali in grafici a barre o esprimerli come medie dei gruppi inibitori rispetto ai gruppi di controllo dei media. Se ogni N biologico viene calcolato separatamente, calcola la deviazione standard o l'errore standard della media per i dati analizzati in tutti gli N biologici.
5. Analisi statistica
- Eseguire tutte le analisi statistiche utilizzando un software di analisi dei dati appropriato.
- Per i punti lineari dei profili bioenergetici OCR, eseguire l'ANOVA a due vie seguita dalle analisi post hoc di Tukey per confrontare i dati di questi quattro gruppi sperimentali con due fattori (trattamento e strategia di iniezione): Con + terreno, Con + BPTES, EtOH + terreno ed EtOH + BPTES.
- Per i grafici a barre della respirazione basale, della respirazione legata all'ATP, della respirazione massimale e della capacità respiratoria di riserva dipendente dalla glutammina, condurre le analisi t-test di Student per confrontare i dati di due gruppi sperimentali, Con + BPTES ed EtOH + BPTES.
- Presentare i dati come medie ±errore standard della media (SEM). Considera p < 0,05 statisticamente significativo.
Risultati
L'esposizione cronica all'EtOH riduce la dipendenza dalla glutammina nelle cellule MH-S.
La glutamminolisi è una via fondamentale per la respirazione mitocondriale, supportando la glutammina come importante fonte di carburante per la bioenergetica cellulare. Per determinare se l'esposizione cronica all'EtOH altera la dipendenza delle cellule MH-S dalla glutammina come fonte di carburante per la respirazione mitocondriale, le cellule MH-S sono state trattate senza controllo EtOH (Con) o EtOH e l'OCR è stato misurato nel tempo in risposta a iniezioni seriali di reagenti associati alla respirazione mitocondriale. I profili bioenergetici OCR in risposta a iniezioni seriali di oligomicina (inibitore dell'ATP sintasi), FCCP (disaccoppiatore di protoni) e R/A (rispettivamente inibitori del complesso mitocondriale I e del complesso III) vengono utilizzati per calcolare altri parametri della bioenergetica mitocondriale, come la respirazione legata all'ATP, la respirazione massimale e la capacità respiratoria di riserva. Tutti i dati mostrati sono repliche biologiche aggiuntive di gruppi sperimentali di cellule MH-S Con + media, Con + BPTES e EtOH + media, EtOH + BPTES MH-S che sono stati pubblicati in Crotty et al.11. Come mostrato nella Figura 2A, l'oligomicina ha diminuito l'OCR a causa dell'inibizione del complesso V, l'FCCP ha aumentato l'OCR a causa del disaccoppiamento mitocondriale del potenziale di membrana e della generazione12 di ATP dipendente dai mitocondri e l'R/A ha spento efficacemente l'OCR dipendente dai mitocondri. Questi profili delle risposte bioenergetiche OCR alle iniezioni seriali sono coerenti con la guida per l'utente per la valutazione dello stress mitocondriale utilizzando un bioanalizzatore di flusso extracellulare13,14.
Dopo che l'OCR basale è stato misurato in cellule MH-S trattate con Con- ed EtOH, è stata caricata un'iniezione di controllo dei terreni o BPTES, un inibitore della glutaminasi 1. Le cellule Con + terreni rispetto alle cellule Con + BPTES MH-S e i terreni EtOH + rispetto alle cellule EtOH + BPTES MH-S non hanno dimostrato differenze nei profili bioenergetici OCR (Figura 2A). Le cellule MH-S EtOH + BPTES hanno mostrato una diminuzione della respirazione basale glutammina-dipendente rispetto a Con + BPTES (misura #4 rispetto alla misura #3 nella Figura 2A e nella Figura 2B), suggerendo che l'EtOH diminuisce l'ossidazione basale della glutammina delle cellule MH-S contribuendo alla respirazione mitocondriale. Le cellule MH-S EtOH + BPTES hanno mostrato una perdita di respirazione mitocondriale legata alla glutammina ATP rispetto a Con + BPTES (Figura 2C). Sebbene le cellule MH-S EtOH + BPTES abbiano dimostrato una perdita attenuata nella respirazione massima glutammina-dipendente rispetto a Con + BPTES (Figura 2D), le cellule MH-S EtOH + BPTES hanno mostrato una diminuzione della capacità respiratoria di riserva glutammina-dipendente rispetto a Con + BPTES (Figura 2E). Questi risultati suggeriscono che le cellule EtOH MH-S hanno la capacità di essere più dipendenti dalla glutammina per la respirazione, come quando stressate con FCCP, ma che potrebbero non essere in grado di farlo a causa di un aumento della domanda di glutammina compensato da una diminuzione della biodisponibilità della glutammina.
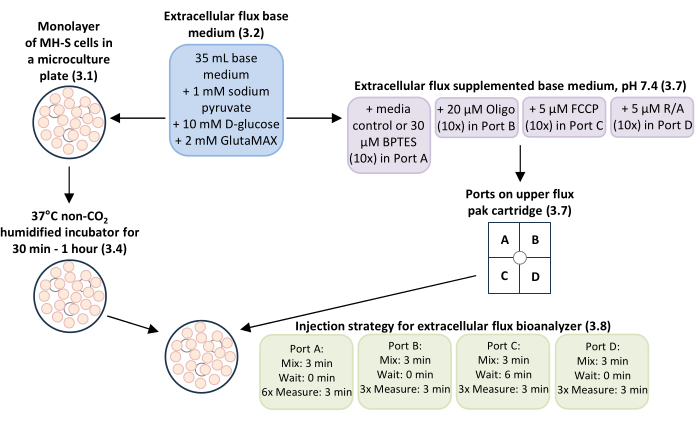
Figura 1: Panoramica generale del flusso di lavoro per la misurazione della respirazione mitocondriale glutammina-dipendente e della bioenergetica nelle cellule MH-S, una linea cellulare di macrofagi alveolari di topo. Monostrati di cellule MH-S coltivate in pozzetti su piastra per microcoltura a flusso extracellulare (fase 3.1) sono stati incubati con terreno base di flusso extracellulare con l'aggiunta di integratori (fase 3.2) a 37°C in un incubatore umidificato senza CO2 per 30 min-1 h (fase 3.4). Il terreno base del flusso extracellulare con l'aggiunta di integratori (fase 3.2) è stato utilizzato come mezzo di controllo e per diluire le concentrazioni di lavoro dell'inibitore dell'ossidazione della glutammina BPTES alla concentrazione finale di 3 μM, l'inibitore del complesso mitocondriale V oligomicina (Oligo) alla concentrazione finale di 0,5 μM, l'uncoupler mitocondriale carbonil cianuro-p-trifluorometossifenilidrazone (FCCP) alla concentrazione finale di 0,5 μM e gli inibitori del complesso mitocondriale I e del complesso III rotenone/antimicina A (R/A) a 0,5 μM concentrazione finale per le bocche di caricamento A-D nella cartuccia PAK a flusso extracellulare superiore (passaggio 3.7). La strategia di iniezione per i tempi di miscelazione, attesa e misurazione per l'esecuzione sperimentale utilizzando il bioanalizzatore di flusso extracellulare è stata: 3 minuti di tempo di miscelazione, 0 minuti di attesa e 6 misurazioni di 3 minuti di misurazione per la porta A (controllo dei media o BPTES); 3 minuti di tempo di miscelazione, 0 minuti di attesa e 3 misurazioni di 3 minuti di tempo di misura per la porta B (Oligo); 3 minuti di miscelazione, 6 minuti di attesa e 3 misurazioni di 3 minuti per la porta C (FCCP); e 3 minuti di miscelazione, 0 minuti di attesa e 3 misurazioni di 3 minuti di misurazione per la porta D (R/A). Clicca qui per visualizzare una versione più grande di questa figura.
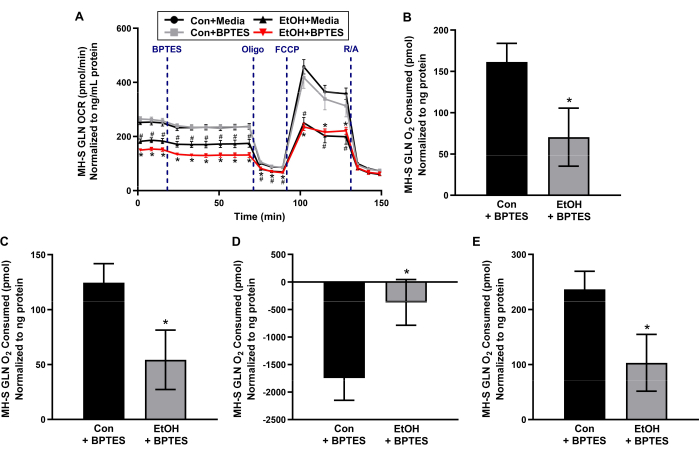
Figura 2: L'etanolo cronico (EtOH) riduce la respirazione mitocondriale glutammina-dipendente nelle cellule MH-S, una linea cellulare di macrofagi alveolari di topo. Le cellule MH-S non sono state trattate (Con) o trattate con EtOH (0,08%, 72 ore) e il tasso di consumo di ossigeno (OCR) nel tempo è stato misurato utilizzando un bioanalizzatore di flusso extracellulare prima e dopo l'iniezione con controllo dei terreni o un inibitore dell'ossidazione della glutammina (GLN) (3 μM di BPTES), seguito da iniezioni seriali di inibitore del complesso V mitocondriale (0,5 μM di oligomicina, Oligo), disaccoppiatore mitocondriale (0,5 μM di cianuro di carbonile-p-trifluorometossifenilidrazone, FCCP) e inibitori del complesso mitocondriale I e del complesso III (0,5 μM di rotenone/0,5 μM di antimicina A, R/A). (A) I profili bioenergetici OCR sono stati utilizzati per calcolare la respirazione basale glutammina-dipendente, (C) la respirazione legata all'ATP, (D) la respirazione massimale e (E) la capacità respiratoria di riserva. I punti lineari rappresentano le medie ± SEM (n = 4, #p < 0,05 rispetto a Con + media e *p < 0,05 rispetto a Con + BPTES, ANOVA unidirezionale con post hoc di Tukey). Le barre rappresentano le medie ± SEM (n = 4, *p < 0,05 rispetto a Con + BPTES, t-test di Student). I dati presentati sono repliche biologiche aggiuntive per i gruppi sperimentali di controllo dei terreni e trattati con BPTES di cellule MH-S di controllo non trattate e esposte croniche a EtOH, che sono pubblicate in Crotty et al.11. Clicca qui per visualizzare una versione più grande di questa figura.
Discussione
I dati qui presentati sono repliche biologiche aggiuntive per cellule MH-S non trattate ed esposte cronicamente a EtOH trattate con il controllo dei terreni o BPTES, che sono pubblicate in Crotty et al.11. Il protocollo descritto viene utilizzato per valutare la dipendenza delle cellule MH-S esposte a EtOH dalla glutammina come fonte di combustibile per la respirazione mitocondriale e la bioenergetica utilizzando un bioanalizzatore di flusso extracellulare. Il protocollo prevede diversi passaggi critici. In primo luogo, la formazione e la confluenza delle cellule MH-S sono importanti. Le cellule MH-S vengono inizialmente coltivate in pozzetti di microcoltura a flusso extracellulare a bassa confluenza e utilizzate quando le cellule si trovano in un monostrato alla confluenza finale del 90%. Poiché l'esposizione all'EtOH delle cellule MH-S è stata di 72 ore, la confluenza finale del 90% è stata raggiunta prima dell'esecuzione sperimentale sul bioanalizzatore di flusso extracellulare. Ciò è coerente con altri rapporti sulla formazione di monostrati cellulari e sulla confluenza del 90%-100% prima di eseguire questi esperimenti 15,16,17. In secondo luogo, la normalizzazione dei valori di respirazione mitocondriale in proteine in ciascun campione è fondamentale. Alcuni studi normalizzano la bioenergetica mitocondriale al numero di cellule 18,19,20. Tuttavia, la strategia di iniezione seriale in questo test ha lo scopo di stressare in sequenza i mitocondri. Nelle cellule che si basano principalmente sulla fosforilazione ossidativa, come le AM, ciò può portare alla morte cellulare durante l'esecuzione sperimentale sul bioanalizzatore di flusso extracellulare. Pertanto, il numero di cellule potrebbe non essere coerente dall'inizio dell'esperimento alla fine dell'esecuzione sperimentale e la normalizzazione dei valori di respirazione mitocondriale alle proteine è ottimale21,22. Qui viene suggerito un fattore di normalizzazione delle proteine che utilizza la proteina media in tutti i pozzetti al fine di riportare profili OCR più accurati e specifici per le cellule. In terzo luogo, l'analisi dei risultati attraverso le repliche biologiche è fondamentale. A volte, vengono presentate immagini rappresentative dei profili bioenergetici mitocondriali22,23 piuttosto che la respirazione mitocondriale media attraverso più repliche biologiche 10,11,24. Tuttavia, queste immagini rappresentative non forniscono un quadro completo delle variazioni tra gli esperimenti. Calcolando ogni replica biologica separatamente, l'errore standard della media può mostrare la variazione dei valori medi di respirazione mitocondriale in tutte le repliche biologiche ed essere utilizzato per calcolare le differenze statistiche tra i profili bioenergetici mitocondriali.
Prima di eseguire il test sul bioanalizzatore di flusso extracellulare, era necessario determinare la densità cellulare ottimale delle cellule MH-S per la coltura nella piastra di microcoltura del flusso extracellulare per ottenere un monostrato di cellule in ciascun pozzetto. Poiché era necessario stabilire anche le concentrazioni appropriate di Oligo e FCCP per le cellule MH-S, sono stati eseguiti test di diverse densità cellulari MH-S con diluizioni seriali di Oligo e FCCP21,25. La coltura iniziale di 10.000-15.000 cellule MH-S ha portato a un monostrato di cellule alla confluenza del 90% dopo 72 ore di esposizione con e senza EtOH10. Sulla base di questi esperimenti di ottimizzazione, 2 μM di Oligo e 0,5 μM di FCCP sono state determinate come le concentrazioni minime di questi reagenti che hanno causato alterazioni nella respirazione mitocondriale10.
Le misure in tempo reale della respirazione mitocondriale al basale e dopo il trattamento con BPTES, un inibitore della glutaminasi 1, che impedisce la conversione enzimatica della glutammina in glutammato, viene utilizzato per determinare la dipendenza dalla glutammina per la respirazione basale nelle cellule MH-S esposte a Con- ed EtOH. Una limitazione dei dati presentati in questo studio è che il ruolo degli acidi grassi a catena corta e media come fonti di carburante per la respirazione mitocondriale e la bioenergetica, oltre alla glutammina nelle cellule MH-S esposte a EtOH, non sono stati studiati. I risultati del precedente studio di Crotty et al.11 hanno suggerito che le cellule MH-S di EtOH hanno mostrato un passaggio dalla respirazione dipendente dal piruvato alla respirazione dipendente dalla glutammina senza una piena compensazione per la perdita di respirazione mitocondriale totale. Inoltre, eseguendo lo stesso esperimento con un'iniezione combinata di UK5099 (un inibitore dell'ossidazione del piruvato) ed etomoxir (un inibitore dell'ossidazione degli acidi grassi a catena lunga), è stato possibile determinare il contributo della glutammina in assenza sia di piruvato che di acidi grassi come fonti di combustibile per la respirazione mitocondriale nelle cellule MH-S esposte a EtOH.
La respirazione mitocondriale è stata misurata utilizzando un elettrodo di Clark per quasi settant'anni26, e ci sono anche saggi di fluorescenza basati su piastra per misurare la respirazione mitocondriale27. Tuttavia, questi metodi richiedono molto più tempo e/o non hanno la sensibilità delle misure che possono essere ottenute con un bioanalizzatore di flusso extracellulare. Il vantaggio dell'utilizzo di un bioanalizzatore di flusso extracellulare per valutare la glutammina come fonte di combustibile per la respirazione mitocondriale e la bioenergetica è che è possibile condurre contemporaneamente esperimenti con più repliche biologiche. Inoltre, il bioanalizzatore di flusso extracellulare consente la flessibilità di sperimentare su mitocondri isolati o cellule intatte. Per le cellule che non hanno un'alta concentrazione di mitocondri, come le cellule muscolari lisce dell'arteria polmonare, isolare un numero sufficiente di mitocondri da campioni limitati è difficile. Utilizzando il bioanalizzatore di flusso extracellulare, la respirazione mitocondriale può essere misurata nelle cellule muscolari lisce dell'arteria polmonare intatte28 o nelle AM primarie di topo 10,11. Il protocollo utilizzato in questo studio potrebbe essere utilizzato per valutare la glutammina come fonte di combustibile per la respirazione mitocondriale e la bioenergetica di altri campioni di dimensioni limitate, come le AM umane primarie. Abbiamo precedentemente dimostrato che lo stress ossidativo e gli squilibri di derivazione mitocondriale indotti da EtOH nelle cellule MH-S mostrano un profilo simile di disregolazione mitocondriale nelle AM primarie di topo e nelle AM umane 6,7,11,28,29,30. Nel complesso, gli studi supportano l'utilizzo di questo metodo per valutare la glutammina come fonte di combustibile per la respirazione mitocondriale e la bioenergetica nelle AM in condizioni patologiche caratterizzate da stress ossidativo di derivazione mitocondriale.
Dichiarazioni
Tutti gli autori non hanno conflitti di interesse finanziari rilevanti da segnalare.
Ringraziamenti
Riconosciamo i contributi di Sarah S. Chang, BS, per la coltura cellulare iniziale e la preparazione delle cellule MH-S per la sperimentazione. Questo lavoro è stato supportato da NIAAA R01-AA026086 a SMY (ORCID: 0000-0001-9309-0233), NIAAA F31-F31AA029938 a KMC e NIGMS T32-GM008602 a Randy Hall, Dipartimento di Farmacologia e Biologia Chimica, Emory University. Il contenuto di questo rapporto non rappresenta le opinioni del Dipartimento degli Affari dei Veterani o del Governo degli Stati Uniti.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Provetta conica da 15 mL | VWR International, Inc. | 21008-670 | Utilizzato per la preparazione di concentrazioni stock di reagenti correlati ai mitocondri. |
| 2-mercaptoetanolo | Sigma Aldrich Co. | M6250 | Utilizzato per la coltura di cellule MH-S. |
| Raschietto cellulare | Dot Scientific, Inc. | 70-1180 | Utilizzato per raschiare le celle MH-S dai palloni T-75. |
| Countess 3 FL Strumento: contatore di celle | Fisher Scientific Company | AMQAF2000 | Utilizzato per contare il numero di cellule MH-S da placcare per esperimenti. |
| D-glucosio | Sigma Aldrich Co. | G8270 | Utilizzato per il mezzo base del flusso extracellulare. |
| Ethanol | Fisher Scientific Company | 4355720 | Trattamento sperimentale per cellule MH-S. |
| Siero fetale bovino | Sciencell Research Laboratories | 500 | Utilizzato per la coltura di cellule MH-S. |
| Gentamicina | Sigma Aldrich Co. | G1397 | Utilizzato per la coltura di cellule MH-S. |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | Utilizzato per il mezzo base del flusso extracellulare. |
| GraphPad Prism 10.2.3 | GraphPad Software | N/A | Software per l'analisi statistica. Scaricabile dopo l'acquisto presso https://www.graphpad.com/features. |
| Cellule MH-S | Collezione di colture di tipo americano | CRL-2019 | Linea cellulare di macrofagi alveolari di topo. |
| Provetta per microcentrifuga | Stati Uniti Scientifici, Inc. | 4036-3212 | Utilizzato per la preparazione di concentrazioni di lavoro di reagenti correlati ai mitocondri. |
| Microsoft 365 Excel: programma per fogli di calcolo Microsoft | N/A | Software per l'organizzazione dei dati e i calcoli bioenergetici mitocondriali. Scaricabile dopo l'acquisto su https://www.microsoft.com/en-us/microsoft-365/excel. | |
| Penicillina/streptomicina | Fisher Scientific Company | 15140122 | Utilizzato per la coltura di cellule MH-S. |
| Soluzione salina tamponata con fosfato | VWR International, Inc. | 45000-446 | Utilizzato per il lavaggio delle celle MH-S. |
| RPMI-1640 | VWR Internazionale, Inc. | 45000-396 | Utilizzato per la coltura di cellule MH-S. |
| Seahorse Wave Pro Software: programma software per la progettazione e l'analisi di saggi | Agilent Technologies, Inc. | N/A | Il computer è collegato allo strumento Seahorse XF Pro Analyzer. Scaricabile da https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523. |
| Seahorse XF Base Medium: terreno base a flusso extracellulare, pH 7.4 | Agilent Technologies, Inc. | 103334-100 | Utilizzato per la preparazione di concentrazioni di riserva e di lavoro di reagenti correlati ai mitocondri e per la coltura di cellule MH-S prima delle prove sperimentali. |
| Kit per test da stress di ossidazione della glutammina Seahorse XF | Agilent Technologies, Inc. | 103674-100 | Contiene BPTES di serie, oligomicina, FCCP e rotenone/antimicina A. |
| Seahorse XF Pro Analyzer: bioanalizzatore di flusso extracellulare | Agilent Technologies, Inc. | N/A | Bioanalizzatore di flusso extracellulare. |
| Seahorse XFe96 FluxPak: cartucce per flux pak extracellulari a 96 pozzetti, piastre per microcoltura a flussante extracellulare a 96 pozzetti e soluzione calibrante | Agilent Technologies, Inc. | 102416-100 | Utilizzato per preparare le cellule MH-S per i saggi utilizzando un bioanalizzatore di flusso extracellulare. |
| Pipetta sierologica | Santa Cruz Biotecnologia, Inc. | sc-550678 | Utilizzato per la rimozione di terreni dalle celle MH-S. |
| Bicarbonato di sodio | Sigma Aldrich Co. | S6014 | Utilizzato per la coltura di cellule MH-S. |
| Piruvato di sodio | Sigma Aldrich Co. | P4562 | Utilizzato per il mezzo base del flusso extracellulare. |
| Palloni T-75 | Santa Cruz Biotechnology, Inc. | sc-200263 | Utilizzato per la coltura di cellule MH-S. |
Riferimenti
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
Ristampe e permessi
