Questo articolo presenta un modello di co-coltura di cellule di teca bovina e granulosa. Questo metodo ha il potenziale per fungere da base affidabile per analisi incentrate sullo studio della comunicazione paracrina e del trasporto del substrato tra le cellule somatiche all'interno del follicolo.
Articolo metodologico
Un sistema di co-coltura modificato per la comprensione delle interazioni tra granulosa e cellule dell'arca nell'ovaio bovino
In questo articolo
Sommario
Abstract
Una co-coltura affidabile di cellule della granulosa (GC) e della teca (TC) ha il potenziale per facilitare una comprensione più completa delle interazioni, delle vie di segnalazione e dello scambio di substrato tra i due compartimenti cellulari nel follicolo ovarico bovino. Utilizzando inserti per colture cellulari disponibili in commercio, è stato stabilito un modello di co-coltura riproducibile di GC e TC bovini. È stato osservato che le cellule primarie della teca e della granulosa richiedono molto più tempo per legarsi alla membrana dell'inserto rispetto alle linee cellulari. Inizialmente, i TC sono stati seminati sulla membrana dell'inserto invertita, con un tubo troncato che fungeva da contenitore di inoculazione per evitare perdite di fluido. Dopo un periodo di incubazione di 72 ore, l'inserto è stato capovolto, consentendo ai GC di essere coltivati sul lato opposto della membrana. Questa co-coltura è stata poi sottoposta ad altri 6 giorni di incubazione a 37 °C e 5% di CO2, con scambio di terreno a giorni alterni. L'espressione dei geni marcatori indicava pattern specifici del tipo cellulare, con CYP17A1 altamente abbondanti nei TC e non espressi nei GC. Al contrario, CYP19A1 mostrato alti livelli nei GC e solo bassi livelli nei TC. L'analisi ormonale ha supportato la presenza di un sistema fisiologico di co-coltura, come evidenziato dalla sintesi dell'estradiolo. Questo modello di co-coltura modificato supporta studi riproducibili sulla segnalazione paracrina e sul trasporto del substrato tra le cellule somatiche del follicolo.
Introduzione
Durante la follicologenesi, un aumento dell'ormone luteinizzante (LH) innesca una cascata di cambiamenti fisiologici nell'ovaio, portando infine al rilascio di un ovocita maturo durante l'ovulazione 1,2. Questo processo è strettamente regolato dalle cellule somatiche follicolari, che forniscono un supporto essenziale per la maturazione degli ovociti e garantiscono una corretta funzione ovulatoria3. Il follicolo è composto da due tipi di cellule somatiche steroidogeniche, uno strato interno di cellule della granulosa (GC) e uno strato esterno di cellule della teca (TC). Tra questi, i GC subiscono i cambiamenti morfologici e funzionali più pronunciati a seguito del picco di LH, evidenziando il loro ruolo critico nell'orchestrare le fasi finali dello sviluppo follicolare4. Di conseguenza, i GC sono di notevole interesse nell'analisi dei fattori che potrebbero influenzare la follicologenesi, l'ovulazione e la luteinizzazione.
Un modello di coltura cellulare di GC bovini che imitano uno stato attivo dell'estradiolo è stato precedentemente stabilito 5,6,7,8,9,10,11. Questo modello di coltura senza siero consente un'analisi affidabile della fisiologia dei GC e delle possibili analisi degli effettori nelle vie di segnalazione, nella regolazione genica e nella sintesi ormonale 12,13,14. Tuttavia, la struttura del follicolo è molto più complessa, come evidenziato dall'ipotesi15 della 2-cellula-2-gonadotropina. Ciò sottolinea la dipendenza e la natura interconnessa dei tipi di cellule nel contesto della sintesi steroidea compartimentata tra i due strati.
Numerosi studi hanno descritto modelli di coltura TC simili ai sistemi di monocoltura GC precedentemente stabiliti 16,17,18. Tuttavia, è stato riportato un sistema di co-coltura di cellule di teca suina e granulosa, in cui entrambe le popolazioni cellulari vengono coltivate in un unico piatto con un rapporto di 4:1 di GC e TC 19,20,21. In questo modello, si potrebbe dimostrare che esiste un sistema funzionale e un'interazione tra la granulosa e le cellule della teca, rivelando una maggiore quantità di estradiolo nel sistema di co-coltura rispetto alla mono-coltura. Tuttavia, va notato che questo modello non è in grado di analizzare adeguatamente l'interazione e lo scambio di substrato tra cellule della granulosa e della teca, poiché entrambi i tipi di cellule potrebbero essere influenzati in modo diverso. Pertanto, l'analisi dei livelli molecolari di GC e TC indipendentemente l'uno dall'altro non è quasi possibile senza un'elaborata procedura di smistamento, che a sua volta potrebbe influenzare la fisiologia cellulare. Inoltre, è importante considerare che questo modello potrebbe non replicare accuratamente la situazione precedente al picco di LH, quando GC e TC sono separati da una membrana basale3. Nel bovino, è stato proposto un sistema di coltura cellulare basato su membrana, in cui entrambi i tipi di cellule sono coltivati su entrambi i lati di una membrana di collagene, riflettendo così più precisamente la situazione in vivo 22,23,24,25,26.
Adattando il concetto iniziale di un sistema basato su membrana, questo metodo mirava a stabilire un modello di co-coltura per GC e TC bovini con inserti di coltura cellulare per consentire futuri studi sulla segnalazione paracrina tra i due compartimenti cellulari. Il metodo presentato utilizza inserti per colture cellulari sospese disponibili in commercio invece di un sistema a membrana personalizzato, offrendo vantaggi come una maggiore riproducibilità, una qualità standardizzata e una migliore stabilità del prodotto. Questo approccio garantisce la coerenza tra gli esperimenti, rendendolo uno strumento prezioso per i ricercatori che studiano le interazioni tra cellule follicolari. La procedura di coltura prevede una semina iniziale di 1,7-1,8 x 10⁵ cellule di teca sul lato inferiore dell'inserto, seguita da circa 1,0 x 10⁵ cellule della granulosa sulla superficie superiore dopo l'inversione e una pre-incubazione di 72 ore. Le colture vengono mantenute in un terreno definito in condizioni standard (37 °C, 5% di CO2) con scambi di terreno a giorni alterni. Per consentire lo scambio di paracrini tra i compartimenti, sono stati utilizzati inserti per colture cellulari da 0,4 μm in poliestere, come il polietilene tereftalato (PET) (disponibili in commercio). Membrane di questa dimensione dei pori consentono la diffusione di macromolecole solubili, come ormoni, fattori di crescita e proteine, impedendo al contempo la migrazione cellulare27,28.
Consentendo la separazione spaziale mantenendo la comunicazione paracrina, questo sistema di co-coltura fornisce un ambiente fisiologicamente rilevante per lo studio delle interazioni tra cellule granulosa-teca, le vie di segnalazione e lo scambio di substrati. Il modello è particolarmente adatto per studi che richiedono condizioni controllate, come la regolazione ormonale, l'analisi dell'espressione genica o i test farmacologici. I ricercatori interessati alla dinamica follicolare, alla fisiologia riproduttiva o ai disturbi ovarici possono trovare questo metodo applicabile ai loro studi. Inoltre, l'uso di inserti standardizzati consente un facile adattamento alle diverse esigenze sperimentali, comprese le modifiche alla durata della coltura, ai tipi di cellule o alle condizioni di trattamento.
Protocollo
Le ovaie bovine sono state ottenute da un macello commerciale locale. In questa configurazione sperimentale, la preparazione delle ovaie viene eseguita entro 2 ore dalla ricezione. La raccolta dei sottoprodotti dei macelli non richiede un'approvazione etica secondo la legge tedesca.
NOTA: L'isolamento e la crioconservazione dei GC bovini sono già stati descritti e mostrati in un precedente rapporto sul metodo6 e possono essere eseguiti di conseguenza.
1. Preparazione dei reagenti e preparazione per la dissezione del follicolo ovarico
- Preparare 1x PBS (pH 7,4) integrato con 100 UI di penicillina, 0,1 mg/mL di streptomicina e 0,5 μg/mL di amfotericina per il trasporto delle ovaie. La soluzione può essere conservata a 4 °C per un massimo di 4 settimane.
- Preparare la soluzione digestiva contenente 10 tamponi salini di Hanks integrati con 25 mM di HEPES, 100 UI di penicillina, 0,1 mg/mL di streptomicina e 0,5 μg/mL di amfotericina. La soluzione di digestione può essere conservata a 4 °C per 2-3 settimane.
- Riempire 1 mL di soluzione digestiva in provette da 1,5 mL per ogni follicolo sezionato pianificato e preriscaldare la soluzione a 37 °C.
- Aggiungere 10 μl di collagenasi NB8 per ottenere una concentrazione dello 0,1% della soluzione digestiva poco prima della preparazione.
- Preparare i seguenti piatti per le procedure di preparazione, isolamento e lavaggio.
- Piatti di vetro con un diametro minimo di 3 cm per posizionare le ovaie per la dissezione.
- Una piastra a 6 pozzetti con 1 mL di PBS 1x (integrata con antibiotici) per il lavaggio.
- Una capsula a 12 pozzetti con circa 10 μL di soluzione digestiva.
- Per la crioconservazione, preparare una soluzione di congelamento composta per l'80% da siero fetale di vitello (FCS) e per il 20% da DMSO.
NOTA: La concentrazione finale di DMSO per la crioconservazione sarà del 10%.
2. Dissezione del follicolo con successiva digestione delle cellule della teca bovina
- Eseguire le procedure di digestione cellulare e il lavoro di coltura cellulare sotto un banco a flusso laminare.
- Lavare le ovaie 2-3 volte in 1 PBS (integrato con antibiotici, vedere passaggio 1.1) per rimuovere il sangue e altri residui dalla superficie. Metti le ovaie in un bicchiere, riempilo con 1x PBS in modo che le ovaie siano coperte e poi scarta la soluzione. Ripeti questo passaggio 3-4 volte fino a quando le ovaie non sono pulite.
- Mettere un'ovaia in un piatto di vetro e selezionare i follicoli di 5-11 mm, misurati con un righello, per la dissezione.
- Aspirare il liquido follicolare con una siringa da 3 ml e un ago da 18 G perforando un follicolo selezionato. Scartare il liquido follicolare.
- Tagliare il follicolo con le forbici, iniziando dal punto in cui è stato inserito l'ago durante l'aspirazione. Usa un binocolo per un taglio preciso.
- Usa una pinzetta sul bordo tagliente del follicolo per afferrare lo strato più interno, la teca interna.
- Prova a staccare la teca interna dal lato interno della parete del follicolo aperto.
NOTA: A seconda dell'età o dello stadio del follicolo, lo strato di cellule della teca può essere rimosso più facilmente, risultando in uno strato di teca intatto.
- Posizionare lo strato di cellule teca in un piatto riempito con 1x PBS (integrato con antibiotici, vedere il passaggio 1.1.) per rimuovere le cellule della granulosa rimanenti.
- Raschiare delicatamente le cellule della granulosa dal lato interno della membrana con un bisturi. Le cellule dovrebbero staccarsi facilmente in grandi gruppi.
- Metti lo strato di cellule della teca in un nuovo piatto riempito con 1x PBS per lavarlo.
- Sciacquare accuratamente la membrana facendo roteare il PBS fresco 1x per rimuovere eventuali cellule sciolte.
NOTA: Dal passaggio successivo in poi, lavorare sotto la scatola del flusso laminare.
- Trasferire la teca interna nella soluzione di digestione preparata della piastra a 12 pozzetti (vedere i passaggi 1.2 e 1.3.3) e tagliarla in piccoli pezzi, presumibilmente 1-3 mm, utilizzando un bisturi.
NOTA: Si consiglia di digerire le cellule della teca da diversi follicoli in modo indipendente per prevenire l'intasamento di tessuti di diversa origine. - Trasferire i frammenti di teca in una provetta di reazione preparata da 1,5 mL (vedere i passaggi 1.2.1 e 1.2.2). Incubare la teca in un incubatore termos-agitatore a 800 giri/min a 37 °C per 45-50 minuti.
- Dopo aver agitato per 30 minuti, iniziare a far vorticare i tubi di reazione per 3-5 s e rimetterli nell'incubatore di agitazione.
- Ripetere questo passaggio 3-4 volte nel tempo di incubazione rimanente.
- Dopo l'incubazione, risospendere le cellule digerite con una pipetta.
- Eliminare il tessuto non digerito mediante filtrazione con il colino cellulare da 100 μm posizionato su una provetta da 50 mL e procedere immediatamente con il conteggio e la crioconservazione delle cellule per rimuovere il terreno di digestione.
3. Conteggio e crioconservazione dei TC
- Per contare il numero di cellule vitali, preparare una provetta con 1,5 μl di una soluzione di blu di tripano allo 0,25%. Le cellule viventi rimarranno non colorate, mentre le cellule morte appariranno blu a causa dell'accesso del blu di tripano attraverso le barriere cellulari rotte.
- Aggiungere 15 μl della sospensione cellulare digerita alla soluzione di tripano blu e mescolare delicatamente.
- Porre 10 μl di miscela in entrambe le camere di un emocitometro. Conta il numero di celle viventi (= incolori) in un grande quadrato per camera.
- Determinare il numero di cellule viventi con la media di entrambi i quadrati della camera seguendo le linee guida standard. Si noti che la proporzione di cellule viventi può differire tra le ovaie.
- Congelare le parti non digerite della sospensione di cellule di teca (vedere la fase 2.9) per un confronto previsto come controllo non coltivato e per eseguire una valutazione della potenziale contaminazione crociata con GC (come mostrato nella Figura 2).
- Trasferire il tessuto non digerito di ciascuna teca interna sezionata che rimane nel filtro cellulare da 100 μm (vedere il passaggio 2.10) in una provetta marcata.
- Congelare la provetta in azoto liquido prima di riporla a -80 °C.
- Eseguire la crioconservazione delle cellule della teca isolate al fine di facilitare una migliore pianificazione delle colture cellulari, con particolare riguardo al numero di cellule richieste.
- Centrifugare la sospensione cellulare digerita a 500 x g per 5 minuti a temperatura ambiente (in media 20 °C). Scartare il surnatante.
- Sciogliere con cura il pellet cellulare in 1 mL di FCS al 100%. Aggiungere 1 mL di terreno di congelamento (vedere il passaggio 1.4) alla soluzione cellulare. La concentrazione finale di DMSO per la crioconservazione è del 10%. Trasferire la miscela nelle fiale criogeniche da 2 ml specificate.
- Posizionare le fiale in un dispositivo di raffreddamento per una diminuzione controllata della temperatura. In questa configurazione è stato utilizzato uno specifico contenitore di congelamento, che garantisce una velocità di congelamento di -1 °C/min se posizionato per almeno 4 ore a -80 °C. Successivamente, le fiale possono essere conservate in sistemi di stoccaggio di azoto liquido.
4. Preparativi per il lavoro di coltura cellulare
- Tagliare il coperchio da una provetta di reazione da 1,5 mL. Quindi, tagliare il tubo di reazione a circa 1 cm dall'apertura con l'aiuto di un bisturi (preferibilmente riscaldato) o di un apposito tagliatubo. Successivamente, sterilizzare in autoclave i tubi tagliati e i coperchi. I coperchi potrebbero essere necessari per le successive procedure della coltura cellulare (vedere il passaggio 5.5).
NOTA: Assicurarsi che le provette da 1,5 mL aderiscano perfettamente all'inserto scelto. - Assicurarsi di rivestire gli inserti con lo 0,02% di collagene R per GC e TC nella coltura.
NOTA: Eseguire la procedura di rivestimento sotto una cappa a flusso laminare sterile.- Utilizzare acqua purificata (adatta per colture cellulari) per preparare una soluzione di collagene R allo 0,02%. Preparare 80 μl di questa soluzione per ogni inserto di coltura cellulare richiesto.
- Posizionare l'inserto capovolto in un coperchio di una piastra a 24 pozzetti. Aggiungere delicatamente 40 μL di soluzione di collagene R alla membrana dell'inserto, assicurandosi che rimanga in posizione. Lasciare asciugare la soluzione di collagene R per 4-5 ore sotto la cappa a flusso laminare.
- Capovolgere l'inserto e appenderlo nei pozzetti della piastra a 24 pozzetti per rivestire nuovamente il secondo lato con 40 μL di soluzione di collagene R. Lasciare asciugare nuovamente la soluzione per 4-5 ore.
- Irradiare gli inserti con luce UV per 10-15 minuti per ridurre la contaminazione.
- Gli inserti devono essere conservati all'interno della piastra a 24 pozzetti (preferibilmente nella sacca di consegna sterile) e in frigorifero a 4 °C e possono essere utilizzati fino a 4 settimane.
- Preparare il supporto 8,10 come segue:
NOTA: Eseguire la procedura di preparazione del terreno sotto una cappa a flusso laminare sterile.- Integrare il α-Minimial Essential Medium (α-MEM) con 2 mM di L-glutammina, 0,084% di bicarbonato di sodio, 0,1% di BSA, 20 mM di HEPES, 4 ng/mL di selenito di sodio, 5 μg/mL di transferrina, 10 ng/mL di insulina e 1 mM di aminoacidi non essenziali.
NOTA: Per garantire la coerenza, si consiglia di preparare in anticipo una quantità sufficiente di terreno per l'intero esperimento. Il terreno preparato può essere conservato a 4 °C. Per la configurazione descritta, utilizzare 750 μl per pozzetto di coltura cellulare. - Inoltre, aggiungere 100 UI di penicillina, 0,1 mg/mL di streptomicina e 0,5 μg/mL di amfotericina al terreno preparato.
- Preriscaldare il fluido a 37 °C a bagnomaria.
NOTA: Dopo il preriscaldamento del terreno, gli antibiotici sono stabili per circa 48 ore. Pertanto, aliquotare solo la quantità desiderata di terreno per il riscaldamento. - Inoltre, integrare il α-MEM con 20 ng/mL di ormone follicolo-stimolante (FSH), 50 ng/mL di R3 IGF-1 e 2 μM di androstenedione per un ambiente cellulare fisiologico 7,8,10,11.
NOTA: Aggiungere questi componenti poco prima dell'inizio della coltura o dello scambio di contenuti multimediali. Al fine di prevenire una compromissione dell'attività, è imperativo evitare ripetuti cicli di congelamento-scongelamento delle soluzioni madre FSH e IGF-1.
- Integrare il α-Minimial Essential Medium (α-MEM) con 2 mM di L-glutammina, 0,084% di bicarbonato di sodio, 0,1% di BSA, 20 mM di HEPES, 4 ng/mL di selenito di sodio, 5 μg/mL di transferrina, 10 ng/mL di insulina e 1 mM di aminoacidi non essenziali.
5. Co-cultura di TC e GC
- Preparare la camera di inoculazione per la coltura di cellule di teca (Figura 1A).
- Posizionare l'inserto rivestito capovolto in una piastra più grande (ad es. piastra a 12 pozzetti).
- Posizionare il tubo tagliato e autoclavato su un inserto invertito (vedere il passaggio 4.1). Assicurarsi che il tubo sia saldamente posizionato sull'inserto per evitare perdite di fluidi.
- Scongelare rapidamente le cellule di teca crioconservate in un bagno d'acqua a 37 °C per 3-5 minuti e trasferire la sospensione cellulare subito dopo lo scongelamento nel terreno preriscaldato.
- Centrifugare la sospensione di cellule di teca a 500 x g per 3 minuti a temperatura ambiente (in media 20 °C) ed eliminare il surnatante. Aggiungere il α-MEM integrato e risospendere accuratamente le cellule.
- Seminare 1,7-1,8 x 10⁵ cellule per inserto nella camera di inoculazione in un volume finale di 200 μL di terreno. Includi almeno tre repliche tecniche per condizione.
- Per chiudere la piastra di coltura cellulare con un coperchio, potrebbe essere necessario aumentare la distanza tra la piastra e il coperchio quando si utilizza la camera di inoculazione.
- Utilizzare i tappi tagliati e sterilizzati in autoclave delle provette di reazione da 1,5 mL (vedere il passaggio 4.1) e posizionarli in ciascun angolo delle piastre di coltura cellulare. I tappi fungeranno da supporti per sollevare leggermente il coperchio della piastra, fornendo spazio sufficiente per la camera di inoculazione pur coprendo adeguatamente la piastra di coltura.
- Chiudere accuratamente la piastra a pozzetti, assicurandosi che rimanga stabile e non tocchi la membrana o la camera.
- Trasferire delicatamente la piastra in un incubatore per colture cellulari umidificato.
- Incubare le cellule della teca per 3 giorni a 37 °C con il 5% di CO2 per consentire l'adesione delle cellule sulla membrana.
- Girare l'inserto dopo 3 giorni di coltura per prepararsi alla semina con GC (Figura 1B).
- Preparare una piastra a 24 pozzetti e riempirla con 500 μl di terreno in ciascuno dei pozzetti desiderati.
- Con una pipetta, rimuovere tutto il terreno dalla camera di inoculazione. Rimuovere con cautela la camera di inoculazione dall'inserto con una pinzetta.
- Posizionare l'inserto con le cellule di teca attaccate nella piastra a 24 pozzetti preparata, assicurandosi che i TC siano rivolti verso il basso (vedere la Figura 1B per maggiori dettagli).
- Per seminare le cellule della granulosa dalla crioconservazione, eseguire i passaggi 5.2 e 5.3.
- Seminare circa 1,0 x 10⁵ cellule per inserto in un volume finale di 250 μl di terreno che viene posizionato all'interno dell'inserto.
- Successivamente, incubare la co-coltura a 37 °C con il 5% di CO2 per altri sei giorni.
- Eseguire una sostituzione del terreno ogni 48 ore dopo la semina GC, quando vengono sostituiti solo due terzi del terreno di coltura. Questo dovrebbe ridurre lo stress della procedura e aiutare ad adattarsi ai nuovi mezzi aggiunti.
6. Analisi successiva di cellule di teca e granulosa in coltura
- Eseguire la valutazione morfologica delle cellule della teca e della granulosa in tutta la coltura cellulare con un microscopio a contrasto di fase per monitorare l'adesione e la diffusione di entrambi i tipi di cellule (vedere Figura 3).
- Per l'analisi degli ormoni steroidei, raccogliere il terreno e congelare a -20 °C. Utilizzare un metodo appropriato per analizzare le concentrazioni degli ormoni steroidei desiderati (ad esempio, in questo flusso di lavoro, l'estradiolo è stato analizzato tramite RIA 5,29).
NOTA: Un'analisi degli ormoni steroidei aiuta a valutare lo stato fisiologico della coltura7. - Per analizzare l'espressione genica, isolare innanzitutto l'RNA con una tecnica appropriata (es. procedure in kit).
NOTA: Tenere presente che durante la procedura di isolamento, entrambi i tipi di cellule vengono preparati indipendentemente l'uno dall'altro.- Dissociare le cellule da entrambi i lati della membrana con un reagente appropriato (ad es. tripsina o accutasi). Posizionare il mezzo di dissociazione sia nell'inserto (ad esempio, 200 μL di accutasio) che nei pozzetti della piastra (ad esempio, 500 μL di accutasio) in modo che la membrana sia completamente circondata dal mezzo di dissociazione.
- Raccogliere le cellule della granulosa dall'inserto, mentre le cellule della teca staccate possono essere raccolte dal pozzetto. Trasferire ogni tipo di cellula in una provetta da 1,5 mL.
- Centrifugare le cellule a 500 x g per 3 minuti e scartare il surnatante.
- Lisare le cellule, eseguire l'isolamento dell'RNA e successivamente misurare la concentrazione di RNA.
NOTA: Il protocollo può essere interrotto dopo la lisi delle cellule per la maggior parte delle procedure di isolamento, in modo che i campioni possano essere conservati a -20 °C per un breve periodo. Per una conservazione più lunga, le celle lisate possono essere conservate a -80 °C. - Successivamente, sintetizzare il cDNA per misurare l'abbondanza di trascritti di interesse mediante qPCR. La sintesi del cDNA utilizza 100 ng di RNA con esamero casuale e primer oligo-dT. Per la qPCR, sono stati utilizzati primer gene-specifici come precedentemente descritto 5,30. In sintesi, le condizioni del ciclo erano le seguenti: pre-incubazione a 95 °C per 5 minuti, denaturazione di 40 cicli a 95 °C per 20 secondi, ricottura a 60 °C per 15 secondi, estensione a 72 °C per 15 secondi e acquisizione fluorescente a punto singolo per 10 secondi. È stato co-amplificato uno standard esterno di cinque diverse concentrazioni (5x10-12- 5x10-16 g di DNA/reazione). Per la normalizzazione dell'abbondanza dei trascritti, è stata calcolata la media geometrica di RPLP0 e TBP.
- Per eliminare la potenziale contaminazione crociata, valutare la purezza delle preparazioni cellulari di teca e granulosa analizzando l'espressione genica dei marcatori specifici per le cellule CYP17A1 e CYP19A1 dalle preparazioni cellulari appena isolate di TC e GC (Figura 2).
NOTA: Una valutazione statistica dovrebbe includere un minimo di tre repliche di diverse colture cellulari. In questa configurazione sperimentale, è stato eseguito un t-test o l'ANOVA unidirezionale dopo aver verificato la normalità e la varianza.
Risultati
Sebbene TC e GC siano stati isolati utilizzando tecniche di separazione meccanica consolidate basate sulla compartimentazione follicolare, l'espressione di geni specifici per tipo di cellula CYP17A1 e CYP19A1 è stata valutata per eliminare il rischio di contaminazione incrociata. CYP17A1 era espresso esclusivamente nei TC appena isolati, mentre CYP19A1 era espresso prevalentemente nei GC appena isolati (Figura 2).
Il sistema di co-coltura consente la compartimentazione di cellule di teca bovina e granulosa sui lati opposti di un inserto di membrana, imitando così l'organizzazione spaziale in vivo. Dopo tre giorni di coltura, i TC hanno mostrato una morfologia appiattita e allungata mentre si diffondevano sulla superficie della membrana dell'inserto rivestita di collagene, indicando un attacco riuscito (Figura 3A). Quando sono stati coltivati da soli per l'intero periodo di 9 giorni, i TC hanno continuato a proliferare e hanno raggiunto la confluenza entro il giorno 9 (Figura 3B). Al contrario, i GC coltivati da soli per 6 giorni sulla membrana dell'inserto rivestita di collagene hanno sviluppato un fenotipo simile ai fibroblasti, che è caratteristico dei GC in vitro (Figura 3C). Inoltre, come descritto in precedenza, i GC tendevano a formare cluster, una caratteristica tipica di queste cellule in coltura 5,7,31,32. Nel sistema di co-coltura, non sono state osservate differenze morfologiche apparenti né nei TC né nei GC rispetto alle rispettive monocolture abbinate nel tempo (Figura 3D), indicando che l'ambiente basato sull'inserto mantiene un normale comportamento cellulare. Tuttavia, a causa di limitazioni tecniche, la valutazione microscopica della co-coltura rimane impegnativa, in particolare per distinguere e valutare la morfologia delle TC indipendentemente dalle altre cellule. Per superare queste limitazioni, è attualmente in fase di studio un protocollo ottimizzato per la fissazione cellulare in conformità con l'esplorazione di strategie alternative per l'identificazione cellulare in assenza di anticorpi specifici per l'immunocolorazione.
La funzionalità del sistema di co-coltura è stata valutata analizzando la produzione ormonale e l'espressione di geni marcatori chiave per TC e GC 33,34, confermando i ruoli steroidogenici specifici del tipo cellulare. Un confronto tra la monocoltura GC e il modello di cocoltura ha rivelato livelli simili di estradiolo (E2) prodotti in vitro. Tuttavia, come previsto, la monocoltura di TC ha prodotto solo quantità trascurabili di E2, in linea con l'ipotesi delle 2-cellule-2-gonadotropina (Figura 4A)15, che afferma che le cellule teca non hanno la capacità di sintetizzare E2 in modo indipendente.
Per valutare ulteriormente la rilevanza fisiologica delle condizioni di coltura, è stata esaminata l'espressione dei geni marcatori chiave33 . In accordo con l'ipotesi della 2-cellula-2-gonadotropina, CYP19A1 era prevalentemente espresso nei GC, mentre CYP17A1 era principalmente rilevato nei TC, un modello osservato sia in condizioni di mono- che di co-coltura (Figura 4B, C). In particolare, l'abbondanza del trascritto di CYP19A1 era più alta nei GC all'interno del sistema di co-coltura rispetto alla mono-coltura GC, nonostante non fossero state osservate differenze nelle concentrazioni di estradiolo.
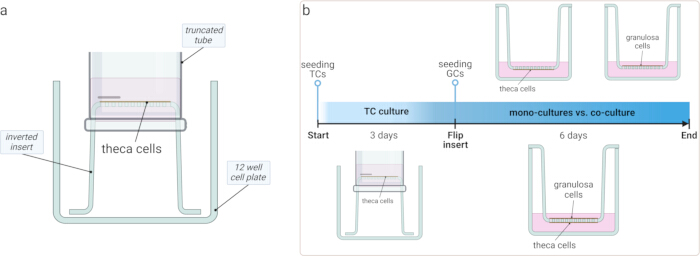
Figura 1: Rappresentazione schematica dell'allestimento della coltura cellulare. (A) Un diagramma che illustra la camera di inoculazione costruita su misura, che utilizza un tubo troncato sull'inserto invertito per evitare perdite di terreno durante il periodo iniziale di coltura. (B) Cronologia della procedura sperimentale: i TC sono stati coltivati sull'inserto invertito per tre giorni per consentire l'attacco. L'inserto è stato capovolto e i GC sono stati seminati sul lato opposto, seguiti da altri sei giorni di coltura. Lo studio ha confrontato TC e GC coltivati separatamente con il sistema di co-coltura TC-GC. Clicca qui per visualizzare una versione più grande di questa figura.
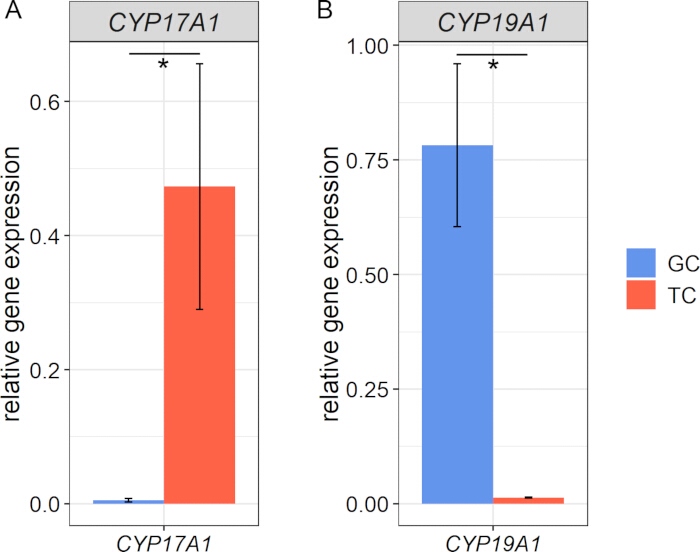
Figura 2: Espressione genica di marcatori specifici per tipo di cellula in cellule di granulosa e teca appena isolate. (A) CYP17A1 è stato espresso esclusivamente nei TC, mentre (B) CYP19A1 è stato rilevato prevalentemente nei GC, confermando la specificità e la purezza iniziale delle popolazioni cellulari isolate prima della coltura. I dati sono presentati come espressione relativa normalizzata alla media geometrica dei geni di riferimento RPLP0 e TBP. Sono mostrate le medie e l'errore standard delle medie, i dati sono stati testati per la normalità e la varianza, gli asterischi indicano differenze significative (n=3, t-test). Clicca qui per visualizzare una versione più grande di questa figura.
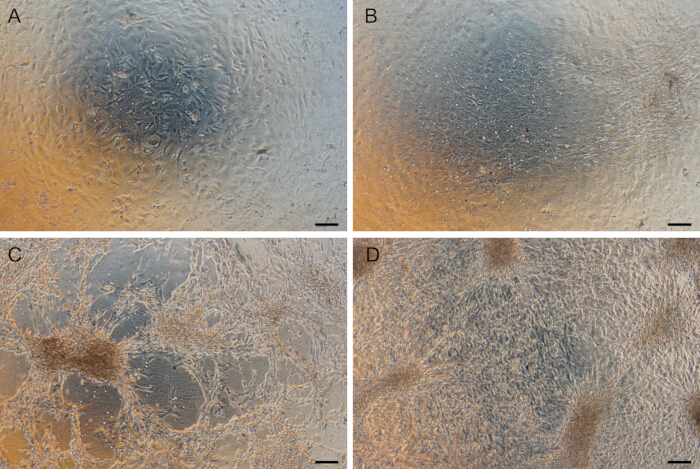
Figura 3: Morfologia delle cellule di teca e granulosa in coltura. (A) I TC coltivati per 3 giorni sono stati attaccati alla membrana dell'inserto rivestita di collagene. (B) I TC sono cresciuti fino alla confluenza dopo l'intero periodo di 9 giorni nella monocoltura. (C) I GC mostrano il tipico fenotipo simile ai fibroblasti dopo 6 giorni di coltura. (D) La co-coltura di TC e GC non mostra alcuna differenza morfologica apparente rispetto alle rispettive monocolture abbinate nel tempo. Questa immagine è stata scattata dopo 6 giorni di coltura GC e 9 giorni di coltura TC (al termine dell'esperimento di co-coltura). Barre di scala 100 μm. Fare clic qui per visualizzare una versione più grande di questa figura.
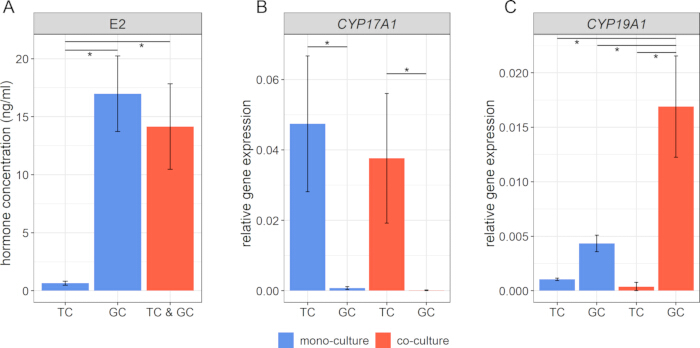
Figura 4: Analisi dei marcatori funzionali nel sistema di co-coltura. (A) Le concentrazioni ormonali di estradiolo (E2) confermano la funzionalità fisiologica del sistema di coltura cellulare. (B, C) L'analisi dell'espressione genica del marcatore TC CYP17A1 e del marcatore GC CYP19A1 dimostra l'identità e lo stato funzionale di entrambe le popolazioni cellulari. Per calcolare l'espressione relativa è stata utilizzata la media geometrica dei geni di riferimento RPLP0 e TBP . Sono mostrate le medie e l'errore standard delle medie, i dati sono stati testati per la normalità e la varianza, gli asterischi indicano differenze significative (n=3, ANOVA a una via). Clicca qui per visualizzare una versione più grande di questa figura.
Discussione
Il prerequisito per eseguire questo modello di co-coltura è un isolamento ben eseguito di entrambi i tipi di cellule per prevenire qualsiasi contaminazione incrociata. La purezza di entrambe le preparazioni cellulari è stata valutata mediante l'espressione genica del marcatore TC-specifico CYP17A1 e del marcatore GC-specifico CYP19A1. Come mostrato in precedenza, la tecnica di isolamento di GC e TC non ha mostrato alcuna contaminazione incrociata rilevante30.
Questo modello di co-coltura consente la coltura simultanea di cellule di teca e granulosa sui lati opposti di una membrana, imitando la loro organizzazione spaziale all'interno del follicolo e supportando lo stato fisiologico di entrambe le popolazioni cellulari3. La validità del modello è rafforzata dal suo profilo di produzione ormonale e dai modelli di espressione genica che si allineano con l'ipotesi15 delle 2-cellule-2-gonadotropina. Come previsto, i bassi livelli di estradiolo nella monocoltura TC confermano che le cellule teca da sole non sono in grado di sintetizzare l'estradiolo, supportando le conoscenze consolidate sulla steroidogenesi follicolare35. Nonostante la maggiore espressione di CYP19A1 nei GC co-coltivati, i livelli di estradiolo sono rimasti paragonabili alla monocoltura GC, suggerendo l'influenza di meccanismi regolatori come la disponibilità del substrato, l'inibizione del feedback o le differenze di attività enzimatica. Ulteriori esplorazioni sulle vie di segnalazione e sui meccanismi sottostanti sono giustificate, come argomento per studi futuri. Tuttavia, la creazione di un sistema di co-coltura funzionale di TC e GC bovini è imperativa, come previsto in questo studio. Il presente studio si è concentrato sulla produzione di estradiolo e sui livelli di espressione dell'mRNA di CYP17A1 e CYP19A1 come indicatori chiave della funzionalità del modello di co-coltura. Entrambi rappresentano marcatori sensibili della funzione della granulosa e delle cellule teche 4,8,36 e sono direttamente allineati con l'ipotesi 2-cellule-2-gonadotropina15. Pur riconoscendo l'importanza dell'espressione proteica, la mancanza di anticorpi affidabili ne ha precluso una valutazione accurata; Pertanto, un'analisi completa dei livelli proteici andava oltre lo scopo di questa indagine iniziale.
In generale, questo modello è un ulteriore sviluppo del tradizionale modello di coltura 2D, che imita in parte la struttura del follicolo ovarico3. I risultati supportano uno stato fisiologico di entrambi i compartimenti cellulari rivelato dall'espressione di marcatori sensibili per la fisiologia di GC e TC.
Un vantaggio rispetto ai tradizionali modelli di coltura 2D è quello di facilitare le interazioni paracrine tra le cellule della teca e della granulosa mantenendo la loro separazione spaziale, imitando meglio la struttura follicolare in vivo. Al contrario, i sistemi di co-coltura su piatto, in cui TC e GC sono mescolati in un unico pozzetto, mancano di questa organizzazione strutturale. Gli studi che utilizzano tali sistemi hanno comunemente applicato un rapporto GC:TC di 4:1 19,20,21, ma questo approccio non riflette la compartimentazione trovata in vivo e potrebbe, quindi, non essere fattibile per analizzare lo scambio di substrato. Inoltre, le alterazioni riscontrate a livello cellulare non possono essere facilmente rilevate, quando questa miscela GC-TC deve essere selezionata in modo complesso.
I modelli tridimensionali di co-coltura per le cellule della granulosa e della teca rimangono scarsi, ma i primi tentativi hanno mostrato risultati promettenti. Il gruppo di Kotsuji 22,23,24,37 ha precedentemente descritto l'interazione di cellule della granulosa e della teca in coltura utilizzando una membrana di collagene come separatore fisico. Tuttavia, questo sistema si basava su una membrana di collagene costruita su misura, rendendo difficile la riproducibilità e la standardizzazione. Al contrario, il modello di co-coltura presentato beneficia di inserti di coltura sospesi disponibili in commercio, che migliorano la riproducibilità, la standardizzazione e la qualità del prodotto, garantendo una più ampia applicabilità in tutti i laboratori. Sebbene il modello qui presentato abbia comportato una maggiore produzione di estradiolo rispetto ai modelli precedenti, il confronto di questi modelli è difficile, in quanto manca l'unità dei supplementi di coltura cellulare, in particolare le concentrazioni utilizzate26 o l'uso aggiuntivo di IGF-1 22,23,24,37.
Uno dei passaggi più cruciali della procedura è la coltura dei TC all'interno della camera di inoculazione. Assicurarsi che la camera sia posizionata saldamente sull'inserto invertito è essenziale per evitare perdite di fluidi, che altrimenti potrebbero compromettere l'attacco e la sopravvivenza del TC. Pertanto, si consiglia di premere con decisione la camera di inoculazione sull'inserto invertito con l'aiuto di una pinzetta e di ispezionare visivamente il posizionamento della camera di inoculazione. Inoltre, la rimozione della camera di inoculazione e il capovolgimento dell'inserto dopo tre giorni richiedono precisione tecnica. Potrebbe essere necessario un po' di allenamento per eseguire questo passaggio senza interrompere e/o danneggiare le celle collegate. Un'altra considerazione importante è la densità di semina dei GC. Una densità cellulare più elevata che supera i livelli ottimali di 1,0 x 10⁵ cellule per inserto può portare alla differenziazione dei GC, influenzando potenzialmente la produzione di steroidogeni. Inoltre, il metodo di crioconservazione presentato ha prodotto una vitalità dell'80-90% dopo lo scongelamento per entrambi i tipi di cellule.
Sebbene il modello descritto offra un sistema fisiologico e riproducibile per studiare le interazioni tra granulosa e teca cellulare, è necessario considerare alcune limitazioni. Il metodo è adattabile anche ad altre specie; Tuttavia, le differenze specie-specifiche potrebbero richiedere l'ottimizzazione dei parametri della coltura cellulare, come la densità cellulare, i tempi o la composizione dei terreni. La scalabilità di questo modello è limitata alla disponibilità degli inserti per colture cellulari, ma potrebbe essere sufficiente per la maggior parte degli studi sugli effettori. Infine, questo modello di co-coltura è un ulteriore passo avanti verso l'imitazione della situazione in vivo del follicolo, ma manca ancora della piena complessità del follicolo ovarico.
In conclusione, il modello presentato può essere facilmente modificato per soddisfare diverse esigenze sperimentali, come l'estensione del periodo di coltura, la regolazione del numero o dei rapporti cellulari o l'incorporazione di fattori aggiuntivi. Con ulteriori sviluppi, questo sistema rappresenta uno strumento prezioso per studiare la funzione follicolare, la steroidogenesi e la segnalazione cellulare tra i due compartimenti cellulari. Inoltre, ha un potenziale per applicazioni nella tossicologia riproduttiva, fornendo una piattaforma controllata per valutare l'impatto di diversi composti sulle cellule follicolari.
Dichiarazioni
Tutti gli autori dichiarano di non avere conflitti di interesse.
Ringraziamenti
Desideriamo esprimere il nostro apprezzamento a Veronica Schreiter, Maren Anders e Olivier Seidel per la loro eccellente assistenza tecnica. Inoltre, ringraziamo il macello commerciale "DANISH CROWN Teterower Fleisch GmbH" (Germania), dal quale abbiamo ottenuto le ovaie per questo studio.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 10x Soluzione salina bilanciata di Hank HBSS (w Mg/Ca, rosso fenolo) | Bio& Vendere | B. L201-10 | sciogliere in acqua ultrapura; regolare il pH a 7,4 della soluzione di digestione (HBSS e HEPES) ed eseguire la filtrazione sterile prima dell'uso |
| Ago 18 G, 40 mm, diametro 1,2 mm | Roth | 281T.1 | Ago monouso, taglio corto |
| Siringa da 3 ml (Omnifix Luer) | Roth | LY22.1 | |
| accutasio | Merck | Codice: A6964 | ramo d'azienda: Sigma-Aldrich |
| amfotericina B (250 &; micro; g/ml) | Bio& Vendere | B. AB17.01050 | |
| androstenedione | Merck | 46033 | utilizziamo una soluzione madre di 10 mM, diluita in etanolo al 100%; ramo d'azienda: Supelco |
| binocolo Carl Zeiss Technival2 | Carl Zeiss Jena | non applicabile | utilizzato insieme alla luce incidente Schott KL 1600 LED |
| BSA (5%) | Merck | A3311 | ramo d'azienda: Sigma-Aldrich |
| filtro cellulare (100 µ m dimensione dei pori) | Sarstedt | 83.3945.100 | Montaggio su provette da centrifugazione da 50 ml |
| collagene R (0,2 %) | Serva | 47254 | |
| Collagenasi NB8 (10%) | Marca del Nord | S1745601 | |
| Contenitore per congelamento di celle CoolCell LX | Merck | CLS432002 | prodotto da Corning |
| Fiale di crioconservazione (2 ml) | TPP Faust | TPP89020 | |
| piatto di coltura, 12 pozzetti, fondo piatto | TPP Faust | TPP92112 | |
| piatto di coltura, 24 pozzetti, fondo piatto | TPP Faust | TPP92424 | |
| piatto di coltura, 6 pozzetti, fondo piatto | TPP Faust | TPP92006 | |
| DMSO | Roth | 4720.1 | |
| DPBS senza Ca2+, Mg2+ | Bio& Vendere | B. L182-10 | Sciogliere in acqua ultrapura e in autoclave prima dell'uso |
| estradiolo, 17b-[2,4,6,7-3H] | Hartmann Analytik | ART1555 | |
| siero fetale per vitelli (FBS Superior stabil) | Bio& Vendere | FBS. S0615 | |
| FSH (~7.000 UI/mg; da ipofisi umana) | Merck | F4021 | Preferiamo utilizzare una soluzione madre di 2 µ g/ml, diluito in NaCl allo 0,9 %; ramo d'azienda: Sigma-Aldrich |
| Inserti per colture cellulari sospesi (0,4 & micro; m dimensione dei pori) | cellQART | 9320412 | Durante l'ordine, essere consapevoli delle diverse proprietà degli inserti; preferiamo una membrana in PET trasparente per la microscopia a contrasto di fase |
| HEPES (1 M) | Roth | 9105.2 | regolare il pH a 7,4 della soluzione di digestione (HBSS e HEPES) ed eseguire la filtrazione sterile prima dell'uso |
| olotransferrina (bovini) | Merck | T1283 | sciogliere in acqua sterile; ramo d'azienda: Sigma-Aldrich |
| innuPREP Kit Mini RNA 2.0 | IST innuscreen | 845-KS-2040250 | |
| insulina (10 mg/ml; da pancreas bovino) | Merck | I0516 | dissolvere in 1x PBS; ramo d'azienda: Sigma-Aldrich |
| L-Glutammina (200 mM) | Bio& Vendere | B. K0283 | |
| LR3-IGF-1 | Merck | I1146 | Utilizziamo una soluzione madre di 200 µ g/ml, disciolto in 10 mM di HCl e 1x PBS con 1 mg/ml di BSA; ramo d'azienda: Sigma-Aldrich |
| Spettrofotometro NanoDrop 1000 | TermoScientifico | non applicabile | Misurazione della concentrazione di RNA |
| NEA (100x) | Bio& Vendere | B. K0293 | |
| penicillina/streptomicina (10.000 UI/10 mg/ml) | Bio& Vendere | B. Codice: A2213 | |
| acqua purificata, adatta per colture cellulari | Merck | W3500 | ramo d'azienda: Sigma-Aldrich |
| Kit di sintesi di cDNA SensiFAST | Bioline | BIO-65054 | fornito tramite il partner di distribuzione BioCat |
| bicarbonato di sodio (7,5%) | Bio& Vendere | B. L1713 | |
| selenito di sodio | Merck | S9133 | sciogliere in acqua sterile; ramo d'azienda: Sigma-Aldrich |
| agitatore termico TS-100C | Fischer Scientific | 12357627 | utilizzato insieme al blocco HC18 (n. cat. 12337627) |
| α-MEM | Bio& Vendere | B. F0915 |
Riferimenti
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
Ristampe e permessi
