L'amplificazione stabile in vitro delle Primordial Germ Cell-Like Cells (PGCLC), un modello surrogato pluripotente derivato da cellule staminali delle cellule germinali primordiali embrionali, ha dovuto affrontare sfide tecniche. Questo protocollo supporta l'espansione a lungo termine delle PGCLC in una condizione in vitro senza siero o cellule dello strato di alimentazione.
Articolo metodologico
Coltura a lungo termine di cellule germinali primordiali umane simili a cellule
In questo articolo
Sommario
Abstract
Le cellule germinali primordiali (PGC) sono precursori comuni di tutte le cellule germinali maschili e femminili. Le PGC insorgono negli embrioni di mammifero perimplantari e diventano precursori di cellule germinali specifiche per genere in seguito alla differenziazione sessuale dell'anlage gonadica. Il modello in vitro comunemente noto come PGC-Like Cells (PGCLC), generato da cellule staminali pluripotenti umane, è un utile surrogato delle PGC embrionali umane, fornendo un'opportunità unica per esplorare la gametogenesi umana in vitro. Il protocollo qui presentato supporta l'espansione in vitro a lungo termine di PGCLC umani. I PGCLC appena isolati vengono mantenuti inizialmente su uno strato di alimentazione STO e poi espansi in una condizione priva di alimentatore su estratto di membrana basale. I PGCLC di coltura a lungo termine (LTC-PGCLC) possono essere arricchiti con Fluorescence-Activated Cell Sorting (FACS) come cellule CD38-positive e sono facilmente amplificati a decine di milioni di cellule come coltura monotona pura, priva di alimentatore e di siero senza limitazioni apparenti come la senescenza. È praticamente possibile ottenere una popolazione pura di oltre 1 milione di PGCLC umani da poche migliaia di PGCLC appena isolati. La coltura cellulare umana di LTC-PGCLC è un modello in vitro utile e conveniente per studiare la biologia delle cellule germinali umane e il differenziamento nelle cellule germinali a valle.
Introduzione
Le cellule germinali primordiali (PGC) sono i primi precursori di tutte le cellule germinali. Le PGC umane emergono dall'epiblasto posteriore - presumibilmente cellule precursori amniotiche non impegnate - nelle prime fasi post-impianto, gastrulando gli embrioni a 2-3 settimane di gestazione 1,2,3,4,5,6,7. Per la specificazione delle PGC sia umane che toniche, le vie di segnalazione attivate dalle proteine morfogenetiche ossee (BMPs) e da WNT3 svolgono un ruolo critico 3,6. Mentre l'induzione di tre fattori di trascrizione, BLIMP1, PRDM14 e TFAP2C, è necessaria per la specificazione delle PGC di topo, nella specificazione delle PGC umane, il ruolo di PRDM14 è diminuito. SOX17, che è superfluo per la specifica PGC del topo ma indispensabile per la specifica PGC umana, è indotto dalla segnalazione BMP in un modo dipendente esclusivamente da EOMES o sia da EOMES che da TBXT 7,8,9. Le PGC umane migrano dall'epiblasto posteriore verso l'anlagen gonadico nelle creste genitali attraverso il mesentere dorsale a 5-6 settimane di gestazione 10,11,12,13,14,15,16. La migrazione umana di PGC può essere guidata dalla chemiotassi, anche se attende conferma sperimentale. I profili trascrittomici delle PGC umane migratorie non sono identici a quelli delle PGC di topo allo stesso stadio17,18. Ad esempio, le PGC umane esprimono DAZL anche prima del loro insediamento nell'anlageno gonadico, mentre le PGC di topo esprimono DAZL solo dopo il loro insediamento gonadico9. All'inizio della differenziazione sesso-specifica delle cellule somatiche gonadiche, le PGC subiscono anche la differenziazione in prospermatogonia (nota anche come gonociti) o oogonia.
Poiché l'accesso alle PGC embrionali umane è estremamente impegnativo a causa di barriere tecniche ed etiche, l'uso di cellule PGC-simili (PGCLC) derivate da cellule staminali pluripotenti sta diventando sempre più popolare3. Le PGCLC di topo assomigliano allo stadio post-migrazione delle PGC, caratterizzate da un'avanzata demetilazione del DNA genomico globale (gDNA), e sono in grado di generare spermatozoi e ovociti competenti per la fecondazione 19,20,21. Al contrario, le PGCLC umane assomigliano agli stadi precedenti delle PGC embrionali con una limitata demetilazione globale del gDNA 7,22,23,24. Si stanno accumulando prove che i PGCLC umani, nonostante il loro stato relativamente immaturo, sono in grado di differenziarsi in vitro in stadi più avanzati di cellule germinali simili a oogonia25,26 o prospermatogonia27.
Da quando Irie et al. hanno pubblicato la prima generazione di PGCLC da cellule staminali pluripotenti umane nel 20157, un certo numero di laboratori ha pubblicato vari protocolli per la produzione umana di PGCLC. I primi protocolli standard prevedono la formazione di aggregati cellulari pluripotenti, che sono spesso indicati come corpi embrioidi 7,22,24,26,28,29. Le PGCLC umane possono essere prodotte utilizzando vari protocolli basati su aggregati che condividono profili trascrittomici comparabili, che esprimono fortemente geni marcatori PGC chiave come PRDM1, SOX17, TFAP2C, POU5F1 e NANOS3, mentre l'espressione del marcatore di pluripotenza SOX2 o del marcatore PGC in stadio avanzato DDX4 è comunemente soppressa24. Sono stati riportati anche tentativi riusciti di produrre PGCLC umani da colture cellulari monostrato per migliorare la scalabilità e la convenienza30. Sebbene la resa delle PGCLC sia relativamente piccola, il successo della produzione di PGCLC umane da modelli in vitro derivati da cellule staminali pluripotenti degli embrioni in fase di gastrulazione contribuisce in modo significativo a chiarire i meccanismi della specificazione della linea germinale e dello sviluppo delle PGC in fase iniziale 31,32,33,34,35,36.
Sebbene la resa e la qualità dei PGCLC umani prodotti utilizzando vari metodi di coltura cellulare siano migliorate, la difficoltà tecnica nell'espansione delle colture cellulari di PGCLC umani pone un ostacolo significativo alla loro applicazione per esperimenti che richiedono grandi quantità di popolazioni cellulari omogenee, come lo screening chimico o genetico, nonché la produzione di stadi avanzati di cellule germinali26. Gell et al. hanno riportato il mantenimento di PGCLC umani per un massimo di 21 giorni su alimentatori STO in un terreno a base di FR10 contenente fattore di cellule staminali (SCF) e siero fetale di vitello (FCS) al 2,5%; tuttavia, le PGCLC tendevano a divergere dall'identità simile alle PGC per altri tipi di cellule che potrebbero non essere rilevanti per lo sviluppo delle cellule germinali37. Murase et al. hanno ripetutamente eliminato tali cellule indesiderate dalla coltura mediante FACS ad ogni passaggio e hanno dimostrato che i PGCLC umani sono in grado di mantenere il loro potenziale di proliferazione a lungo termine in vitro38. Successivamente, Murase et al. hanno riportato il successo dell'amplificazione di PGCLC umani in un terreno contenente il 2,5% di FCS39, ma il loro metodo richiede le cellule dello strato di alimentazione m220-5, che sono subcloni resistenti all'MMC emersi spontaneamente delle cellule embrionali di topo m220 che esprimono la forma legata alla membrana di SCF di topo da un vettore esogeno40. Ad oggi, le celle m220-5 non sono ancora state depositate in un deposito accessibile al pubblico. Pertanto, rimane una sfida importante espandere la coltura di PGCLC umano in vitro a un gran numero di cellule omogenee, mantenendo le loro caratteristiche simili a PGC in una condizione semplice che non richiede una risorsa di cellule feeder non standard ed è priva di reagenti di origine animale, la cui efficienza può variare tra i diversi lotti.
Per superare l'ostacolo tecnico di cui sopra, è stato sviluppato un metodo che consente l'espansione a lungo termine in vitro di PGCLC umane come popolazione cellulare omogenea, mantenendo le caratteristiche simili a PGC in una condizione priva di cellule sieriche o di strato di alimentazione41. Poiché le PGCLC umane esprimono la telomerasi, queste cellule si amplificano a un ritmo costante senza segni di senescenza o deviazione da altri tipi di cellule per almeno 150 giorni. I PGCLC di coltura a lungo termine (LTC-PGCLC) mantengono le loro caratteristiche trascrittomiche umane simili a quelle del PGC, sebbene il loro gDNA globale sia modestamente demetilato dopo passaggi ripetuti. Gli LTC-PGCL vengono facilmente convertiti in cellule embrionali pluripotenti simili a cellule germinali (EGCLC), ripristinando il trascrittoma iPSC-like e il metiloma del gDNA, sebbene la restrizione allelica dell'espressione dell'RNA H19 venga persa. Gli LTC-PGCLC sono anche in grado di differenziarsi in cellule che esprimono DAZL simili a prospermatogonia nella coltura di organoidi xenobiotici xrTestis27. Pertanto, il modello umano di LTC-PGCLC rappresenta un nuovo tipo di risorsa di coltura cellulare stabile e rilevante per la pluripotenza che conserva in modo permanente le caratteristiche biologiche delle PGCLC ed è facilmente espandibile in vitro come linea cellulare stabile.
Questo articolo descrive il metodo per adattare la popolazione pura di PGCLC umani appena isolata e arricchita con FACS a una coltura di mantenimento a lungo termine priva di siero attraverso il supporto temporale delle cellule dello strato di alimentazione STO standard e quindi in una condizione priva di alimentatore su estratto di membrana basale (BME). Questo metodo supporta l'espansione in vitro di PGCLC umani prodotti utilizzando il protocollo embrioide corpo-dipendente, come precedentemente descritto 24,41,42 o riportato da Sasaki et al 22, e il metodo di coltura monostrato riportato da Overeem et al30. Quando applicato a PGCLC umani preparati come descritto41, una popolazione iniziale di 10.000 cellule può essere espansa a quasi 1 x 10⁹ cellule in 1,5 - 2 mesi con un tempo di raddoppio della popolazione di 4 - 4,5 giorni41. Si prevede anche l'applicabilità di questo metodo ai PGCLC umani prodotti con altri metodi.
Protocollo
1. Preparazione dei terreni di coltura cellulare
- Preparare i supporti come descritto nelle Tabelle 1, Tabelle 2, Tabelle 3 e Tabelle 4. Conservare le aliquote di questi terreni congelati.
- Preparare il terreno basale PGCLC come descritto nella Tabella 1. Preparare aliquote da 40 mL e conservare a -20 °C per 6 mesi. Preparare il terreno STO 1 come descritto nella Tabella 2. Conservare 50 mL di aliquote in provette da centrifuga da 50 mL a 4 °C per 1 mese.
- Preparare il terreno STO 2 come descritto nella Tabella 3. Utilizzare immediatamente. Preparare il terreno di conservazione delle cellule STO trattate con mitomicina-C (MMC-STO) come descritto nella Tabella 4. Conservare 10 mL di aliquote a -20 °C per 6 mesi.
ATTENZIONE: Poiché il dimetilsolfossido è considerato pericoloso (liquido combustibile), deve essere tenuto lontano da fonti di calore, scintille, fiamme libere o superfici calde. Seguire il protocollo normativo locale per il suo smaltimento.
2. Preparazione di cellule STO trattate con MMC
NOTA: Il trattamento MMC delle cellule STO inattiva la loro attività di proliferazione senza danneggiarne significativamente la vitalità. Le cellule MMC-STO vengono utilizzate come cellule di alimentazione durante la coltura iniziale di PGCLC umani (fase 4) e come fonte del terreno condizionato privo di cellule (fase 3).
- Far crescere le cellule STO in terreno STO 1 su quattro piastre P15 fino a quando non si avvicinano alla confluenza. Cambiare il terreno STO da 1 a 23 ml/piatto. Aggiungere 23 μL/piastra di 10 mg/mL di MMC di concentrazione direttamente al terreno fino a una concentrazione finale di 10 μg/mL.
- Agitare bene e incubare a 37 °C in un incubatore di CO2 per 4 ore.
ATTENZIONE: L'MMC è fatale se ne viene ingerita una grande quantità ed è un sospetto cancerogeno. La manipolazione e lo smaltimento di questo composto devono seguire i protocolli normativi locali. - Lavare le celle con 20 mL/piatto di PBS di Dulbecco (senza Ca/Mg) 2 volte a temperatura ambiente.
- Dissociare le cellule con 4 mL/piastra di TrypLE Express in un incubatore di CO2 per 2 minuti. Sospendere le cellule in una sospensione di una singola cellula mediante pipettaggio delicato.
- Trasferire due piastre di sospensione cellulare (8 mL) in una provetta da centrifuga da 50 mL contenente 30 mL di terreno STO ghiacciato-1. Ripetere per le altre due piastre per ottenere due provette di sospensione cellulare da 38 mL.
- Contare le cellule in presenza di blu di tripano allo 0,2% per la valutazione della vitalità cellulare utilizzando un emocitometro o un contatore automatico di cellule.
- Centrifugare le celle a 300 x g per 5 min a 4 °C. Scartare il surnatante. Risospendere i pellet cellulari in un terreno di conservazione congelato a 5 x 10⁶ cellule/mL.
- Preparare 1 mL di aliquote di cellule STO trattate con MMC nelle fiale criogeniche. Congelare lentamente le cellule in una scatola di polistirolo o in un dispositivo di congelamento lento e conservarle a -80 °C per un massimo di 12 mesi.
3. Preparazione del terreno condizionato STO (S-CM)
NOTA: Il terreno condizionato libero da cellule delle cellule MMC-STO (preparato nella fase 2) supporta la sopravvivenza e la proliferazione delle PGCLC umane, reprimendo la loro deviazione verso le cellule che perdono caratteristiche simili alle PGC.
- Giorno 1: Scongelare le cellule STO trattate con MMC da ceppi congelati e inoculare 5 x 10⁶ cellule in una piastra P10 rivestita di gelatina con 10 mL/piastra STO-medium 2. La dimensione tipica di un lotto è composta da 4 a 8 piatti P10. Incubare le cellule a 37 °C in un incubatore di CO2 per una notte.
- Per rivestire i pozzetti con la gelatina, aggiungere 1 mL/pozzetto di gelatina allo 0,1% e incubare a temperatura ambiente per almeno 20 minuti. Aspirare la soluzione di gelatina in eccesso e lasciare i pozzetti aperti nella cabina di biosicurezza fino a quando non sono asciutti. Conservare la plastica gelatinizzata a temperatura ambiente per 2 settimane o a 4 °C per 3 mesi.
- Scongelare le aliquote del PGCLC Basal Medium a 4 °C durante la notte.
NOTA: Non è consigliabile scongelare questo mezzo più rapidamente a una temperatura più elevata. Non conservare il terreno basale PGCLC a 4 °C per più di 1 settimana. - Giorno 2: Rimuovere e gettare lo STO-medium 2. Lavare le celle con DPBS caldo (~10 mL/piatto) seguito da un lavaggio con PGCLC Basal Medium caldo (2 mL/piatto). Aggiungere il terreno basale PGCLC caldo (12 mL/piatto) e incubare le cellule a 37 °C in un incubatore di CO2 per una notte.
- Giorno 3: Raccogliere tutto il terreno condizionato in una provetta da centrifuga da 50 mL. Ripetere il terreno basale PGCLC (12 mL/piatto) e l'incubazione per la raccolta del terreno condizionato il giorno successivo dalla stessa coltura cellulare STO. Centrifugare il terreno condizionato raccolto a 300 x g per 5 minuti a 4 °C. Preparare 10 mL di aliquote del surnatante (S-CM) in 15 mL di provette da centrifuga. Non prelevare gli ultimi 3 mL di terreno rimasti sul fondo delle provette da 50 mL per evitare la contaminazione delle cellule MMC-STO in S-CM. Conservare le aliquote a -80 °C per un massimo di 6 mesi.
- Giorno 4: Raccogliere S-CM ripetendo il passaggio 3.4 ogni giorno fino a quando la coltura monostrato MMC-STO non si deteriora dopo 5-6 giorni di coltura in terreno basale PGCLC. Interrompere la raccolta quando il 25% o più delle cellule viene staccato dalla piastra.
4. Adattamento dei PGCLC umani alla coltura a lungo termine
- Coltura di PGCLC umani appena isolati sullo strato di alimentazione MMC-STO. Preparare PGCLC umani utilizzando un metodo precedentemente pubblicato (Mitsunaga et al.24; Kobayashi et al.41). Sono stati pubblicati anche protocolli dettagliati di induzione umana di PGCLC 42,43.
- Dopo l'amplificazione iniziale per un massimo di 28 giorni, mantenere i PGCLC come LTC-PGCLC sul BME come coltura priva di alimentatore. Durante queste due fasi della coltura di PGCLC, utilizzare il terreno condizionato con STO (S-CM, preparato nella fase 3) con supplementazione di SCF ma non inclusione di FCS. L'inibitore ROCK è necessario solo immediatamente dopo il passaggio.
NOTA: Come BME, nel nostro laboratorio è stato utilizzato Matrigel di grado ESC. Altri prodotti commerciali non hanno supportato l'espansione a lungo termine degli LTC-hPGCLC. - Giorno 1: Inoculare le cellule dello strato di alimentazione STO trattate con MMC in piastre a 6 pozzetti rivestite di gelatina a 8 x 10⁴ cellule/cm2 con 3 mL/pozzetto di STO-medium 2. Incubare lo strato di alimentazione a 37 °C in un incubatore di CO2 per una notte.
- Giorno 2: Eliminare lo STO-medium dalla coltura e lavare le cellule con MEM di Dulbecco caldo (senza siero), 3 mL/pozzetto. Aggiungere 3 mL/pozzetto di S-CM appena integrato con 0,1 mM di 2-Mercaptoetanolo, 50 μg/mL di acido ascorbico, 100 ng/mL di SCF umano ricombinante e 10 μM di Y-27632. Inoculare 500 - 2.000 PGCLC umani appena isolati sullo strato di alimentazione STO in ciascun pozzetto. Incubare le cellule a 37 °C in un incubatore di CO2 per una notte.
NOTA: La presenza di siero, anche a basse concentrazioni, tende a causare l'emergere di tipi indesiderati di cellule da PGCLC umani41. La crescita dei PGCLC umani è strettamente dipendente dall'SCF41. Y-27632 supporta la sopravvivenza dei PGCLC umani unicellulari al momento dell'inoculazione, ma non è necessario durante la coltura di mantenimento. Aggiungere 2-mercaptoetanolo, acido ascorbico, SCF e Y-27632 freschi al terreno. In un esperimento tipico, i PGCLC vengono inoculati in tutti i pozzetti di una piastra a 6 pozzetti. Se è disponibile un numero maggiore di PGCLC come materiale di partenza, è accettabile una densità più elevata, fino a 10.000 PGCLC per pozzetto. - Giorno 3: Sostituire metà del terreno (1,5 mL/pozzetto) con S-CM caldo appena integrato con 0,1 mM di 2-Mercaptoetanolo, 50 μg/mL di acido ascorbico, 100 ng/mL di SCF ricombinante umano ma senza Y-27632. Non disturbare i PGCLC, che possono essere staccati dallo strato di alimentazione da un forte flusso di fluido.
- Giorni 5 - 28: Ripetere il passaggio 4.5 a giorni alterni. Poiché le PGCLC proliferano tipicamente a 4,5 giorni di tempo di raddoppio della popolazione41, piccoli cluster di PGCLC emergono al giorno 6-7 o più tardi (Figura 1A-D). I cluster diventeranno più evidenti entro il giorno 14-15 (Figura 1E, F). Se compaiono tipi indesiderati di cluster cellulari con caratteristiche morfologiche anomale che si discostano dai PGCLC corretti, scartare i pozzetti contenenti tali cluster o tentare di eliminare le cellule anomale utilizzando la tecnica di adesione differenziale descritta più avanti nel passaggio 4.9.
- Quando i PGCLC si espandono per formare cluster che coprono più del 20% dell'area di coltura (~Giorno 28), dissociare le cellule utilizzando la soluzione di distacco cellulare (CDS). Rimuovere l'S-CM dai pozzetti della coltura di PGCLC e aggiungere CDS preriscaldato a 1 mL/pozzetto senza lavare le cellule. Incubare le cellule a 37 °C in un incubatore di CO2 per 5 minuti fino a quando i PGCLC non si staccano dai pozzetti.
NOTA: L'accutase è raccomandato come CDS per la dissociazione lieve. Non preriscaldare il CDS a 37 °C per più di 5 minuti. Il distacco del PGCLC può essere facilitato da un pipettaggio delicato, ma non è necessario che i PGCLC siano completamente dissociati in una sospensione di una singola cellula. Piccoli aggregati di PGCLC possono aumentare la vitalità. Se i tipi di cellule indesiderati emergono e crescono rapidamente, regolare il tempo di incubazione nella CDS durante il distacco delle cellule per la raccolta selettiva delle PGCLC, che tendono a staccarsi prima delle cellule di alimentazione e della maggior parte dei tipi di cellule indesiderate. Se l'emergere persistente di tipi di cellule indesiderate disturba l'espansione delle PGCLC, tentare di rimuovere le cellule indesiderate utilizzando la loro adesione più rapida ai pozzetti rivestiti di gelatina, come descritto al punto 4.9. Poiché l'arricchimento di PGCLC da parte del FACS tende a perdere una parte significativa di PGCLC vivi, ridurre di conseguenza la dimensione dell'area dello strato di alimentazione. - Per arrestare il distacco delle cellule mediante CDS, diluire la sospensione cellulare con un volume 10x di PGCLC Basal Medium caldo e centrifugare a 300 x g per 5 minuti a 4 °C. Si noti che l'attività enzimatica di alcuni CDS, come l'Accutase, non è soppressa dagli inibitori del siero o della tripsina. Scartare il surnatante e risospendere le cellule in 3 mL di S-CM caldo appena integrato con 0,1 mM di 2-Mercaptoetanolo, 50 μg/mL di acido ascorbico, 100 ng/mL di SCF ricombinante umano e 10 μM di Y-27632.
- Inoculare la sospensione cellulare in pozzetti di piastre a 6 pozzetti rivestite con gelatina allo 0,1% e incubare a 37 °C in un incubatore di CO2 per 30 minuti per rimuovere le cellule MMC-STO (e i tipi di cellule indesiderati), che aderiscono rapidamente ai pozzetti rivestiti di gelatina.
NOTA: Si consiglia di ispezionare le cellule mediante microscopia a contrasto di fase a 20 minuti di incubazione e a 30 minuti per valutare l'adesione delle cellule di alimentazione. Potrebbe essere necessario allungare il tempo di incubazione fino a 45 minuti. L'uso di FACS o MACS per eliminare le cellule feeder non è generalmente necessario poiché le cellule STO trattate con MMC non possono proliferare e deteriorarsi nell'S-CM. - Trasferire PGCLC impoveriti di tipi anomali di cellule su pozzetti rivestiti di matrice di membrana basale per avviare una coltura a lungo termine di PGCLC umani senza alimentatore. Per un singolo pozzetto in una piastra a 6 pozzetti, si raccomanda l'inoculazione di 1 x 10⁵ PGCLC vitali.
NOTA: In genere è necessario raggruppare hPGCLC da un massimo di 6 pozzetti per raccogliere 1 x 10⁵ PGCLC vitali (colorazione blu di tripano negativo) e seminarli in un singolo pozzetto per aumentare la densità cellulare dell'inoculo. Se il numero di PGCLC raccolti non raggiunge 1 x 10⁵, utilizzare un pozzetto di dimensioni più piccole, come una piastra a 12 o 24 pozzetti per ottenere una densità di PGCLC relativamente alta. Al momento della prima sottocoltura, la maggior parte delle cellule dello strato di alimentazione MMC-STO sono deteriorate e non sopravvivono alla procedura di passaggio. Un piccolo numero di cellule MMC-STO vitali viene efficacemente rimosso dalla tecnica di adesione differenziale. Anche se alcune cellule MMC-STO sono contaminate in pozzetti rivestiti di BME, scompariranno dalla coltura durante il passaggio multiplo. - I PGCLC umani crescono come una popolazione cellulare altamente dispersa senza alcun segno significativo di contatto fisico diretto tra le singole cellule (Figura 1). Se emergono gruppi di cellule che mostrano strette interazioni intercellulari (Figura 2A), passare la coltura utilizzando la tecnica descritta al punto 4.7. In genere è sufficiente passare una volta alla settimana (1:4).
NOTA: L'arricchimento FACS di PGCLC umani non è in genere necessario. Tuttavia, se le cellule anomale indesiderate non possono essere rimosse efficacemente dopo la tecnica di adesione differenziale ripetuta descritta al punto 4.11, alcuni cicli di arricchimento FACS di PGCLC umani come cellule CD38-positive42,43 facilitano la creazione di una popolazione pura di LTC-hPGCLC. Esempi di cellule anomale derivate da PGCLC che crescono su piastre rivestite di BME in assenza di uno strato di alimentazione sono mostrati nella Figura 3. È importante mantenere una densità relativamente alta di colture cellulari di PGCLC per ridurre il rischio di indurre tipi di cellule indesiderate.- Preparare i piatti rivestiti di BME come descritto in precedenza42,43. Scongelare il BME con ghiaccio in frigorifero o in una stanza fredda durante la notte. Non scongelare il BME congelato a temperatura ambiente né utilizzare un bagno di acqua calda.
- Aliquotare BME (~200 μL; il volume di un'aliquota è determinato dal produttore per ogni lotto e indicato sull'etichetta del flaconcino) in provette da centrifuga a basso legame sterili e pre-refrigerate o in provette per crioconservazione cellulare su ghiaccio. È importante mantenere il BME ghiacciato durante l'erogazione per evitare la solidificazione. Conservare le aliquote a -80 °C.
- Diluire un'aliquota di BME con 25 mL di DMEM/F12 ghiacciato e distribuire in tre piastre da 10 cm (~8 mL/piastra) o quattro piastre da 6 pozzetti (totale 24 pozzetti, 1 mL per pozzetto). Incubare le piastre a temperatura ambiente per almeno 1 ora. Dopo il rivestimento, i piatti possono essere sigillati con pellicola trasparente e conservati a temperatura ambiente per un massimo di 1 settimana.
- Aspirare il terreno dalle stoviglie immediatamente prima dell'uso. Non è necessario lavare le stoviglie rivestite.
- Mantenere una densità relativamente alta di coltura di LTC-PGCLC sul BME per sopprimere l'emergere di tipi di cellule indesiderate. Il passaggio dei PGCLC è raccomandato quando le cellule raggiungono una confluenza superiore al 25%. Metà del terreno (1,5 mL/pozzetto) deve essere sostituito con S-CM caldo appena integrato con 0,1 mM di 2-Mercaptoetanolo, 50 μg/mL di acido ascorbico e 100 ng/mL di SCF ricombinante umano.
NOTA: L'inoculazione di PGCLC a una densità inferiore aumenta il rischio di produrre cellule indesiderate. Poiché il tempo di raddoppio della popolazione di PGCLC umani è di circa 4,5 giorni41, il passaggio settimanale di routine è in genere adeguato per mantenere la coltura a lungo termine. L'inclusione dell'inibitore ROCK (Y-27632) è necessaria solo dopo il passaggio per migliorare la vitalità del PGCLC. - Non disturbare i PGCLC, che possono essere staccati dallo strato di alimentazione da un forte flusso di fluido.
NOTA: Poiché le PGCLC umane esprimono la telomerasi, proliferano senza segni apparenti di senescenza come l'accorciamento dei telomeri o l'espressione della β-galattosidasi associata alla senescenza41. - Quando le PGCLC umane hanno ottenuto una proliferazione stabile senza generare quantità significative di tipi di cellule indesiderate, esaminare le loro caratteristiche simili alle PGC mediante il profilo di espressione dei geni marcatori.
NOTA: Gli approcci analitici adatti alla caratterizzazione di ogni singola cellula (come l'immunofluorescenza, il FACS o l'RNA-seq a singola cellula) sono incoraggiati per valutare la possibile contaminazione di tipi di cellule indesiderate. Se i risultati di tali analisi supportano la natura PGC-simile dei PGCLC, viene confermata la creazione di una coltura LTC-hPGCLC. - Conservare gli LTC-PGCLC congelati in un terreno di congelamento cellulare (1 x 10⁶ cellule/mL per fiala criogenica). Partendo da un totale di 10.000 PGCLC umani come materiale iniziale, la resa totale di 1 x 10⁶ PGCLC è raggiungibile in 6 settimane. Metti una scatola di carta o di plastica contenente le fiale criogeniche in una scatola di polistirolo ben sigillabile. Mettere la scatola sigillata in un congelatore a -80 °C per una notte per un congelamento lento. Quindi porre le fiale in un congelatore a -80 °C o in un serbatoio di azoto liquido.
- Per avviare la coltura da una fiala di cellule congelate, seguire i passaggi descritti di seguito.
- Scongelare rapidamente le cellule in un bagno d'acqua a 37 °C con agitazione manuale mantenendo il fondo della fiala in acqua. Quando il >80% del contenuto è scongelato nel flaconcino, asciugare il flaconcino con fazzoletti privi di lanugine o carta da laboratorio equivalente e strofinare intorno al tappo con un tampone imbevuto di alcol.
- Trasferire le cellule in una provetta da centrifuga da 15 mL contenente terreno basale PGCLC preriscaldato (37 °C). Se nella fiala rimangono piccole cellule congelate, recuperarle con il terreno basale PGCLC mediante pipettaggio.
- Centrifugare immediatamente le celle a 300 x g per 5 minuti a temperatura ambiente e rimuovere il surnatante.
- Risospendere il pellet cellulare con 9 mL di S-CM preriscaldato appena integrato con 0,1 mM di 2-Mercaptoetanolo, 50 μg/mL di acido ascorbico, 100 ng/mL di SCF ricombinante umano e 10 μM di Y-27632. Sospendere delicatamente le cellule utilizzando puntali per pipette da 1.000 mL.
- Inoculare 3 ml/pozzetto in 3 pozzetti della piastra rivestita di BME per avviare la coltura. Agitare delicatamente le piastre verticalmente e orizzontalmente per una distribuzione uniforme delle cellule. Evitare il movimento circolare dell'agitazione, poiché tale movimento sposterà le cellule al centro dei pozzetti. La vitalità delle cellule immediatamente dopo il recupero da un ceppo congelato è in genere superiore all'80%.
Risultati
Risultati rappresentativi - I PGCLC formano tipicamente cluster visibili sullo strato di alimentazione MMC-STO entro 2 settimane dall'inoculazione (Figura 1A-D). Ci vogliono circa 3-4 settimane prima che i PGCLC siano pronti per la coltura senza alimentatore. Poiché le PGCLC mostrano una forte attività citocinetica, la loro interazione intercellulare è debole quando formano cluster sullo strato di alimentazione (Figura 1E, F). Si osservano spesso PGCLC che si muovono fuori dagli ammassi (Figura 1F, punte di freccia rosse). Senza uno strato di alimentazione, le LTC-PGCLC crescono come cellule sparse con pochi segni di adesione intercellulare, anche quando la densità cellulare è elevata (Figura 3). Ogni LTC-PGCLC mantiene la morfologia originale del PGCLC umano appena isolato, mostrando segni di citochinesi attiva. Quando emergono cellule che si discostano dalle caratteristiche morfologiche simili alle PGC (Figura 2), l'arricchimento delle PGCLC mediante tecnica di adesione differenziale ripetuta spesso migliora la qualità della coltura. Se le cellule anomale persistono, può essere utile un arricchimento occasionale di PGCLC da parte di FACS come cellule CD38-positive.
Una pubblicazione precedente ha identificato le PGCLC umane come cellule PRDM1-positive, TFAP2C-positive, ma SOX2-negative41. Esprimono anche POU5F1, ma anche le loro iPSC precursori esprimono questo marcatore di pluripotenza41. Si consiglia vivamente di confermare la resa a livello di singola cellula e i profili di espressione dei marcatori delle PGCLC umane in espansione alla prima occasione utilizzando marcatori geneticamente inducibili, immunofluorescenza, FAC o RNA-seq a singola cellula. Tuttavia, senza tali analisi di conferma, la resa e la qualità delle PGCLC umane in presenza o assenza delle cellule di alimentazione possono essere convenientemente stimate utilizzando la microscopia a contrasto di fase standard, come mostrato in Figura 1, Figura 2 e Figura 3.
Durante la coltura a lungo termine, gli LTC-PGCLC mantengono una popolazione cellulare omogenea contenente una sottopopolazione attivamente proliferante, come i precedenti dati di RNA-seq a singola cellulahanno dimostrato 41. Il profilo trascrittomico delle PGCLC originali è in gran parte mantenuto, tranne per il fatto che l'espressione dei marcatori PGCLC in stadio iniziale GATA2 e GATA3 viene rapidamente persa41. Il livello globale di metilazione del DNA nelle iPSC umane è di circa il 73% e diminuisce a circa il 64% nelle PGCLC41 appena prodotte. Il livello globale di metilazione del DNA diminuisce ulteriormente negli LTC-PGCLC a circa il 54% dopo 12 settimane di espansione in vitro 41. La maggior parte delle caratteristiche trascrittomiche ed epigenetiche delle LTC-PGCLC umane sono completamente invertite rispetto a quelle delle iPSC originali quando vengono convertite nelle cellule germinali embrionali pluripotenti, tranne per il fatto che i segni epigenetici allele-specifici in diverse regioni di controllo dell'imprinting vengono cancellati nelle PGCLC e non tornano mai indietro41.
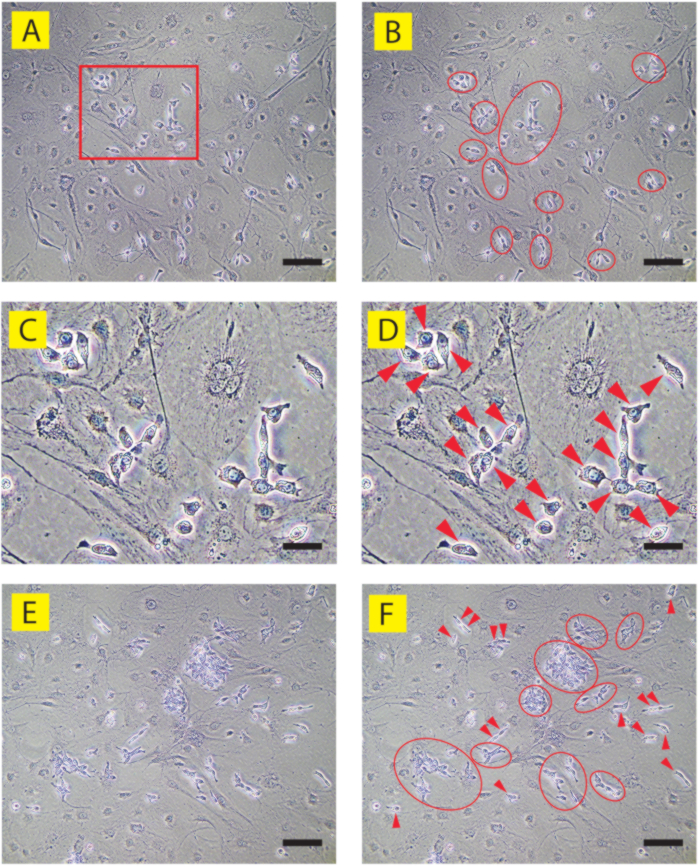
Figura 1: Immagini a contrasto di fase di PGCLC umani corretti sullo strato di alimentazione STO (clone umano di iPSC 9A13). (A, C, E) sono annotate rispettivamente in (B, D, F). (A-D) Giorno 6 cultura. Una parte di (A) mostrata in un rettangolo rosso viene ingrandita in (C, D). La maggior parte delle PGCLC si osserva come cellule disperse che spesso formano grappoli sciolti (ovali rossi). Le singole PGCLC (punte di freccia rosse) non formano uno stretto contatto tra loro e sono facilmente identificabili al microscopio a contrasto di fase come cellule che sporgono dalle cellule di alimentazione STO deteriorate, piatte e ampiamente diffuse. (E, F) Giorno 15 cultura. Più cluster di PGCLC sono facilmente identificabili (ovali rossi), mentre il contatto intercellulare è ancora debole. Alcuni PGCLC si trovano al di fuori degli ammassi, spesso come duplets (punte di freccia rosse), riflettendo la loro proliferazione attiva mentre migrano casualmente sopra e tra lo strato di alimentazione altamente deteriorato. Barre della scala = 50 μm (A, B, E, F) o 15 μm (C, D). Clicca qui per visualizzare una versione più grande di questa figura.
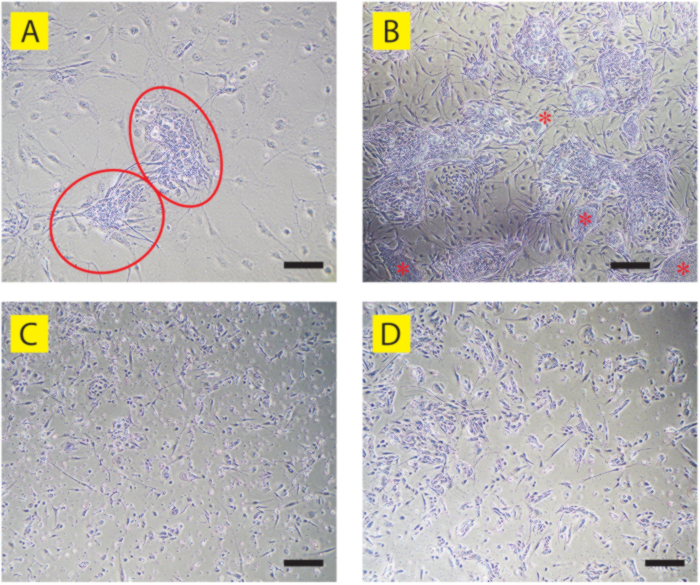
Figura 2: Immagini a contrasto di fase di PGCLC umani che si discostano dalle caratteristiche simili alle PGC. (A) Due cluster anomali di PGCLC (ovali rossi) sono apparsi nella coltura del giorno 9 di PGCLC 9A13 sullo strato di alimentazione STO. A differenza dei cluster di PGCLC corretti (vedi Figura 1A-D), le cellule mostrano un forte contatto intercellulare che oscura i confini di ogni singola cellula. (B) Giorno 18 coltura di PGCLC umano mostrata in (A). Sono stati osservati molteplici cluster anomali di PGCLC, alcuni dei quali mostrano colonie dense che assomigliano ai precursori delle iPSC umane (asterischi rossi). Si noti che la maggior parte delle cellule allungate simili a fibroblasti che si trovano tra i cluster sono anche cellule anomale derivate da PGCLC, mentre la maggior parte delle cellule alimentatrici di STO sono deteriorate e spostate. (C) LTC-hPGCLC (clone umano di iPSC B6) che mostrano una massiccia morte cellulare e morfologie anomale su piastre rivestite di BME e prive di alimentatore. (D) LTC-hPGCLC che sono in gran parte deviati verso cellule con morfologie anomale su piastre rivestite di BME e prive di feeder (clone umano di iPSC T548). Confrontare questi LTC-hPGCLC anomali con gli LTC-hPGCLC corretti mostrati nella Figura 3B. Barre di scala = 50 μm (A, B) o 100 μm (C, D). Clicca qui per visualizzare una versione più grande di questa figura.
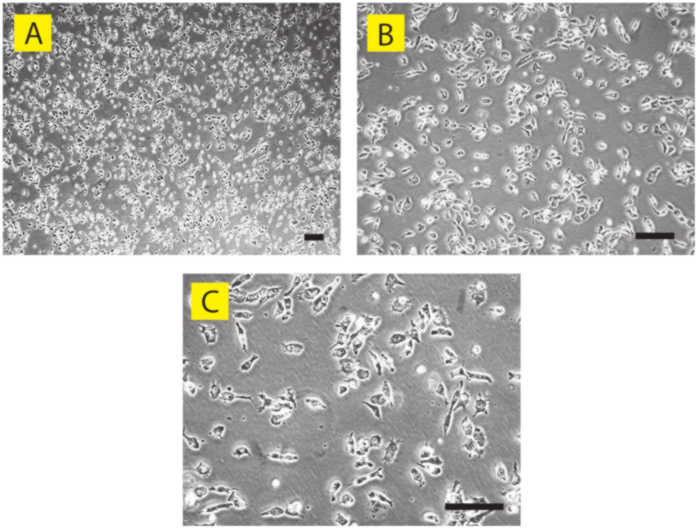
Figura 3: Immagini a contrasto di fase di PGCLC umani corretti come coltura senza alimentatore (clone umano di iPSC A4). La coltura senza alimentatore del giorno 56 di LTC-PGCLC su piastre rivestite con BME è mostrata con (A) basso, (B) medio e (C) alto ingrandimento. Anche se la densità cellulare è relativamente alta, ogni singolo PGCLC non forma stretti contatti intercellulari, ad eccezione delle cellule che hanno recentemente completato la divisione cellulare. A causa della citochinesi attiva, alcune PGCLC mostrano una morfologia allungata mentre altre sono di forma rotonda. Barre di scala = 50 μm. Fare clic qui per visualizzare una versione più grande di questa figura.
| PGCLC Basale Medio | |
| Ingredienti | Volume |
| Il MEM di Glasgow | 500 ml |
| Sostituzione del siero knockout (KSR) | 75 ml |
| MEM NEAA (100X) | 6 ml |
| Piruvato di sodio (100X) | 6 ml |
| Penicillina-Streptomicina (100X) | 6 ml |
Tabella 1: Terreno basale PGCLC. Composizione del terreno basale PGCLC (593 mL).
| STO medio 1 | |
| Ingredienti | Volume |
| Il MEM di Dulbecco | 445 ml |
| Siero fetale di vitello | 50 ml |
| Penicillina-Streptomicina (100X) | 5 ml |
Tabella 2: STO medio 1. Composizione del terreno STO 1 (500 mL).
| STO medio 2 | |
| Ingredienti | Volume |
| Il MEM di Dulbecco | 47 ml |
| Siero fetale di vitello | 2,5 ml |
| Penicillina-Streptomicina (100X) | 0,5 ml |
| FGF2 (200 μg/mL) | 2,5 μl |
Tabella 3: STO medio 2. Composizione del terreno STO 2, che è integrato con FGF2 per aumentare la crescita delle cellule STO (50 mL).
| Supporto di memorizzazione MMC-STO | |
| Ingredienti | Volume |
| Il MEM di Dulbecco | 42,5 ml |
| Siero fetale di vitello | 5 ml |
| Dimetilsolfossido | 2,5 ml |
Tabella 4: Supporto di memorizzazione MMC-STO. Composizione del terreno di conservazione MMC-STO, utilizzato per preparare scorte congelate di celle di alimentazione STO trattate con MMC (50 mL).
Discussione
Il metodo di manutenzione del PGCLC umano descritto in questo articolo è relativamente semplice e non richiede dispositivi specifici o materiali non standard. I metodi precedentemente pubblicati per il mantenimento del PGCLC umano richiedono un frequente smistamento FACS a causa della significativa deviazione delle cellule dallo stato simile al PGCLC38. Questi metodi richiedono anche una linea cellulare di strato di alimentazione non standard (m220-5), che non è prontamente disponibile attraverso archivi accessibili al pubblico e a livello internazionale39,40. L'inclusione di FCS nei loro terreni introduce incertezza dovuta alla dipendenza dalle prestazioni di un lotto specifico del siero. Al contrario, il metodo attualmente presentato consente di ottenere facilmente molti milioni di PGCLC umani, che possono essere conservati congelati mantenendo un'elevata vitalità (> 90%), senza richiedere siero o altri reagenti di origine animale. Il protocollo richiede la linea cellulare standard STO feeder layer, che è comunemente disponibile in molti repository pubblici. Il metodo offre un livello di praticità senza precedenti per gestire i PGCLC umani come se fossero linee cellulari convenzionali. La fornitura illimitata di PGCLC umani ottenuta utilizzando questo metodo amplierà la portata delle applicazioni di PGCLC umane in aree quali la produzione sperimentale di cellule germinali umane e/o gameti, le valutazioni dei disturbi delle cellule germinali umane come l'infertilità (compresi i tentativi di gametogenesi in vitro) o i tumori delle cellule germinali e le valutazioni tossicologiche delle potenziali sostanze tossiche delle cellule germinali.
Il metodo esclude la FCS nell'S-CM per ridurre al minimo l'emergere di tipi indesiderati di cellule dalle PGCLC umane41. Diversi cloni di iPSC tendevano a produrre tipi di cellule indesiderati durante la fase dipendente dall'alimentatore o successivamente, e alcuni di essi dovevano passare attraverso due o tre cicli di purificazione FACS delle PGCLC. Tuttavia, una volta che la coltura LTC-PGCLC si è stabilita con una confluenza superiore al 50%, la necessità di purificazione FACS è tipicamente ridotta. La crescita delle PGCLC umane in vitro è strettamente dipendente dalla presenza di SCF41. Se il tasso di crescita degli LTC-PGCLC diminuisce, si consiglia di testare lotti diversi o reagenti SCF dei produttori. Poiché le PGCLC umane esprimono la telomerasi, non vanno incontro a senescenza durante l'espansione a lungo termine in vitro41. È stato utilizzato con successo per stabilire LTC-PGCLC derivati da iPSC umane maschili e femminili con varie origini etniche41. Esempi di applicazione di successo del metodo attualmente presentato includono i cloni maschi di iPSC umani A4 e A5 (neonato caucasico), PGP1 (adulto caucasico) e 9A13 (adulto giapponese) e i cloni iPSC femminili ATCC-BXS0116 (caucasico) e ATCC-BXS0115/ACS-1029 (ispanico). L'applicabilità generale di questo metodo e dei marcatori predittivi deve essere stabilita in studi futuri.
La necessità di una purificazione occasionale di PGCLC umane dipende dal clone iPSC precursore. Mentre alcuni cloni di iPSC non hanno mai richiesto l'arricchimento di FACS dopo l'isolamento iniziale di PGCLC come cellule CD38-positive, alcune PGCLC hanno dovuto essere arricchite come cellule CD38-positive fino a tre volte da FACS durante la fase feeder-dipendente. I PGCLC arricchiti con FACS sono stati inoculati in alimentatori MMC-STO appena preparati. L'arricchimento FACS non è in genere richiesto ad ogni passaggio una volta che i PGCLC iniziano l'amplificazione stabile sul BME senza l'alimentatore.
Al momento non sono disponibili dati dettagliati sulla percentuale di cellule che mantengono le caratteristiche simili a PGC rispetto alle cellule che si discostano verso tipi di cellule indesiderate per il singolo clone di iPSC ad ogni passaggio. In generale, la coltura di LTC-hPGCLC si stabilizza dopo 2-4 settimane di coltura con ripetuti passaggi. Quando i PGCLC umani tendono a generare tipi di cellule indesiderate, il metodo di adesione differenziale può arricchire efficacemente i PGCLC, poiché la maggior parte delle cellule indesiderate tende ad aderire al piatto di coltura più fortemente rispetto ai PGCLC. Se ripetuti tentativi di adesione differenziale non aiutano l'arricchimento di PGCLC, l'arricchimento FACS di PGCLC umani come cellule CD38-positive spesso elimina le cellule indesiderate e, successivamente, l'LTC-hPGCLC puro può essere mantenuto utilizzando solo il metodo di adesione differenziale. Stabilire una coltura a lungo termine di PGCLC umani generati utilizzando il metodo 2-D descritto da Overeem et al. è stato a volte impegnativo. Tuttavia, gli stessi PGCLC umani che hanno acquisito resistenza all'apoptosi attraverso il knockout CRISPR di geni pro-apoptotici sono stati prontamente espansi a LTC-hPGCLC. I dettagli sulla compatibilità di questo metodo con ogni singolo iPSC e PGCLC umano devono essere esaminati in studi futuri.
Mentre le cellule dello strato di alimentazione STO trattate con MMC supportano inizialmente la sopravvivenza e la proliferazione dei PGCLC umani appena isolati, i PGCLC a rapida proliferazione si espandono in vitro senza uno strato di alimentazione purché siano supportati dal terreno condizionato con STO e dal rivestimento BME delle piastre. Il vantaggio unico del metodo attualmente presentato rispetto ad altri approcci è la capacità di stabilire LTC-hPGCLC come coltura priva di alimentatore. Le cellule dello strato di alimentazione MMC-STO mostrano segni iniziali di deterioramento nel terreno S-CM dopo 5-6 giorni di coltura. Entro il giorno 6-7 (Figura 1A-D), lo strato di alimentazione mostra danni modesti, che diventano più evidenti entro il giorno 14-15 (Figura 1E, F). In assenza delle cellule nutrienti, il tasso di sopravvivenza dei PGCLC umani appena isolati è tipicamente basso, apparentemente a causa della loro scarsa efficienza nell'aderire al fondo delle piastre di coltura cellulare. Si ipotizza che le proteine della matrice extracellulare depositate dalle cellule MMC-STO facilitino l'adesione e la sopravvivenza delle PGCLC anche dopo che le cellule MMC-STO si sono deteriorate. Una volta che il numero di PGCLC umani diventa sufficientemente grande da formare cluster visibili entro il giorno 14-15, la matrice extracellulare depositata dalle PGCLC stesse può essere sufficiente per sostenere la loro ulteriore sopravvivenza e proliferazione. A sostegno di questa ipotesi, l'inoculazione di PGCLC umani appena isolati ad alta densità (ad esempio, 100.000 cellule in un pozzetto di una piastra a 12 pozzetti) in pozzetti privi di feeder e rivestiti di BME spesso avvia un'espansione di successo della coltura LTC-hPGCLC. D'altra parte, l'uso del terreno condizionato MMC-STO è assolutamente richiesto in tutta la coltura umana di PGCLC, sottolineando l'importanza del condizionamento continuo da parte delle cellule MMC-STO.
È importante mantenere una densità relativamente alta di colture di LTC-PGCLC su BME per sopprimere l'emergere di tipi di cellule indesiderate. Si raccomanda di far passare i PGCLC a più del 25% di confluenza. L'inoculazione di PGCLC a una densità inferiore aumenta il rischio di produrre cellule indesiderate. Poiché il tempo di raddoppio della popolazione di PGCLC umani è di circa 4,5 giorni41, il passaggio settimanale di routine è in genere adeguato per mantenere la coltura a lungo termine. Se un'ampia porzione di PGCLC si discosta dalle loro caratteristiche simili a PGC e se la tecnica di adesione differenziale o FACS è insufficiente per rimuovere le cellule indesiderate, prendere in considerazione l'inoculazione dello strato di alimentazione MMC-STO in pozzetti rivestiti di BME invece del rivestimento in gelatina e/o allungare la coltura di cellule MMC-STO a 3 o 4 giorni prima dell'inoculazione di PGCLC.
Le caratteristiche morfologiche e di espressione dei marcatori tra i tipi di cellule indesiderate variano in modo significativo, sebbene possano essere facilmente identificate con la microscopia standard a contrasto di fase (Figura 2). Le cellule che mostrano caratteristiche di crescita aggregate o aspetto appiattito si discostano dalle caratteristiche simili a PGC. L'espressione dei marcatori PGC standard come PRDM1 o TFAP2C è tipicamente diminuita in tali cellule indesiderate, sebbene non siano attualmente disponibili criteri chiari per distinguere la popolazione cellulare indesiderata dalla popolazione cellulare PGC-simile, che può essere confermata dalla colorazione in immunofluorescenza, FACS o RNA-seq a cellula singola. Ad oggi, l'identità o la rilevanza dei tipi di cellule non-PGC che emergono durante l'espansione di LTC-hPGCLC sono sconosciute.
Sebbene il metodo presentato in questo articolo utilizzi le celle dello strato di alimentazione STO, le celle SNL 76/7 possono essere utilizzate anche per la produzione del terreno condizionato e dello strato di alimentazione. Alcune colture di PGCLC sono state in grado di adattarsi alla coltura a lungo termine senza passare attraverso la coltura dipendente dall'alimentatore, soprattutto quando si inizia la coltura con un inoculo di grandi dimensioni (>100.000 cellule). D'altra parte, stabilire una coltura di LTC-PGCLC può essere difficile quando la dimensione iniziale è inferiore a 10.000 cellule. Sebbene i componenti chiave del mezzo condizionato STO siano stati precedentemente descritti, i componenti che supportano l'espansione a lungo termine del PGCLC non sono ancora stati identificati44.
Dichiarazioni
Gli autori non hanno conflitti di interesse da rivelare.
Ringraziamenti
Questo lavoro è stato supportato dalle sovvenzioni NIH R01ES035401, R21ES034468, R21HD110839, R21DA059789 e R21CA290650 a TS. TS è anche un beneficiario di una sovvenzione della John Templeton Foundation 63299 (PI, John McCarrey, Università del Texas, San Antonio). Una parte dello studio presentato è stata supportata anche dal James Patrick Stowe Fund (PI, Philip Saylor, Massachusetts General Hospital).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Piastre per colture cellulari a 6 pozzetti | Corning | 3506 | |
| Accutase | Tecnologie cellulari innovative | AT104 | Conservare a -20 ° C per 6 mesi. |
| Piastre di plastica da 10 cm trattate con colture cellulari (piastre P10) | Corning | 353003 | |
| Piastre in plastica da 15 cm trattate con colture cellulari (piastre P15) | Corning | 353025 | |
| Fiala criogenica | Millipore-Sigma | CLS431417 | |
| CryoStor CS10 | Tecnologie STEMCELL | 7930 | Conservare a 4 °C. |
| Dimetilsolfossido | Fisher Scientifico | BP231-1 | Conservare a temperatura ambiente. Grado di coltura cellulare. |
| Dulbecco; s Soluzione salina tamponata con fosfato (senza Ca/Mg) (DPBS) | Gibco | 14190144 | Conservare a temperatura ambiente. Grado di coltura cellulare. |
| Il mezzo minimo essenziale di Dulbecco (MEM di Dulbecco) | Corning | 10-013-CM | Conservare a 4 °C. nUtilizzare un terreno contenente 4,5 g/L di glucosio, 1X L-glutammina e 1X piruvato di sodio. |
| Siero fetale di vitello | Siero CPS | FBS-500 | Conservare a -20 ° C per 12 mesi. |
| Gelatina | Tecnologie STEMCELL | 7903 | 0,1% in acqua. Sterile. |
| Il Miminum Essential Medium di Glasgow (MEM di Glasgow) | Gibco | 11710-035 | Conservare a 4 °C. |
| Fattore di crescita dei fibroblasti ricombinanti umani 2 (FGF2) | PeproTech | 100-18B | Conservare a -80 C per 3 mesi. |
| Fattore di cellule staminali ricombinanti umane (SCF) | PeproTech | 300-07 | Ricostituire in acqua seguendo le istruzioni del produttore. Conservare a -80 C per 3 mesi. |
| Sostituzione del siero knockoutq | Gibco | 10828-028 | Conservare a -20 ° C per 6 mesi. |
| Matrigel (cellule staminali embrionali umane qualificate) | Corning | 354277 | |
| Terreno essenziale minimo Aminoacidi non essenziali (MEM NEAA) | Gibco | 11140-050 | Conservare a 4 °C. |
| Mitomicina-C (10 mM in acqua) | Millipore-Sigma | Codice: M5353 | Sciogliere la mitomicina-C (MMC) in acqua e filtrare in modo sterile (dimensione dei pori di 0,22 mM). Conservare 100 mL di aliquote a -20 gradi C per 6 mesi. Per scongelare l'MMC congelato, scongelare i cristalli viola in un bagno di acqua calda (>60 ° C) in soluzione violacea scura. |
| Penicillina-Streptomicina (100X) | Gibco | 15140-122 | Conservare a 4 °C. |
| Provette da centrifuga in plastica (15 mL) | Corning | 352196 | |
| Provette da centrifuga in plastica (50 mL) | Corning | 352070 | |
| Piruvato di sodio (100X) | Gibco | 11360-070 | Conservare a 4 °C. |
| Fibroblasti embrionali di topo STO | ATCC | CRL-1503 | |
| Blu di tripano (0.4%) | Fisher Scientifico | T10282 | Conservare a temperatura ambiente. |
| TrypLE Express | Gibco | 12604-013 | Conservare a temperatura ambiente. |
| Y-27632 (10 mM in acqua) | Tocris | 1254 | Sciogliere l'Y-27362, che è un inibitore del ROCK, in acqua fino a 10 mM e con filtro sterile (dimensione dei pori di 0,22 mM). Conservare 100 mL di aliquote a -20 gradi C per 6 mesi. |
Riferimenti
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo