Questo protocollo dettaglia un saggio quantitativo di defecazione nel giovane mutante RAC1/ CED-10 Caenorhabditis elegans, fornendo un modello semplice per studiare gli stadi del morbo di Parkinson prodromico. Supera i limiti di altri modelli animali e facilita il test di strategie terapeutiche mirate alla patologia parkinsoniana precoce.
Articolo metodologico
Valutazione della motilità gastrointestinale nei mutanti RAC1/CED-10 di Caenorhabditis elegans come strumento per studiare il morbo di Parkinson precoce
In questo articolo
Sommario
Abstract
Il morbo di Parkinson (PD) è tra i disturbi neurodegenerativi più diffusi ed è diagnosticato in base ai sintomi motori che emergono dopo una significativa perdita di neuroni dopaminergici. I sintomi non motori, come la stitichezza, sono i più comuni e spesso compaiono precocemente, indicando l'insorgenza della malattia. Molti modelli animali vengono utilizzati per studiare le malattie neurodegenerative, ma la maggior parte si concentra sulle fasi avanzate. Poiché è difficile determinare l'inizio esatto della neurodegenerazione, nessun singolo modello rappresenta completamente l'intera progressione della malattia. I modelli mammiferi sono particolarmente costosi e richiedono molto tempo a causa dei loro lunghi cicli di vita. Al contrario, Caenorhabditis elegans (C. elegans), un nematode trasparente di 1 mm con un ciclo di vita e riproduttivo breve (~3 settimane e 3 giorni), consente esperimenti più rapidi ed economici grazie al suo rapido ricambio di generazione. Il programma motorio di defecazione in C. elegans consiste in cicli ritmici regolati da una complessa rete genetica a cui partecipano le GTPasi Rho/rac, e RAC1 (CED-10 in C. elegans) è tra questi. Abbiamo dimostrato che i mutanti RAC1/CED-10 presentano morfologia e funzione GABAergica compromesse, il che comporta cicli di defecazione interrotti. Qui presentiamo il protocollo sperimentale per misurare la stitichezza in RAC1/CED-10 C. elegans nelle fasi iniziali. Oltre a servire come strumento predittivo per indagare i primi sintomi della DP prima della neurodegenerazione, questo protocollo potrebbe anche essere utilizzato come punto finale precoce per valutare l'efficacia dell'intervento farmacologico. Poiché questi cambiamenti non sono specifici per una malattia, riteniamo che questo modello rappresenti uno strumento prezioso per indagare le alterazioni che si manifestano precocemente in altre malattie.
Introduzione
Il morbo di Parkinson (PD) è il secondo disturbo neurodegenerativo più comune e una delle principali cause di disabilitàneurologica 1,2. I suoi segni patologici includono corpi di Lewy e neuriti di Lewy, composti principalmente da α-sinucleina, insieme alla perdita neuronale nella sostanza nera e in altre regionicerebrali 3.
Clinicamente, la DP è classificata come un disturbo del movimento, ma è anche caratterizzata da un ampio spettro di sintomi non motori. I deficit motori derivano dalla degenerazione dei neuroni dopaminergici nella substantia nigra e dalla deplezione striatale della dopamina. Tuttavia, i sintomi non motori - come stitichezza, ansia e disturbo comportamentale del sonnoREM 4 - spesso emergono anni prima, durante la fase prodromica, quando la neurodegenerazione colpisce strutture estranegrali (ad esempio, tronco encefalico, sistema olfattivo e vie autonome)5.
Una delle principali sfide nella ricerca sulla DP è l'inizio clinico ritardata: i sintomi motori compaiono tipicamente solo dopo che il 60%-80% dei neuroni dopaminergici è statoperso, momento in cui l'intervento terapeutico diventa meno efficace. I primi sintomi non motori (ad esempio, disfunzione autonoma) potrebbero fungere da biomarcatori per la PDprodromatica 6, ma la loro non specificità complica una diagnosi definitiva. Date queste limitazioni, i modelli animali sono essenziali per studiare le fasi iniziali della DP, standardizzare la caratterizzazione dei sintomi e sviluppare terapie neuroprotettive – attualmente carenti – che potrebbero rallentare o prevenire la neurodegenerazione.
RAC1/CED-10 I mutanti di C. elegans riassumono le caratteristiche chiave delle prime e finali fasi di PD6. Abbiamo precedentemente dimostrato che l'attività di RAC1 è fondamentale per la sopravvivenza e la funzione dei neuroni dopaminergici, proteggendo contro la tossicità indotta dallaα-sinucleina 7. Inoltre, i mutanti RAC1/CED-10 mostrano alterazioni fenotipiche simili alla precoce DP, inclusi disregolazione del metabolismo lipidico e disfunzione GABAergica, quest'ultima riflessa in cicli di defecazioneinterrotti 6. Questi risultati stabiliscono i mutanti RAC1/CED-10 come modello trattabile per studiare la fisiopatologia pre-degenerativa della PD.
Qui descriviamo un saggio ottimizzato per la defecazione dei mutanti RAC1/CED-10, che cattura quantitativamente la dismotilità intestinale, consentendo uno studio sistematico delle caratteristiche gastrointestinali durante la fase prodromica della DP.
Protocollo
NOTA: Tipo selvaggio: N2 Bristol è stato utilizzato. Modello del primo PD RAC1/CED-10: Il ceppo BR3579 è genotipizzato ced-10(n3246) ed è chiamato qui RAC1/CED-10. Fu un generoso dono del dottor Ralf Baumeister (Università Albert-Ludwig, Friburgo/Breisgovia, Germania). Questa variante di ced-10 (N3246) è un allele forte. La mutazione ced-10(n3246) è una transizione da G-A che comporta un cambiamento della glicina 60 di CED-10 in arginina (G60R), che comporta una funzione alteratanon nulla 8,9. La gravità di questo allele è più forte rispetto ad altri alleli ced-10. Gli ermafroditi furono utilizzati durante tutto lo studio.
1. Manutenzione dei vermi
- Versare 25 mL di mezzo di crescita al nematode (NGM) in piastre di Petri da 150 mm e lasciare che l'agar si solidifichi. Seminare ogni piastra con 500 μL di una coltura OP50 di Escherichia coli , distribuendo la sospensione uniformemente sulla superficie dell'agar. Incubare le piastre a 30 °C durante la notte per permettere la crescita batterica. Prepara i piatti 24 ore prima dell'uso.
2. Ottenere vermi sincronizzati nella quarta fase dello sviluppo larvale (L4)
- Eseguire misurazioni della motilità intestinale con vermi sincronizzati allo stadio larvale L4. Per ottenere vermi in questa fase di sviluppo, si segue il protocollo di sbiancamento descritto di seguito (adattato dall'11) con lievi modifiche relative al fenotipo11 RAC1/CED-10.
- Aggiungi 10 adulti gravidi alle lastre NGM con Escherichia coli OP50, preparata come nel primo passo, per deporre le uova e lasciare che i vermi crescano per 3 giorni. In alternativa, trasferire un blocco di agar da una piastra NGM contenente una popolazione mista a una nuova piastra NGM. In questo caso, il controllo del ciclo di vita non è preciso come quando si usano 10 adulti gravidi. Dopo 80 ore di vita è stata osservata una popolazione mista di ermafroditi C. elegans con adulti gravidi nel caso dei tipi selvatici. I mutanti RAC1/CED-10 hanno mostrato 6 ore di svilupporitardato 6, quindi gli adulti gravidi sono apparsi a 86 ore.
NOTA: Gli adulti gravidi sono identificati perché contengono uova all'interno. - Lavare piastre con 10 mL di M9 per recuperare gli adulti gravidi in tubi da 15 mL (etichettati con il genotipo corrispondente).
- Granula i vermi centrifugandoli per 2 minuti a 2000 x g (~1500 giri al minuto su una centrifuga da tavolo standard) a temperatura ambiente, elimina il sovrandante e aggiungi 10 mL di tampone M9 fresco.
NOTA: Sebbene funzioni a temperatura ambiente, abbiamo osservato risultati migliori centrifugando a 10 °C. - Esegui il passo 2.4 3 volte o finché il buffer non appare libero da batteri (supernadante trasparente). La presenza di batteri può essere dedotta dal fatto che il soprantantante appare leggermente giallastro e torbido.
- Aggiungi il buffer M9 a un volume totale di 3,5 mL.
NOTA: Secondo la nostra esperienza, l'acqua distillata sterile - o anche acqua del rubinetto - può essere utilizzata in questa fase senza introdurre contaminazioni, poiché il successivo processo di sbiancamento elimina eventuali microrganismi. Tuttavia, raccomandiamo l'acqua tampone M9 o sterile per garantire la riproducibilità in laboratorio. - Mescola 0,5 mL di NaOH 5M con 1 mL di candeggina per preparare la soluzione sbiancante. Prepara questa soluzione fresca poco prima dell'uso. Aggiungi 1,5 mL della miscela al tubo della centrifuga contenente i vermi.
- Agitare vigorosamente i tubi durante la sbiancatura monitorando la distruzione del tessuto adulto al microscopio dissezionale. Ferma la reazione non appena rimangono visibili solo tracce di adulti.
NOTA: Il trattamento di sbiancamento lisa vermi adulti e larve, mentre gli embrioni rimangono vitali perché il loro guscio d'uovo li protegge dalla candeggina. Questo passaggio è fondamentale per ottenere i sopravvissuti. Un tempo in eccesso può uccidere tutti i vermi. L'uso di un vortice è fortemente consigliato, ma poi controlla la distruzione della cuticola ogni 3 minuti. I mutanti RAC1/CED-10 sono più sensibili alla candeggina. Monitorare la disintegrazione del tessuto adulto ogni 2 minuti e non superare mai gli 8 minuti. - Ferma la reazione aggiungendo un buffer M9 per riempire il tubo (~15 mL). Centrifuga rapidamente (dato che il trattamento può essere ancora attivo) per 1 minuto a 2.000 x g e elimina il surnadante.
- Lava il pellet 3 volte riempiendo il tubo con il buffer M9 e centrifugandolo come descritto sopra. Dopo il lavaggio finale, rimuovere con cura il sovrantato finché non restano circa 0,1 mL.
- Aggiungi queste uova a un nuovo tubo da 15 mL e aggiungi M9 a 5 mL. Incubare a temperatura ambiente con una rotazione delicata. Dovrebbe essere fornita una corretta aerazione.
NOTA: Abbiamo ottenuto buoni risultati di sincronizzazione usando acqua del rubinetto invece di M9 in tutti i passaggi tranne il passo 2.9. - Dopo 24 ore, ferma la rotazione e metti in pellet i vermi centrifugando a 2.000 x g per 1 minuto a 10 °C.
- Placca 30-50 μL di vermi pelletati dei relativi genotipi in piastre NGM da 150 cm seminate con OP50 e marcate con il genotipo corrispondente. Diversi vermi RAC1/CED-10 sono apparsi morti, come proprietà intrinseca del genotipo RAC1/CED-10 (osservazione personale). Di conseguenza, raddoppiare il volume di questi mutanti e monitorarli il giorno successivo.
NOTA: Il volume di vermi in placca dipende dalla resa del protocollo di sbiancatura. Non superare mai il numero di 250 vermi per piatto, perché il cibo finirà più velocemente e i vermi potrebbero entrare in fame. La differenza di tempo di sviluppo potrebbe essere saggiamente utilizzata per avere il tempo di registrare i primi cicli di defecazione dei vermi di tipo selvatico e poi di RAC1/CED-10 (vedi sezione successiva). - Controlla la presenza di vermi selvatici allo stadio L4 dello sviluppo larvale dopo 34 ore di incubazione. La stessa fase di sviluppo per i vermi RAC1/CED-10 sarà raggiunta in 40 oree 6. Distinguere i vermi L4 da quelli L3 e giovani adulti misurandone la dimensione (~650 μm) e controllando la struttura della vulva12 simile a quella lunare.
3. Registrazione della motilità intestinale
- Lavare le piastre con 3 mL di M9 per recuperare i vermi L4 in due tubi centrifughe da 1,5 mL.
- Centrifugare a 2.000 x g per 1 minuto (Figura 1A), eliminare il soprannatante e aggiungere 1 mL di tampone M9 fresco. Ripeti il passaggio 3 volte.
- Impiatta questi viti lavati in una piastra NGM senza OP50 (Figura 1B). Con questi passaggi di lavaggio e placcatura finali, elimina l'eccesso di batteri.
- Trasferire i vermi singolarmente su piastre a 12 pozzi con 5 μL seminati di batteri OP50 (Figura 1C). Permettere ai vermi di adattarsi per 1 ora a 20 °C.
NOTA: Questi piatti sono stati seminati e lasciati asciugare prima che venissero aggiunti i vermi. È meglio non preparare queste piastre in anticipo perché la crescita eccessiva di batteri può rendere difficile la visualizzazione del ciclo della defecazione. - Posiziona le piastre a 12 pozzetti con i vermi sotto il microscopio, localizza un verme e inizia a registrare. Registrare i cicli di defecazione per 15 minuti (15 cicli; Figura 1D). Usa un obiettivo 5x per fare immagini con una fotocamera che offre una risoluzione a 12 bit e un frame rate di 60 frame al secondo (fps). Esegui l'acquisizione video utilizzando lo strumento di taglio in Windows. Avvia la registrazione quando rilevi il primo ciclo di defecazione.
NOTA: Se il microscopio è collegato a un computer, puoi registrare direttamente lo schermo con lo strumento di taglia. Raccomandiamo vivamente di avere un cronometro computerizzato per il monitoraggio del ciclo della defecazione. Clicca il pulsante Giri ogni volta alla fine del ciclo di defecazione.
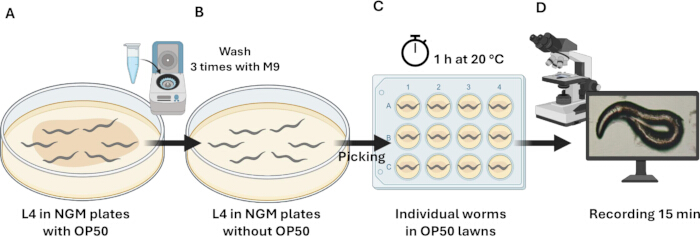
Figura 1: Diagramma schematico del protocollo sperimentale per misurare la motilità intestinale. (A) Vermi sincronizzati allo stadio L4 di sviluppo. Questi vermi sono stati raccolti e lavati 3 volte con M9. (B) I lombrini lavati sono stati placcati in piastre NGM senza OP50. (C) I vermi venivano raccolti singolarmente in una piastra a 12 pozzi con OP50 e lasciati strisciare per 1 ora a 20 °C. Durante questo periodo, i vermi si adattano al nuovo mezzo e si rilassano dallo stress del trasferimento. (D) Sono stati registrati singoli vermi per 15 minuti per analizzare la motilità intestinale. Clicca qui per visualizzare una versione più grande di questa figura.
4. Analisi del ciclo della defecazione
NOTA: In C. elegans, il programma motorio della defecazione comprende cicli ritmici orchestrati da una complessa rete genetica. Questo programma consiste in tre contrazioni muscolari sequenziali e distinte, ciascuna facilmente rilevabile al microscopio disseczionale. Il primo passo prevede la contrazione dei muscoli posteriori della parete corporea (pBoc), seguita dalla contrazione dei muscoli anteriori della parete corporea (aBoc) e infine dalle contrazioni muscolari enteici (EMC), che portano all'espulsione del contenuto intestinale (Exp)13 (Figura 2).
- Eseguire esperimenti a 20 °C. Una volta registrati tutti i video, inizia l'analisi dei dati.
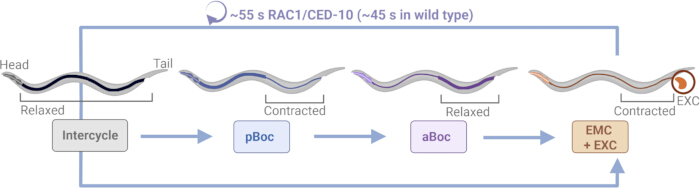
Figura 2: Ciclo di defecazione nei mutanti RAC1/CED-10 di C. elegans. Una rappresentazione diagrammatica del ciclo di defecazione di C. elegans nei nematodi mutanti RAC1/CED-10. pBoc indica la contrazione della muscolatura della parete posteriore del corpo; aBoc indica la contrazione della muscolatura della parete anteriore del corpo, mentre EMC + EXC corrisponde all'espulsione del contenuto intestinale. Negli animali selvatici che si nutrono indisturbati, questo programma motorio viene avviato ogni 45 secondi con una regolaritàmolto elevata di 18. I vermi sono orientati con la testa rivolta a sinistra e la coda a destra. L'escrezione (EXC) è evidenziata in arancione. Questa cifra è stata modificata da6. Clicca qui per visualizzare una versione più grande di questa figura.
5. Analisi video
- Apri un video con un programma di lettura video.
NOTA: Abbiamo usato Windows Media Player Legacy v12. Possono essere utilizzati altri programmi per il lettore video. - Prepara il file del foglio di calcolo. Apri il file Template fornito (Tabella Supplementare 1). Inserisci il nome del file video e la dimensione del worm (opzionale) nei campi designati, poi avvia la riproduzione video.
- Definisci e registra la prima escrezione. Definisci il tempo zero come il momento in cui inizia la registrazione quando i vermi vengono posti sotto il microscopio. Osserva la regione dell'ano del verme e identifica il primo evento di escrezione. Annota il tempo (in s) di questo evento nella cella etichettata Prima Escrezione del foglio di calcolo.
NOTA: Il tempo della prima escrezione varierà tra i vermi (ad esempio, Verme 1 = 5 s, Verme 2 = 26 s, Verme 3 = 34 s) perché il tempismo dell'ultima escrezione prima della registrazione è sconosciuto. - Registra gli eventi di escrezione successivi: Continua la riproduzione e documenta ogni uscita successiva in modo sequenziale (Escrezione 2, Escrezione 3, ecc.) fino a quando non sono state introdotte un totale di 16 escrezioni.
- Calcola gli intervalli di ciclo: Il modello determina automaticamente l'intervallo tra le escrezioni consecutive (ad esempio, Escrezione 2 - Escrezione 1; Escrezioni 3 - Escrezioni 2; ...). Usa questi intervalli come durata del ciclo.
- Determina il tempo totale del ciclo: una volta registrati i 16 eventi, il modello calcola il tempo necessario affinché il worm completi i 15 cicli. Questo valore è visualizzato nella cella etichettata Tempo Totale del foglio di calcolo. Ripeti questo processo per ogni verme.
NOTA: Attualmente, nessun software automatizzato rileva in modo affidabile i cicli di defecazione in C. elegans. Sebbene piattaforme come WMicrotracker siano efficaci per quantificare i parametri di movimento (velocità, distanza percorsa, numero di vermi o dimensionecorporea 14,15), non forniscono la risoluzione necessaria per monitorare la regione dell'ano e identificare eventi di contrazione o excrezione. Pertanto, la valutazione manuale rimane necessaria, simile alla limitazione osservata negli saggi del pompaggiofaringeo 16.
6. Misurazioni della lunghezza del ciclo
- Punteggio la durata del ciclo come il tempo tra due escrezioni consecutive. Calcolare sottraendo il tempo finale di un ciclo dal tempo finale del ciclo successivo, come spiegato nella Tabella 1 e nell'Equazione 1.
Durata del ciclo (n) (in secondi) = Escrezione temporale (n+1) - Ecrezione temporale (n) Equazione 1
Durata del ciclo (1st) = 66 s ((tempo espulso 2 = 71 s) - (tempo espulso 1 = 5 s)) - Per ogni set di dati, calcola il periodo medio del ciclo di defecazione, la deviazione standard (SD) e l'errore standard della media (SEM) utilizzando un software di analisi statistica.
7. Ritmicità o regolarità del ciclo della defecazione
- Il coefficiente di variazione (CV) viene utilizzato per descrivere la variabilità relativa e spiega come i dati sono distribuiti rispetto alla media. È stato utilizzato in passato come indicatore della regolarità del ciclo di defecazione in C. elegans6. Calcola il CV per ogni verme applicando l'Equazione 2.
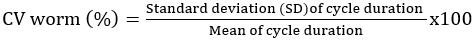 Equazione 2
- Per ogni deformazione di C. elegans , calcola la media CV, la deviazione standard (SD) e l'errore standard della media (SEM) utilizzando un software di analisi statistica.
8. Analisi statistica
- Condurre esperimenti su tre repliche indipendenti, con cinque vermi analizzati per condizione. Valutare la normalità dei dati utilizzando il test di Shapiro-Wilk (α=0,05), raccomandato per n < 50.
- Poiché le misurazioni della lunghezza del ciclo non seguivano una distribuzione normale, l'analisi è stata effettuata con il test di Mann-Whitney non parametrico, molto adatto a rilevare differenze nelle mediane con campioni di dimensioni piccole. Viceversa, i dati CV (%) sono normalmente distribuiti; analizzarli utilizzando un test t non accoppiato con la correzione di Welch per tenere conto delle varianze diseguali.
- Esegui tutte le analisi statistiche utilizzando software di analisi statistica. Per esperimenti che includono più di due ceppi, applicare un test alternativo, come l'ANOVA unidirezionale, con verifica continua della distribuzione del campione.
Risultati
Il test video descritto è stato implementato nel modello RAC1/CED-10 di C. elegans della precoce Parkinson per valutare quantitativamente la motilità intestinale. Dato il ritardo nello sviluppo dei mutanti RAC1/CED-10, le popolazioni sincronizzate sono state aggiustate per garantire confronti di stadio con i controlli di tipo selvatico. I singoli vermi sono stati registrati allo stadio L4 e sono stati analizzati 15 cicli di defecazione consecutivi per determinare la durata e la regolarità del ciclo. Questo approccio consente una misurazione accurata e ad alta risoluzione della funzione motoria intestinale e consente la rilevazione di sottili alterazioni non motorie associate ai fenotipi precoci della PD in C. elegans.
Ritardo nello sviluppo negli animali RAC1/CED-10 per esperimenti sincronizzati
Dato il ritardo nello sviluppo osservato nel mutante 6 di C. elegans RAC1/CED-10, gli esperimenti di sincronizzazione condotti in parallelo con animali selvatici richiedono un aggiustamento temporale. Per compensare questo ritardo e garantire confronti con stadi durante la registrazione video, gli animali RAC1/CED-10 sono stati placcati 6 ore prima rispetto ai controlli di tipo selvatico nello stesso giorno.
Vermi RAC1/CED-10 per indagare alterazioni della defecazione associate al morbo di Parkinson
La stitichezza può essere rilevata già due decenni prima della diagnosi di Parkinson motore, rendendola uno dei primi segni riconoscibili che indicano l'insorgenza dellamalattia 17. Abbiamo già dimostrato che il modello RAC1/CED-10 presenta alterazioni non motorie nello stadio di sviluppo L4, prima dell'insorgenza della neurodegenerazione6, e la motilità intestinale alterata è una di queste. Come descritto nel Protocollo, i singoli vermi sono stati registrati allo stadio L4. La Figura 3 mostra un worm rappresentativo RAC1/CED-10.
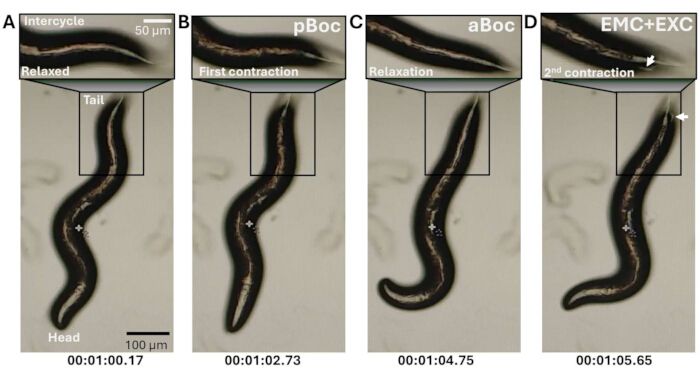
Figura 3: Ciclo di defecazione di C. elegans nelle immagini degli animali mutanti RAC1/CED-10. Ciclo di defecazione nei mutanti RAC1/CED-10 nelle immagini. I vermi sono orientati con la testa in giù. Le regioni della coda, evidenziate in caselle orizzontali, mostrano la sequenza dei passaggi motori della defecazione come descritto in6 e schematizzato nella Figura 2: (A) tratto anteriore rilassato, (B) contrazione posteriore del corpo (pBoc), (C) contrazione anteriore del corpo (aBoc) e (D) contrazione del muscolo enterico con espulsione (EMC+EXC). La durata del ciclo è indicata di seguito. Le frecce segnano il materiale espulso. Clicca qui per visualizzare una versione più grande di questa figura.
I due parametri utilizzati per analizzare la motilità intestinale sono la durata del ciclo e la regolaritàdel ciclo 13. Per prima cosa, abbiamo misurato 15 cicli di ciascun verme, rappresentati nella Figura 4.
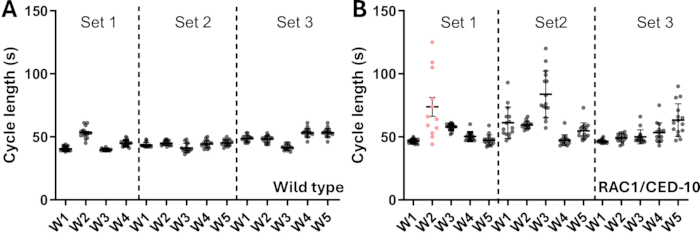
Figura 4: Durata del ciclo degli individui selvatici (A) e RAC1/CED-10 (B). Le impostazioni 1, 2 e 3 indicano repliche indipendenti. Ogni punto rappresenta un ciclo di defecazione, e ci sono 15 cicli per verme. Il W2 rosa in B è stato scartato per ulteriori analisi perché non ha completato i 15 cicli. W = verme. In questa figura non è stata effettuata un'analisi statistica. Clicca qui per visualizzare una versione più grande di questa figura.
I singoli vermi venivano designati con W (W1, W2, ecc.) tra le diverse repliche sperimentali (Set = 1, 2, 3). Per ogni verme (W), sono state effettuate 15 misurazioni nell'arco di 15 minuti. Nel primo gruppo di esperimenti su animali selvatici (Figura 4A, Set 1), un verme è stato escluso perché era un giovane adulto invece che un L4. Nel caso di RAC1/CED-10, un worm è stato scartato perché, dopo l'elaborazione dei dati, non ha completato 15 cicli entro 15 minuti. Per questo motivo, consigliamo di utilizzare l'applicazione clock per sapere quanti cicli sono stati completati, poiché i worm RAC1/CED-10 erano piuttosto irregolari.
Sulla base di questi valori individuali, sono state calcolate la media e la deviazione standard della durata del ciclo per vermi di tipo selvatico e mutanti RAC1/CED-10 (Tabella 1 e Figura 5). Come giàpubblicato in precedenza 6, i vermi RAC1/CED-10 presentano cicli più lunghi e meno regolari rispetto ai vermi di tipo selvatico. I vermi di tipo selvatico mostrano cicli più brevi (46 s ± 5 s) rispetto ai mutanti RAC1/CED-10 (55 s ± 12 s).
Tabella 1: Dataset rappresentativo delle misurazioni del ciclo di excrezione per singoli vermi. La tabella riassume i dati rappresentativi raccolti da tre animali. Per ogni worm, il dataset include l'identificatore del file video, la dimensione del corpo (μm), i punti temporali (in s) corrispondenti a singoli eventi di escrezione, le durate dei cicli calcolate su 15 cicli consecutivi e la durata totale della registrazione. La durata del ciclo è stata ottenuta sottraendo punti consecutivi di tempo di escrezione (ad esempio, per il verme VID_154028, la prima durata del ciclo era di 66 s, calcolata come 71-5 s). Le voci rimanenti illustrano misurazioni simili per due vermi aggiuntivi, fornendo esempi di variabilità tipica all'interno del dataset. Clicca qui per scaricare questa tabella.
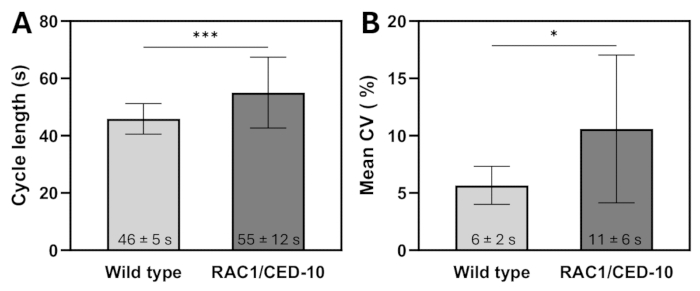
Figura 5: Parametri del ciclo di defecazione. (A) Durata del ciclo di defecazione e (B) Velocità media di CV di vermi selvatici e RAC1/CED-10. I dati rappresentano la media ± SD. N=3 n=5. Il test di Mann-Whitney non parametrico è stato applicato per la durata del ciclo di defecazione. Il test t non accoppiato con correzione di Welch è stato applicato per i dati della media CV. p < 0,001 * p < 0,05. Vedi il passo 8 per informazioni sull'analisi statistica. Clicca qui per visualizzare una versione più grande di questa figura.
La regolarità del ciclo viene calcolata usando il coefficiente medio di variazione (CV), che è la media dei coefficienti di variazione per ciascun verme nell'esperimento18. La Figura 5B mostra una maggiore variabilità negli animali mutanti RAC1/CED-10 rispetto agli animali selvatici. La media della CV è del 6% ± 2% nei tipi selvatici, rispetto all'11% ± 6% nei mutanti RAC1/CED-10.
Tabella supplementare 1: Modello per il calcolo della durata del ciclo di defecazione in Caenorhabditis elegans. Gli utenti dovrebbero inserire il nome di ciascun file di worm nella prima colonna e possono facoltamente registrare la lunghezza del corpo del worm. Il tempo (in s) corrispondente a ogni evento di escrezione (Escrezione 1-16) viene quindi inserito in sequenza, come determinato dalla riproduzione video. Il modello calcola automaticamente l'intervallo tra le escrezioni consecutive (Ecrezione temporale N - Ecrezione temporale N-1), rappresentando la durata del ciclo di defecazione. Una volta inseriti 16 eventi di escrezione, il tempo totale necessario per completare quindici cicli completi viene calcolato automaticamente e visualizzato nella cella del Tempo Totale (mm:ss). Clicca qui per scaricare questo file.
Discussione
C. elegans come potente modello per lo studio della PD prodromica
Sebbene la maggior parte dei modelli di malattie neurodegenerative si concentri sulla patologia in stadioavanzato 19, studiare l'insorgenza precoce della malattia rimane tecnicamente una sfida. I modelli tradizionali di mammiferi, come topi, ratti o primati, sono vincolati da lunghi cicli di vita e costi elevati. Il nematode microscopico C. elegans supera queste limitazioni grazie alla sua durata di vita di 3 settimane, al ciclo riproduttivo di 3 giorni e alla trattabilità genetica, rendendolo un sistema ideale per studi efficienti e su larga scala sullaneurodegenerazione 6.
Il mutante RAC1/CED-10 di C. elegans offre tre vantaggi chiave per studiare la patogenesi precoce della PD. Innanzitutto, la sua precisa risoluzione temporale permette di monitorare eventi neurodegenerativi attraverso stadi di sviluppo bendefiniti 6. In secondo luogo, il modello offre eccezionale versatilità sperimentale grazie alla trattabilità genetica, a bassi requisiti di manutenzione e alla compatibilità ad altorendimento 6,7. In terzo luogo, poiché C. elegans manca di un omologo endogeno α-sinucleina, incluso nel modello RAC-1/CED-10, fornisce un vantaggio prezioso. I ricercatori possono esaminare meccanismi preclinici della PD senza interferenze α-sinucleine, che segnano stadipiù avanzati 6. Questo posiziona il modello come uno strumento eccellente per studiare gli eventi patogeni iniziali e per una successiva integrazione dell'espressione di α-sinucleina al fine di indagare la patogenesi avanzata. Infine, la conservazione evolutiva dell'omologia di CED-10 con RAC1 umano garantisce una rilevanza traslazionalediretta 10,20.
Il modello di C. elegans descritto qui è ben adatto per i saghifarmacologici 17,21. Poiché i mutanti RAC-1/CED-10 mostrano ritardi nello sviluppo, l'accecamento non è possibile nella fase iniziale, poiché la loro identità non può essere nascosta rispetto al tipo selvatico. Per gli screening farmacologici, tuttavia, il bias può essere minimizzato adottando un disegno in doppio cieco in cui lo sperimentatore che raccoglie i dati e chi li analizza restano ignari di tutte le variabili sperimentali.
La stitichezza colpisce quasi tutti i pazienti con DP durante la fase prodromica, spesso precedendo i sintomimotori 5. C. elegans offre vantaggi unici per studiare questa disfunzione gastrointestinale precoce. A differenza dei modelli di mammiferi che richiedono interventi invasivi, la trasparenza e la semplicità del nematode permettono un'osservazione non invasiva e in tempo reale del suo programma motorio di defecazione altamente stereotipato, una caratteristica fondamentale per quantificare i difetti di motilità intestinale. Il breve ciclo vitale e la ritmicità precisa della defecazione di C. elegans permettono un'analisi rapida e riproducibile dei deficit funzionali. Nei mutanti RAC1/CED-10, le deviazioni nel tempismo della defecazione riflettono fenotipi simili alla stitichezza osservati nel prodromale PD6. Questi risultati forniscono un quadro fondamentale per una successiva validazione nei mammiferi complessi (ad esempio, topi, primati) collegando direttamente la segnalazione RAC1 alla disfunzione enterica.
Oltre alla sua rilevanza meccanicistica, il modello RAC1/CED-10 offre anche un'utilità traslazionale. Il test di defecazione è semplice, riproducibile e scalabile, rendendolo adatto per lo screening antidroga nelle prime fasi iniziali. I composti che normalizzano il tempismo o la regolarità del ciclo possono essere rapidamente prioritizzati per i test in modelli mammiferi, fornendo un filtro economico per i candidati terapeutici. Poiché la disfunzione gastrointestinale è comune in diverse condizionineurodegenerative4, questo saggio può essere applicato anche oltre la DP, fungendo sia da strumento di scoperta sia da ponte traslazionale verso la ricerca preclinica.
Fasi critiche nel protocollo
Presentiamo una metodologia raffinata per studiare la dismotilità intestinale nei mutanti RAC1/CED-10, un fenotipo chiave non motorio rilevante per la DP prodromica. Pur basandosi sui saggi di defecazioneconsolidati 18,22, questo protocollo affronta sfide uniche poste dai mutanti RAC1/CED-10 per garantire risultati robusti e riproducibili.
Le principali adattazioni per i mutanti RAC1/CED-10 sono le seguenti:
Aggiustamenti di sincronizzazione: i mutanti RAC1/CED-10 mostrano una fecondità ridotta rispetto ai ceppi di tipo selvatico (osservazione personale). Per compensare la minore resa dei discendenti, applicare le seguenti modifiche durante la sincronizzazione: Metodo del blocco di placche - utilizzare un inoculo più grande, circa 2 volte il volume usato per ceppi di tipo selvatico, per tenere conto della maggiore variabilità dello sviluppo. Metodo adulto gravido - Trasferire 15-20 adulti (contro i standard 10) per garantire un numero sufficiente di embrioni per gli esperimenti successivi.
Sensibilità alla candeggina: Gli embrioni dei mutanti RAC1/CED-10 mostrano una maggiore sensibilità al trattamento con ipoclorito. Per minimizzare i danni, ridurre il tempo di esposizione alla candeggina del 20%-30% rispetto ai protocolli di tipo selvatico e verificare microscopicamente l'integrità dell'embrione dopo il trattamento.
Considerazioni sul ritardo dello sviluppo: i mutanti RAC1/CED-10 maturano più lentamente rispetto ai vermiselvatici 10. Per ottenere una corretta sincronizzazione delle registrazioni, si iniziano le analisi video con vermi di tipo selvatico per stabilire un riferimento temporale e registrare i mutanti in stadi morfologici corrispondenti (ad esempio, morfologia vulvale) piuttosto che per età cronologica.
Motivazione del flusso di lavoro: Condurre esperimenti iniziali con C. elegans di tipo selvatico controlla la variabilità ambientale e fornisce un riferimento per i ritmi normali di defecazione. A causa dei ritardi nello sviluppo nei mutanti RAC1/CED-10-10, i programmi di registrazione dovrebbero essere adattati per dare priorità ai confronti con stadi matching (piuttosto che strettamente per età).
Considerazioni temporali specifiche per ceppo: I ritardi nello sviluppo nei mutanti richiedono una programmazione sperimentale flessibile, con un'enfasi sull'abbinamento degli stadi di sviluppo tra i genotipi invece di affidarsi esclusivamente all'età cronologica.
Limitazioni del modello del nematode
Sebbene C. elegans non abbia la complessità anatomica e la ridondanza dei percorsi dei sistemi mammiferi — una limitazione per alcuni studi traslazionali — la sua semplicità è vantaggiosa per esaminare funzioni biologiche discrete. Concentrarsi sulla motilità intestinale sfrutta questa forza, poiché la fisiologia snellita del nematode consente un'analisi precisa di parametri funzionali specifici. Sebbene studi complementari sui mammiferi siano necessari per la validazione terapeutica, C. elegans offre una piattaforma eccezionale per l'indagine meccanicistica dei processi biologiciconservati 21,23.
Il nostro modello manca inoltre di α-sinucleina endogena, utile per lo studio precoce della PD preclinica (morbo di Parkinson), una fase in cui la stitichezza può emergere come sintomoprodromico 3. La durata del ciclo di defecazione fornisce una misura oggettiva ad alto rendimento, ma riflette solo un aspetto della disfunzione gastrointestinale e non è specifica per la malattia.
Sebbene questo saggio non catturi l'aggregazione progressiva di α-sinucleina, la neurodegenerazione complessa o la patologia sistemica correlata all'età osservata nella PD5 umana, osserviamo alterazioni della funzione dopaminergica e GABAergica e una segnalazione interrotta diRac1 6, evidenziando la rilevanza meccanicistica di questo modello. Pertanto, rimane preziosa per analizzare i meccanismi neuro-gastrointestinali precoci correlati alla DP e le vie conservate.
Dichiarazioni
Gli autori non hanno nulla da rivelare.
Ringraziamenti
L'A.M.J. riconosce la borsa di studio per il dottorato (FPU18/05190) nell'ambito del dottorato in Biotecnologie presso l'Universitat Autònoma de Barcelona. AL e AMJ riconoscono il finanziamento PID2021-122645OB-100 e PID2024-1576370B-100 da MCIN/AEI//10.13039/501100011033/FEDER "Una manera de hacer Europa"; il Programma "Severo Ochoa" per i Centri di Eccellenza, in R&D CEX2019-000917-S (FUNFUTURE), CEX2023-001263-S (MATRANS42), Generalitat de Catalunya 2021S00446, e il programma di ricerca e innovazione Horizon Europe dell'Unione Europea sotto accordo di sovvenzione n. 101057527 (NextGEM). EDC riconosce il sostegno della sovvenzione APR-2024 (PMI24006), finanziata dalla Fundació d'Estudis Superiors en Ciències de la Salut (FESS) e dalla Fundació Institut de Recerca i Innovació en Ciències de la Vida i la Salut de Catalunya (IRIS-CC).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Piastre multipozzo Culture a 12 pozzi, trattate, sterili | Labbox | CCPP-012-100 | |
| Agar | VWR | AAA10752-0E | Per preparare le targhe NGM |
| Bactopeptone | VWR | 90000-264 | Per preparare le targhe NGM |
| Candeggina | Qualsiasi famiglia | Per il processo di sbiancamento | |
| CaCl2 | Labkem | CACH-02P-1K0 | Per preparare le targhe NGM |
| Centrifuga Sorvall ST8 | Sorvall | 15194923 | |
| Colesterolo | Sigma-Aldrich | C8667-25G | Per preparare le targhe NGM |
| Orologio | Finestre | V 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| Etanolo | Panreac | 131086.1214 | Per preparare le targhe NGM |
| Incubatore 20 & deg; C | Ecogen | CIR180 | |
| KH2PO4 | Sigma-Aldrich | P0662 | Per preparare il tampone M9 |
| KPO4 | Sigma-Aldrich | P5655 + P3786 | KH2PO4 + K2HPO4; Per preparare le targhe NGM |
| MgSO4 | Sigma-Aldrich | M7506 | Per preparare le targhe NGM; Per preparare il tampone M9 |
| Microscopio | Olympus | Olympus BX51 | |
| Na2HPO4 | Sigma-Aldrich | S9763 | Per preparare il tampone M9 |
| Na2HPO4 | Sigma Aldrich | 7558-79-4 | Per preparare il tampone M9 |
| NaCl | Sigma-Aldrich | S5886 | Per preparare le targhe NGM; Per preparare il buffer M9; LB |
| NaOH | Sigma-Aldrich | 567530 | Per il processo di sbiancamento; LB |
| Strumento di taglio in Windows | Finestre | v 11.2504.42.0 | |
| Triptone | CONDA | 1612 | LB |
| Estratto di lievito | CONDA | 1702 | LB |
Riferimenti
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
Ristampe e permessi
