Questo studio presenta un protocollo per valutare gli effetti della curcumina sul comportamento delle cellule di retinoblastoma attraverso la modulazione della via Wnt/β-catenina e l'espressione del miR-22.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo di ricerca
Regolazione mediata da miR-22 della segnalazione Wnt/β-catenina da parte della curcumina nel retinoblastoma
* These authors contributed equally
In questo articolo
Sommario
Abstract
Il retinoblastoma (RB) è un tumore maligno intraoculare comune che colpisce neonati e bambini, ma la sua eziologia e patogenesi precise rimangono incomplete. La curcumina, un polifenolo bioattivo, inibisce la progressione tumorale attraverso la modulazione mediata da microRNA della cascata di segnalazione Wnt/β-catenina. Questo studio mirava a chiarire come la curcumina media i suoi effetti antitumorali nella RB studiando la sua regolazione dell'espressione del miRNA-22 (miR-22) ed esplorando i meccanismi molecolari sottostanti. Due modelli di retinoblastoma convalidati (SO-RB50/WERI-Rb-1) sono stati trattati con curcumina a concentrazioni variabili. Per delineare la regolazione del miR-22 della segnalazione Wnt/β-catenina, le cellule bersaglio sono state trasdotte con un lentivirus mimico miR-22 o con un lentivirus di controllo non funzionale. I modelli tumorali xenotrapianto sono stati stabiliti nei topi utilizzando cellule RB umane per osservare gli effetti in vivo della curcumina sulle dimensioni del tumore, sull'espressione del miR-22 e sui livelli di proteina Wnt/β-catenina. La proliferazione, l'invasione e l'apoptosi cellulare sono state valutate utilizzando rispettivamente il saggio di doppia colorazione CCK-8, Transwell e Annexin V-APC-PI. I livelli di miR-22 sono stati quantificati mediante RT-PCR e i profili di espressione di Wnt1 e β-catenina sono stati determinati mediante analisi Western blot. Il trattamento con curcumina ha determinato una diminuzione della proliferazione e dell'invasività nelle cellule RB, migliorando al contempo l'apoptosi e aumentando l'espressione di miR-22. L'inibizione del miR-22 ha diminuito gli effetti della curcumina sulla via di segnalazione Wnt/β-catenina. Negli studi sugli xenotrapianti, la curcumina ha ridotto significativamente le dimensioni del tumore e ha migliorato l'espressione di miR-22 all'interno dei tumori, sopprimendo efficacemente la segnalazione Wnt/β-catenina. Questi risultati dimostrano che la curcumina inibisce la proliferazione e l'invasività delle cellule RB promuovendo l'apoptosi, principalmente mediata dalla sovraregolazione del miR-22 e dalla successiva inibizione della via Wnt/β-catenina.
Introduzione
Il retinoblastoma (RB), un tumore maligno pediatrico con elevata aggressività che insorge nei tessuti retinici, rappresenta una notevole minaccia per la salute, soprattutto per i bambini di età inferiore ai cinque anni. Le mutazioni genetiche, in particolare quelle che colpiscono il gene RB1, sono strettamente associate allo sviluppo di questa malattia1. Considerando la significativa prevalenza del retinoblastoma (RB) tra neonati e bambini, unita al fatto che ogni anno vengono segnalati circa 9000 nuovi casi, prevalentemente nei paesi a basso reddito e in via di sviluppo, una comprensione completa dei meccanismi della malattia è indispensabile per sviluppare strategie terapeutiche efficaci e migliorare gli esiti dei pazienti2. Nel corso degli anni, la ricerca sulla RB si è concentrata principalmente sulle alterazioni genomiche, in particolare nell'espressione del miRNA3. Certamente, il miR-34a e il miR-22 sono emersi come attori vitali nella tumorigenesi di RB 4,5. Tra questi miRNA, il miR-22 ha dimostrato il suo coinvolgimento nella tumorigenesi in diversi tumori 6,7,8, influenzando la proliferazione, l'invasione e la migrazione 6,9. Inoltre, ricerche precedenti hanno indicato una ridotta espressione di miR-22 in linee cellulari di RB sia di topo che di uomo, evidenziando ulteriormente il suo potenziale ruolo in questa malattia10.
La curcumina, uno dei principali curcuminoidi bioattivi nei rizomi della Curcuma longa, è stata un ingrediente fondamentale nella medicina tradizionale e nelle cucine asiatiche11. Il suo ricco profilo farmacologico, che comprende effetti antitumorali, antimicrobici, antinfiammatori, antiossidanti e neuroprotettivi, ha attirato un'attenzione significativa nella ricerca biomedica 12,13,14. Numerosi studi hanno esplorato il suo ruolo antitumorale nella RB, evidenziando la sua influenza su diverse vie di segnalazione, tra cui NF-κB15, JAK/STAT16 e MRP117. Rispetto a questi percorsi precedentemente studiati, l'asse curcumina-miR-22/Wnt/β-catenina può offrire un approccio più mirato e specifico, migliorando potenzialmente l'efficacia terapeutica e riducendo gli effetti off-target.
Studi precedenti hanno suggerito che la curcumina raggiunge effetti antitumorali modulando l'asse della via di segnalazione TET1/Wnt/β-catenina nel carcinoma epatocellulare18 e nelle cellule tumoralidel colon 19. Tuttavia, non è noto se la curcumina possa sopprimere la progressione tumorale nelle cellule RB influenzando la via di segnalazione Wnt/β-catenina. Studi recenti hanno riportato una diminuzione dell'espressione di miR-22 nelle cellule di retinoblastoma e nel carcinoma orale a cellule squamose legata ad alterazioni dell'attività della via di segnalazione Wnt/β-catenina20,21. Considerando l'applicabilità pratica, la curcumina mostra un'efficace attività antitumorale entro un intervallo di concentrazione definito (10-40 μM in vitro)15,22 e può essere somministrata in vivo con proprietà farmacocinetiche gestibili, facilitando la ricerca traslazionale. Pertanto, questo studio mira a stabilire un modello di RB per indagare se la curcumina aumenta i livelli di miR-22 e successivamente diminuisce l'attività di segnalazione Wnt/β-catenina, fornendo una strategia terapeutica potenzialmente più efficiente e clinicamente rilevante rispetto agli approcci convenzionali di modulazione NF-κB, JAK/STAT o MRP1.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
Tutte le procedure che coinvolgono gli animali sono state esaminate e approvate dal Comitato per l'etica e il benessere degli animali (AEWC) dell'ospedale oculistico di Tianjin (approvazione n. NKYY-DWLL-2023-054). I reagenti e le attrezzature utilizzate sono elencati nella Tabella dei Materiali.
1. Coltura cellulare
Le cellule delle linee di retinoblastoma umano WERI-Rb-1 e SO-RB50 sono state coltivate in terreno Eagle modificato di Dulbecco ad alto contenuto di glucosio integrato con il 10% di siero fetale bovino e l'1% di penicillina-streptomicina. Le cellule sono state seminate a una densità appropriata in fiasche di coltura e mantenute a 37 °C in un'atmosfera umidificata contenente %CO2. Il terreno è stato sostituito ogni 2-3 giorni e le cellule sono state fatte passare al 70%-80% di confluenza utilizzando la tripsinizzazione standard.
2. Esperimenti sugli animali
Sono stati utilizzati un totale di 48 topi nudi Balb/c privi di patogeni specifici (4 settimane di età, 16-18 g). Gli animali sono stati alloggiati in gabbie sterili e ventilate individualmente sotto flusso d'aria laminare con condizioni ambientali controllate di 26-28 °C e 40%-60% di umidità relativa. Il mangime, l'acqua e la lettiera sono stati sterilizzati prima dell'uso. Ai topi è stato concesso libero accesso a cibo e acqua e sono stati acclimatati per una settimana prima degli esperimenti.
3. Raggruppamento e trattamento degli animali
Per l'inoculazione del tumore sono state utilizzate cellule WERI-Rb-1 e SO-RB50 trasfettate stabilmente con una sequenza miR-22 mimica o con una sequenza di controllo negativa. Le cellule in fase di crescita logaritmica sono state raccolte, risospese in soluzione salina sterile tamponata con fosfato e regolate a una densità di 5 × 10⁷ cellule/mL. A ciascun topo è stato iniettato per via sottocutanea 0,1 ml di sospensione nell'arto anteriore destro. I topi sono stati divisi in modo casuale in sei gruppi (n = 6 per gruppo): gruppo modello, gruppo curcumina, gruppo miR-22 mimico, miR-22 mimico + gruppo curcumina, miR-22 gruppo di controllo negativo e miR-22 controllo negativo + gruppo curcumina. Nei gruppi che hanno ricevuto curcumina, ai topi sono state somministrate iniezioni intraperitoneali di 15 mg/kg di curcumina una volta al giorno a partire immediatamente dopo l'inoculazione delle cellule tumorali. I gruppi rimanenti hanno ricevuto volumi di DMSO uguali a quelli del controllo del veicolo.
4. Misurazione del peso e del volume del tumore
Il tasso di assunzione del tumore è stato di circa l'80%-90% nei topi nudi xenotrapiantati. La dimensione del tumore è stata misurata settimanalmente utilizzando un calibro digitale, con il diametro più lungo registrato come lunghezza (L) e il diametro più corto registrato come larghezza (W). Il volume tumorale è stato calcolato utilizzando la formula V = (L × W2)/2. I topi sono stati monitorati regolarmente per la crescita del tumore e lo stato di salute e sono stati applicati endpoint umani se i tumori superavano i 1.500 mm3 o se gli animali mostravano segni di sofferenza o perdita di peso. Alla fine della settimana 4, i topi sono stati soppressi mediante inalazione di CO2 seguita da lussazione cervicale per garantire la morte. I tumori sono stati sezionati e pesati immediatamente dopo la rimozione.
5. Trasfezione di microRNA
Per la trasfezione sono stati utilizzati oligonucleotidi sintetici, tra cui il miR-22 mimic, il controllo negativo, l'anti-miR-22 (20-metossi-modificato), il controllo negativo anti-miR, i siRNA specifici per Wnt1 e i siRNA di controllo. Le cellule al 70%-80% di confluenza sono state seminate in piastre a 6 pozzetti un giorno prima della trasfezione. La trasfezione è stata eseguita utilizzando un reagente a base di lipidi secondo le istruzioni del produttore. Per ogni pozzetto, gli acidi nucleici sono stati diluiti in terreno privo di siero e combinati con il reagente di trasfezione al rapporto raccomandato per formare complessi, che sono stati incubati per 15-20 minuti a temperatura ambiente prima di essere aggiunti goccia a goccia alle cellule in terreno completo. Il volume finale per pozzetto era di 2 mL. Dopo 6 ore di incubazione a 37 °C con CO2 al 5%, il terreno è stato sostituito con un terreno completo fresco. Le cellule sono state mantenute per 48 ore prima dei saggi successivi. L'efficienza della trasfezione è stata valutata mediante PCR quantitativa in tempo reale. Tre diversi siRNA che hanno come bersaglio Wnt1 (si-Wnt1-1: 5'-CCAAGAGTCTGCAACTGGTACTCGA-3'; si-Wnt1-2: 5'-CGAGAAACGGCGTTTATCTTCGCTA-3'; si-Wnt1-3: 5'-GCTTCCTCATGAACCTTCAACAAA-3') sono stati utilizzati singolarmente o come miscela equimolare per minimizzare gli effetti off-target.
6. Saggio del kit di conteggio delle cellule (CCK-8)
Le cellule sono state seminate in piastre da 96 pozzetti a una densità di 5 × 10³ cellule per pozzetto in 100 μl di terreno completo e lasciate aderire durante la notte. Dopo il trattamento con le concentrazioni indicate di curcumina per la durata specificata, 10 μL di soluzione di lavoro CCK-8 sono stati aggiunti direttamente a ciascun pozzetto. I pozzetti contenenti solo il mezzo servivano come controlli in bianco. Le piastre sono state incubate a 37 °C con CO2 al 5% per 4 ore, dopodiché l'assorbanza è stata misurata a 490 nm utilizzando un lettore di micropiastre. La vitalità cellulare è stata calcolata come:
Redditività (%) = 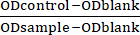 x 100
Sono state generate curve dose-risposta e la concentrazione inibitoria semimassima (IC50) della curcumina è stata determinata di conseguenza.
7. Saggio Transwell
Per il saggio di migrazione, le cellule sono state sospese in un terreno privo di siero e seminate nelle camere superiori degli inserti Transwell (dimensione dei pori 8 μm) a 3 × 10⁵ cellule in 200 μl per inserto. Le camere inferiori sono state riempite con 600 μL di terreno completo contenente il 10% di siero fetale bovino come chemioattrattivo. Le piastre sono state incubate a 37 °C con CO2 al 5% per 24 ore. Dopo l'incubazione, le cellule non migratorie sulla superficie superiore della membrana sono state rimosse delicatamente con un batuffolo di cotone sterile. Gli inserti sono stati risciacquati due volte con soluzione salina tamponata con fosfato, fissati in glutaraldeide al 5% a 4 °C per 30 minuti, risciacquati nuovamente e colorati con cristallovioletto allo 0,1% per 30 minuti a temperatura ambiente. Il colorante in eccesso è stato rimosso mediante lavaggio in PBS. Le membrane sono state lasciate asciugare all'aria e le cellule migrate sono state visualizzate al microscopio invertito con un ingrandimento di 400×. Per la quantificazione, sono stati visualizzati tre campi casuali per inserto ed è stato calcolato il numero medio di cellule.
8. Saggio dell'annessina V-APC-PI
Le cellule di ciascun gruppo sono state raccolte, lavate due volte con soluzione salina tamponata con fosfato (PBS) pre-raffreddata e centrifugate a 300 × g per 5 minuti a 4 °C. Il pellet è stato risospeso in 300 μL di tampone legante 1× a una densità di circa 1 × 10⁶ cellule/mL. È stata aggiunta l'annessina V-APC (5 μL) e i campioni sono stati incubati per 15 minuti a temperatura ambiente al buio. Immediatamente prima della citometria a flusso, 5 μL di ioduro di propidio sono stati aggiunti a 200 μL della sospensione cellulare e incubati per 5 minuti a temperatura ambiente. I campioni sono stati analizzati su un citometro a flusso utilizzando canali appropriati (APC e PI) e i dati sono stati elaborati con strategie di gating standard per distinguere le cellule vive, apoptotiche precoci, apoptotiche tardive e necrotiche.
9. Profilazione qRT-PCR
L'RNA totale è stato estratto con un metodo fenolo-cloroformio e la concentrazione e la purezza sono state determinate mediante spettrofotometria ultravioletta. Per la trascrizione inversa, è stato utilizzato 1 μg di RNA totale in una reazione da 20 μL con una master mix di trascrizione inversa secondo il protocollo del produttore. La PCR quantitativa è stata eseguita in reazioni da 20 μL contenenti 2 μL di cDNA, 10 μL di master mix SYBR Green e 0,4 μM di ciascun primer. Le reazioni sono state eseguite su un sistema di PCR in tempo reale con il seguente programma ciclico: 95 °C per 1 minuto, seguito da 40 cicli di 95 °C per 15 s e 63 °C per 25 s, con acquisizione della fluorescenza alla fine di ogni ciclo. È stata eseguita un'analisi della curva di fusione da 55 °C a 95 °C per verificare la specificità del prodotto. Ogni campione è stato analizzato in triplice copia e l'espressione relativa è stata quantificata utilizzando il metodo 2-ΔΔCt. L'U6 è servito come gene di riferimento per la quantificazione dei microRNA e la β-actina è stata utilizzata per la normalizzazione dell'mRNA.
Le sequenze di primer erano le seguenti: U6: avanti 5'-CTCGCTTCGGCAGCACACA-3', inverso 5'-AACGCTTCACGAATTTGCGT-3'; miR-22: avanti 5'-GCCTGAAGCTGCCAGTTGA-3', indietro 5'-GTGCAGGGTCGAGGT-3'; Wnt1: avanti 5'-CGATGGTGGGGTATTGTGAAC-3', indietro 5'-CCGGATTTTGGCGTATCAGAC-3'; β-actina: avanti 5'-AGTGTGACGTGGACATCCGCAAAG-3', inverso 5'-ATCCACATCTGCTGGAAGGTGGAC-3'. I dati di amplificazione sono stati elaborati utilizzando il software del sistema. Tutti i primer sono stati ottenuti da un fornitore commerciale.
10. Macchia occidentale
Le proteine sono state estratte da cellule o tessuti in coltura utilizzando un tampone di lisi contenente inibitori della proteasi e le concentrazioni proteiche sono state determinate con il metodo dell'acido bicinconinnico. Quantità uguali di proteine (40 μg per corsia) sono state separate mediante SDS-PAGE al 10% a tensione costante (80 V per il gel di impilamento e 120 V per il gel di risoluzione) e trasferite su membrane di difluoruro di polivinilidene utilizzando un sistema di trasferimento a umido a 100 V per 90 minuti. Le membrane sono state bloccate in latte scremato al 5 % preparato in soluzione salina tamponata con Tris con Tween-20 (TBST) allo 0,1 % per 1 ora a temperatura ambiente. Gli anticorpi primari contro Wnt1, β-catenina e β-actina sono stati diluiti 1:1000 in TBST contenente latte scremato all'1% e incubati con le membrane per una notte a 4 °C. Dopo il lavaggio tre volte con TBST (10 minuti ciascuna), le membrane sono state incubate con un anticorpo secondario coniugato con perossidasi di rafano (diluizione 1:5000) per 1 ora a temperatura ambiente. Dopo altri tre lavaggi con TBST, le bande proteiche sono state visualizzate utilizzando un reagente di rilevamento a chemiluminescenza potenziato e i segnali sono stati catturati con un sistema di imaging digitale. Le intensità di banda sono state quantificate utilizzando il software ImageJ.
11. Dosaggio della luciferasi
Sono stati costruiti un plasmide reporter wild-type (Wnt1-WT) contenente il 3'UTR di Wnt1 con siti di legame miR-22 previsti e un reporter mutante (Wnt1-MUT) con siti di legame interrotti. Le cellule di retinoblastoma umano sono state seminate in piastre da 24 pozzetti a una densità di 1 × 10⁵ cellule per pozzetto e co-trasfettate con plasmidi reporter Wnt1-WT o Wnt1-MUT insieme a un controllo miR-22 mimico o negativo utilizzando un reagente di trasfezione a base di lipidi. Per ogni pozzetto sono stati utilizzati 500 ng di plasmide reporter e 50 nM di miRNA mimic o control. Dopo 48 ore di incubazione a 37 °C con il 5 % di CO2, le cellule sono state lisate in 100 μl di tampone di lisi passiva. Le attività della luciferasi Firefly e Renilla sono state misurate in sequenza utilizzando un sistema di saggio reporter a doppia luciferasi secondo il protocollo del produttore. L'attività della luciferasi Firefly è stata normalizzata all'attività della luciferasi Renilla per controllare l'efficienza della trasfezione. Ogni condizione è stata testata in pozzetti triplicati e ripetuta in tre repliche biologiche indipendenti.
12. Analisi statistica
Tutti i dati sono presentati come media ± deviazione standard (SD) da almeno tre repliche biologiche indipendenti. Le analisi statistiche sono state eseguite utilizzando software statistici. I confronti tra più gruppi sono stati condotti mediante analisi della varianza a una via (ANOVA) seguita dal test post hoc di Tukey. Un valore p di <0,05 è stato considerato statisticamente significativo.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Effetti antiproliferativi e antiinvasivi dose-dipendenti della curcumina sulle cellule di retinoblastoma umano, accompagnati da disattivazione della via Wnt/β-catenina
Le cellule RB umane sono state trattate con dosi variabili di curcumina per un periodo di 24 ore. I risultati hanno rivelato un declino dose-dipendente della vitalità e dell'invasione cellulare, insieme a un aumento dell'apoptosi. In particolare, all'aumentare della concentrazione di curcumina da 10 a 50 μM, la proliferazione cellulare ...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
La curcumina, un polifenolo derivato dai rizomi della Curcuma longa, è rinomata per le sue proprietà antinfiammatorie, antiangiogeniche, antiproliferative e antiossidanti23,24. Inoltre, ha proprietà antitumorali, in particolare la sua capacità di indurre l'apoptosi nelle cellule maligne25. Sebbene ricerche precedenti abbiano enfatizzato gli effetti soppressivi della crescita della curcumina sulle cellule R...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori non hanno conflitti di interesse da dichiarare.
Ringraziamenti
Fondazione nazionale di scienze naturali della Cina (82271218); Fondo scientifico dell'ospedale oculistico di Tianjin (Progetto generale ykyb1908).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Kit di colorazione doppia Annexin V-APC/PI | Distretto di Solarbio | CA1020 | valutare quantitativamente l'apoptosi nelle cellule RB tramite citometria a flusso |
| Kit di test CCK-8 | Beyotime | Codice C0038 | Misurare l'assorbanza a 490 nm per valutare la capacità proliferativa cellulare |
| Incubatore CO2 | Eppendorf | mantenere le condizioni ottimali di coltura (37° C, 5% CO2 e umidità satura) per la propagazione delle cellule RB | |
| Curcumina | Sigma | Visualizzazione del materiale C1386 | Indagine sugli effetti antitumorali della curcumina sul retinoblastoma (RB) |
| Substrato chemiluminescente ECL | Bioss | C05-07004 | visualizzare le bande proteiche nell'analisi Western blot |
| Siero fetale bovino (FBS) | VivaCell | C04001-500 C04002-500 | Coltura cellulare |
| Citometria a flusso | Beckman Coulter | Gallio | analizzare quantitativamente il tasso di apoptosi delle cellule |
| ImageJ Software | Istituti Nazionali di Sanità | versione 6 | Analisi della banda western blot, valutazione dei livelli di espressione proteica |
| Microscopio invertito | Olimpo | CKX53 | osservare e contare le cellule invasive a 400 volte; ingrandimento nel saggio Transwell |
| Lipofectamina 3000 | Invitrogen | L3000015 | Trasfezione cellulare |
| Lettore di micropiastre | Termo | K3 | quantificazione del saggio di immunoassorbimento enzimatico (ELISA) |
| miR-22 imita il Lentivirus | Hanheng Biotecnologia | has-miR-22 | stabilire una linea cellulare trasfettata stabilmente per esperimenti sugli animali |
| Sistema PCR in tempo reale multiplex | Bio-Rad | Pannello CFX384 | eseguire RT-PCR quantitativa (qRT-PCR) per un'analisi precisa dell'espressione genica |
| Penicillina-Streptomicina (PS) | Abbkine | BMC1030 | Aggiunto ai terreni di coltura cellulare per prevenire la contaminazione batterica |
| Kit di estrazione delle proteine | Distretto di Solarbio | BC3640-50T | Isolamento di proteine da campioni cellulari e tissutali |
| vettore psiCHECK-2 | Promega | JR20110328 | costruire plasmidi reporter Wnt1-WT (wild-type) e Wnt1-MUT (mutante) per studiare l'interazione tra miR-22 e Wnt1 3'UTR |
| membrana in PVDF | Merck | ISEQ00010 | blotting proteico |
| Anticorpo secondario IgG di coniglio | Tecnologie di segnalazione cellulare | 14708 | Rilevamento del western blot legandosi all'anticorpo primario |
| Software statistico SPSS | IBM | SPSS 20.0 | eseguire analisi statistiche sui dati sperimentali |
| Kit SuperMix di sintesi a primo filamento SuperScript III | Invitrogen | 11752-050 | trascrizione inversa dell'RNA in cDNA per la successiva analisi RT-PCR |
| SYBR Premix Ex Taq II Kit | Biografia di TaKaRa | RR820A | Per la RT-PCR per rilevare quantitativamente l'espressione di Wnt1, β-actina e altri geni bersaglio |
| Reagente TRIzol | Invitrogen | 12183-555 | Estrazione dell'RNA da campioni cellulari e tissutali |
| Spettrofotometro UV | Beckman | DU800 | determinare la concentrazione e la purezza dei campioni di RNA |
| Anticorpo Wnt1 | Abcam | ab15251 | Analisi Western blot per rilevare l'espressione della proteina Wnt1 |
| Anticorpo β-actina | Abcam | ab8227 | utilizzato come riferimento interno per normalizzare il carico proteico nell'analisi Western blot |
| Anticorpo β-catenina | Tecnologie di segnalazione cellulare | 37447 | Analisi Western blot per rilevare l'espressione della proteina β-catenina |
Riferimenti
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.