Questo protocollo descrive l'uso di un sistema miniaturizzato di bilayer lipidico planare di Montal–Mueller con amplificazione integrata per effettuare registrazioni stabili di canali singoli. Il metodo viene dimostrato ricostituendo un canale K2P sintetico purificato per convalidare le prestazioni del sistema.
Articolo metodologico
Elettrofisiologia a Singolo Canale mediante un Sistema Miniaturizzato di Bilayer Lipidico Planare di Montal–Mueller per la Registrazione di un Canale K2P Sintetico
In questo articolo
Sommario
Abstract
La riconstituzione funzionale di canali ionici in bistrati lipidici piani fornisce una strategia per indagare l'attività del canale a livello di singola molecola. Tuttavia, i tradizionali sistemi di bistrato di Montal–Mueller richiedono tipicamente apparati sperimentali ingombranti, assemblaggio manuale della camera e volumi di registrazione relativamente elevati, il che aumenta il consumo di reagenti e può introdurre ulteriori fonti di rumore elettrico a causa di cablaggi prolungati e testine esterne. In questo studio, presentiamo una piattaforma miniaturizzata e pronta all'uso (BLMchipMM) integrata con un amplificatore compatto che consente registrazioni stabili a livello di singolo canale con ridotto consumo di reagenti e operatività semplificata. Questo protocollo descrive l'utilizzo di questo sistema per effettuare misurazioni di elettrofisiologia a singolo canale. Utilizzando questo sistema, abbiamo riconstituito un canale K2P sintetico (ancTREK1) e lo abbiamo impiegato come proteina modello per validare la riconstituzione e la registrazione a singolo canale. Le registrazioni a singolo canale mostrano una relazione corrente–tensione in soluzioni simmetriche di K+ prive di Mg2+, con valori di conduttanza coerenti con quelli riportati per i canali TREK1. La riconstituzione riuscita di questo canale simile a K2P dimostra l'utilità di questo sistema per l'analisi a singolo canale in membrane artificiali.
Introduzione
La ricostruzione di canali ionici in membrane lipidiche bimolecolari artificiali, note anche come membrane lipidiche nere (BLM), è una delle tecniche consolidate per effettuare la caratterizzazione elettrofisiologica dei canali ionici a livello di singola molecola1. I vantaggi delle BLM derivano dalla loro struttura. Infatti, un bistrato lipidico planare (PLB) viene creato all'interno di un poro su una superficie non polare, separando due soluzioni liquide. In questo modo, imitando una membrana biologica, consente la registrazione dell'attività dei canali ionici in condizioni altamente controllate, inclusa la composizione lipidica della membrana e le concentrazioni di elettroliti o composti chimici, pur rimanendo accessibile da entrambi i lati. Questa accessibilità permette inoltre l'inserimento diretto dei canali ionici, ad esempio da una soluzione micellare o mediante fusione mediata da liposomi2,3.
Il primo sistema di membrana artificiale descritto fu creato mediante la tecnica della pittura4, in cui una goccia di lipidi disciolti in un solvente organico non volatile viene applicata su una piccola apertura con un pennello. L'aggiunta di una soluzione acquosa su entrambi i lati dell'apertura porta quindi alla formazione spontanea di un doppio strato lipidico. Tuttavia, un notevole svantaggio di questo metodo è la ritenzione di tracce di solvente, che potrebbero alterare le proprietà della membrana. Per ridurre la quantità di solvente organico residuo nei doppi strati lipidici, fu sviluppato il metodo della piegatura5, che permette la formazione di membrane lipidiche bilayer (BLM) «prive di solvente». In questo approccio, una soluzione lipidica in un solvente volatile viene stesa sulla superficie dell'acqua per formare due monocapate, e aumentando gradualmente il livello della fase acquosa al di sopra dell'apertura, queste monocapate lipidiche si piegano sull'apertura formando un doppio strato. Tuttavia, sebbene la BLM risultante sia definita priva di solvente, la formazione efficace del doppio strato richiede un pretrattamento dell'apertura con uno strato sottile di solvente non volatile. L'elemento fondamentale necessario per questi esperimenti consiste in una camera di registrazione con due compartimenti acquosi (generalmente indicati come cis e trans) separati da un setto lipofilico con una piccola apertura (di diametro compreso tra 50 e 250 µm) (Figura 1). Elettrodi in argento/argento clorurato (Ag/AgCl) vengono inseriti in ciascun compartimento. Quando immersi nella soluzione elettrolitica, questi elettrodi stabiliscono il collegamento elettrochimico tra il doppio strato lipidico e l'apparato di registrazione. Quest'ultimo comprende un amplificatore a clamp di tensione, che consente un controllo preciso del potenziale transmembrana e la misurazione simultanea delle correnti ioniche che attraversano le proteine formanti pori incorporate nella membrana.
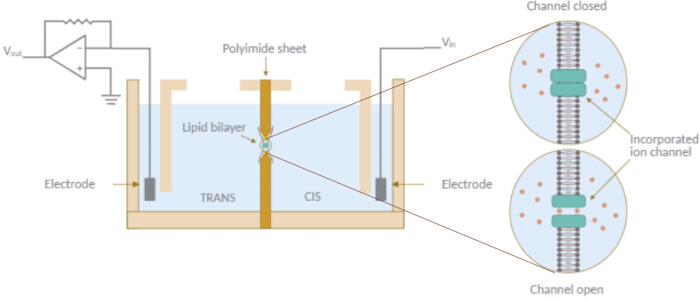
Figura 1: Schema del sistema di elettrofisiologia con bilayer lipidico planare (PLB). Uno schema dei componenti essenziali necessari per gli esperimenti con PLB. La camera di registrazione è costituita da due compartimenti acquosi (cis e trans) separati da un setto lipofilico contenente un'apertura in cui viene formato un bilayer lipidico. Degli elettrodi al cloruro d'argento (Ag/AgCl) sono immersi nella soluzione elettrolitica in ciascun compartimento. Un elettrodo applica stimoli di tensione (ad esempio, forme d'onda sinusoidali, quadre o triangolari), mentre l'altro, collegato a massa, è connesso a un convertitore di corrente in tensione che trasforma la corrente ionica in un segnale di tensione proporzionale. Il segnale viene amplificato, opzionalmente filtrato, digitalizzato e registrato per il monitoraggio e l'analisi in tempo reale. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Sono stati sviluppati anche altri metodi per formare BLM. Tra questi, un approccio comune consiste nella creazione di bicatene lipidiche sospese sulla punta di una pipetta per patch-clamp. Di conseguenza, il metodo detto "tip-dip"6 permette la formazione di una bicatena lipidica libera da solvente sospesa sull'apertura di una micropipetta di vetro con un diametro di circa 4 µm, immergendo ripetutamente la punta attraverso un monostrato lipidico all'interfaccia aria-acqua, catturando così un singolo strato durante ogni passaggio. La tecnica del patch-clamp è stata utilizzata anche per misurazioni a canale singolo in bicatene lipidiche. Ad esempio, nel metodo "punch-out"7, una pipetta di vetro con un diametro compreso tra 10 e 80 µm viene usata per sigillare una membrana di grandi dimensioni precedentemente formata su un'apertura in una camera di registrazione. In alternativa, il metodo liposoma-patch prevede l'uso di una vescicola preformata di dimensioni nano- a micrometriche come BLM priva di solvente8,9. In particolare, le vescicole unilamellari giganti sono state ampiamente utilizzate per registrazioni a canale singolo mediante diverse configurazioni del patch-clamp, incluse le modalità "cell-attached" ed "excised patch"10,11.
Sono inoltre emerse diverse piattaforme per la formazione parallela e automatizzata di più bicapidi. Uno di questi approcci è la tecnica del bicapide interfacciale a gocce (DIB, droplet interface bilayer)12, in cui gocce acquose vengono posizionate in una miscela di lipidi e solvente. In questo metodo, i monocapidi lipidici si assemblano spontaneamente attorno alle gocce e la formazione del bicapide avviene quando due gocce entrano in contatto. In alcuni allestimenti, i DIB possono essere formati su idrogeli per migliorare la stabilità della membrana13. Un approccio alternativo basato sulla formazione di DIB all'estremità di una pipetta di vetro è il metodo del bicapide a bolla di contatto (CBB, contact bubble bilayer)14, in cui bolle acquose vengono introdotte in una fase oleosa mediante due micropipette. Come nell'approccio DIB, un bicapide lipidico si forma spontaneamente quando due bolle rivestite di lipidi vengono messe a contatto. Un'altra piattaforma è rappresentata dai sistemi BLM in array, costituiti da schiere di pori ben definiti su scala micro- a nanometrica disposti in un modello a griglia. In questi sistemi, i bicapidi lipidici sospesi possono essere formati manualmente — mediante tecniche di pennellatura o ripiegamento, oppure tramite rottura di vescicole liposomiali15,16,17 — oppure automaticamente mediante iniezione sequenziale di soluzioni lipidiche e tampone, quando accoppiati a strutture di canali microfluidici18,19.
Sebbene siano stati sviluppati numerosi metodi per formare BLM senza solvente, in questo lavoro ci concentriamo sul metodo di ripiegamento implementato all'interno di una piattaforma miniaturizzata e integrata per studiare il comportamento di canali singoli di proteine di membrana incorporate in un doppio strato lipidico artificiale. Gli esperimenti sono stati eseguiti utilizzando il sistema Elements, costituito da due componenti: l'amplificatore Nanopore Reader Elements (eNPR) e il BLMchipMM (Figura 2A e Figura 2B). Il primo è un amplificatore compatto a basso rumore per voltage-clamp che semplifica l'area di lavoro costituendo un'unità completa e indipendente, eliminando la necessità di dispositivi esterni aggiuntivi. Il BLMchipMM è un sistema preassemblato e miniaturizzato progettato per la tecnica Montal–Mueller e funge da interfaccia sperimentale. È costituito da una camera di registrazione in polimetilmetacrilato (PMMA) trasparente integrata con una scheda a circuito stampato (PCB), che include due alloggiamenti progettati per accogliere fili in Ag/AgCl utilizzati come elettrodi per il collegamento diretto all'amplificatore. La struttura principale della camera è un setto in polimide sigillato tra due componenti in PMMA trasparenti. Il setto ha uno spessore di 50 µm, eccetto in una piccola regione centrale (3,78 mm2), dove lo spessore è ridotto a 25 µm per facilitare la formazione del doppio strato. Al centro di questa regione più sottile, un'apertura conica è realizzata mediante foratura laser, il che migliora la stabilità meccanica del doppio strato lipidico20,21. Sono disponibili quattro diametri di apertura (50, 75, 100 e 140 µm), consentendo la regolazione della capacità della membrana (Tabella 1). Ogni componente in PMMA presenta una cavità a forma di C con un volume di 110 µL, formando due compartimenti fluidici su entrambi i lati del setto in polimide per contenere la soluzione elettrolitica. Due canali fluidici inclinati sono forati in ciascun blocco in PMMA su lati opposti: un canale viene utilizzato per inserire l'elettrodo in Ag/AgCl, mentre l'altro permette la regolazione manuale del livello del tampone all'interno del serbatoio mediante pipettaggio.
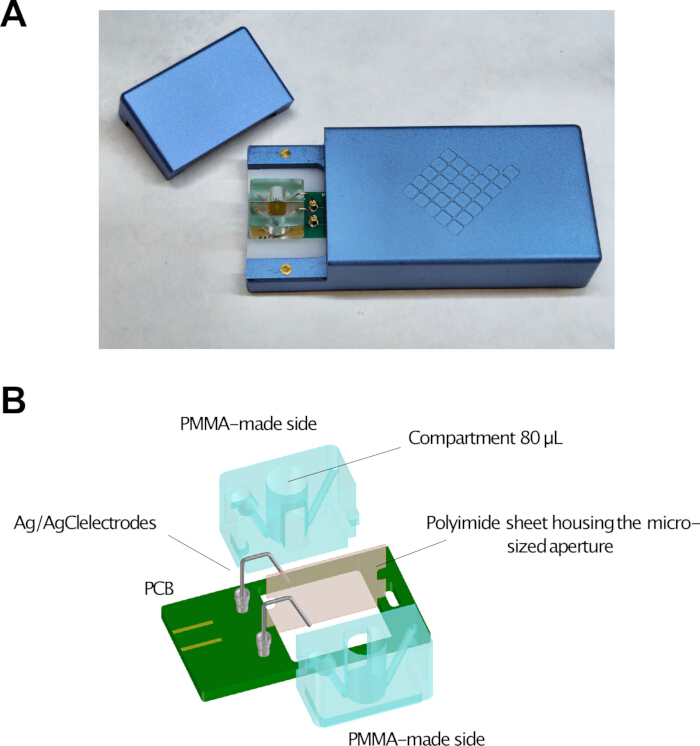
Figura 2: Sistema integrato Elements Nanopore Reader e BLMchipMM. (A) Fotografia che mostra il BLMchipMM inserito nello slot dedicato dell'amplificatore Elements Nanopore Reader (eNPR). (B) Rappresentazione schematica dei componenti del BLMchipMM, inclusa la camera di registrazione in polimetilmetacrilato (PMMA), il setto in poliimide contenente l'apertura di dimensioni micrometriche e la scheda a circuito stampato (PCB) con alloggiamenti per elettrodi Ag/AgCl e uno slot per l'allineamento della camera. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Diametro del foro (µm) | 50 | 75 | 100 | 140 |
| Spessore del foro (µm) | 25 | 25 | 25 | 25 |
| Capacità tipica della membrana (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
Tabella 1: Caratteristiche dei formati di apertura disponibili per BLMchipMM. Diametro dei fori, spessore della settima nella regione dell'apertura e valori tipici di capacità della membrana per dispositivi BLMchipMM con aperture di 50, 75, 100 e 140 µm. I valori di capacità della membrana sono riportati per bicamere formate da lipidi 1,2-diphytanoyl-sn-glycero-3-phosphocholine.
In genere, le camere di registrazione utilizzate nei laboratori sono dispositivi costruiti in laboratorio oppure disponibili in commercio. Nel primo caso, la costruzione del sistema richiede l'assemblaggio di diverse componenti e lo sviluppo di un metodo affidabile per creare l'apertura nel setto, il che può limitare l'accessibilità per molti laboratori. Anche quando si utilizzano dispositivi commerciali, spesso è necessaria l'integrazione manuale di più componenti prima di ogni esperimento. Al contrario, il BLMchipMM è preassemblato e non richiede smontaggio tra un esperimento e l'altro per le normali procedure di pulizia. La stessa unità può essere lavata e riutilizzata per più esperimenti senza compromettere la qualità della formazione della membrana, a condizione che i solventi utilizzati siano compatibili con i materiali del dispositivo. Ciò riduce la variabilità dipendente dall'operatore e minimizza il rischio di perdite associate agli elementi di sigillatura manuali. L'uso di elettrodi esterni in filo d'argento, sostituibili e rigenerabili, aumenta ulteriormente la durata utile del sistema, in particolare in condizioni sperimentali che accelerano il consumo degli elettrodi.
Inoltre, i dispositivi artigianali spesso presentano volumi delle camere elevati, aumentando la quantità di componenti biologici e chimici necessari per gli esperimenti. Al contrario, la miniaturizzazione del BLMchipMM permette di ridurre al minimo i volumi sperimentali, riducendo così in modo significativo il consumo di reagenti, proteine e altri composti. Questo è particolarmente vantaggioso quando si lavora con proteine di membrana difficili da esprimere o con rese basse, oppure quando l'elevato costo della sintesi dei composti da testare aumenta il costo complessivo degli esperimenti. È importante notare che il BLMchipMM consente la formazione di bicapidi con quantità minima di solvente e supporta configurazioni asimmetriche della membrana, in cui ciascun strato può essere composto da diverse specie lipidiche5,22, facilitando lo studio della funzione delle proteine di membrana in condizioni controllate.
Tradizionalmente, le misurazioni della corrente vengono effettuate utilizzando amplificatori progettati per esperimenti di patch-clamp, che spesso richiedono il collegamento a un digitizzatore separato per l'acquisizione dei dati e il controllo tramite interfacce grafiche. Questi sistemi non sono solo ingombranti e costosi, ma spesso comportano procedure di configurazione poco intuitive per utenti non esperti. Inoltre, a causa delle dimensioni della camera di registrazione e della progettazione degli amplificatori standard—che tipicamente non dispongono di schermatura integrata per proteggere l'ingresso dello stadio di testa dalle interferenze elettrostatiche—è spesso necessario utilizzare una gabbia di Faraday esterna. La qualità e il collegamento a terra di tale gabbia possono influenzare significativamente le prestazioni in termini di rumore del sistema. Il BLMchipMM, utilizzato con un amplificatore integrato compatto, semplifica questa configurazione riducendo la necessità di componenti esterni. La digitalizzazione del segnale avviene all'interno del dispositivo e l'involucro del sistema fornisce una schermatura che riduce la suscettibilità alle interferenze elettromagnetiche ambientali.
Per dimostrare l'applicabilità di questa piattaforma, il canale di tipo K2P ancTREK1, un membro ancestrale della sottofamiglia TREK derivato mediante analisi computazionale (Supplementary Figure 1), è stato utilizzato come proteina modello per validare il corretto ripristino della funzionalità e la registrazione di canali singoli. I canali K2P formano canali del potassio a perdita di tipo dimero che regolano il potenziale di membrana a riposo e l'eccitabilità cellulare, con i canali TREK che rappresentano una sottofamiglia ben caratterizzata.
Protocollo
Questo studio non ha coinvolto partecipanti umani, materiali di origine umana o soggetti animali. Di conseguenza, non è stata richiesta un'approvazione etica in conformità con le linee guida istituzionali e nazionali.
1. Preparare l'allestimento per elettrofisiologia
- Calibrazione dello strumento
Sebbene non sia richiesta una calibrazione formale poiché il sistema è configurato in fabbrica, verificare il corretto funzionamento del sistema prima della formazione della membrana.- Misurare la resistenza di ingresso in condizioni di circuito aperto (ovvero senza inserire il BLMchipMM). La resistenza misurata deve essere ≥1 TΩ, a conferma dell'integrità dell'ingresso dell'amplificatore.
- Verificare la risposta del sistema utilizzando una cella modello contenente una resistenza da 1 GΩ. La resistenza misurata deve essere pari a 1 GΩ entro ±30%, in accordo con la tolleranza della resistenza integrata.
- Misurare il rumore di fondo in condizioni di circuito aperto a tensione costante (0 mV). Il rumore RMS deve essere ≤300 fA a una frequenza di campionamento di 10 kHz e una larghezza di banda di 5 kHz, a conferma di prestazioni del sistema a basso rumore.
- Preparazione degli elettrodi Ag/AgCl
- Per il primo utilizzo, risciacquare i fili d'argento con etanolo e acqua bidistillata.
- Per fili già utilizzati in precedenza, utilizzare una carta vetrata a grana molto fine per rimuovere lo strato vecchio di Ag/AgCl dalla superficie del filo fino a quando la superficie appare uniformemente argentata con un brillante aspetto metallico e senza residui visibili. Successivamente risciacquare con etanolo e acqua bidistillata.
- Clorurare la parte terminale dei fili d'argento immergendoli in ipoclorito di sodio (NaOCl) al 1%–5% (Figura 3A) fino a quando non assumono un colore grigio chiaro, tipicamente per 15–30 minuti. Monitorare nel tempo i fili clorurati per rilevare eventuali segni di degrado durante l'uso, che possono manifestarsi come un cambiamento di colore, una deriva della corrente di base o entrambi.
NOTA: La clorurazione può essere effettuata utilizzando candeggina domestica comune (NaOCl al 1%–5%).
ATTENZIONE: Non clorurare i fili per tutta la loro lunghezza. Lasciare la parte terminale che si inserisce nel connettore della PCB non clorurata per garantire un corretto contatto elettrico.
ATTENZIONE: I connettori sulla PCB sono progettati per fili d'argento con diametro di 0,5 mm. Diametri diversi potrebbero non adattarsi correttamente o potrebbero causare connessioni instabili.
- Assemblaggio del BLMchipMM
- Inserire la parte terminale non clorurata dei due fili d'argento nei connettori della PCB. Utilizzare pinzette se necessario per posizionarli correttamente (Figura 3B).
- Posizionare le estremità clorurate dei fili nei canali fluidici ricavati nel componente in PMMA (Figura 3C).
- Ruotare delicatamente il BLMchipMM e montarlo sulla PCB inserendo il dente inferiore della camera di registrazione in PMMA nella fessura dedicata (Figura 3D).
- Verificare la posizione dei fili e assicurarsi che raggiungano l'estremità dei canali fluidici. Se necessario, spingere delicatamente i fili finché le loro estremità non risultano visibili sul fondo dei compartimenti (Figura 3E).
ATTENZIONE: Posizionare i fili il più vicino possibile al componente in PMMA. Una curvatura eccessiva potrebbe causare il contatto con il coperchio dell'amplificatore, provocando un cortocircuito e la saturazione del segnale.
- Preparazione dei lipidi e della soluzione di registrazione
- Preparare 100 µL di una soluzione di esadecano al 1% (v/v) in n-esano al 100% per il trattamento preliminare dell'apertura del setto. Conservare questa soluzione a −20°C per un massimo di una settimana.
- Risospendere i lipidi 1,2-difitanoil-sn-glicerolo-3-fosfocolina (DPhPC) in n-pentano al 100% a una concentrazione finale di 15 mg/mL. Conservare questa soluzione a −20°C per un massimo di 24 ore.
- Preparare la soluzione elettrolitica di registrazione a temperatura ambiente (RT; 20°C–25°C) mescolando 3 mL di una soluzione madre di KCl 1 M con 150 µL di una soluzione madre di 4-(2-idrossietil)-1-piperazinaetansolfonico (HEPES) 1 M (pH 7,4 regolato con KOH utilizzando un pHmetro). Aggiungere acqua bidistillata per portare il volume finale a 15 mL. Conservare la soluzione a 4°C per un massimo di una settimana (Tabella 2).
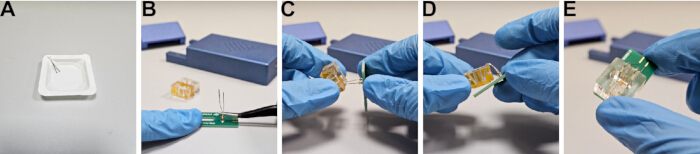
Figura 3: Assemblaggio del dispositivo BLMchipMM. (A) Clorinazione dei fili di Ag mediante immersione in candeggina. (B) Inserimento dei fili di Ag nei connettori della PCB. (C) Posizionamento dei fili di Ag all'interno dei canali microfluidici. (D) Posizionamento della camera di registrazione sulla PCB. (E) Verifica del corretto posizionamento degli elettrodi all'interno dei canali fluidici. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Reagente | Concentrazione finale | Volume |
| Acqua bidistillata | — | Aggiungere fino a 15 mL |
| Cloruro di potassio (KCl) (1 M) | 200 mM | 3 mL |
| HEPES pH 7,4 (KOH) (1 M) | 10 mM | 150 µL |
Tabella 2: Soluzione elettrolitica per la registrazione. Composizione della soluzione elettrolitica utilizzata per le registrazioni PLB, inclusi le concentrazioni dei reagenti e i volumi di preparazione. Il volume finale viene portato a 15 mL con acqua doppio-distillata. La soluzione di registrazione deve essere filtrata utilizzando un filtro per siringa da 0,2 µm prima dell'uso.
NOTA: filtrare la soluzione di registrazione mediante un filtro da siringa da 0,2 µm prima dell'uso. I lipidi DPhPC possono essere forniti come polvere secca o sciolti in cloroformio. Conservare entrambe le forme a −20°C in vial di vetro sigillati sotto gas inerte per prevenire l'ossidazione. Lasciare che la polvere secca raggiunga l'equilibrio alla temperatura ambiente (RT) prima di aprire il contenitore. Preparare soluzioni fresche a partire dalla polvere secca e utilizzarle entro 24 h. Se si utilizzano soluzioni stock in cloroformio, evaporare completamente il solvente sotto azoto prima della risospensione, poiché il cloroformio residuo può destabilizzare la membrana.
2. Formare il PLB con il metodo di Montal–Mueller
I seguenti passaggi descrivono la formazione di membrane artificiali utilizzando il metodo di piegamento, noto anche come tecnica di Montal–Mueller5 (Figura 4). Questo approccio prevede il trattamento preliminare dell'apertura del setto con uno strato sottile di esadecano al 1% (v/v) in n-esano, il deposito di una soluzione lipidica per formare monocapoboli all'interfaccia aria–acqua e il piegamento dei monocapoboli sull'apertura man mano che il livello della soluzione elettrolitica viene aumentato in modo sequenziale nei compartimenti della camera.
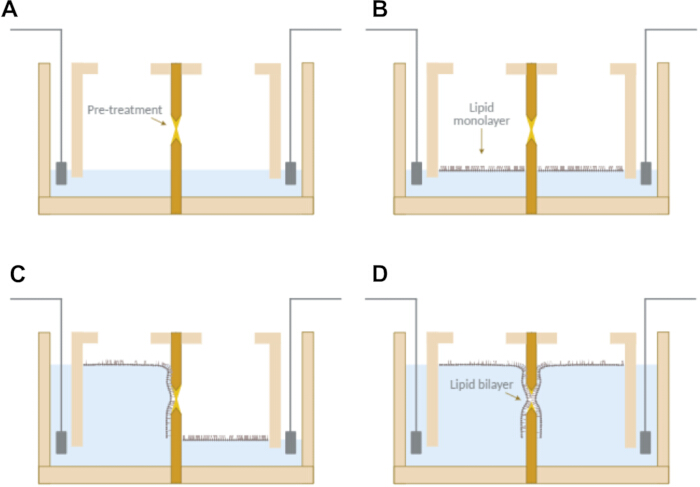
Figura 4: Formazione di PLB mediante il metodo Montal–Mueller. (A) Preliminare trattamento dell'apertura con esadecano al 1% in n-esano e riempimento dei compartimenti fino al livello dell'apertura. (B) Formazione di monostrati lipidici all'interfaccia aria–acqua. (C e D) Aumento sequenziale del livello del buffer in ciascun compartimento, che provoca il ripiegamento dei monostrati e la formazione di un bilayer lipidico privo di solvente attraverso l'apertura. Cliccare qui per visualizzare una versione ingrandita di questa figura.
- Formare la membrana
- Prima trattare l'apertura del setto con una soluzione al 1% (v/v) di esadecano in n-esano utilizzando una punta di pipetta. Applicare circa 2 µL per lato (Figura 4A).
- Lasciare evaporare il solvente per 5 min a 23°C–25°C e umidità relativa del 45%–50%.
- Inserire il BLMchipMM assemblato nell'amplificatore.
- Collegare l'amplificatore al computer tramite cavo USB e aprire il software di acquisizione.
- Impostare la scala della corrente su 2 nA e attivare lo strumento di stima RC per monitorare la capacità e la resistenza della membrana.
NOTA: Le impostazioni di stima RC sono configurate per impostazione predefinita, ma possono essere modificate se necessario. - Riempire ogni compartimento con 30 ± 2 µL di soluzione di registrazione fino al margine inferiore dell'apertura (Figura 4A).
ATTENZIONE: Non permettere alla soluzione di registrazione di bagnare la zona circostante l'apertura. - Disperdere goccia a goccia 2,5 ± 0,1 µL di soluzione lipidica sulla superficie della fase acquosa in ciascun compartimento (Figura 4B).
- Lasciare evaporare il solvente per 2 min.
- Posizionare una punta di pipetta sul fondo di un compartimento a un angolo di circa 90° e aggiungere 80 ± 2 µL di soluzione di registrazione. Ripetere per il secondo compartimento (Figura 4C e Figura 4D).
NOTA: I tempi di evaporazione del solvente si riferiscono a condizioni di 23°C–25°C, aria statica e umidità relativa del 45%–50%. - Chiudere il coperchio della gabbia di Faraday e monitorare il segnale di corrente. Valori di resistenza della membrana superiori a 200 GΩ indicano una corretta formazione del doppio strato lipidico e una buona integrità della membrana.
NOTA: La corretta formazione della membrana è indicata da un segnale di corrente a onda quadra che fluttua intorno allo zero, con ampiezza proporzionale alla capacità della membrana (Figura 5A).
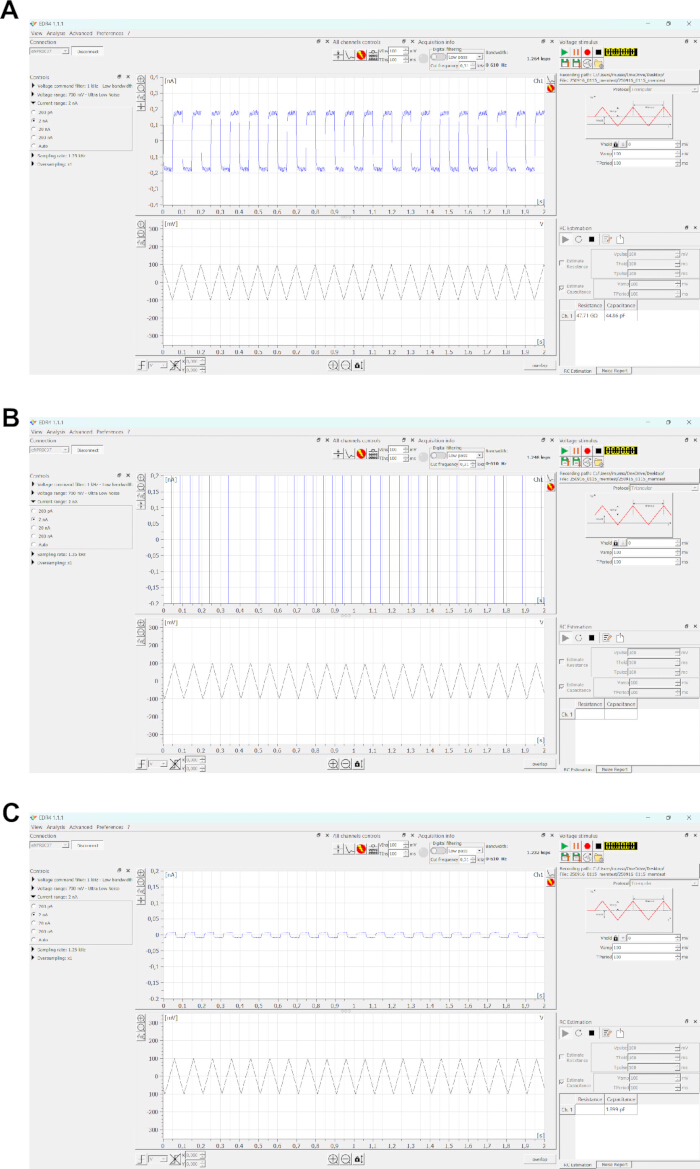
Figura 5: Monitoraggio della formazione della membrana mediante l'interfaccia del software di acquisizione. (A) Traccia rappresentativa che mostra una corretta formazione della membrana. Un'onda di tensione triangolare (100 mV da picco a picco, 10 Hz) produce una corrente capacitiva a forma d'onda quadra proporzionale alla capacità della membrana (~45 pF). (B) Traccia rappresentativa che indica l'assenza di formazione della membrana, caratterizzata dalla saturazione del segnale di corrente. (C) Segnale capacitivo corrispondente alla capacità parassita quando il doppio strato non si è formato, ad esempio quando l'apertura è esposta. Cliccare qui per visualizzare una versione ingrandita di questa figura.
NOTA: Un segnale che passa tra i limiti di portata della corrente indica un guasto della membrana (Figura 5B).
NOTA: il rumore RMS aumenta con la capacità della membrana e quindi con la dimensione dell'apertura. I tipici intervalli di rumore misurati in condizioni di tensione costante (0 mV), con una frequenza di campionamento di 5 kHz e una larghezza di banda di 2,5 kHz, sono: 0,48–2,00 pA (50 µm); 0,74–2,62 pA (75 µm); 1,00–3,52 pA (100 µm); e 1,59–5,27 pA (140 µm).
NOTA: l'abbassamento e il successivo innalzamento del livello del buffer in un compartimento può favorire la formazione della membrana qualora i tentativi iniziali non abbiano successo.
NOTA: Applicare una bolla d'aria sull'apertura per circa 5 s utilizzando la punta di una pipetta per facilitare la formazione del bilayer, se necessario.
NOTA: L'abbassamento del livello del buffer al di sotto dell'apertura o l'applicazione di una bolla d'aria possono produrre un segnale corrispondente a una capacità parassita (Figura 5C). Se l'output assomiglia alla Figura 5B, il pretrattamento potrebbe non essere stato efficace. Riapplicare la soluzione di pretrattamento e i lipidi, oppure pulire il dispositivo e ripetere la procedura.
ATTENZIONE: Eseguire la compensazione dell'offset di tensione solo in assenza di una membrana. Se è presente una membrana, romperla utilizzando la funzione ZAP prima della compensazione.
NOTA: Gli esperimenti possono essere eseguiti su un banco da laboratorio standard; tuttavia, se necessario, può essere utilizzato un tavolo antivibrazione.
3. Pulire il BLMchipMM
- Rimuovere la camera di registrazione dalla PCB.
- Lavare entrambi i compartimenti e i canali fluidici con alcol isopropilico al 100% (IPA).
ATTENZIONE: Non superare 1 minuto di esposizione all'IPA.
ATTENZIONE: Non utilizzare acetone o etanolo al 100%, poiché questi solventi potrebbero danneggiare il materiale di sigillatura della camera.
NOTA: Verificare la compatibilità di eventuali solventi aggiuntivi con il PMMA prima dell'uso. - Risciacquare accuratamente con acqua bidistillata.
- Asciugare completamente la camera di registrazione utilizzando un flusso delicato di aria compressa fino a quando non rimangono gocce d'acqua visibili.
NOTA: Ispezionare la camera con una lente d'ingrandimento illuminata per assicurarsi che non siano presenti pellicole oleose residue. Se necessario, ripetere la procedura di pulizia e asciugatura.
NOTA: Assicurarsi che la camera sia completamente pulita e asciutta prima di iniziare un nuovo esperimento.
4. Esprimere e purificare il canale ionico sintetico (ancTREK1)
- Preparare il costrutto di espressione
I seguenti passaggi descrivono strategie di clonaggio, espressione eterologa in cellule Freestyle-293F e purificazione della proteina ancTREK1.
Costruire il vettore di espressione mediante amplificazione PCR, digestione con enzimi di restrizione, ligazione e trasformazione in cellule di Escherichia coli chimicamente competenti23,24. Esprimere la sequenza ancTREK1 (Figura Supplementare 1) utilizzando un vettore mammifero contenente un marcatore GFP in posizione C-terminale e un marcatore His₈, che consentono la rilevazione basata sulla fluorescenza25,26 e una purificazione per affinità in due passaggi mediante resina a nitrilotriacetato di nichel (Ni2⁺-NTA)27,28,29 seguita da resina con nanocorpo anti-GFP30,31,32. - Amplificare il DNA di ancTREK1 mediante PCR
- Diluire i primer PCR e il template di DNA a concentrazioni finali di 10 µM e ~20 ng/µL utilizzando acqua sterile doppio-distillata.
- Scongelare tutti i reagenti sul ghiaccio.
- Preparare una reazione PCR da 50 µL contenente 10 µL di buffer 5×, 2,5 µL di ciascun primer 10 µM, 2 µL di template di DNA, 1 µL di dNTP 10 mM, 0,5 µL di DNA polimerasi ad alta fedeltà e acqua sterile doppio-distillata fino al volume finale (Tabella 3). Mescolare delicatamente e centrifugare brevemente.
- Eseguire la PCR alle seguenti condizioni: denaturazione iniziale a 98°C per 3 min; 30 cicli di 98°C per 30 s, 68°C per 30 s e 72°C per 30 s; estensione finale a 72°C per 3 min (Tabella 4).
- Separare il prodotto PCR su un gel di agarosio al 1% (p/v) in buffer TAE 1× a 60 V per 90 min e rimuovere la banda corretta.
NOTA: Purificare i prodotti PCR mediante estrazione da gel, misurare la concentrazione di DNA a 260 nm e conservare i prodotti PCR purificati a −20°C se necessario.
- Eseguire la digestione di restrizione
- Preparare reazioni di digestione contenenti 2 µg di prodotto PCR e 2 µg di DNA plasmidico in provette separate. Aggiungere 5 µL di buffer 10×, 0,5 µL di enzimi di restrizione EcoRI e 0,5 µL di NotI e portare a 50 µL con acqua doppio-distillata (Tabella 5).
- Mescolare delicatamente e incubare a 37°C per 3 h.
- Inattivare gli enzimi mediante riscaldamento a 65°C per 20 min.
- Aggiungere 1 µL di fosfatasi alcalina alla digestione del vettore e incubare a 37°C per 1 h.
- Separare i prodotti digeriti su un gel di agarosio al 1% ed estrarre le bande desiderate.
NOTA: Purificare i frammenti di DNA mediante metodi di purificazione appropriati e conservare il DNA purificato a −20°C se necessario.
- Eseguire la ligazione e la trasformazione
- Preparare una reazione di ligazione da 20 µL contenente vettore e inserto (rapporto molare 3:1), 2 µL di buffer 10× per ligasi e 1 µL di enzima ligasi (Tabella 6).
- Incubare a temperatura ambiente per 1 h.
- Scongelare le cellule di E. coli chimicamente competenti sul ghiaccio.
- Aggiungere 5 µL della miscela di ligazione a 50 µL di cellule e incubare sul ghiaccio per 20 min.
- Eseguire uno shock termico a 42°C per 1 min, quindi riportare sul ghiaccio per 2 min.
- Aggiungere 450 µL di mezzo LB e incubare a 37°C con agitazione per 1 h.
- Centrifugare a 3.000 × g per 1 min e risospendere il pellet in 50 µL.
- Piastrare su agarosio selettivo e incubare tutta la notte a 37°C.
NOTA: Confermare il clonaggio riuscito mediante sequenziamento.
- Trasfettare cellule HEK293F
- Sezionare 250 mL di cellule 293F a 0,5 × 10⁶ cellule/mL in mezzo di sospensione senza siero e incubare a 37°C con 6% di CO₂.
- Preparare 250 µg di DNA in un volume finale di 3 mL di mezzo con siero ridotto.
- Preparare 750 µg di polietilenimina (PEI) in acqua a 1 mg/mL, regolare il pH a 6,9–7,1 con NaOH, filtrare sterilmente la soluzione e portare il volume finale a 3 mL con mezzo con siero ridotto.
- Mescolare le soluzioni di DNA e PEI, agitare delicatamente e incubare per 10 min a temperatura ambiente.
- Aggiungere la miscela goccia a goccia alle cellule.
- Aggiungere butirrato di sodio a una concentrazione finale di 10 mM dopo 4 h.
- Raccogliere le cellule dopo 48 h mediante centrifugazione a 500 × g per 15 min.
- Conservare i pellet cellulari a −80°C.
- Solubilizzare le proteine di membrana
- Scongelare i pellet cellulari provenienti da 100 mL di coltura HEK293 sul ghiaccio.
- Risospendere il pellet cellulare in buffer di lisi in rapporto 1:10 (p/v) (Tabella 7).
Aggiungere detergente a concentrazioni finali del 1% di n-dodecil-β-D-maltoside (DDM) e dello 0,1% di emisuccinato di colesterolo (CHS). - Incubare con rotazione a 4°C per 2 h.
- Centrifugare a 100.000 × g per 1 h a 4°C.
- Raccogliere il sopranatante.
ATTENZIONE: Eseguire tutti i passaggi a 4°C utilizzando buffer pre-raffreddati.
- Eseguire la purificazione IMAC
- Imballare 500 µL di resina Ni2⁺-NTA in una colonna a gravità.
- Equilibrare la resina con due volumi di colonna (CV) di buffer di equilibrazione (Tabella 8).
- Caricare il campione e incubare con mescolamento delicato a 10 rpm e a 4°C per 3 h.
- Posizionare la colonna verticalmente e raccogliere il flusso iniziale per gravità.
- Lavare la resina con 10 CV di buffer di lavaggio contenente 30 mM di imidazolo.
- Eluire la proteina con 10 CV di buffer di eluizione contenente 300 mM di imidazolo.
NOTA: Analizzare le frazioni mediante SDS-PAGE (Figura 6). Conservare le frazioni di flusso iniziale e di lavaggio per l'analisi. Conservare la proteina a 4°C tutta la notte se necessario.
- Eseguire la purificazione anti-GFP
- Imballare 1 mL di resina anti-GFP in una colonna a gravità.
- Equilibrare la resina con 2 CV di Buffer 1 (Tabella 9). Caricare l'eluato IMAC e incubare con mescolamento delicato a 10 rpm e a 4°C per 3 h.
- Posizionare la colonna verticalmente e raccogliere il flusso iniziale per gravità.
- Lavare la resina sequenzialmente con 10 CV di Buffer 1, 10 CV di Buffer 2 e 10 CV di Buffer 1.
- Diluire la proteasi HRV-3C in 2 mL di Buffer 1 in un rapporto proteasi:proteina di 1:50.
- Aggiungere il Buffer 1 supplementato con proteasi HRV-3C alla resina, mescolare delicatamente e incubare tutta la notte a 4°C in posizione verticale e statica.
- Raccogliere la proteina scissa nella frazione di eluizione.
- Concentrare il campione utilizzando un concentratore centrifugo con cutoff di 50 kDa a 3.000 × g e 4°C fino a raggiungere un volume finale di circa 500 µL.
NOTA: Analizzare le frazioni mediante SDS-PAGE (Figura 7). Risospendere periodicamente la proteina durante la concentrazione per prevenire l'aggregazione. Conservare la proteina purificata a −80°C dopo congelamento rapido. Da 100 mL di coltura si possono ottenere circa 60 µg di proteina.
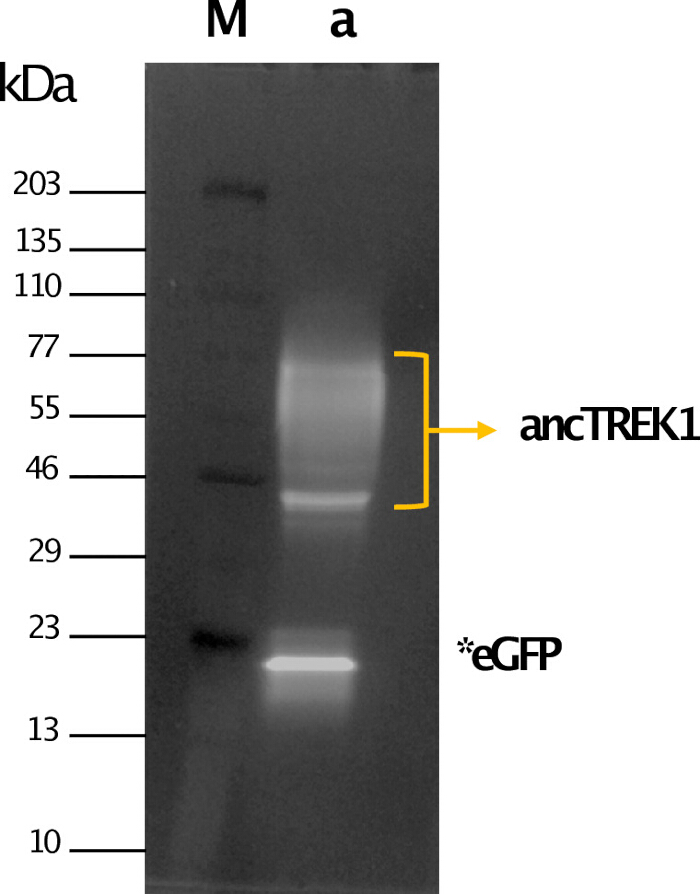
Figura 6: Purificazione di ancTREK1 mediante cromatografia di affinità con ioni metallici immobilizzati (IMAC). Analisi mediante elettroforesi su gel di poliacrilamide in presenza di dodecilsolfato di sodio (SDS-PAGE) delle frazioni eluite in IMAC con rilevamento della fluorescenza. Linea M: marcatore del peso molecolare. Linea a: frazione eluita in IMAC che mostra ancTREK1 marcato con proteina fluorescente verde (GFP) (freccia gialla). La GFP libera risultante da autocleavaggio è indicata (*eGFP). Cliccare qui per visualizzare una versione ingrandita di questa figura.
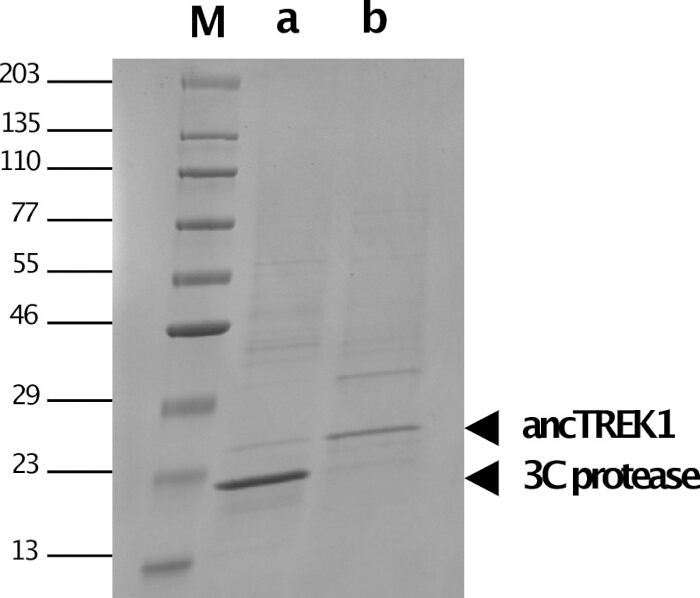
Figura 7: Purificazione di ancTREK1 mediante cromatografia di affinità con nanocorpo anti-GFP. Analisi SDS-PAGE delle frazioni eluite colorate con Coomassio Blue. Linea M: marcatore di peso molecolare. Linea a: frazione eluita con anti-GFP che mostra la presenza della proteasi 3C. Linea b: ancTREK1 purificata dopo concentrazione. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Reagente | Volume per reazione da 50 µL | Concentrazione finale |
| Acqua bidistillata | Aggiungere fino a 50 µL | — |
| 5× PhusionTM GC buffer | 10 µL | 1× |
| dNTPs (10 mM ciascuno) | 1 µL | 200 µM ciascuno |
| Primer diretto (10 µM) | 2.5 µL | 0.5 µM |
| Primer inverso (10 µM) | 2.5 µL | 0.5 µM |
| DNA stampo (20 ng/µL) | 2 µL | 0.8 ng/µL |
| PhusionTM High-Fidelity DNA polymerase | 0.5 µL | 0.02 U/µL |
Tabella 3: Impostazione della reazione di reazione a catena della polimerasi (PCR) per l'amplificazione di ancTREK1. Composizione dei reagenti, volumi e concentrazioni finali utilizzati per l'amplificazione PCR della sequenza di DNA ancTREK1 mediante un sistema di DNA polimerasi ad alta fedeltà.
| Passo | Temperatura | Tempo | Cicli |
| Denaturazione iniziale | 98°C | 3 min | 1 |
| Denaturazione | 98°C | 30 s | 30 |
| Appaiamento | 68°C | 30 s | 30 |
| Estensione | 72°C | 30 s | 30 |
| Estensione finale | 72°C | 3 min | 1 |
| Mantenimento | 12°C | Mantenimento | — |
Tabella 4: Condizioni di termociclaggio PCR per l'amplificazione di ancTREK1. Parametri di termociclaggio utilizzati per l'amplificazione della sequenza di DNA ancTREK1, compresi i passaggi di denaturazione, annealing, allungamento e allungamento finale.
| Componente | Digestione dell'inserto (50 µL) | Digestione del vettore e de-fosforilazione (50 µL) |
| ddH₂O | Fino a 50 µL | Fino a 50 µL |
| 10× ANZA Red Buffer | 5 µL | 5 µL |
| DNA | prodotto PCR ancTREK1 (2 µg) | DNA del vettore pEG BacMam C-term 3C eGFP His8 (2 µg) |
| Anza™ EcoRI | 0,5 µL | 0,5 µL |
| Anza™ NotI | 0,5 µL | 0,5 µL |
| Anza™ Alkaline Phosphatase | — | 1 µL |
Tabella 5: Digestione enzimatica del frammento e del vettore per il clonaggio di ancTREK1. Condizioni della reazione per la digestione con enzimi di restrizione del prodotto PCR di ancTREK1 e del vettore di espressione mediante gli enzimi EcoRI e NotI. La digestione del vettore include un ulteriore passaggio di de-fosforilazione utilizzando fosfatasi alcalina per prevenire l'autoligazione.
| Componente | Quantità (reazione da 20 µL) |
| ddH₂O | Fino a 20 µL |
| 10× T4 DNA Ligase Buffer | 2 µL |
| ancTREK1 insert DNA (843 bp) | 10 ng |
| pEG BacMam C-term 3C eGFP His8 vector DNA (7673 bp) | 30 ng |
| T4 DNA Ligase | 1 µL |
Tabella 6: Condizioni di ligazione vettore-inserzione per il clonaggio di ancTREK1. Miscela di reazione per la ligazione dell'inserzione ancTREK1 nel vettore di espressione pEG BacMam in un rapporto molare 1:3 utilizzando la ligasi T4 del DNA.
| Componente | Concentrazione finale | Quantità (fino a 5 mL) |
| ddH₂O | — | Fino a 5 mL |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| Inibitore proteasico PMSF (100 mM) | 1 mM | 50 µL |
| Inibitore proteasico leupeptina (1 mg/mL) | 1 µg/mL | 5 µL |
| Inibitore proteasico aprotinina (1 mg/mL) | 1 µg/mL | 5 µL |
| Inibitore proteasico pepstatina A (1 mg/mL) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2.5 µL |
| n-Dodecil-β-D-maltoside (DDM, 10%) | 1% | 500 µL |
| Emisuccinato di colesterolo (CHS, 2%) | 0,10% | 250 µL |
Tabella 7: Composizione del buffer di lisi per l'estrazione di proteine di membrana. Formulazione del buffer di lisi utilizzata per la solubilizzazione delle proteine di membrana, inclusi sali, agenti tamponanti, inibitori delle proteasi, nucleasi e detergenti. Nota: i buffer devono essere preparati freschi prima dell'uso.
| Tampone di equilibrazione (volume totale 10 mL) | ||
| Componente | Concentrazione finale | Quantità |
| ddH₂O | — | Fino a 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0,05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0,01% | 50 µL |
| Tampone di lavaggio (volume totale 10 mL) | ||
| Componente | Concentrazione finale | Quantità |
| ddH₂O | — | Fino a 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0,05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0,01% | 50 µL |
| Imidazolo pH 8 (5 M) | 30 mM | 60 µL |
| Tampone di eluizione (volume totale 10 mL) | ||
| Componente | Concentrazione finale | Quantità |
| ddH₂O | — | Fino a 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0,05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0,01% | 50 µL |
| Imidazolo pH 8 (5 M) | 300 mM | 600 µL |
Tabella 8: Composizioni dei tamponi IMAC per la purificazione di ancTREK1. Formulazioni dei tamponi di equilibrazione, lavaggio ed eluizione utilizzati per la purificazione di ancTREK1 mediante cromatografia di affinità con ioni metallici immobilizzati. Nota: le soluzioni possono essere conservate a 4°C per un massimo di sei mesi.
| Tampone 1 (volume totale di 10 mL) | ||
| Componente | Concentrazione finale | Quantità |
| ddH₂O | — | Fino a 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0,05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0,01% | 50 µL |
| Tampone 2 (volume totale di 10 mL) | ||
| Componente | Concentrazione finale | Quantità |
| ddH₂O | — | Fino a 10 mL |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0,05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0,01% | 50 µL |
Tabella 9: Composizioni dei tamponi per la cromatografia di affinità con nanocorpo anti-GFP. Formulazioni dei tamponi utilizzati per la purificazione di ancTREK1 mediante cromatografia di affinità con nanocorpo anti-GFP. Nota: le soluzioni possono essere conservate a 4°C per un massimo di sei mesi.
5. Registrare l'attività dei canali ionici
- Valutare la qualità della membrana
- Chiudere il coperchio della gabbia di Faraday.
- Applicare un’onda di tensione triangolare (100 mV, 10 Hz) per valutare la capacità della membrana.
- Applicare passi di tensione (incrementi di ±20 mV fino a ±200 mV) per valutare la resistenza della membrana.
- Monitorare i valori di corrente e di rumore.
NOTA: Utilizzare una frequenza di campionamento di 5 kHz e un filtro passa-basso a 2,5 kHz, salvo diversamente indicato.
- Registrare l'attività di ancTREK1
- Diluire la proteina ancTREK1 nella soluzione di registrazione a circa 2 µg/mL.
NOTA: Durante la diluizione, effettuare diluizioni intermedie nel Buffer 1 secondo necessità, mantenendo la concentrazione del detergente al di sopra della sua concentrazione critica di micelle (CMC), prima della diluizione finale nella soluzione di registrazione. - Aggiungere 1 µL della soluzione proteica diluita nella camera cis vicino all’apertura della setta.
NOTA: Il potenziale di membrana è definito come Vcis − Vtrans. L’orientamento del canale non è stato determinato direttamente in questo studio; pertanto, le registrazioni sono descritte in relazione alla polarità della tensione applicata piuttosto che all’assegnazione di un lato specifico della membrana. - Applicare passi di tensione in incrementi di ±20 mV fino a ±120 mV.
- Monitorare gli eventi di inserimento del canale.
NOTA: L’inserimento del canale è indicato da transizioni discrete della corrente tra stati chiusi e aperti. Se non si verifica alcun inserimento, aggiungere ulteriore proteina o riformare la membrana. Se si inseriscono più canali, rompere la membrana e ridurre la concentrazione di proteina.
- Diluire la proteina ancTREK1 nella soluzione di registrazione a circa 2 µg/mL.
Risultati
Caratteristiche corrente–tensione (I–V) delle membrane PLB
La natura intrinsecamente idrofoba delle membrane a doppio strato le rende impermeabili alle specie cariche. Tuttavia, l'applicazione di un campo elettrico esterno può indurre la formazione di pori transitori di dimensioni nanometriche, alterando così la permeabilità e la conduttanza della membrana33. Per valutare la qualità dei doppio strati artificiali formati da lipidi 1,2-difitanoil-sn-glicerolo-3-fosfocolina, sono state analizzate la capacità, la resistenza e le caratteristiche corrente–tensione della membrana in assenza di proteine inserite. È stata applicata una serie di passi di tensione compresi tra ±20 e ±200 mV (con incrementi di ±20 mV) e sono state registrate le correnti transmembrana risultanti. I dati sono stati campionati a 5 kHz e filtrati passa-basso a 2.5 kHz.
La capacità della membrana (Cm) e la resistenza della membrana (Rm) rappresentano parametri fondamentali per valutare la qualità del bilayer. Il PLB può essere descritto da un circuito equivalente resistore-condensatore (RC), in cui la membrana si comporta come un condensatore in parallelo con un resistore34. La componente capacitiva riflette la capacità della membrana di immagazzinare carica, mentre la componente resistiva riflette la permeabilità agli ioni. L'applicazione di un'onda di tensione triangolare genera una risposta di corrente capacitiva di forma quadrata, proporzionale alla capacità della membrana secondo la seguente relazione:
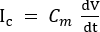 (1)
Qui, Cm è la capacità della membrana, V è la tensione applicata e t è il tempo. Dopo la formazione della membrana, i valori di capacità possono aumentare nel tempo a causa dell'assottigliamento progressivo del doppio strato35. Considerando la membrana come un condensatore a piastre parallele, la capacità è correlata all'area e allo spessore della membrana secondo la seguente relazione:
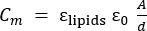 (2)
Qui, εlipids è la costante dielettrica del nucleo lipidico (~2), ε0 è la permittività dello spazio libero, A è l'area della membrana e d è lo spessore della membrana36,37.
La resistenza della membrana è stata determinata utilizzando la legge di Ohm33:
 (3)
In questo caso, V è la tensione applicata e Rm è la resistenza della membrana. In assenza di canali ionici, la corrente di membrana rimane vicina a 0 pA, corrispondente a valori di resistenza nell'ordine dei giga-ohm (GΩ)33.
La relazione I–V ha mostrato un comportamento lineare (ohmico) tra 0 e ±200 mV per i dispositivi BLMchipMM con aperture di 75 e 100 µm. L'adattamento lineare dei dati ha fornito valori di resistenza della membrana di 847 ± 16 GΩ (n = 6) per l'apertura di 75 µm (Figura 8A, cerchi) e di 980 ± 32 GΩ (n = 7) per l'apertura di 100 µm (Figura 8A, quadrati). I valori di rumore RMS, misurati su segmenti di 3 s della traccia di corrente, sono stati di 3,1 ± 2 pA (n = 7) per l'apertura di 100 µm e di 2,6 ± 0,1 pA (n = 6) per quella di 75 µm. La stabilità della membrana è stata valutata misurando la resistenza a intervalli di circa 2 min per una durata totale di 1 h (Figura 8B). Membrane ben formate sono rimaste stabili per oltre 1 h, tempo sufficiente per la maggior parte degli esperimenti elettrofisiologici. Le membrane hanno generalmente tollerato potenziali applicati fino a ±200 mV senza segni di instabilità, mentre il collasso si è verificato tra ±220 e ±300 mV a seconda del singolo bicchierino. Le membrane sono state considerate adatte all'inserimento di proteine quando i valori di capacità erano compresi tra 40 e 60 pF per aperture di 75 µm e tra 60 e 90 pF per aperture di 100 µm, con valori di corrente ≤0,5 pA a 100 mV.
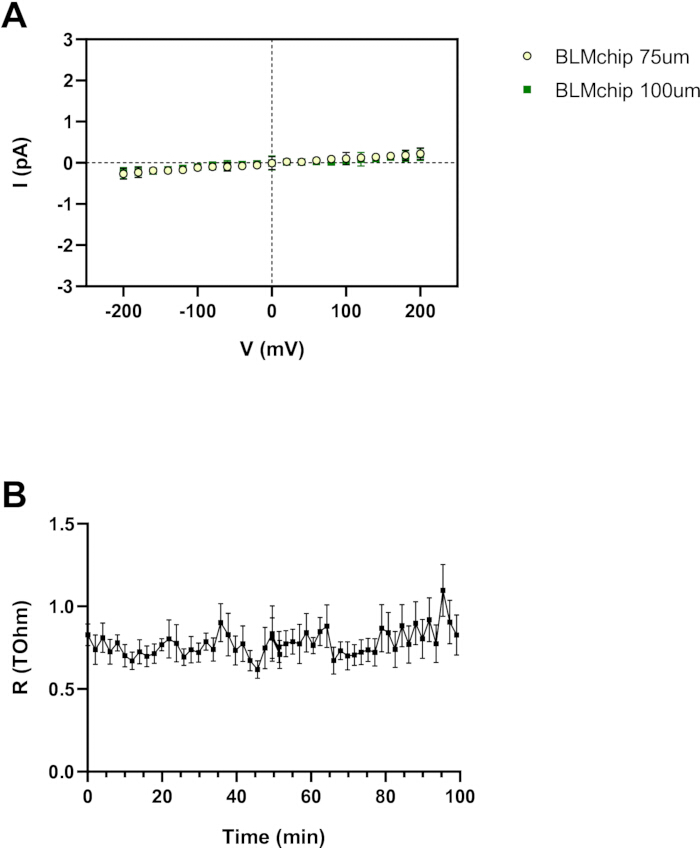
Figura 8: Caratterizzazione elettrica dei PLB. (A) Relazioni corrente–tensione (I–V) di bicapati formati su aperture da 75 µm e 100 µm, che mostrano un comportamento lineare (ohmico) tra ±200 mV. La regressione lineare fornisce valori di resistenza della membrana di 847 ± 16 GΩ (n = 6) e 980 ± 32 GΩ (n = 7), rispettivamente. (B) Stabilità della membrana valutata monitorando la resistenza per 1 h a intervalli di 2 min. Le membrane rimangono stabili fino a ±200 mV e si rompono a tensioni comprese tra ±220 e ±300 mV. I dati sono riportati come media ± errore standard della media (SEM). Cliccare qui per visualizzare una versione ingrandita di questa figura.
Caratterizzazione iniziale del comportamento di canali singoli di ancTREK1
L'ancTREK1 sintetico è stato purificato e reintrodotto in liposomi planari (PLBs) e l'attività a canale singolo è stata monitorata utilizzando protocolli a gradino di tensione compresi tra −120 e 120 mV con incrementi di 20 mV. Le registrazioni a canale singolo (Figura 9A e Figura 9B) hanno rivelato il comportamento caratteristico di apertura e chiusura rapida tipico dei canali K2P38. A 80 mV, l'ampiezza media della corrente era di 13,02 ± 0,78 pA (n = 5), mentre a −80 mV l'ampiezza della corrente aumentava a −18,72 ± 0,25 pA (n = 5) (Figura 9C). La relazione corrente–tensione risultante ha mostrato correnti misurabili a livello di canale singolo sia a potenziali positivi che negativi in condizioni simmetriche di potassio 200 mM in assenza di Mg2+ (Figura 9D). Poiché le ampiezze delle correnti sono state stimate da istogrammi di tutti i punti delle registrazioni acquisite a 5 kHz e filtrate passa-basso a 2,5 kHz, questa relazione I–V è presentata come prova descrittiva del principio piuttosto che come una caratterizzazione biofisica esaustiva.
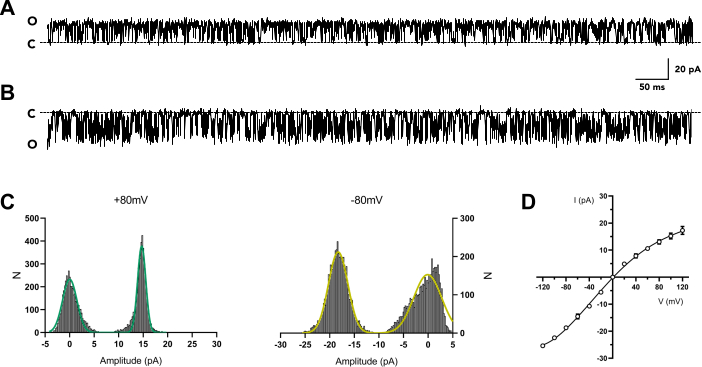
Figura 9: Attività di un singolo canale dell'ancTREK1 sintetico. (A e B) Tracce rappresentative della corrente di un singolo canale registrate rispettivamente a 80 mV e −80 mV. Le linee tratteggiate indicano il livello di chiusura del canale. (C) Istogrammi di ampiezza di tutti i punti per potenziali positivi (sinistra) e negativi (destra). (D) Relazione corrente-tensione (I–V) dell'ancTREK1 in condizioni simmetriche di 200 mM di potassio (K+) in assenza di cationi bivalenti. La curva è stata adattata utilizzando un polinomio di quarto ordine e i valori di conduttanza sono stati ricavati dalla pendenza a ±80 mV. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Sebbene ancTREK1 manchi di regioni N- e C-terminali estese rispetto ai canali TREK1 dei mammiferi, è rimasto funzionalmente attivo dopo la ricostruzione. A differenza del TREK1 dei mammiferi, che mostra modalità ad alta e bassa conduttanza (132 ± 5 pS e 41 ± 5 pS a potenziali positivi, rispettivamente)39, ancTREK1 ha mostrato soltanto la modalità ad alta conduttanza. La conduttanza del singolo canale a potenziali positivi è stata di 112,8 ± 10,8 pS (80 mV, n = 5), in accordo con i valori riportati per i canali TREK (85–130 pS in condizioni simmetriche di potassio)38,39,40,41. A potenziali negativi, la conduttanza è aumentata a 205,6 ± 2,05 pS (−80 mV, n = 5), coerentemente con il comportamento precedentemente descritto per TREK139. In particolare, ancTREK1 ha mostrato una probabilità di apertura normalizzata (NPo) più elevata rispetto alle misurazioni di TREK1 ottenute mediante configurazioni con patch asportata42. La relazione NPo–tensione ha mostrato un'attività del canale maggiore a potenziali positivi, raggiungendo 0,78 ± 0,02 (n = 5) a 80 mV. Al contrario, l'NPo è diminuito a potenziali negativi, con valori di 0,53 ± 0,04 a −80 mV e di 0,28 ± 0,03 a −120 mV (Figura 10).
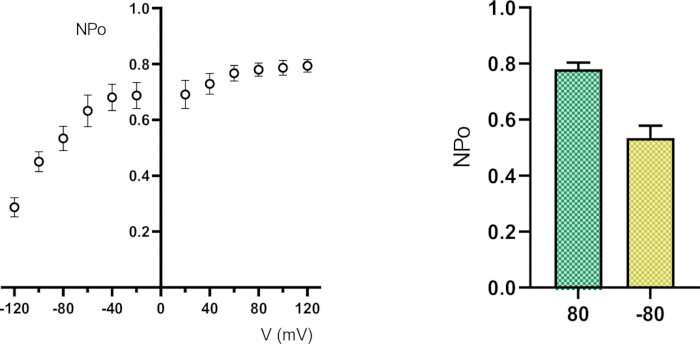
Figura 10: Analisi della dipendenza dal voltaggio dell'attività monocanale di ancTREK1. Probabilità di apertura normalizzata (NPo) in funzione del potenziale di membrana (a sinistra) e confronto della NPo a 80 mV e −80 mV (a destra), che mostra un aumento dell'apertura del canale a potenziali positivi. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Figura supplementare 1. Sequenza amminoacidica del canale del potassio (K2P) sintetico ancestrale a due pori (ancTREK1). La sequenza amminoacidica completa di ancTREK1 utilizzata per le registrazioni elettrofisiologiche. La sequenza è stata ricostruita mediante inferenza della sequenza ancestrale a partire da un insieme di dati curato di membri della famiglia TREK/TRAAK, inclusi sequenze ortologhe raccolte dai database UniProt e NCBI, filtrate per motivi conservati del poro, allineate e analizzate mediante filogenetica a massima verosimiglianza.Cliccare qui per scaricare questo file.
Discussione
In questo studio, abbiamo utilizzato la tecnica PLB per valutare le proprietà elettrofisiologiche di un canale K2P sintetico a livello di singola molecola. Tra i vari modelli planari di lipidi descritti in letteratura scientifica, ci siamo concentrati sulla formazione di membrane lipidiche bilayer (BLM), che vengono dipinte su un'apertura dal diametro compreso tra 50 e 140 µm, praticata su una superficie verticale non polare che separa due compartimenti acquosi. Questa configurazione permette di simulare l'ambiente della membrana cellulare mantenendo il controllo sui parametri sperimentali, inclusa la preparazione della membrana lipidica e la composizione dell'elettrolita (ad esempio, forza ionica e pH)3. Abbiamo ricreato le BLM utilizzando il metodo di Montal–Mueller (a ripiegamento)5, in cui la membrana si assembla spontaneamente quando due monocati di lipidi, precedentemente depositati all'interfaccia aria–acqua delle due soluzioni acquose, si uniscono sull'apertura mediante l'aumento del livello dell'acqua.
Il protocollo qui presentato per la formazione della membrana è molto intuitivo; tuttavia, diversi passaggi critici influenzano fortemente il successo sperimentale. Per garantire un corretto collegamento elettrico tra il BLMchipMM e l'amplificatore, è essenziale evitare la clorurazione delle estremità dei fili Ag/AgCl inseriti nei connettori della PCB. Durante il montaggio del BLMchipMM, un posizionamento errato dei fili potrebbe causare il contatto con la carcassa dell'amplificatore, provocando cortocircuiti e saturazione del segnale. Un altro fattore critico è la procedura di pretrattamento dell'apertura: una forza eccessiva durante l'applicazione della soluzione di pretrattamento potrebbe danneggiare il setto in poliimide, mentre un'errata manipolazione della soluzione elettrolitica—in particolare l'immersione della zona dell'apertura—può compromettere la formazione della membrana. Inoltre, una pulizia accurata della camera di registrazione del BLMchipMM è fondamentale per la riproducibilità. L'uso di alcol isopropilico al 100%, seguito da un accurato risciacquo e un'essiccazione completa, assicura che residui non interferiscano con esperimenti successivi.
Sono possibili diverse modifiche al protocollo. Mentre la clorurazione mediante immersione in candeggina rappresenta un approccio pratico e ampiamente utilizzato, possono essere impiegati anche metodi alternativi come l'elettrodeposizione43. Analogamente, sono possibili variazioni nella pre-trattamento e nella preparazione dei lipidi. Le soluzioni standard per il pre-trattamento consistono tipicamente in alcani a catena lunga sciolti in solventi idrocarburici volatili36; sebbene sia comunemente usata una soluzione al 1% di esadecano in n-esano, altri solventi potrebbero essere adatti. La composizione lipidica può inoltre essere adattata in base alle esigenze sperimentali. Sebbene i lipidi DPhPC offrano una stabilità ottimale della membrana, possono essere utilizzate miscele lipidiche alternative, comprese composizioni naturali o sintetiche36. Un vantaggio fondamentale dei bilayer lipidici verticali formati mediante il metodo di ripiegamento è la possibilità di generare membrane asimmetriche, in cui ciascun strato è costituito da specie lipidiche diverse5,22, una caratteristica nota per influenzare la funzione delle proteine di membrana.
La risoluzione dei problemi nella formazione della membrana generalmente prevede aggiustamenti dei livelli della fase acquosa. Se inizialmente la formazione della membrana non avviene, abbassare e alzare ripetutamente il livello del buffer in un compartimento può facilitare l'assemblaggio del doppio strato. Se questo non ha successo, l'applicazione di una bolla d'aria sull'apertura può favorire la ridistribuzione dei lipidi e la formazione della membrana. Un fallimento persistente indica solitamente problemi legati al pretrattamento o a contaminazioni, nel qual caso si raccomanda di pulire la camera di registrazione e ripetere l'esperimento.
I componenti principali di questa configurazione comprendono l'amplificatore compatto eNPR da 100 kHz e il BLMchipMM. L'amplificatore è un sistema voltage-clamp compatto e a basso rumore che elimina la necessità di dispositivi esterni aggiuntivi, inclusi gabbie di Faraday esterne, poiché la stessa carcassa dell'amplificatore fornisce una schermatura elettromagnetica efficace. Il BLMchipMM è una camera di registrazione preassemblata e miniaturizzata, integrata con una scheda PCB per il collegamento diretto all'amplificatore. È costituita da due compartimenti a forma di C separati da un setto in poliimide con un'apertura conica realizzata al laser, dove viene formata la membrana artificiale. Le dimensioni ridotte del sistema, con volumi dei compartimenti di circa 110 µL, riducono in modo significativo il consumo di reagenti e l'induttanza intrinseca, migliorando così la qualità del segnale. Inoltre, il dispositivo può essere riutilizzato più volte senza smontaggio, se vengono seguite adeguate procedure di pulizia, riducendo la variabilità e migliorando la riproducibilità sperimentale.
Nonostante questi vantaggi, alcune limitazioni devono essere prese in considerazione. L'attuale configurazione non include moduli integrati per il controllo di temperatura, pressione o perfusione. È stato riportato che la tensione intrinseca della membrana influisce sui canali meccanosensibili come TREK144,45,46; tuttavia, la configurazione attuale non prevede una manipolazione controllata della tensione della membrana, e in questo contesto non vengono tratte conclusioni meccanicistiche. Nel complesso, questa piattaforma fornisce un sistema solido e accessibile per la registrazione dell'attività dei canali ionici in membrane artificiali. In questo studio, abbiamo analizzato il canale sintetico K2P ancTREK1, un canale ancestrale derivato computazionalmente dalla sottofamiglia TREK. I dati registrati dimostrano che ancTREK1 purificato, recostituito in PLB, mostra un comportamento a singolo canale coerente con le proprietà di conduttanza tipiche di TREK1. In condizioni simmetriche di potassio 200 mM senza Mg2+, il canale mostra una relazione I–V misurabile, con valori di ampiezza di circa 13 pA a 80 mV e −19 pA a −80 mV. Inoltre, ancTREK1 presenta la modalità di conduttanza caratteristicamente elevata osservata nei canali TREK1, con una conduttanza maggiore a potenziali negativi (~205,6 pS) rispetto a potenziali positivi (~112,8 pS). In particolare, ancTREK1 mostra un NPo aumentato a potenziali positivi (0,78 a 80 mV) e un NPo ridotto a potenziali negativi (0,53 a −80 mV e 0,28 a −120 mV), in contrasto con quanto osservato in configurazioni con patch escissi42. Questi risultati supportano l'utilizzo di questo sistema per la registrazione, a livello di principio dimostrativo, dell'attività a singolo canale di proteine di membrana reconstituite.
Dichiarazioni
F.T. e A.P. sono rispettivamente il CEO e un dipendente di Elements S.r.l. Tutti gli altri autori dichiarano di non avere interessi concorrenti.
Ringraziamenti
Ringraziamo Sofia Diletta Guzzeloni per l'aiuto fornito nella procedura di trasfezione cellulare. Siamo grati ai dipendenti di Elements, dottor Leon Juarez e dottor Michelangelo Paci. Questo lavoro è stato sostenuto dal Dipartimento di Medicina Molecolare dell'Università di Pavia, Italia, nell'ambito dell'iniziativa Dipartimenti di Eccellenza (2023–2027), dalla Fondazione Cariplo (#2019-1809) e dal programma di ricerca PNRR CN00000013 „Centro Nazionale per l'HPC, Big Data e la Quantum Computing” assegnato a M.L.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 1,2-difitanoil-sn-glicerolo-3-fosfocolina (DPhPC) | Avanti Polar Lipids | 850356P | Formazione di bicelle lipidiche artificiali |
| 2-propanolo (≥99,5%) | Honeywell | 24137-5L | Pulizia del dispositivo BLMchipMM |
| Agarosio | Fisher BioReagents | BP160-500 | Preparazione di gel di agarosio |
| Sistema orizzontale per elettroforesi su gel di agarosio | BTLabSystems | BT102 | Separazione di frammenti di DNA |
| Ampicillina | Fisher BioReagents | BP1760-25 | Selezione di batteri trasformati |
| Resina di Sepharose con nanocorpo anti-GFP (autoprodotto) | — | — | Purificazione per affinità di proteine marcate con GFP |
| Fosfatasi alcalina Anza | Invitrogen | IVGN2208 | Deposforilazione del vettore |
| Anza EcoRI | Invitrogen | IVGN0116 | Digestione con enzimi di restrizione |
| Anza NotI | Invitrogen | IVGN0014 | Digestione con enzimi di restrizione |
| Buffer Rosso Anza (10×) | Invitrogen | IVGN2008 | Buffer per digestione con enzimi di restrizione |
| Inibitore delle proteasi aprotinina | Fisher Scientific | 15996008 | Prevenzione della degradazione proteica |
| Centrifuga da banco | Eppendorf | EP5420000164 | Formazione del pellet cellulare e preparazione dei campioni |
| BLMchipMM | Elements s.r.l. | — | Formazione di bicelle lipidiche piane |
| Emisuccinato di colesterolo (CHS) | Anatrace | CH210 | Stabilizzazione delle proteine di membrana |
| Blu Coomassie Brillante | Sigma-Aldrich | 1125530025 | Colorazione delle proteine |
| Disinfettante comune a base di ipoclorito | — | — | Clorurazione dei fili di Ag |
| DNasi I | Sigma-Aldrich | 11284932001 | Riduzione della viscosità del lisato |
| Acqua bidistillata | — | — | Preparazione di tamponi e soluzioni |
| Etilene (puro, 99,9%) | Girelli Alcool s.r.l. | — | Pulizia dei fili Ag/AgCl |
| Bromuro di etidio | Sigma-Aldrich | 1116080030 | Colorazione del DNA |
| Carta vetrata a grana finissima | — | — | Rimozione del rivestimento Ag/AgCl dai fili |
| Amplificatore eNPR 100 kHz | Elements s.r.l. | — | Registrazioni elettrofisiologiche |
| Kit Gel-Out per estrazione del DNA da agarosio | A&A Biotechnology | 023-250 | Purificazione del DNA |
| Scala molecolare di DNA GeneRuler 1 kb | Thermo Fisher Scientific | SM0311 | Riferimento per la dimensione del DNA |
| FreeStyle™ 293-F | Thermo Fisher Scientific | R79007 | Espressione della proteina ancTREK1 |
| HEPES (≥99,5%) | Sigma-Aldrich | H3375-500G | Agente tampone |
| Esadecano (≥99%) | Sigma-Aldrich | H6703-100ML | Pretattamento dell'apertura |
| Esaano (≥99%) | Sigma-Aldrich | 139386-100ML | Solvente lipidico |
| Colorante per caricamento del DNA autoprodotto 5× | — | — | Preparazione del campione di DNA |
| Buffer Laemmli SDS autoprodotto 6× (riducente) | — | — | Preparazione del campione proteico |
| Soluzione autoprodotto per decolorazione | — | — | Decolorazione dei gel SDS-PAGE |
| Proteasi HRV-3C autoprodotto | — | — | Scissione delle proteine di fusione |
| Buffer di corsa SDS-PAGE autoprodotto (10×) | — | — | Buffer per elettroforesi SDS-PAGE |
| Imidazolo | Alfa Aesar | A10221 | Eluizione di proteine con tag His |
| Colonne per purificazione in batch | — | — | Flussi di lavoro per la purificazione delle proteine |
| Incubatore agitatore Innova44 | New Brunswick Innova | M1282 | Crescita delle colture cellulari |
| KCl | Honeywell | 31248-1KG | Preparazione di elettroliti e tamponi |
| Brodo LB (Lennox) | Condalab | 1231 | Coltura batterica |
| Inibitore delle proteasi leupeptina | Thermo Scientific | 78435 | Prevenzione della degradazione proteica |
| Cloruro di magnesio esaidrato | Acros Organics | 447700010 | Componente del tampone |
| Spettrofotometro Nanodrop | DeNovix | DS-11 | Quantificazione di DNA e proteine |
| n-Dodecil-β-D-maltoside (DDM) | NeoBiotech | NB-19-0056-25G | Solubilizzazione delle proteine di membrana |
| Resina Ni Sepharose High Performance | Cytiva | 17526801 | Purificazione IMAC |
| Notebook (computer) | — | — | Controllo degli strumenti e acquisizione dati |
| Ultracentrifuga Optima LE-80K | Beckman | 365668 | Isolamento della frazione di membrana |
| Pentano (≥99%) | Sigma-Aldrich | 236705-100ML | Solvente lipidico |
| Inibitore delle proteasi pepstatina A | Thermo Scientific | 78436 | Prevenzione della degradazione proteica |
| Buffer Phusion GC (5×) | Thermo Fisher Scientific | F519 | Buffer per PCR |
| Polimerasi del DNA Phusion ad alta fedeltà | Thermo Fisher Scientific | F530S | Amplificazione PCR |
| Inibitore delle proteasi PMSF | Thermo Scientific | 36978 | Protezione delle proteine durante il lisaggio |
| Polietilenimina (PEI) | Clinisciences | 24765-100 | Reagente per trasfezione |
| Gel preformato ProteinEle Tris-Glicina (4–20%) | TransGen Biotech | DG101-01-V2 | Separazione delle proteine |
| Sistema di elettroforesi su gel SDS-PAGE | Bio-Rad | 1658002FC | Elettroforesi delle proteine |
| Butirrato di sodio | Fisher Scientific | A11079 | Potenziatore dell'espressione proteica |
| Ligasi del DNA T4 | Thermo Fisher Scientific | EL0011 | Ligazione del DNA |
| Buffer per ligasi del DNA T4 (10×) | Thermo Fisher Scientific | B69 | Buffer per ligazione |
| Ciclatore termico (Mastercycler Nexus) | Eppendorf | 6331000025 | Amplificazione PCR |
| Base Tris | Sigma-Aldrich | T1503-1KG | Preparazione di tamponi |
| Agar triptone SOYA con lecitina e polisorbato 80 | HiMedia | M449-5KG | Piastre per batteri |
| Due fili di Ag | Elements s.r.l. | — | Elettrodi per elettrofisiologia |
| Concentratore ultraveloce (cutoff 50 kDa) | Merck Amicon | UFC8050 | Concentrazione delle proteine |
| Vettore di espressione pEG BacMam | Addgene | 160687 | Espressione proteica |
| Cavo USB | — | — | Collegamento tra amplificatore e computer |
Riferimenti
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo