Questo protocollo descrive un metodo per produrre e valutare l'attività antimicrobica e la citotossicità del peptide cationico Mel4 e del mimetico dei peptidi RK758. Integrando sintesi chimica, espressione ricombinante e saghi funzionali standardizzati, fornisce un flusso di lavoro semplificato per la produzione e il test di peptidi e mimetici di piccole molecole.
Articolo metodologico
Produzione e test di peptidi antimicrobici e dei loro mimetici
In questo articolo
Sommario
Abstract
I peptidi antimicrobici (AMP) e i loro mimici sintetici stanno emergendo come alternative promettenti agli antibiotici convenzionali, in particolare in risposta alla crescente minaccia della resistenza antimicrobica. Gli AMP naturali sono componenti essenziali del sistema immunitario innato e mostrano un'attività ad ampio spettro contro diversi patogeni microbici, mentre i loro mimetici sintetici, inclusi peptidomimetici e analoghi a base di polimeri, sono progettati per migliorare la stabilità, ridurre la tossicità e migliorare la farmacocinetica. Questo studio mira a dimostrare la produzione, caratterizzazione e valutazione biologica degli AMP e dei mimici peptidici di piccole molecole. Gli AMP vengono generati utilizzando sistemi di espressione ricombinante o sintesi peptidica in fase solida, consentendo un controllo preciso sulle proprietà della sequenza degli amminoacidi e delle strutture. I mimici peptidici a piccole molecole vengono sintetizzati utilizzando strategie chimiche, tra cui un impalcatura di acido antrainiaco (acido 2-aminobenzoico) per migliorare la stabilità strutturale e le prestazioni farmacologiche. Dopo la sintesi, i composti vengono purificati e caratterizzati chimicamente prima dei test biologici. L'attività antimicrobica viene valutata utilizzando saghi in vitro di concentrazione inibitoria minima (CMI) e la citotossicità viene misurata rispetto alle linee cellulari di mammiferi per determinarne la selettività. I risultati rappresentativi dimostrano che sia gli AMP che i loro mimici mostrano una potente attività contro Klebsiella pneumoniae ed Escherichia coli, evidenziando il loro potenziale antibatterico ad ampio spettro. Nel complesso, questo protocollo fornisce un quadro completo e riproducibile per lo sviluppo e la valutazione sistematica dei peptidi antimicrobici e dei loro mimici come agenti anti-infettivi di nuova generazione.
Introduzione
La resistenza agli antimicrobici (AMR) è emersa come una grande minaccia sanitariaglobale 1. Secondo l'Organizzazione Mondiale della Sanità (OMS), la RAM è stata direttamente responsabile di circa 1,27 milioni di morti nel 2019 e ha contribuito a circa 4,95 milioni di decessi in tutto ilmondo 2. L'uso eccessivo e improprio degli antibiotici esistenti ha evidenziato l'emergere di patogeni multi-resistenti ai farmaci, lasciando opzioni di trattamento limitate contro microbi come batteri, funghi, virus eprotozoi 2,3. Questa crisi dell'AMR ha dato il via alla ricerca di strategie antimicrobiche alternative efficaci, stabili e meno soggette allo sviluppo della resistenza. Tra i candidati più promettenti ci sono gli AMP e i loro mimicisintetici 4.
Gli AMP sono molecole naturali che svolgono un ruolo vitale nei sistemi immunitari innati di esseri umani, animali epiante 5. Tipicamente mostrano attività antimicrobica ad ampio spettro attraverso meccanismi come la rottura della membrana, l'interferenza con il metabolismo microbico e la modulazione delle risposteimmunitarie 6. Ad esempio, il peptide catelicidano umano LL-37 ha dimostrato una potente attività contro batteri, funghi evirus 7. Tuttavia, nonostante il loro potenzialepromettente 4, l'uso terapeutico su larga scala degli AMP naturali è spesso limitato dalla loro bassa abbondanza naturale. Inoltre, ottenere le loro forme attive da fonti naturali può essere una sfida, poiché molti peptidi richiedono specifiche modifiche post-traduzionali per diventare funzionalmenteattivi 8.
Per affrontare le limitazioni associate agli AMP naturali, i ricercatori hanno sviluppato analoghi sintetici e imitatori peptidici. I mimici possono essere piccole molecole progettate razionalmente che preservano l'efficacia antimicrobica degli AMP naturali offrendo al contempo una maggiore stabilità, selettività e prestazionifarmacocinetiche 9.
I recenti progressi nella chimica dei peptidi e nella biologia molecolare hanno permesso la produzione efficiente di AMP attraverso metodi come la sintesi peptidica in fase solida (SPPS), la sintesi peptidica in fase liquida (LPPS) e i sistemi di espressione ricombinante, fornendo un controllo preciso su parametri strutturali chiave, come la composizione della sequenza, la distribuzione delle cariche e l'anfipaticità10. I sistemi di espressione ricombinante sono adatti alla produzione su larga scala e a polipeptidi più lunghi o complessi. Una volta ottimizzati, i metodi ricombinanti - tipicamente impieganti sistemi di fermentazione o bioreattori - offrono un approccio economico e scalabile per la produzione industriale di peptiditerapeutici 11.
Questo articolo dimostra approcci complementari per la produzione e la valutazione degli AMP e dei loro mimetici. Sebbene la sintesi chimica in fase solida sia ampiamente utilizzata per la generazione di peptidi, può diventare inefficiente e costosa per sequenze più lunghe o peptidi altamente cationici a causa di aggregazione, basse rese e sfide dipurificazione 12. Al contrario, la sintesi chimica rimane altamente vantaggiosa per generare brevi mimici peptidici con modifiche strutturali precise e residui non naturali13. I sistemi di espressione ricombinanti, invece, consentono una produzione biosintetica economica e scalabile di peptidi più lunghi o strutturalmente complessi in ospiti microbici, superando le limitazioni di lunghezza e resa associate agli approcci puramentesintetici 12. Integrando strategie di produzione chimica e biologica, questo quadro combinato offre maggiore flessibilità, scalabilità e potenziale traslazionale rispetto a entrambi i metodi singoli, rendendolo particolarmente adatto alla ricerca meccanicistica e allo sviluppo terapeutico.
Dopo la produzione, la valutazione biologica di questi composti viene effettuata tramite due test chiave. Il test di attività antimicrobica misura il potenziale inibitorio di ogni peptide o mimetico rispetto ai microrganismi rappresentativi, fornendo indicazioni sul loro spettro e potenza. Il test di tossicità valuta la citocompatibilità utilizzando linee cellulari di mammiferi per garantire sicurezza e selettività. Integrando questi test sperimentali a passaggi, sintesi e test funzionali, questo protocollo fornisce un quadro completo per caratterizzare l'efficacia e la sicurezza degli AMP e dei loro analoghi sintetici. Insieme, queste metodologie stabiliscono un approccio sistematico allo sviluppo e alla validazione di nuovi agenti antimicrobici per affrontare la crescente sfida globale della RAM (AMR).
Protocollo
1. Sintesi del peptide di anthranilamide mimic RK758
- RK758 è sintetizzato internamente a partire dai principali blocchi organici costitutivi N-benzil-carbamato L-triptofano protetto e 5-bromo-anidride isatoica. Sono stati segnalati diversi approcci sintetici; Tuttavia, l'approccio riportato qui sotto ha dimostrato buona scalabilità e rendimento complessivo, un miglioramento rispetto ai protocolli sintetici precedentemente pubblicati14,15.
- Metodo 1: Sintesi del carbamato benzilico (S)-(1-((2-((tert-butossicarbonil)ammino)etil)ammino)-3-(1H-indol-3-il)-1-oxopropano-2-il) carbamato (2):
- In una fiaschetta a collo singolo da 250 mL, dotata di una barra di agitazione magnetica, si pesa il Cbz-L-triptofano (10,0 g, 29,6 mmol) e si dissolve in 30 mL di DMF e 80 mL di DCM.
ATTENZIONE: Si sospetta che il DMF causi difetti congeniti; Evita di maneggiare se sei in gravidanza e maneggiare solo con una cappa a fumo. - Aggiungi HOBt (4,08 g, 29,6 mmol), N-Boc-etilenediamine (4,66 mL, 29,6 mmol) e diisopropiletilamina (8,31 mL, 59,0 mmol) e mescola per 15 minuti.
- Aggiungi sale cloridrato EDC (11,3 g, 59 mmol). Mescola a temperatura ambiente per 20 ore.
ATTENZIONE: I carbodiimidi, come l'EDC, sono noti per sensibilizzare alle reazioni anafilattiche in caso di esposizione ripetuta; Assicurati di indossare guanti adeguati. - Controlla la TLC usando DCM/acetato di etil 1:1 (v/v) per vedere se tutto il Cbz-L-Trp è stato consumato.
- Dopo il completamento della reazione, si utilizza un evaporatore rotante per concentrare la reazione e rimuovere il diclorometano dalla miscela.
- Solva la suspense in circa 300-400 mL di acetato di etil
NOTA: Lo Passo 1.1.1.6 produce una suspense di dimetilformamide. Usa abbastanza acetato di etil per sciogliere la sospensione. - Versare la soluzione in un imbuto separatore da 500 mL insieme a 50 mL d'acqua. Scuoti il funnel separativo.
ATTENZIONE: Poiché qui viene utilizzato un grande volume di solvente volatile, è fondamentale sfiatare l'imbuto separatorio in modo intermittente. - Drenare lo strato acquoso, mantenendo lo strato organico di acetato etilico.
- Ripeti il passo 1.1.1.7-1.1.1.8 utilizzando 50 mL d'acqua, 50 mL di bicarbonato di sodio acquoso saturo e 50 mL di cloruro di sodio acquoso saturo.
- Trasferire lo strato organico trattenuto in una fiaschetta conica da 1 L. Asciuga gli organi aggiungendo solfato di sodio anidro e facendo roteare la fiaschetta finché non si forma una polvere libera.
- Filtrare la miscela in una fiaschetta da 1 L a fondo rotondo, poi concentrarsi fino a seccare su un evaporatore rotativo (a 40 °C a bagno d'acqua con vuoto da 180 mbar).
- Aggiungi 50 mL di etere dietilico e una barra magnetica per mescolare, e mescola la pasta per 45-60 minuti.
NOTA: Può essere efficace raschiare i solidi dalla parete della fiaschetta con una spatola metallica. - Filtra la pasta per raccogliere i solidi precipitati. Lava la torta filtrante altre due volte con porzioni da 50 mL di etere dietilico. Asciugare i solidi sotto aspirazione per ottenere il composto 2 come polvere beige con resa dell'87%.
- In una fiaschetta a collo singolo da 250 mL, dotata di una barra di agitazione magnetica, si pesa il Cbz-L-triptofano (10,0 g, 29,6 mmol) e si dissolve in 30 mL di DMF e 80 mL di DCM.
- Metodo 2: Sintesi del carbamato tert-butil (S)-(2-(2-amino-3-(1H-indol-3-il) propanamido) etilico (3)
- In una fiaschetta a due colli con fondo rotondo da 250 mL dotata di setto settio in gomma e tappo di vetro, si dissolve il prodotto 2 (10,8 g, 22,3 mmol) in 100 mL di metanolo tramite mescolatura magnetica
NOTA: Non ingrassare il tappo del vetro, perché potrebbe causare contaminazioni. - Durante la mescolazione, aggiungi il 10% di palladio su carbonio (1,07 g) attraverso l'apertura con il tappo di vetro. Utilizzando un collettore Schlenk, far bollire il gas azoto attraverso la miscela per almeno 30 minuti.
NOTA: Può essere usato qualsiasi gas inerte, come l'argon; tuttavia, in questo caso, la casa N2 è sufficiente. - Sostituisci il tappo di vetro con un adattatore a giunti in vetro macinato a due vie, collegando una linea a un palloncino di idrogeno e l'altra a un aspirapolvere. Inserisci del nastro in PTFE intorno alla giunzione per creare una tenuta ermetica.
- Apri la fiaschetta per far aspirare il vuoto finché il metanolo non inizia a bollire, poi apri rapidamente la fiaschetta verso il palloncino di idrogeno. Ripeti altre due volte.
- Monitorare la reazione tramite cromatografia a strato sottile (usando acetato di etile/diclorometano 1:1 come eluente) estraendo piccole aliquote della miscela di reazione attraverso il setto di gomma con una siringa e filtrando attraverso un filtro a membrana PTFE da 40 μm.
- Sul collettore Schlenk, si passa il vuoto all'azoto. Rimuovi il setto di gomma dalla fiaschetta e lascia che l'azoto elimini l'idrogeno rimanente per circa 5 minuti.
ATTENZIONE: Il palladio sul carbonio può accendersi spontaneamente nell'aria quando l'idrogeno viene adsorbito su di esso. È importante gestire la reazione sotto una coperta di gas inerte. - Preparare un letto di terra di diatome, formando una miscela di terra di diatomee in acetato di etil e trasferindo la miscela in un imbuto filtrante frittato di vetro a media porosità collegato a una fiaschetta tonda da 500 mL, e aspirando un leggero vuoto finché il solvente non è appena sopra il livello della terra di diatomee
NOTA: La colonna di terra diatomee deve essere alta almeno 2–4 cm quando caricata nell'imbuto.
ATTENZIONE: La terra diatomacea/silice cristallina è altamente cancerogena ed è nota per causare mesotelioma tramite esposizione respiratoria. Dovrebbe sempre essere maneggiata in una cappa o indossando un respiratore appropriato. - Utilizzando una pipetta o altro, trasferire la suspense di reazione sulla sommità della colonna di celite, facendo attenzione a non disturbare lo strato superiore di celite. Ripeti finché non rimane solo una piccola quantità di suspense di reazione (<2 mL) nella fiaschetta
NOTA: Dopo una quantità sufficiente di testa solvente sopra il letto, il contenuto della fiaschetta può essere versato nell'imbuto del filtro. - A intermittenza tira un leggero vuoto sull'imbuto/fiaschetta finché la testa del solvente non è appena sopra il letto, lava il contenuto della fiaschetta con piccole quantità di acetato di etile, e ripeti 3–4 volte
NOTA: Lo strato di palladio/carbonio sopra il celite non dovrebbe mai essere esposto all'aria. - Continua a lavare il tampone finché tutti i prodotti non sono stati filtrati; questo può essere verificato gocciolando un po' del solvente filtrato su un piccolo pezzo di piastra TLC e visualizzando sotto luce UV.
- Rimuovi tutto il solvente su un evaporatore rotante. Aggiungere una quantità minima di diclorometano (5 mL) al residuo e precipitare il prodotto aggiungendo etere dietilico (50 mL).
- Filtrare la miscela, trattenendo il precipitato che fornisce l'intermedio 3 nella resa quantitativa.
- In una fiaschetta a due colli con fondo rotondo da 250 mL dotata di setto settio in gomma e tappo di vetro, si dissolve il prodotto 2 (10,8 g, 22,3 mmol) in 100 mL di metanolo tramite mescolatura magnetica
- Metodo 3: Sintesi del tert-butil (S)-(2-(2-(2-amino-5-bromobenzamido)-3-(1H-indol-3-il)propanamido)etil) carbamato (4)
- In una fiaschetta a fondo tondo essiccata in forno da 250 mL, pesa il prodotto 3 (5,00 g, 14,5 mmol) e l'anidride 5-bromoisatoica (5) (3,50 g, 14,5 mmol). Aggiungi 50 mL di acetonitrile anidro.
NOTA: L'acetonitrile anidro è stato ottenuto da un sistema di purificazione con solventi percolando il solvente attraverso una colonna di allumina attivata. - Installa la fiaschetta con un condensatore a reflusso raffreddato ad acqua e un tubo di asciugatura riempito con cloruro di calcio anidro e sigilla le giunzioni con nastro PTFE.
- Riscaldare la miscela fino a reflusso (p.p. acetonitrile = 82 °C), temperatura del bagno d'olio = 100 °C. Mescola il reflusso per 18 ore o finché il TLC non mostra un consumo di tre. Dopo il completamento, concentra la miscela di reazione fino a diventare secca sotto vuoto.
- Ai solidi, aggiungi 30 mL di acetonitrile e 50 mL di etere dietilico e filtra la miscela, mantenendo il prodotto solido. Raccogli il prodotto solido per dare al composto titolare un rendimento di 4 al 78%.
- In una fiaschetta a fondo tondo essiccata in forno da 250 mL, pesa il prodotto 3 (5,00 g, 14,5 mmol) e l'anidride 5-bromoisatoica (5) (3,50 g, 14,5 mmol). Aggiungi 50 mL di acetonitrile anidro.
- Metodo 4: Sintesi del tert-butil (S)-(2-(2-(2-(2-(2-(2-(2-(2-naftamido)-5-bromobenzamido)-3-(1H-indolo-3-il)propanamido)etil) carbamato (6)
- In una fiaschetta da 50 mL a fondo arrotondo, essiccata in forno e a collo singolo, sciogliere il 2-naftoil cloruro (572 mg, 3,0 mmol) in 10 mL di diclorometano. Installa un setto in gomma sulla fiaschetta. Questa fiaschetta sarà d'ora in poi chiamata "fiaschetta A".
NOTA: Il cloruro di naftile da un fornitore commerciale è stato utilizzato nello studio, ma sono stati ottenuti risultati simili generandolo da acido 2-naftoico usando cloruro ossalico comenel 14). - In una fiaschetta separata da 100 mL a collo singolo con fondo rotondo, essiccata al forno separato, pesa il prodotto 4 (544 mg, 1,0 mmol). Questa fiaschetta sarà d'ora in poi chiamata "Fiaschetta B".
- Montare Flask B con un setto in gomma e collegarlo a un collettore Schlenk usando un ago per siringa e un adattatore Luer. Purga la fiaschetta B sotto vuoto e riempi con azoto, ripeti due volte.
- Aggiungi 20 mL di diclorometano anidro tramite siringa nella fiaschetta B. Aggiungi la trietilamine (455 μL, 3,24 mmol) con la siringa nella fiaschetta B. Raffredda su un bagno di ghiaccio per 10 minuti.
- Prepara il contenuto della fiaschetta A in una siringa di dimensioni adeguate. Aggiungi la soluzione della siringa alla fiaschetta B a goccia con la mescolatura.
NOTA: La produzione di cloridrato di trietilamine può essere vista come fumi bianchi sopra il solvente. Rimuovi dal bagno di ghiaccio dopo aver aggiunto la soluzione di cloruro acido. - Mescola la miscela finché non si consuma tutto il composto 4 secondo l'analisi TLC. Concentra la miscela quasi fino a diventare secca su un evaporatore rotativo (600 mbar, 40 °C).
- Dividere la miscela tra acqua (30 mL) e acetato di etil (70 mL). Incorpora gli strati scuotendo in un imbuto separativo e scartando lo strato acquoso.
- Lavare la miscela organica con soluzioni acquose sature diNaHCO 3 (30 mL) e NaCl. Asciugare lo strato organico aggiungendo Na2SO 4 anidro finché non si osserva una polvere libera durante la miscelazione.
- Concentrati fino a secchezza su un evaporatore rotativo (170 mbar, 40 °C). Triturare i solidi grezzi con acetonitrile (15 mL) ed etere dietilico (15 mL) per ottenere il composto titolare come solido bianco sporco con resa del 70%.
- In una fiaschetta da 50 mL a fondo arrotondo, essiccata in forno e a collo singolo, sciogliere il 2-naftoil cloruro (572 mg, 3,0 mmol) in 10 mL di diclorometano. Installa un setto in gomma sulla fiaschetta. Questa fiaschetta sarà d'ora in poi chiamata "fiaschetta A".
- Metodo 5: Sintesi di (S)-N-(2-(((1-((2-aminoetil)ammino)-3-(1H-indol-3-il)-1-oxopropano-2-il)carbamoil)-4-bromofenil)-2-naftamide (7)
- Trattate una sospensione di 6 intermedi (1,5 g, 2,15 mmol) in diclorometano (concentrazione finale di 0,2 M) con 1,2-etanoleditiolo (volume del 20% rispetto al volume di DCM).
ATTENZIONE: Il 1,2-etanoleditiolo ha un odore sgradevole che può causare nausea, anche a basse concentrazioni, maneggiare in una cappa a pompa. - Raffreddare la miscela in un bagno di ghiaccio, poi trattala con acido trifluoroacetico (stesso volume usato come il DCM). Mescola la miscela a 0 °C per 2 ore.
- Dopo il completamento, concentrare la miscela di reazione purgandola con gas azoto
NOTA: I gas di scarico possono essere fatti bollire attraverso una trappola di candeggina per limitare il rilascio degli odori. - Triturare i solidi grezzi con etere dietilico (10 mL) e filtrare per raccogliere i solidi. Lava il filtro due volte con etere dietilico (10 mL ciascuno), poi lascia asciugare i solidi sotto aspirazione.
- Trattate una sospensione di 6 intermedi (1,5 g, 2,15 mmol) in diclorometano (concentrazione finale di 0,2 M) con 1,2-etanoleditiolo (volume del 20% rispetto al volume di DCM).
- Metodo 6: Sintesi del tert-butil (S,Z)-(3-((1H-indol-3-il)metil)-1-(2-(2-naftamido)-5-bromofenilo)-1,4-dioxo-9-(fenilimino)-2,5,8,10-tetraazadodecan-12-il) carbamato (9)
- Carica una fiaschetta a collo singolo con fondo arrotondato con l'intermedio 7 (1,0 g, 1,4 mmol), il derivato della tiourea 8 (415 mg, 1,4 mmol) e la trietilamine (1,01 mL, 4,2 mmol) in N, N-dimetilformamide (5 mL).
- Raffreddare la reazione a -5 °C in un bagno di salamoia e ghiaccio e aggiungere cloruro di mercurio (II) (760 mg, 2,8 mmol) e mescolare per 16 ore.
ATTENZIONE: Il cloruro di mercurio (II) è fatale tramite esposizione orale, dermica e respiratoria. È anche altamente tossico per la vita acquatica. Indossa guanti resistenti ai prodotti chimici, protezione per gli occhi e protezione del corpo. Inoltre, evita soluzioni aerosolizzanti contenenti cloruro di mercurio(II) e maneggiale all'interno di una cappa a fumo. Assicurarsi che i rifiuti di questo processo siano separati dagli altri flussi di rifiuti organici e che nessun residuo di mercurio entri negli scarichi. - Dopo il completamento, diluire la miscela con 2-propanolo e filtrare attraverso un letto di celite, raccogliendo il filtrato.
- Concentrare il filtrato fino a seccarsi su un evaporatore rotante e sottoporre il residuo a cromatografia a colonna flash su silice usando metanolo/diclorometano 3:97 come eluente.
- Analizza le frazioni raccolte usando TLC e poi raccogli frazioni pure per permetterti il composto principale.
- Metodo 7: Sintesi di RK758
- Il metodo per deproteggere l'intermedio 8 in Boc per formare RK758 è identico al Passaggio 1.1.5.
- Riscioglie il prodotto risultante in 5 mL di acetonitrile/acqua ultra-pura 1:1 (v/v), e trasferisci in una fiala di vetro borosilicato a tappo a vite. Congelare la soluzione in un bagno di azoto liquido e poi liofilizzare per ottenere il prodotto.
NOTA: È importante assicurarsi che la fiala utilizzata sia borosilicato per evitare crepe al congelamento.
ATTENZIONE: L'esposizione all'azoto liquido può causare congelamento o danni alla pelle. Assicurati che vengano indossati guanti e protezioni oculari adeguate.
- Metodo 1: Sintesi del carbamato benzilico (S)-(1-((2-((tert-butossicarbonil)ammino)etil)ammino)-3-(1H-indol-3-il)-1-oxopropano-2-il) carbamato (2):
2. Produzione ricombinante e purificazione del peptide antimicrobico altamente cationico Mel4 (KNKRKRRRRRRGGRR)
- Protocollo ottimizzato per la produzione
- Sintesi genica
- Progetta e sintetizza la cassetta genetica con i seguenti componenti: HIS (6x/7x istidina tag per l'isolamento di peptidi ricombinanti), chetosteroid isomerasi (KSI) per la formazione del corpo di inclusione (IB) e sito di clivaggio del Virus del Tabacco Etch (TEV) (ENLYFQ↓G, S, A, M, C, H), per l'escissione sostenibile e senza sostanze chimiche del KSI e del His-tag dal motivo proteico.
- Seleziona l'amminoacido subito dopo il taglio (G, S, A, M, C, H) in modo che non influisca sull'attività dell'AMP.
NOTA: La glicina offre la massima efficienza nella scolatura TEV. Un singolo amminoacido posizionato sia al terminale N che al C-terminale può influenzare le proprietà fisico-chimiche degli AMP, da cui la loro attività. - Sintetizza la sequenza genica sintetica, incluse le regioni laterali, con siti di restrizione XbaI 5' e XhoI 3'. La sequenza degli amminoacidi è riportata nella Tabella 1 e schematicamente nella Figura 1.
- Clonazione
- Digerire il vettore pET utilizzando enzimi di restrizione compatibili.
NOTA: In questo caso, il plasmide p15TVL (un derivato pET15b, Ampr, promotore T7) è stato digerito con XbaI, XhoI e ScaI (per spezzare il frammento indesiderato). - Per prevenire la rilegazione dei frammenti digeriti, trattare con fosfatasi alcalina intestinale di vitello per 10 minuti a 37 °C. Digerire il gene sintetico His-KSI-Mel4 con XbaI e XhoI in una reazione da 20 μL.
- Purifica i frammenti da tutti gli enzimi di restrizione usando il kit di purificazione QIAquick PCR. In alternativa, esegui l'elettroforesi del gel e ritaglia la banda associata al frammento vettoriale desiderato, poi estrai il frammento dal gel usando un kit di estrazione del gel.
NOTA: Assicurarsi che i frammenti purificati vengano quantificati utilizzando un metodo spettrofotometrico (NanoDrop) per ottimizzare la legazione.
- Digerire il vettore pET utilizzando enzimi di restrizione compatibili.
- Legatura e trasformazione
- Legare il gene sintetico digerito inserito nel vettore pET. Assicurarsi che la proporzione tra l'inserto e il vettore sia equimolare.
- Incubare la miscela con T4 Ligase durante la notte a 16 °C. Si trasformano in un DH5α chimicamente o elettrocompetente con metodi di shock termico o elettroporazione, rispettivamente.
- Mescola delicatamente celluleα DH5 chimicamente competenti con DNA plasmidico e incuba sul ghiaccio per consentire l'attacco del DNA. Poi infliggi uno shock termico alle cellule per 30 secondi a 42 °C per facilitare l'assorbimento del DNA, quindi raffreddarle rapidamente sul ghiaccio.
- Dopo il recupero in un mezzo di brodo da 450 μL LB senza antibiotici a 37 °C per un'ora, si placca le cellule su agar selettivo contenente l'antibiotico appropriato.
NOTA: Le colonie trasformate appaiono tipicamente dopo un'incubazione notturna. Per le cellule elettrocompetenti DH5α, si miscela un piccolo volume di DNA plasmidico purificato e privo di sale (tipicamente 1–2 μL di 10–100 ng in celle da ~50 μL) con celle in una cuvetta di elettroporazione raffreddata. - Dopo un breve raffreddamento, somministra un singolo impulso (impostazioni comuni: 1,8 kV per una cuvetta a gap di 0,2 cm con una costante di tempo di ~5 ms; regola per il tuo dispositivo/cuvette), facendo attenzione a evitare archi narrativi usando DNA desalinizzato e reagenti geliferi.
- Aggiungere immediatamente ~450 μL LB preriscaldati, recuperare a 37 °C con agitazione per un'ora, poi implacare sull'agar selettivo.
- Coltivare trasformanti durante la notte in brodo LB per l'isolamento dei plasmidi utilizzando un kit di purificazione plasmidi. Verifica il costrutto plasmidico finale tramite PCR usando i primer nella Tabella 1 e conferma la sequenza tramite sequenziamento di Sanger.
- Trasformare il plasmide verificato nell'ospite di espressione (chimicamente o elettrocompetente), E. coli BL21(DE3), come sopra.
- Sintesi genica
- Espressione ottimizzata e produzione di corpi di inclusione (IB)
- Inoculare 10 mL di brodo (100 μg/mL di ampicillina) e far crescere a 37 °C durante la notte. Usa questo per inoculare 100 mL, e successivamente una coltura di produzione da 1 L.
- Diluire in LB alla densità ottica (OD600) della coltura al tempo 0 = 0,1. Usa medium LB integrato con glucosio all'1% e 100 μg/mL di ampicillina.
- Incubare a 37 °C e monitorare la OD per raggiungere la fase logarithmica (OD600 0,5–0,6). Indurre con una bassa concentrazione di isopropilico β-D-1-tiogalattipiranoside IPTG, tipicamente 0,1 mM.
Mantenere la temperatura a 37 °C per 16–24 ore per favorire la formazione dei corpi di inclusione. - Continuare l'incubazione per 16-24 ore. Prelevare le celle tramite centrifugazione (5.000 x g, 4 °C) per 10 minuti e conservare i pellet a -80 °C.
- Lisi cellulare e frazionamento proteico
- Scongelare i pellet cellulari su ghiaccio e risospendere nel reagente Bugbuster per avviare la lisi chimica. Centrifuga il lisato a 4.000 x g per 20 minuti a 4 °C. Raccogli il soprannatante come frazione proteica solubile.
- Lava il pellet rimanente e risospendilo in Bugbuster al 10% (v/v) in acqua MilliQ. Sottoporre la sospensione a sonicazione per recuperare completamente la frazione proteica insolubile (corpi di inclusione).
- Trattare i campioni con 100 μL di buffer SDS-PAGE contenente il 5% di β-mercaptoetanolo. Incubare la miscela a 95 °C per 5 minuti per garantire una completa denaturazione proteica.
- Elettroforesi SDS-PAGE
- Carica i lisati denaturati su gel SDS-PAGE duplicati al 15% per la separazione elettroforetica standard.
- Lava un gel con acqua per 1 ora. Tingi tutta la notte usando il reagente GelCode Blue Stain. Trattieni con l'acqua il giorno seguente finché le fasce non sono chiaramente visualizzate.
- Visualizza e documenta (Figura 2A) il gel colorato per valutare i profili proteici totali (TCP) e la distribuzione delle frazioni utilizzando lo strumento Biorad Gel Doc con Image Lab.
- Western blotting (immunodiagnosi)
- Bilanciare il gel non colorato, una membrana di nitrocellulosa, fogli filtranti e spugne in tampone di trasferimento (20 mM Tris-HCl pH 7,4, 150 mM NaCl, 0,1% Tween 20). Assembla il sandwich di trasferimento ed esegui il trasferimento a 100 V per 1 ora a temperatura ambiente.
- Incubare la membrana in un tampone bloccante (latte scremato al 5% in TBST) per 1 ora a temperatura ambiente per evitare un legame aspecifico.
- Incubare la membrana con anticorpo primario anti-HisTag del Mouse (diluito 1:1.000 in tampone bloccante) durante la notte a 4 °C con agitazione delicata.
- Lava la membrana tre volte con TBST per 5 minuti ciascuna. Incubare la membrana con IgG anti-topo coniugato con HRP (diluito 1:5.000 in buffer bloccante) per 1 ora a temperatura ambiente.
- Esegui un ultimo giro di tre lavaggi TBST. Applicare un substrato di Chimiluminescenza Potenziata (ECL) alla membrana per 1 minuto e visualizzare utilizzando un imager di chemiluminescenza o esponendolo a pellicole a raggi X. Documenta l'immagine (come si vede nella Figura 2B).
- Isolamento IB e purificazione di affinità
- Risospendere il pellet cellulare nel buffer di lisi (100 mM Tris· Cl, pH 7,0, 5 mM EDTA, 5 mM DTT (770 mg/litro), 5 mM benzamidina· HCl (780 mg/litro)) e eseguono la lisi meccanica (ad esempio, French press/Sonication). Centrifuga (20.000 x g, 4 °C per 20 minuti) per isolare il pellet IB insolubile di KSI-Mel4.
- Lava accuratamente i pellet con il tampone di lavaggio (100 mM Tris· Cl, pH 7, 5 mM EDTA, 5 mM DTT, 2 M urea, 2% (p/v) Triton X-100). Solubilizzare il pellet in urea non superiore a 2M.
NOTA: La concentrazione di urea utilizzata per solubilizzare IB dovrebbe rientrare nell'intervallo di lavoro della proteasi TEV. - Quantifica l'IB isolato utilizzando il kit BCA seguendo le istruzioni del produttore.
- Mescola il Reagente Pierce B e il Reagente A in un rapporto volume-volume di 1:50. Calcola il volume totale necessario in base al numero di standard e campioni da eseguire in triplice.
- Utilizzando l'albumina sieroica bovina (BSA) come riferimento, prepara una serie di diluizioni per creare una curva standard che varia da 3.000 μg/mL a 200 μg/mL.
- Utilizzando una piastra da 96 pozzi, una pipetta di 25 μL di ogni standard BSA e campione (inclusi soprantantanti purificati e precipitati sospesi) nei pozzi.
- Aggiungere 200 μL del reagente di lavoro BCA preparato a ciascun pozzo contenente uno standard o campione. Mescola brevemente la piastra e incuba per 1-2 ore a 37 °C per permettere lo sviluppo del colore.
- Dopo l'incubazione, misurare l'assorbenza della piastra a 562 nm utilizzando uno spettrofotometro. Traccia l'assorbanza degli standard BSA rispetto alle loro concentrazioni note per generare una curva standard lineare o quadratica.
- Determinare la concentrazione proteica dei campioni His-KSI-Mel4 o di Mel4 ricombinante confrontando i loro valori di assorbanza con la curva standard generata. Le concentrazioni prima e dopo la scissione TEV sono mostrate nella Figura 3.
- Clivagatura enzimatica e rimozione dei tag
- Reazione alla scolpizione: Proteasi TEV His-tag (rapporto molare raccomandato 1:50-1:100 Proteasi: Proteina di fusione). Incubare 16 ore a 4 °C per la massima efficienza.
- Rimozione del tag e purificazione della cromatografia di affinità del metallo immobilizzato (IMAC):
- Passa la miscela di reazione di clivellamento su una colonna fresca di acido nichel-nitrilotriacetico (Ni-NTA). Bilanciare la resina Ni-NTA con il buffer di legame (Lysis Buffer).
- Carica la miscela di reazione di scolatura. I componenti contrassegnati con His (frammento KSI e proteasi TEV) si legano alla resina.
- Raccogli il flow-through, che contiene il peptide ricombinante Mel4 non marcato con gli amminoacidi residui G, S, A, M, C e H dal sito di scindimento TEV.
- Assicurati che questo amminoacido extra non influisca sull'attività dell'AMP eseguendo il test MIC con Mel4 chimicamente sintetizzato come controllo.
- Eludi il frammento KSI legato e la proteasi TEV utilizzando un gradiente di eluzione buffer (500 mM Imidazolo, 500 mM NaCl, 20 mM tampone fosfato di sodio, pH 8).
- Esegui il test BCA come indicato nel Passo 2.6.3.
3. Attività antimicrobica
- Preparazione ai media
- Prepara il substrato [Mueller Hinton Broth, regolato per cationi (CAMHB), brodo di soia tripticase (TSB), brodo neutralizzante D/E e agar di soia tripticase (TSA)] secondo le istruzioni del produttore. Inoltre, preparare 1 × di soluzione salina tamponata con fosfato (PBS) da 10 × concentrati di PBS. Poi li autoclave a 121 °C a 15 lbs/in 2.
- Preparazione del stock peptidico
- Dissolve l'AMP e imita in acqua sterile ad alta concentrazione, ad esempio 20 mM o almeno 2 mg/mL. Se il peptide è insolubile, si utilizza acqua sterile contenente una concentrazione finale dello 0,01% di acidoacetico 16. Se si prevede l'adsorbimento su superfici plastiche, integrare la soluzione originale con BSA allo 0,2% (p/v), poiché agisce come agentebloccante 17.
NOTA: Il dimetilsolfosdo (DMSO) è anche raccomandato per dissolvere peptidi o imitatori insolubili in acqua. Prepara una soluzione concentrata di stock, come 20 mM o 2 mg/mL. - Sterilizza il materiale peptidico tramite filtri utilizzando un filtro a siringa da 0,22 μm in condizioni asettiche.
- Preparare le aliquote del stock AMP e conservarle a -20 °C (o in base alla stabilità dell'AMP). Prepara un controllo con il solvente identico.
- Dissolve l'AMP e imita in acqua sterile ad alta concentrazione, ad esempio 20 mM o almeno 2 mg/mL. Se il peptide è insolubile, si utilizza acqua sterile contenente una concentrazione finale dello 0,01% di acidoacetico 16. Se si prevede l'adsorbimento su superfici plastiche, integrare la soluzione originale con BSA allo 0,2% (p/v), poiché agisce come agentebloccante 17.
- Preparazione dell'inoculo batterico
- Stira l'isolato batterico da testare su un mezzo ricco di nutrienti come la TSA per ottenere colonie pure e ben isolate.
- Incubare la piastra aerobicamente a 36 ± 1 °C per 18-24 ore.
- Seleziona da tre a cinque colonie morfologicamente simili e ben isolate dalla piastra di coltura utilizzando un anello inoculante sterile. Trasferirli in un tubo sterile contenente 5–10 mL di TSB o CAMHB. Per ottenere una sospensione uniforme, si strofina delicatamente l'anello con colonie batteriche contro la parete interna del tubo inclinato per ottenere una sospensione omogenea.
- Incubare la coltura del brodo a 36 ± 1 °C mentre si agita a 180 giri/min per 18-24 ore.
- Centrifuga la coltura notturna a 3.000 x g per 10 minuti a 25 °C e lava il pellet batterico tre volte con PBS sterile di 1 ×.
- In un contenitore sterile, somministrare 2 mL di 1 × PBS, poi aggiungere 50–100 μL di sospensione batterica lavata e vortice per 5–10 secondi per ottenere uniformità.
- Misurare la densità ottica a 600 nm (OD600) utilizzando uno spettrofotometro. In breve, aggiungere 200 μL della sospensione batterica a una piastra a 96 pozzi, insieme allo stesso volume di 1× PBS di un blank, e misurare l'OD600 per ottenere un equivalente di 0,1, corrispondente a circa 1–2 × 10⁸ CFU/mL (verificato con il conteggio vitale delle placche su TSA).
- Diluire la sospensione regolata 1:100 in CAMHB per ottenere un inoculo finale di 106 CFU/mL.
- Configurazione delle piastre
- Etichetta una piastra sterile a fondo piatto con 96 pozzi con il ceppo batterico, il nome AMP, la data e le iniziali dello scienziato. Sulla placca, segna le posizioni per i pozzi di test, blank e controllo sul coperchio.
- Dispensare 200 μL di soluzione AMP (concentrazione più alta) nella prima colonna della placca. Ai pozzi rimanenti, dalla colonna 2 alla 12, si aggiungono 100 μL di CAMHB.
- Utilizzando una pipetta multicanale, eseguire diluizioni seriali doppie dell'AMP dalla colonna 1 alla colonna 10, scartando 100 μL dalla decima colonna.
- Aggiungere 100 μL dell'inoculo batterico preparato (106 CFU/mL) in ogni pozzo tranne il controllo della sterilità (blank). Questo fornirà una concentrazione batterica finale di circa 5 × 10⁵ CFU/mL nei pozzi di prova. Aggiungere 100 μL di CAMHB ai pozzi blank per portare il volume finale a 200 μL. Preparare pozzi triplicati per ogni concentrazione.
NOTA: Per gli AMP che precipitano quando diluiti nel CAMHB, l'aggiunta di acido acetico con 0,1–0,2% di BSA può risolvere il problema; L'ottimizzazione può richiedere testempirici 16. In tali casi, includono pozzi di controllo con solventi (contenenti CAMHB più acido acetico e/o BSA). - Analogamente, esegui MIC per AMP mimic (RK758) e antibiotico comparatore (ad esempio, colistina).
- Copri il piatto con il coperchio, sigilla con pellicola per evitare l'evaporazione e incuba a 36 ± 1 °C per 18–24 ore.
- Includere in parallelo un ceppo di riferimento di E. coli (ad esempio, mcr-1-ospite E. coli NCTC 13846) e processare in modo simile al peptide o al mimetico del peptide.
- Dopo l'incubazione, registra il MIC.
- Determinazione della MIC
- Misura il diametrodiametro 600 di ogni pozzo utilizzando un lettore di micropiastre. Calcola la riduzione percentuale della crescita rispetto al controllo della crescita non trattato. La MIC è definita come la concentrazione più bassa dell'AMP che comporta almeno una riduzione del 90% del diametrodi 600 rispetto alcontrollo della crescita 18.
- Determinare i valori di MIC da almeno tre esperimenti indipendenti condotti in triplice. Riportate i risultati come deviazione media ± standard per garantire la riproducibilità.
NOTA: Il MIC per il ceppo di controllo, E. coli NCTC 13846, dovrebbe essere entro una diluizione doppia rispetto al MIC atteso di colistina. Conferma che i controlli solventi contenenti DMSO, acido acetico e BSA non abbiano avuto attività inibitoria autonomamente.
- Determinazione della Concentrazione Minima di Battericida (MBC)
- Dai pozzi situati e sopra il MIC, così come una concentrazione inferiore, si trasferisce 100 μL della sospensione batterica in 900 μL di brodo D/E per preparare diluizioni seriali.
- Placca 20 μL di ciascuna sospensione diluita su TSA in triplicata per determinare il numero di batteri validi.
- Dopo un'incubazione notturna a 36 ± 1 °C per 24 ore, si contano le colonie, si moltiplica per il rispettivo fattore di diluizione e si confrontano i conteggi vitali con quelli del pozzo di controllo della crescita, elaborati allo stesso modo.
- Il MBC è definito come la concentrazione più bassa dell'agente antimicrobico che comporta una riduzione del 99,9% (≥ 3 log10) del conteggio batterico vitale rispetto all'inoculo iniziale dopo 24 ore di incubazione (controllo della crescita) in condizioni standard19.
- Reportage
- Riportare MIC e MBC in μg/mL e μM.
- Converti μg/mL in μM usando μM = μg/mL × 1.000/peso molecolare (g/mol)
- Smaltimento dei rifiuti infettivi
- Scartare tutti i materiali che sono stati a contatto con colture batteriche vive, inclusi piastre microtitolate da 96 pozzi, punte di pipetta e tubi Falcon, in sacchi designati per rifiuti biologici.
- Autoclave ha raccolto i rifiuti biologici a 121 °C per 15–20 minuti sotto una pressione di 15 psi per garantire una sterilizzazione completa prima dello smaltimento, in conformità con le linee guida istituzionali di biosicurezza.
4. Citotossicità
- Conteggio cellulare e semina per il test di tossicità
- Mantenere cellule, come le cellule dei fibroblasti topini L929, in una fiaschetta2 di 75 cm nel mezzo essenziale minimo (DMEM) di Dulbecco, contenente il 10% di siero bovino fetale (FBS) e l'1% di antibiotici (streptomicina solfato e penicillina G), a 37 °C con il 5% diCO2.
- Lava le cellule con 1x PBS e tripsinizza con lo 0,25% di tripsina-EDTA. Contare le cellule mescolando 50 μL di sospensione cellulare con 50 μL di Trippan Blue allo 0,4% e caricando 10 μL in un emocitometro.
- Contare cellule vitali (non colorate) e morte (blu) in quattro quadrati agli angoli e calcolare il numero totale delle celle usando: Cellule totali = (conteggio medio delle cellule vive × 104 × 2 [fattore di diluizione]).
- Calcola la fattibilità (%) = (vivi / [vivi + morti]) × 100.
- Regolare la concentrazione finale della cella a 5 × 10⁴ cellule/mL (corrispondenti a 5.000 cellule/pozzo in 100 μL usando il mezzo DMEM).
- Seminare 100 μL di sospensione cellulare in ciascun pozzo di una piastra sterile a 96 pozzi. Incubare per 24 ore a 37 °C con il 5% diCO2 per consentire l'aderenza.
- Preparazione delle soluzioni di test Mel4 e RK758
- Preparare soluzioni operative di Mel4/RK758 in DMEM semplice (senza FBS e antibiotici) alle concentrazioni target finali (1.000, 500, 250, 125, 62,5, 31,25, 15,6, 7,8 e 3,9 μM) utilizzando la soluzione standard preparata come descritto nello Passo 3.2.
- Rimuovi il substrato di coltura da ogni pozzo. Aggiungere 100 μL della corrispondente soluzione operativa 1× Mel4/RK758 direttamente ai pozzi.
- Aggiungere 100 μL di DMEM ai pozzi di controllo negativo (NC) designati.
- Aggiungere 100 μL di DMSO in pozzi designati per controllo positivo (PC) (oltre al DMSO, si raccomanda un agente citotossico come Triton X-100 come controllo positivo).
- Aggiungi 100 μL di 1 x PBS come controllo blank.
NOTA: Esegui tutti i trattamenti e i controlli in triplice. Maneggiare il DMSO con guanti e protezione per gli occhi; Evita il contatto con la pelle e smalti i rifiuti di solvente secondo le procedure istituzionali.
- Saggio 3-(4,5-dimetiltiazolo-2-il)-2,5-bromuro di difeniltetrazolio (MTT)
- Dopo 24 ore di esposizione a Mel4/RK758, aspirare con attenzione il mezzo di prova senza disturbare le cellule.
NOTA: La durata del trattamento con composti antimicrobici può variare a seconda del disegno sperimentale specifico. - Prepara una soluzione operativa MTT diluendo la soluzione di stocco da 5 mg/mL 1:9 con DMEM semplice (concentrazione finale 0,5 mg/mL).
- Aggiungi 100 μL della soluzione funzionante MTT a ciascun pozzo. Copri la piastra con carta stagnola per proteggerla dalla luce e incuba per 2 ore a 37 °C finché non si formano cristalli di formazan viola.
NOTA: MTT è fotosensibile e tossico. Maneggiare i guanti e smaltire i rifiuti in conformità con le procedure di biosicurezza istituzionale. Spegni sempre la luce durante l'elaborazione con il reagente MTT.
- Dopo 24 ore di esposizione a Mel4/RK758, aspirare con attenzione il mezzo di prova senza disturbare le cellule.
- Misurazione della dissoluzione e assorbenza del formazan
- Rimuovi con attenzione la soluzione MTT da ogni pozzo. Aggiungere 100 μL di DMSO a ciascun pozzo per dissolvere i cristalli di formazan.
- Metti il piatto su uno shaker per 5 minuti per assicurarti la completa dissoluzione. Misura l'assorbanza a 570 nm usando un lettore di micropiastre.
- Analisi dei dati e determinazione della concentrazione citotossica al 50% (IC50 o CC50)
- Sottrai i valori di assorbenza del blank (PBS) da tutte le letture e usa il blank corretto per il calcolo.
- Calcola la vitalità cellulare (%) usando l'equazione: Viabilità (%) =(A trattato/A NC (cellula)) × 100.
- Calcola l'IC50 o il CC50 usando il software GraphPad Prism.
NOTA: Ripetere esperimenti in triplicata e riportare i dati come media ± deviazione standard.
Risultati
Sintesi di RK758
I dati analitici fino all'intermedio 7 erano stati pubblicati inprecedenza a 14. I dati analitici per RK758 e intermedi 8–9 sono i seguenti:
tert-butil (2-(3-feniltioureido)etil)carbamato (8):
Il prodotto 8 è stato ottenuto come solido bianco sporco (1,89 g, 87%); m.p. 167,4–168,3 °C; 1H NMR (300 MHz, DMSO-d 6) δ 9,58 (s, 1H), 7,71 (s, 1H), 7,44–7,29 (m, 4H), 7,11 (t, J = 12,0 Hz, 1H), 6,88 (br s, 1H), 3,55-3,53 (m, 2H), 3,13 (q, J = 4,0 Hz, 2H), 1,59 (s, 9H); 13C NMR (75 MHz, DMSO-d6) δ 180.9, 156.3, 139.5, 129.1, 124.7, 123.7, 78.2, 44.3, 28.7; HRMS (ESI+): m/z calcolato per C14H21N 3O 2SNa+ [M + Na]+: 318.1247, trovato: 318.1252.
tert-butil (S,Z)-(3-((1H-indol-3-il)metil)-1-(2-(2-naftamido)-5-bromofenilo-1,4-dioxo-9-(fenilimino)-2,5,8,10-tetraazadodecan-12-il)carbamato (9):
Il prodotto 9 è stato ottenuto come solido bianco (0,253 g, 62%); m.p. 173,4–174,9 °C; 1H NMR (400 MHz, DMSO-d 6) δ 12,23 (s, 1H), 10,86 (s, 1H), 9,61 (s, 1H), 9,27 (d, J = 8,0 Hz, 1H), 8,57-8,54 (m, 2H), 8,44 (s, 1H), 8,11 (d, J = 4,0 Hz, 1H), 8,06-8,03 (m, 3H), 7,84 (dd, J = 4,0, 12,0 Hz, 1H), 7,78 (d, J = 12,0 Hz, 2H), 7,69–7,60 (m, 2H), 7.36 (t, J = 8.0 Hz, 2H), 7.27-7.23 (m, 5H), 7.01-6.97 (m, 3H), 4.82-4.78 (m, 1H), 3.14-3.13 (m, 10H), 1.32 (s, 9H); 13C NMR (100 MHz, DMSO-d6) δ 172.3, 167.8, 165.1, 156.3, 154.4, 138.9, 136.5, 135.4, 134.9, 132.6, 131.7, 129.9, 129.1, 128.7, 128.4, 128.2, 127.6, 127.6, 126.4, 124.8, 124.1, 123.6, 122.8, 121.4, 118.9, 118.7, 115.1, 111.8, 110.9, 78.4, 55.2, 42.3, 41.9, 39.4, 38.3, 29.5, 28.6, 27.9; HRMS (ESI+): m/z calcolato per C45H47BrN8O5 [M + H]+: 859.2926, trovato: 859.2925.
(S,E)-N-(2-((1-(((2-(3-(2-(2-aminoetil)-2-fenilguanidino)etil)ammino)-3-(1H-indolo-3-il)-1-ossopropano-2-il)carbamoil)-4-bromofenil)-2-naftamide (RK758) (10):
RK758 è stato ottenuto come solido biancosporco (0,039 g, 75%); m.p. 240,0–240,9 °C; 1H NMR (400 MHz, MeOD-d 4): δ 8,39 (s, 1H), 8,27 (d, J = 12,0 Hz, 1H), 7,98–7,95 (m, 3H), 7,88 (d, J = 8,0 Hz, 1H), 7,79 (d, J = 4,0 Hz, 1H), 7,71-7,60 (m, 4H), 7,40 (t, J = 8,0 Hz, 1H), 7,30-7,20 (m, 4H), 7,16 (s, 1H), 7,05-6,97 (m, 2H), 4,88-4,86 (m, 1H), 3,33-3,32 (m, 3H), 3.27-3.24 (m, 5H); 13C NMR (100 MHz, MeOD-d4): δ 174,3, 168,5, 166,4, 154,6, 137,1, 136,7, 135,1, 134,7, 131,4, 132,6, 131,3, 130,8, 129,8, 128,9, 127,9, 127,8, 127,9, 127,6, 127,5, 127,2, 126,8, 125,6, 123,5, 123,24, 123,2, 118,6, 117,8, 116,1, 111,1, 109,6; HRMS (ESI+): m/z calcolato per C40H39BrN8O3 [M + H]+: 759.2401, trovato: 759.2407.
La sintesi di RK758 è stata condotta con una resa complessiva del 17% da Cbz-L-Triptofano in 7 passaggi (Figura 4). Il rendimento complessivo di questo processo è stato del 44% per l'intermediate chiave 7 e del 19% per RK758. I dati NMR a 1H indicano un'elevata purezza del composto finale senza impurità rilevabili importanti.
Lo screening PCR delle colonie ha confermato l'inserimento riuscito delle cassette Mel4 e His-KSI-Mel4 in trasformanti selezionati (Figura 5A). L'analisi PCR di plasmidi isolati da miniprep ha ulteriormente verificato la dimensione attesa dell'amplicone, supportando l'assemblaggio corretto del costrutto prima della trasformazione in BL21(DE3) per l'espressione (Figura 5B).
Produzione ricombinante e purificazione del peptide antimicrobico altamente cationico Mel4
Sebbene Mel4 sia stato ottenuto commercialmente dalla AusPep Peptide Company con una purezza minima del 90%, è stato sintetizzato da SPPS e è stato utilizzato anche un approccio ricombinante per produrre Mel4 biologicamente. Al termine del protocollo, l'analisi Western blot della proteina a cellule totali (TCP) dal pellet cellulare lisato ha confermato l'espressione della proteina di fusione ricombinante HIS-KSI-Mel4. I campioni proteici sono stati separati tramite SDS-PAGE e visualizzati utilizzando una scala proteica come riferimento per il peso molecolare. È stata osservata una banda distinta corrispondente al peso molecolare atteso della proteina di fusione HIS-KSI-Mel4, confermando l'espressione riuscita della proteina bersaglio nelle cellule ospiti (Figura 5B).
Dalla sequenza proteica del motivo selezionato è stata calcolata la composizione teorica degli amminoacidi e confrontata con i risultati sperimentali dell'analisi degli amminoacidi ottenuti dal peptide purificato HIS-KSI-TEV-Mel4 IB. Il confronto ha mostrato una buona correlazione tra i rapporti di amminoacidi previsti e quelli determinati sperimentalmente, confermando l'accuratezza della sequenza peptidica espressa e il suo isolamento riuscito nella frazione del corpo di inclusione (Tabella 2).
L'asparagina viene convertita in acido aspartico e la glutamina in acido glutammico. Il metodo di analisi degli amminoacidi è insensibile alla cisteina e al triptofano e questi non vengono analizzati con questo metodo. Questo aspetto deve essere preso in considerazione nell'analisi dei risultati.
Attività antibatterica di Mel4 e RK758
Le concentrazioni minime inibitorie (MIC) di RK758, Mel4 e colistina sono state valutate contro due ceppi batterici Gram-negativi, K. pneumoniae JIE 2709 ed E. coli NCTC 13846 (Tabella 3). RK758 ha mostrato una MIC di 16 μg/mL (21 μM) sia contro K. pneumoniae che contro E. coli. In confronto, Mel4 ha mostrato MIC di 62,5 μg/mL (26,6 μM) per K. pneumoniae e 125 μg/mL (53,2 μM) per E. coli, indicando una potenza inferiore rispetto a RK758. La colistina è stata utilizzata come antibiotico comparatore, mostrando la MIC più bassa di 1 μg/mL (0,87 μM) per K. pneumoniae, mentre il ceppo di riferimento resistente alla colistina di E. coli ha mostrato una MIC di 8 μg/mL (6,9 μM).
Effetto citotossicità di Mel4 e RK758
Il potenziale citotossico di Mel4 e RK758 è stato valutato nelle cellule fibroblastiche di topo L929 (ATCC CCL-1) utilizzando il test MTT dopo 24 ore di esposizione a concentrazioni seriali. Entrambi i composti hanno mostrato curve sigmoidali dose-risposta tipiche analizzate tramite regressione non lineare con il modello "inibitore vs. risposta normalizzata - pendenza variabile" in GraphPad Prism (versione 9.5.1), confermando l'inibizione della vitalità cellulare dipendente dalla concentrazione. RK758 ha mostrato un valore di CC50 di 172,6 μM, mentre Mel4 ha mostrato una potenza citotossica leggermente superiore con un CC50 di 147,5 μM, rappresentando una citotossicità circa 1,17 volte superiore rispetto a RK758 (Figura 6 e Figura 7).
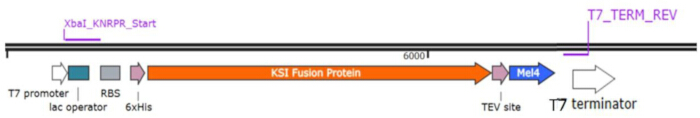
Figura 1: Una rappresentazione schematica della cassetta di espressione di p15TV-L-His-KSI-Mel4. Mappa schematica del costrutto di espressione p15TV-L che mostra il promotore T7, il sito di legame del ribosoma (RBS), il tag di purificazione 6×Is, il partner di fusione dell'isomerasi chetosteroidea (KSI), il sito di scindimento della proteasi TEV e la sequenza peptidica Mel4 seguita dal terminatore di trascrizione T7. Clicca qui per visualizzare una versione più grande di questa figura.
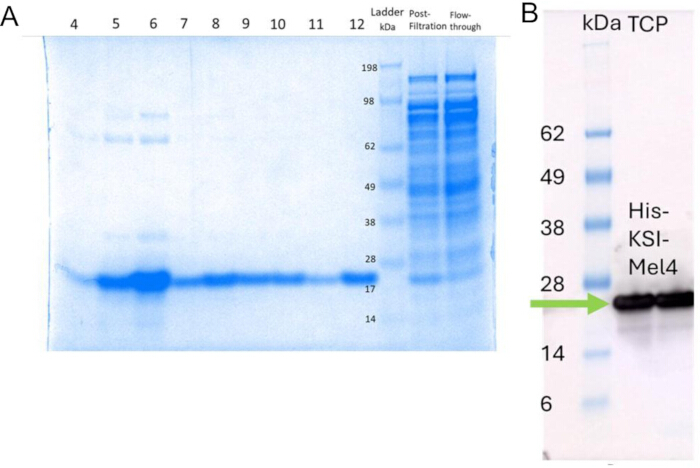
Figura 2: Analisi SDS-PAGE e western blot dell'espressione proteica ricombinante. (A) SDS-PAGE di corpi di inclusione e proteine cellulari totali dopo filtrazione e flusso attraverso il lisato cellulare grezzo. (B) Western blot della proteina cellulare totale. La freccia verde indica la posizione della proteina di interesse al peso molecolare atteso. Clicca qui per visualizzare una versione più grande di questa figura.
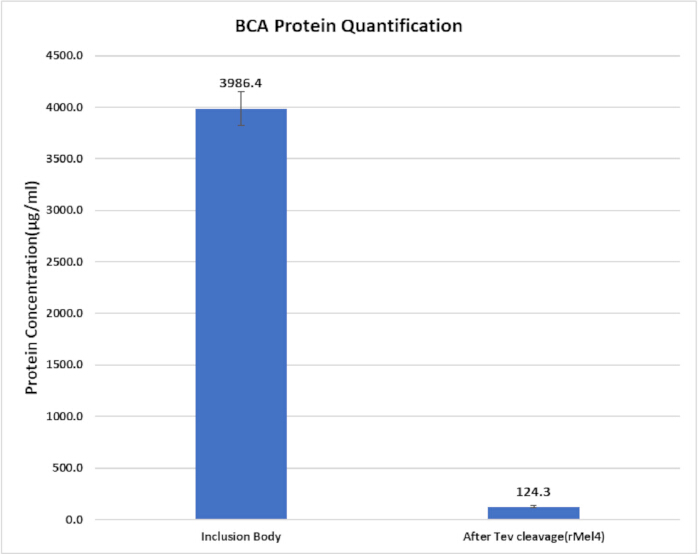
Figura 3: Quantificazione della proteina ricombinante prima e dopo la scissione TEV. Grafico a barre che mostra le concentrazioni proteiche determinate tramite test BCA per la frazione isolata del corpo di inclusione e il Mel4 ricombinante scindito ottenuto dopo il trattamento con proteasi TEV. Le barre di errore rappresentano la variazione sperimentale tra le misurazioni. Clicca qui per visualizzare una versione più grande di questa figura.
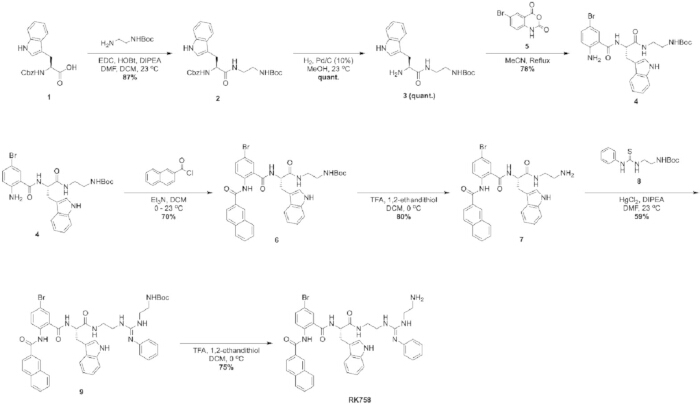
Figura 4: Approccio sintetico complessivo per ottenere RK758. Schema di reazione che delinea la sintesi chimica in sette fasi di RK758 a partire da Cbz-L-triptofano, inclusa la formazione intermedia, le trasformazioni dei gruppi funzionali e la deprotezione finale per ottenere il mimetico peptidico. Clicca qui per visualizzare una versione più grande di questa figura.
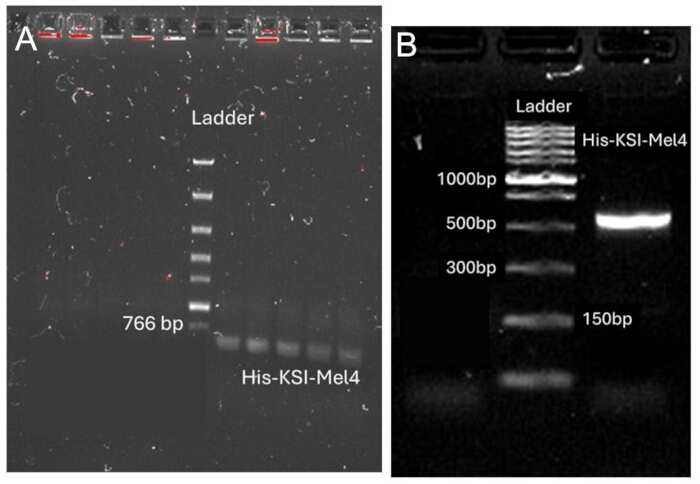
Figura 5: Elettroforesi su gel di agarosio dei plasmidi ricombinanti. (A) PCR della colonia di trasformanti per His-Mel4 e His-KSI-Mel4. (B) Conferma PCR dei plasmidi dopo il miniprep. Clicca qui per visualizzare una versione più grande di questa figura.
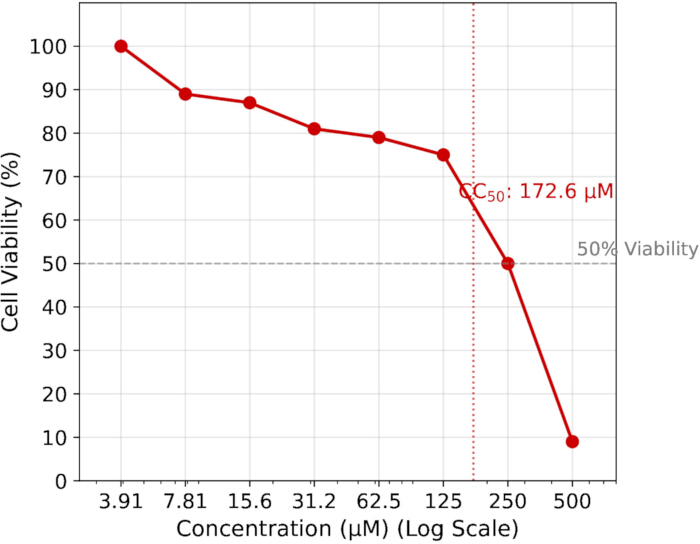
Figura 6. Citotossicità di RK758 contro le cellule dei fibroblasti L929. Curva dose-risposta che mostra l'effetto di RK758 sulla vitalità cellulare attraverso concentrazioni crescenti. I valori di CC50 sono stati calcolati tramite regressione non lineare utilizzando il modello "inibitore vs. risposta normalizzata - pendenza variabile" in GraphPad Prism, confermando l'inibizione della vitalità cellulare dipendente dalla concentrazione. I dati rappresentano la media ± SD di tre repliche biologiche indipendenti. Clicca qui per visualizzare una versione più grande di questa figura.
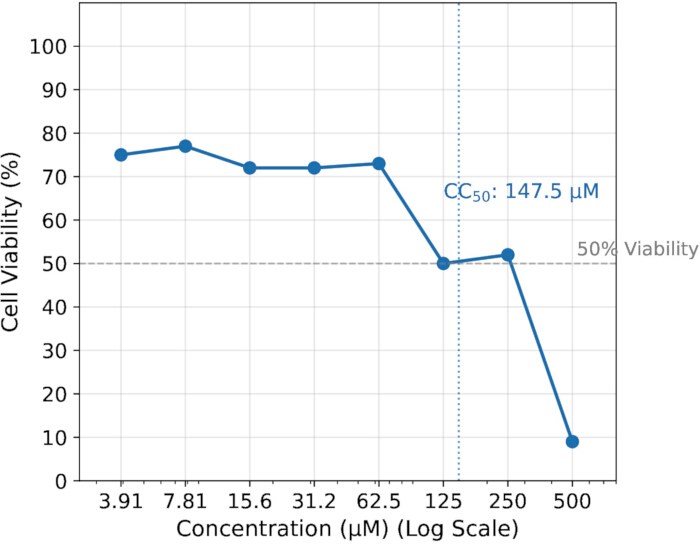
Figura 7: Citotossicità di Mel4 contro le cellule L929. Curva dose-risposta che mostra l'effetto dipendente dalla concentrazione di Mel4 sulla vitalità cellulare. I valori di CC50 sono stati calcolati tramite regressione non lineare utilizzando il modello "inibitore vs. risposta normalizzata - pendenza variabile" in GraphPad Prism, confermando l'inibizione della vitalità cellulare dipendente dalla concentrazione. I dati rappresentano la media ± SD di tre repliche biologiche indipendenti. Clicca qui per visualizzare una versione più grande di questa figura.
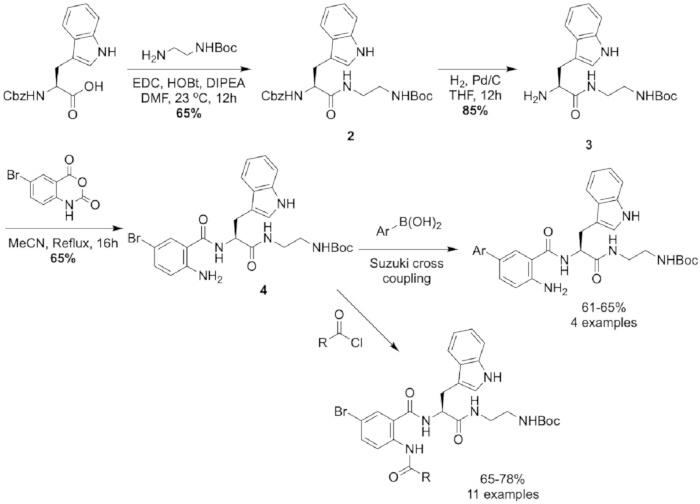
Figura 8: Strategia sintetica modificata a partire da Cbz-L-triptofano. Via sintetica alternativa che illustra la preparazione di intermediari dell'anthranilamide utilizzando Cbz-L-triptofano e i successivi passaggi di funzionalizzazione per consentire la diversificazione strutturale. Clicca qui per visualizzare una versione più grande di questa figura.
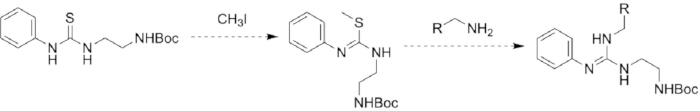
Figura 9: Alchilazione della tiourea seguita da sostituzione nucleofila con un substrato ammineo. Percorso di reazione proposto che coinvolge l'alchilazione dello zolfo di tiourea seguita da sostituzione nucleofila con un substrato aminerico per generare prodotti contenenti guanidina. Clicca qui per visualizzare una versione più grande di questa figura.
| Sezione | Nome/Caratteristica | Sequenza | |||
| Primers | XbaI_KNRPR_Start | 5'-TAGGGGAATTGTGAGCGGATAACAATTCCCCTCTAGAAATAATT-3' | |||
| T7_TERM_REV | 5'-CCAAGGGGTTATGCTAGTTATTGCTCA-3' | ||||
| Cassetta Gene | Sequenza amminoacidica His-KSI-Mel4 | MDHHHHHHHHMIDETQRKATVLEYFERVNAKDLDGVVKLF ATDAVVADPVGAPPVAGEEALRAYFQRVLHEFDTHDVPGV PSGAQDGQSVALPLKATINNPQDPTGGVRLDVNLVSVFTIG EDGLISEMRAYWGLTDIAPAGASSGRENLYFQGKNKRKRRR RRRGGRRRR | |||
| Sequenza del DNA | 5'-TAACAATTCCCCTCTAGAAATAATTTTTTTTTTAACTTTAAGAAGGA GATATACCATGGATCACCACCACACCACATCATGATTGACGAGAC GCAACGTAAAGCGACGTCTTAGAGTATTTTGAACGCGTGAATGCAA AAGACTTGGATGGCGTGTTAAACTCTTTGCGACGGACCCGTTGT AGCCGACCCTGTGTGTGCACCACCAGTGGCTGTGTGAGGAGGCACTC CGTGCCTACTTCCAGCGCGTTGCATGAATTTGAATTTGACACCCATGTGTCC CGGGCGTTCCATGCTGTGCTCAGGATGGCCAATCAGTCGCACTCCCAC TTAAAGCAACCATCAACAATCCTCAAGATCCAACAGGCGGGGGGCCCCCCCCCC TTGATGTGAACTTAGTGAGCGTATTCACGATTGGCGAAGACGTTAAT CTCCGAGATGCGTGTGTGTGTGTGTGTGTGTGATGATATTGCTCCGGCAGGT GCAAGCAGTGGTCGCGAGAACTTGTACTTCCAAGGTAAGAACAAGCGTA AGAGACGCCCGGGGCCCCCGGGGAGGACGGAGACGTCGCTAATCGAAC TCGAGATCCGGCT-3' | ||||
Tabella 1: Sequenze di primer utilizzate per la verifica PCR e sequenza completa a cassetta genica del plastico finale costruito.
| Amminoacidi | Calcolato | Testato |
| Istidina | 4.70% | 4.70% |
| Serine | 3.60% | 3.40% |
| Arginina | 10.70% | 9.20% |
| Glicina | 9.50% | 11% |
| Acido aspartico | 11.30% | 11.50% |
| Acido glutammico | 8.90% | 8.90% |
| Treonina | 4.70% | 4.60% |
| Alanina | 9.50% | 9.70% |
| Prolina | 5.30% | 5.30% |
| Lisina | 4.10% | 4.50% |
| Tirosina | 2.40% | 2.20% |
| Metionina | 1.80% | 1.90% |
| Isoleucina | 3.00% | 3.20% |
| Leucina | 7.10% | 7.40% |
| Fenialanina | 3.60% | 3.60% |
| Valine | 9.50% | 8.90% |
| Triptofano | 0.60% | - |
Tabella 2: Analisi delle composizioni degli amminoacidi.
| Ceppi batterici | MIC μg/mL (μM) | ||
| RK758 | Mel4 | Colistin | |
| K. pneumoniae JIE 2709 | 16 (21) | 62.5 (26.6) | 1 (0.87) |
| E. coli NCTC 13846 | 16 (21) | 125 (53.2) | 8 (6.9) |
Tabella 3: MIC di RK758, Mel4 e colistina contro batteri Gram-negativi.
Discussione
Il protocollo descritto qui fornisce un quadro completo per la produzione e la valutazione funzionale dell'AMP Cationico Mel4 (che può essere modificato per l'uso con altri AMP) e del mimetico dei peptidi RK758. Questo flusso di lavoro combina sintesi chimica a più fasi o espressione ricombinante in E. coli con saggi antimicrobici e di citotossicità. L'integrazione di questi approcci offre una piattaforma versatile per la ricerca sistematica sugli AMP, permettendo confronti diretti tra peptidi chimicamente sintetizzati e prodotti biologicamente. Diversi passaggi di questo protocollo sono particolarmente critici per la produzione e la valutazione dell'attività di peptidi di successo.
RK758 è un mimico peptidico sintetico basato su un impalcatura di anthranilamide. Durante la fase di screening del composto per la scoperta di nuovi mimetici AMP, è difficile utilizzare lo screening in silico per pianificare una libreria di composti. Pertanto, è importante basare questi mimici su un'impalcatura che consenta diversità nella libreria di composti. L'impalcatura dell'anthranilamide è stata scelta proprio per questo motivo. Un ulteriore vantaggio di un impalcatura a base di anthranilamide è che il metabolita RK758, acido 5-bromoantranilico, ha dimostrato di possedere proprietà antimicrobiche.
I lavori precedenti che ottimizzavano la struttura e l'attività antibatterica dell'RK758 e dei suoi analoghi utilizzavano diverse procedure sintetiche. Lo studio originale di ottimizzazione strutturale ha indagato l'effetto di diversi gruppi cationici e sostituenti sul gruppo fenilico anthranilic. Pertanto, la sintesi iniziò con l'apertura dell'anello di derivati anidridi isatoici con L-triptofano metilestere. Il prodotto poteva poi essere modificato come mostrato da Kuppusamy et al.15. Uno studio di follow-up ha indagato la struttura e la posizione del gruppo idrofobo. Lo studio di follow-up ha mostrato che l'impalcatura sostituita dal Bromo tollerava una varietà di gruppi idrofobici in posizione naftile e che l'intermedio 4 era adatto al cross-coupling di Suzuki nella posizione bromo, come mostrato nella Figura 8.
Il lavoro attuale ha affrontato alcuni dei problemi dei precedenti approcci. Nell'approccio illustrato nella Figura 4, nonostante la sintesi dell'intermedio 11 riporti purificazione tramite triturazione con etere dietilico, i tentativi di replicare questo risultato hanno poi prodotto miscele caramelle impure e gommose che richiedono purificazione cromatografica. Inoltre, l'intermedio 6 richiedeva anche la purificazione cromatografica con questo approccio. Nel complesso, il lavoro originale ha ottenuto una resa intermedia del 7 in 21% in sei fasi da L-triptofano metilestere cloridrato. Il secondoapproccio 15, sebbene con una resa inferiore (14% da Cbz-L-triptofano), ha prodotto intermedi più facili da maneggiare in meno fasi.
Questo studio ha identificato che l'accoppiamento di Cbz-L-Trp con N-Boc-etilenediamine richiedeva ottimizzazione per garantire che non rimanesse residuo di DMF nel prodotto, come osservato durante gli studi iniziali per aumentare questa reazione. L'uso di un sistema a solventi misti con un rapporto 3:8 (v/v) tra DMF e DCM ha ridotto la quantità di DMF, facilitando la rimozione durante la lavorazione; Tuttavia, sostituire solventi clorurati potrebbe sollevare preoccupazioni sull'impatto ambientale. Questa modifica ha anche migliorato la resa all'87%, probabilmente attribuibile al sottoprodotto dell'urea derivante dall'EDC che precipita nella miscela DCM, agendo come forza trainante della reazione. L'idrogenazione è stata identificata anche come un collo di bottiglia, poiché queste reazioni tipicamente producono >90%. Questo studio ha rilevato che sostituire il THF al metanolo ha prodotto 3 in termini quantitativi, rispetto all'85% nei lavori precedenti, riducendo il tempo di reazione a 4 ore. Ciò potrebbe anche essere attribuito all'uso di un materiale di partenza più puro, poiché lo studio originale probabilmente conteneva residui di DMF, che potrebbero aver avvelenato il catalizzatore del palladio. Nel complesso, rispetto agli approcci precedenti, la resa a livello intermedio 7 è migliorata al 48% in 5 passi rispetto a Cbz-L-Triptofano. Negli esperimenti precedenti (discussi sopra), la resa complessiva era del 21%, con il 14% per le reazioni di follow-up, mentre in questo studio è stata raggiunta una resa complessiva del 48% per il composto 7, dimostrando la diversità di analoghi che possono essere sintetizzati da derivati anidridi isatoici adeguatamente sostituiti.
L'ammina altamente disattivata nell'anthranilamide 4 (vedi Figura 8) richiede tre equivalenti di cloruro acido per una reazione efficiente. Quando si impiegano solo quantità stechiometriche, si verifica una conversione incompleta di 4 in 6, complicando la purificazione a causa delle caratteristiche cromatografiche e solubili simili degli intermedi 4 e 6. Gli autori riconoscono che questa è una limitazione dell'impalcatura e stanno lavorando per sviluppare una nuova metodologia per ridurre l'eccesso di cloruro acido necessario.
La penultima reazione per collegare la tiourea 8 all'ammina 7 richiede cloruro di mercurio (II), che è altamente tossico ed estremamente dannoso per l'ambiente, il che potrebbe escludere questo metodo per una sintesi su larga scala. Questo approccio è stato utilizzato nel lavoro attuale, poiché l'attacco mediato dal mercurio (II) delle tiouree avviene a temperatura ambiente. Un metodo alternativo che utilizza la tiourea 8 prevede l'alchilazione dell'atomo di zolfo, seguita dalla sostituzione nucleofila con un substrato ammineo, come mostrato nella Figura 9. Questo tipo di reazione è stato segnalato, tuttavia, in molti casi richiede temperature elevate e condizioni di base che possono portare alla formazione di prodotti collaterali con isubstrati 20,21. In alternativa, utilizzando un substrato simile di tiourea metilata, un approccio fotocatalitico è stato riportato da Saetan et al.20. Riferiscono che questa reazione avviene a temperatura ambiente sotto irradiazione con luce proveniente da un LED bianco. È stato riportato che questa reazione avviene con una varietà di ammine primarie e secondarie, producendo prodotti superiori all'80%. Per la reazione finale, la triturazione con etere dietilico seguita da liofilizzazione produce un prodotto tipicamente senza ulteriore purificazione (>95% di purità per 1H NMR in MeOD-d4). L'impurità primaria è il 1,2-etanoliol residuo ad alto punto di ebollizione, facilmente rilevabile dal suo caratteristico odore simile a quello del cavolo. L'espressione ricombinante di Mel4 richiede induzione a una densità ottica ottimale (OD600 0,5–0,6) e un attento mantenimento della temperatura di induzione per massimizzare la formazione del corpo di inclusione preservando la vitalitàbatterica 22.
I saghi antimicrobici e di citotossicità includono anche i passaggi essenziali per ottenere risultati accurati e riproducibili. È necessaria una preparazione precisa dell'inoculo e una diluizione seriale dei peptidi, poiché piccole variazioni nella densità batterica o nella solubilità peptidica possono alterare significativamente i valori misurati di MIC eMBC 16. Nei saghi di citotossicità MTT, un conteggio cellulare accurato, una semina uniforme e una completa dissoluzione del formazan sono fondamentali per ottenere letture metabolicheaffidabili 23.
Diverse modifiche al protocollo possono affrontare sfide comuni. I peptidi con solubilità acquosa limitata possono essere sciolti nello 0,01% di acidoacetico 16 , mentre peptidi o mimici possono anche essere solubilizzati in DMSO24 o integrati con 0,1–0,2% diBSA 17 per prevenire l'adsorbimento alle superfici plastiche durante la determinazione della CIM. I corpi di inclusione ricombinante possono essere solubilizzati e ripiegati regolando le concentrazioni di cloruro di guanidinio o urea, seguite da dialisi a gradi. Per i saghi MTT, una scuotimento delicato e la completa dissoluzione del DMSO possono ridurre la variabilità delle letture di assorbimento.
L'importanza di questo protocollo risiede nell'integrazione di strategie complementari di produzione e valutazione, offrendo vantaggi rispetto agli approcci standard a metodo singolo. Molti studi si concentrano su un unico metodo per la produzione di peptidi o mimetici, ma nessun approccio singolo è ideale per tutti i composti; Selezionare il metodo appropriato in base alle proprietà dei peptidi garantisce resa e funzionalità ottimali. Ad esempio, la sintesi chimica consente l'incorporazione precisa di amminoacidi non naturali e imitazionipeptidiche 4, cosa che può essere difficile nei sistemi ricombinanti. Al contrario, l'espressione ricombinante offre una produzione economica di peptidialtamente cationici 25 che possono aggregarsi durante la sintesi chimica. Combinando entrambi i metodi con saggi funzionali standardizzati, il protocollo consente una caratterizzazione rigorosa dell'attività AMP e della citotossicità, superando l'ambito dei soli saghi standardMIC 26.
Rispetto agli approcci tradizionali autonomi, questo protocollo è ampiamente applicabile alla ricerca sui peptidi antimicrobici e allo sviluppo terapeutico. Può essere adattato per esplorare le relazioni struttura-attività, ottimizzare la potenza dei peptidi e valutare la tossicità. Inoltre, i metodi possono supportare lo screening ad alto rendimento delle librerie peptidiche, lo studio dei meccanismi di resistenza batterica e la valutazione di terapie combinate con antibiotici convenzionali. Oltre alle applicazioni antibatteriche, questo flusso di lavoro può essere applicato anche a test antivirali o antifungini peptidici, rivestimenti superficiali per il controllo delle infezioni e applicazioni biomediche come la disgregazione o l'immunomodulazione dei biofilm.
In conclusione, questo protocollo offre un flusso di lavoro versatile e riproducibile per la produzione, purificazione e valutazione funzionale di AMP e mimetici peptidici. Affrontando considerazioni metodologiche critiche, offrendo strategie per la risoluzione dei problemi e abilitando applicazioni diverse, stabilisce una solida base per la ricerca antimicrobica e biomedica.
Dichiarazioni
Gli autori non hanno conflitti di interesse da dichiarare.
Ringraziamenti
Gli autori desiderano riconoscere il Mark Wainwright Analytical Centre e la Recombinant Product Facility (RPF) presso l'Università del New South Wales. In particolare, la Bioanalytical Mass Spectrometry Facility per l'analisi HRMS e la NMR facility per l'accesso agli strumenti NMR.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 1,2-ethanedithiol | Oakwood | M03555 | |
| 100X Antibiotici | Sigma Aldrich | A5955-20ML | |
| 1-Etil-3-(3-dimetilaminopropil)carbodiimide Cloridrato | Blocchi combinati | SS-7536 | D'ora in poi chiamata EDC |
| 2-Naftiil cloruro | Blocchi combinati | OR-0173 | |
| Acido acetico | Ajax Finechem | R18401O | |
| Acetonitrile | VWR | 20060.35 | |
| Fosfatasi alcalina | New England Biolabs | M0525S | |
| Albumina sierica bovina (BSA) | Sigma Aldrich | A1933 | |
| Brodo Mueller-Hinton adattato a cationi (CAMHB) | Becton, Dickinson and Company | 212322 | |
| Cbz-L-Trp | Blocchi combinati | QB-6691 | |
| Colistin | Sigma Aldrich | C4461 | |
| Dey-Engley (D/E) Brodo neutralizzante | Ossassoide | R453042 | |
| Terra diatomacea (Celite 545) | Sigma Aldrich | 102693 | Dimensione delle particelle 0,02-0,1 mm |
| Diclorometano (DCM) | VWR | 23366.327 | |
| Etere dietilico | Chem-Supply | EA036 | |
| Dimetil Solfossido (DMSO) | Chem-Supply Pty Ltd | LCS-CHEM-0098 | |
| Ditiotreitolo (DTT) | Thermo Scientific | J15397.03 | |
| Mezzo di coltura DMEM | Thermo Fisher Scientific | UCS-BIO-0058 | |
| Ospite di E. coli BL21(DE3) | Sigma Aldrich | 70235-M | |
| Elettroporatore | Thermo Scientific | NEON1SK | |
| Acetato di etil | Chem-Supply | EA011-2.5L-P | |
| Acido etilendediaminatetraacetico (EDTA) | Thermo Scientific | 118432500 | |
| Siero Fetale Bovino (FBS) | Sigma Aldrich | 12003C-500ML | |
| TEV Proteasi con tag His; | Sigma Aldrich | T4455 | |
| Idrugno di idrossibenzotriazolo | Chem-Implex | 24755 | |
| Imidazolo | Thermo Scientific | 288-32-4 | |
| Isopropilo β-D-1-tiogalattipiranovide (IPTG) | Sigma Aldrich | I6758 | |
| Brodo Luria-Bertani (LB), | Thermo Scientific | 12795027 | |
| Buffer di lisi & nbsp; | Thermo Scientific | 89822 | |
| Cloruro di mercurio (II) | Sigma Aldrich | 215465 | |
| Metanolo (Grage HPLC) | VWR | A452-4K | |
| Reagente MTT | Sigma Aldrich | M2128-100MG | |
| N,N-Diisopropiletilamina (DIPEA) | Sigma Aldrich | 3440 | |
| N,N-Dimetilformamide (DMF) | Chem-Supply | RP1051 | |
| NanoDrop | Thermo Scientific | ND-ONE | |
| N-Boc-etilenediamina | Blocchi combi | AM-1613 | |
| Colonna di Resina di Affinità NTA | Sigma Aldrich | 70666 | |
| Palladio sul carbonio | Sigma Aldrich | 205699 | 10% in servizio di lavoro |
| Kit per purificazione dei plasmidi | QIAGEN | 27104 | |
| Tubi microtitolati in polipropilene | SARSTEDT | 72.690.008 | |
| Gel di silice per cromatografia a colonna flash | Siliciclo | R12030B | Silica Gel 60, 230-400 mesh |
| Gel di silice Piastra cromatografia a strato sottile | Merk | 1055540001 | Spessore dello strato di 0,2 mm su supporto in alluminio con indicatore fluorescente da 254 nm |
| Fosfato di sodio, 0,2M soln tampone | Thermo Scientific | J63816. AP | |
| Piastra microtitolatrice in polipropilene a fondo piatto sterile da 96 pozzi con coperchio | Corning | 3599 | |
| Ligasi del DNA T4 | New England Biolabs | M0202S | |
| Trietilamine (Et3N) | Chem-Supply | TR02151000 | |
| Acido trifluoroacetico (TFA) | Sigma Aldrich | T6508 | |
| Tris-HCL | Thermo Scientific | J62848. AK | |
| Triton X-100 | Thermo Scientific | A16046.AE | |
| Blu di tripano | MP BIOMEDICALS AUSTRALIA PTY LTD | ||
| Tripsina-EDTA (0,25%) | Sigma Aldrich | T4049-500ML | |
| Tripticase soia agar | Becton, Dickinson and Company | 211043 | |
| Urea e nbsp; | Thermo Scientific | 29700 | |
| Vector (promotore T7) | - | plasmide ad alto numero di copie preferito |
Riferimenti
- Naghavi, M., et al. Global burden of bacterial antimicrobial resistance 1990–2021: a systematic analysis with forecasts to 2050. Lancet. 404 (10459), 1199-1226 (2024).
- Antimicrobial resistance. , World Health Organization. Available at: https://www.who.int/news-room/fact-sheets/detail/antimicrobial-resistance (2023).
- Puri, B., Vaishya, R., Vaish, A. Antimicrobial resistance: Current challenges and future directions. Med. J. Armed Forces India. 81 (3), 247-258 (2025).
- Zhang, T., Jin, Q., Ji, J. Antimicrobial peptides and their mimetics: promising candidates of next-generation therapeutic agents combating multidrug-resistant bacteria. Adv. Biol. 9 (4), 2400461(2025).
- Pasupuleti, M., Schmidtchen, A., Malmsten, M. Antimicrobial peptides: key components of the innate immune system. Crit. Rev. Biotechnol. 32 (2), 143-171 (2012).
- Oliveira Júnior, N. G., et al. Antimicrobial peptides: structure, functions and translational applications. Nat. Rev. Microbiol. , (2025).
- Keshri, A. K., et al. LL-37, the master antimicrobial peptide, its multifaceted role from combating infections to cancer immunity. Int. J. Antimicrob. Agents. 65 (1), 107398(2025).
- Alzain, M., et al. Antimicrobial peptides: mechanisms, applications, and therapeutic potential. Infect. Drug Resist. , 4385-4426 (2025).
- Kuppusamy, R., Willcox, M., Black, D. S., Kumar, N. Short cationic peptidomimetic antimicrobials. Antibiotics. 8 (2), (2019).
- Xu, J. Peptides chemistry, manufacturing, and controls. Peptide Science: Chemical Ligation, Lead Generation, and Therapeutic Advances. , 471-508 (2025).
- Wang, Q., et al. Expression and purification of antimicrobial peptide buforin IIb in Escherichia coli. Biotechnol. Lett. 33 (11), 2121-2126 (2011).
- Cai, Z., et al. Peptide synthesis: a review of classical and emerging methods. Biofabrication. 18 (1), 012001(2026).
- Gentilucci, L., De Marco, R., Cerisoli, L. Chemical modifications designed to improve peptide stability: incorporation of non-natural amino acids, pseudo-peptide bonds, and cyclization. Curr. Pharm pseudo-peptide. Des. 16 (28), 3185-3203 (2010).
- Kuppusamy, R., et al. Tuning the anthranilamide peptidomimetic design to selectively target planktonic bacteria and biofilm. Antibiotics. 12 (3), 585(2023).
- Kuppusamy, R., et al. Guanidine functionalized anthranilamides as effective antibacterials with biofilm disruption activity. Org. Biomol. Chem. 16 (32), 5871-5888 (2018).
- Wiegand, I., Hilpert, K., Hancock, R. E. Agar and broth dilution methods to determine the minimal inhibitory concentration (MIC) of antimicrobial substances. Nat. Protoc. 3 (2), 163-175 (2008).
- Ji, S., et al. Adsorption and morphology analysis of bovine serum albumin on a micropillar-enhanced quartz crystal microbalance. J. Phys. Chem. B. 128 (41), 10247-10257 (2024).
- Yasir, M., Dutta, D., Willcox, M. D. Activity of antimicrobial peptides and ciprofloxacin against Pseudomonas aeruginosa biofilms. Molecules. 25 (17), (2020).
- Methods for the determination of susceptibility of bacteria to antimicrobial agents. terminology. Clin. Microbiol. Infect. 4 (5), 291-296 (1998).
- Saetan, T., Sukwattanasinitt, M., Wacharasindhu, S. A mild photocatalytic synthesis of guanidine from thiourea under visible light. Org. Lett. 22 (20), 7864-7869 (2020).
- Woodring, J. L., et al. Disrupting the conserved salt bridge in the trimerization of influenza A nucleoprotein. J. Med. Chem. 63 (1), 205-215 (2019).
- Terpe, K. Overview of bacterial expression systems for heterologous protein production: from molecular and biochemical fundamentals to commercial systems. Appl. Microbiol. Biotechnol. 72 (2), 211-222 (2006).
- Berridge, M. V., Herst, P. M., Tan, A. S. Tetrazolium dyes as tools in cell biology: new insights into their cellular reduction. Biotechnol. Annu. Rev. 11, 127-152 (2005).
- Deni, W. H., Gao, T., Wu, J. Protocol for reconstituting peptides/peptidomimetics from DMSO to aqueous buffers for circular dichroism analyses. STAR Protoc. 5 (1), 102850(2024).
- Lou, M., et al. Microbial production systems and optimization strategies of antimicrobial peptides: a review. World J. Microbiol. Biotechnol. 41 (2), 66(2025).
- Hancock, R. E., Sahl, H. G. Antimicrobial and host-defense peptides as new anti-infective therapeutic strategies. Nat. Biotechnol. 24 (12), 1551-1557 (2006).
Ristampe e permessi
