Questo protocollo fornisce un metodo standardizzato per isolare e arricchire mioblasti primari da muscoli scheletrici di topo adulti e neonati attraverso dissociazione tissutale, filtrazione sequenziale, preplaccatura e condizioni di coltura definite, consentendo l'istituzione e il mantenimento di colture mioblastiche derivate da cellule satellitari per applicazioni sperimentali a valle.
Articolo metodologico
Isolamento delle cellule satelliti muscolari scheletrici per studi in vitro sulla miogenesi
* These authors contributed equally
In questo articolo
Sommario
Abstract
La rigenerazione e la crescita dei muscoli scheletrici dipendono dalle cellule satelliti, le cellule staminali residenti nel tessuto muscolare. Attualmente, queste cellule fungono da modello in vitro che rappresenta in modo più accurato i processi miogenici naturali. Tuttavia, l'isolamento delle cellule satelliti è tecnicamente impegnativo poiché esistono in piccoli numeri all'interno del muscolo scheletrico e la natura tipicamente eterogenea delle popolazioni cellulari isolate. In questo studio, descriviamo un metodo standardizzato per isolare e arricchire mioblasti primari dai muscoli scheletrici sia di topi adulti che neonatali. La procedura delinea la dissezione muscolare, la dissociazione enzimatica, la filtrazione sequenziale, i passaggi di preplacatura per limitare le cellule non miogeniche e le condizioni di coltura definite per l'istituzione di colture mioblastiche derivate da cellule satelliti. Il protocollo fornisce indicazioni pratiche su tempistiche, gestione e passaggi critici per stabilire una cultura di successo. I mioblasti primari generati con questo protocollo possono essere utilizzati per una varietà di applicazioni a valle, inclusi studi di miogenesi, analisi funzionale, manipolazione genetica, imaging di cellule vive o test farmacologici. Le cellule si fondono e maturano in modo affidabile, rendendole particolarmente adatte allo studio della fusione mioblastica, dello sviluppo muscolare, dei meccanismi rigeneranti per ripristinare la funzione muscolare scheletrica e del loro metabolismo.
Introduzione
La capacità del muscolo scheletrico di rigenerarsi dopo qualsiasi insulto alla sua integrità dipende fondamentalmente da una popolazione specializzata di cellule precursori miogeniche, note come cellule satelliti (SC), chiamate così per la loro posizione satellitare lungo la miofibra. Si localizzano sotto la lamina delle fibre muscolari, attaccate alle fibre muscolarimultinucleate 1,2,3. Gli SC sono caratterizzati dall'espressione della proteina box accoppiata Pax7, che viene conservata in più specie, tra cui umano, topo, scimmia e maiale. Pax7, identificato come il primo marcatore rilevabile per gli SC sia in stato di quiete che attivato, è essenziale per lo sviluppo e la sopravvivenza degli SC4. In condizioni normali, gli SC sono mantenuti in uno stato di quiete (fase G0 del ciclo cellulare), caratterizzato da una bassa attività metabolica e inattività trascrizionale 5,6. In caso di lesioni muscolari o stress meccanici, si attivano, riprendono il ciclo cellulare, si espandono in numero e si differenziano per contribuire a nuove miofibre o riparare quelle danneggiate 7,8,9. Durante questo processo, un sottoinsieme di SC deve sottoporsi all'auto-rinnovamento, tornando a uno stato di quiete (Pax7⁺) per mantenere l'integrità a lungo termine del pool di cellule staminali. L'auto-rinnovamento avviene tramite divisione asimmetrica, in cui una cellula figlia mantiene caratteristiche simili a uno staminale mentre l'altra diventa un progenitore miogenico consolidato, oppure per divisione simmetrica, in cui entrambe le cellule figlie mantengono un'identità simile a uno stanello o si differenziano, a seconda del contesto fisiologico e dinicchia 10,11,12.
Le SC svolgono un ruolo fondamentale nella rigenerazione muscolare, rendendole un punto chiave nella biologia del muscolo scheletro, nella medicina rigenerativa e nella ricerca sulla distrofia muscolare. Comprendere come queste cellule si comportano e funzionano non solo fa luce sui processi fondamentali di riparazione muscolare, ma apre anche la strada allo sviluppo di terapie per trattare condizioni di degravimento muscolare e migliorare la rigenerazione.
L'isolamento delle SC dal tessuto muscolare è un passo cruciale negli studi in vitro , permettendo di indagare le loro caratteristiche molecolari, il potenziale di proliferazione, le vie di differenziazione e le risposte a vari stimoli. Tuttavia, questo processo presenta diverse sfide tecniche a causa della struttura complessa del muscolo, dell'abbondanza relativamente bassa di cellule satelliti rispetto ad altri tipi cellulari e della necessità di preservarne la vitalità e la stamina durante l'isolamento.
Attualmente, sono impiegate tre tecniche principali per l'isolamento degli SC: il metodo di preplaccaggio, la selezione delle celle attivate dalla fluorescenza (FACS) e la selezione delle celle attivate magneticamente (MACS). Ogni metodo offre vantaggi e limitazioni distinte in termini di purezza, ressa, vitalità cellulare e conservazione degli SC.
Il metodo di preplaccatura sfrutta le proprietà adesive differenziali delle cellule derivate dal muscolo, con le SC tra le meno aderenti. Dopo aver digerito enzimaticamente il muscolo scheletro, la sospensione cellulare eterogenea risultante viene placcata su piastre di coltura tipicamente rivestite con collagene di tipo I. Dopo 1-24 ore (a seconda del protocollo) di incubazione a 37°C, le cellule non aderenti vengono raccolte e trasferite su una lastra rivestita di Matrigel per un'ulteriore coltura 13,14,15,16. La popolazione risultante include solitamente sia SC che fibroblasti, oltre a un piccolo numero di adipociti e cellule endoteliali 17,18. Ripetere il processo di preplacatura ogni 24-48 ore per un massimo di una settimana per le SC isolate da topi adulti e fino a 2 settimane per i neonati può migliorare la purezza della popolazione cellulare. Sebbene questo metodo sia economico e tecnicamente semplice, è laborioso e spesso produce colture con composizione variabile. Il metodo di preplacatura è adatto a laboratori senza FACS o MACS, offrendo un modo semplice per arricchire le celle satelliti preservando la vitalità e le proprietà simili a steli. Pertanto, generalmente si raccomanda di combinare questo approccio con ulteriori metodi di purificazione per aumentare la purezza complessiva della popolazione cellulare. Nel protocollo attuale, abbiamo ottimizzato il passaggio di preplaccatura utilizzando piastre rivestite di collagene e regolando il tempismo in base al modello. Questa adesione differenziale accelera la rimozione dei fibroblasti, accorciando il periodo di preplaccaggio, utilizzando fattori di crescita e riducendo sia i tempi di gestione che lo stress cellulare durante l'isolamento.
FACS è un metodo ampiamente utilizzato per isolare celle satelliti basato sull'espressione di specifici marcatori superficiali (α7-integrina, CD34, CD29, β1-integrina, CXCR4), permettendo un'elevata purezza especificità 19,20. Tuttavia, spesso è una sfida a causa della complessità tecnica, dell'alto costo degli anticorpi e della necessità di apparecchiature specializzate. Inoltre, lo stress meccanico e biochimico imposto durante lo smistamento può compromettere la vitalità cellulare. La necessità di generare una sospensione a singola cellula può comportare una significativa perdita cellulare, mentre la dipendenza da specifici marcatori fluorescenti può portare a una rappresentazione incompleta dell'eterogeneità delle cellule satellitari. Inoltre, la digestione enzimatica, impiegata per dissocere le cellule, ha il potenziale di degradare antigeni superficiali critici, influenzando così l'identificazione e l'isolamento accurati, e può anche compromettere la funzionemioblastica 21,22. FACS è adatto per l'isolamento di popolazioni altamente pure in un breve periodo, soprattutto quando è richiesta una precisa risoluzione fenotipica. Tuttavia, questo metodo è meno appropriato quando mantenere cellule intatte e vitali è fondamentale, a causa delle tensioni meccaniche e biochimiche imposte durante lo smistamento, o per laboratori privi di attrezzature specializzate.
Il MACS, invece, è una tecnica utilizzata per isolare cellule satelliti legando sfere magnetiche coniugate ad anticorpi contro specifici marcatori superficiali di fibroblasti e cellule immunitarie generali alle loro superfici, separandole poi dalle popolazioni cellulari indesiderate tramite un campo magnetico. L'eluzione della selezione negativa dalla fase stazionaria è la popolazione di cellule satellitari di interesse. Il MACS consente un arricchimento efficiente delle celle satellitari con purezza e scalabilità relativamente elevate, richiedendo però meno attrezzature specializzate e competenze tecniche rispetto al FACS. Inoltre, il suo delicato processo di separazione magnetica preserva l'integrità cellulare, rendendolo adatto ad applicazioni a valle come la coltura cellulare, l'analisi dell'espressione genica e gli studi di trapianto. Tuttavia, il MACS è limitato da una minore purezza quando sono necessari più marcatori, da un possibile legame non specifico o dal trasferimento delle perline, e dalla mancanza di dati quantitativi sull'espressione deimarcatori 23,24,25.
Nonostante la disponibilità di protocolli per l'isolamento delle cellule muscolari scheletriche, ottenere colture primarie riproducibili e composizionalmente uniformi rimane una sfida, soprattutto a causa della variabilità dello sviluppo e specifica dei tessuti. L'isolamento delle SC dai muscoli neonatali è stato caratterizzato in modo meno esteso rispetto a quello dei muscoli adulti, con relativamente meno protocolli pubblicati, molti dei quali richiedono ulteriori ottimizzazioni a seconda delle condizioni tecniche e dello scoposperimentale 26,27,28. L'aggiustamento dei parametri, inclusa concentrazione enzimatica, durata digestione e condizioni di coltura, è spesso necessario per le diverse fasi di sviluppo - specialmente nei neonati - per raggiungere la massima ressa, vitalità e purezza delle cellule satelliti isolate. In questo articolo dimostriamo un protocollo ottimizzato per l'isolamento delle cellule satelliti dai muscoli scheletrici di topi adulti e neonatali (giorni postnatali 6-14, P6-P14), combinando preplacing e ordinamento MACS con aggiustamenti ai tempi di preplacing e alla composizione del mezzo. Questo protocollo offre una popolazione cellulare riproducibile attraverso le fasi dello sviluppo, con cellule isolate che mostrano alta purezza e vitalità. L'immunocolorazione indica che la proporzione di cellule Pax7+ supera tipicamente il 97%. Inoltre, questi mioblasti mostrano un robusto potenziale di differenziazione, formando efficacemente miotubi multinucleati al momento della sostituzione del mezzo di crescita con un mezzo di differenziazione. Le miotubi differenziate possono essere osservate tramite microscopia a contrasto di fase o verificate tramite immunocolorazione per la catena pesante della miosina (MHC), un marcatore indicativo delle fibre muscolari mature.
Protocollo
In questo studio sono stati utilizzati maschi adulti (3 mesi) del genotipo C57BL/6J × STOCK Tyrcch Bmp5se+/+ Myo6sv/J, così come maschi e femmine neonati (giorni postnatali 6-14, P6-P14) del genotipo C57BL/6J x flox/MK5/flox. I topi venivano tenuti e allevati in condizioni prive di patogeni all'interno della struttura animale dell'Istituto Nencki di Biologia Sperimentale, PAS. Durante tutti gli esperimenti, ai topi è stata fornita una dieta convenzionale per roditori. La cura degli animali e l'eutanasia sono state condotte in conformità con le direttive del Consiglio delle Comunità Europee adottate in Polonia (Legge del 15 gennaio 2015 relativa all'uso degli animali nella ricerca). Poiché tutti gli studi utilizzavano tessuti animali senza causare sofferenza, non era richiesta l'approvazione da parte di un comitato etico. Le procedure furono eseguite sotto la supervisione e l'autorizzazione del Direttore dell'Istituto Nencki di Biologia Sperimentale. Sono state concesse le seguenti approvazioni interne: 410P/2021/IBD e 487W/2022/IBD. Per gli esperimenti, sono stati analizzati i seguenti muscoli dell'arto posteriore negli animali adulti: gastrocnemio, soleo, estensore lungo delle dita e tibiale anteriore. Nel neonato, sono stati esaminati tutti i muscoli posteriori e tricipiti dell'arto anteriore.
Una panoramica schematica della procedura per isolare e purificare i mioblasti primari dai muscoli degli arti posteriori dei topi è mostrata nella Figura 1.
Le informazioni sui reagenti e sulle attrezzature utilizzate in questo studio sono fornite nella Tabella dei Materiali.
1. Dissezione muscolare
- Eutanasia il topo in conformità con le linee guida approvate dall'IACUC stabilite nell'istituto.
- Dissezionare i muscoli degli arti posteriori all'esterno dell'armadietto di biosicurezza. Spruzzare gli arti posteriori con etanolo al 70% e posizionare il topo in posizione supina.
NOTA: Non è necessaria una tecnica sterile per questo passaggio, a parte l'uso di strumenti di dissezione autoclaviata e etanolo al 70% per la decontaminazione superficiale. - Collezione muscolare
- Rimuovere con cura la pelle da entrambi gli arti posteriori usando forbici autoclaviate per esporre la muscolatura sottostante. Usando forbici sterili e pinze, fai un'incisione nella pelle dorsale e speggila delicatamente per esporre completamente i muscoli degli arti posteriori. Rimuovere qualsiasi tessuto adiposo e tendini visibili per garantire una preparazione pulita.
- Rimuovere con attenzione la fascia che circonda la pancia del muscolo per garantire un'isolamento più omogeneo e meno contaminazione. Continua a isolare i tessuti e raccogli muscoli da un arto posteriore. Trasferire immediatamente i muscoli su una piastra di coltura contenente 1x soluzione salina tamponata con fosfato e penicillina al 1% (PBS + P/S). Ripeti la dissezione per l'arto posteriore opposto e inserisci i muscoli in una seconda piastra di coltura contenente PBS + P/S.
NOTA: La fascia d'età ottimale per i topi neonati va dal giorno 6 (P6) postnatale al giorno 14 postnatale (P14). Sotto P6, l'isolamento muscolare è meno preciso e può portare a contaminazione dei tessuti circostanti, riducendo così l'omogeneità della coltura. A partire da P6, l'isolamento dei muscoli addominali - dall'origine ai tendini di inserimento - diventa più pulito e migliora così la qualità complessiva degli espianti. Per i topi neonati, i muscoli di diversi animali possono essere raccolti in un'unica placca. Da questo momento in poi, tutte le procedure dovrebbero essere eseguite in condizioni sterili in un armadietto di biosicurezza per evitare contaminazioni, e a temperatura ambiente (RT) se non specificato diversamente.
- Spruzza l'esterno della piastra con etanolo al 70% prima di trasferirla in un armadietto sterile di biosicurezza. Utilizzando una seconda coppia di pinze autoclavi, trasferire i muscoli dalla piastra di coltura al primo pozzetto di una piastra a 6 pozzetti contenente PBS + P/S, poi aggiungere 2-3 gocce di betadine (100 mg/mL) per decontaminare il tessuto. Dopo una lieve scossa per meno di 10 secondi, trasferire rapidamente i muscoli attraverso il secondo e il terzo pozzo contenenti PBS + P/S fresco per risciacquare accuratamente la betadine ed eliminare eventuali capelli, tessuto connettivo o altri detriti residui.
NOTA: I muscoli non dovrebbero essere esposti alla betadine per un periodo prolungato, poiché può essere tossico per le cellule.
2. Digestione muscolare
- Utilizzando una seconda coppia di pinze autochiave, trasferisci i muscoli lavati in due tubi da 1,5 mL (un tubo per ogni gruppo muscolare dell'arto posteriore). Taglia finemente il tessuto con forbici autoclaviate finché il muscolo non si riduce a piccoli frammenti uniformi di circa 1-2 mm di dimensione, garantendo un'esposizione uniforme durante la successiva digestione enzimatica.
- Digestione della collagenasi
- Trasferire i muscoli tritati in tubi di dissociazione tissutale, contenenti lo 0,2% di collagenasi nel Modified Eagle Medium (DMEM) di Dulbecco, filtrato con un filtro per i pori da 0,2 μm. Utilizza un tubo di dissociazione per ogni gruppo muscolare dell'arto posteriore, mantenendo un rapporto di 500 mg di tessuto per 3 mL di soluzione di collagenasi.
NOTA: La collagenasi è un enzima proteolitico che può causare irritazione della pelle e degli occhi e sensibilizzazione respiratoria se inalata. Maneggiare la polvere in una cappa chimica e indossare l'attrezzatura di protezione personale adeguata.
Una minciatura accurata del tessuto muscolare in questa fase è fondamentale per ottenere la resa ottimale dei mioblasti. Tuttavia, se la massa tissutale totale supera 500 mg, aumentare proporzionalmente la quantità di collagenasi, poiché un eccesso di tessuto può compromettere l'efficienza digestiva enzimatica alla concentrazione enzimatica descritta di seguito. - Incubare i campioni per 30 minuti a 37 °C per avviare la digestione enzimatica.
- Trasferire i muscoli tritati in tubi di dissociazione tissutale, contenenti lo 0,2% di collagenasi nel Modified Eagle Medium (DMEM) di Dulbecco, filtrato con un filtro per i pori da 0,2 μm. Utilizza un tubo di dissociazione per ogni gruppo muscolare dell'arto posteriore, mantenendo un rapporto di 500 mg di tessuto per 3 mL di soluzione di collagenasi.
- Eseguire la dissociazione tissutale utilizzando un dissociatore meccanico con il programma m_muscle_01 (che si riferisce a un programma specifico, predefinito e ottimizzato sul dissociatore costituito da agitazione meccanica controllata) progettato per facilitare la digestione enzimatica preservando la vitalità cellulare. Applica il programma due volte per migliorare la disgregazione meccanica dei tessuti.
- Se non è disponibile un dissociatore tissutale, si passa i muscoli tritati attraverso un ago di siringa da 20 G più volte fino a ottenere una sospensione omogenea senza grandi frammenti tissutori.
In alternativa, trasferire il muscolo tritato in un tubo conico da 15 mL con collagenasi allo 0,2%.
- Se non è disponibile un dissociatore tissutale, si passa i muscoli tritati attraverso un ago di siringa da 20 G più volte fino a ottenere una sospensione omogenea senza grandi frammenti tissutori.
- Incubare nuovamente i campioni per altri 30 minuti a 37 °C per completare il processo di digestione.
- Ripeti ancora una volta il passo 2.3 per garantire una completa dissociazione meccanica del tessuto residuo.
NOTA: Osserva attentamente la digestione muscolare in questa fase. Il tessuto dovrebbe essere quasi completamente dissociato, con frammenti visibili minimi rimasti, e il mezzo digeritivo dovrebbe apparire torbido. L'eccessiva incubazione danneggia le cellule.
3. Filtrazione cellulare
- Posizionare un filtro a celle da 100 μm sopra un tubo conico da 50 mL. Preinumidire il colino con 1 mL di mezzo neutralizzante (NM) preriscaldato (fino a 37 °C) contenente DMEM ad alto livello di glucosio, con il 10% di siero bovino fetale (FBS) e l'1% di P/S.
- Versare la sospensione muscolare digerita sul filtro preumido da 100 μm. Risciacquare il colino con un ulteriore 1 mL di NM per rimuovere residui di tessuto.
- In un nuovo tubo conico da 50 mL, si posiziona un colino per celle da 70 μm e si preumidisce con 1 mL di mezzo NM. Far passare il filtrato dallo filtro da 100 μm attraverso un filtrante preumido da 70 μm per rimuovere ulteriormente le cellule infiltranti più grandi, inclusi i macrofagi. Risciacquare il filtro da 70 μm con 1 mL di NM per recuperare eventuali cellule residue.
- In un nuovo tubo conico da 50 mL, si posiziona un filtro per celle da 40 μm e si fa passare la miscela attraverso il filtro preumido da 40 μm. Risciacquare il colino da 40 μm con 1 mL di NM per recuperare eventuali cellule residue.
- Prepara un filtro a celle da 30 μm su un tubo conico da 15 mL e preumidilo con 1 mL di NM. Far passare il filtrato dal filtro da 40 μm attraverso il filtro preumido da 30 μm per affinare ulteriormente la sospensione della cella. Lava il filtro da 30 μm con 1 mL di NM per massimizzare il recupero cellulare.
- Centrifuga la sospensione a celle raccolte a 300 × g per 15 minuti in RT. Conferma che un pellet di globulo bianco sia visibile sul fondo del tubo. Lavorando sotto un armadietto sterile di biosicurezza, rimuovere e scartare con cura il surnatant (mezzo digestionale).
NOTA: Dopo la centrifugazione, il pellet cellulare può essere risospeso nel mezzo di proliferazione dei mioblasti (MPM) e procedere direttamente alla sezione 5 per l'arricchimento dei mioblasti oppure, opzionalmente, essere sottoposto al modulo cellulare attivato magneticamente (MACS, descritto sotto) per aumentare ulteriormente la purezza della popolazione di mioblasti.
4. Ordinamento delle celle (opzionale) attivato magneticamente
- Risospendere il pellet cellulare ottenuto nel passo 3.6 in un buffer di selezione MACS appena preparato composto da 1x PBS (pH 7,2), 0,5% FBS e 2 mM EDTA. Usa 80 μL di tampone per grammo di tessuto originale.
NOTA: Mantieni il buffer di smistamento MACS a 2-8 °C per tutta la procedura. - Aggiungere 20 μL di reagente di marcatura magnetica per l'isolamento delle cellule satellitari per un massimo di 1 g di tessuto.
NOTA: Per campioni inferiori a 1 g, utilizzare gli stessi volumi di reagenti indicati per 1 g. Per campioni superiori a 1 g, scalare proporzionalmente tutti i volumi dei reagenti (ad esempio, per 2 g di tessuto, usare il doppio del volume del reagente). - Mescola delicatamente il campione per garantire un'etichettatura omogenea e incuba per 15 minuti a 2-8 °C sul ghiaccio.
- Dopo l'incubazione, si regola il volume totale a 500 μL con il buffer di selezione MACS per campioni derivati da un massimo di 5 g di tessuto. Per quantità di tessuto maggiori, dividere la sospensione in più tubi in modo equale per mantenere un'efficienza ottimale di separazione.
- Separazione magnetica e raccolta delle celle satellitari
NOTA: Esegui la separazione magnetica utilizzando un sistema di separazione a celle magnetiche secondo le istruzioni del produttore.- Posiziona una colonna di separazione nel campo magnetico del separatore magnetico. Lavare la colonna di separazione con 3 mL di buffer di smistamento per bilanciarla prima dell'applicazione del campione.
- Applicare la sospensione cellulare marcata sulla colonna e raccogliere la frazione eluente, che contiene la popolazione arricchita dalle cellule satellitari.
- Lava la colonna con due porzioni sequenziali da 1 mL di buffer di ordinamento. Aggiungi ogni aliquota solo dopo che il serbatoio della colonna si è svuotato. Raccogli le celle che passano e combinale con l'eluente del passo 4.5.3.
- Centrifugare la sospensione combinata delle celle a 300 × g a RT per 10 minuti per pelletare le celle satellitari isolate in MPM.
5. Purificazione dei mioblasti (fase di preplaccaggio)
- Prepara le piastre rivestite di collagene.
- Diluire collagene di ratto di tipo I in acido acetico di 20 mM (disciolto in acqua distillata sterile) a una concentrazione operativa di 50 μg/mL e aggiungere al recipiente di coltura. Incubare a RT per 1 ora.
NOTA: Sono necessari circa 5 mL di collagene da 50 μg/mL per rivestire una piastra da 100 mm con una superficie di ≈80cm2. - Aspira con cura la soluzione dalle piastre.
- Risciacqua accuratamente i piatti 3 volte con PBS sterile 1x in volumi uguali per eliminare eventuali residui di acido.
NOTA: Le piastre sono adatte all'uso immediato oppure possono essere essiccate all'aria e conservate a 2-8 °C fino a necessità.
- Diluire collagene di ratto di tipo I in acido acetico di 20 mM (disciolto in acqua distillata sterile) a una concentrazione operativa di 50 μg/mL e aggiungere al recipiente di coltura. Incubare a RT per 1 ora.
- Pellet a cellula di sospensione ottenuto nello step 3.6 o al passo 4.5.4 in 10 mL di mezzo proliferante di mioblasti (MPM) preriscaldato a 37 °C.
- Prepara la MPM per mioblasti di topo adulti contenenti DMEM ad alto contenuto di glucosio, 20% FBS, 10% siero di cavallo (HS), 0,5% di estratto di embrione di pollo (CEE), 20 ng/mL fattore di crescita fibroblastico basico (bFGF) disciolto inH2Osterile distillato, e 1% di P/S o MPM per mioblasti neonatali contenenti mezzo F10 (favorisce una crescita più controllata e selettiva per la coltura neonatale, che contiene una percentuale più alta di fibroblasti), 20% FBS, 10% HS, 0,5% CEE, 20 ng/mL bFGF e 1% di P/S.
NOTA: Aggiungere bFGF direttamente al mezzo di coltura fino a una concentrazione finale di 20 ng/mL. La bFGF è essenziale per preservare lo stato indifferenziato dei mioblasti e promuovere la loroproliferazione 29.
La CEE favorisce inoltre la crescita e la proliferazione dei mioblasti, oltre a svolgere un ruolo importante nel mantenimento delle culture mioblastiche sane prevenendo la fusione spontaneadei mioblasti 14,30,31. - Una volta che la coltura raggiunge una maggiore purezza miogenica (tipicamente dopo tre passaggi), il mezzo nei mioblasti neonatali può essere transito verso la MPM costituita da una miscela 1:1 di DMEM ad alto contenuto di glucosio e F10, e successivamente alla formulazione standard di MPM utilizzata per mioblasti di topo adulti.
NOTA: È importante verificare la purezza iniziale in anticipo, poiché i cambiamenti nel mezzo eliminano il vantaggio selettivo di crescita dei mioblasti rispetto ai fibroblasti. - Pre-piastre cellulari.
- Prima preplaccatura
- Mioblasti adulti: cellule di seme su piastre rivestite di collagene. Tieni il piatto in un incubatore a 37 °C eCO2 per 24 ore.
- Mioblasti neonatali: impiattare le cellule su piatti rivestiti di collagene e incubare per 24 ore. Mantenere colture in MPM integrate con mezzo F10 (vedi sezione 5.4), salvo diversa specificazione.
NOTA: In questa fase, l'esame microscopico rivela una miscela eterogenea di frammenti muscolari e cellule (Figura 2A).
I fibroblasti neonatali mostrano un'elevata capacità proliferativa, una maggiore flessibilità del citoscheletro (caratterizzata da una rete actina-miosina meno rigida e un ricambio di adesione focale più dinamico) e mostrano profili di espressione integrina distintivi rispetto ai fibroblastiadulti 32,33. Queste caratteristiche permettono un'adesione efficiente alle superfici di coltura anche in assenza di rivestimenti estracellulari esogeni, come il collagene. Pertanto, per i mioblasti neonatali, le placche rivestite di collagene potrebbero essere sostituite alla plastica standard per colture tissulari non rivestite, anche se ciò potrebbe aumentare il numero di pre-placche necessarie.
- Seconda preplaccatura
- Mioblasti adulti: Utilizzando una pipetta sierologica da 10 mL, trasferire delicatamente le cellule ancora sospese in MPM su una piastra rivestita di collagene preriscaldata a 37 °C. Risciacqua la piastra originale con 1-2 mL di MPM caldo per recuperare eventuali cellule non attaccate. Tieni la piastra in un incubatore a 37 °C eCO2 per 6-8 ore.
NOTA: Il processo deve essere attentamente monitorato tramite microscopia a contrasto di fase per garantire che tutte le cellule non aderenti, rappresentanti l'intero spettro delle cellule miogeniche, vengano raccolte e trasferite su nuove lastre di coltura. - Mioblasti neonatali: Ripeti una seconda preplaccatura su piastre rivestite di collagene per altre 16 ore, risciacquando la piastra originale con 1-2 mL di MPM F10 calda per recuperare eventuali cellule non attaccate rimaste.
NOTA: Le cellule grandi, prevalentemente fibroblasti, rimarranno attaccate alla parte inferiore della piastra rivestita di collagene (Figura 2B e Figura 3).
- Mioblasti adulti: Utilizzando una pipetta sierologica da 10 mL, trasferire delicatamente le cellule ancora sospese in MPM su una piastra rivestita di collagene preriscaldata a 37 °C. Risciacqua la piastra originale con 1-2 mL di MPM caldo per recuperare eventuali cellule non attaccate. Tieni la piastra in un incubatore a 37 °C eCO2 per 6-8 ore.
- Prima preplaccatura
- Celle di placcatura su lastre rivestite di Matrigel
- Prepara una soluzione di Matrigel al 10% diluendo Matrigel con DMEM freddo. Utilizzando una punta del distributore, ricopri uniformemente la superficie del piatto finché non è completamente coperto. Lascia polimerizzare Matrigel a 37 °C per 15 minuti.
NOTA: Il rivestimento matrigel deve essere eseguito su ghiaccio, poiché polimerizza rapidamente a RT. - Trasferire le cellule non aderenti da una piastra rivestita di collagene a una piastra rivestita di Matrigel. Risciacquare la piastra rivestita di collagene con 1-2 mL di MPM calda per recuperare eventuali cellule residue. Tieni la piastra nell'incubatrice diCO-2 a 37 °C per 72 ore.
- Per i mioblasti adulti, confermare che la coltura contiene prevalentemente mioblasti piccoli e arrotondati aderenti dopo 72 ore (Figura 2C). Possono essere presenti anche alcuni grandi fibroblasti di forma triangolare, ma in abbondanza molto bassa. Se un gran numero di fibroblasti è ancora presente dopo la semina su Matrigel, ripetere i passaggi di preplaccatura di 2-6 ore, a seconda dell'abbondanza di fibroblasti.
- Per i mioblasti neonatali, si effettuano ulteriori passataggi combinati con una fase di preplaccatura per rimuovere i fibroblasti e arricchire progressivamente la popolazione di mioblasti dalla coltura eterogenea iniziale.
- Prepara una soluzione di Matrigel al 10% diluendo Matrigel con DMEM freddo. Utilizzando una punta del distributore, ricopri uniformemente la superficie del piatto finché non è completamente coperto. Lascia polimerizzare Matrigel a 37 °C per 15 minuti.
6. Manutenzione ed espansione dei mioblasti
- Mantenere mioblasti purificati in coltura incubandoli in MPM, sostituendo il mezzo a giorni alterni.
NOTA: Evita di permettere alle cellule di superare il 60-70% di confluenza, poiché una densità più alta può scatenare una fusione mioblastica spontanea e avviare la differenziazione. - Se necessario, espandi la coltura dividendo le cellule su più piastre rivestite con Matrigel al 10%.
NOTA: Mioblasti adulti: generalmente si raccomandano 2-3 passataggi, poiché ulteriori passaggi aumentano l'allungamento cellulare e la fusione spontanea. I mioblasti neonatali possono tipicamente subire 5-6 passaggi senza una fusione spontanea significativa.- Per espandere la popolazione di mioblasti, si utilizza una miscela 1:1 di DMEM ad alto contenuto di glucosio e F10 in MPM a partire dal passaggio 3, una volta che la contaminazione da fibroblasti si è notevolmente ridotta. Al passaggio 4, la cultura consiste tipicamente in una popolazione di mioblast quasi pura; Passa alla MPM per i mioblasti neonatali del topo.
7. Differenziazione dei mioblast
- Visualizza le cellule al microscopio. Confermare che le cellule siano relativamente uniformi, piccole, rotonde o a forma fusica, che proliferano attivamente e non sovraffollate. Questo garantisce che la cultura sia pronta per la differenziazione.
- Rivestire la superficie della coltura tissutale appropriata per il disegno sperimentale con Matrigel al 10%, come descritto nella sezione 5.6.1.
NOTA: Sebbene la qualità dell'imaging sia superiore sulle superfici di vetro, le cellule miogeniche hanno mostrato un attacco e una vitalità ridotti nelle camere di vetro, probabilmente dovuti a una minore adesione proteica Matrigel rispetto alle colture tissutaliin plastica 34. - Separare le cellule aggiungendo 2 mL di tripsina-EDTA allo 0,25% e incubare a 37 °C in un incubatore CO₂ per 2-5 minuti.
- Esamina la coltura al microscopio per confermare che tutte le cellule si siano staccate. Una volta completato il distacco, aggiungere 2 mL di mezzo neutralizzante (vedi sezione 3.1).
- Centrifuga la sospensione delle celle a 300 × g a RT per 10 minuti per pelletare le celle.
- Sospendere e seminare i mioblasti primari su piastre di coltura rivestite di Matrigel e incubare a 37 °C in un incubatore CO₂ per 24 ore.
- Il giorno successivo, sostituire il MPM con un mezzo di differenziazione mioblastica (MDM) contenente DMEM ad alto contenuto di glucosio, 5% di HS e 1% di P/S.
NOTA: Per ottenere la formazione di miotubi di alta qualità, assicurarsi che i mioblasti raggiungano l'80-90% di confluenza prima di passare al mezzo di differenziazione. Se la confluenza desiderata non viene raggiunta il giorno successivo, si continua l'incubazione fino a raggiungere la densità ottimale.
8. Immunocolorazione di mioblasti e miotubi
- Lava le cellule 2 volte con 1 MBS per rimuovere il residuo del substrato.
- Fissa le cellule con paraformaldeide (PFA) al 4% in 1x PBS per 15 minuti a RT. Ulteriori passaggi saranno effettuati presso RT se non specificato diversamente.
NOTA: Il PFA è tossico. Maneggiare sempre le soluzioni PFA in una cappa chimica mentre si indossano guanti, camice da laboratorio e protezione per gli occhi. Evita il contatto diretto con la pelle o gli occhi. Smaltire i rifiuti contenenti PFA secondo le normative istituzionali su prodotti chimici e biohazard. - Incubare le cellule fissate con 50 mM cloruro di ammonio (NH₄Cl) per 30 minuti a RT (preferibilmente su uno shaker, 50-100 rpm) per estinguere i gruppi aldeide liberi e ridurre il legame aspecifico durante le fasi successive di colorazione.
- Lava le celle per 3 x 5 minuti a RT con 1x PBS (su uno shaker, 50-100 rpm).
- Eseguire la permeabilizzazione delle cellule con lo 0,2% di Triton X-100 in 1x PBS per 10 minuti (su uno shaker).
- Lava le cellule per 2-3 x 5 minuti con 1 scatto di scatto (su uno shaker).
- Bloccare il legame degli anticorpi aspecifici incubando le cellule in una soluzione bloccante (siero di cavallo al 2% in 1x PBS contenente 0,02% Triton X-100) per 1,5 ore a RT (su shaker, 50-100 rpm).
- Incubare le cellule durante la notte a 4 °C con anticorpi primari diluiti (Pax7 - 1:100; MHC - 1:50) in soluzione bloccante (su uno shaker, 50-100 rpm).
- Lava le celle 3 x 10-15 minuti con 1 PBS contenente 0,02% di Triton X-100 (su uno shaker, 50-100 rpm).
- Incubare le cellule con anticorpi secondari appropriati diluiti 1:250 in soluzione bloccante per 1-1,5 ore a RT (su uno shaker e protetti dalla luce).
- Lava le celle per 3 x 10-15 minuti con 1 PBS contenente 0,02% di Triton X-100 (su uno shaker, 50-100 rpm).
- Montare i campioni utilizzando un mezzo di montaggio appropriato e un copricapo, come specificato dal progetto sperimentale.
- Per la conservazione a lungo termine, mantenere i campioni montati a 4 °C, protetti dalla luce.
Risultati
L'esecuzione con successo di questo protocollo produce colture mioblastiche primarie morfologicamente distinte altamente valide derivate dai muscoli degli arti posteriori sia di topi adulti che neonatali. Combinando la filtrazione sequenziale tramite filtratori cellulari di pori in diminuzione con il selezionamento cellulare attivato magneticamente (MACS), questo protocollo consente l'isolamento di una popolazione di mioblast altamente purificata. Per migliorare ulteriormente la purezza delle celle Pax7+ isolate, è stato incorporato un passaggio ottimizzato di preplaccatura. Dopo questo passaggio (sezione 5 del protocollo), la maggior parte dei fibroblasti e altre cellule non miogeniche rimane aderente (Figura 3) alla superficie iniziale rivestita di collagene, mentre i mioblasti rimangono in sospensione e successivamente si attaccano alle placche rivestite di Matrigel (Figura 2B). Basandosi sull'efficacia precedentemente dimostrata di componenti specifici del mezzo di proliferazione mioblastica (MPM), tra cui un'alta concentrazione sierica, integrazione con bFGF ed estratto di embrione di pollo (CEE), e l'uso del rivestimento Matrigel, questa formulazione, ottimizzata da noi, offre un vantaggio proliferativo distinto per i mioblasti rispetto alle cellule non miogeniche 14,30,31,35. Pertanto, entro 72 ore dalla coltura nella MPM, dovrebbero predominare mioblasti piccoli, rotondi a fusiformi, con un alto rapporto nucleare/citoplasmatico (Figura 2C). Può rimanere una piccola popolazione di grandi cellule appiattite simili a fibroblasti, tipicamente meno del 3% della coltura.
La resa cellulare dopo 72 ore dall'isolamento con questo protocollo dipende dall'età degli animali donatori. Per mioblasti isolati da un topo adulto utilizzando quattro muscoli posteriori (gastrocnemio, soleo, tibiale anteriore ed estensore lungo della dita) da entrambe le zampe, la resa tipica è di circa 2-4 × 10⁶ cellule per animale. Oltre il 97% delle cellule isolate da topi adulti (**p < 0,01) e neonatali (***p < 0,0001) erano progenitori miogenici, come indicato dall'espressione di Pax7+ (Figura 4A,B), confermando l'elevato arricchimento dei progenitori miogenici. Questa valutazione della purezza basata su Pax7 è stata effettuata dopo il completamento del flusso di lavoro completo di arricchimento, inclusi il preplaccaggio seguito da MACS e/o espansione e non sulle prime frazioni preplate aderenti.
I mioblasti neonatali hanno raggiunto un'elevata purezza con o senza MACS (Figura 4A,B), rendendo questo protocollo adatto a laboratori con diversi livelli di supporto tecnico. Tuttavia, quando il MACS viene omesso, sono necessari ulteriori passaggi di preplaccatura per raggiungere una purezza comparabile.
Per i mioblasti adulti, non è stato effettuato un confronto statistico diretto tra popolazioni classificate in MACS e non selezionate. Tuttavia, data una minore capacità proliferativa e un maggiore impegno verso la differenziazione, si prevede che il MACS aumenti l'arricchimento rispetto al solo preplateaggio.
Passando al mezzo di differenziazione (MDM) dopo aver raggiunto l'80-90% di confluenza, i mioblasti si fondono efficacemente formando miotubi allungati e multinucleati entro 48-72 ore. Questi miotubi sono facilmente visualizzabili tramite microscopia a contrasto di fase (Figura 2D) e possono essere ulteriormente confermati tramite immunocolorazione per la catena pesante di miosina (MHC) (Figura 5A,B). La presenza di strutture sarcomeriche organizzate in miotubi differenziati (Figura 5B) indica una maturazione strutturale coerente con la differenziazione miogenica in queste condizioni di coltura.
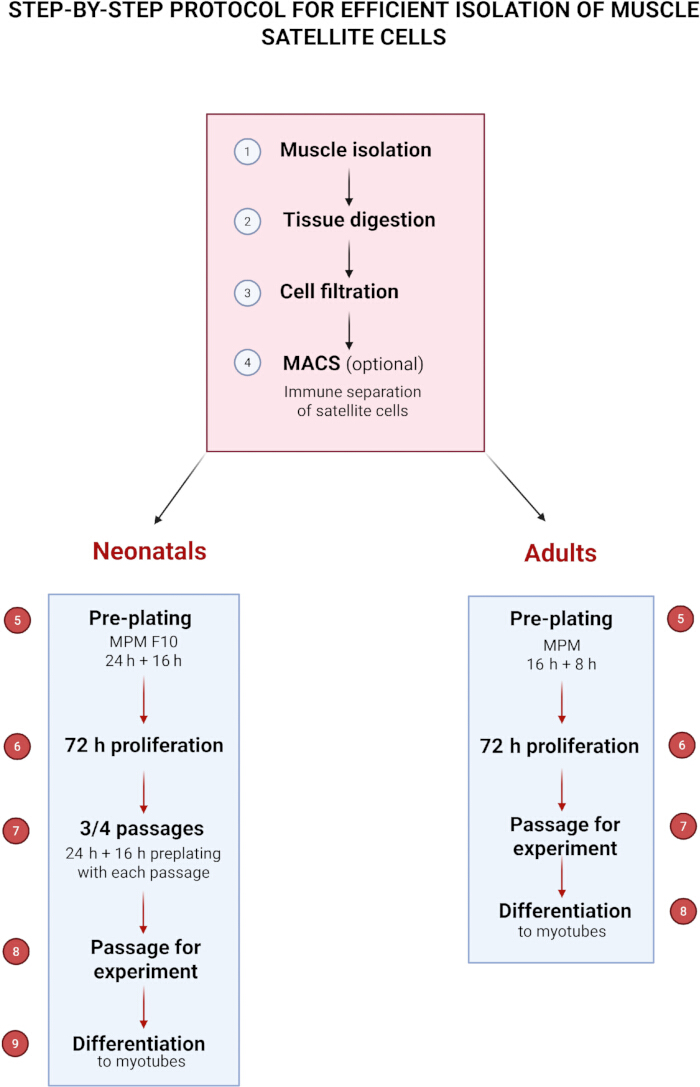
Figura 1: Protocollo passo dopo passo per l'isolamento efficiente delle cellule satellitari muscolari. Clicca qui per visualizzare una versione più grande di questa figura.
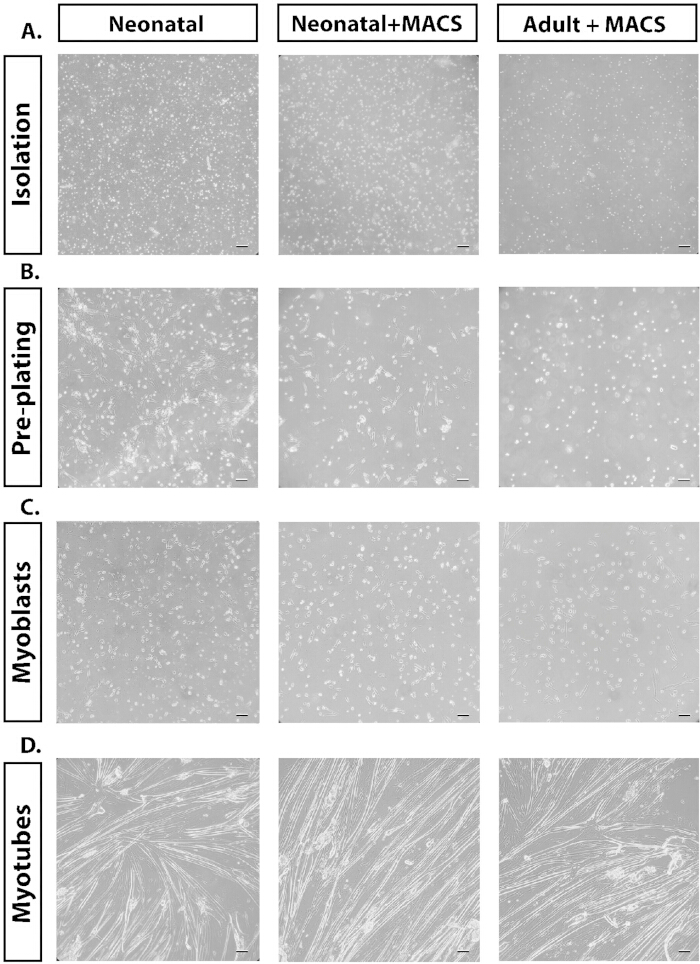
Figura 2: Immagini rappresentative della microscopia a contrasto di fase delle diverse metodologie discusse nel testo. (A) Immagini a contrasto di fase (20x) dell'isolamento delle cellule dopo la digestione. (B) Contrasto di fase (20x) della preplaccatura delle colture con fibroblasti attaccati, insieme a mioblasti non attaccati. (C) Contrasto di fase (20x) dei mioblasti proliferanti una volta attaccati. (D) Contrasto di fase (20x) dei miotubi differenziati. Barra della scala = 50 μm. Clicca qui per visualizzare una versione più grande di questa figura.
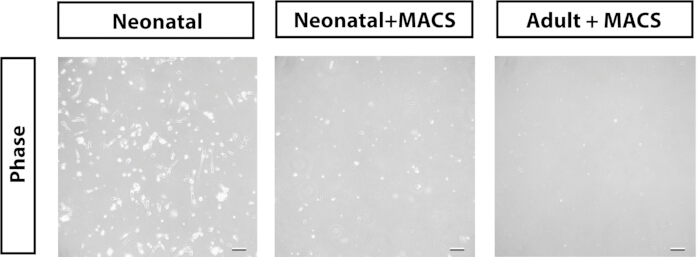
Figura 3: Immagini rappresentative a microscopia a contrasto di fase (20×) delle cellule ancora attaccate dopo il primo passaggio di preplaccatura. Barra della scala = 50 μm. Clicca qui per visualizzare una versione più grande di questa figura.
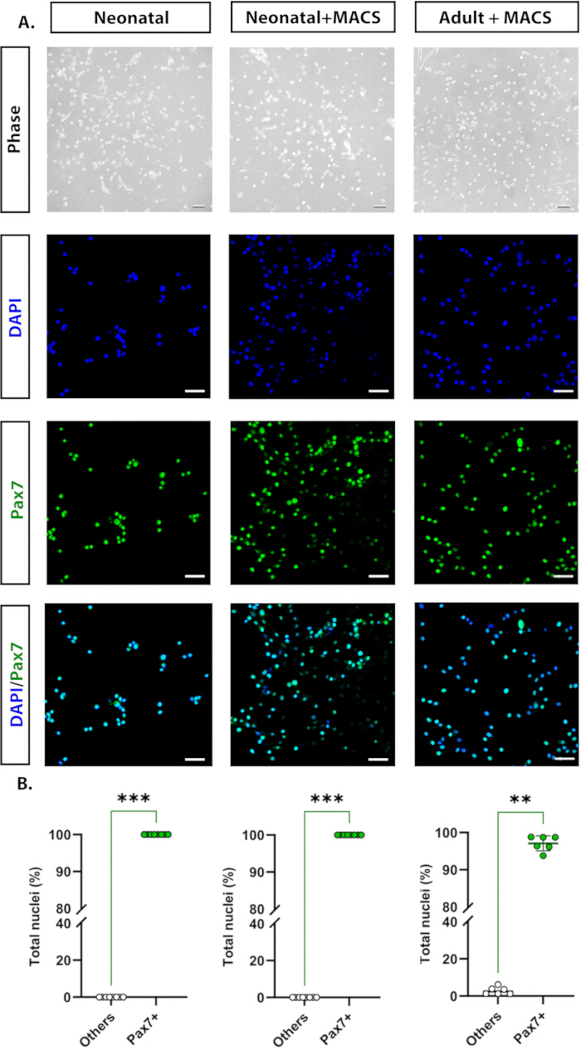
Figura 4: Immagini rappresentative scattate al microscopio a contrasto di fase (20x) e immunocitochimica (40x). (A) Pax7+ (verde) e nuclei colorati con DAPI (azzurro chiaro), e la loro colocalizzazione nei canali fusi. (B) Analisi della purezza della coltura mioblastica, quantificando la percentuale di celle Pax7+ normalizzate a nuclei per campo acquisito (un campo per pozzo, in almeno sei pozzi). L'immunocolorazione è stata ripetuta almeno tre volte, con due o tre repliche tecniche per esperimento. **p < 0,01, ***p < 0,0001 (La significatività statistica è stata analizzata utilizzando il test U di Mann-Whitney). Barra della scala = 50 μm. Clicca qui per visualizzare una versione più grande di questa figura.
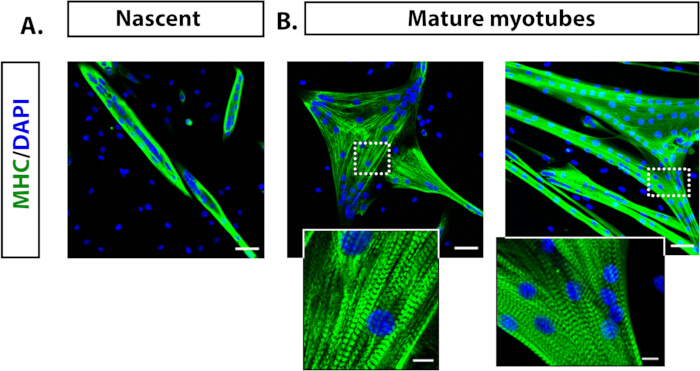
Figura 5: Immagini rappresentative di immunofluorescenza che mostrano miotubi differenziati dai mioblasti di topo adulti. (A) Miotubi nascenti (3 giorni in coltura) rimasti a 20x di MHC (verde) e nuclei colorati con DAPI (azzurro chiaro). (B) Miotubi maturi (6 giorni in coltura) fotografiati a 20x e dettagli della struttura del modello sarcomerico definiti dalla colorazione miosina. L'immunocolorazione è stata ripetuta almeno tre volte, con due o tre repliche tecniche per esperimento. Barra della scala = 50 μm; Barra di scala ingrandita = 10 μm. Clicca qui per visualizzare una versione ingrandita di questa figura.
Discussione
Le cellule satellitari (SC) costituiscono la principale popolazione miogenica staminale e progenitrice responsabile della crescita, riparazione e rigenerazione dei muscolischeletrici 36,37. La loro capacità di rientrare nel ciclo cellulare e differenziarsi in miofibre mature le rende indispensabili per lo studio della biologia muscolare scheletrica. Quando isolati e coltivati in condizioni in vitro definite, gli SC proliferano come mioblasti che possono essere indotti a differenziarsi e fondersi in miotubi multinucleati, riproducendo aspetti chiave della miogenesi osservati in vivo.
Il nostro metodo consente il recupero di popolazioni cellulari altamente vitali e omogenee regolando attentamente parametri chiave, tra cui la concentrazione enzimatica, la durata della digestione e le condizioni di coltura, appositamente adattato ai tessuti neonatali. La combinazione di dissociazione enzimatica e meccanica, seguita da filtrazione a più fasi e selezione opzionale delle cellule attivate magneticamente (MACS) insieme alla preplaccatura, garantisce un'elevata resa e purezza cellulare. È importante sottolineare che questo protocollo consente la generazione di colture che tipicamente erigiscono il 97% dei progenitori miogenici Pax7+ , rendendole adatte per saggi di differenziazione a valle e studi molecolari.
La tecnica di preplacatura si basa sulle diverse proprietà di adesione dei fibroblasti e degli SC 16,38,39. Questo passaggio è particolarmente cruciale per determinare la purezza della coltura, e piccole deviazioni nel tempismo o nel lavaggio possono portare a contaminazione da fibroblasti o a una riduzione del recupero dei mioblasti. L'inclusione di una fase di preplaccatura con tempi precisi è particolarmente vantaggiosa, poiché separa efficacemente le cellule miogeniche dai fibroblasti e da altre popolazioni non miogeniche. Questo approccio può essere impiegato in assenza di apparecchiature di separazione magnetica o come misura aggiuntiva per aumentare ulteriormente la purezza delle colture mioblastiche. Nel nostro protocollo, abbiamo ottimizzato questo passaggio utilizzando piastre rivestite di collagene e un periodo di preplacatura con precisione temporizzata, che separa efficacemente le cellule miogeniche dai fibroblasti e da altre popolazioni non miogeniche.
Un altro progresso metodologico dell'attuale protocollo è l'uso di un mezzo di proliferazione mioblastica (MPM) definito ottimizzato sia per cellule adulte che neonatali. La combinazione di alta concentrazione sierica, estratto di embrione di pollo (CEE) e fattore di crescita dei fibroblasti basici (bFGF) supporta una proliferazione e il mantenimento sostenuti di un fenotipo indifferenziato. La CEE, in particolare, contribuisce con fattori che favoriscono la crescita che migliorano la vitalità dei mioblasti e ritardano la fusione spontanea, mentre la bFGF mantiene l'identità degli SC attraverso l'attivazione delle vie di segnalazionecanoniche 29,31. L'uso di superfici rivestite di Matrigel migliora ulteriormente l'adesione cellulare e l'efficienza della proliferazione, contribuendo all'elevata vitalità e omogeneità morfologica osservate entro 72 ore dall'isolamento.
Al passaggio al mezzo di differenziazione, i mioblasti purificati si fondono facilmente in miotubi multinucleati e contrattili che esprimono la catena pesante di miosina (MHC), dimostrando un potenziale miogenico preservato e una maturazione strutturale. Le colture risultanti sono altamente adatte per studi sulla rigenerazione dei muscoli scheletrici, la segnalazione cellulare, la regolazione trascrizionale e la modellazione delle malattie. La confluenza è un fattore critico, poiché colture con confluenza molto bassa non progrediranno, mentre una confluenza eccessivamente alta indurrà fusione e differenziazione mioblasti. I mioblasti non devono essere mantenuti nello stesso piatto di coltura per più di 5 giorni, indipendentemente dalla confluenza, poiché un'incubazione prolungata può favorire la differenziazione.
Nonostante questi vantaggi, alcuni passaggi rimangono sensibili ai guasti. La digestione enzimatica deve essere calibrata con attenzione per bilanciare la dissociazione tissutale con la vitalità cellulare. Il tempismo della preplaccatura, la densità cellulare prima della differenziazione e la gestione delicata durante la dissociazione influenzano fortemente la ressa, la purezza e il potenziale di fusione. Problemi comuni come contaminazione persistente da fibroblasti, basso rendimento, differenziazione prematura, scarso attacco o formazione di miotubi deboli possono spesso essere affrontati con piccoli aggiustamenti nella preplaccatura, nell'integrazione del medium o nella tecnica di placcatura.
Risoluzione dei problemi e considerazioni pratiche:
La purezza dell'isolamento e la digestione enzimatica richiedono un'attenta attenzione, poiché variazioni nel tipo di enzima, concentrazione, tempo di incubazione o tritura dei tessuti possono influenzare fortemente sia la resa cellulare che quella della coltura. La sottodigestione può lasciare il tessuto parzialmente intatto, riducendo il rilascio di SC e ostruendo il colino nella fase successiva, mentre la digestione eccessiva può apparire visivamente simile a un biofilm e comprometterne la vitalità cellulare. Un'ottimizzazione attenta è quindi essenziale per ottenere risultati riproducibili.
La filtrazione e l'uso di filtri sono anch'essi fondamentali, poiché una filtrazione incompleta o inefficiente può lasciare detriti tissutali o aggregati nella sospensione cellulare, che possono interferire con l'attacco cellulare e ridurre la purezza della coltura. L'uso di filtri di dimensioni adeguate, il passaggio delicato della sospensione e la pre-bagnatura dei filtri può migliorare la rimozione dei detriti minimizzando allo sforzo meccanico sulle celle. Se frammenti di tessuto più grandi ostruiscono il filtro, dovrebbe essere sostituito con un nuovo colino invece di forzare la sospensione, poiché le cellule possono rimanere intrappolate sulla superficie del filtro, causando una diminuzione della ressa. Ripetere la filtrazione con un filtro nuovo quando necessario può migliorare ulteriormente il recupero di mioblasti vitali.
Una differenziazione prematura o fallita può verificarsi quando le colture diventano eccessivamente dense, poiché ciò può scatenare differenziazione spontanea o fusione prematura, compromettendo così il tempismo sperimentale. Monitorare la densità cellulare e regolare la densità di semina o il volume medio prima della differenziazione è quindi fondamentale. In caso di confluenza eccessiva, la spaccatura parziale o la risemina delicata possono aiutare a mantenere la proliferazione senza indurre la formazione involontaria di miotubi. Al contrario, se la confluenza desiderata non viene raggiunta prima dell'inizio della differenziazione, l'incubazione dovrebbe essere proseguita fino a raggiungere la densità ottimale per garantire una differenziazione efficace. Mantenere i mioblasti oltre il periodo raccomandato (>5 giorni) aumenta il rischio di differenziazione spontanea e riduce la capacità proliferativa, indipendentemente dalla confluenza iniziale. Una valutazione regolare della morfologia cellulare, l'aderenza ai tempi di coltura e i cambiamenti tempestivi del mezzo sono essenziali per preservare sia la vitalità che il potenziale di differenziazione.
La contaminazione persistente da fibroblasti può essere ridotta al minimo attraverso un trattamento meticoloso dei tessuti, inclusa un'attenta rimozione del tessuto connettivo e adiposo durante la dissezione muscolare. L'ottimizzazione della fase di preplaccatura è particolarmente importante, poiché i fibroblasti che aderiscono rapidamente si attaccano alle superfici non rivestite mentre gli SC rimangono in sospensione. L'uso di piastre di coltura rivestite di collagene in combinazione con un mezzo di proliferazione dei mioblasti definito integrato con bFGF favorisce l'espansione selettiva dei mioblasti limitando la crescita dei fibroblasti. Ulteriori purificazioni possono essere ottenute attraverso strategie di selezione negativa come la MACS per esaurire le popolazioni di fibroblasti. Un monitoraggio microscopico regolare è essenziale per rilevare precocemente la crescita eccessiva di fibroblasti e consentire un intervento tempestivo.
In sintesi, questo protocollo promuove la riproducibilità e l'efficienza dell'isolamento dei mioblasti primari integrando purificazione sequenziale, condizioni di coltura ottimizzate e opzioni di purificazione adattabili. È importante sottolineare che fornisce in modo affidabile cellule Pax7+ altamente arrichite, che possono essere ulteriormente utilizzate per studi controllati sulla biologia degli SCs, l'impegno miogenico e la dinamica della differenziazione.
A differenza dei protocolli ottimizzati per un'espansione seriale prolungata, che possono modificare il comportamento cellulare e ridurre il potenziale miogenico e la capacità di fusione, il nostro metodo è intenzionalmente progettato per preservare cellule con un'identità miogenica robusta e un'elevata competenza in fusione. Questo focus è vantaggioso per applicazioni che richiedono rilevanza fisiologica, differenziazione miogenica efficiente e la conservazione delle caratteristiche definitorie degli SC, in particolare in esperimenti incentrati sullo studio della differenziazione e rigenerazione miogenica.
Dichiarazioni
Gli autori non hanno conflitti di interesse da dichiarare.
Ringraziamenti
L'imaging confocale è stato eseguito presso il Laboratorio di Imaging della Struttura e Funzione Tissutale, che funge da struttura centrale di imaging presso l'Istituto Nencki di Biologia Sperimentale ed è parte dell'infrastruttura del Nodo Polacco Euro-BioImaging.
Questo lavoro è stato sostenuto dal National Science Center, Polonia (borsa Sonata 2022/47/D/NZ3/02737 a Lilya Lehka e borsa Sonata bis 2020/38/E/NZ4/00314 a Grzegorz Sumara), e fondi statutari del Ministero della Scienza e dell'Istruzione Superiore all'Istituto Nencki. Questo lavoro è stato supportato dal progetto finanziato dal Ministro dell'Istruzione e della Scienza basato sul contratto n. 2022/WK/05 (Nodo Polacco Euro-BioImaging "Advanced Light Microscopy Node Poland").
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 0,25% tripsina-EDTA | Gibco | 25200-056 | |
| 100 & micro; Filtro delle cellule M | VWR | 732-2759 | |
| 30 & micro; m scolador | Miltenyi Biotec | 130-041-407 | |
| 40 & micro; Filtro delle cellule M | VWR | 732-2757 | |
| 70 & micro; Filtro delle cellule M | VWR | 130-095-823 | |
| Acido acetico | POCH | 568760114 | Sciolto in dH2O fino a una concentrazione finale di 20 mM e sterilizzato con un 0,2 & micro; Filtro M |
| Alexa Fluor 488, anti-coniglio | Invitrogen | A21206 | Disciolto in soluzione bloccante (vedi Sezione 8.7) a una diluizione 1:250 |
| Alexa Fluor 488, anti-topo per capre & nbsp; | Abcam | ab150113 | Disciolto in soluzione bloccante (vedi Sezione 8.7) a una diluizione 1:250 |
| Cloruro di ammonio (NH4Cl) | BioShop | AMC303.500 | Sciogliere in acqua fino a una concentrazione finale di 50 mM |
| Supporti di montaggio antifade | Vectashield | H-2000-10 | |
| Anticorpo anti-PAX7 | Abcam | ab187339 | Disciolto in soluzione bloccante (vedi Sezione 8.7) a diluizione 1:100 |
| Fattore di crescita di base dei fibroblasti | Corning | 354060 | Disciolto in dH2O sterile fino a una concentrazione di stock di 10 e micro; g/mL |
| Betadina, 100 mg/mL | EGIS Pharmaceuticals | ||
| Piastra di coltura cellulare, 6 pozzi, Cell+ | SARSTEDT | 83.3902.300 | |
| Estratto di embrione di pollo & nbsp; | MP Biomedici | 2850145 | |
| Collagene I, coda di ratto | Gibco | A10483-01 | Disciolto in 20 mM di acido acetico |
| Collagenasi, tipo I | Sigma | C0130-500MG | Disciolto in DMEM e sterilizzato tramite 0.2 & micro; Filtro M |
| Tubo di dissociazione (Tubi C GentleMACS) | Miltenyi Biotec | 130-093-237 | |
| Dulbecco's Modified Eagle Medium, glucosio alto | Gibco | 31966-021 | |
| EDTA | Invitrogen | AM9260G | |
| Tubi centrifughe conici Falcon, 15 mL | Corning | 352096 | |
| Tubi centrifughe conici Falcon, 50 mL | Corning | 352070 | |
| Siero bovino fetale | Gibco | 10082147 | |
| Siero per cavalli | Gibco | 26050088 | |
| Reagente di marcatura magnetica (Kit di isolamento per celle satellitari) | Miltenyi Biotec | 130-104-268 | |
| Separatore magnetico (Separatore MidiMACS) | Miltenyi Biotec | 130-042-302 | |
| Matrigel | Corning | CLS356234 | Disciolto in DMEM fino al 10% di concentrazione |
| Paraformaldeide, 4% in PBS | Thermo Fisher Scientific | J61899. AK | |
| Penicillina-Streptomicina | Gibco | 15140122 | |
| Soluzione salina tamponata con fosfato & nbsp; | VWR | 392-0334 | |
| Colonna di separazione (Colonne LS) | Miltenyi Biotec | 130-042-401 | |
| Anticorpo della Miosina del Muscolo Scheletrico, MHC | Santa Cruz | SC-32732 | Disciolto in soluzione bloccante (vedi Sezione 8.7) a una diluizione 1:50 |
| Antro TC, 100 x 20 mm | SARSTEDT | 83.3902 | |
| Dissociatore tissutale (Dissociatore GentleMACS) | Miltenyi Biotec | 130-093-235 | |
| Triton X-100 | Sigma-Aldrich | X100-1L |
Riferimenti
- Yeh, C. -J., Sattler, K. M., Lepper, C. Molecular regulation of satellite cells via intercellular signaling. Gene. 858, 147172(2023).
- Gonzalez, M. L., Busse, N. I., Waits, C. M., Johnson, S. E. Satellite cells and their regulation in livestock. J Anim Sci. 98 (5), skaa081(2020).
- Mauro, A. Satellite cell of skeletal muscle fibers. J Biophys Biochem Cytol. 9 (2), 493-495 (1961).
- Yin, H., Price, F., Rudnicki, M. A. Satellite cells and the muscle stem cell niche. Physiol Rev. 93, 23-67 (2013).
- Kahn, R. E., Dayanidhi, S., Lacham-Kaplan, O., Hawley, J. A. Molecular clocks, satellite cells, and skeletal muscle regeneration. Am J Physiol Cell Physiol. 324 (1), C1332-C1340 (2023).
- Abreu, P., Mendes, S. V. D., Ceccatto, V. M., Hirabara, S. M. Satellite cell activation induced by aerobic muscle adaptation in response to endurance exercise. Life Sci. 170, 33-40 (2017).
- Dueweke, J. J., Awan, T. M., Mendias, C. L. Regeneration of skeletal muscle after eccentric injury. J Sport Rehabil. 26 (2), 171-179 (2017).
- Michele, D. E. Mechanisms of skeletal muscle repair and regeneration in health and disease. FEBS J. 289 (21), 6460-6462 (2022).
- Domingues-Faria, C., Vasson, M. -P., Goncalves-Mendes, N., Boirie, Y., Walrand, S. Skeletal muscle regeneration and impact of aging and nutrition. Ageing Res Rev. 26, 22-36 (2016).
- Tierney, M. T., Sacco, A. Satellite cell heterogeneity in skeletal muscle homeostasis. Trends Cell Biol. 26 (6), 434-444 (2016).
- Troy, A., et al. Coordination of satellite cell activation and self-renewal by Par-complex-dependent asymmetric activation of p38α/β MAPK. Cell Stem Cell. 11 (4), 541-553 (2012).
- Dumont, N. A., Wang, Y. X., Rudnicki, M. A. Intrinsic and extrinsic mechanisms regulating satellite cell function. Development. 142 (9), 1572-1581 (2015).
- Danoviz, M. E., Yablonka-Reuveni, Z. Skeletal muscle satellite cells: background and methods for isolation and analysis. Myogenesis. DiMario, J. X. 798, Humana Press. 21-52 (2012).
- Gharaibeh, B., et al. Isolation of a slowly adhering cell fraction containing stem cells from murine skeletal muscle by the preplate technique. Nat Protoc. 3 (9), 1501-1509 (2008).
- Benedetti, A., et al. A novel approach for the isolation and long-term expansion of pure satellite cells based on ice-cold treatment. Skelet Muscle. 11 (1), 7(2021).
- Yoshioka, K., et al. A modified preplating method for high-yield and high-purity muscle stem cell isolation. Front Cell Dev Biol. 8, 793(2020).
- Uezumi, A., Fukada, S., Yamamoto, N., Takeda, S., Tsuchida, K. Mesenchymal progenitors distinct from satellite cells contribute to ectopic fat formation. Nat Cell Biol. 12 (2), 143-152 (2010).
- Christov, C., et al. Muscle satellite cells and endothelial cells: close neighbors and privileged partners. Mol Biol Cell. 18 (4), 1397-1409 (2007).
- Elizalde, G., Munoz, A. Z., Almada, A. E. Protocol for the isolation of mouse muscle stem cells using fluorescence-activated cell sorting. STAR Protoc. 4 (4), 102656(2023).
- Pasut, A., Oleynik, P., Rudnicki, M. A. Isolation of muscle stem cells by fluorescence-activated cell sorting. Myogenesis. DiMario, X. 798, Humana Press. 53-64 (2012).
- Lee, J. D., Sinha, B. C., Larkin, L. M., Vandenburgh, H. H. Isolation and purification of satellite cells for skeletal muscle tissue engineering. J Regen Med. 3 (2), (2015).
- Llufrio, E. M., Wang, L., Naser, F. J., Patti, G. J. Sorting cells alters their redox state and cellular metabolome. Redox Biol. 16, 381-387 (2018).
- Cusmano, A. A., et al. Efficient isolation and ex vivo differentiation of murine satellite cells. Stem Cell. Turksen, K. 2939, Springer. 37-54 (2025).
- Park, Y. G., Moon, J. H., Kim, J. A. Comparative study of magnetic-activated cell sorting and preplating for myoblast purification. Yonsei Med J. 47 (2), 179-186 (2006).
- Park, Y. G., Baek, A., Kim, S. Myoblast purifying by magnetic-activated cell sorting. Methods Cell Biol. 112, Elsevier. 439-447 (2012).
- Lee, H., Han, N. R., Kim, S. J., Yun, J. I., Lee, S. T. Development of a high-yield isolation protocol for active muscle satellite cells. Int J Stem Cells. 15 (3), 283-290 (2022).
- Cui, Y., et al. An easy and practical method for isolation, culture and identification of mouse skeletal muscle satellite cells. Int J Clin Exp Med. 9, 19424-19431 (2016).
- Ding, S., et al. Characterization and isolation of highly purified porcine satellite cells. Cell Death Discov. 3, 17003(2017).
- Pawlikowski, B., Vogler, T. O., Gadek, K., Olwin, B. B. Regulation of skeletal muscle stem cells by fibroblast growth factors. Dev Dyn. 246 (5), 359-367 (2017).
- Shahini, A., et al. Efficient and high-yield isolation of myoblasts from skeletal muscle. Stem Cell Res. 30, 122-129 (2018).
- Lee, D. H., Kwak, K. B., Park, Y. C., Chung, C. H., Ha, D. B. Purification and characterization of myoblast fusion inhibitor. Mol Cells. 1, 177-182 (1991).
- Moulin, V., et al. Fetal and adult human skin fibroblasts display intrinsic differences in contractile capacity. J Cell Physiol. 188 (2), 211-222 (2001).
- Wilson, C. G., et al. Age-dependent expression of collagen receptors in rat cardiac fibroblasts. Microsc Microanal. 17 (4), 555-562 (2011).
- Kohen, N. T., Little, L. E., Healy, K. E. Characterization of Matrigel interfaces during defined hESC culture. Biointerphases. 4 (4), 69-79 (2009).
- Wang, Z., et al. In vitro culture system supporting robust expansion of myogenic progenitors. BioRes Open Access. 3 (3), 79-87 (2014).
- Péault, B., et al. Stem and progenitor cells in skeletal muscle development and therapy. Mol Ther. 15 (5), 867-877 (2007).
- Le Grand, F., Rudnicki, M. A. Skeletal muscle satellite cells and adult myogenesis. Curr Opin Cell Biol. 19 (6), 628-633 (2007).
- Rando, T. A., Blau, H. M. Primary mouse myoblast purification and transplantation. J Cell Biol. 125 (6), 1275-1287 (1994).
- Hindi, L., McMillan, J., Afroze, D., Hindi, S., Kumar, A. Isolation, culturing, and differentiation of primary myoblasts. Bio Protoc. 7 (9), (2017).
Ristampe e permessi
