Questo protocollo presenta un metodo dettagliato per isolare sospensioni monocellulari di alta qualità sia da tessuto polmonare murino sano che da quello con tumori. Questo protocollo può essere applicato a scRNA-seq, analisi della citometria a flusso e isolamento cellulare primario.
Articolo metodologico
Preparazione ottimizzata del tessuto polmonare intero portante di tumori murini per la citometria di flusso e il sequenziamento dell'RNA a singola cellula
In questo articolo
Sommario
Abstract
Il NSCLC rappresenta circa l'85% dei tumori ai polmoni, e il sarcoma del ratto di Kirsten (KRAS) è il gene più comunemente mutato nel NSCLC. Sebbene la gestione del NSCLC sia migliorata notevolmente negli ultimi anni, la sua eterogeneità e plasticità rimangono incompletamente comprese. Il sequenziamento dell'RNA a singola cellula (scRNA-seq) è diventato uno strumento essenziale per dissezionare l'eterogeneità cellulare nei tessuti complessi come il polmone. Tuttavia, generare sospensioni monocellulari di alta qualità da tessuto polmonare contenente tumori è una sfida, soprattutto durante la formazione del tumore quando il tessuto diventa fibrotico ed eterogeneo. Un requisito chiave per un successo con scRNA-seq è la preparazione di singole cellule vitali con stress o danni indotti dal processamento minimo. Qui viene presentato un protocollo dettagliato passo dopo passo per l'isolamento di sospensioni monocellulari di alta qualità sia da tessuto polmonare topino sano che con tumore in un KrasG12D; Modello topo giornalista di tdTomate. La procedura include perfusione tissutale, digestione enzimatica controllata, dissociazione meccanica delicata, lisi dei globuli rossi, filtrazione e valutazione della vitalità, e raggiunge l'>85% delle cellule vitali prima della scRNA-seq. Infine, le cellule tumorali di tdTomato+ vengono isolate in modo efficiente da FACS e possono essere rilevate come cluster distinti tramite scRNA-seq utilizzando questo protocollo.
Introduzione
Il cancro ai polmoni è una delle principali cause di decessi correlate al cancro in tutto il mondo. Può essere classificato in due principali sottotipi: cancro ai polmoni a piccole cellule (SCLC) e cancro ai polmoni non a piccole cellule (NSCLC)1. Il NSCLC rappresenta circa l'85% di tutti i casi di cancro ai polmoni, con l'adenocarcinoma come sottotipoistologico 2 più comune. Sebbene le strategie terapeutiche per il NSCLC siano migliorate notevolmente negli ultimi decenni, il tasso di mortalità per il cancro ai polmoni rimaneelevato 3. La chemioterapia e l'immunoterapia sono le due principali modalità di trattamento utilizzate nella pratica clinica; tuttavia, molti pazienti sperimentano resistenza ai farmaci o non rispondonoall'immunoterapia 4,5.
Il microambiente tumorale (TME) svolge un ruolo fondamentale nell'iniziazione, nella progressione e nella resistenza terapeuticadel tumore 6. Evidenze crescenti suggeriscono che la composizione del TME cambia dinamicamente neltempo 7,8. Le cellule immunitarie antitumorali sono tipicamente arricchite nella TME durante le prime fasi della tumorigenesi, mentre le popolazioni immunosoppressive e associate al cancro diventano predominanti con lo sviluppo deltumore. Pertanto, comprendere l'eterogeneità e la plasticità della TME durante la progressione del cancro polmonare è essenziale per chiarire i meccanismi della malattia e migliorare gli esiti terapeutici.
Il sequenziamento dell'RNA a singola cellula (scRNA-seq) consente una profilazione ad alta risoluzione dell'espressione genica a livello cellulare individuale, consentendo la caratterizzazione completa dei trascritti tessuticomplessi 10. Questa tecnica è diventata indispensabile per studiare l'eterogeneità cellulare e identificare i meccanismi alla base della progressione tumorale e della resistenza ai farmaci nel cancroai polmoni 11. La preparazione di una sospensione monocellulare di alta qualità è un componente critico per il successo dello scRNA-seq, poiché lo stress cellulare o i danni durante la dissociazione possono portare a risultatiimprecisi 12,13.
Questo protocollo consente il sequenziamento dell'RNA da tutte le singole cellule purificate da polmoni interi con tumori, indipendentemente dalla dimensione cellulare e senza scartare alcuna sottopopolazione cellulare viva. Molti studi precedenti hanno riportato il sequenziamento a singola cellula dei polmoni contenenti tumori, che si concentrava sulle cellule tumorali e sulle cellule CD45+ scartate 14,15,16 oppure sulle cellule immunitarie o su altri tipi cellulari specifici 17 e cellule tumorali scartate. Questo protocollo mira a dissociare efficacemente tutti i tipi cellulari dal tessuto polmonare intero murino contenente tumori, garantendo al contempo il rilascio delle cellule maligne e preservando la vitalità delle cellule normali. Includendo tutte le singole cellule vive, questo protocollo consente lo studio di tutti i tipi cellulari rilevanti all'interno del microambiente polmonare portatore di tumori, comprese le cellule simili ai macrofagi associate al cancro (CAMLs)18. Sono inclusi passaggi opzionali di selezione cellulare attivata dalla fluorescenza (FACS) per il controllo della qualità e l'arricchimento di specifiche popolazioni cellulari. Ulteriori indicazioni sono fornite per la colorazione degli anticorpi, la marcatura di 4',6-diamidino-2-fenilindolo (DAPI) e le procedure di fissazione a breve termine quando la selezione immediata non è fattibile.
Un possibile limite di questo protocollo è che è stato ottimizzato e convalidato per tessuti polmonari contenenti tumori in fase iniziale e con un carico tumorale inferiore al 40%. Per i polmoni contenenti tumori di grado superiore o in cui il carico tumorale supera il 50%, l'efficienza della dissociazione può essere compromessa dalla presenza di componenti stromali densi e da fibrosiestesa, che potrebbe bloccare il rilascio completo delle cellule maligne.
Protocollo
Tutti gli esperimenti relativi agli animali sono stati condotti in conformità con le linee guida di Scripps Research per la cura e l'uso degli animali e approvati dal Comitato per la Cura e l'Uso degli Animali di Scripps Research secondo il protocollo #10-0019. Il KrasLSL-G12D/+; I topi TdTomato+/- sono stati generati incrociando topi KrasLSL-G12D/+ con topi reporter TdTomato. KrasLSL-G12D/+ di nove o dieci settimane; I topi TdTomato+/- sono stati utilizzati come modelli per il cancro ai polmoni. Sono infettati intratrachealmente con lentivirus che esprime Cre recombinase, con un titolo virale di 5 × 10⁵ unità formative di placca per topo. I tessuti polmonari con tumori sono stati prelevati dopo 25 settimane. I potenziali problemi digestivi e la risoluzione dei problemi sono elencati nella Tabella Supplementare 1. I reagenti e le attrezzature utilizzate sono elencati nella Tabella dei Materiali.
1. Preparazione dei cuscinetti
- Mezzo DMEM/F12: Preparare FBS inattivato al 2% (v/v) in mezzo DMEM/F12.
- Tampone di lavaggio cellulare: Prepara FBS inattivato al 2% (v/v) in PBS privo di Ca+/Mg+ (pH 7,4).
- Tampone per perfusione: PBS pre-raffreddato senza Ca+/Mg+ (pH 7,4).
- Soluzioni enzimatiche stock: sciogliere 10 mg (1600 U/mg) di collagenasi IV in 1 mL di DMEM/F12 per ottenere una soluzione stock di collagenasi IV da 16000 U/mL; Sciogliere 42 mg (1,19 U/mg) di Dispase II in 1 mL di mezzo DMEM/F12 per ottenere una soluzione stock di Dispase II a 50 U/mL; Sciogliere 5 mg di DNase I in 1 mL di DMEM/F12 per ottenere una soluzione di DNase I da 5 mg/mL.
- Mezzo digestionale: Mescolare 250 μL di collagenasi IV, 200 μL di Dispase II e 100 μL di soluzioni stock di DNasi I in 5 mL di mezzo DMEM/F12 per ottenere una concentrazione finale di 800 U/mL di collagenasi IV, 2 U/mL Dispasi II e 0,1 mg/mL di DNasi I.
- Buffer di risospensione: Miscelare 1 μL di 0,5 M EDTA (10 μM), 1 mL di FBS inattivato al calore (2% v/v) in 50 mL PBS libero di Ca+/Mg+ (pH 7,4).
- Soluzione stock BSA: Sciogliere 0,5 g di BSA in 100 mL PBS libero di Ca+/Mg+ per ottenere una soluzione stock BSA allo 0,5% (w/v).
- Buffer FACS: Mescolare 2,5 mL di 1 M HEPES, 200 μL di 0,5 M EDTA in una soluzione stock BSA da 100 mL per ottenere una concentrazione finale di 25 mM HEPES e 1 mM EDTA.
2. Raccolta di tessuto polmonare murino
NOTA: Tutti gli strumenti chirurgici vengono disinfettati con il 70% di etanolo tra i campioni. I campioni vengono conservati sul ghiaccio tra ogni fase e tutta la plastica è certificata priva di DNasi/RNasi.
- Eutanasia il topo in una camera diCO2 (seguendo protocolli approvati dall'istituzione). Metti il mouse sulla schiena su un tappetino disseczionale e fissa i piedi. Spruzza generosamente con etanolo al 70%.
- Esegui un'incisione mediana larga 2–3 cm attraverso la pelle e i muscoli della parte bassa dell'addome. Apri con attenzione il torace ed evita di tagliare i polmoni o il cuore.
- Attacca un ago multifly sicuro da 21 G a una siringa da 50 mL e aspira un tampone di perfusione da 30 mL.
- Inserisci l'ago nel ventricolo sinistro e fai una piccola incisione nell'atrio destro usando una forbice affilata e dritta.
- Perfondi il21 per tutto il corpo con un buffer di perfusione da 15 mL.
NOTA: Lo sbiancamento del fegato indica che la perfusione del corpo intero è stata completata. - Rimuovere i polmoni dal torace e tagliare il tessuto in eccesso attaccato aipolmoni 22. Inserire i polmoni in 10 mL PBS pre-raffreddati senza Ca+/Mg+ per lavare via il sangue in eccesso.
- Trasferire i polmoni in un tubo da 1,5 mL contenente 500 μL di DMEM/F12 gelido.
3. Preparazione della sospensione polmonare a singola cella
- Taglia il tessuto polmonare in piccoli pezzi (1–2 mm3) con una forbice dritta extra stretta per 2–3 minuti.
- Trasferire il tessuto polmonare tritato in una ciotola da 6 cm contenente un mezzo digeritivo di 5 mL.
- Posiziona una piastra da 6 cm su uno shaker termostatico a 50 giri al minuto per 25 minuti a 37 °C. Mescola la sospensione con una pipetta da 1 mL ogni 8 minuti.
- Metti un colino a rete da 100 μm in una piastra da 10 cm. Pre-bagna il colino con 1 mL di DMEM/F12 medium.
- Trasferisci la sospensione digerita nel colino. Spingi il tessuto attraverso il colino con l'estremità in gomma di uno sturalavandini sterile.
- Posizionare un colino a rete da 70 μm su un tubo centrifugo da 50 mL. Pre-bagna il colino con 1 mL di DMEM/F12 medium.
- Filtra la sospensione a celle attraverso un colino e risciacqua il colino con 5 mL di DMEM/F12 medium.
- Centrifuga la sospensione a celle filtrate a 400 g per 10 minuti a 4 °C e rimuovere con cura il surnadante. Risospendere il pellet cellulare in 1 mL di tampone di lisi dei globuli rossi per 2 minuti a temperatura ambiente.
- Aggiungi un tampone di lavaggio delle celle da 14 mL e centrifuga a 400 g per 10 minuti a 4 °C.
NOTA: Se il pellet è ancora rosso dopo il lavaggio, ripeti i passaggi 8 e 9. - Scartare il sovrantantante e risospendere le celle in un buffer di risospensione da 20 mL.
- Miscelare 10 μL di sospensione a singola con un volume uguale di blu di tripano e aggiungere 10 μL della miscela al vetrino della camera di conteggio cellulare. Controlla la vitalità della cella viva, il numero della cella e lo stato della singola cella usando un contatore di cella.
4. Analisi della citometria a flusso
- Risospendere le cellule in un buffer FACS gelido e trasferire 100 μL di sospensione cellulare in tubi da 1,5 mL contenenti 1 μL di anticorpo Fc block (1:100). Incubare i campioni per 15 minuti sul ghiaccio.
- Centrifuga campiona a 500 g per 5 minuti e scarta il soprantantante. Risospendere le cellule in 200 μL di anticorpo CD326-APC (1:100) e incubare per 45 minuti al buio a 4 °C.
- Centrifuga campiona a 500 g per 5 minuti e scarta il soprantantante. Sospendere le celle in 500 μL di buffer FACS contenente colorazione DAPI (1:5000).
- Trasferire tutti i campioni nei tubi FACS e proteggerli dalla luce.
- Analizza i campioni utilizzando il citometro a flusso. Furono utilizzati i seguenti fluorofori: DAPI-V450, Tdtomato-YG585, CD326-APC. La strategia di gating è mostrata nella Figura 1.
Risultati
Un'elevata vitalità della cella è stata raggiunta con la sospensione a cella singola preparata utilizzando questo protocollo ottimizzato. Le modifiche che hanno migliorato la vitalità cellulare nei polmoni tumorali includevano l'ottimizzazione della concentrazione degli enzimi (Tabella Supplementare 2), la scuotimento e la miscelazione dei campioni durante l'incubazione a 37 °C. Inoltre, l'uso di un ulteriore filtro a rete da 40 μm nel passaggio 6 è stato eliminato per ridurre lo stress di taglio meccanico che aumenta la probabilità di danni cellulari; includere il filtro aggiuntivo può ridurre la formazione di multipletti. In media, la vitalità cellulare ha superato l'85%, rispetto a meno dell'80% prima dell'ottimizzazione (Tabella 1). Le variazioni nella concentrazione cellulare sono state attribuite principalmente a differenze nella dimensione dei polmoni e nel mezzo di sospensione utilizzato tra le repliche.
In questo modello murino di adenocarcinoma polmonare guidatoda Kras G12D, sono presenti noduli tumorali e i carichi tumorali variano tra il 10% e il 40% venticinque settimane dopo l'inizio deltumore 23. Due sospensioni monocellulari a polmone interi sono state sottoposte a scRNA-seq sulla piattaforma 10x Genomics. La valutazione della qualità Cell Ranger ha identificato rispettivamente 23.488 e 21.436 cellule stimate nei due campioni (Tabella 2). Il diagramma a codice a barre ha indicato una contaminazione minima da RNA ambientale, probabilmente a riflettere l'elevata vitalità cellulare (Figura 2A,B).
L'analisi delle componenti principali (PCA) e l'approssimazione e proiezione uniforme della varietà (UMAP) hanno rivelato cluster ben definiti, con tutti i principali tipi di cellule polmonari rappresentati (Figura 3A). I dot plot dei geni marker rappresentativi hanno confermato che i biomarcatori canonici erano fortemente espressi nei loro corrispondenti tipi cellulari (Figura 3B). Inoltre, le cellule TdTomato+ sono state arricchite in cluster epiteliali, mentre le cellule TdTomato+/EpCAM+ sono state isolate con successo da FACS (Figura 1).
In sintesi, questo protocollo ottimizzato consente la dissociazione efficiente del tessuto polmonare murino contenente tumori, garantendo un'elevata vitalità cellulare, una bassa contaminazione da RNA e una rappresentazione cellulare completa.
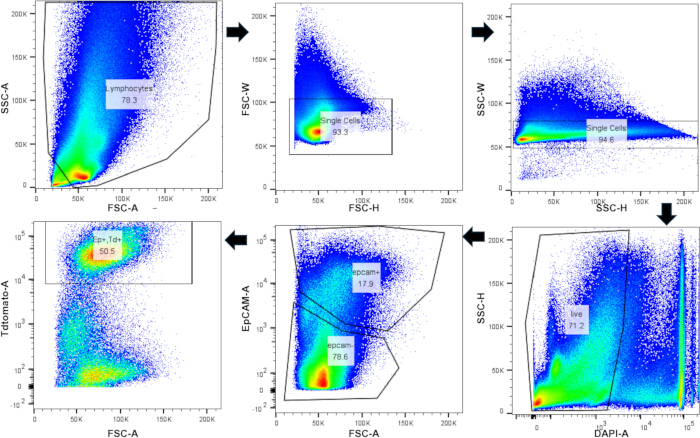
Figura 1: Isolamento delle cellule TdTomato+/CD326 (EpCAM+) tramite citometria a flusso. Strategia di gating della citometria a flusso per la sospensione monocellulare del polmone murino. Clicca qui per visualizzare una versione più grande di questa figura.
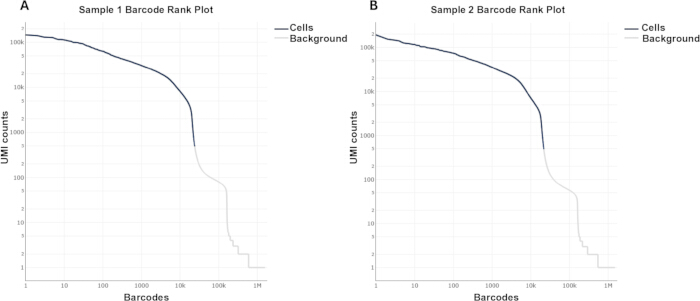
Figura 2: Grafico di rango del codice a barre ScRNA-seq dei polmoni murini con tumori. KrasLSL-G12D/+; I polmoni del topo TdTomato+/- sono stati raccolti 25 settimane dopo l'infezione con lentivirus-Cre. (A,B) Polmone portante di tumori Grafico di grado del codice a barre dall'analisi Cellranger Clicca qui per visualizzare una versione più grande di questa figura.
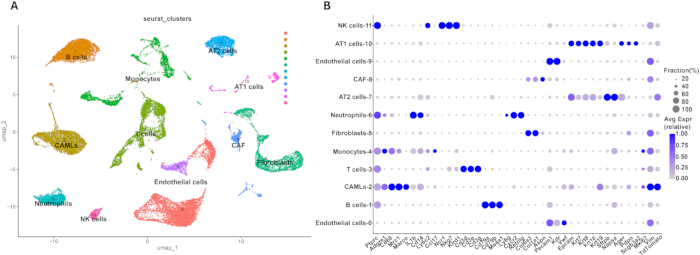
Figura 3: Analisi trascrivomica a singola cellula dei polmoni murini portanti tumori. (A) Proiezione UMAP dei dataset di polmoni interi contenenti tumori. (B) Dot plot dei geni classici usati per le annotazioni di cluster. Clicca qui per visualizzare una versione più grande di questa figura.
| Prima dell'ottimizzazione | Dopo l'ottimizzazione | |||
| Ripeti 1 | Ripeti 2 | Ripeti 1 | Ripeti 2 | |
| Numero totale delle celle | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| Cellule vive | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| Percentuale di cellule vive | 76% | 77% | 83% | 89% |
Tabella 1: Vitalità delle cellule in sospensione monocellulare dei polmoni portatori di tumori prima e dopo l'ottimizzazione. La concentrazione cellulare e la percentuale di cellule vive sono determinate prima e dopo l'utilizzo di questo protocollo.
| Esempio 1 | Esempio 2 | |
| Numero stimato di celle | 23,488 | 21,436 |
| Letture medie per cella | 18,354 | 20,542 |
| Geni mediani per cellula | 2,565 | 2,513 |
| Totali Geni Rilevati | 30,893 | 30,556 |
| Conteggi mediani di UMI per cellula | 6,864 | 6,583 |
| Codici a barre validi | 95.90% | 95.80% |
| Saturazione del sequenziamento | 26.10% | 28.20% |
| Letture di frazioni nelle celle | 94.10% | 95.40% |
Tabella 2: Analisi del controllo qualità ScRNA-seq da parte di Cell Ranger. Le stime chiave dei dati a singola cella ottenute da Cell Ranger
Tabella supplementare 1: Soluzioni di risoluzione dei problemi. Vengono suggerite soluzioni per affrontare i problemi che possono verificarsi durante il processo di digestione. Clicca qui per scaricare questo file.
Tabella supplementare 2: Componenti dei cocktail enzimici pre-ottimizzazione e post-ottimizzazione. Le concentrazioni finali del cocktail enzimatico utilizzate prima e dopo l'ottimizzazione. Clicca qui per scaricare questo file.
Discussione
Questo protocollo fornisce una procedura dettagliata passo dopo passo per preparare sospensioni monocellulari di alta qualità da tessuto polmonare murino. Sono necessari diversi passaggi critici per ottenere risultati ottimali.
Prima della digestione enzimatica, deve essere eseguita una perfusione di tutto il corpo per rimuovere il sangue dai polmoni. Questo garantisce che le cellule immunitarie rilevate da scRNA-seq abbiano origine dal tessuto polmonare piuttosto che dal sangue circolante. Durante la perfusione, è essenziale inserire l'ago nel ventricolo sinistro per impedire che la perfusione entri nella circolazione polmonare e danneggi le cellule polmonari. Per preservare la vitalità cellulare, tutti i tamponi, inclusi i lavaggi, la risospensione e le soluzioni di perfusione, dovrebbero essere pre-raffreddati su ghiaccio. Data l'eterogeneità intrinseca del tessutopolmonare 24, i campioni devono essere mantenuti nel mezzo DMEM/F12 prima e durante la digestione, poiché questo mezzo fornisce nutrienti essenziali che sostengono la vitalità cellulare.
L'elevata vitalità cellulare e i cluster cellulari ben definiti osservati in questo protocollo confermano che la combinazione enzimatica è sia lieve che efficace. Gli ioni calcio e magnesio sono noti per favorire l'aggregazione cellulare e aumentare l'attivitàenzimatica 25,26. Pertanto, il PBS libero di Ca+/Mg+ viene utilizzato per preparare la maggior parte dei buffer al minimo gli aggregamenti, mentre il DMEM/F12 contenente questi ioni viene utilizzato come mezzo basale per il buffer di digestione al fine di mantenere un'efficienza enzimatica equilibrata.
Sebbene studi precedenti abbiano descritto polmoni murini dissocianti o tessuti tumorali, spesso mostrano una variabilità significativa o una descrizione incompleta della selezione e concentrazione dellaproteasi 11,15,27. Ad esempio, Han et al.11 hanno utilizzato cocktail enzimatici senza riportare la concentrazione, il che rende difficile la replicazione. Al contrario, un metodo altamente specializzato descritto da Chen et al.28 è efficace per la dissociazione delle cellule alveolari di tipo II (AT2) ma comporta un flusso di lavoro complesso, poco pratico se è necessario raccogliere più topi contemporaneamente.
Una sfida critica nella ricerca in oncologia polmonare è l'eterogeneità strutturale del polmone portatore di tumori, che è composto sia da cellule normali fragili che da cellule tumorali maligne. I protocolli standard o i kit commerciali sono spesso progettati per campioni di tessuto normale o tumorali specificamente. Esse portano a una digestione incompleta, che non riesce a liberare cellule tumorali dal nucleo tumorale, o a una sovradigestione, inducendo uno stress significativo e una morte cellulare nel tessuto normale più sensibile nei campioni di polmoni tumorali.
Questo protocollo affronta questo problema affinando il cocktail enzimatico (Collagenasi IV, Dispasi II e DNasi I) per ottenere una dissociazione equilibrata. Questa ottimizzazione garantisce il rilascio delle cellule maligne preservando la vitalità delle cellule normali. Ciò è supportato dall'analisi della citometria a flusso, durante la quale abbiamo identificato e risolto con successo due cellule epiteliali distinte. Le cellule epiteliali sono ben separate in cellule TdTomato+ o TdTomato-. Questo livello di risoluzione dimostra che questo metodo è adatto a studiare l'intero microambiente polmonare contenente tumori senza sacrificare l'integrità del tessuto ospite. Includendo tutte le singole cellule vive nell'analisi, questo protocollo consente lo studio di tutti i tipi cellulari rilevanti all'interno del microambiente polmonare portatore di tumori, incluse le cellule macrofagiche associate al cancro (CAML) (Figura 3), che non erano state ampiamente riportate negli studiprecedenti 15,16,17.
Dopo la digestione, le analisi scRNA-seq hanno dimostrato che questa procedura isola con successo diversi tipi cellulari. Le soluzioni enzimatiche devono essere preparate fresche il giorno dell'esperimento. Tutti i parametri digertivi sono ottimizzati per un singolo polmone muro intero. Quando si utilizza un solo lobo o più polmoni, il tempo di digestione deve essere regolato per garantire un'elevata vitalità cellulare e una completa dissociazione tissutale. La contaminazione da RNA ambiente e la formazione di multipletti sono due fattori principali che influenzano la qualitàscRNA-seq 29. Sebbene i kit di rimozione delle cellule morte vengano spesso utilizzati per aumentare la vitalità, questo protocollo produce costantemente oltre l'80% delle cellule vive dopo la digestione, rendendo questo passaggio opzionale. Il grafico di rango del codice a barre ha confermato una contaminazione minima da RNA ambientale anche senza la rimozione delle cellule morte.
L'attuale studio conferma questa metodologia nel contesto dell'intero polmone murino portante di tumori. Questa digestione enzimatica ottimizzata fornisce un modello per studiare vari altri tessuti tumorali caratterizzati da microambienti simili. Inoltre, l'elevata vitalità cellulare e la conservazione di tutti i tipi cellulari ottenute da questo protocollo lo rendono adatto a tecnologie avanzate di sequenziamento, come CITE-seq per la mappatura delle proteine superficiali e ATAC-seq per la profilazione epigenetica.
Sebbene questo protocollo produca sospensioni monocellulari di alta qualità a basso costo, lo stress cellulare indotto dal processo può comunque verificarsi durante la digestione enzimatica. Per minimizzare gli artefatti di espressione genica legati allo stress, un singolo operatore dovrebbe processare non più di quattro campioni contemporaneamente.
Dichiarazioni
Gli autori dichiarano di non avere interessi in competizione.
Ringraziamenti
Questo lavoro è stato sostenuto dal National Institute of Health, dal National Eye Institute (NEI), USA, con sovvenzioni 5R01EY026202, R01EY035333; le sovvenzioni del National Institute of Dental and Craniofacial Research (NIDCR) R01DE031044, 2R01DE014756, e le sovvenzioni del National Cancer Institute (NCI) R01CA271500 e 2R01CA211187.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| DMEM/F12 | Thermo Fisher | 11320033 | Coltura cellulare |
| Collagenasi di tipo IV | Sigma Aldich | C5138 | Enzimi digestivi |
| Dispase II | Sigma Aldich | D4693 | Enzimi digestivi |
| DNasi I | Roche | 11284931001 | Rimuovere il DNA |
| Filtro Falcon 70 Cell | Falcon | 352350 | Rimuovere il tessuto non digerito |
| Forbici sterile | FST | 14088-10 | Tessuti tagliati |
| Buffer di lisi dei globuli rossi | Sigma Aldich | R7757 | Rimuovere le cellule del sangue |
| FBS inattivato al calore | Phoenix Scientific | PS100 | Proteggere le cellule |
| PBS gratuito Ca+/Mg+ | Thermo Fisher | 10010023 | Enzimi dissolti/Cellule di lavaggio |
| Ago: safety-multifly 21G | Sarstedt | 3051524 | Perfusione corporea intera |
| 50 mL di siringa | BD | 300866 | Perfusione corporea intera |
| Antro da 6 cm | Corning | 430116 | Tessuti digestivi |
| Piastra da 10 cm | Corning | 430167 | Tessuti digestivi |
| Anticorpi del blocco Fc | BD | 553141; RRID:AB_394655 | Citometria a flusso |
| DAPI | BD | 564907; RRID:AB_2869624 | Citometria a flusso |
| CD326 | BD | 563478; RRID:AB_2738234 | Citometria a flusso |
| HIVmPGKCre VSVG | UI Viral Vectore Core | VVC-U dell'Iowa-7556 | Lentiviro |
| Citometro di flusso ZE5 (Yeti) | Bio-Rad | Analisi della citometria a flusso | |
| Mouse KrasLSL-G12D/+ | Laboratorio Jackson | 008179; RRID:IMSR_JAX:008179 | |
| Topo reporter di TdTomato | Laboratorio Jackson | 007909; RRID:IMSR_JAX:007909 |
Riferimenti
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
Ristampe e permessi
