SNRNP70 mostra potenziale come marcatore diagnostico per l'osteoartrite (OA), con un'espressione costantemente più bassa nei tessuti OA rispetto ai controlli. Può anche esercitare effetti antinfiammatori, suggerendo una via terapeutica. Futuri studi meccanicistici potrebbero aiutare a far progredire la gestione dell'OA.
Articolo di ricerca
SNRNP70 è associata a firme focali legate alle aderenze e all'infiammazione dei condrociti nell'osteoartrite
* These authors contributed equally
In questo articolo
Sommario
Abstract
L'osteoartrite (OA) è una malattia degenerativa articolare caratterizzata da progressiva decomposizione della cartilagine e infiammazione sinoviale, eppure i principali fattori molecolari della sua patogenesi rimangono incompletamente compresi. Qui, è stato condotto l'esame per verificare se SNRNP70—un componente fondamentale del complesso snRNP U1 essenziale per lo splicing pre-mRNA—contribuisca alla progressione dell'OA. L'analisi di dieci insiedi di dati trascritomici pubblici ha mostrato che SNRNP70 era costantemente sottoregolata nella cartilagine dell'OA rispetto ai controlli normali. Una meta-analisi ha inoltre indicato una buona accuratezza diagnostica per l'OA, con un AUC aggregato di 0,92. Nei condrociti primari di ratto stimolati con interleucina-1β (IL-1β), l'espressione SNRNP70 era soppressa in condizioni infiammatorie. L'espressione forzata di SNRNP70 non solo ha ridotto la produzione di mediatori pro-infiammatori (IL-6 e MMP-13), ma ha anche ripristinato componenti chiave della matrice extracellulare (ECM) (ACAN e COL2A1) e promosso la migrazione dei condrociti e la guarigione delle ferite. La correlazione di Pearson, seguita dall'arricchimento KEGG, ha indicato che la segnalazione di adesione focale era un percorso associato alla regolazione SNRNP70 . Gli esperimenti di salvataggio hanno supportato l'idea che SNRNP70 aumenti la capacità riparativa dei condrociti, almeno in parte, attivando questa via. Insieme, questi risultati suggeriscono che SNRNP70 possa fungere da regolatore precedentemente non riconosciuto della funzione infiammatoria dei condrociti e dell'omeostasi della cartilagine. Sollevano inoltre la possibilità di un legame meccanicistico tra l'attività degli spliciosomi e la sintesi della matrice mediata dall'adesione focale, che giustifica ulteriori valutazioni della SNRNP70 come candidato marcatore diagnostico o bersaglio terapeutico nell'OA.
Introduzione
L'osteoartrite (OA) rappresenta una malattia articolare diffusa che colpisce prevalentemente persone di età pari o superiore a 65 anni, colpendo circa il 7% della popolazionemondiale 1,2. Sorprendentemente, tra il 1990 e il 2019, la prevalenza mondiale dell'OA è aumentata di un impressionante 113,25%, passando da 247,51 milioni di casi a 527,81milioni 3. L'OA è principalmente caratterizzata dalla progressione insidiosa di cambiamenti degenerativi nei tessuti articolari, caratterizzati in modo prominente da degradazione della cartilagine e infiammazionesinoviale 4,5,6. In particolare, il sovraccarico meccanico e l'inesorabile scorrere del tempo sono stati stabiliti come i due fattori di rischio più evidenti che contribuiscono alla suapatogenesi 7,8. Inoltre, un numero crescente di studi sottolinea il ruolo fondamentale svolto dalla degenerazione meniscala come elemento integrante nella patologia complessadell'OA 9. Indagini precedenti hanno dimostrato in modo convincente che le lesioni meniscale colpiscono dal 68% al 90% dei pazienti conOA 10,11.
A livello molecolare, un crescente corpo di prove indica che l'OA non è solo una conseguenza dello stress biomeccanico e dell'invecchiamento, ma anche una malattia guidata da complesse alterazioni nella regolazione genica e nel controllopost-trascrizionale 12,13,14. Tra questi meccanismi, lo sliceosoma ha attirato un'attenzione crescente in vari contesti di malattia. Curiosamente, sebbene sia stato oggetto di ricerche estese sulla patogenesi dell'infiammazione, il ruolo dello sliceosoma nell'OA è rimasto notevolmente pocostudiato 15,16,17. In sostanza, lo sliceosoma può essere concettualizzato come un ribozima metallico diretto dalleproteine 18,19. Tra questi meccanismi, lo splicing dell'RNA è emerso come un determinante critico del fenotipo dei condrociti e dell'omeostasi ECM. Lo splicing preciso garantisce la corretta espressione delle proteine strutturali e di segnalazione essenziali per l'integrità della cartilagine, mentre lo splicing aberrante può interrompere il ricambio dell'ECM, promuovere vie cataboliche e accelerare la degenerazionedella cartilagine 20,21,22.
Studi recenti hanno evidenziato le proteine sliceosomiche come regolatori chiave dell'omeostasi dei tessuti articolari, tuttavia il ruolo di queste proteine nella patogenesi dell'OA rimane in gran parteinesplorato 23. In particolare, SNRNP70, un componente centrale del complesso ribonucleoproteico nucleare piccolo U1, governa il riconoscimento dei siti di giunzione 5′ durante il pre-processamento del mRNA e quindi influenza l'inclusione o l'esclusione di esonispecifici 24,25. La disregolazione della SNRNP70 è stata implicata in varie condizioni patologiche, ma il suo contributo alla degenerazione della cartilagine non era stato precedentemente caratterizzato. Un potenziale obiettivo della regolazione mediata dagli spliciosami è la chinasi di adesione focale (FAK), una molecola centrale di segnalazione che integra segnali meccanici e biochimici per controllare l'adesione ai condrociti, la dinamica del citoscheletro, la sopravvivenza e la meccantrasduzione26. L'aumento dell'attività FAK è stato collegato a un aumento della segnalazione di adesione focale, che a sua volta favorisce la sintesi ECM e la regolazione all'alto di proteine chiave specifiche della cartilagine, inclusi l'aggrecan (ACAN) e il collagene tipo II alfa 1 (COL2A1)27,28. Queste proteine sono indispensabili per mantenere la struttura e la funzione della cartilagine, e la loro riduzione è un segno distintivo della progressione dell'OA.
Nonostante i progressi nella ricerca trascrizionale ed epigenetica sull'OA, il ruolo della regolazione FAK mediata dagli spieosomi nel controllo della segnalazione focale dell'adesione e del metabolismo ECM rimane poco definito. Sulla base di queste osservazioni, si è ipotizzato che SNRNP70 potesse influenzare il comportamento dei condrociti e l'omeostasi ECM modulando la splicing alternativa FAK e, a valle, la segnalazione di adesione focale. Per testare questa idea, la prima domanda fu se l'espressione SNRNP70 sia alterata nell'OA; È stato valutato il suo potenziale come marcatore diagnostico e sono stati esplorati i possibili collegamenti con risposte infiammatorie e vie focali legate all'adesione nei condrociti.
Protocollo
Il protocollo per lo studio sugli animali è stato approvato dal Comitato Etico dell'Università Medica del Guangxi e dal Primo Ospedale Affiliato dell'Università Medica del Guangxi (codice protocollo 202109001, NO.2022-KY-E-252).
ATTENZIONE: Tutte le procedure devono seguire le linee guida istituzionali e nazionali sulla cura degli animali. Il personale addestrato deve indossare DPI (guanti, maschere, camice da laboratorio) durante la maneggiatura di animali o campioni. Gli interventi richiedono un'adeguata anestesia e monitoraggio post-operatorio. Segnala tempestivamente eventi avversi (sanguinamento, infezione, cambiamenti comportamentali). Smaltire correttamente carcasse e materiali contaminati. Effettuare ispezioni regolari delle strutture per garantire la conformità. I dettagli commerciali degli animali, reagenti e attrezzature utilizzati in questo studio sono elencati nella Tabella dei Materiali.
Pazienti e dataset sull'espressione genica
Per indagare i modelli di espressione delle SNRNP70 nell'OA, dataset di RNA-sequencing (RNA-seq) e microarray disponibili pubblicamente sono stati recuperati sistematicamente dal database Gene Expression Omnibus (GEO) (https://www.ncbi.nlm.nih.gov/geo/)21. La strategia di ricerca incorporava le seguenti parole chiave: "SNRNP70 OR RPU1 O Snp1 O U1AP O U170K O U1RNP O RNPU1Z O SNRP70 O U1-70K" combinato con "OA." I criteri di inclusione sono stati definiti come segue: (i) dataset derivati da campioni umani; (ii) studi specifici focalizzati sull'artrosi, escludendo l'artrite reumatoide e altre malattie infiammatorie delle articolazioni; (iii) la disponibilità di almeno tre repliche biologiche indipendenti sia nei gruppi OA che in quelli di controllo normale (NC), permettendo così il calcolo delle differenze medie standardizzate (SMD). Flusso di lavoro di elaborazione dei dati: Dopo aver identificato i dataset idonei, sono stati scaricati i dati grezzi sull'espressione e i relativi metadati clinici. Per i dataset di microarray, i dati a livello di sonda venivano normalizzati utilizzando l'algoritmo robust multi-array average (RMA), e le sonde venivano annotate ai simboli genici ufficiali utilizzando i file di annotazione della piattaforma. Per i dataset RNA-seq, i conteggi grezzi sono stati convertiti in valori di trascrizioni per milione (TPM), poi trasformati in log2 per garantire la comparabilità tra i dataset. Quando più sonde erano mappate sullo stesso gene, la sonda con la maggiore varianza di espressione tra i campioni veniva mantenuta. Controllo qualità e armonizzazione: Per minimizzare gli effetti batch tra diversi studi, è stata applicata la funzione ComBat del package "sva" R. L'analisi dei componenti principali (PCA) è stata eseguita sia prima che dopo la correzione per valutare l'efficacia della rimozione dell'effetto batch. I dataset che mostravano scarsa qualità, annotazioni incomplete o che non distinguevano tra gruppi OA e NC sono stati esclusi da ulteriori analisi.
Identificazione di SNRNP70 differenzialmente espresse nell'OA e nei tessuti cartilaginei normali
Per valutare l'espressione differenziale della SNRNP70 tra OA e tessuti cartilaginosi normali (NC), è stato utilizzato un approccio analitico a più fasi. Innanzitutto, i dati di espressione per SNRNP70 sono stati estratti dai dataset disponibili. Confronti statistici tra gruppi OA e NC sono stati effettuati utilizzando il test t di Student per determinare se i livelli medi di espressione differissero significativamente. Per valutare ulteriormente la potenza discriminatoria della SNRNP70, sono state generate curve di caratteristica operativa del ricevitore (ROC) utilizzando GraphPad Prism 8.0 e la piattaforma Sangerbox (http://vip.sangerbox.com/). L'area sotto la curva (AUC) è stata calcolata per quantificare l'efficienza diagnostica dei livelli di espressione SNRNP70 .
Successivamente, è stata condotta una meta-analisi utilizzando Stata 14.0 per integrare i risultati tra più dataset. L'eterogeneità statistica è stata valutata utilizzando il test Q di Cochran e la statistica I2 . Quando l'eterogeneità era bassa (p > 0,01 e I2 < 50%), veniva applicato un modello a effetti fissi; altrimenti, è stato adottato un modello a effetti casuali. La differenza media standardizzata (SMD) con il corrispondente intervallo di confidenza (IC) del 95% è stata calcolata per quantificare l'espressione differenziale SNRNP70 tra tessuti OA e NC. Per accuratezza diagnostica, è stata eseguita una meta-analisi diagnostica utilizzando il modulo Midas in Stata. Questa analisi ha stimato la sensibilità aggregata, la specificità, il rapporto di verosimiglianza positiva (PLR), il rapporto di verosimiglianza negativa (NLR) e il rapporto di probabilità diagnostica (DOR) per SNRNP70. Inoltre, è stata costruita una curva di funzione del ricevitore sommario (sROC) per fornire una valutazione complessiva delle prestazioni diagnostiche. Infine, sono state effettuate analisi di sensibilità escludendo sequencialmente singoli dataset per valutare la robustezza e la stabilità dei risultati aggregati. Il potenziale bias di pubblicazione è stato valutato utilizzando il test di asimmetria del diagramma imbuto di Deeks. Utilizzando questo quadro analitico integrato, i modelli di espressione e il potenziale diagnostico della SNRNP70 nei tessuti OA rispetto a quelli NC sono stati valutati sistematicamente.
Isolamento e coltura cellulare
I condrociti primari sono stati isolati dalla cartilagine articolare dei ratti di Sprague–Dawley postnatali del secondo giorno. Per ogni isolamento, sono stati utilizzati in totale sei ratti neonatali. Poiché gli animali sono stati raccolti in una fase postnatale precoce, il sesso non è stato determinato. Per ogni preparazione cellulare indipendente, i tessuti cartilaginei di tutti e sei i ratti venivano prelevati e messi in pool prima della coltura. Ogni preparazione isolata indipendentemente da condrociti—derivata da un gruppo separato di animali—veniva trattata come una replica biologica. Le repliche tecniche, inclusi pozzi ripetuti o reazioni qRT-PCR ripetute dalla stessa preparazione cellulare, non sono state considerate repliche biologiche indipendenti.
In breve, i ratti neonati venivano soppressi in condizioni sterili e le articolazioni del ginocchio venivano dissezionate per esporre la cartilagine articolare. Il tessuto cartilagineo veniva accuratamente separato dall'osso sottocondrale usando forbici microchirurgiche, tritato in frammenti di circa 1 mm³ e poi digerito in sequenza con enzimi. I frammenti di tessuto sono stati prima incubati con tripsina–EDTA allo 0,25% per 30 minuti a 37 °C per rimuovere il tessuto connettivo residuo. Dopo il lavaggio con soluzione salina tamponata con fosfato, i frammenti rimanenti sono stati digeriti con collagenasi tipo II allo 0,2% in DMEM senza siero per 4–6 ore a 37 °C con una leggera agitazione. La sospensione cellulare risultante è stata filtrata attraverso un colino cellulare da 70 μm, centrifugata a 300 × g per 5 minuti e risospesa in DMEM completo integrato con siero bovino fetale al 10%, 100 U/mL di penicillina e 100 μg/mL di estreptomicina. Le cellule sono state seminate in fiaschette di coltura e mantenute a 37 °C in un incubatore umidificato con il 5% di CO₂. Il mezzo veniva cambiato ogni 2–3 giorni. Solo i condrociti di passaggio 1 o 2 sono stati utilizzati per gli esperimenti successivi per minimizzare la dedifferenziazione.
L'identità e la purezza dei condrociti furono confermate prima dell'uso sperimentale. Morfologicamente, le cellule primarie mostravano un aspetto tipico di condrociti poligonali o simili a ciottoli sotto microscopia a contrasto di fase. A livello molecolare, l'identità dei condrociti è stata verificata dall'espressione di marcatori associati alla cartilagine, tra cui COL2A1 e ACAN, utilizzando un Western blot. Per il modello infiammatorio in vitro , i condrociti primari sono stati stimolati con interleucina-1β (IL-1β) ricombinante di ratto a 10 ng/mL per 48 ore. Le cellule non trattate coltivate in condizioni identiche fungevano da gruppo di controllo normale. Per SNRNP70 esperimenti di sovraespressione, i condrociti di preparazioni biologiche indipendenti sono stati trasfettati separatamente e ogni replica biologica è stata processata indipendentemente durante la trasfezione, la stimolazione di IL-1β, l'estrazione di RNA/proteine e l'analisi statistica.
PCR quantitativa in tempo reale (qRT-PCR)
L'RNA totale è stato isolato da colture di condrociti subconfluenti (~80% di confluenza) utilizzando il kit RNAfast200. La purezza dell'RNA è stata valutata su un NanoDrop 2000, accettando solo campioni con un rapporto A260/280 di 1,8–2,0, e l'integrità è stata confermata dall'elettroforesi in gel dell'agarosio all'1%. Il cDNA di primo filamento è stato trascritto inversamente da 1 μg di RNA totale utilizzando il kit qPCR RT in una reazione da 20 μL contenente primer casuali e dNTP. Il profilo termico per la trascrizione inversa è stato di 42 °C per 30 minuti, seguito da 95 °C per 5 minuti. La qPCR è stata eseguita con un premix a base di SYBR Green su un sistema PCR in tempo reale. Ogni reazione da 20 μL consisteva in 10 μL di SYBR Green Master Mix, 0,5 μL ciascuno di primer diretto e indietro (10 μM), 2 μL di cDNA e 7 μL di acqua priva di nucleasi. Le condizioni di ciclismo erano: 95 °C per 30 secondi, poi 40 cicli a 95 °C per 5 secondi e 60 °C per 30 secondi. Dopo l'amplificazione è stata eseguita un'analisi della curva di fusione per verificare la specificità di un singolo prodotto. GAPDH fungeva da riferimento interno e l'espressione relativa veniva calcolata con il metodo 2−ΔΔCt . Le reazioni sono state eseguite in triplicata con tre repliche biologiche indipendenti. Le sequenze di primer sono elencate nella Tabella 1.
Tachia occidentale
L'espressione proteica di ACAN, COL2A1 e MMP13 è stata valutata nei condrociti dopo il trattamento con IL-1β e la sovraespressione SNRNP70. Le cellule sono state lavate due volte con soluzione salina fosfatata (PBS) fredda e lisata in un tampone RIPA contenente proteasi e fosfatasi. I lisati venivano incubati sul ghiaccio per 30 minuti con vortici periodici, poi centrifugati a 12.000 × g per 15 minuti a 4 °C. Le concentrazioni proteiche nei supernatandi eliminati sono state determinate utilizzando un kit BCA. Quantità uguali di proteine (30 μg per corsia) sono state separate al 10% di SDS-PAGE e trasferite alle membrane PVDF tramite trasferimento umido. Le membrane sono state bloccate con il 5% di latte scremato in TBST a temperatura ambiente per 1 ora, poi sondate durante la notte a 4 °C con anticorpi primari contro ACAN (1:1000), COL2A1 (1:1000) o MMP13 (1:1000). Dopo tre lavaggi TBST (10 min ciascuno), le membrane sono state incubate con anticorpi secondari coniugati con HRP (1:5000) per 1 ora a temperatura ambiente. Il segnale è stato sviluppato utilizzando reagente ECL e catturato su un sistema ChemiDoc XRS+. La densitometria a banda è stata eseguita con ImageJ, e tutti i segnali proteici bersaglio sono stati normalizzati in GAPDH come controllo del carico. I dati sono presentati come livelli relativi di proteine rispetto al gruppo di controllo.
Trasfezione
I condrociti sono stati trasfettati con un plasmide di sovraespressione SNRNP70 (OE-SNRNP70) una volta che le colture hanno raggiunto circa l'80% di confluenza. Per la trasfezione, le cellule sono state seminate in piastre a 6 pozzi a 2 × cellule 10⁵ per pozzo e lasciate ad attaccarsi durante la notte in un substrato di crescita standard (DMEM integrato con 10% di siero fetale bovino e 1% di penicillina/streptomicina) a 37 °C con 5% di CO₂. Le trasfezioni sono state effettuate utilizzando LipoFiter 3.0 seguendo le istruzioni del produttore. In breve, 2–3 μg di DNA plasmidico per pozzo venivano diluiti in 100 μL di mezzo siero e mescolati con la quantità appropriata di reagente lipidico. I complessi DNA-lipidici sono stati incubati per 15–20 minuti a temperatura ambiente per permettere la formazione di complessi, quindi aggiunti delicatamente a ogni pozzo contenente condrociti in un mezzo fresco privo di siero. Dopo 6 ore, il mezzo veniva sostituito con mezzo di crescita completo per ridurre la citotossicità.
L'efficienza della trasfezione e l'espressione SNRNP70 sono state valutate 48–72 ore dopo la trasfezione. SNRNP70 livelli di mRNA sono stati misurati tramite PCR quantitativa in tempo reale (qRT-PCR), con il GAPDH come controllo interno. L'espressione proteica è stata valutata utilizzando il Simple Western Automated Western Blot System secondo il protocollo del produttore. In breve, sono stati preparati i lisati cellulari, misurate le concentrazioni proteiche e i campioni caricati su cartucce capillari per la separazione automatica e la immunorilevazione con anticorpi anti-SNRNP70. L'efficienza della trasfezione è stata calcolata confrontando l'espressione SNRNP70 nelle cellule trasfectate con SNRNP70 oe-trasfettate con quella nelle cellule di controllo trasfettate con il vettore vuoto.
Immunofluorescenza
L'immunofluorescenza è stata utilizzata per esaminare i livelli di proteine IL-6 e MMP-13 nei condrociti oe-SNRNP70 dopo la stimolazione con IL-1β. Per un breve periodo, le cellule venivano seminate su coperture di vetro sterili in lastre a 24 pozzi e coltivate in condizioni standard fino a raggiungere il 70–80% di confluenza. Sono poi stati fissati con paraformaldeide al 4% per 15 minuti a temperatura ambiente e lavati tre volte con PBS. Per la permeabilizzazione, è stato applicato lo 0,1% di Triton X-100 in PBS per 10 minuti a temperatura ambiente. I siti di legame aspecifici sono stati bloccati incubando le cellule nell'albumina sieroica bovina (BSA) al 5% in PBS per 1 ora a temperatura ambiente.
Dopo il blocco, le cellule sono state incubate durante la notte a 4 °C con anticorpi primari contro IL-6 e MMP-13 (diluiti 1:200 in 1% di BSA/PBS). Dopo tre lavaggi con PBS per rimuovere gli anticorpi primari non legati, le cellule sono state incubate con anticorpi secondari coniugati con fluorofori specifici per specie (diluiti 1:500) per 1 ora a temperatura ambiente al buio. I nuclei sono stati controcolorati con 4′,6-diamidino-2-fenilindolo (DAPI) per 5 minuti. I coperchi venivano montati su vetri di vetro con mezzo di montaggio antifade, e le immagini di fluorescenza venivano catturate con un microscopio a fluorescenza a un ingrandimento del 20×. Per l'analisi quantitativa, 10 cellule selezionate casualmente per campione sono state analizzate in ImageJ per misurare l'intensità di fluorescenza delle proteine bersaglio. L'intensità media di fluorescenza è stata calcolata per ciascun gruppo e utilizzata per confronti statistici.
Saggio di chiusura della ferita da graffi cellulari
È stato eseguito un test di chiusura della ferita da graffio per valutare la capacità dei condrociti di chiudere un gap artificiale nella ferita in diverse condizioni di trattamento. I condrociti primari sono stati seminati in placche a 6 pozzi a una densità di 1 × 10⁵ cellule per pozzo e coltivati fino a raggiungere circa il 90% di confluenza. Un graffio lineare veniva generato nel monostrato della cella utilizzando una punta sterile di pipetta da 200 μL. Le cellule staccate sono state rimosse lavando due volte con PBS, e è stato poi aggiunto un nuovo mezzo di coltura completo contenente i trattamenti indicati. Le cellule sono state assegnate ai seguenti gruppi: controllo normale, IL-1β trattato e IL-1β più SNRNP70 sovraespressione. Immagini della stessa area della ferita sono state catturate nei momenti temporali di 6 e 12 ore dopo aver graffiato utilizzando un microscopio rovesciato (Figura supplementare 1). La chiusura della ferita è stata calcolata come la percentuale di riduzione dell'area della ferita rispetto all'area iniziale a 0 h utilizzando la seguente formula:
Chiusura della ferita (%) = [(area ferita a 0 h - area ferita al momento indicato) / area ferita a 0 h] × 100. (1)
Analisi statistica
Tutti i dati quantitativi sono presentati come la deviazione media ± standard (SD) da tre repliche biologiche indipendenti (n = 3) salvo diversa indicazione. Le analisi statistiche sono state effettuate utilizzando GraphPad Prism 8.0. Per confronti tra due gruppi, è stato utilizzato un test Student's t non accoppiato. La significatività statistica è stata indicata come segue: *p < 0,05 e **p < 0,01.
Risultati
SNRNP70 espressione nei tessuti della cavità articolare
Per indagare in modo completo il ruolo della SNRNP70 nell'OA, è stato condotto uno screening sistematico di 10 dataset di RNA-seq e microarray disponibili pubblicamente che soddisfacevano criteri rigorosi di inclusione ed esclusione (Tabella 2). SNRNP70 livelli di espressione sono stati accuratamente estratti e analizzati in questi dataset. Sorprendentemente, in 6 delle 10 coorti, l'espressione di SNRNP70 è stata significativamente ridotta in basso nei tessuti OA rispetto ai controlli normali (p < 0,05), suggerendo un modello costante di soppressione trascrizionale (Figura 1).
Da segnalare che tre dataset (GSE114007, GSE169077 e GSE19060) non hanno rivelato differenze statisticamente significative tra OA e campioni di controllo. Invece di ignorare queste discrepanze, sono state utilizzate strategie di correzione batch e integrazione dei dataset per migliorare la robustezza e l'affidabilità dell'analisi. In particolare, dataset derivati da piattaforme di sequenziamento identiche sono stati uniti per aumentare la potenza statistica. Ad esempio, GSE114007 è stato combinato con GSE89408 per generare GSE114007-89408, mentre GSE169077, GSE12021 e GSE55457 sono stati uniti in GSE169077-12021-55457 (Figura 1). Questo approccio integrativo ha minimizzato la variabilità tra gli studi e rafforzato la riproducibilità dei risultati. In sintesi, le analisi dei dataset umani rivelano una regolazione costante alla ribasso della SNRNP70 nei tessuti articolari dell'OA, suggerendo il suo potenziale come biomarcatore diagnostico. Tuttavia, non è chiaro se questa diminuzione causi direttamente la disregolazione dello splicing o la degenerazione della cartilagine negli esseri umani e attende la verifica, preferibilmente in modelli di tessuto umano.
Capacità diagnostica clinica della SNRNP70
Per valutare rigorosamente il valore diagnostico della SNRNP70 nell'OA, è stata condotta una meta-analisi completa che ha integrato dati da 165 campioni di OA e 125 controlli normali. Questo rappresenta, per quanto riguarda le conoscenze disponibili, la valutazione sistematica della SNRNP70 come potenziale biomarcatore diagnostico nell'OA. L'analisi di eterogeneità ha rivelato un'eterogeneità significativa tra i dataset (I2 = 72,9%; p = 0,001), rendendo necessario un modello a effetti casuali. L'analisi aggregata ha dimostrato una riduzione robusta e costante dell'espressione SNRNP70 nei tessuti OA rispetto ai controlli normali, con una differenza media standardizzata (SMD) di -1,07 (IC 95%: -1,34 a -0,80) (Figura 2A–B). Oltre al profiling espressivo, è stata ulteriormente valutata la performance diagnostica delle SNRNP70 . I risultati dei test diagnostici aggregati hanno rivelato una sensibilità combinata di 0,82 (IC 95%: 0,57–0,94) e una specificità di 0,88 (IC 95%: 0,73–0,95), sottolineandone la forte capacità discriminatoria (Figura 3A). In modo coerente, la curva della funzione del ricevitore (SROC) ha fornito un'area sotto la curva (AUC) di 0,92 (IC 95%: 0,90–0,94), evidenziando ulteriormente l'elevata accuratezza della SNRNP70 nel distinguere i pazienti con OA da individui sani (Figura 3B).
Per garantire la robustezza di questi risultati, è stata condotta un'analisi di sensibilità, confermando che l'esclusione sequenziale di singoli dataset non ha alterato in modo significativo la dimensione complessiva dell'effetto (Figura 4A). È importante notare che sia il test di asimmetria del diagramma funnel di Deek (p = 0,41) sia quello di Egger non hanno indicato un bias significativo di pubblicazione, rafforzando la credibilità dei risultati (Figura 4B). Insieme, questi dati mostrano che l'espressione SNRNP70 è ridotta nell'OA e suggeriscono che potrebbe fungere da biomarcatore diagnostico. Detto ciò, l'eterogeneità tra i dataset e l'assenza di una coorte di validazione indipendente richiedono cautela. Questi risultati sono quindi considerati preliminari, in attesa di ulteriori studi per chiarire l'utilità clinica della SNRNP70 nella diagnosi e gestione dell'OA.
SNRNP70 modulazione dell'espressione genica infiammatoria nell'OA
Per delineare il ruolo regolatore della SNRNP70 nella segnalazione infiammatoria durante la progressione dell'OA, è stato inizialmente stabilito un modello in vitro OA esponendo i condrociti a IL-1β, una citochina pro-infiammatoria ben caratterizzata. l'analisi qRT-PCR eseguita dopo 48 ore di stimolazione con IL-1β ha rivelato una significativa ridimensionamento dei livelli di mRNA SNRNP70 rispetto al gruppo NC (Figura 5). Questa soppressione dell'espressione di SNRNP70 in condizioni infiammatorie era coerente con i dati trascritomici provenienti da dataset di OA disponibili pubblicamente, fornendo così prove solide che SNRNP70 è costantemente repressa nell'infiammazione associata all'OA. Per approfondire se il ripristino dell'espressione SNRNP70 potesse modulare il fenotipo infiammatorio dei condrociti, le cellule sono state trasfettate utilizzando un plasmide di sovraespressione SNRNP70 (oe-SN). In modo notevole, l'espressione forzata di SNRNP70 ha sostanzialmente alleviato l'infiammazione indotta da IL-1β, come riflesso sia nei cambiamenti trascrizionali che traduzionali. In particolare, la qRT-PCR ha mostrato una forte riduzione dei livelli di mRNA di IL-6 e MMP-13 nel gruppo oe-SN rispetto ai controlli trattati con IL-1β (Figura 5).
Oltre a questi risultati molecolari, la colorazione da immunofluorescenza ha fornito prove cellulari dirette del potenziale antinfiammatorio della SNRNP70. Nelle cellule trattate con IL-1β, l'IL-6 ha mostrato un accumulo citoplasmatico pronunciato, coerente con uno stato infiammatorio attivato. Sorprendentemente, la sovraespressione di SNRNP70 ha portato a un'attenuazione notevole dell'intensità della colorazione citoplasmatica di IL-6 (Figura 6A), evidenziandone così la capacità di invertire la risposta infiammatoria a livello cellulare. Un modello simile è stato osservato per MMP-13, dove il trattamento con IL-1β ne ha aumentato l'espressione, ma SNRNP70 sovraespressione ha notevolmente soppresso la localizzazione e l'intensità del segnale di MMP-13 (Figura 6B).
A differenza delle precedenti indagini che si concentravano principalmente sul danno alla cartilagine strutturale, i dati in vitro dei condrociti di ratto suggeriscono che SNRNP70 agisca come regolatore dell'espressione genica infiammatoria. In particolare, l'espressione forzata di SNRNP70 mediatori pro-infiammatori attenuati guidati da IL-1β, inclusi IL-6 e MMP-13, in questo modello di ratto. È importante sottolineare che, poiché questi esperimenti sono stati condotti esclusivamente con un modello infiammatorio di ratti, non riproducono direttamente i risultati del dataset umano. Tuttavia, questi risultati offrono un quadro concettuale, indicando che SNRNP70 potrebbe funzionare non solo come fattore di splicing, ma anche come potenziale modulatore dell'infiammazione—una possibilità che merita un'ulteriore esplorazione nei tessuti umani.
Identificazione di vie correlate alla SNRNP70 nell'OA
Per esplorare le vie biologiche associate all'espressione SNRNP70 nell'osteoartrite, l'analisi di correlazione di Pearson è stata effettuata separatamente nei dataset pubblici trascricomici GSE98918, GSE117999, GSE129147, GSE51588, GSE169077_12021_55457, GSE114007-89408 e GSE82107-19060. I geni con un coefficiente di correlazione assoluto (|r|) > 0,8 e p < 0,05 sono stati considerati significativamente correlati con l'espressione SNRNP70 in ciascun dataset. È stata generata l'unione di geni correlati in tutti i dataset, producendo 929 geni correlati SNRNP70.
L'analisi di arricchimento delle vie KEGG è stata successivamente condotta utilizzando il pacchetto clusterProfiler, con aggiustamenti per test multipli tramite il metodo Benjamini–Hochberg. Questa analisi ha rivelato un arricchimento significativo dei geni identificati in diverse vie, inclusa la via di adesione focale (Figura 7). Questa cascata di segnalazione è nota per regolare l'adesione dei condrociti, la meccanotrasduzione e il rimodellamento ECM, tutti processi chiave nella progressione dell'OA. Insieme, questi risultati suggeriscono un legame tra l'espressione SNRNP70 e le firme di espressione genica correlate all'adesione focale nei dataset OA.
SNRNP70 media la riparazione infiammatoria dei condrociti tramite la via focale di adesione
Per valutare il ruolo della SNRNP70 nella capacità di guarigione delle ferite dei condrociti infiammatori, è stato eseguito un test di chiusura della ferita da graffio utilizzando condrociti primari. Le cellule sono state assegnate a tre gruppi: controllo normale, trattamento con IL-1β e IL-1β più SNRNP70 sovraespressione. La stimolazione IL-1β ha ridotto l'entità della chiusura del gap di gratto rispetto al gruppo di controllo normale, indicando una capacità di guarigione della ferita compromessa in condizioni infiammatorie. Al contrario, SNRNP70 sovraespressione ha promosso la chiusura del gap di gratto nei condrociti trattati con IL-1β rispetto al trattamento solo con IL-1β (Figura 8A). Collettivamente, questi risultati indicano che SNRNP70 sovraespressione potenzia la risposta di chiusura della ferita dei condrociti trattati con IL-1β.
A livello molecolare, le analisi Western blot hanno dimostrato che il trattamento con IL-1β soppresse l'espressione delle proteine della matrice cartilaginea ACAN e COL2A1, promuovendo al contempo la regolazione all'alto dell'enzima degradativo MMP13. È importante sottolineare che SNRNP70 sovraespressione non solo ha ripristinato i livelli di ACAN e COL2A1 , ma ha anche significativamente ridotto al ribasso la MMP13, preservando così l'integrità dell'ECM (Figura 8B). Meccanicamente, in vitro, gli effetti benefici della SNRNP70 erano strettamente associati all'attivazione della via di segnalazione dell'adesione focale.
Collettivamente, le analisi dei dataset umani rivelano che SNRNP70 è sottoregolata nell'OA e che la sua espressione è correlata con i geni coinvolti nella via di adesione focale. Nei condrociti di ratto esposti alla stimolazione dell'IL-1β, l'espressione forzata di SNRNP70 favorisce la riparazione delle cellule infiammatorie e la sintesi ECM, e si associa anche alla segnalazione focale di adesione. Sebbene queste osservazioni in vitro da un modello di ratto siano suggestive, esse non confermano direttamente i risultati derivati dai dataset umani. Tuttavia, queste linee di evidenza convergenti supportano un modello in cui SNRNP70 contribuisce alla patogenesi dell'OA umana tramite segnalazione di adesione focale — un'ipotesi che ora attende una conferma definitiva nei tessuti umani o in modelli in vivo con rilevanza umana.
DISPONIBILITÀ DEI DATI:
I dataset utilizzati e analizzati in questo studio sono disponibili dal dataset GEO (https://www.ncbi.nlm.nih.gov/geo/). Tutti i dati generati o analizzati durante questo studio sono stati completamente presentati e discussi all'interno del manoscritto. I dati grezzi di questo studio sono caricati come file supplementare.
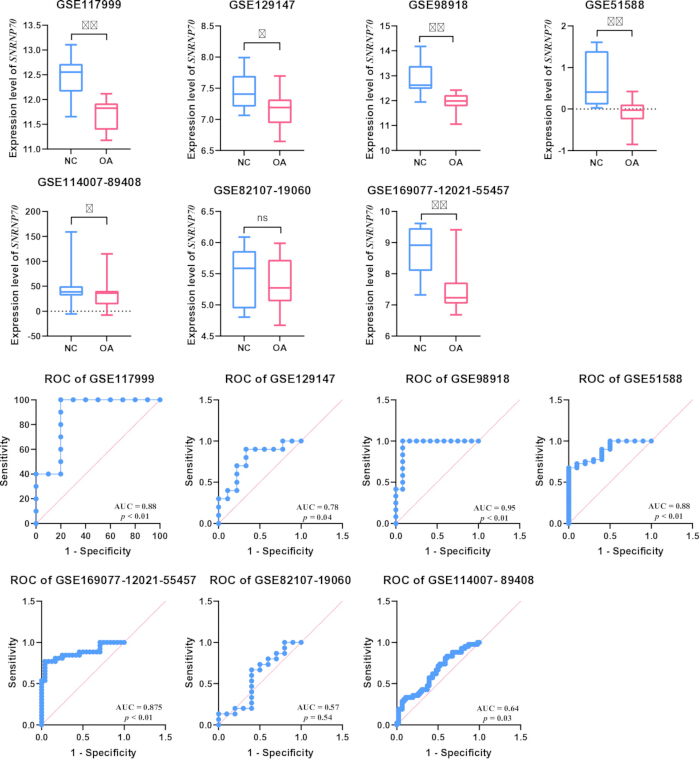
Figura 1: Il test t degli studenti e la curva ROC per sette studi. I risultati hanno suggerito che l'espressione SNRNP70 era inferiore nei tessuti OA rispetto a quelli NC in GSE117999, GSE129147, GSE98918, GSE51558, GSE114007-89408 e GSE169077-12021-55457 (p < 0,05), e l'AUC ROC indicava un'elevata fattibilità. p < 0,05 (*), p < 0,01(**). Clicca qui per visualizzare una versione più grande di questa figura.
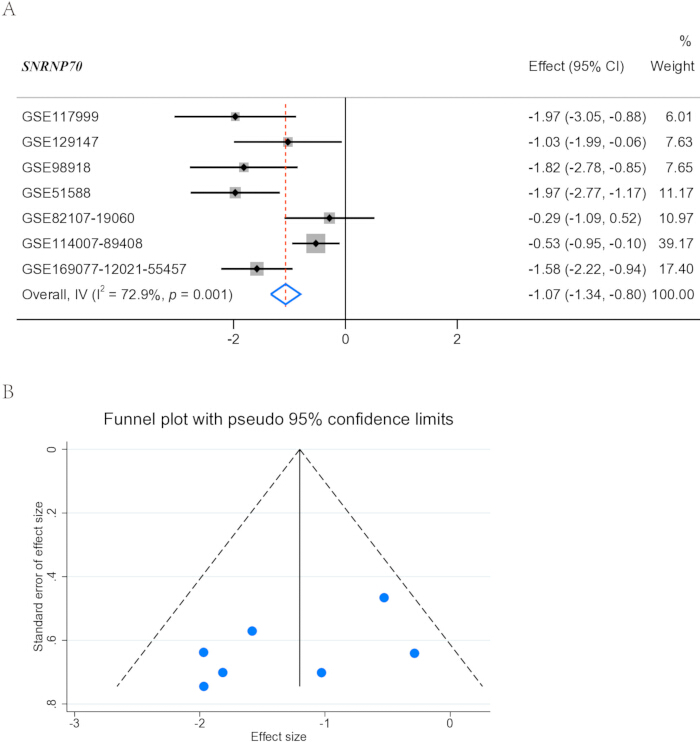
Figura 2: La meta-analisi per sette dataset. (A) I risultati hanno mostrato che I2 = 72,9%, p = 0,001, e la SMD complessiva era -1,07. (B) Il diagramma del funnel è stato valutato per il bias di pubblicazione nella meta-analisi. Si è scoperto che è fondamentalmente simmetrico. Clicca qui per visualizzare una versione più grande di questa figura.
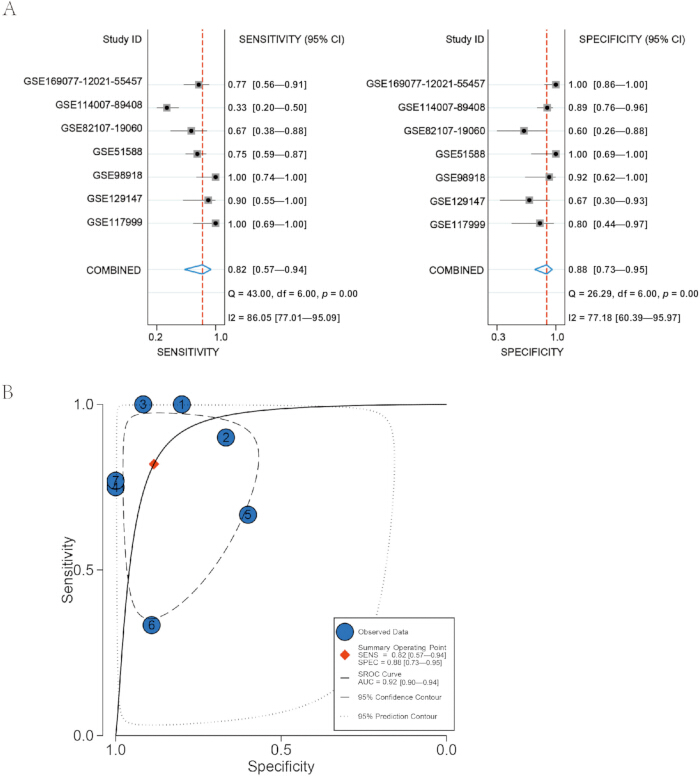
Figura 3: Le prestazioni diagnostiche di SNRNP70. (A) Il Q-test ha rivelato che sia la sensibilità che la specificità avevano valori p < 0,05, con valori I2 rispettivamente dell'86,05% e del 77,18%, indicando una notevole eterogeneità. Lo studio ha riportato una sensibilità di 0,82 e una specificità di 0,88, evidenziandone la performance notevole. (B) L'AUC della sROC era 0,92, indicando un alto livello di fiducia nella ricerca. Clicca qui per visualizzare una versione più grande di questa figura.
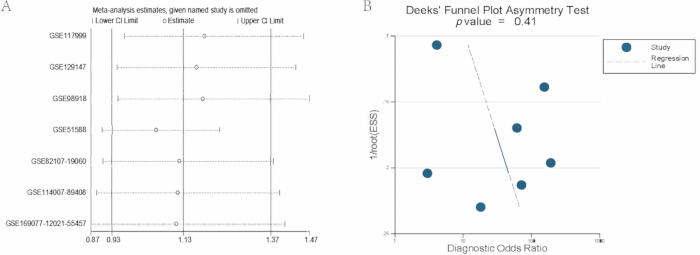
Figura 4: Analisi dell'influenza e grafico del Funnel di Deek. (A) L'analisi dell'influenza ha indicato che escludere un singolo studio non ha influito in modo significativo sui risultati complessivi. (B) In sette studi, tutti i risultati non hanno mostrato bias significativi (p = 0,41). Clicca qui per visualizzare una versione più grande di questa figura.
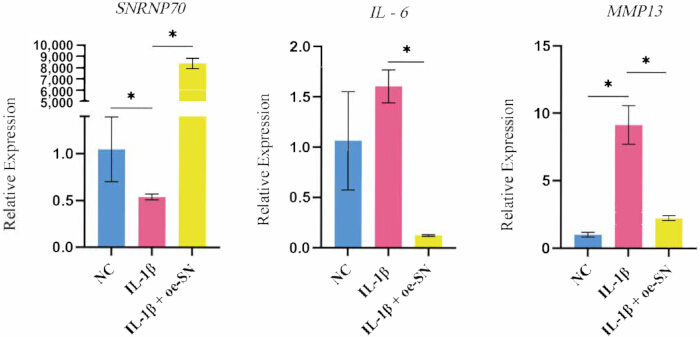
Figura 5: I risultati della qRT-PCR indicano una significativa riduzione dell'espressione SNRNP70 nei condrociti dopo il trattamento con IL-1β. Nel gruppo oe-SN, si è osservata una notevole diminuzione dei livelli di espressione dei marcatori infiammatori IL-6 e MMP13 rispetto al gruppo IL-1, suggerendo che la sovraespressione di SNRNP70 può invertire i marcatori infiammatori nei condrociti trattati con IL-1β. I dati sono presentati come media ± SD da n = 3 repliche biologiche indipendenti. i valori p < 0,05 (*), i valori p < 0,01(**). Clicca qui per visualizzare una versione più grande di questa figura.
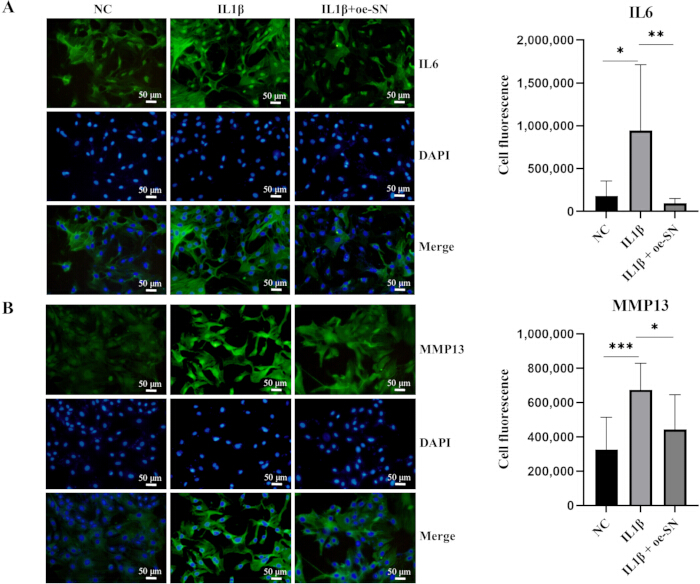
Figura 6: L'analisi IF dei condrociti trattati con IL-1β dopo il trattamento con IL-1β, che mostra l'intensità di fluorescenza. (A) L'intensità di fluorescenza di IL-6 e (B) MMP13 è aumentata significativamente. Tuttavia, la sovraespressione di SNRNP70 ha portato a una marcata riduzione dell'intensità di fluorescenza dei marcatori infiammatori IL-6 e MMP13. Questi risultati suggeriscono che SNRNP70 sovraespressione possa mitigare l'infiammazione nei condrociti trattati con IL-1β. Tutte le immagini microscopiche sono state scattate con un ingrandimento di 10x. I dati sono presentati come media ± SD da n = 3 repliche biologiche indipendenti. i valori p < 0,05 (*), i valori p < 0,01(**). Barra della scala = 50 μm. Clicca qui per visualizzare una versione più grande di questa figura.
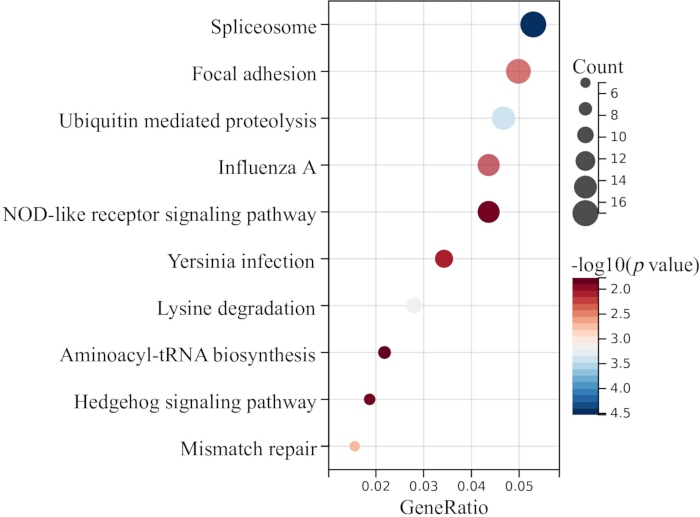
Figura 7: Analisi di arricchimento KEGG basata su correlazione dei geni associati alla SNRNP70 nei dataset sull'osteoartrite. I primi 10 percorsi arricchiti identificati da clusterProfiler (correzione di Benjamini–Hochberg). Dimensione della bolla = numero di geni; colore = significato (-log10(valore p )). La via di adesione focale (evidenziata) media l'adesione dei condrociti, la meccanotrasduzione e il rimodellamento ECM nell'OA. Clicca qui per visualizzare una versione più grande di questa figura.
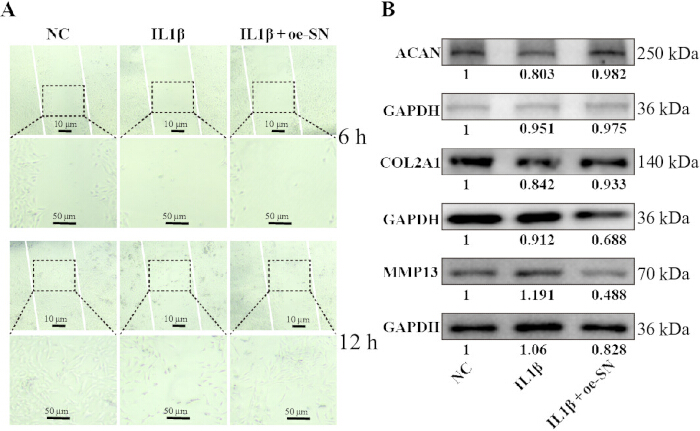
Figura 8: SNRNP70 sovraespressione ripristina la riparazione dell'ECM nei condrociti trattati con IL-1β. (A) Immagini della chiusura della ferita da graffio nel controllo, trattato con IL-1β e condrociti con sovraespressione di IL-1β e SNRNP70. (B) Western blot rappresentativi della matrice cartilaginea chiave e delle proteine cataboliche. Le membrane sono state esaminate per ACAN, COL2A1 e MMP13. GAPDH è mostrato come un controllo di carico. Gli ingrandimenti sono i seguenti: gruppi NC, IL-1β e IL-1β+oe-SN: a 4x ingrandimento: barra di scala = 10 μm. A ingrandimento 10x: barra di scala = 50 μm. Clicca qui per visualizzare una versione più grande di questa figura.
Figura supplementare 1: Analisi quantitativa della chiusura delle ferite e della densitometria Western blot. (A) Quantificazione della chiusura da graffio nei condrociti primari dai gruppi NC, IL-1β e IL-1β + oe-SNRNP70. (B) Quantificazione densitometrica delle bande occidentali di ACAN, COL2A1 e MMP13. Le intensità delle bande sono state quantificate usando ImageJ e normalizzate a GAPDH. I dati sono presentati come media ± SD da n = 3 repliche biologiche indipendenti. *p < 0,05, **p < 0,01. Clicca qui per scaricare questo file.
| Gene bersaglio | Sequenza di innesco frontale | Sequenza di innesco frontale |
| GAPDH | 5'-TCTCTGCTCCTCCCTCTTCT-3' | 5'-ATCCGTTCACACCGACCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGGTGCTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAAGACTATCCCCGCC-3' | 5'-GGCATGACTCTCAATGCG-3' |
Tabella 1: I primer per i geni target. Sono mostrate sequenze di primer avanti e indietro per GAPDH, SNRNP70, IL6 e MMP13 utilizzate nella qRT-PCR, tutte in orientamento 5′ > 3′. GAPDH era il controllo interno.
| Documento di Studio | Piattaforma | NC (n) | OA (n) | Tessuti |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | Cartilagini |
| GSE117999 | GPL20844 | 10 | 10 | Cartilagini |
| GSE129147 | GPL15207 | 9 | 10 | Cartilagini |
| GSE169077 | GPL96 | 5 | 6 | Cartilagini |
| GSE12021 | GPL96 | 13 | 20 | Synoviums |
| GSE55457 | GPL96 | 10 | 10 | Synoviums |
| GSE89408 | GPL11154 | 28 | 22 | Synoviums |
| GSE82107 | GPL570 | 7 | 10 | Synoviums |
| GSE19060 | GPL570 | 3 | 5 | Menisco |
| GSE98918 | GPL20844 | 12 | 12 | Menisco |
| GSE51588 | GPL13497 | 10 | 40 | Osso sottocondrale |
Tabella 2: I dataset in questo studio dal database GEO. Riepilogo di 11 dataset GEO disponibili pubblicamente che soddisfano i criteri di inclusione. Per ogni dataset, sono forniti ID di accessione, piattaforma e il numero di campioni di controllo normale (NC) e di osteoartrite (OA), insieme al tipo di tessuto. n = numero di campioni.
Discussione
Il presente lavoro suggerisce che SNRNP70 possa funzionare come gene protettivo nella patogenesi dell'OA, un disturbo articolare multifaccettato che rappresenta una significativa sfida sanitariaglobale 29,30. Questo studio è il primo a riportare il ruolo della SNRNP70 nell'OA. In questo studio, abbiamo dimostrato una significativa riduzione dell'espressione di SNRNP70 nei tessuti OA, come dimostrato dall'analisi dei dati GEO (SMD complessivo = -1,07, IC 95%: -1,34, -0,80; Figura 2). È importante sottolineare che questo risultato è stato successivamente convalidato nei condrociti trattati con IL-1β. Inoltre, questo studio ha esplorato il ruolo della SNRNP70 nella risposta infiammatoria dei condrociti trattati con IL-1β. In quanto gene protettivo associato all'OA, SNRNP70 mostrato la capacità di ostacolare la progressione dell'OA sopprimendo l'espressione di IL-1 e MMP13. Ad oggi, questo è il primo studio sperimentale a riportare una disparità rilevabile nei livelli di espressione SNRNP70 tra tessuti OA e NC, suggerendo un possibile ruolo della SNRNP70 nella patogenesi OA. Questa osservazione affascinante ci spinge a considerare le possibili implicazioni diagnostiche della SNRNP70 nell'OA.
La meta-analisi che abbiamo condotto, che incorpora molteplici dataset e array RNA-seq, ha fornito prove della potenziale rilevanza diagnostica di SNRNP70. La SMD di -1,07 ha evidenziato la costante regolazione al ribasso della SNRNP70 nei tessuti OA, aumentando la possibilità della sua utilità come candidato diagnostico. L'analisi della curva ROC ha ulteriormente sottolineato questo potenziale, con un AUC di 0,92, indicativo di un robusto potere discriminatorio. Inoltre, i valori combinati di sensibilità e specificità supportavano l'idea che SNRNP70 potesse consentire una diagnosi di OA più precoce e accurata. Oltre alla sua promessa diagnostica, SNRNP70 rimane un candidato di interesse nel contesto della gestione dell'OA. La patogenesi dell'OA è un processo multifattoriale che coinvolge sovraccarico meccanico, invecchiamento, predisposizione genetica einfiammazione 31,32. Tra questi fattori, l'infiammazione ha ottenuto un riconoscimento crescente come fattore chiave della progressionedell'OA 33,34. Orchestra una cascata di eventi, tra cui degradazione della cartilagine, infiammazione sinoviale e alterazione dell'omeostasi articolare.
Questo studio ha esplorato il potenziale antinfiammatorio della SNRNP70, motivata dal suo ruolo come componente dello spiosoma35,36. Utilizzando un modello in vitro, i condrociti sono stati trattati con IL-1β ricombinante di ratto per imitare il microambiente infiammatorio nelle articolazioni OA. Questi risultati suggeriscono che SNRNP70 possa giocare un ruolo nel modulare l'infiammazione nei condrociti stimolati da IL-1β. I saghi IF fornivano ulteriore supporto alle proprietà antinfiammatorie della SNRNP70. I condrociti trattati con IL-1β hanno mostrato un'espressione aumentata di proteine infiammatorie, attenuate dall'oe-SN. Questa modulazione dell'espressione proteica infiammatoria da parte della SNRNP70 evidenzia un potenziale legame con la cascata infiammatoria associata alla patogenesi dell'OA.
Sebbene questo studio fornisca evidenze osservazionali del potenziale diagnostico e terapeutico della SNRNP70 nell'OA, i meccanismi precisi alla base dei suoi effetti rimangono un ambito di interesse37. SNRNP70 è un componente fondamentale dello sliceosoma, un complesso coinvolto nello splicing dell'RNA, un processo fondamentale nella regolazione dell'espressione genica. Lo splicing dell'RNA svolge un ruolo fondamentale nell'espressione genica rimuovendo le regioni non codificanti (introni) e unendo le regioni codificanti (esoni) delle molecole di mRNA, modellando infine il proteoma 38,39,40. È plausibile che il coinvolgimento di SNRNP70 nello splicing dell'RNA possa influenzare l'espressione dei geni associati alla patogenesi dell'OA. I specifici bersagli RNA e gli eventi di splicing regolati dalla SNRNP70 nei tessuti affetti dall'OA restano da chiarire. Comprendere questi meccanismi può offrire preziose informazioni sulle basi molecolari dell'OA e sui target candidati per ulteriori indagini. Inoltre, ricerche future dovrebbero esplorare l'interazione della SNRNP70 con altre molecole implicate nella patogenesi dell'OA. Indagare la sua comunicazione incrociata con le vie di segnalazione coinvolte in infiammazione, degradazione della cartilagine e rimodellamento del tessuto articolare potrebbe fornire una comprensione più completa dei suoi effetti sfaccettati.
Questo studio presenta alcune limitazioni che meritano di essere considerate. Sebbene la meta-analisi abbia incorporato un numero sostanziale di dataset, variazioni nel disegno dello studio, nella demografia dei pazienti e nell'elaborazione dei dati potrebbero introdurre eterogeneità. Inoltre, i dataset inclusi variavano per origine tissutale (ad esempio, cartilagine rispetto a sinovia) e per piattaforme di elaborazione, il che potrebbe in parte spiegare l'eterogeneità tra gli studi osservata (I2 = 73,3%). Inoltre, questa analisi integrativa si basava su dataset umani disponibili pubblicamente, mentre gli esperimenti funzionali utilizzavano condrociti isolati da ratti neonatali. Questa discrepanza tra specie limita la misura in cui i risultati in vitro possono essere direttamente estrapolati alla fisiopatologia dell'OA umana. Un'altra avvertenza è la dipendenza da un modello acuto di stimolazione IL-1β, che cattura solo la risposta infiammatoria precoce e non ricapitola completamente la natura cronica, progressiva e multifattoriale dell'OA negli esseri umani. Inoltre, gli esperimenti funzionali erano limitati ad approcci di guadagno di funzione (SNRNP70 sovraespressione); Non sono stati eseguiti esperimenti di perdita di funzione (ad esempio, SNRNP70 knockdown), il che rappresenta una limitazione dello studio attuale. Infine, sebbene le analisi di correlazione implichino SNRNP70 nella via di adesione focale, gli eventi di splicing FAK non sono stati esaminati direttamente e non sono state fornite prove sperimentali che la segnalazione di adesione focale sia alterata a valle di SNRNP70 . Pertanto, è necessaria la validazione in coorti di pazienti più ampie e modelli animali per rafforzare la solidità di questi risultati. Inoltre, gli esperimenti in vitro hanno utilizzato un modello di coltura cellulare, che potrebbe non ricapitolare completamente il complesso microambiente in vivo delle articolazioni OA. Studi futuri dovrebbero esplorare gli effetti della SNRNP70 nei modelli animali dell'artrosi per valutarne il potenziale terapeutico in un contesto fisiologicamente più rilevante.
Dichiarazioni
Gli autori non hanno conflitti di interesse.
Ringraziamenti
Questa ricerca è stata finanziata dal Guangxi Key Research, Cina (GuiKe AB22035014), dal Fondo Speciale di Innovazione Caratteristica del Primo Ospedale Affiliato dell'Università Medica del Guangxi (YYZS2022003) e dal Progetto Congiunto Provinciale di Innovazione in Scienze e Tecnologie Sanitarie di Hainan (WSJK2026QN087).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Anticorpo primario, diluizione 1:1000 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | Anticorpo primario, diluizione 1:1000 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | Antibiotici per coltura cellulare |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | Anticorpo primario, diluizione 1:1000 |
| BCA protein assay kit | Thermo Fisher Scientific | 23225 | Determinazione della concentrazione totale di proteine |
| CFX96 Real-Time PCR Detection System | Bio-Rad | 1855195 | Sistema di rilevazione PCR in tempo reale |
| ChemiDoc XRS+ imaging system | Bio-Rad | 1708265 | Sistema di imaging a chemiluminescenza |
| Collagenase type II | Sigma-Aldrich | C6885 | Digestione del tessuto cartilagineo, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | Controstatino nucleare |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | Medium di coltura cellulare di base |
| ECL reagent | Thermo Fisher Scientific | 34580 | Reagente di chemiluminescenza migliorata |
| Fetal bovine serum | Gibco | 10082147 | Concentrazione al 10% come supplemento di coltura |
| Fluorescent microscope | Olympus | BX53 | Imaging immunofluorescenza (ingrandimento 20x) |
| GEO database | NCBI | N/A | Dataset pubblici di RNA-seq e microarray |
| GraphPad Prism 8.0 | GraphPad | N/A | Analisi della curva ROC |
| HRP-conjugated secondary antibodies | Santa Cruz Biotechnology | sc-516102 | Anticorpo secondario |
| ImageJ software | NIH | N/A | Software di analisi densitometrica |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Reagente per trasfezione |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Misurazione della purezza e della concentrazione dell'RNA (rapporto A260/280) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Plasmid per sovraespressione |
| Penicillin | Thermo Fisher Scientific | 15140122 | Antibiotico per coltura cellulare |
| Primer-BLAST | NCBI | N/A | Progettazione di primer specifici per geni |
| Primers (synthesized) | Sangon Biotech | N/A | Sintesi commerciale di primer PCR |
| protease and phosphatase inhibitor cocktails | Roche | 4693159001 | Cocktail di inibitori di proteasi e fosfatasi |
| PVDF membrane | Millipore | IPVH00010 | Membran per trasferimento proteico |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | Sintesi del cDNA di prima generazione |
| RIPA buffer | Beyotime | P0013B | Buffer di lisi cellulare con inibitori di proteasi e fosfatasi |
| Recombinant rat interleukin-1β | PeproTech | 400-01B | Indurre la risposta infiammatoria nei condrociti |
| Sangerbox platform | http://vip.sangerbox.com/ | N/A | Analisi della curva ROC |
| Simple Western Automated Western Blot System | ProteinSimple Jess | Jess (model 004-600) | Sistema automatizzato per la rilevazione dell'espressione proteica |
| Stata 14.0 | Stata | N/A | Meta-analisi |
| Streptomycin | Thermo Fisher Scientific | Antibiotico per coltura cellulare | |
| SYBR® Premix Ex Taq™ Kit | Takara | QPK-201 | PCR quantitativa in tempo reale |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Estrazione di RNA totale dai condrociti |
| Trypsin-EDTA | Gibco | 25200072 | Distacco cellulare, trypsina-EDTA allo 0,25% |
Riferimenti
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).